Dit werk presenteert een snelle RNA-extractie- en vergelijkingsmethode op transcriptniveau voor het analyseren van genexpressie in het beerdiertje Hypsibius exemplaris. Met behulp van fysische lysis vereist deze high-throughput-methode een enkel beerdiertje als uitgangsmateriaal en resulteert in een robuuste productie van cDNA voor kwantitatieve reverse transcription polymerase chain reaction (qRT-PCR).
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
RNA-extractie met één dier en één buis voor vergelijking van relatieve transcriptieniveaus via qRT-PCR in het beerdiertje Hypsibius exemplaris
In dit artikel
Samenvatting
Samenvatting
Het beerdiertje Hypsibius exemplaris is een opkomend modelorganisme dat bekend staat om zijn vermogen om extreme omgevingsfactoren te overleven. Om de moleculaire mechanismen en de genetische basis van een dergelijke extremotolerantie te onderzoeken, vertrouwen veel onderzoeken op RNA-sequencing (RNA-seq), die kan worden uitgevoerd op populaties variërend van grote cohorten tot individuele dieren. Reverse transcription polymerase chain reaction (RT-PCR) en RNA-interferentie (RNAi) worden vervolgens gebruikt om respectievelijk RNA-seq-bevindingen te bevestigen en de genetische vereisten voor kandidaatgenen te beoordelen. Dergelijke studies vereisen een efficiënte, nauwkeurige en betaalbare methode voor RNA-extractie en meting van relatieve transcriptniveaus door kwantitatieve RT-PCR (qRT-PCR). Dit werk presenteert een efficiënte single-tardigrade, single-tube RNA-extractiemethode (STST) die niet alleen op betrouwbare wijze RNA isoleert van individuele tardigrades, maar ook de vereiste tijd en kosten voor elke extractie vermindert. Deze RNA-extractiemethode levert hoeveelheden cDNA op die kunnen worden gebruikt om meerdere transcripten te amplificeren en te detecteren door middel van kwantitatieve PCR (qRT-PCR). De methode wordt gevalideerd door dynamische veranderingen te analyseren in de expressie van genen die coderen voor twee heat-shock-gereguleerde eiwitten, Heat-Shock Protein 70 β2 (HSP70 β2) en Heat-Shock Protein 90α (HSP90α), waardoor het mogelijk wordt om hun relatieve expressieniveaus bij aan hitte blootgestelde personen te beoordelen met behulp van qRT-PCR. STST vormt een effectieve aanvulling op bestaande bulk- en enkelvoudige beerdiertjes RNA-extractiemethoden, waardoor snel en betaalbaar onderzoek van individuele beerdiertjes transcriptieniveaus door qRT-PCR mogelijk is.
Inleiding
Beerdiertjes zijn kleine meercellige dieren die bekend staan om hun vermogen om extreme omstandigheden te overleven die dodelijk zijn voor de meeste andere levensvormen1. Deze dieren kunnen bijvoorbeeld bijna 1000 keer de dosis ioniserende straling overleven die dodelijk is voor mensen 2,3,4,5,6,7,8,9,10, bijna volledige uitdroging 11,12,13,14,15, bevriezing bij afwezigheid van toegevoegde cryoprotectiven 16,17,18, en, in hun uitgedroogde toestand, zelfs het vacuüm van de ruimte 19,20. Vanwege hun unieke vermogen om te overleven in extreme omgevingen, zijn deze dieren fundamentele modellen geworden voor het begrijpen van extremotolerantie in complexe, meercellige organismen 1,21,22,23.
Stabiele genetische manipulatie van deze opmerkelijke dieren, inclusief transgenese en kiembaangenmodificatie, is tot voor kort ongrijpbaar gebleven 24,25. Als zodanig worden de meeste experimenten om moleculaire mechanismen van extremotolerantie te onthullen uitgevoerd door middel van transcriptionele profilering via RNA-sequencing. Er bestaan veel waardevolle en informatieve RNA-sequencing-datasets voor beerdiertjes onder verschillende extreme omstandigheden, variërend van straling 8,9,26,27,28, hittestress 29, vriesstress12 en uitdroging 27,30,31,32,33. Sommige van deze onderzoeken hebben gebruik gemaakt van bulk-RNA-extractie- en zuiveringsmethoden om ons moleculaire begrip van extremotolerantie te verlichten. Bulkextractie van RNA-transcripten van veel dieren verhindert echter de analyse van variatie in genexpressie tussen individuen, waardoor de potentiële rijkdom van meer verfijnde datasets wordt gemist. Belangrijk is dat deze studies vaak heterogene populaties van dieren analyseren, waaronder zowel dieren die omgevingsstressoren overleven als dieren die dat niet doen. Als zodanig worden deze studies verward door het gemiddelde te nemen van expressiegegevens van meerdere en mogelijk dramatisch verschillende responstoestanden. Om dit probleem aan te pakken, ontwikkelden Arakawa et al., 201634 een elegante low-input RNA-seq-pijplijn die een RNA-extractiekit toepast, gevolgd door een lineaire PCR-amplificatiestap met behulp van enkele 34,35,36 of meerdere 30,37,38 dieren als input. Deze studies zijn van fundamenteel belang geweest voor ons begrip van beerdier-extremotolerantie22. Interessant is dat dit protocol ook is toegepast op qRT-PCR met zeven dieren als uitgangsmateriaal24.
In de meeste modelorganismen wordt qRT-PCR, na het identificeren van potentiële doelen via RNA-seq, vervolgens uitgevoerd om transcriptionele veranderingen te bevestigen die door RNA-seq zijn geïdentificeerd en om het expressietijdverloop van kandidaatgenen op een manier met hoge resolutie te beoordelen. Om de functie van geïdentificeerde genen te testen, worden dergelijke studies vaak gevolgd door RNAi-gemedieerde knockdown van moleculaire doelen39,40 en analyse van extremotolerante capaciteit12,41. De werkzaamheid van elke RNAi-knockdown wordt doorgaans bevestigd door qRT-PCR door de afname van de overvloed aan transcripten direct te volgen. RNAi is echter een arbeidsintensief proces in beerdiertjes, aangezien elk dsRNA moet worden toegediend via handmatige micro-injectie van individuen39,40. Vanwege de lage doorvoer van deze strategie zou een snelle, goedkope RNA-extractiemethode die is aangepast voor qRT-PCR van individuele dieren zeer waardevol zijn voor onderzoek naar beerdiertjes. Hoewel er eerdere methoden zijn ontwikkeld om RNA uit enkelvoudige beerdiertjes te extraheren, hebben deze protocollen hun extractie niet gecombineerd met qRT-PCR, maar in plaats daarvan vertrouwd op op optische dichtheid gebaseerde methoden 12,40,41. Gemotiveerd door deze uitdagingen, probeerden we een protocol te ontwikkelen dat betrouwbaar RNA oplevert in kwantiteit en kwaliteit dat kan worden gebruikt voor qRT-PCR uit enkele H. exemplaris.
Aangepast op basis van een RNA-extractieprotocol met één dier dat is ontwikkeld voor Caenorhabditis elegans42, is STST geoptimaliseerd voor H. exemplaris. De extractiemethode bestaat uit zes snelle vries-dooistappen, waarbij de cuticula fysiek wordt verstoord, waardoor RNA-extractie en daaropvolgende cDNA-synthese mogelijk zijn. De STST-methode verkort de extractietijd met meer dan 24 keer in vergelijking met bulk-RNA-extractiemethoden, zoals beschreven door Boothby, 201843, en met 30% in vergelijking met RNA-extractiekits met een enkel beerdiertje, zoals beschreven door Arakawa et al., 201634. Verder is het aantal interacties tussen monster en experimentator verminderd van 5 naar slechts 1 in vergelijking met preparaten van de RNA-extractiekit, waardoor het risico op besmetting door exogene ribonucleases wordt verminderd. Bij het zoeken naar genen die sterk tot expressie worden gebracht, produceert de STST-methode voldoende cDNA voor 25 kwantitatieve RT-PCR-reacties per enkel beerdiertje, waarvoor slechts 1 μL van het totale cDNA-volume van 25 μL per reactie nodig is. Sjabloonconcentraties moeten echter empirisch worden bepaald voor transcripten met een lagere abundantie.
De werkzaamheid van de STST-methode voor het analyseren van dynamische veranderingen in genexpressie werd geëvalueerd door de differentiële expressie te onderzoeken van de genen die coderen voor heat-shock eiwit-90α (HSP90α) en heat-shock eiwit 70β2 (HSP70β2) als reactie op kortdurende hitteschok bij 35°C gedurende 20 minuten. Zowel HSP70β2 als HSP90α worden in de meeste eukaryote organismen snel opgereguleerd na kortstondige blootstelling aan hitteschokken (20 min)42. Analyse in H. exemplaris toonde aan dat zowel de HSP70β2- als de HSP90α-coderende RNA's geëxtraheerd uit enkelvoudige warmtebehandelde beerdiertjes statistisch significante toename van de expressie vertoonden na kortstondige blootstelling aan hitte. Deze bevindingen tonen aan dat het STST-protocol kan worden gebruikt om dynamische veranderingen in genexpressie bij individuele dieren in de loop van de tijd te analyseren.
De STST-extractiemethode moet een aanvulling vormen op bestaande experimentele methoden zoals RNA-seq door snelle en goedkope RNA-extractie en daaropvolgende vergelijking van transcriptieniveaus door qRT-PCR mogelijk te maken. Deze methode zal ook waardevol zijn voor het beoordelen van de efficiëntie en penetrantie van RNAi bij handmatig geïnjecteerde individuen, meer kwantitatief dan alleen optische dichtheid. Ten slotte is het vanwege hun vergelijkbare cuticulaire structuren en fysieke kenmerken waarschijnlijk dat deze methode ook effectief zal zijn voor het analyseren van genexpressie in andere beerdiersoorten44.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
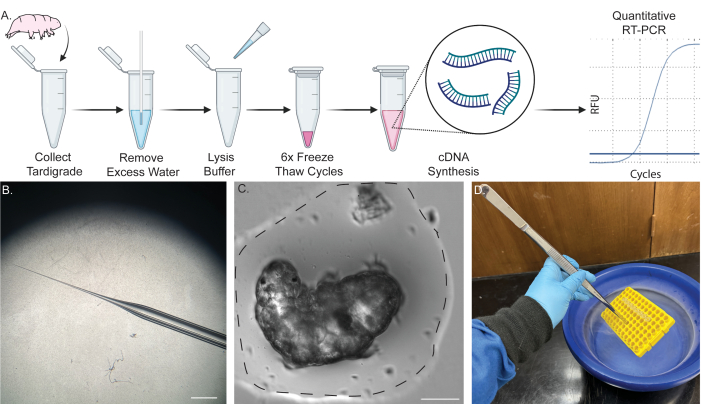
Figuur 1: Pijplijn met één buis voor RNA-extractie uit een enkel beerdiertje. (A) Schema met het protocol voor RNA-extractie uit een enkel beerdiertje, inclusief zes vries-dooicycli en daaropvolgende cDNA-synthese. Monsters kunnen vervolgens worden gebruikt voor RT-PCR en qRT-PCR. (B) Afbeelding van de micropipetconus die wordt gebruikt voor het verwijderen van water. Schaal balk: 2 mm. (C) Helder veldbeeld van een beerdiertje in een kleine hoeveelheid water (stippellijn). Verwijdering van het meeste water in de aangegeven mate is vereist voor een succesvolle extractie en voorkomt verdunning van de lysisbuffer. Schaal balk: 50 μm. (D) Afbeelding van onderdompeling van monsters in vloeibare stikstof met behulp van een lange tang om de monsters snel veilig te bevriezen en te ontdooien. Een deel van de inhoud is gemaakt in BioRender. Kirk, M. (2022) BioRender.com/d93s511 Klik hier om een grotere versie van deze figuur te bekijken.
OPMERKING: Figuur 1A toont een schema van de procedure. Voor gedetailleerde procedures voor het kweken van beerdiertjes en algen, zie eerder gepubliceerde rapporten 45,46,47.
1. Sterilisatie van bronwater
- Giet 2 L bronwater uit een waterkan van 5 gallon (zie Materiaaltabel voor details) in een autoclaafveilige glazen fles van 2 L.
- Plaats de dop op de autoclaafbestendige fles en sluit deze af met een kleine hoeveelheid autoclaaftape. Draai de fles niet vast; Plaats de dop erop.
- Autoclaveer het bronwater gedurende 50 minuten op een nat programma zonder droogstap.
- Laat het water op kamertemperatuur (RT) komen en sluit de dop goed af voordat u deze bij RT opbergt.
2. Glazen micropipet trekken (met een pipettrekker)
- Bevestig een glazen micropipet (buitendiameter: 1 mm, binnendiameter: 0,58 mm, lengte: 10 cm) op een micropipettrekker. Vermijd contact met het verwarmingsfilament, omdat dit de vorm van de pipet zal veranderen en het filament zal beschadigen.
- Bepaal het trekken van de pipet empirisch voor elke filament- en pipettrekker. Om als uitgangspunt voor optimalisatie te dienen, gebruikt u echter 78 °C en een enkele trekstap met een trekgewicht van 182,2 g.
- Laat het filament verhitten en de zwaartekracht de glazen micropipet scheiden in twee glazen micropipetten met scherpe punten (Figuur 1B).
- Bewaar deze micropipetten van getrokken glas in een gesloten petrischaaltje van 100 mm met was of klei om ze op hun plaats te houden en te voorkomen dat de scherpe punten breken.
3. Micropipet trekken met glas (zonder pipettrekker)
- Steek een bunsenbrander of andere gecontroleerde vlambron aan op een lage stand.
- Neem een glazen micropipet met één uiteinde in elke hand.
- Houd het midden van de glazen micropipet boven de vlam totdat het glas begint te smelten. Trek vervolgens snel de twee uiteinden uit elkaar. Hierdoor ontstaan twee zeer delicate scherpe uiteinden.
- Breek de punt lichtjes met een steriele fijne tang.
- Bewaar deze micropipetten van getrokken glas in een gesloten petrischaaltje van 100 mm met was of klei om ze op hun plaats te houden en te voorkomen dat de scherpe punten breken.
4. RNA-extractie
- Verkrijg 0,5 L vloeibare stikstof in een cryo-veilige container.
LET OP: Vloeibare stikstof is cryogeen en kan brandwonden veroorzaken bij blootstelling aan huid of ogen. Gebruik bij het hanteren beschermende kleding, een spatbril, nitrilhandschoenen, cryohandschoenen, een laboratoriumjas en schoenen met gesloten tenen. Zorg ervoor dat de container geschikt is voor vloeibare stikstof voordat u de vloeistof vervoert. Het gebruik van een ethanol-droogijsbad voor deze stap is misschien ook mogelijk. - Maak een cDNA-synthesemastermix: een oplossing van 10 μL met 1 μL willekeurige hexamerenprimer, 2 μL DNase, 4 μL 5x RT Buffer, 1 μL Enzyme Mix, 1 μL H2O en 1 μL 10 mM dNTP's. Bewaar deze oplossing op ijs.
- Bereid de tardigrade lysisbuffer voor (5 mM Tris (pH = 8), 0,5% (v/v) Detergent 1, 0,5% (v/v) Detergent 2, 0,25 mM EDTA in steriel nucleasevrij water).
OPMERKING: Deze oplossing kan 6 maanden op het werkblad worden bewaard. Zorg echter voor steriliteit en vermijd mogelijke bronnen van RNA-besmetting. - Voldoende lysisbuffer voor extracties (2 μL/beerdiertje).
- Voeg RNAseremmer toe aan de testdierlysisbufferoplossing tot een eindconcentratie van 4 E/μl.
- Draai en draai de oplossing bij RT op een tafelcentrifuge met een snelheid van 2000 x g gedurende 5 s voordat u de oplossing op ijs bewaart.
- Verwijder zoveel beerdiertjes als nodig is voor het experiment uit de kweek met behulp van een steriele P1000-pipet met filterpunt en plaats ze in een steriel petrischaaltje van 35 mm.
OPMERKING: Een willekeurig aantal beerdiertjes kan op deze manier worden verwerkt. Meestal worden drie beerdiertjes per aandoening verwerkt voor extractie. - Was de beerdiertjes drie keer met 1 ml geautoclaveerd steriel bronwater en een steriel P1000-pipet met filterpunt. Door ze langzaam op en neer te pipetteren, worden algenverontreinigingen verwijderd.
- Breng met behulp van een dissectiemicroscoop met een vergroting van 25x tot 50x een enkel beerdiertje van deze gewassen cultuur over naar een nieuw steriel petrischaaltje van 35 mm met behulp van een steriele P10-pipet met filterpunt.
- Gebruik een steriele P200-pipet met filterpunt om het enkele beerdiertje te wassen in 100 μl steriel nucleasevrij water.
OPMERKING: Deze wasstap wordt gebruikt om verontreinigingen, waaronder ribonucleases, verder te verwijderen. - Breng het gewassen beerdiertje over op de bodem van een schoon, steriel PCR-buisje in 1-2 μl steriel nucleasevrij water met behulp van een steriele P10-pipet met filterpunt, en zorg er zorgvuldig voor dat het beerdiertje niet aan de zijkant van de punt blijft plakken.
- Visualiseer het beerdiertje onder een snijmicroscoop met een vergroting van 25x.
- Om het verwijderen van water te vergemakkelijken, breekt u de punt van de getrokken glazen micropipet lichtjes buiten de buis. Zorg ervoor dat de boring groot genoeg is om het water omhoog te trekken, maar niet het beerdiertje.
- Verwijder met behulp van de capillaire werking van een micropipet van getrokken glas het water totdat het dier is omgeven door een klein belletje water met een diameter van ongeveer twee beerdierlengten.
- Bewaak het waterverwijderingsproces via de ontleedscope om ervoor te zorgen dat het waterpeil geschikt is en het beerdiertje gehydrateerd blijft.
OPMERKING: Figuur 1C geeft een voorbeeld van hoeveel water er moet worden verwijderd. Dit is een cruciale stap. Een kleine bel water zal het beerdiertje omringen om te voorkomen dat het uitdroogt, maar er moet zoveel mogelijk overtollig water worden verwijderd om verdunning van de lysisbuffer te voorkomen. Voor een voorbeeld van de overige waterstanden verwijzen wij u naar Figuur 1C. - Voeg onmiddellijk na het verwijderen van het water 2 μL tardigrade lysisbuffer toe aan de bodem van de buis, draai kort en centrifugeer de buis bij RT gedurende 5 s bij 2000 x g op een tafelcentrifuge.
- Plaats de monsters met de beerdiertjes onmiddellijk in een rek voor PCR-buisjes en zorg ervoor dat ze stevig door het rek worden vastgehouden.
- Pak het rek vast met een lange grove tang en dompel het rek met de monsters voorzichtig in de vloeibare stikstof tot het volledig bevroren is (Figuur 1D).
- Haal het rek uit de vloeibare stikstof en plaats het direct op ijs. Laat het monster ontdooien (duurt ~45 s tot 1 min). Controleer het monster elke 15 s door het van het ijs te halen en zichtbaar te inspecteren. Zodra het monster zichtbaar transparant is, gaat u verder met de volgende stap.
- Herhaal stap 4.18-4.19 nog vijf keer. Er zijn in totaal zes vries-dooicycli nodig voor maximale lysis en extractie (Figuur 2A,B).
- Zodra het vries-dooi is voltooid, plaatst u monsters op ijs en gaat u onmiddellijk door naar de volgende stap. Vries de monsters op dit punt niet in voor opslag, omdat dit het beschikbare RNA voor cDNA-bereiding zal verminderen.
5. cDNA-synthese
- Voeg 2 μl cDNA-synthesemastermix toe aan het PCR-buisje met tardigradelysaat. Veeg de buis kort en draai hem 5 s lang op RT op 2000 x g met een tafelcentrifuge voordat u de monsters op ijs terugplaatst.
- Plaats de monsters in een thermocycler en incubeer bij 25 °C gedurende 10 minuten om primers te gloeien, bij 55 °C gedurende 30 minuten om reverse transcriptie uit te voeren en ten slotte enzymen gedurende 5 minuten bij 85 °C te hitte-inactiveren.
- Plaats de buis na de incubatie onmiddellijk op ijs en verdun het monster tot een totaal volume van 25 μl door 21 μl steriel nucleasevrij water toe te voegen. Voor transcripten met een laag aantal kopieën wijzigt u deze verdunningsstap zoals empirisch bepaald.
6. qPCR
- Bepaal de gloeitemperatuur van de primerset met behulp van totaal RNA bereid uit grotere hoeveelheden beerdiertjes, bijvoorbeeld de bulkextractiemethode gepresenteerd in Boothby, 201843.
- Voer een PCR-temperatuurgradiënt uit om de optimale gloeitemperatuur te bepalen voordat qRT-PCR wordt uitgevoerd (raadpleeg tabel 1 en tabel 2 voor alle PCR-instellingen die in dit protocol worden gebruikt).
- Ontdooi een tube indicatorkleurstof supermix op ijs en isoleer tegen licht. Plaats een qPCR-plaat met 96 putjes op ijs en plaats 5 μL supermix, 2 μL water, 1 μL van elke primer (10 μM) en 1 μL cDNA-product in het aantal gewenste putjes.
- Verzegel de PCR-plaat met plaatafdichting en voer de qRT-PCR uit met een gloeitemperatuur die geschikt is voor de primerset (zie tabel 3 voor alle qRT-PCR-instellingen die in dit document worden gebruikt).
7. Kwantificering en interpretatie van de resultaten
- Vergelijk de resultaten kwantitatief met een of meer genen voor controlehuishouding, waarvan de expressie naar verwachting constant zal zijn onder de opgelegde voorwaarden. Voor deze studie werd het actine-gen gebruikt.
- Verkrijg en vergelijk de Ct-waarden of cyclusdrempel voor elke put met de Ct-waarden van de genreacties van de controlehuishouding. Bereken de vouwverandering in genexpressie met behulp van de volgende vergelijking:
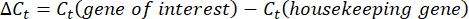
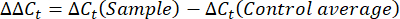
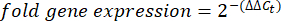
OPMERKING: Vouwgenexpressie wordt voor elk transcript en beerdiertje uitgezet als een 2-(ΔΔCt)48. - Om een ruwe schatting van het transcriptienummer te verkrijgen op basis van de Ct-waarde, gebruikt u de volgende vergelijking:
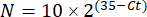
Waarbij N het aantal transcripten is en 2 de veronderstelde PCR-efficiëntie of de vouwtoename van fluorescentie per cyclus van PCR48.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Ontwikkeling en optimalisatie van single-tardigrade RNA-extractie
Door het protocol van Ly et al., 201542 aan te passen voor RNA-extractie in beerdiertjes, is het STST-systeem geoptimaliseerd om de kwantiteit en kwaliteit van het preparaat te maximaliseren (Figuur 1A). RT-PCR werd uitgevoerd voor actinetranscripten, waarbij de transcriptopbrengst werd gekwantificeerd door een gebied van 527 bp te versterken dat exo...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Deze studie presenteert een efficiënte methode voor de extractie van RNA voor single-tardigrade qRT-PCR. Door de STST-methodologie rechtstreeks te vergelijken met een bestaande RNA-extractiekit met één beerdiertje, bleek dat STST-RNA-extractie >200 keer hogere hoeveelheden actine-RNA-transcripten oplevert, de kosten verlaagt tot minder dan één dollar per monster en de tijd die nodig is voor extractie met 30% verkort. Om STST toe te passen op een relevante biologische vraag, hebben we het...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren geen belangenconflicten openbaar te maken.
Dankbetuigingen
We willen de NIH Ruth Kirschstein Fellowship # 5F32AG081056-02 en de Errett Fisher Post-Doctoral Fellowship erkennen, die Dr. Molly J. Kirk ondersteunde, de Crowe Family Fellowship, die Chaoming Xu ondersteunde, en een University of California, Santa Barbara Academic Senate Grant, en NIH-beurzen #R01GM143771 en #2R01HD081266, die deze onderzoeksinspanningen ondersteunden. De auteurs erkennen ook het gebruik van het Laboratorium van Biologische Nanostructuren binnen het Instituut van Californië NanoSystems, dat door de Universiteit van Californië, Santa Barbara en de Universiteit van Californië, Bureau van de President wordt ondersteund.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10 µL Premium Barrier Tips Low Binding, Racked, Sterile | Genesee Scientific | 23-401 | Vernoemd als Sterile Filter-Tipped P 10 Pipette Tips |
| 1000 µL Premium Pipet Tips, Low Binding, Racked, Sterile | Genesee Scientific | 23-165RS | Vernoemd als Sterile Filter-Tipped P 1000 Pipette Tips |
| 200 µL Premium Barrier Tips Low Binding, Racked, Sterile | Genesee Scientific | 23-412 | Vernoemd als Sterile Filter-Tipped P 200 Pipette Tips |
| 4 Star Straight Strong Medium Point Tweezer | Excelta | 00-SA-DC | Vernoemd als Long forceps |
| 96-Well PCR Rack with Lid Assorted, 5 Racks/Unit | Genesee Scientific | 27-202A | Vernoemd als PCR Rack |
| Andwin Scientific 3M LEAD FREE AUTOCLAVE TAPE 1" | Thermo Fisher Scientific | NC0802040 | Vernoemd als Autoclave Tape |
| Autoclave Tape | Thermo Fisher Scientific | AB1170 | Vernoemd als PCR Plate Seals |
| Benchling v8 | Benchling | N/A | Vernoemd als Benchling |
| BioRadHard-Shell 96-Well PCR Plate | BioRad | HSS9641 | Vernoemd als PCR Plate |
| BULWARK FR Lab Coat: | Grainger | 26CF64 | Vernoemd als Lab Coat |
| C1000 Touch Bio-rad Thermocycler | BioRad | 1851148 | Vernoemd als Thermocycler |
| C1000 Touch Bio-rad Thermocycler with CFX Optics Module | BioRad | 1845097 | Vernoemd als qPCR thermocycler |
| Chloroccoccum hypnosporum. | Carolina | 152091 | Vernoemd als Algae |
| Corning PYREX Reusable Media Storage Bottles | Thermo Fisher Scientific | 06-414-1E | Vernoemd als 2 L Autoclave-safe Glass Bottle |
| Daigger & Company Vortex-Genie 2 Laboratory Mixer | Thermo Fisher Scientific | 3030A | Vernoemd als Vortexer |
| Direct-zol Micro Prep | Zymo Research | R2060 | Vernoemd als RNA extraction kit |
| Dumont 5 Biology Tweezers | Fine Science Tools | 11254-20 | Vernoemd als Fine Forceps |
| EDTA | Fisher Scientific | S311-500 | Vernoemd als EDTA |
| FIJI v 2.14.0/1.54f | ImageJ, | N/A | Vernoemd als FIJI/ImageJ |
| Filament for pippette Puller | Tritech Research | PC-10H | Vernoemd als Filament |
| Fisherbrand Economy Impact Goggles | Fisher Scientific | 19-181-501 | Vernoemd als Splash Goggles |
| Glass Micropipette O.D. 1mm ID 0.58, Length 10 cm | TriTech Research | GD-1 | Vernoemd als glass micropipette |
| Hypsibius exemplaris Z151 Strain | Carolina | 133960 | Vernoemd als Tardigrades of H. exemplaris |
| Liquid Nitrogen Dewar 1 L | Agar Scientific | AGB7475 | Vernoemd als Cryo-safe container |
| Maxima H Minus First Strand cDNA Synthesis Kit | Thermo Fisher Scientific | K1651 | Vernoemd als cDNA Synthesis Master Mix |
| Narishige Dual-Stage Glass Micropipette Puller | Tritech Research | PC-10 | Vernoemd als micropipette puller |
| Nitrile Gloves | Fisher Scientific | 17-000-314 | Vernoemd als Nitrile Gloves |
| PETRI DISH, PS, 35/10 mm, WITH VENTS | Grenier | 627102 | Vernoemd als 35 mm Petri dish |
| PIPETMAN P10, 1–10 µL, Metal Ejector | Gilson | F144055M | Vernoemd als P 10 Pipette |
| PIPETMAN P1000, 100–1000 µL, Metal Ejector | Gilson | F144059M | Vernoemd als P 1000 Pipette |
| PIPETMAN P200, 20–200 µL, Metal Ejector | Gilson | F144058M | Vernoemd als P 200 Pipette |
| Pound This 4-Color Modeling Clay | American Science Surplus | 96517P001 | Vernoemd als Clay |
| Prism v10.0 | GraphPad | N/A | Vernoemd als a Prism |
| RNAse-Free, 8 Strip 0.2 mL PCR Tubes with caps | Invitrogen | AM12230 | Vernoemd als Sterile PCR Tube |
| RNasin Ribonuclease Inhibitor | Promega | N2111 | Vernoemd als RNAse inhibitor |
| Spring water | Nestle Pure Life | 44221229 | Vernoemd als Spring Water |
| SsoAdvanced Universal SYBR Green Supermix | BIO RAD | 1725271 | Vernoemd als Indicator Dye Super mix |
| Stereo-Microscope System w/optics and illumination | TriTech Research | SMT1 | Vernoemd als Dissecting Microscope |
| Supertek Scientific Tirrill Burners | Thermo Fisher Scientific | S09572B | Vernoemd als Bunsen Burner |
| Table Top Centrifuge | Qualitron | DW-41-115-NEW | Vernoemd als Table Top Centrifuge |
| Tempshield Cryo-Gloves | Fisher Scientific | 11-394-305 | Vernoemd als Cryo Gloves |
| Thermo Scientific Nunc Petri Dishes | Thermo Fisher Scientific | 08-757-099 | Vernoemd als 100 mm Petri dish |
| Tris base | Fisher Scientific | T395-500 | Vernoemd als Tris of Tris Base |
| Triton X-100 | Fluka | 93443 | Vernoemd als Detergent 1 |
| TWEEN 20 | Sigma aldrich | P1379- |
Referenties
- Møbjerg, N., Neves, R. C. New insights into survival strategies of tardigrades. Comp Biochem Physiol Part A Mol Integr Physiol. 254, 110890(2021).
- Jönsson, K. I., Harms-Ringdahl, M., Torudd, J. Radiation tolerance in the eutardigrade Richtersius coronifer. Int J Radiat Biol. 81 (9), 649-656 (2005).
- Horikawa, D. D., et al. Radiation tolerance in the tardigrade Milnesium tardigradum. Int J Radiat Biol. 82 (12), 843-848 (2006).
- Bruckbauer, S. T., Cox, M. M. Experimental evolution of extremophile resistance to ionizing radiation. Trends Genet. 37 (9), 830-845 (2021).
- Jönsson, K. I., Hygum, T. L., Andersen, K. N., Clausen, L. K. B., Møbjerg, N. Tolerance to gamma radiation in the marine heterotardigrade, Echiniscoides sigismundi. PLoS One. 11 (12), e0168884(2016).
- Jönsson, K. I. Radiation tolerance in tardigrades: Current knowledge and potential applications in medicine. Cancers (Basel). 11 (9), 1333(2019).
- Yoshida, Y., et al. RNA sequencing data for gamma radiation response in the extremotolerant tardigrade Ramazzottius varieornatus. Data Brief. 36, 107111(2021).
- Clark-Hachtel, C. M., et al. The tardigrade Hypsibius exemplaris dramatically upregulates DNA repair pathway genes in response to ionizing radiation. Curr Biol. 34 (9), 1819-1830.e6 (2024).
- Anoud, M., et al. Comparative transcriptomics reveal a novel tardigrade specific DNA binding protein induced in response to ionizing radiation. Elife. 13, RP92621(2024).
- Jönsson, K. I., Schill, R. O. Induction of Hsp70 by desiccation, ionising radiation and heat-shock in the eutardigrade Richtersius coronifer. Comp Biochem Physiol B Biochem Mol Biol. 146 (4), 456-460 (2007).
- Boothby, T. C. Desiccation of Hypsibius exemplaris. Cold Spring Harb Protoc. 2018 (11), 871-873 (2018).
- Boothby, T. C., et al. Tardigrades use intrinsically disordered proteins to survive desiccation. Mol Cell. 65 (6), 975-984.e5 (2017).
- Horikawa, D. D., Higashi, S. Desiccation tolerance of the tardigrade Milnesium tardigradum collected in Sapporo, Japan, and Bogor, Indonesia. Zoolog Sci. 21 (8), 813-816 (2004).
- Halberg, K. A., Jørgensen, A., Møbjerg, N. Desiccation tolerance in the tardigrade Richtersius coronifer relies on muscle mediated structural reorganization. PLoS One. 8 (12), e3330(2013).
- Sørensen-Hygum, T. L., Stuart, R. M., Jørgensen, A., Møbjerg, N. Modelling extreme desiccation tolerance in a marine tardigrade. Sci Rep. 8 (1), 11495(2018).
- Lyons, A. M., Roberts, K. T., Williams, C. M. Survival of tardigrades (Hypsibius exemplaris) to subzero temperatures depends on exposure intensity, duration, and ice-nucleation - as shown by large-scale mortality dye-based assays. bioRxiv. , (2024).
- Møbjerg, A., et al. Extreme freeze-tolerance in cryophilic tardigrades relies on controlled ice formation but does not involve significant change in transcription. Comp Biochem Physiol Part A Mol Integr Physiol. 271, 111245(2022).
- Tsujimoto, M., Imura, S., Kanda, H. Recovery and reproduction of an Antarctic tardigrade retrieved from a moss sample frozen for over 30 years. Cryobiology. 72 (1), 78-81 (2016).
- Jönsson, K. I. Tardigrades as a potential model organism in space research. Astrobiology. 7 (5), 757-766 (2007).
- Jönsson, K. I., Rabbow, E., Schill, R. O., Harms-Ringdahl, M., Rettberg, P. Tardigrades survive exposure to space in low Earth orbit. Curr Biol. 18 (17), R729-R731 (2008).
- Kasianchuk, N., Rzymski, P., Kaczmarek, Ł The biomedical potential of tardigrade proteins: A review. Biomed Pharmacother. 158, 113983(2023).
- Arakawa, K. Examples of extreme survival: Tardigrade genomics and molecular anhydrobiology. Annu Rev Anim Biosci. 10 (1), 519-542 (2022).
- Hvidepil, L. K. B., Møbjerg, N. New insights into osmobiosis and chemobiosis in tardigrades. Front Physiol. 14, 1274522(2023).
- Tanaka, S., Aoki, K., Arakawa, K. In vivo expression vector derived from anhydrobiotic tardigrade genome enables live imaging in Eutardigrada. Proc Natl Acad Sci U S A. 120 (5), e2216739120(2023).
- Kondo, K., Tanaka, A., Kunieda, T. Single-step generation of homozygous knockout/knock-in individuals in an extremotolerant parthenogenetic tardigrade using DIPA-CRISPR. PloS Genet. 20 (6), e1011298(2024).
- Yoshida, Y., Hirayama, A., Arakawa, K. Transcriptome analysis of the tardigrade Hypsibius exemplaris exposed to the DNA-damaging agent bleomycin. bioRxiv. , (2024).
- Yoshida, Y., et al. Time-series transcriptomic screening of factors contributing to the cross-tolerance to UV radiation and anhydrobiosis in tardigrades. BMC Genomics. 23 (1), 405(2022).
- Yoshida, Y., et al. RNA sequencing data for gamma radiation response in the extremotolerant tardigrade Ramazzottius varieornatus. Data Brief. 36, 107111(2021).
- Neves, R. C., et al. Differential expression profiling of heat stressed tardigrades reveals major shift in the transcriptome. Comp Biochem Physiol Part A Mol Integr Physiol. 267, 111143(2022).
- Yoshida, Y., et al. Comparative genomics of the tardigrades Hypsibius dujardini and Ramazzottius varieornatus. PLoS Biol. 15 (7), e2002266(2017).
- Wang, C., Grohme, M. A., Mali, B., Schill, R. O., Frohme, M. Towards decrypting cryptobiosis - analyzing anhydrobiosis in the tardigrade Milnesium tardigradum using transcriptome sequencing. PLoS One. 9 (3), e92663(2014).
- Mali, B., et al. Transcriptome survey of the anhydrobiotic tardigrade Milnesium tardigradum in comparison with Hypsibius dujardini and Richtersius coronifer. BMC Genomics. 11 (1), 168(2010).
- Förster, F., et al. Transcriptome analysis in tardigrade species reveals specific molecular pathways for stress adaptations. Bioinform Biol Insights. 6, 69-96 (2012).
- Arakawa, K., Yoshida, Y., Tomita, M. Genome sequencing of a single tardigrade Hypsibius dujardini individual. Sci Data. 3 (1), 160063(2016).
- Arakawa, K. Transcriptome assembly of Richtersius coronifer with annotated BLAST result against Ramazzottius varieornatus. Figshare. Dataset. , (2019).
- Yoshida, Y., Konno, S., Nishino, R., Murai, Y., Tomita, M., Arakawa, K. Ultralow input genome sequencing library preparation from a single tardigrade specimen. J Vis Exp. (137), (2018).
- Murai, Y., et al. Multiomics study of a heterotardigrade, Echiniscus testudo, suggests convergent evolution of anhydrobiosis-related proteins in Tardigrada. bioRxiv. , (2020).
- Yoshida, Y., Sugiura, K., Tomita, M., Matsumoto, M., Arakawa, K. Comparison of the transcriptomes of two tardigrades with different hatching coordination. BMC Dev Biol. 19 (1), 24(2019).
- Tenlen, J. R. Microinjection of dsRNA in tardigrades. Cold Spring Harb Protoc. 2018 (11), (2018).
- Tenlen, J. R., McCaskill, S., Goldstein, B. RNA interference can be used to disrupt gene function in tardigrades. Dev Genes Evol. 223 (3), 171-181 (2013).
- Giovannini, I., et al. Production of reactive oxygen species and involvement of bioprotectants during anhydrobiosis in the tardigrade Paramacrobiotus spatialis. Sci Rep. 12 (1), 15888(2022).
- Ly, K., Reid, S. J., Snell, R. G. Rapid RNA analysis of individual Caenorhabditis elegans. MethodsX. 2, 59-63 (2015).
- Boothby, T. C. Total RNA extraction from tardigrades. Cold Spring Harb Protoc. 2018 (11), 905-907 (2018).
- Czerneková, M., Vinopal, S. The tardigrade cuticle. Limnol Rev. 21 (3), 127-146 (2021).
- Goldstein, B. Hypsibius dujardini. collection notes and culture protocol from Bob McNuff. , At http://tardigrades.bio.unc.edu/protocols/CollectionCulture.pdf (2007).
- McNuff, R. Laboratory culture of Hypsibius exemplaris. Cold Spring Harb Protoc. 2018 (11), 867-870 (2018).
- Gabriel, W. N., et al. The tardigrade Hypsibius dujardini, a new model for studying the evolution of development. Dev Biol. 312 (2), 545-559 (2007).
- Ruiz-Villalba, A., Ruijter, J. M., van den Hoff, M. J. B. Use and misuse of cq in qPCR data analysis and reporting. Life (Basel). 11 (6), 508(2021).
- Antonov, J., et al. Reliable gene expression measurements from degraded RNA by quantitative real-time PCR depend on short amplicons and a proper normalization. Lab Invest. 85 (8), 1040-1050 (2005).
- Toussaint, J., et al. Improvement of the clinical applicability of the genomic grade index through a qRT-PCR test performed on frozen and formalin-fixed paraffin-embedded tissues. BMC Genomics. 10, 424(2009).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
