In dit protocol laten we zien hoe axolotlweefsel kan worden voorbereid op atoomkrachtmicroscopie (AFM) en hoe indrukmetingen kunnen worden uitgevoerd in intact en regenererend kraakbeen van ledematen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Atoomkrachtmicroscopie Metingen van kraakbeen in intacte en regenererende axolotl-ledematen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Mechanische krachten leveren belangrijke signalen voor een normale celfunctie en patroonvorming in zich ontwikkelende weefsels, en hun rol is uitgebreid bestudeerd tijdens embryogenese en pathogenese. Ter vergelijking: er is weinig bekend over deze signalen tijdens de regeneratie van dieren.
De axolotl is een belangrijk modelorganisme voor de studie van regeneratie, gezien het vermogen om veel organen en weefsels na letsel volledig te herstellen, inclusief ontbrekend kraakbeen en bot. Vanwege zijn cruciale rol als het belangrijkste ondersteunende weefsel in het lichaam van gewervelde dieren, vereist het herwinnen van de skeletfunctie tijdens regeneratie zowel het herstel van de ontbrekende structuren als hun mechanische eigenschappen. Dit protocol beschrijft een methode voor het verwerken van axolotl-ledemaatmonsters voor atoomkrachtmicroscopie (AFM), de gouden standaard voor het onderzoeken van mechanische eigenschappen van cellen en weefsel bij hoge ruimtelijke resolutie.
Door gebruik te maken van de regeneratieve mogelijkheden van de axolotl, mat deze studie de stijfheid van het kraakbeen van de ledematen tijdens de homeostase en twee stadia van regeneratie van de ledematen: weefselhistolyse en kraakbeencondensatie. We laten zien dat AFM een waardevol hulpmiddel is om inzicht te krijgen in dynamische weefselherstructurering en de mechanische veranderingen die optreden tijdens regeneratie.
Inleiding
Het skelet, vooral kraakbeen en botten, biedt de belangrijkste mechanische ondersteuning voor zachte weefsels van het lichaam bij gewervelde dieren. Daarom zal elke schade aan het skelet waarschijnlijk de functionaliteit en zelfs de overleving sterk in gevaar brengen. Bij mensen zijn botbreuken een van de meest voorkomende traumatische verwondingen1, waarvan de meeste binnen enkele weken herstellen, maar 5%-10% hiervan zal vertragingen in de genezing hebben of nooit volledig herstellen 2,3. Bovendien zijn mensen niet in staat om te herstellen van uitgebreid bot- of kraakbeenverlies 4,5. Sommige salamanders kunnen echter een verscheidenheid aan lichaamsstructuren regenereren, waaronder volledige ledematen6, waardoor ze een ideaal model zijn voor de studie van skeletregeneratie.
De axolotl (Ambystoma mexicanum) is een soort salamander waarvan de regeneratie van ledematen uitgebreid is bestudeerd. Dit proces vindt plaats in vier belangrijke opeenvolgende maar overlappende fasen: 1) wondgenezing, 2) ontsteking/histolyse, 3) blastemavorming en 4) uitgroei/differentiatie van blastema (besproken in 7,8). Na amputatie migreren keratinocyten die grenzen aan de plaats van de verwonding snel, sluiten de wond en vormen het wondepitheel (WE). Tijdens de daaropvolgende ontsteking en histolyse worden ziekteverwekkers geëlimineerd, puin en beschadigde cellen worden opgeruimd en de extracellulaire matrix (ECM) onder het amputatieoppervlak wordt opnieuw gemodelleerd9. Weefselhistolyse is essentieel voor de regeneratie van ledematen10, waarbij de afscheiding van proteolytische enzymen cruciaal is, niet alleen voor de algehele ECM-remodellering, maar ook voor het vrijmaken van de cellen die aanleiding geven tot het blastema en voor vrije bioactieve moleculen die in de ECM zelf zijn afgezonderd8. In feite hebben studies in veel regeneratieve contexten en modelorganismen aangetoond dat de unieke materiaaleigenschappen van de ECM tijdens histolyse in staat zijn om dedifferentiatieprocessen te induceren of de migratie van cellen naar de plaats van de verwonding te sturen (besproken in11). Bovendien is gebleken dat resorptie van verkalkt weefsel tijdens de late stadia van histolyse essentieel is voor een goede integratie van nieuw gevormde skeletelementen van ledematen12. Na het histolysestadium wordt het blastema gevormd onder het wondepitheel (WE) als een opeenhoping van ongedifferentieerde, multi-afstammingsvoorlopercellen die het resultaat zijn van gededifferentieerde rijpe weefselcellen of residente stamcellen. Blastemacellen vermenigvuldigen zich en differentiëren tot alle ontbrekende celtypen. Ten slotte vindt morfogenese van ledematen plaats, waarbij skeletweefsel wordt geregenereerd door de condensatie van chondroprogenitoren afkomstig van periskeletcellen en getransdifferentieerde dermale fibroblasten 13,14,15.
Hoewel veel van de biochemische signalen die veranderingen in celidentiteit en ECM-samenstelling reguleren zijn geïdentificeerd 10,13,14,16,17,18, zijn weefselmechanische eigenschappen tijdens de verschillende fasen van de regeneratie van ledematen, evenals hun invloed op regeneratie, grotendeels onontgonnen gebleven. Veel studies hebben aangetoond dat cellen mechanische signalen waarnemen en integreren die hun lot en gedrag in verschillende contexten reguleren (besproken in19,20). Daarom zal het aanvullen van onze cellulaire en moleculaire kennis van de regeneratie van ledematen met weefselmechanische metingen ons begrip van deze processen aanzienlijk verbeteren.
Er zijn verschillende technieken ontwikkeld die mechanische karakterisering en krachtmanipulatie van biologische monsters mogelijk maken21. Onder deze technieken, is de atoomkrachtmicroscopie (AFM) de gouden norm in mechanobiologie geworden, waarin de visco-elastische eigenschappen van biologische steekproeven bij hoge ruimtelijke resolutie worden onderzocht door in te springen met een ultragevoelige krachtsensor, de AFM cantilever22. Aangezien deze techniek direct contact met het monster vereist, worden meestal weefselplakjes gegenereerd, wat in sommige gevallen een uitdaging kan zijn. De voorbereidingsomstandigheden moeten dus voor elk afzonderlijk monster worden aangepast en geoptimaliseerd, zodat het zo dicht mogelijk bij de fysiologische omstandigheden kan blijven en er minimale artefacten worden gegenereerd23. Dit protocol beschrijft hoe weefselstijfheid in axolotl-ledematen kan worden gemeten met behulp van AFM, met de nadruk op kraakbeenachtige weefsels in intacte omstandigheden, tijdens histolyse en in kraakbeencondensatiestadia (Figuur 1 en Figuur 2). Deze methode kan ook worden uitgebreid voor het meten van andere weefseltypes.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Axolotls (Ambystoma mexicanum) werden gekweekt in de Axolotl-faciliteit van het Center for Regenerative Therapies Dresden (CRTD) van de Dresden University of Technology (TUD). Een volledige beschrijving van de houderijomstandigheden is te vinden in24. In het kort werden de kamers op 20-22 °C gehouden met een dag/nachtcyclus van 12/12 uur. Alle hanteringen en chirurgische ingrepen werden uitgevoerd in overeenstemming met de richtlijnen van de lokale ethische commissie en werden goedgekeurd door de Landesdirektion Sachsen, Duitsland.
Deze studie gebruikte witte (d/d) axolotls voor alle experimenten, een natuurlijk voorkomende mutante stam zonder lichaamspigmentatie (weinig tot geen melanoforen en xanthoforen), met iridoforen alleen in de iris van de ogen. Deze studie gebruikte axolotls van 8-15 cm van snuit tot staart (5-7 maanden oud) zonder geslachtsspecifieke vooringenomenheid.
1. Voorbereiding
- Bereid een 10% (w/v) benzocaïne-bouillonoplossing voor die zal worden gebruikt voor anesthesie en euthanasie van de axolotls (zie hieronder). Meng hiervoor in een volumetrisch flesje 50 g benzocaïne met 100% ethanol tot de limiet van 500 ml is bereikt.
- Bereid een 0,03% (w/v) benzocaïne-bouillonoplossing voor.
- Meng voor 1 L 50 ml 10x Tris-gebufferde zoutoplossing (TBS) met 30 ml 10% (w/v) benzocaïne en 5 ml 4000% (w/v) Holtfreter's oplossingen met 915 ml gedestilleerd water en meng een nacht met een magnetische roerstaaf.
- Meng voor 1 L 10x TBS-oplossing 24,2 g Trizma-basis en 90 g NaCl met 990 ml gedeïoniseerd water. Meng goed met een magnetische roerstaaf. Voeg vervolgens ongeveer 10 ml geconcentreerde HCl (12 M of 37%) toe en pas aan voor pH 8.
- Meng voor 1 L 4000% (m/v) Holtfreter's oplossing 158,4 g NaCl, 11,13 g MgSO4,7H 2O, 5,36 g CaCl2,2H 2O en 2,88 g KCl met gedeïoniseerd water tot 1 L.
- Bereid een werkende benzocaïneverdunning van 0,01% (w/v) voor in vuilwatertankwater voor anesthesie door de 0,03% (w/v) stockoplossing 1:3 te verdunnen.
- Gebruik voor 1 liter oplossing 333 ml van de benzocaïne-stockoplossing plus 666 ml water in de vuilwatertank.
- Bereid een 5 mg/ml butorfanarttraatbouillonoplossing voor analgesie. Meng hiervoor 100 mg butorfanol (+)-tartraatzout met 20 ml ultrapuur water. Bewaar aliquots bij 4 °C.
- Bereid op de dag van de amputaties vers 0,5 mg/L butorfanarttraatoplossing om de pijn bij dieren na chirurgische ingrepen te verminderen door de voorraadoplossing 1:10.000 te verdunnen in het water van de vuilwatertank.
- Voor dieren kleiner dan 8 cm lang, meng 20 μL bouillonoplossing met 200 ml vuilwatertankwater.
- Meng voor grotere dieren 60 μl bouillonoplossing met water in de vuilwatertank van 600 ml.
- Bereid steriele amfibiefosfaat-gebufferde zoutoplossing (APBS), een 80% (v/v) PBS-oplossing, en bewaar deze op kamertemperatuur (RT) door 800 ml DPBS te mengen met 200 ml gedeïoniseerd water.
- Bereid 1 mg/ml insulinebouillonoplossing voor. Meng hiervoor 250 mg insulinepoeder met 25 ml HCl 0,1 M en schud langzaam tot het is opgelost. Voeg al roerend 225 ml APBS toe tot de oplossing helder is. Steriel filter en bewaar aliquots van 4 ml bij -20 °C.
- Bereid steriel kweekmedium (alle % (v/v): 62,5% L15 medium, 10% warmte-geïnactiveerde FBS, 1% penicilline/streptomycine, 1% insuline, 1% L-glutamine) en houd op 4 °C tot de dag van gebruik. Op de experimentele dag voor gebruik in evenwicht brengen met RT.
- Gebruik voor 400 ml kweekmedium 250 ml L15-medium, 40 ml warmte-geïnactiveerde FBS, 4 ml penicilline/streptomycine, 4 ml insulineoplossing (uit stap 1.7), 4 ml L-glutamine en 98 ml gedeïoniseerd steriel water. Bereid onder steriele omstandigheden en een steriel filter voor na het mengen van alle componenten. Bereid aliquots van 15 ml voor.
- Bereid 2,5% en 3% (w/v) agarose met laag smeltpunt (lmp)-agrose in APBS-oplossing en verwarm bij 70 °C om agarose volledig op te lossen. Bereid aliquots in tubes van 1,5 ml en bewaar bij 4 °C tot de dag van gebruik.
- Meng voor 20 ml 2,5% (m/v) lmp-agarose 0,5 g lmp-agarose met 20 ml APBS in een tube van 50 ml en verwarm in een waterbad bij 70 °C tot de agarose volledig is gesmolten. De oplossing moet duidelijk en transparant worden. Bereid aliquots voor terwijl ze nog warm zijn.
- Meng voor 20 ml 3% (m/v) lmp-agarose 0,6 g lmp-agarose met 20 ml APBS en ga te werk zoals hierboven.
- (Optioneel): Meng voor 20 ml 1% (w/v) lmp-agarose 0,2 g lmp-agarose met 20 ml APBS en ga te werk zoals hierboven.
OPMERKING: De smelttijd is afhankelijk van de concentratie van de lmp-agarose en kan ongeveer variëren van 15-40 minuten.
- Gebruik voor amputatie en weefselmontage een helderveldstereoscoop.
- Monteer plastic petrischaaltjes, pincetten, scalpels en chirurgische scharen met een diameter van 100 mm voor amputaties en weefselverzameling.
- Bereid plastic petrischalen met een diameter van 35 mm voor op indrukmetingen.
- Bereid ~1 cm lange cilinders met een diameter van ~1 cm voor. Verwarm hiervoor een kartonsnijder onder een vlam van een bunsenbrander en snijd met het verwarmde mes een buis van 15 ml.
- Knip kleine vierkanten van 1 cm2 parafilm en bewaar.
- Bereid een metalen of koud blok bij -20 °C voor door het minimaal 1 uur in de vriezer te laten staan.
- Bereid plastic pasteurpipetten voor.
- (Optioneel): Bereid fixeermiddel MEMFa-oplossing (3-(N-morfolino)propaansulfonzuur [MOPS] 0,1 M pH 7,4, Ethyleenglycol-bis (2-aminoethylether)-N,N,N',N′-tetraazijnzuur [EGTA] 2 mM, MgSO4,7H 2O 1 mM, 3,7% formaldehyde). Voeg hiervoor 10,465 g MOPS, 0,123 g MgSO4·7H2O, 2 ml 0,5 M EDTA pH 8,0 toe en voeg water toe tot 45 ml. Voeg 5 ml formaldehyde 37% (m/v) toe aan een totaal volume van 50 ml.
2. Reagentia
- Raadpleeg de materiaaltabel voor de reagentia die voor dit werk worden gebruikt, maar er kunnen ook andere commerciële aanbieders worden gebruikt.
3. Amputatie van Axolotl en regeneratie van ledematen
- Verdoof het dier voorafgaand aan alle experimentele procedures in 0,01% (w/v) benzocaïne verdund in water in de vuilwatertank (stap 1.3) gedurende 20 minuten, zorg ervoor dat de dieren diep verdoofd zijn en niet reageren op tactiele stimuli.
- Haal axolotl uit de anesthesie en leg het op een petrischaaltje van 100 mm met een papieren zakdoekje dat is bevochtigd met anesthesiehoudend water. Oriënteer de ledemaat loodrecht op de lichaamsas en plaats de plaat onder de stereoscoop voor een betere visualisatie.
OPMERKING: Hier is een stereoscoop met een compacte zwanenhalslamp gebruikt. - Amputeer het ledemaat met een scherp steriel scalpel direct distaal van het verkalkte gebied van het zeugopodiale gebied (radius/ellepijp) (Figuur 1A).
OPMERKING: In overeenstemming met het 3V-dierenwelzijnsprincipe wordt aanbevolen om de ledematen die aanvankelijk door de amputatie zijn verwijderd, als intacte controles te gebruiken. - Laat het dier op de schaal liggen en bedek het gedurende 15 minuten met een bevochtigd tissuepapier gedrenkt in benzocaïnehoudend water om de bloedstolling en wondsluiting te laten plaatsvinden.
- Breng de dieren terug naar een tank met vers water met pijnstillers (butorfanoldartraat, 0,5 mg/l, vanaf stap 1.5).
- Verplaats de dieren 24 uur na de postoperatieve pijnstillende behandeling naar hun oorspronkelijke tank met vers drinkwater.
- Laat dieren regenereren tot het gewenste stadium van interesse.
OPMERKING: De geanalyseerde ledematen werden verzameld op de dag van de amputatie voor de intacte fase en 5 dagen na amputatie (dpa) voor de histolysefase bij dieren van 5 maanden oud. De condensatiefase van het kraakbeen werd gemeten bij 21 dpa bij dieren van 7 maanden oud.
4. Weefselmontage en -verwerking voor metingen
- Verwarm de buisjes van 1,5 ml met 2,5% of 3% (w/v) lmp-agarose (uit stap 1.9) op een thermoblok bij 70 °C tot de agarose volledig is gesmolten. Vervang de buizen door een ander thermoblok bij 37 °C en laat de temperatuur in evenwicht komen voor gebruik.
OPMERKING: Hier werd 2,5% lmp-agarose gebruikt voor het meten van regenererende weefsels en 3% voor intacte weefsels. - Bedek één kant van de 1 cm lange cilinders (uit stap 1.13) met een van de parafilmstukken (stap 1.14) zodat ze aan de onderkant volledig zijn afgesloten.
- Breng 15 ml aliquots kweekmedium in evenwicht met RT (vanaf stap 1.8)
- Verdoof de dieren door ze gedurende ten minste 20 minuten onder te dompelen in verdovingswater (0,01% (m/v) benzocaïne verdund in water in de vuilwatertank).
- Breng de ledematen in beeld onder een stereoscoop met software die kwantitatieve metingen mogelijk maakt. Meet de lengte van de structuur van belang en bereken hoeveel weefsel moet worden verwijderd van het distale uiteinde van de ledemaat totdat het interessegedeelte is bereikt.
- Om ledematen te regenereren, verzamelt u ze door ze met een scalpel en/of een chirurgische schaar ter hoogte van de elleboog te knippen en overtollig weefsel uit de ledemaat te ontleden. Laat het weefsel in APBS-oplossing terwijl u de volgende stap voorbereidt. Zorg ervoor dat de snede transversaal (90°) is ten opzichte van de as van de onderarm om een gelijkmatig oppervlak te creëren. Verwijder voor de intacte ledematen de hand door door het carpale gebied te snijden.
- Euthanaseer de dieren door ze gedurende ten minste 20 minuten bloot te stellen aan een dodelijke dosis anesthesie (0,1% benzocaïne). Voeg hiervoor het vereiste volume van 10% (g/v) benzocaïne-oplossing toe om een concentratie van 0,1% (m/v) te bereiken.
- Als dieren zijn verdoofd in 100 ml benzocaïneoplossing van 0,01% (g/v), voeg dan 900 μl van de 10% (w/v) benzocaïneoplossing toe.
- Spoel de ledematen af door ze onder te dompelen in APBS-oplossing.
- Zorg ervoor dat de Pasteur-pipetten en het thermoblok (gestabiliseerd op 37 °C met agarose-aliquots) zich dicht bij het werkstation bevinden. Haal het koude blok uit de vriezer van -20 °C en plaats de cilinder met het met parafilm bedekte uiteinde naar beneden erop.
- Pak de ontlede ledemaat vast en verwijder de overtollige vloeistof voorzichtig met tissuepapier. Leg de ledemaat op een schoon bord, leg de gesmolten lmp-agarose erop en beweeg de ledemaat kort rond in de agarose om eventuele resterende APBS van het huidoppervlak te verplaatsen.
- Werk snel en plaats het ledemaat in de cilinder en zorg ervoor dat het verticaal is gericht, met het interessegebied naar boven gericht.
- Terwijl u het ledemaat voorzichtig met een tang vasthoudt, voegt u lmp-agarose toe in de cilinder totdat het weefsel volledig bedekt is. Verwijder de tang voorzichtig voordat de agarose stolt.
- Haal de cilinder uit het koude blok en laat de agarose ongeveer 30 s volledig stollen bij RT.
- Breng het weefselbevattende agaroseblok onmiddellijk naar de vibratomekamer, samen met steriele kweekmediumaliquots en APBS, bij RT.
- Verwijder de parafilm van de bodem van de cilinder en bevestig de agarose met het weefsel met cyanoacrylaatlijm op het vibratomestadium. Zorg ervoor dat zowel de agarose als het monster aan het podium zijn vastgelijmd.
- Dompel het werkgebied onder in APBS voor het in secties indelen.
OPMERKING: Intacte weefsels omvatten het stijvere bot/kraakbeen, terwijl regenererende weefsels zachter zijn. Daarom moeten de trillingsparameters dienovereenkomstig worden aangepast. In deze studie werden de volgende parameters gebruikt: intacte weefsels (amplitude 1,2 mm en snelheid 0,1 mm/s) en regenererende weefsels (amplitude 0,9 mm en snelheid 0,4 mm/s). - Begin met het doorsnijden van de agarose in korte stappen (bijv. in stappen van 100 μm) totdat de weefselpunt is bereikt. Snijd vervolgens het weefselblok in secties totdat het distale deel van het weefsel (berekend in stap 4.5) is verwijderd. Op die manier is een dwarsdoorsnede van het interessegebied gemakkelijk toegankelijk.
OPMERKING: Het verwijderde weefselgedeelte bevat het direct aangrenzende oppervlak van het oppervlak dat met AFM is onderzocht en kan dienen als referentie voor weefselstructuur. Daarom kan het worden gebruikt voor directe aanvullende analyse of worden gefixeerd voor latere kleuring (zie rubriek 6). - Verwijder het weefselhoudende blok voorzichtig uit de vibratomefase met een scheermesje en verwijder alle sporen van lijm. Lijm het blok onmiddellijk op een plastic petrischaal van 35 mm met lijm voor chirurgisch weefsel en voeg ongeveer 2 ml kweekmedium toe bij RT om ervoor te zorgen dat het weefsel volledig bedekt is.
OPMERKING: Het blootgestelde weefseloppervlak in het agaroseblok is het oppervlak dat moet worden onderzocht.
5. Metingen met AFM
- Bereid de uitkraging ten minste 1 dag voor de metingen voor op metingen.
OPMERKING: Voor dit werk werden tiploze siliconen uitkragingen gefunctionaliseerd met polystyreenkorrels (diameter 20 μm), en de kraal-uitkragingsverbinding werd ten minste 1 dag laten versterken voordat deze werd gebruikt voor indrukmetingen.- Bevestig kralen aan uitkragingen met epoxylijm met een verwerkingstijd van 5 min.
- Laat de uitkraging snel en met minimaal contact op een met lijm beklede glasplaat zakken, zodat er aan het uiteinde een klein druppeltje lijm ontstaat, en breng het onmiddellijk daarna in contact met een geschikte kraal.
- Houd het contact tussen de cantilever en de hiel ~10 minuten vast voordat u de cantilever met een gebonden kraal van het oppervlak tilt.
- Kalibreer de uitkraging voorafgaand aan metingen.
OPMERKING: De gewijzigde cantilever werd vóór elke reeks experimenten door de methode van thermische ruis gekalibreerd met behulp van ingebouwde procedures van de AFM-software. - Plaats het petrischaaltje met het weefselblokje (uit stap 4.18) en het kweekmedium in de petrischaalhouder van de AFM en verkrijg een overzichtsbeeld in helderveldmicroscopie (Figuur 1B).
OPMERKING: Voor indrukkingstests wordt een opstelling gebruikt die is uitgerust met een motorstage bovenop een rechtopstaande lichtmicroscoop. Monteer de AFM-kop en plaats de cantilever over het weefsel en breng de cantilever in de buurt van het oppervlak. - Kies het specifieke interessegebied en noteer een reeks kracht-afstandscurven (Figuur 2A).
OPMERKING: Relatieve krachtinstelpunten van 2-25 nN werden gebruikt om vergelijkbare indrukdieptes van ~1-4 μm te bereiken voor weefsels met verschillende stijfheid, met een naderings- en terugtrekkingssnelheid van 7,5 μm/s, z-lengte van 50 μm, roostergrootte 70 μm x 70 μm met 3 x 3 punten. - Verkrijg voor elk gesondeerd gebied een helderveldmicroscopiebeeld om de verkregen waarden te associëren met elk specifiek gebied in het ledemaatgedeelte.
- Test voor alle monsters ten minste 3 verschillende regio's per weefseltype.
OPMERKING: In alle gevallen mat deze studie 4 regio's in het midden van het kraakbeen en 3 regio's in de periferie van het kraakbeengebied en hield het weefsel maximaal 1 uur onder de microscoop. - Zodra de indrukmetingen zijn voltooid, gooit u het weefsel weg of fixeert u het voor verdere analyse.
OPMERKING: De monsters werden na het afronden van de metingen gefixeerd door ze in buisjes van 2 ml met MEMFa-oplossing te plaatsen en 's nachts bij 4 °C te fixeren. MEMFa (stap 1.17) werd gebruikt, maar formaldehyde 4% (w/v) oplossing in PBS kan ook worden gebruikt.
6. (Optioneel) Verwerking van aangrenzende weefselcoupes
- Als de aangrenzende weefselcoupes worden gebruikt voor de latere kleuring, plaats ze dan onmiddellijk na het couperen in een klein buisje van 2 ml met fixeermiddel en fixeer ze een nacht bij 4 °C.
- Om de weefselarchitectuur te onthullen door de etikettering van actine, cytoskelet en kernen, wast u 3 keer met PBS gedurende 5 minuten elk om het fixeermiddel en de vlek te verwijderen met een oplossing met Alexa Fluor 488 geconjugeerd phalloidine (1:250) en Hoechst 33258 (1:10000) in PBS gedurende 1 uur bij RT op een schommelend platform.
- Immobiliseer vervolgens de bevlekte monsters op schalen met een glazen bodem met behulp van 1% (w/v) lmp-agarose in APBS gestabiliseerd bij 37 °C (vanaf stap 1.9). Zorg ervoor dat het betreffende oppervlak naar het glas is gericht. Zodra agarose stolt, bedek de monsters met PBS om uitdroging te voorkomen.
OPMERKING: De intacte en histolysemonsters worden afgebeeld met een omgekeerde confocale microscoop (10x vergroting en 8 μm optische secties). Afbeeldingen in figuur 1C zijn maximale projecties van 8 optische secties.
- Als het aangrenzende weefselgedeelte wordt gebruikt voor onmiddellijke stroomafwaartse analyse waarvoor vers weefsel nodig is (zoals RNA-extractie, incubatie met levende kleurstoffen, enz.), zorg er dan voor dat u snel werkt en een celkweekmedium gebruikt (vanaf stap 1.8) om de hoogst mogelijke weefselintegriteit te garanderen.
7. Gegevensanalyse en weergave
- Om de schijnbare modulus van Young te berekenen, analyseert u de kracht-afstandscurven met behulp van het Hertz/Sneddon-model (Eq.1) voor een sferisch indruklichaam met behulp van de JPK/Bruker-gegevensverwerkingssoftware, uitgaande van een Poisson-verhouding van 0,5.
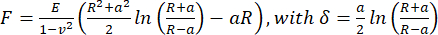 (Eq.1)
Waarbij R: straal van het indruklichaam, E: elastische modulus, ν: de verhouding van Poisson, a: straal van het cirkelvormige contactoppervlak tussen het indruklichaam en het monster, δ: indrukdiepte. - Voor visco-elastische analyse analyseert u de naderingsdelen van de kracht-indrukkingscurven in PyJibe 0.15.0 met de extensie "Hertz-model gecorrigeerd voor visco-elasticiteit met behulp van Kelvin-Voigt-Maxwell (KVM)" (geschreven door Paul Müller, https://github.com/AFM-analysis/PyJibe)25. De pasfunctie is gebaseerd op een model beschreven door Abuhattum et al.26, waarbij Kelvin-Voigt-Maxwell-modelelementen zijn geïntegreerd.
- Bewerk de krachtindrukcurven voor om het contactpunt te schatten met behulp van een stukgewijze pasvorm met een lijn (basislijn) en een polynoom passeerfunctie voor het naderingsdeel.
- Pas de kracht-indrukcurven aan op het "Hertz-model gecorrigeerd voor visco-elasticiteit met behulp van het Kelvin-Voigt-Maxwell (KVM)-model". Verkrijg uit de pasvorm de onontspannen Young's modulus, schijnbare Young's modulus en schijnbare viscositeit. Het model geeft Maxwell ook ontspannings- en indeuktijden.
OPMERKING: In verschillende geanalyseerde krachtindrukcurven (met name het intacte weefsel) waren de Maxwell-relaxatietijden significant groter of kleiner dan de indruktijd, wat wijst op respectievelijk vrij elastisch gedrag of mechanisch gedrag van Kelvin-Voigt.
- Exporteer alle metingen naar een spreadsheet en bereken de mediane schijnbare Young's moduli per weefseltype en monster.
- Plot en analyseer de gegevens statistisch met de juiste software.
OPMERKING: GraphPad Prism wordt hier gebruikt en bij het beschrijven van de resultaten verwijst de studie naar de gemiddelde ± SD van de mediane schijnbare Young's moduli per monster (weergegeven in figuur 2D-F). - Geef optische segmenten van confocale beelden weer door ze te projecteren met de Fiji-functie voor maximale projectie. Pas de helderheid en het contrast van elk afzonderlijk kanaal aan voor een optimale visualisatie van fluorescerende kleuringen.
- Genereer een figurenpaneel met de juiste software.
OPMERKING: Affinity Designer wordt gebruikt om de panelen te genereren en het model in afbeelding 1A wordt getekend met Affinity Designer.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Met behulp van het hierboven beschreven protocol hebben we de schijnbare Young's modulus van kraakbeenachtige axolotl-ledemaatweefsels gemeten in homeostatische ("intacte") omstandigheden, tijdens vroege kraakbeenhistolyse en latere kraakbeencondensatiestadia (Figuur 1A). We hebben ook de mechanische eigenschappen van de skeletelementen in verschillende regio's onderzocht, inclusief hun centrum en periferie, zoals te zien is in de afbeeldingen die de uitkrag...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Hier demonstreren we een techniek voor het meten van kraakbeenstijfheid in axolotl-ledematen met AFM. Deze methode kan echter ook worden uitgebreid voor het onderzoeken van andere weefseltypes. Een belangrijke stap voor succesvolle AFM-metingen is de voorbereiding van monsters, wat bijzonder uitdagend bleek te zijn met axolotl-monsters. We ontdekten dat het onderzoeken van het weefseloppervlak dat nog steeds in het agaroseblok was ingebed, de beste manier was om de weefselintegriteit te ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren geen belangenconflicten
Dankbetuigingen
We danken alle leden van het Sandoval-Guzmán-lab voor hun voortdurende steun en gezelschap tijdens de ontwikkeling van dit werk. We zijn ook Anja Wagner, Beate Gruhl en Judith Konantz dankbaar voor hun toewijding aan axolotl-zorg. Ook danken wij Paul Müller voor het aanleveren van codes voor de data-analyse van de AFM. Dit werk werd ondersteund door de Light Microscopy Facility van het CMCB Technology Platform van de TU Dresden. AT is een fellow van het Mildred Scheel Early Career Center Dresden P2, gefinancierd door de Duitse Kankerhulp (Deutsche Krebshilfe). RA wordt gefinancierd door een tijdelijke PI-positie (Eigene Stelle) van de Deutsche Forschungsgemeinschaft (DFG, Duitse Onderzoeksstichting) – AI 214/1-1.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Affinity Designer | Affinity | versie 1.10.4 | Voor figuurassemblage |
| Agarose Low Melt | Roth | 6351.1 | Voor monstervoorbereiding |
| Alexa Fluor 488 Phalloidin | Invitrogen | A12379 | Om weefsel te kleuren |
| Axiozoom | Zeiss | Om monsters onder de AFM te beeld | |
| Benzocaïne | Sigma-Aldrich | E1501 | Om de dieren te anesthetiseren |
| Butorphanol (+)-tartraat zout | Sigma-Aldrich | B9156 | Als pijnstiller |
| Cantilever | NanoWorld | Arrow TL1 | Voor AFM-indentiemetingen |
| Cellhesion 200 setup uitgerust met een motorstage | JPK/Bruker | Voor AFM-indentiemetingen | |
| CellSense Entry | Voor beeldvorming in Stereoscoop Olympus UC90 | ||
| Dulbecco’s Phosphate Buffered Saline (DPBS, 1x) | Gibco | 14190-144 | Om monsters en secties onder vibratoom schoon te maken |
| FIJI (ImageJ2) | https://imagej.net/software/fiji | versie 2.9.0/1.53t | Voor beeldverwerking |
| GraphPad Prism | GraphPad Software | (versie 8.4.3) | Om de gegevens te visualiseren en statistisch te analyseren |
| Heat-inactivated FBS | Gibco | 10270-106 | Voor cellenkweekmedium |
| Histoacryl lijm (2-Butyl-Cyanoacrylaat) | Braun | Om monsters aan petrischalen te plakken | |
| Hoechst 33258 | Abcam | ab228550 | Om weefsel te kleuren |
| Insulin | Sigma-Aldrich | I5500 | Voor cellenkweekmedium |
| Inverteerbare confocale microscoop | Zeiss | 780 LSM | Om weefselsecties te beeld |
| Inverteerbare confocale microscoop | Zeiss | 980 LSM | Om weefselsecties te beeld |
| JPK/Bruker dataverwerkingssoftware | JPK/Bruker | SPM 6.4 | Om kracht-afstandcurves te analyseren |
| L15 medium (Leibovitz) | Sigma | L1518 | Voor cellenkweekmedium |
| L-Glutamine | Gibco | 25030-024 | Voor cellenkweekmedium |
| Penicilline/Streptomycine | Gibco | 15140-122 | Voor cellenkweekmedium |
| Polystyreenkralen ( 20 µm diameter); ) | microParticles | Voor AFM-indentiemetingen | |
| Pyjibe | geschreven door Paul Müller https://github.com/AFM-analysis/PyJibe | 0.15.0 | Voor visco-elastische analyse |
| Stereoscoop Olympus SX10 | Olympus | SX10 | Voor ledemaatamputaties en weefselmontage |
| Stereoscoop Olympus UC90 | Olympus | UC90 | Voor beeldvorming |
| Vibratoom Leica | Leica | VT 1200S | Voor weefselsectie |
Referenties
- Mills, L. A., Aitken, S. A., Simpson, A. H. R. W. The risk of non-union per fracture: current myths and revised figures from a population of over 4 million adults. Acta Orthop. 88 (4), 434-439 (2017).
- Calori, G. M., et al. Non-unions. Clin Cases Miner Bone Metab. 14 (2), 186-188 (2017).
- Nandra, R., Grover, L., Porter, K. Fracture non-union epidemiology and treatment. Trauma. 18 (1), 3-11 (2016).
- Nauth, A., Schemitsch, E., Norris, B., Nollin, Z., Watson, J. T. Critical-size bone defects: Is there a consensus for diagnosis and treatment. J Orthop Trauma. 32 (3 Suppl), S7-S11 (2018).
- Schemitsch, E. H. Size matters: Defining critical in bone defect size. J Orthop Trauma. 31 (10), S20-S22 (2017).
- Joven, A., Elewa, A., Simon, A. Model systems for regeneration: Salamanders. Development (Cambridge). 146 (14), 0-2 (2019).
- Aires, R., Keeley, S. D., Sandoval-Guzmán, T. Basics of Self-Regeneration. Cell Engineering and Regeneration. , Springer. Cham. (2020).
- Stocum, D. L. Mechanisms of urodele limb regeneration. Regeneration. 4 (4), 159-200 (2017).
- Bassat, E., Tanaka, E. M. The cellular and signaling dynamics of salamander limb regeneration. Curr Opin Cell Biol. 73, 117-123 (2021).
- Vinarsky, V., Atkinson, D. L., Stevenson, T. J., Keating, M. T., Odelberg, S. J. Normal newt limb regeneration requires matrix metalloproteinase function. Dev Biol. 279 (1), 86-98 (2005).
- Godwin, J., Kuraitis, D., Rosenthal, N. Extracellular matrix considerations for scar-free repair and regeneration: Insights from regenerative diversity among vertebrates. International J Biochem Cell Biol. 56, 47-55 (2014).
- Riquelme-Guzmán, C., et al. Osteoclast-mediated resorption primes the skeleton for successful integration during axolotl limb regeneration. ELife. 11, e79966(2022).
- Gerber, T., et al. Single-cell analysis uncovers convergence of cell identities during axolotl limb regeneration. Science. 362 (6413), aaq0681(2018).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Currie, J. D., et al. Live Imaging of Axolotl Digit Regeneration Reveals Spatiotemporal Choreography of Diverse Connective Tissue Progenitor Pools. Dev Cell. 39 (4), 411-423 (2016).
- Qin, T., et al. Single-cell RNA-seq reveals novel mitochondria-related musculoskeletal cell populations during adult axolotl limb regeneration process. Cell Death Differ. 28 (3), 1110-1125 (2021).
- Sandoval-Guzman, T., et al. Fundamental differences in dedifferentiation and stem cell recruitment during skeletal muscle regeneration in two salamander species. Cell Stem Cell. 14, 174-187 (2014).
- Currie, J. D., et al. The Prrx1limb enhancer marks an adult subpopulation of injury-responsive dermal fibroblasts. Biol Open. 8, bio043711(2019).
- Wagh, K., Ishikawa, M., Garcia, D. A., Stavreva, D. A., Upadhyaya, A., Hager, G. L. Mechanical regulation of transcription: Recent advances. Trends Cell Biol. 31 (6), 457-472 (2021).
- d'Angelo, M., et al. The role of stiffness in cell reprogramming: A potential role for biomaterials in inducing tissue regeneration. Cells. 8 (9), 1036(2019).
- Akhtar, R., Sherratt, M. J., Cruickshank, J. K., Derby, B. Characterizing the elastic properties of tissues. Mater Today (Kidlington). 14 (3), 96-105 (2011).
- Krieg, M., et al. Atomic force microscopy-based mechanobiology. Nat Rev Phys. 1 (1), 41-57 (2019).
- El Kirat, K., Burton, I., Dupres, V., Dufrene, Y. F. Sample preparation procedures for biological atomic force microscopy. J Microsc. 218 (3), 199-207 (2005).
- Riquelme-Guzmán, C., et al. Postembryonic development and aging of the appendicular skeleton in Ambystoma mexicanum. Dev Dyn. 251 (6), 1015-1034 (2021).
- López-Alonso, J., Eroles, M., Janel, S., et al. PyFMLab: Open-source software for atomic force microscopy microrheology data analysis [version 2; peer review: 2 approved]. Open Res Europe 2024. 3 (187), (2024).
- Abuhattum, S., Mokbel, D., Müller, P., Soteriou, D., Guck, J., Aland, S. An explicit model to extract viscoelastic properties of cells from AFM force-indentation curves. iScience. 25 (4), 104016(2022).
- Glorieux, L., et al. In-depth analysis of the pancreatic extracellular matrix during development for next-generation tissue engineering. Int J Mol Sci. 24 (12), 10268(2023).
- Hiratsuka, S., et al. Power-law stress and creep relaxations of single cells measured by colloidal probe atomic force microscopy. Jpn J Appl Phys. 48 (8 PART 3), 08JB17(2009).
- Johnson, K. L., Kendall, K., Roberts, A. D. Surface energy and the contact of elastic solids. Proc R Soc Lond A. 324, 301-313 (1971).
- Kondiboyina, V., Duerr, T. J., Monaghan, J. R., Shefelbine, S. J. Material properties in regenerating axolotl limbs using inverse finite element analysis. J Mech Behav Biomed Mater. 150, 106341(2024).
- Calve, S., Simon, H. Biochemical and mechanical environment cooperatively regulate skeletal muscle regeneration. FASEB J. 26 (6), 2538-2545 (2012).
- Calve, S., Simon, H. G. Extracellular control of limb regeneration. IUTAM Symposium on Cellular, Molecular and Tissue Mechanics. IUTAM Bookseries. 16, Springer. Dordrecht. 257-266 (2010).
- Kaufmann, R. A., Kozin, S. H., Barnes, A., Kalluri, P. Changes in strain distribution along the radius and ulna with loading and interosseous membrane section. J Hand Surg Am. 27 (1), 93-97 (2002).
- Martin, A. R., et al. Measurement of distal forearm bone mineral density: Can different forearm segments be used interchangeably. J Clin Densitom. 2 (4), 381-387 (1999).
- Riquelme-Guzmán, C., et al. In vivo assessment of mechanical properties during axolotl development and regeneration using confocal Brillouin microscopy. Open Biol. 12 (6), 220078(2022).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
