Hier wordt een normale-fase, high-performance vloeistofchromatografiemethode beschreven om kritische retinoïden te detecteren en te kwantificeren die betrokken zijn bij het vergemakkelijken van de visuele functie in zowel oog- als systemisch weefsel, in de context van de systemische vitamine A-toevoer om de essentiële lichtgevoelige rodopsinechromofoor 11-cis-retinal te genereren.
Methodenartikel
Kwantitatieve analyse van vitamine A-metabolieten in oculaire en niet-oculaire weefsels van muizen met behulp van hoogwaardige vloeistofchromatografie
In dit artikel
Samenvatting
Samenvatting
G-eiwitgekoppelde receptoren (GPCR's) zijn een superfamilie van transmembraaneiwitten die signaalcascades initiëren door activering van het G-eiwit na associatie met zijn ligand. In het gezichtsvermogen van zoogdieren is rodopsine de GPCR die verantwoordelijk is voor het initiëren van de fototransductiecascade. Binnen fotoreceptoren is rodopsine gebonden aan zijn chromofoor 11-cis-retinaal en wordt het geactiveerd door de lichtgevoelige isomerisatie van 11-cis-retinaal naar all-trans-retinaal, die het transducine G-eiwit activeert, wat resulteert in de fototransductiecascade.
Hoewel fototransductie goed wordt begrepen, zijn de processen die betrokken zijn bij de toevoer van vitamine A-voorlopers in de voeding voor de vorming van 11-cis-retinale in het oog, evenals ziekten die leiden tot verstoring van deze toevoer, nog niet volledig begrepen. Zodra vitamine A-precursoren in de darm zijn opgenomen, worden ze in de lever opgeslagen als retinylesters en in de bloedbaan vrijgegeven als all-trans-retinol gebonden aan retinolbindend eiwit 4 (RBP4). Deze RBP4-retinol wordt opgenomen door systemische organen, zoals de lever, longen, nieren en ogen. Daarom is een methode voor de kwantificering van de verschillende metabolieten van vitamine A in de voeding in het oog en systemische organen van cruciaal belang voor de studie van een goede rhodopsine GPCR-functie.
In deze methode presenteren we een uitgebreide extractie- en analysemethode voor vitamine A-analyse in muizenweefsel. Door middel van normale-fase, high-performance vloeistofchromatografie-analyse kunnen alle relevante isomeren van retinaldehyden, retinols en retinylesters tegelijkertijd worden gedetecteerd via een enkele run, wat een efficiënt gebruik van experimentele monsters mogelijk maakt en de interne betrouwbaarheid van verschillende vitamine A-metabolieten in hetzelfde monster verhoogt. Met deze uitgebreide methode zullen onderzoekers in staat zijn om de systemische vitamine A-voorziening in de GPCR-functie van rodopsine beter te beoordelen.
Inleiding
G-eiwitgekoppelde receptoren (GPCR's) zijn een van de meest bestudeerde en gekarakteriseerde superfamilies van eiwitten die we kennen. In zijn meest bekende functie dienen GPCR's als een receptor op het celoppervlak bij signaaltransductie, waarbij intracellulaire reacties worden geïnitialiseerd bij binding met een specifiek ligand. GPCR's worden gekenmerkt door zeven transmembraan (TM) spiraalvormige domeinen en zes totale lusdomeinen. Van de zes lussen zijn drie lussen extracellulair georiënteerd om ligandbinding te vergemakkelijken, terwijl de andere drie intracellulaire lussen zijn gekoppeld aan een heterotrimer G-eiwit dat bestaat uit de Gα-, Gβ- en Gγ-subeenheden 1,2.
GPCR's worden ingedeeld in verschillende klassen, waaronder klasse A rodopsine-achtig, klasse B secretinereceptorfamilie, klasse C glutamaat, klasse D schimmelparingsferomoonreceptoren, klasse E cyclische AMP-receptoren en klasse F Frizzled/smoothened 3,4. Zoals de naam al doet vermoeden, omvat de GPCR rodopsine-achtige klasse A-subklasse rhodopsine, de kritieke GPCR die verantwoordelijk is voor fototransductie en visuele functie. Rhodopsine bevat alle relevante sleutelkenmerken en structurele elementen die worden aangetroffen in het canonieke model van GPCR's, inclusief de eerder genoemde zeven TM-spiraalvormige domeinen, de zes extracellulaire en intracellulaire lussen en associatie met een heterotrimer G-eiwit, ook bekend als transducine (Gt) in fotoreceptoren 1,5,6,7. Binnen de bindingszak van rodopsine bindt 11-cis-retinal, het lichtgevoelige chromofoorligand, aan rodopsine op lysine 296 via een covalente Schiff-basebinding, waardoor 11-cis-retinylideen 1,8 wordt gevormd. Na absorptie van een foton foto-isomeriseert 11-cis-retinylideen tot volledig trans-retinylideen, waardoor een conformationele verandering in rodopsine wordt geïnduceerd. Daarom is het 11-cis-retinale ligand van cruciaal belang voor de functie van de rhodopsine GPCR, en een robuuste en efficiënte toevoer van 11-cis-retinal moet continu worden gehandhaafd om de hoge omloopsnelheid binnen fotoreceptoren te overwinnen.
Retinaldehyden zoals 11-cis-retinal behoren tot een groep moleculen die gezamenlijk retinoïden worden genoemd, en biologisch relevante retinoïden worden meer algemeen aangeduid als vitamine A. Retinoïden worden gekenmerkt door een cyclische eindgroep die is verbonden met een geconjugeerde polyeenketen, met een polaire eindgroep aan het andere uiteinde. Retinaldehyden en geassocieerde vitameren van vitamine A vormen geen uitzondering op deze karakterisering, die de β-iononring bevatten als de cyclische eindgroep, een diterpeenpolyeenketen en een verschillende polaire eindgroep, afhankelijk van het vitameer, dat wil zeggen aldehydegroep voor retinaldehyden, hydroxylgroep voor retinolen, carboxylgroep voor retinoïnezuren, esterbinding voor retinylesters, enz. (Figuur 1)9,10.
Zoogdieren kunnen vitamine A niet de novo synthetiseren, maar planten wel; Daarom moeten alle retinoïden in zoogdiersystemen afkomstig zijn van het dieet van plantaardige producenten tot de consumenten in de voedselketen. In het canonieke model van het vitamine A-metabolisme wordt β-caroteen, de archetypische plantaardige provitamine A, geabsorbeerd in de darmenterocyt via de aaseter receptor klasse B, lid 1 (SCARB1), gesplitst in twee moleculen van all-trans-retinal door β-caroteen oxygenase 1 (BCO1/BCMO1), dat bindt aan retinaldehyde bindend eiwit 2 (RBP2) en wordt gereduceerd tot all-trans-retinol door retinoldehydrogenasen (RDH), omgezet in retinylesters door lecithine retinolacyltransferase (LRAT) en vervolgens in chylomicronen in de bloedbaan gebracht 11,12,13,14. Retinylesters, zoals retinylpalmitaat, dienen daarentegen als de overheersende provitamine A uit dierlijke bronnen. Retinylpalmitaat uit het darmlumen wordt gehydrolyseerd tot all-trans-retinol door carboxylesterase 1 (CES1) en diffundeert in de darmenterocyt15. De lever is het primaire opslag- en homeostatische orgaan voor vitamine A-homeostase, dat de retinylesters in deze chylomicronen absorbeert, die worden gehydrolyseerd tot volledig trans-retinol gebonden aan cellulair retinolbindend eiwit 1 (CRBP1) door retinylesterhydrolasen, leverstellaatcellen binnendringt en door LRAT weer wordt omgezet in retinylesters voor opslag13,16, 17. okt. Om een homeostatisch niveau van vitamine A in het organisme te behouden, geeft de lever vitamine A af in de vorm van volledig trans-retinol gebonden aan een serumtransportcomplex, bestaande uit retinolbindend eiwit 4 (RBP4) en transthyretine (TTR)15,18,19. Dit complex wordt in dit manuscript aangeduid als holo-RBP4.
Om deze systemische vitamine A-voorraad in het bloed te gebruiken, moeten systemische weefsels, inclusief oogweefsel waar een robuuste bron van vitamine A wordt onderhouden, een methode hebben om holo-RBP4 in weefsel te absorberen. Binnen het fotoreceptorrijke netvlies in oogweefsel is de membraanreceptor die wordt gestimuleerd door retinoïnezuur 6 (STRA6) de transporter die betrokken is bij deze functie. In mechanistische studies is aangetoond dat STRA6 in staat is om de opname van extracellulair all-trans-retinol van holo-RBP4 in de RPE20 te vergemakkelijken. Deze geïmporteerde all-trans-retinol komt dan in de visuele cyclus, het proces waarbij all-trans-retinol wordt omgezet in 11-cis-retinal binnen de RPE en het buitenste segment van de fotoreceptor, waardoor de visuele functie wordt vergemakkelijkt wanneer het wordt gebonden aan rodopsine 9,21.
Zodra all-trans-retinol uit circulatoire holo-RBP4 via STRA6 de bloed-netvliesbarrière passeert in de RPE in het oogweefsel, wordt all-trans-retinol in de RPE eerst veresterd tot retinylesters door LRAT en vervolgens gehydrolyseerd tot 11-cis-retinol door retinaal pigmentepitheel-specifiek 65 kDa-eiwit (RPE65). 11-cis-retinol wordt vervolgens omgezet in 11-cis-retinaal door de retinol dehydrogenase 5. Dit 11-cis-retinale wordt vervolgens naar het buitenste segment (OS) van de fotoreceptor gedragen door het interfotoreceptor-retinoïdebindende eiwit (IRBP)9,21. Binnen het endoplasmatisch reticulum dat de fotoreceptorkern in de buitenste nucleaire laag (ONL) omringt, worden de opsine GPCR's gesynthetiseerd en getransporteerd over het verbindende cilium (CC). De motoreiwitten die betrokken zijn bij dit transport over de CC zijn omstreden, maar de huidige hypothesen impliceren kinesine en dyneïne-gebaseerd intraflagellair transport (IFT) of myosine-gebaseerd transport als waarschijnlijke facilitators van dit proces 14,22,23,24,25,26. Zodra deze twee componenten samenkomen in de vliezige schijven binnen het besturingssysteem, vormen 11-cis-retinal en opsine 11-cis-retinylideen via een covalente binding van Schiff-base op lysine 196 op rodopsine, klaar voor fototransductie8.
Hoewel de expressie van STRA6 in de RPE van het netvlies de opname van all-trans-retinol uit holo-RBP4 helpt vergemakkelijken, bleek STRA6 niet tot expressie te komen in de lever, ondanks zijn rol als het belangrijkste homeostatische orgaan voor vitamine A en het vermogen vertoont om all-trans-retinol van holo-RBP4 op te nemen 15,19,27,28, 29,30,31. Uiteindelijk werd een analoge receptor genaamd retinol-bindend eiwit 4-receptor 2 (RBPR2) ontdekt, die het vermogen vertoonde om volledig trans-retinol van holo-RBP4 te nemen, net als STRA6, maar tot expressie wordt gebracht in leverweefsel32.
Daarom vereist een volledig begrip van de rol van rodopsine in de visuele functie een begrip van de biologische processen die culmineren in de regeneratie van het visuele pigment. Dit is op zijn beurt nauw verbonden met de eerder beschreven processen, waaronder het metabolisme van provitamine A-voorlopers, opslag in de lever, afgifte van holo-RBP4 door de lever en uiteindelijke opname van holo-RBP4 via STRA6- en RBPR2-membraanreceptoren. Zoals hierboven vermeld, blijven diermodellen zoals muizen een van de belangrijkste modellen in de studie van dergelijke processen. Daarom willen we een extractiemethode voor retinoïden in muizenweefsel presenteren, evenals een normale-fase high-performance vloeistofchromatografie (HPLC) methode die deze retinoïden kan detecteren en kwantificeren. Met behulp van deze methoden kunnen de belangrijke retinoïden die hierboven zijn beschreven, zoals het 11-cis-retinale rodopsineligand of het hoofdtransportretinoïde all-trans-retinol, worden geanalyseerd in oculaire, lever- en systemische organen. Door de toevoer van retinoïden in muizenweefsel te beoordelen, kan ons begrip van de ziektetoestanden en pathologieën die verband houden met de logistieke toevoer van retinoïden verder worden verbeterd.
Naast het functioneren als een chromofoor in de visuele functie door associatie met opsine GPCR's, spelen retinoïden ook een belangrijke rol bij de signalering van zoogdiercellen door middel van retinoïnezuursignalering, gefaciliteerd door twee families van nucleaire receptoren, retinoïnezuurreceptoren (RAR's) en retinoïde X-receptoren (RXR's), die rechtstreeks binden aan DNA en gereguleerde gentranscriptie33. Deze twee families of receptoren gebruiken beide retinoïden in de vorm van retinoïnezuren als ligand. Van RAR's is aangetoond dat ze affiniteit hebben voor zowel all-trans-retinoïnezuur als 9-cis-retinoïnezuur, terwijl RXR's affiniteit uitdrukken voor alleen 9-cis-retinoïnezuur 34,35. Retinoïnezuren in ongecontroleerde hoeveelheden zijn teratogeen en de signalering van retinoïnezuur moet uiterst streng worden gecontroleerd36. De productie van retinoïnezuren voor signalering moet lokaal en op zeer specifieke tijdstippen plaatsvinden voor de juiste ontwikkeling van weefsels, zoals in de ontwikkeling van de achterhersenen en ledematen, maar talloze andere voorbeelden maken gebruik van retinoïnezuursignalering37,38. In cellen die deelnemen aan retinoïnezuursignalering, worden retinoïnezuren gesynthetiseerd door twee groepen enzymen, alcohol/retinoldehydrogenasen (ADH's/RDH's) die de oxidatie van retinols die door STRA6 of RBPR2 worden opgenomen tot retinaldehyden vergemakkelijken, en retinaldehydedehydrogenasen (RALDH's) die de oxidatie van retinaldehyden tot retinoïnezuren vergemakkelijken39. Hoewel ze niet per se deelnemen aan GPCR-signalering, presenteren retinoïnezuren zich niettemin als een cruciale retinoïde die ook functioneert als een ligand voor signaalreceptoren.
Hoewel we hier niet in detail worden beschreven, willen we de eerder vastgestelde methoden voor retinoïdedetectie met behulp van HPLC in verschillende contexten erkennen, zoals in voedselonderzoek en de studie van microbieel rodopsine. Deze methoden maken gebruik van verschillende doelen en benaderingen voor de detectie van retinoïden, waaronder het gebruik van omgekeerde fasetechnieken die minder vluchtige en gevaarlijke mobiele fasen vereisen 40,41,42, de detectie van retinoïnezuren en de bijbehorende isomeren40,41, en zuivering en extractie uit verschillende biologische bronnen43. Onze methode richt zich specifiek op de detectie van retinylpalmitaat, retinaldehyde-isomeren en retinol-isomeren uit zoogdierweefsel. Er moeten verschillende protocollen worden overwogen als de beoogde use case afwijkt van deze specifieke toepassing.
Protocol
OPMERKING: Alle dierproeven zijn goedgekeurd door het Institutional Animal Care and Use Committee (IACUC) van de Universiteit van Minnesota (protocol # 2312-41637A) en uitgevoerd in overeenstemming met de ARVO-verklaring voor het gebruik van dieren in oogheelkundig en gezichtsonderzoek. Voer alle extracties uit in het donker, onder een zwak rood licht voor verlichting. Houd rekening met restlicht dat wordt uitgestraald door instrumentendisplays en accessoire-LED's.
1. Spectrofotometrische retinoïde standaardgeneratie en externe standaardcurvegeneratie
OPMERKING: Bereid een droogijscontainer voor voor tijdelijke opslag van retinoïden voordat u deze met de HPLC analyseert.
- Weeg een willekeurige maar geschikte hoeveelheid retinoïden af en los ze op in een geschikt oplosmiddel voor kwantificering door middel van spectrofotometrie.
OPMERKING: Het oplosmiddel bij uitstek dat in dit onderzoek wordt gebruikt, is ethanol en de molaire absorptiewaarden van retinoïden opgelost in ethanol worden gedetailleerd weergegeven in tabel 1. Watervrije ethanol van HPLC-kwaliteit moet worden gebruikt om standaarden en monsters op te lossen. Ethanol dat uitsluitend door destillatie wordt gezuiverd, vormt een azeotroop mengsel met water, dat ongeveer 4% water per volume bevat. Water is niet mengbaar met de hexaanische mobiele fase en zal resulteren in de hydratatie van de stationaire fase van silica, wat leidt tot uiteindelijke degradatie van de kolom. - Gebruikmakend van de wet van Beer-Lambert en de molaire absorptie van de relevante retinoïde, kwantificeert u de concentratie van de gegenereerde standaard (tabel 1).
Absorptie = Molaire absorptie (ε) × molaire concentratie × padlengte - Voer seriële verdunningen uit om concentraties te creëren die een standaardcurve kunnen genereren binnen het kwantificeringsbereik voor het gewenste weefsel.
OPMERKING: Wees u bewust van de fundamentele beperkingen van de wet van Beer-Lambert, zoals het gebrek aan geldigheid bij hoge concentraties analyt. Om dit probleem te voorkomen, moeten de verdunde retinoïdestandaarden voorkomen dat absorptiewaarden groter dan 1 worden gegenereerd. Voor onze toepassingen in de kwantificering van retinol en retinaldehyde in muizenorganen, ontdekten we dat een kalibratiecurve met een bereik van 1-10 ng in staat was om de typische gevonden hoeveelheden te dekken. Voor de kwantificering van retinylpalmitaat uit de lever van muizen ontdekten we dat een kalibratiecurve met een bereik van 20-80 μg in staat was om de typische gevonden hoeveelheden te dekken. - Door het injectievolume van de eerder gemaakte voorraadoplossing stapsgewijs te wijzigen, waardoor de geïnjecteerde hoeveelheid retinoïde stapsgewijs wordt gewijzigd, integreert u de pieken om een externe standaardcurve te genereren die geschikt is voor kwantificering van retinoïden waarbij de piekintegratie recht evenredig is met de hoeveelheid geïnjecteerde retinoïde.
2. Weefseloogst en monsterneming
NOTITIE: Bereid een droogijscontainer voor voor tijdelijke opslag van weefsel voordat weefselhomogenisatie en retinoïde extractie wordt voorbereid. De aanbevolen hoeveelheden weefseloogst zijn opgenomen in tabel 2. Om rekening te houden met retinoïde variaties als gevolg van variaties in het bloedgehalte voor elk weefsel, moet weefselextractie worden uitgevoerd op volledig geperfundeerde muizen en moet bloedafname worden voltooid op afzonderlijke muizen.
- Euthanaseer de muizen volgens de richtlijnen die zijn opgesteld door het door het Institutional Animal Care and Use Committee (IACUC) gedicteerde protocol (CO2 verstikking hier).
- Bloed: Onthoofd de muizen onmiddellijk na euthanasie met een schaar en laat het bloed uit de hoofdstam van de muizen weglopen in een buisje van 1,5 ml.
- Oog: Verwijder met een tang de ogen van het onthoofde hoofd.
- Hersenen: Knip met een kleine schaar in het onthoofde hoofd en verwijder de hersenen met een pincet.
- Nier, lever, milt, hart en longen: Maak met een kleine schaar een incisie in de buik, knip in de bovenste richting langs de middellijn en snijd door het borstbeen en de ribbenkast. Verwijder het blootgestelde weefsel met een tang.
3. Homogenisatie van weefsels
OPMERKING: Als analyse van kleinere scheidingswanden van organen gewenst is, zoals in grotere organen (bijv. lever- of longweefsel), moet het hele orgaan worden gehomogeniseerd om verschillen in retinoïde-inhoud in verschillende delen van het weefsel te voorkomen. Verdeel in plaats daarvan het homogenaat als kleinere hoeveelheden weefsel gewenst zijn. Een schema voor het protocol is gedetailleerd in figuur 2. Dit aangepaste protocol is overgenomen van Kane en Napoli44.
- Plaats het weefsel in de buis van de tissuemolen, samen met 50% ijskoude zoutoplossing (0,9%) en 50% methanol. Zie tabel 2 voor het volume dat voor elk weefseltype wordt gebruikt.
- Plaats de stamper in de molenbuis, voer langzaam en voorzichtig vijf volledige rotaties uit met de stamper om een homogenaat te verkrijgen.
- Breng de monsters onmiddellijk na homogenisatie over in buisjes van 15 ml.
- Voeg 2 ml methanol toe en laat 15 minuten op kamertemperatuur staan.
OPMERKING: Als analyse van retinaldehyde-oximederivaten gewenst is, voeg dan 1 ml 0,1 M hydroxylaminehydrochloride toe in 0,1 M HEPES (pH 6,5) (Figuur 1).
4. Retinoïde extractie
LET OP: Hexaan is licht ontvlambaar, zeer vluchtig en zeer giftig. Door het National Institute for Occupational Safety and Health (NIOSH) goedgekeurde ademhalingstoestellen, oogbescherming, butylhandschoenen en een zuurkast moeten worden gebruikt bij het hanteren van hexaan. Bij het verdampen van hexaan uit monsters wordt een of andere vorm van verbeterde luchtcirculatie aanbevolen om de vorming van oplosmiddeldampen te voorkomen, bijvoorbeeld een snorkelafzuigapparaat.
- Voeg 10 ml hexaan toe aan het homogenaat en wervelmeng de buis horizontaal gedurende ten minste 10 s.
OPMERKING: Het is van cruciaal belang dat de fasen volledig mengen. - Centrifugeer het homogenaat/hexaanmengsel gedurende 3 minuten bij 1.000 × g om de fasescheiding te vergemakkelijken.
- Voer de extractie 2x uit om ervoor te zorgen dat de retinoïden volledig uit het homogenaat worden geëxtraheerd. Herhaal stap 4.1 en 4.2.
- Zuig de hexaanlaag af met een pipet en plaats de hexaanlaag in een aparte set glazen buisjes van 15 ml voor vacuümverdamping.
OPMERKING: Gebruik voor verdamping GLAZEN buisjes van 15 ml om hechting van retinoïden aan de wanden van de buis te voorkomen. - Laat de hexaan met behulp van een vacuümcentrifuge volledig verdampen.
5. Resuspensie en HPLC-analyse
OPMERKING: Aangezien het HPLC-systeem dat in dit manuscript wordt gebruikt een binair pompsysteem was, werd de mobiele fase met vier componenten vóór gebruik voorgemengd in een enkele fles.
LET OP: Alle vier de organische oplosmiddelen die bij deze methode worden gebruikt, zijn licht ontvlambaar, zeer vluchtig en zeer giftig. 1,4-dioxaan is gevoelig voor explosieve peroxidevorming bij blootstelling aan zuurstof. Houd alle vaten die 1,4-dioxaan bevatten gesloten wanneer ze niet in gebruik zijn. Door het National Institute for Occupational Safety and Health (NIOSH) goedgekeurde ademhalingstoestellen, oogbescherming, butylhandschoenen en een zuurkast moeten worden gebruikt bij het hanteren van deze oplosmiddelen. Tijdens het gebruik van deze oplosmiddelen in een HPLC wordt een of andere vorm van verbeterde luchtcirculatie aanbevolen om de vorming van oplosmiddeldampen te voorkomen, bijvoorbeeld een snorkelafzuigapparaat.
- Resuspendeer de gedroogde tube van 15 ml met 100 μl hexaan; draai goed om ervoor te zorgen dat alle retinoïden zijn opgelost.
- Pipeteer alle 100 μL hexaan in een enkel glazen inzetstuk voor HPLC-analyse.
- Opzetten van de HPLC-run (aangepast van Landers en Olson45): mobiele fase: 85,4% hexaan (v/v), 11,2% ethylacetaat (v/v), 2% dioxaan (v/v), 1,4% 1-octanol (v/v); kolom: twee kolommen met een binnendiameter van 4,6 mm x 250 nm, 5 μm, in serie geschakeld; een meerkoloms thermostaat Temperatuur: 25 °C; injectievolume: 100 μL; debiet: 1 ml/min; Speelduur: 40 min. Gebruik detectie van absorptie in het UV-spectrum; houd de optie aangevinkt om UV-spectrum van 200 nm tot 400 nm te verkrijgen.
6. Piekidentificatie en -integratie
- Identificeer pieken met behulp van retentietijd en UV-spectra van elke retinoïde van belang, zoals waargenomen uit analyse van retinoïde standaarden (Figuur 3, Tabel 3 en Tabel 4).
- Integreer met behulp van het chromatografische gegevenssysteem van het gekozen HPLC-systeem de geïdentificeerde pieken. De integratie, of het gebied onder de curve, is recht evenredig met de hoeveelheid analyt. Raadpleeg de externe standaardcurve die in stap 1 is gegenereerd om de analyt te kwantificeren.
- Voor de analyse van chromatogrammen die zijn gegenereerd uit biologisch weefsel, gebruikt u handmatige integratie in plaats van automatische integratie die wordt aangeboden door typische chromatografische gegevenssystemen, aangezien variaties in parameters zoals retentietijd vaak worden waargenomen in dergelijke monsters.
- Zorg ervoor dat chromatogrammen geen onregelmatigheden vertonen die kunnen duiden op problemen tijdens de run, zoals ruis in basislijnen of niet-Gaussiaanse pieken. Deze problemen duiden op verontreinigingen in de HPLC of slijtage van kolommen en moeten worden gecorrigeerd voor een geldige analyse.
Resultaten
Hier gebruikten we de hierboven beschreven methode om retinoïden in oculair en systemisch weefsel van muizen te detecteren en te kwantificeren en genereerden we representatieve chromatogrammen. We zullen ook een samenvatting geven van de typische retinoïden die in deze weefsels kunnen worden gedetecteerd.
Op de leeftijd van 6 maanden werden muizen geëuthanaseerd door CO2 -verstikking. Om de inhoud van de oculaire retinoïde te behouden, werden muizen gedurende 2 dagen voorafgaand aan euthanasie en extractie aan het donker aangepast. Twee ogen, 0,2 g lever en 75 μl bloed werden verzameld voor retinoïde extractie en daaropvolgende HPLC-analyse. Voor oogweefsel werd één oog geëxtraheerd zonder toevoeging van hydroxylamine, terwijl het andere werd onderworpen aan een behandeling met hydroxylamine. Voor lever en bloed was behandeling met hydroxylamine niet nodig, aangezien retinaldehyden doorgaans niet in deze weefsels worden gedetecteerd.
In het chromatogram van het muizenoog dat niet met hydroxylamine was behandeld, werd 13-cis-retinal, een van de twee niet-canonieke retinaldehyde-isomeren, geïdentificeerd. Bovendien werden zowel 11-cis-retinal als all-trans-retinal, de twee canonieke retinaldehyde-isomeren, geïdentificeerd. In beide chromatogrammen werden zowel het tussenproduct van de visuele cyclus 11-cis-retinol als het belangrijkste vitamine A-transport van all-trans-retinol geïdentificeerd (figuur 4A).
In het chromatogram van het met hydroxylamine behandelde muizenoog waren alle eerder genoemde retinaldehyde-isomeren nog aanwezig. De retentietijden voor deze isomeren waren echter aanzienlijk verlengd. Bovendien presenteren deze retinaldehyde-isomeren zich nu als zowel syn- als anti-isomeren. Tijdens kwantificering door middel van piekintegratie moeten zowel de syn- als de antipieken worden opgeteld om een nauwkeurige integratiewaarde te verkrijgen. Zowel 11-cis-retinol als all-trans-retinol waren nog steeds aanwezig (Figuur 4B).
In het chromatogram van leverweefsel van muizen werden retinylpalmitaat en all-trans-retinol in deze weefsels geïdentificeerd. Retinylpalmitaat, een retinylester, dient als de belangrijkste opslagvorm van vitamine A bij zoogdieren en kan in aanzienlijke hoeveelheden worden aangetroffen in het leverweefsel van zoogdieren. De lever geeft vitamine A af aan systemische weefsels als holo-RBP4, dat all-trans-retinol bevat binnen het RBP4-transthryetin-complex. Vervolgens kan binnen dit chromatogram een grote all-trans-retinolpiek worden geïdentificeerd (Figuur 4C).
In het chromatogram van muizenbloed werd een grote all-trans-retinol-piek geïdentificeerd. Aangezien holo-RBP4 uit de lever via de bloedsomloop wordt afgegeven aan systemische weefsels, is dit zoals verwacht (Figuur 4D). De karakteristieke UV-spectrumabsorptie (~250-400 nm) van de retinoïde isovormen op de tijdafhankelijke opgeloste HPLC-pieken kan nuttig zijn bij de initiële kruisbevestiging van de kwaliteit van de aanwezigheid van de isovormen in een bepaalde respectieve piek (Figuur 5).
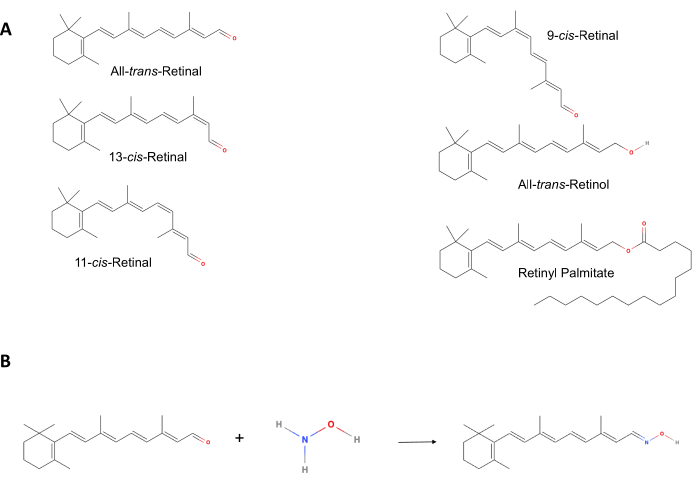
Figuur 1: Chemische structuren van retinoïden. (A) Deze retinoïden worden meestal aangetroffen in geëxtraheerd muizenweefsel. Let op de verschillende polaire eindgroepen, evenals de verschillende locaties van cis dubbele bindingen in retinoïde isomeren. (B) Omzetting van retinaldehyden in retinale oximen verhoogt de extractie-efficiëntie, voorkomt co-elutie van pieken met retinylpalmitaat, evenals co-elutie binnen retinaldehyde-isomeren. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Workflow voor weefseloogst, homogenisatie, retinoïde extractie en analyse. Netvliezen en weefselmonsters van aan het donker aangepaste muizen werden gehomogeniseerd en geëxtraheerd. Stap 1: Na het euthanaseren van muizen volgens de richtlijnen worden bloed en verschillende weefsels verzameld. Stap 2-4: Weefselhomogenisatie wordt vervolgens gedaan met zoutoplossing en methanol, met hydroxylaminehydrochloride voor kwantitatieve analyses. Stappen 5-7: Retinoïden worden behandeld met hexaan, gevolgd door verdamping. Stap 8,9: Geresuspendeerd met 100 μL hexaan om ervoor te zorgen dat alle retinoïden zijn opgelost. Stap 10: Ten slotte worden monsters geanalyseerd met behulp van HPLC. Afkorting: HPLC = High-performance Liquid Chromatography. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: Chromatogram van retinoïde standaarden en met hydroxylamine behandelde retinoïde standaarden. (A) Dit chromatogram bevat retinylpalmitaat, 13-cis-retinal, 11-cis-retinal, all-trans-retinal, 11-cis-retinol, 13-cis-retinol en all-trans-retinol standaarden. (B) Dit chromatogram bevat retinylpalmitaat, 13-cis-retinal, 11-cis-retinal, all-trans-retinal, 11-cis-retinol, 13-cis-retinol en all-trans-retinol-standaarden. Dit chromatogram bevat de syn- en anti-oxime retinaldehyde-isomeren, naast retinol-isomeren. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Representatieve chromatogrammen. (A) Representatief chromatogram van oogweefsel van muizen. Dit chromatogram bevat retinoïden die doorgaans worden aangetroffen in oogweefsel van muizen, waaronder retinaldehyde-isomeren, naast retinol-isomeren. (B) Representatief chromatogram van met hydroxylamine behandeld oogweefsel van muizen. Merk op dat in plaats van de niet-chemisch gemodificeerde retinaldehyden die in de vorige chromatogrammen zijn aangetroffen (Figuur 4A), dit chromatogram de syn- en anti-oxime retinaldeyde-isomeren bevat, naast retinol-isomeren. (C) Representatief chromatogram van leverweefsel van muizen. Dit chromatogram bevat retinoïden die doorgaans worden aangetroffen in leverweefsel van muizen, waaronder retinylpalmitaat en all-trans-retinol. (D) Representatief chromatogram van muizenbloed. Dit chromatogram bevat retinoïden die doorgaans in muizenbloed worden aangetroffen, waaronder volledig trans-retinol. Klik hier om een grotere versie van deze figuur te bekijken.
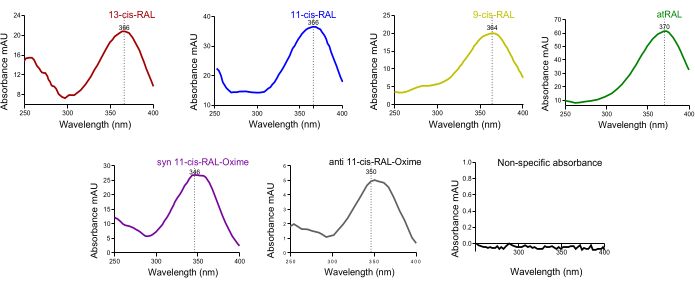
Figuur 5: UV-absorptiespectrum van retinaldehyde-isomeren uit oogweefsel van muizen. Absorptiespectra van (A) 13-cis-retinaal, (B) 11-cis-retinaal, (C) 9-cis-retinaal, (D) all-trans-retinaal, (E) syn 11-cis-retinaal oxime, (F) anti 11-cis-retinaal oxime. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 6: Overzicht van HPLC-modules, mobiele fasestroming en andere instrumentatie. De mobiele fasestroom begint bij de voorbereide oplosmiddelflessen en wordt onder hoge druk door de binaire pomp in de autosampler gepompt, waar de analyt in de oplosmiddelstroom wordt opgenomen. De mobiele fase en analyt bereiken het temperatuurgeregelde kolomcompartiment en ten slotte in de diode-array-detector voor meting. (A) Rood getint beeldscherm dat de foto-isomerisatie van retinoïden minimaliseert. (B) Binaire pomp. (C) Monsternemer voor injectieflacon. (D) Thermostaat met meerdere kolommen. (E) Diode-array-detector. (F) Verzamelaar van analytische fracties. (G) Container voor poly-afval met hoge dichtheid. (H) Van links naar rechts, aluminium krimpdop, inzetstuk van 250 μL met polymeervoetjes, amberkleurig getinte krimpflacon aan de bovenkant, eindmontage van injectieflacon. (I) Links, gekoelde centrifuge. Rechts, centrifuge concentrator. Klik hier om een grotere versie van deze figuur te bekijken.
| Verbinding | Molaire absorptie (ε) | Oplosmiddel | Referentie |
| Retinyl Palmitaat | 49260 | Ethanol | Hubbard et al.49 |
| 13-cis-Retinaal | 35500 | Ethanol | Hubbard et al.49 |
| 11-cis-Retinaal | 24935 | Ethanol | Hubbard et al.49 |
| 9-cis-Retinaal | 36100 | Ethanol | Robeson et al.51 |
| Volledig trans-retinaal | 42880 | Ethanol | Hubbard et al.49 |
| 11-cis-Retinol | 34890 | Ethanol | Hubbard et al.49 |
| 13-cis-Retinol | 48305 | Ethanol | Robeson et al.50 en Robeson et al.51 |
| Volledig trans-Retinol | 52770 | Ethanol | Hubbard et al.49 |
Tabel 1: Molaire absorptie van retinoïden in ethanol. Molaire absorptiewaarden van retinoïden werden verzameld uit Kane en Napoli44, Hubbard et al.46, Robeson et al.47 en Robeson et al.48. De molaire absorptie is afhankelijk van het oplosmiddel. De hier vermelde waarden zijn specifiek voor retinoïden opgelost in ethanol.
| Weefsel | Hoeveelheid weefseloogst | Volume voor homogenisatie |
| Bloed | 75 μL | N.V.T |
| Lever | 0,2 gr | 2 ml |
| Nier | 2 hele nieren | 2 ml |
| Huid | 0,2 gr | 1 ml – 1,5 ml |
| Milt | 1 hele milt | 1 ml |
| Oog | Zowel Retina, pool 4 Retina | 1 ml |
| Hersenen | 1 Hele hersenen | 2 ml |
| Hart | 1 Heel Hart | 1 ml |
| Long | 0,2 gr | 2 ml |
Tabel 2: Aanbevolen weefselhoeveelheid per analyse. Weefselhoeveelheid per analyse en volume van 50% ijskoude zoutoplossing (0,9%) en 50% methanol voor weefselhomogenisatie, zoals aanbevolen door Kane en Napoli44.
| Verbinding | Retentietijd (min) | UV-absorptie Maxima (nm) |
| Retinyl Palmitaat | 5.177 | 326 |
| 13-cis-Retinaal | 7.268 | 366 |
| 11-cis-Retinaal | 7.691 | 366 |
| 9-cis-Retinaal | 7.931 | 364 |
| Volledig trans-retinaal | 8.993 | 370 |
| 11-cis-Retinol | 17.003 | 318 |
| 13-cis-Retinol | 17.83 | 328 |
| Volledig trans-Retinol | 23.933 | 326 |
Tabel 3: Retentietijden en maximale extinctiegolflengten van retinoïden. Deze waarden werden waargenomen bij gebruik met de beschreven methode en mobiele fase, zoals gedetecteerd met de diode-arraydetector waarnaar wordt verwezen.
| Verbinding | Retentietijd (min) | UV-absorptie Maxima (nm) |
| Syn 11-cis-Retinale Oxime | 9.59 | 346 |
| Syn Volledig trans-retinale oxime | 10.6 | 356 |
| Syn 13-cis-Retinale Oxime | 11.3 | 352 |
| Anti 13-cis-retinale oxime | 13 | 356 |
| Anti 11-cis-retinale oxime | 15.1 | 350 |
| Anti Volledig trans-retinale oxime | 19.7 | 360 |
Tabel 4: Retentietijden en maximale extinctiegolflengten van met hydroxylamine behandelde retinaldehyden, resulterend in syn- en anti-oxime-isomeren van elk retinaldehyde. Deze waarden werden waargenomen bij gebruik met de beschreven methode en mobiele fase, zoals gedetecteerd met de diode-arraydetector waarnaar wordt verwezen.
Discussie
In deze methode wordt normale-fase HPLC gebruikt om relevante retinoïden te detecteren en te kwantificeren, waaronder retinylesters, retinaldehyden en retinolen. Gezien het belang van 11-cis-retinal als de kritische chromofoor bij de activering van de rhodopsine GPCR, is een methode die de metabolieten kan detecteren die verband houden met de productie van 11-cis-retinal van cruciaal belang voor de studie van de algehele visuele functie. Het belangrijkste voordeel van deze methode is dat alle relevante isomeren van zowel retinaldehyden als retinols tegelijkertijd kunnen worden gedetecteerd en gekwantificeerd met een enkele run. Gezien hoe schaars levensvatbare experimentele weefsels zijn, maakt deze methode een efficiënt gebruik van weefsel mogelijk bij de detectie van retinoïden. Hoewel het gebruik van mobiele fasen op basis van hexaan en ethylacetaat is gemeld bij de scheiding van retinoïden49, verbetert de toevoeging van 1,4-dioxaan en 1-octanol de resolutie van retinoïde isomeren. 1,4-dioxaan is nodig voor de resolutie van 13-cis-retinol en 11-cis-retinol50, terwijl alcoholen met een lange keten zoals 1-octanol de scheiding van retinolisomeren verder verbeteren 45,51,52.
Voor kwantificering van retinaldehyde-isomeren is voorafgaande omzetting naar de overeenkomstige retinaldehyde-oximen met hydroxylamine vereist, aangezien de reactieve aldehydegroep geneigd is te reageren met andere biomoleculen zoals eiwitten en lipiden 45,53,54. Retinaldehyde-oximen worden gemakkelijker geëxtraheerd en zorgen ervoor dat retinaldehydepieken later in de run elueren, waardoor piekco-elutie met de onbekende groep pieken en de retinylpalmitaatpiek die na ~5-8 minuten elueert voor biologische weefsels wordt voorkomen. Behandeling van retinaldehyden met hydroxylamine voorkomt ook co-elutie van retinaldehyden met vergelijkbare elutie maal45. De omzetting in retinaldehyde-oximen genereert zowel syn- als anti-isomeren, die op twee verschillende tijdstippen elueren met twee verschillende pieken voor elk retinaldehyde-isomeer. De integratie voor beide pieken moet worden opgeteld om elk retinaldehyde-isomeer goed te kwantificeren. Naast de retentietijd bieden de UV-spectra nog een andere metriek die kan worden gebruikt bij piekidentificatie. Elke retinoïde vertoont een iets ander UV-absorptiemaximum. Wanneer deze twee maatstaven in aanmerking worden genomen, samen met de retentietijd, kunnen pieken nauwkeurig worden geïdentificeerd (tabel 3 en tabel 4).
Hoewel de aanwezigheid van canonieke retinaldehyde-isomeren zoals 11-cis-retinal en all-trans-retinal wordt verwacht in oogweefsel, waarbij 11-cis-retinal de kritieke rhodopsine-ligandchromofoor is en all-trans-retinal de foto-isomerische ligand, worden andere niet-canonieke retinaldehyde-isomeren gedetecteerd met deze methode. In het bijzonder werd 13-cis-retinal gemakkelijk gedetecteerd in HPLC-runs van muizen oogweefsel tijdens onze analyse (Figuur 4A-D). Het verschijnen van deze niet-canonieke retinaldehyden is niet geheel onverwacht, maar zowel 13-cis-retinaal als 9-cis-retinaal zijn bekende bijproducten die het gevolg zijn van door licht geïnduceerde stress op het netvlies55,56. Deze retinaldehyde-isomeren nemen niet deel aan de bekende canonieke fototransductiecascaderoute en hun metabolische lot blijft relatief onbekend. Het is echter aangetoond dat 9-cis-retinal ook stabiel bindt aan de bindingszak van rodopsine, waardoor isorhodopsine wordt gevormd. De rol van isorhodopsine moet nog volledig worden gekarakteriseerd, maar studies hebben aangetoond dat isorhodopsine lichtgevoelige eigenschappen vertoont, net als het 11-cis-retinale gebaseerde rodopsine57,58. Op zijn minst biedt het vermogen van 9-cis-retinal om stabiel isorhodopsine te vormen en te foto-isomeriseren tot volledig trans-retinaal een redelijke verklaring voor de afwezigheid ervan in onze HPLC-analyse56. Aan de andere kant is niet aangetoond dat 13-cis-retinal deelneemt aan een bekende oculaire biochemische route, en de accumulatie ervan in oogweefsel kan leiden tot oxidatieve stress in het netvlies 55,59,60.
Hoewel 9-cis-retinal doorgaans niet wordt aangetroffen in muizenweefsel, moet worden vermeld dat de met hydroxylamine behandelde methode geen levensvatbare methode is voor de scheiding en kwantificering van 9-cis-retinal. De pieken voor syn 9-cis-retinaal en syn 13-cis-retinal zullen na 11,2 minuten coelute. In gevallen waarin aanzienlijke hoeveelheden 9-cis-retinal worden verwacht, zoals wanneer het exogeen wordt aangebracht, is alleen kwantificering van gecombineerd 9-cis-retinaal en 13-cis-retinaal mogelijk. Voor kwalitatieve identificatie maakt het uitvoeren van de methode zonder het weefsel met hydroxylamine te behandelen de volledige scheiding van 13-cis-retinale en 9-cis-retinale pieken mogelijk.
Naast oogweefsel kan deze methode ook gemakkelijk worden toegepast op systemisch weefsel. Hoewel retinaldehyden in hun verschillende isomere vormen doorgaans niet worden aangetroffen in systemisch weefsel, is all-trans-retinol gebonden aan retinolbindend eiwit 4 (holo-RBP4) de belangrijkste transportvorm van vitamine A in zoogdierorganismen en kan all-trans-retinol gemakkelijk in het bloed worden gedetecteerd met behulp van deze methode. Naast het bloed kan all-trans-retinol doorgaans ook in alle systemische weefsels worden gedetecteerd. Daarom kan met behulp van deze methode een volledig systemisch weefselbreed retinoïdeprofiel worden gemaakt met behulp van deze methode.
Aangezien retinaldehyden, met name het kritieke rodopsineligand 11-cis-retinal, extreem gevoelig zijn voor foto-isomerisatie, is het van cruciaal belang dat preventieve maatregelen worden genomen om onbedoelde blootstelling aan licht tijdens een van de hierboven beschreven stappen te voorkomen. Naast de voor de hand liggende bronnen van kamerverlichting en instrumentenpanelen, hebben we ontdekt dat afwijkend licht van accessoire-LED's in verschillende instrumenten, zoals die achter instrumenten, waaronder de HPLC zelf, belangrijke bronnen zijn van onbedoelde blootstelling aan licht (Figuur 6). Bovendien hebben we ontdekt dat een speciale donkere kamer van vitaal belang was voor de juiste behandeling van retinaldehyde-isomeren en experimentele weefsels. Naast lichtminimalisatie raden we aan dat weefsel snel en snel wordt verwerkt na euthanasie en oogst, aangezien afbraak van retinaldehyde-isomeren zelfs optreedt in afwezigheid van licht. Idealiter zouden weefseloogst, extractie en HPLC-analyse allemaal op dezelfde dag moeten worden voltooid.
Weefsel dat niet onmiddellijk wordt verwerkt, moet in het donker worden bewaard bij -80 °C en mag niet langer dan een week worden bewaard voordat het wordt verwerkt. Zoals hierboven vermeld, zijn alle oplosmiddelen die in de mobiele fase en in de extractiestappen van de bovenstaande methode worden gebruikt, zeer giftig, vluchtig en ontvlambaar. De juiste procedures en apparatuur moeten worden gebruikt bij het omgaan met deze gevaarlijke oplosmiddelen. Juiste persoonlijke beschermingsmiddelen (PBM's) zoals butylhandschoenen, NIOSH-goedgekeurde ademhalingstoestellen en oogbescherming moeten worden aangetrokken voordat met oplosmiddel wordt omgegaan, en alle overdracht van oplosmiddelen moet worden gedaan in een zuurkast. Houd er rekening mee dat 1,4-dioxaan gevoelig is voor explosieve peroxidevorming bij blootstelling aan zuurstof en houd alle oplosmiddelhouders met 1,4-dioxaan goed afgesloten van lucht.
Als een normaal-fase HPLC-methode niet levensvatbaar is vanwege ontoereikende materialen of apparatuur, bestaan er meer typische omgekeerde fasemethoden met minder vluchtige oplosmiddelen zoals acetonitril en water om retinaldehyden en retinols te detecteren en te kwantificeren. Deze methoden zijn echter niet in staat om isomeren te scheiden en kunnen alleen totaal retinaldehyden of totaal retinolen detecteren 44,54.
Openbaarmakingen
De auteurs verklaren dat er geen sprake is van belangenverstrengeling.
Dankbetuigingen
Dit werk werd ondersteund door NIH-NEI-subsidies (EY030889 en 3R01EY030889-03S1) en gedeeltelijk door de startfondsen van de Universiteit van Minnesota aan GPL. We willen ook het National Eye Institute bedanken voor het verstrekken van de 11-cis-retinale standaard die in dit manuscript wordt gebruikt.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Reagens | |||
| 1-Octanol, geschikt voor HPLC, ≥99.5% | Sigma-Aldrich, Millipore Sigma | 203-917-6 | |
| 1,4-Dioxaan, geschikt voor HPLC, ≥99.5% | Sigma-Aldrich, Millipore Sigma | 204-661-8 | |
| 11-cis-retinal | National Eye Institute | N/A | |
| 11-cis-Retinol | Toronto Research Chemicals | TRC-R252105 | |
| 13-cis-retinal | Toronto Research Chemicals | TRC-R239900 | |
| 13-cis-retinol | Toronto Research Chemicals | TRC-R252110 | |
| All-trans-Retinal | Toronto Research Chemicals | TRC-R240000 | |
| All-trans-Retinol | Toronto Research Chemicals | TRC-R252002 | |
| Ethyl Acetaat, geschikt voor HPLC, ≥99.7% | Sigma-Aldrich, Millipore Sigma | 205-500-4 | |
| Hexaan, HPLC-kwaliteit | Fisher Scientific, Spectrum Chemical | 18-610-808 | |
| Methanol (HPLC) | Fisher Scienctific | A452SK-4 | |
| Retinylpalmitaat | Toronto Research Chemicals | TRC-R275450 | |
| Natriumchloride (Kristallijn/Gecertificeerd ACS) | Fisher Scientific | S271-500 | |
| Instrumenten | |||
| 1260 Infinity II Analytische fractiecollector | Agilent | G1364F | |
| 1260 Infinity II Binaire pomp | Agilent | G7112B | |
| 1260 Infinity II Diode Array Detector | Agilent | G7115A | |
| 1260 Infinity II Multicolumn Thermostaat | Agilent | G7116A | |
| 1260 Infinity II Vialsampler | Agilent | G7129A | |
| ST40R Gekoelde Centrifuge | Thermo Scientific | TSST40R | |
| Vacufuge Plus Centrifuge Concentrator | Eppendorf | 22820168 | |
| Verbruiksartikelen | |||
| 2 mL Amber Schroefdop Flesjes | Agilent | 5188-6535 | |
| Krimpkap met PTFE/rood rubber septum, 11 mm | Agilent | 5183-4498 | |
| Weggeef glas conische centrifugeerbuisjes | Millipore Sigma | CLS9950215 | |
| Schroefdopbuisje, 15 mL | Sarstedt | 62.554.502 | |
| Vial insert, 150 µL, glas met polymeervoeten | Agilent | 5183-2088 |
Referenties
- Palczewski, K., et al. Crystal structure of rhodopsin: A G protein-coupled receptor. Science. 289 (5480), 739-745 (2000).
- Rosenbaum, D. M., Rasmussen, S. G. F., Kobilka, B. K. The structure and function of G-protein-coupled receptors. Nature. 459 (7245), 356-363 (2009).
- Alhosaini, K., Azhar, A., Alonazi, A., Al-Zoghaibi, F. GPCRs: The most promiscuous druggable receptor of the mankind. Saudi Pharm J. 29 (6), 539-551 (2021).
- Hu, G. -M., Mai, T. -L., Chen, C. -M. Visualizing the GPCR network: Classification and evolution. Sci Rep. 7 (1), 15495(2017).
- Lerea, C. L., Somers, D. E., Hurley, J. B., Klock, I. B., Bunt-Milam, A. H. Identification of specific transducin α subunits in retinal rod and cone photoreceptors. Science. 234 (4772), 77-80 (1986).
- Gao, Y., Hu, H., Ramachandran, S., Erickson, J. W., Cerione, R. A., Skiniotis, G. Structures of the rhodopsin-transducin complex: Insights into G protein activation. Mol Cell. 75 (4), 781-790.e3 (2019).
- Zhou, X. E., Melcher, K., Xu, H. E. Structure and activation of rhodopsin. Acta Pharmacol Sin. 33 (3), 291-299 (2012).
- Robinson, P. R., Cohen, G. B., Zhukovsky, E. A., Oprian, D. D. Constitutively active mutants of rhodopsin. Neuron. 9 (4), 719-725 (1992).
- Kiser, P. D., Golczak, M., Palczewski, K. Chemistry of the retinoid (visual) cycle. Chem Rev. 114 (1), 194-232 (2014).
- Sani, B. P., Hill, D. L. [3] Structural characteristics of synthetic retinoids. Methods Enzymol. 189, 43-50 (1990).
- Lobo, G. P., Amengual, J., Palczewski, G., Babino, D., von Lintig, J. Carotenoid-oxygenases: Key players for carotenoid function and homeostasis in mammalian biology. Biochim Biophys Acta. 1821 (1), 78-87 (2012).
- Amengual, J., et al. Two carotenoid oxygenases contribute to mammalian provitamin A metabolism. J Biol Chem. 288 (47), 34081-34096 (2013).
- Harrison, E. H. Mechanisms involved in the intestinal absorption of dietary vitamin A and provitamin A carotenoids. Biochim Biophys Acta. 1821 (1), 70-77 (2012).
- Leung, M., et al. The logistical backbone of photoreceptor cell function: Complementary mechanisms of dietary vitamin A receptors and rhodopsin transporters. Int J Mol Sci. 25 (8), 4278(2024).
- Martin Ask, N., Leung, M., Radhakrishnan, R., Lobo, G. P. Vitamin A transporters in visual function: A mini review on membrane receptors for dietary vitamin A uptake, storage, and transport to the eye. Nutrients. 13 (11), 3987(2021).
- Harrison, E. H. Carotenoids, β-apocarotenoids, and retinoids: The long and the short of it. Nutrients. 14 (7), 1411(2022).
- Li, Y., Wongsiriroj, N., Blaner, W. S. The multifaceted nature of retinoid transport and metabolism. Hepatobiliary Surg Nutr. 3 (3), 126-139 (2014).
- D'Ambrosio, D. N., Clugston, R. D., Blaner, W. S. Vitamin A metabolism: An update. Nutrients. 3 (1), 63-103 (2011).
- Yamamoto, Y., et al. Interactions of transthyretin (TTR) and retinol-binding protein (RBP) in the uptake of retinol by primary rat hepatocytes. Exp Cell Res. 234 (2), 373-378 (1997).
- Kawaguchi, R., et al. A membrane receptor for retinol binding protein mediates cellular uptake of vitamin A. Science. 315 (5813), 820-825 (2007).
- Kiser, P. D., Golczak, M., Maeda, A., Palczewski, K. Key enzymes of the retinoid (visual) cycle in vertebrate retina. Biochim Biophys Acta. 1821 (1), 137-151 (2012).
- Radhakrishnan, R., et al. The role of motor proteins in photoreceptor protein transport and visual function. Ophthalmic Genet. 43 (3), 285-300 (2022).
- Solanki, A. K., et al. Loss of motor protein MYO1C causes rhodopsin mislocalization and results in impaired visual function. Cells. 10 (6), 1322(2021).
- Liu, X., Udovichenko, I. P., Brown, S. D. M., Steel, K. P., Williams, D. S. Myosin VIIa participates in opsin transport through the photoreceptor cilium. J Neurosci. 19 (15), 6267-6274 (1999).
- Insinna, C., Besharse, J. C. Intraflagellar transport and the sensory outer segment of vertebrate photoreceptors. Dev Dyn. 237 (8), 1982-1992 (2008).
- Krock, B. L., Mills-Henry, I., Perkins, B. D. Retrograde intraflagellar transport by cytoplasmic dynein-2 is required for outer segment extension in vertebrate photoreceptors but not arrestin translocation. Invest Ophthalmol Vis Sci. 50 (11), 5463-5471 (2009).
- Blaner, W. S. STRA6, a cell-surface receptor for retinol-binding protein: The plot thickens. Cell Metab. 5 (3), 164-166 (2007).
- Bouillet, P., et al. Developmental expression pattern of Stra6, a retinoic acid-responsive gene encoding a new type of membrane protein. Mech Dev. 63 (2), 173-186 (1997).
- Blomhoff, R., Norum, K. R., Berg, T. Hepatic uptake of [3H]retinol bound to the serum retinol binding protein involves both parenchymal and perisinusoidal stellate cells. J Biol Chem. 260 (25), 13571-13575 (1985).
- Kelly, M., von Lintig, J. STRA6: role in cellular retinol uptake and efflux. Hepatobiliary Surg Nutr. 4 (4), 229-242 (2015).
- Quadro, L., et al. The role of extrahepatic retinol binding protein in the mobilization of retinoid stores. J. Lipid Res. 45 (11), 1975-1982 (2004).
- Alapatt, P., et al. Liver retinol transporter and receptor for serum retinol-binding protein (RBP4). J Biol Chem. 288 (2), 1250-1265 (2013).
- Chawla, A., Repa, J. J., Evans, R. M., Mangelsdorf, D. J. Nuclear receptors and lipid physiology: Opening the X-files. Science. 294 (5548), 1866-1870 (2001).
- Heyman, R. A., et al. 9-cis retinoic acid is a high affinity ligand for the retinoid X receptor. Cell. 68 (2), 397-406 (1992).
- Allenby, G., et al. Retinoic acid receptors and retinoid X receptors: interactions with endogenous retinoic acids. Proc Natl Acad Sci USA. 90 (1), 30-34 (1993).
- Das, B. C., et al. Retinoic acid signaling pathways in development and diseases. Bioorg Med Chem. 22 (2), 673-683 (2014).
- Hernandez, R. E., Putzke, A. P., Myers, J. P., Margaretha, L., Moens, C. B. Cyp26 enzymes generate the retinoic acid response pattern necessary for hindbrain development. Development. 134 (1), 177-187 (2007).
- Yashiro, K., et al. Regulation of retinoic acid distribution is required for proximodistal patterning and outgrowth of the developing mouse limb. Dev Cell. 6 (3), 411-422 (2004).
- Duester, G. Families of retinoid dehydrogenases regulating vitamin A function. Eur J Biochem. 267 (14), 4315-4324 (2000).
- Tatum, V., Chow, C. K. Rapid measurement of retinol, retinal, 13-cis-retinoic acid and all-trans-retinoic acid by high performance liquid chromatography. J Food Drug Anal. 13 (3), (2020).
- Teerlink, T., Copper, M. P., Klaassen, I., Braakhuis, B. J. M. Simultaneous analysis of retinol, all-trans- and 13-cis-retinoic acid and 13-cis-4-oxoretinoic acid in plasma by liquid chromatography using on-column concentration after single-phase fluid extraction. J Chromatogr B. Biomed Sci App. 694 (1), 83-92 (1997).
- Egberg, D. C., Heroff, J. C., Potter, R. H. Determination of all-trans and 13-cis vitamin A in food products by high-pressure liquid chromatography. J Agric Food Chem. 25 (5), 1127-1132 (1977).
- Sudo, Y., et al. A microbial rhodopsin with a unique retinal composition shows both sensory rhodopsin II and bacteriorhodopsin-like properties. J Biol Chem. 286 (8), 5967-5976 (2011).
- Kane, M. A., Napoli, J. L. Quantification of endogenous retinoids. Methods Mol Biol. 652, 1-54 (2010).
- Landers, G. M., Olson, J. A. Rapid, simultaneous determination of isomers of retinal, retinal oxime and retinol by high-performance liquid chromatography. J Chromatogr A. 438, 383-392 (1988).
- Hubbard, R., Brown, P. K., Bownds, D. [243] Methodology of vitamin A and visual pigments. Methods Enzymol. 18, 615-653 (1971).
- Robeson, C. D., et al. Chemistry of vitamin A. XXIV. The synthesis of geometric isomers of vitamin A via methyl β-methylglutaconate1. J Am Chem Soc. 77 (15), 4111-4119 (1955).
- Robeson, C. D., Blum, W. P., Dieterle, J. M., Cawley, J. D., Baxter, J. G. Chemistry of vitamin A. XXV. Geometrical isomers of vitamin A aldehyde and an isomer of its α-ionone analog1. J Am Chem Soc. 77 (15), 4120-4125 (1955).
- Hubinger, J. C. Determination of retinol, retinyl palmitate, and retinoic acid in consumer cosmetic products. J Cosmet Sci. 60 (5), 485-500 (2009).
- Bhat, P. V., Co, H. T., Lacroix, A. Effect of 2-alkanols on the separation of geometric isomers of retinol in non-aqueous high-performance liquid chromatography. J Chromatogr A. 260, 129-136 (1983).
- Stancher, B., Zonta, F. Quantitative high-performance liquid chromatographic method for determining the isomer distribution of retinol (vitamin A1) and 3-dehydroretinol (vitamin A2) in fish oils. J Chromatogr. 312, 423-434 (1984).
- Zonta, F., Stancher, B. High-performance liquid chromatography of retinals, retinols (vitamin A1) and their dehydro homologues (vitamin A2): improvements in resolution and spectroscopic characterization of the stereoisomers. J Chromatogr A. 301, 65-75 (1984).
- van Kuijk, F. J., Handelman, G. J., Dratz, E. A. Rapid analysis of the major classes of retinoids by step gradient reversed-phase high-performance liquid chromatography using retinal (O-ethyl) oxime derivatives. J Chromatogr. 348 (1), 241-251 (1985).
- Kane, M. A., Folias, A. E., Napoli, J. L. HPLC/UV quantitation of retinal, retinol, and retinyl esters in serum and tissues. Anal Biochem. 378 (1), 71-79 (2008).
- Widjaja-Adhi, M. A. K., Ramkumar, S., von Lintig, J. Protective role of carotenoids in the visual cycle. FASEB J. 32 (11), 6305-6315 (2018).
- Ramkumar, S., Jastrzebska, B., Montenegro, D., Sparrow, J. R., von Lintig, J. Unraveling the mystery of ocular retinoid turnover: Insights from albino mice and the role of STRA6. J Biol Chem. 300 (3), 105781(2024).
- de Grip, W. J., Lugtenburg, J. Isorhodopsin: An undervalued visual pigment analog. Colorants. 1 (3), 256-279 (2022).
- Fan, J., Rohrer, B., Moiseyev, G., Ma, J., Crouch, R. K. Isorhodopsin rather than rhodopsin mediates rod function in RPE65 knock-out mice. Proc Natl Acad Sci USA. 100 (23), 13662-13667 (2003).
- Sparrow, J. R. Bisretinoids of RPE lipofuscin: Trigger for complement activation in age-related macular degeneration. Adv Exp Med Biol. 703, 63-74 (2010).
- Różanowska, M., Handzel, K., Boulton, M. E., Różanowski, B. Cytotoxicity of all-trans-retinal increases upon photodegradation. Photochem Photobiol. 88 (6), 1362-1372 (2012).
Herprints en machtigingen
