We introduceren een nieuw apparaat voor het meten van zuurstofverbruik (OCR) in retinale pigmentepitheliale (RPE) culturen. Het apparaat kan OCR wekenlang meten op RPE die is gekweekt op standaard celkweekplaten met standaardmedia, terwijl de platen zich in een standaard celcultuurincubator bevinden.
Methodenartikel
Langdurige monitoring van zuurstofverbruiken in sterk gedifferentieerde en gepolariseerde retinale pigmentepitheelculturen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het mitochondriale metabolisme is van cruciaal belang voor de normale functie van het retinale pigmentepitheel (RPE), een monolaag van cellen in het netvlies die belangrijk is voor de overleving van fotoreceptoren. RPE mitochondriale disfunctie is een kenmerk van leeftijdsgebonden maculaire degeneratie (AMD), de belangrijkste oorzaak van onomkeerbare blindheid in de ontwikkelde wereld, en proliferatieve vitreoretinopathie (PVR), een verblindende complicatie van netvliesloslatingen. RPE-degeneratieve aandoeningen zijn goed gemodelleerd door RPE-cultuursystemen die sterk gedifferentieerd en gepolariseerd zijn om in vivo RPE na te bootsen. Het monitoren van zuurstofverbruikssnelheden (OCR), een proxy voor de mitochondriale functie, was echter moeilijk in dergelijke kweeksystemen omdat de omstandigheden die ideale RPE-polarisatie en differentiatie bevorderen, geen gemakkelijke OCR-metingen mogelijk maken.
Hier introduceren we een nieuw systeem, Resipher, om OCR wekenlang te monitoren in goed gedifferentieerde RPE-culturen, terwijl de RPE op optimale groeisubstraten en fysiologische kweekmedia wordt gehandhaafd in een standaard celcultuurincubator. Dit systeem berekent OCR door de zuurstofconcentratiegradiënt te meten die aanwezig is in de media boven de cellen. We bespreken de voordelen van dit systeem ten opzichte van andere methoden voor het detecteren van OCR en hoe het systeem voor het meten van OCR in RPE-culturen kan worden opgezet. We behandelen belangrijke tips en trucs voor het gebruik van het systeem, voorzichtigheid bij het interpreteren van de gegevens en richtlijnen voor het oplossen van onverwachte resultaten.
We bieden ook een online rekenmachine voor het extrapoleren van het niveau van hypoxie, normoxie of hyperoxie RPE-culturen op basis van de zuurstofgradiënt in de media boven cellen die door het systeem worden gedetecteerd. Ten slotte bespreken we twee toepassingen van het systeem, het meten van de metabolische toestand van RPE-cellen in een PVR-model en het begrijpen hoe de RPE zich metabolisch aanpast aan hypoxie. We verwachten dat het gebruik van dit systeem op sterk gepolariseerde en gedifferentieerde RPE-culturen ons begrip van het mitochondriale metabolisme van RPE zal vergroten, zowel onder fysiologische als onder ziektetoestanden.
Inleiding
Het retinale pigmentepitheel (RPE) is een monolaag van functioneel postmitotische, sterk gepolariseerde epitheelcellen die een barrière vormen tussen lichtgevoelige fotoreceptoren in het netvlies en hun bloedcirculatie, een capillair bed dat de choriocapillaris wordt genoemd. Net als de rol van glia-ondersteunende neuronen, voert de RPE talloze functies uit om fotoreceptoren te ondersteunen, waaronder fagocytose van de buitenste segmenten van fotoreceptoren, transport van voedingsstoffen en metabole ondersteuning voor fotoreceptoren, en afscheiding van essentiële groeifactoren, allemaal cruciaal voor het behoud van de visuele functie.
Degeneratie van de RPE ligt ten grondslag aan verschillende veel voorkomende degeneratieve aandoeningen van het gezichtsvermogen. Bij leeftijdsgebonden maculaire degeneratie (AMD), een van de meest voorkomende oorzaken van ongeneeslijk verlies van het gezichtsvermogen in de wereld, sterft de RPE af en lijden bovenliggende fotoreceptoren daarom aan een secundaire degeneratie. Bij proliferatieve vitreoretinopathie (PVR) verlaat de RPE in plaats daarvan zijn normaal rustige postmitotische toestand, prolifereert en dedifferentieert in een mesenchymale toestand (een zogenaamde epitheel-naar-mesenchymale overgang [EMT]) met veranderingen in het metabolisme. RPE-dedifferentiatie veroorzaakt een verlies van RPE-ondersteuning aan fotoreceptoren, terwijl het ook een meer fibrotische toestand veroorzaakt. Dit resulteert in zowel fotoreceptordegeneratie als RPE-geïnduceerde littekens, die beide verlies van het gezichtsvermogen veroorzaken 1,2.
Een groot deel van de ondersteuning van de RPE aan fotoreceptoren is metabolisch, en metabole ontregeling is een kritieke factor bij tal van netvliesaandoeningen, waaronder AMD en PVR. De RPE dient als een regulerende barrière tussen fotoreceptoren en hun bron van zuurstof en voedingsstoffen, de choriocapillaris. Dus wat de RPE kiest om te metaboliseren versus wat de RPE kiest om door te gaan van de choriocapillaris naar de fotoreceptoren, bepaalt sterk het metabolisme en de overleving van fotoreceptoren. Talrijke studies hebben aangetoond dat de RPE voor zijn normale gezondheid sterk afhankelijk is van het mitochondriale metabolisme, en dat fotoreceptoren in plaats daarvan sterk afhankelijk zijn van glycolyse3. Dit heeft het concept geïntroduceerd van complementaire, met elkaar verweven metabolische toestanden tussen fotoreceptoren en de RPE. In het bijzonder vermindert de RPE het metabolisme van geprefereerde fotoreceptormetabole substraten en gebruikt in plaats daarvan de bijproducten van het fotoreceptormetabolisme in combinatie met de metabolieten die fotoreceptoren niet consumeren. Bij ziekten zoals PVR en AMD zijn er sterke aanwijzingen dat de RPE meer glycolytisch wordt en minder afhankelijk is van het mitochondriale metabolisme; deze verschuiving naar RPE-glycolyse kan fotoreceptoren van metabolieten die het nodig heeft uithongeren, wat degeneratie veroorzaakt 4,5,6. Gezien hoe onderling afhankelijk RPE en fotoreceptormetabolisme zijn en hoeveel veranderd metabolisme ten grondslag ligt aan netvliesaandoeningen, is er grote belangstelling voor het modelleren en manipuleren van RPE-metabolisme voor therapeutische doeleinden.
Hoewel het bestuderen van het mitochondriaal metabolisme van RPE in vivo ideaal is, kunnen veel aspecten van het mitochondriaal metabolisme van RPE alleen praktisch worden onderzocht in een in vitro kweeksysteem. In de afgelopen decennia is er aanzienlijke vooruitgang geboekt in de richting van high-fidelity RPE-culturen, tot het punt dat de meest zorgvuldig verzorgde RPE-culturen nu worden gebruikt voor celvervangingstherapie in klinische onderzoeken bij mensen7. Om dergelijke high-fidelity culturen te behouden, moet de RPE maandenlang voorafgaand aan het experimenteren op bepaalde substraten in bepaalde media worden gekweekt. Onder deze omstandigheden zijn RPE-culturen maximaal gedifferentieerd en gepolariseerd, waarbij RPE in vivo wordt benaderd. Helaas is er momenteel geen apparatuur beschikbaar die het mitochondriaal metabolisme specifiek van de RPE in vivo kan meten. Hoewel zuurstofmonitoring van het capillaire netwerk van het netvlies in vivo is bereikt met behulp van elektronenparamagnetische resonantie (EPR) oximetrie8, is dit niet mogelijk voor RPE-analyse. Verschillen tussen RPE-metabolisme in vivo en in vitro zijn niet goed beschreven, maar van RPE-culturen is aangetoond dat ze een hoge mitochondriale activiteit hebben, vergelijkbaar met RPE in vivo 3,9, wat suggereert dat significant inzicht in het mitochondriale metabolisme van RPE kan worden verkregen met behulp van high-fidelity RPE-culturen.
Aangezien al het mitochondriale metabolisme leidt tot zuurstofverbruik, is het meten van RPE-zuurstofverbruikssnelheden (OCR) een getrouwe proxy voor het mitochondriaal metabolisme. Het meten van OCR in RPE-culturen was moeilijk, omdat de omstandigheden die maximale RPE-polarisatie en differentiatie bevorderen, vaak nauwkeurige OCR-metingen op lange termijn uitsluiten met de momenteel beschikbare technieken, zoals de Seahorse Analyzer. In dit methodedocument wordt een nieuw apparaat geïntroduceerd, de Resipher genoemd (hierna "het systeem" genoemd), dat continue meting van OCR gedurende weken mogelijk maakt in RPE gekweekt onder omstandigheden die polarisatie en differentiatie maximaal bevorderen. Het gemak waarmee OCR door dit systeem kan worden gemeten in RPE-cultuuromstandigheden die RPE-differentiatie en polarisatie maximaal bevorderen, is uniek onder bestaande OCR-meetapparatuur.
Dit document geeft tips en trucs voor het gebruik van het systeem met RPE-culturen, gevolgd door een demonstratie van twee specifieke toepassingen. Ten eerste wordt RPE EMT, dat PVR nabootst, geactiveerd door blootstelling aan transformerende groeifactor-bèta (TGFβ)1,10,11,12. Het systeem wordt gebruikt om te monitoren hoe het RPE-metabolisme evolueert tijdens het EMT-proces. Ten tweede wordt de rol van hypoxie in het RPE-metabolisme onderzocht met behulp van dit systeem. Hypoxie levert een belangrijke bijdrage aan de pathogenese van AMD, aangezien de choriocapillaris dunner wordt met de leeftijd van 13,14 jaar. Door dit systeem te combineren met hypoxiekamers kan men het veranderde RPE-mitochondriale metabolisme modelleren met de subtiele hypoxie die gepaard gaat met veroudering. Ten slotte wordt een online rekenmachine geïntroduceerd die gebruikmaakt van Resipher-gegevens om te kunnen bepalen of RPE-culturen zich in hypoxische, normoxische of hyperoxische omstandigheden bevinden. Dergelijke informatie is van cruciaal belang voor het trekken van conclusies over het RPE-metabolisme uit in vitro RPE-cultuurstudies.
Protocol
Voor protocollen om menselijke primaire of iPSC-RPE-culturen tot stand te brengen, zie de volgende referenties 15,16,17,18. De verwerving en het gebruik van menselijk weefsel voor deze protocollen werden beoordeeld en toegestaan door de Institutional Review Board (HUM00105486) van de Universiteit van Michigan.
1. Algemene toepassing van het systeem op de RPE-cultuur
- Plaat humaan geïnduceerde pluripotente stamcellen (iPSC) afgeleide-RPE of primaire menselijke RPE-cellen in systeem-compatibele 96-well platen.
- Uitgaande van reeds bestaande rijpe culturen die zijn gekweekt op celkweekplaten met 24 putjes, wast u de cellen eenmaal met fosfaatgebufferde zoutoplossing (PBS) en voegt u vervolgens 500 μl 0,25% trypsine-EDTA toe (materiaaltabel). Incubeer gedurende 10-40 minuten in een celcultuurincubator en controleer elke 5-10 minuten totdat de cellen afgerond zijn en bijna klaar om los te komen.
- Pipeteer het medium voorzichtig over de cellen om ze los te maken van het celkweekplastic, gevolgd door het overbrengen naar 3x het volume celkweekmedia (1.500 μl per 24-putje), en draai het 5 minuten bij kamertemperatuur in een centrifuge bij 250 × g .
OPMERKING: Het recept voor RPE-celkweekmedia wordt gedetailleerd beschreven in Tabel 1 en is beschikbaar in eerder gepubliceerde referenties 9,15,16,17,18. - Resuspendeer cellen in RPE-celkweekmedia met 15% foetaal runderserum (FBS) en tel de cellen met een hemocytometer.
- Zaai 74.000 cellen voor elk putje van een plaat met 96 putjes (meestal 225-300 × 105 cellen/cm2), na het coaten met zeer gespecialiseerde extracellulaire matrixcoatingsubstraten (Materiaaltabel) volgens de instructies van de fabrikant.
OPMERKING: Zaadcellen alleen op een Resipher-compatibele plaat (Tabel met materialen) en alleen in putjes die overeenkomen met de sonde-array op het sensordeksel (kolommen 3, 4, 9 en 10 voor het 32-kanaals deksel; zie Tabel met materialen). Het sensordeksel van het systeem is verkrijgbaar met sensoren met 4, 32 of 96 kanalen (zie sensorlocaties in afbeelding 1A-D) en een reeks standaard celkweekplaten is compatibel. - Aangezien randputten gevoelig zijn voor verdamping, wat een dramatische invloed heeft op de beschikbaarheid van zuurstof, en dus op OCR-metingen, moet u het zaaien van cellen op alle randputten vermijden (rijen A en H van een plaat met 96 putjes). Voeg bovendien 200 μL steriel water toe aan elk van de lege putjes van de plaat met 96 putjes om verdampingseffecten te verminderen.
- Houd de plaat 10 minuten op een stabiel tafeloppervlak om de cellen te laten bezinken; Doe het dan terug in de couveuse. Vervang de media na 24-72 uur en vervang ze door standaard RPE-cultuurmedia met 5% FBS. Minimaal 4 weken kweken, 2x per week van media wisselen.
OPMERKING: Cellen zijn klaar om te experimenteren wanneer ze gepigmenteerd, geplaveid en zeer compact zijn (Figuur 1E).
- Instellen en verwerven van gegevens met het systeem
- Plaats het sensordeksel op een lege ontvangerplaat met 96 putjes en plaats deze vervolgens terug in de celcultuurincubator. Lijn het apparaat uit en monteer het op het sensordeksel en sluit het aan op de hub via de meegeleverde USB-kabel. Hierdoor ontstaat een Resipher "sandwich." (Figuur 2A).
- Ga naar de Lucid Lab-websitetoepassing (https://lab.lucidsci.com/) en klik op de knop Nieuw experiment in de rechterbovenhoek om een nieuw experiment te maken.
- Noem de titel van het experiment en voer eventuele relevante experimentele notities voor het specifieke onderzoek in (bijv. passagenummer van de iPSC-RPE die men gebruikt).
- Creëer putcondities en behandelgroepen. Als u bijvoorbeeld de effecten van verschillende serumconcentraties in de media op OCR test, selecteert u Serum in groepsnaam en voert u vervolgens de te gebruiken mediaserumconcentraties in en voegt u meer serumpercentagewaarden toe door op de knop + te klikken. Wijs toe welke putjes een bepaald serumpercentage krijgen en selecteer een kleurenpatroon voor die putjes. Voeg indien nodig meer groepen toe (bijvoorbeeld een andere experimentele variabele om te testen) door op de knop groep toevoegen te klikken.
- Definieer de plaatopstelling en selecteer het bijbehorende apparaat en de plaatstijl. Klik op de knop Plaat toevoegen en kies Apparaat; Selecteer het plaattype. Selecteer de behandeling en klik op het bijbehorende putje.
- Klik op de knop Nu starten om het experiment te starten. Controleer of de indicator op de website en de LED op de Hub continu groen branden.
- Laat het systeem 15-60 minuten draaien om ervoor te zorgen dat elke sensor goed is gekalibreerd en atmosferische zuurstof nauwkeurig detecteert, die een concentratie van ~200 μM moet hebben in een volledig bevochtigde celcultuurincubator met 5% CO2 (Figuur 2Bi).
OPMERKING: Als een van de sensoren meer dan 20% afwijkt van het gemiddelde van de andere sensoren in een standaard celcultuurincubatoropstelling, overweeg dan om dat goed uit te sluiten in de gegevensanalyse, aangezien de sensor defect is (Afbeelding 2Bii).
OPMERKING: Als alle sensoren meer dan 20% afwijken van het gemiddelde van de andere sensoren en van de verwachte atmosferische O2 gerapporteerd als 200 μM in een standaard celcultuurincubatoropstelling, is het sensordeksel te vaak gebruikt; vervang deze door een nieuw sensordeksel (Figuur 2Biii).
OPMERKING: Het verkrijgen van de O2-metingen in de lucht voordat een experiment wordt gestart, verbetert het oplossen van problemen achteraf aanzienlijk. Als een bepaald putje als een uitbijter verschijnt nadat een experiment is uitgevoerd en dat putje had een sensor die niet gekalibreerd was, kan het probleem bij de sensor liggen, niet bij de biologische replicatie. - Verwijder het apparaat van het sensordeksel (maar koppel de USB-kabel niet los van het apparaat). Plaats het apparaat ondersteboven in de couveuse zodat de motor op het apparaat kan resetten. Gebruik het apparaat pas opnieuw als alle motorgeluiden zijn gestopt (ongeveer 20-30 s).
NOTITIE: Het is belangrijk om het apparaat tijdens een experiment te allen tijde via de USB-kabel verbonden te houden met de hub, zelfs als het apparaat van het sensordeksel is. Hierdoor kan het apparaat de omgeving van de celcultuurincubator continu bewaken en rapporteren. - Plaats de plaat met het sensordeksel terug in de kap van de celcultuur, samen met een plaat met 96 putjes met de RPE-culturen. Vervang de media in de plaat met RPE-culturen met dezelfde media en hetzelfde volume voor alle putjes om basislijn OCR-waarden voor elk putje te verkrijgen. Zorg ervoor dat u alle putten zonder RPE vult met steriel water om verdamping te voorkomen.
OPMERKING: Over het algemeen raden we 60-100 μL RPE-kweekmedia per 96-put aan, op basis van gegevens die aantonen dat lagere mediavolumes leiden tot snelle uitputting van voedingsstoffen, maar hogere mediavolumes leiden tot onbedoelde hypoxie9. - Breng het sensordeksel over naar de plaat met celculturen en het standaard (niet-Resipher) deksel op de plaat met celculturen naar de lege ontvangerplaat met 96 putjes om de steriliteit van het standaarddeksel te behouden, die op verschillende punten tijdens het experimenteren nodig zal zijn.
- Plaats de plaat met celculturen en het sensordeksel terug in de celcultuurincubator. Nogmaals, lijn het apparaat uit en monteer het op het sensordeksel en sluit het aan op de hub via de meegeleverde USB-kabel (montage van de "sandwich"). Controleer of de indicatoren op de website-interface en de Hub allemaal continu groen branden.
OPMERKING: O2-concentratiegegevens worden meteen weergegeven, terwijl OCR-gegevens pas verschijnen nadat voldoende O2-gegevens zijn verzameld, ongeveer 1 uur. - Laat het apparaat OCR op elk putje meten gedurende ten minste 12-24 uur om een basis-OCR vast te leggen.
OPMERKING: Baseline OCR zal verschillen afhankelijk van vele factoren, waaronder het type media dat op cellen wordt toegepast. In figuur 2C hebben standaard RPE-kweekmedia met verschillende hoeveelheden FBS (0%, 5%, 15%) iets andere OCR-waarden. Verder kunnen culturen met meer FBS de mitochondriale activiteit langer volhouden nadat media op cellen zijn aangebracht voordat de OCR daalt als gevolg van uitputting van mitochondriale metabolieten (rechterkant van de curve). - Zodra een basislijn OCR is verkregen, herhaalt u stap 1.2.8-1.2.12, maar verandert u de media op de plaat met RPE-culturen naar de experimentele omstandigheden (meestal ± een medicijn of een vergelijking van verschillende mediaomstandigheden).
OPMERKING: Routinematige mediawijzigingen kunnen ook op dezelfde manier worden afgehandeld. Telkens wanneer de celcultuurincubator wordt geopend, kunt u een aanzienlijke verstoring van de OCR-metingen verwachten, aangezien deze afhankelijk zijn van temperatuur, vochtigheid, CO2 - concentraties en andere factoren die allemaal tijdelijk worden verstoord door het openen van de couveusedeur. Wanneer het apparaat uit het sensordeksel wordt verwijderd, is het niet nodig om het experiment online te pauzeren. Nadat de deur van de celcultuurincubator is geopend of de media op de plaat die wordt gesondeerd is verwisseld, duurt het over het algemeen 2-4 uur om de zuurstofgradiënt te herstellen en te beginnen met het meten van een nauwkeurige OCR. - Nadat gegevens zijn verkregen, trekt u de basislijn-OCR voor elke put af van de OCR nadat de experimentele voorwaarde is toegepast, om de Delta-OCR te bepalen die door de behandeling wordt geactiveerd.
- Nadat het experiment is voltooid, steriliseert en gebruikt u het sensordeksel opnieuw (dat 3-5x kan worden hergebruikt, hoewel de prestaties afnemen bij herhaald gebruik). Om het sensordeksel te steriliseren, dompelt u het hele deksel gedurende 10 minuten onder in 70% ethanol in een celcultuurkap, haalt u het vervolgens uit de onderdompeling en rust u het in de sonde naar boven (vermijd het aanraken van de delicate sondepunten) en laat u ethanol en water volledig verdampen voordat u het sensordeksel op een nieuwe ontvangerplaat met 96 putjes plaatst.
- Maak helderveldfoto's om OCR-waarden te normaliseren naar het celnummer.
OPMERKING: Melanine-accumulatie in RPE vergemakkelijkt de normalisatie van OCR op basis van een eenvoudige telling van celnummers in levende culturen met behulp van een helderveldmicroscoop.- Verwijder het apparaat en plaats het ondersteboven, zoals in stap 1.2.8. Verwissel in de kap van de celcultuur het sensordeksel op de RPE-kweekplaat voor een standaard deksel met 96 putjes.
- Maak met een standaard omgekeerde microscoop helderveldfoto's van elk putje.
OPMERKING: Houd de afbeelding van het gebied één consistent tussen de putten (relatieve locatie in de put en objectiefvergroting). - Plaats in de celcultuurkap het standaard deksel met 96 putjes op de RPE-kweekplaat terug door het sensordeksel en plaats het terug in de incubator voor verdere bewaking.
- Tel het celnummer in elk vakje met ImageJ of andere software.
- Normaliseer OCR naar celnummer in de verschillende experimentele groepen. Het systeem rapporteert OCR in eenheden van fmol∙(mm2)-1∙s-1-het verbruik per dwarsdoorsnede-eenheidsgebied. Om de OCR per cel te normaliseren, deelt u daarom de OCR door het aantal cellen per mm2 (in plaats van het aantal cellen per putje). Vermenigvuldig op dezelfde manier de OCR die door het systeem wordt gerapporteerd met de dwarsdoorsnede van de put (ongeveer 31mm2 voor een standaardplaat met 96 putjes) om OCR te verkrijgen in eenheden van fmol∙s-1∙well-1.
- Controles voor het bepalen van RPE bio-energetische parameters.
OPMERKING: Om ervoor te zorgen dat het systeem en de RPE-culturen op voorspelbare manieren reageren op mitochondriale manipulaties, kan men bepaalde kleine moleculen testen die goed ingeburgerd zijn om bepaalde stappen van mitochondriale oxidatieve fosforylering aan te pakken. Deze tests zijn analoog aan de stappen die worden uitgevoerd in een mitochondriale stresstest met behulp van de Seahorse Analyzer10 en bieden een bio-energetisch profiel voor RPE-culturen.- Kweek RPE-cellen in 65 μL standaard RPE-kweekmedia met 5% FBS en meet OCR gedurende 24 uur om een basislijn vast te stellen.
- Zuig gekweekte media op en voeg 65 μL standaard RPE-kweekmedia toe met 5% FBS en met mitochondriale ontkoppelaars (3 μM carbonylcyanide-p-trifluormethoxyfenylhydrazon [FCCP] of 500 nM Bam15, Tabel met materialen). 's Nachts incuberen.
OPMERKING: Mitochondriale ontkoppelaars zouden de OCR aanzienlijk moeten verhogen. Zorg ervoor dat de verhoogde OCR niet gelijk is aan of in de buurt komt van de theoretische maximale diffusiebeperkte OCR van ongeveer 275 fmol∙(mm2)-1∙s-1 voor 65 μL media in standaardkweekomstandigheden. De maximale OCR voor verschillende veelgebruikte mediavolumes is beschikbaar in de sectie Discussie. - Na een nacht incubatie de media opzuigen met mitochondriale ontkoppelaars en vervangen door 65 μL standaard RPE-kweekmedia met 5% FBS. Observeer de plaat nog 24 uur om het herstel van RPE OCR te bepalen na verwijdering van de medicijnen.
- Bereken de effecten van ontkoppelaars op OCR door de OCR verkregen na behandeling af te trekken van de OCR verkregen vóór de behandeling (Figuur 3).
OPMERKING: De toename van OCR met de toevoeging van mitochondriale ontkoppelaars betekent de reserve mitochondriale ademhalingscapaciteit van de cel19. - Om andere mitochondriale parameters te meten die doorgaans worden vastgelegd tijdens de mitochondriale stresstest met een Seahorse Analyzer, voert u dezelfde stappen hierboven uit met de volgende verbindingen (Figuur 4).
- Gebruik oligomycine op 1 μM om te beoordelen op ATP-gekoppelde ademhaling.
- Gebruik antimycine A en rotenon op 1 μM om te beoordelen op niet-mitochondriale ademhaling.
OPMERKING: FCCP, oligomycine, antimycine A en rotenon kunnen giftig zijn voor RPE. Als ze significante celdood induceren, zijn OCR-metingen niet nauwkeurig. OCR-metingen mogen dus alleen worden verkregen op een tijdstip waarop er geen duidelijke celdood is, meestal binnen de eerste paar uur nadat de geneesmiddelen zijn toegevoegd (Figuur 4).
2. Het meten van veranderingen in het mitochondriaal metabolisme bij RPE die EMT ondergaat
- Volg hetzelfde protocol als beschreven in paragraaf 1.2.
- Om EMT te induceren na het verkrijgen van baseline OCR-metingen, voegt u TGF-β2 (10 ng/ml) toe aan RPE-culturen en controleert u OCR gedurende 3 weken. Ververs media elke 2-3 dagen met verse TGFβ2 (Afbeelding 5).
- Maak ten minste 2x per week helderveldopnamen zoals in paragraaf 1.3 om er zeker van te zijn dat het celgetal niet verandert. Als de telling verandert, normaliseert u de OCR-waarden naar het celnummer in elk putje.
OPMERKING: Hetzelfde protocol kan worden gebruikt voor andere inductoren van EMT om OCR-veranderingen op lange termijn gedurende de kweekperiode te volgen terwijl de cellen zich in de incubator bevinden.
3. Het meten van veranderingen in het mitochondriaal metabolisme bij hypoxische RPE
OPMERKING: De toepassing van het systeem onder hypoxische, normoxische of hyperoxische omstandigheden is hetzelfde als sectie 1.2, behalve voor het bewaren van de "sandwich" in een hypoxiekamer (Tabel met materialen) die in een standaard celcultuurincubator is geplaatst.
- Boor een gat in het deksel van de hypoxiekamer om de USB type-c-kabel door te monteren en dicht deze af met siliconen of stopverf (Figuur 6A).
- Monteer het sensordeksel met de celkweekplaat in de kap en breng ze over naar de hypoxiekamer.
- Plaats de "sandwich" (bord, sensordeksel, apparaat) in de hypoxiekamer. Plaats ook in de hypoxiekamer een petrischaal met steriel water om de luchtvochtigheid op peil te houden. Plaats ten slotte een draagbare O2-sensor in de hypoxiekamer (Tabel met materialen). De instelling wordt weergegeven in afbeelding 6A.
- Sluit de kamer af en sluit deze aan op een gasfles met een hypoxische concentratie van O2 en een standaard celcultuurconcentratie van CO2 (bijv. 1% O2 en 5% CO2 ).
- Ververs de lucht in de hypoxiekamer langzaam met de 1% O2/5% CO2 -lucht in de cilinder totdat de zuurstofsensor de gewenste O2-concentratie aangeeft, meestal ergens tussen 1% en 10%.
NOTITIE: De draagbare O2-sensor heeft tijd nodig om in evenwicht te komen, dus gas uit de cilinder moet langzaam in de hypoxiekamer worden toegevoegd. - Sluit de inlaat- en uitlaatkleppen van de hypoxiekamer en breng de hele kamer over in de couveuse.
- Stel het experiment in en start het zoals in paragraaf 1.2.
OPMERKING: Het vooraf in evenwicht brengen van media in de hypoxiekamer voordat ze aan cellen worden toegevoegd, kan de tijd verkorten die de celmonolaag nodig heeft om echte hypoxie te ervaren (Figuur 6B).
4. Berekening van deO2-concentratie in de RPE-monolaag om te bepalen of cellen zich in hypoxische, normoxicale of hyperoxische omstandigheden bevinden
OPMERKING: Het systeem meet standaard de O2-concentratie tussen ongeveer 1 en 1.5 mm boven de bodem van de put, ervan uitgaande dat een standaardplaat wordt gebruikt met het bijbehorende aanbevolen sensordeksel voor monolaagcultuur (zie https://lucidsci.com/docs/LucidScientific_Sensing_Lid_Selection_Guide.pdf). Hoewel deO2-concentratie in de monolaag van de cel niet direct wordt gemeten, kunnen gegevens van het systeem worden gebruikt om deO2-concentratie op het niveau van de RPE te schatten. In het bijzonder, wetende dat er een zuurstofgradiënt bestaat tussen de bovenkant van de mediakolom, waar O2 beschikbaar is, en de onderkant van de mediakolom, waar O2 wordt verbruikt, kunnen de diffusiewetten van Fick worden gecombineerd met de gemeten OCR-snelheid om O2-niveaus te extrapoleren op de celmonolaag. Een rekenmachine voor deze schatting is online beschikbaar: https://lucidsci.com/notes?entry=oxygen_diffusion (en in de vorm van een open-source interactief notitieboekje op https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture, de broncode van deze rekenmachine is te vinden op https://github.com/lucidsci/oxygen-diffusion-calculator).
- Zodra de rekenmachine is geopend, voert u het mediavolume in microliters in (bijv. 100 μL).
- Voer de verzadigde zuurstofconcentratie in op de lucht-vloeistofinterface (de bovenkant van de mediakolom boven de cellen). Deze waarde is ~185 μM bij standaard atmosferische druk met 5% O2 en 95% luchtvochtigheid.
OPMERKING: Dit kan ook worden bepaald aan de hand van O2-metingen door systeemsondes in putten die alleen media hebben (zonder cellen op de bodem van de put). - Voer in de Flux-invoer de Flux/OCR in die door het systeem wordt gerapporteerd.
- Op basis van deze waarden wordt de steady-state zuurstofconcentratie op elke hoogte in de mediakolom berekend en weergegeven in de grafiek (figuur 7). De x-as van de plot is de hoogte in mm boven de bodem van de put. De y-as is de berekende O2-concentratie op die hoogte (in μM).
- De O2-concentratie op de bodem van de put (waar de cellen zich bevinden) wordt gerapporteerd in de regel onder de grafiek.
OPMERKING: Over het algemeen wordt geschat dat RPE in vivo eenO2-concentratie van 4-9% ziet. Elke 10 μM O2 bij standaard atmosferische omstandigheden komt overeen met ongeveer 1% O2. Normoxie op celniveau is dus ongeveer 40-90 μM van O2. Hoe hoger de mediakolom, hoe lager de O2 zal zijn op het niveau van de RPE monolaag9. Dus als cellen zich in hypoxische omstandigheden lijken te bevinden, kan het mediavolume worden verminderd. Als cellen zich in hyperoxische omstandigheden lijken te bevinden, kan het mediavolume worden verhoogd.
Resultaten
De "sandwich"-opstelling voor het Resipher-experiment wordt gedemonstreerd in figuur 2A. Detectiedeksels met 32 sondes die overeenkomen met kolommen 3, 4, 9 en 10 op de plaat met 96 putjes zitten tussen de celplaat en het apparaat. Nadat het apparaat is aangesloten op de hub, activeert het motoren om het sensordeksel op en neer te bewegen, waarbij de O2-concentratie in de mediakolom wordt gemeten op verschillende hoogtes boven de monolaag van de cel (meestal 1-1,5 mm). De O2 gradiënt wordt dus continu gemeten door de O2 concentraties op deze verschillende hoogtes boven de monolaag te registreren. Op basis van gradiëntmetingen en het toepassen van de diffusiewetten van Fick, berekent het apparaat automatisch de zuurstofflux van boven het hoogtebereik van de sonde naar eronder, wat het zuurstofverbruik (OCR) van de celmonolaag is. Het sensordeksel detecteert O2 , ongeacht of een put leeg is (alleen lucht), gevuld is met media maar geen cellen (alleen media) of media heeft die over een celmonolaag liggen (media + cellen). Als kwaliteitscontrole om te controleren hoe goed de sensoren in het sensordeksel werken, kan het deksel eerst over een lege (alleen lucht) plaat met 96 putjes worden geplaatst. Als elke sensor voor elke put werkt, moet de gerapporteerde O2 consistent zijn met elkaar en dicht bij 200 μM liggen, wat dicht bij de verwachte O2 in de atmosfeer ligt onder standaard celcultuurincubatoromstandigheden. Figuur 2Bi toont O2-metingen van acht sondes in atmosferische lucht (gerapporteerd als de concentratie in μM, aangezien de standaardeenheidsconversie ervan uitgaat dat de sondes zich in een vloeistof van 37 °C bevinden). Deze metingen zijn krap (±5%) en dicht bij 200 μM, wat impliceert dat alle acht sensoren goed functioneren. In Figuur 2Bii wordt hetzelfde sensordeksel gebruikt als in Figuur 2Bi , maar wordt een ander apparaat ingezet. Hier worden twee defecte apparaatsensoren opgepikt op basis van uitschietcurven (in rood). Dit suggereert dat het apparaat problematisch is en moet worden vervangen (of de putjes die overeenkomen met defecte sensoren moeten buiten het experiment worden gelaten). In figuur 2Biii wordt hetzelfde apparaat gebruikt als figuur 2Bi , maar er worden twee verschillende sensordeksels gebruikt. Lid1 (linkerkant) heeft een grote variabiliteit tussen de sondes, wat suggereert dat het detectiemateriaal van het deksel is aangetast, meestal omdat het deksel te vaak is gebruikt. Lid2 (rechterkant) is nieuw en demonstreert metingen die strak zijn en geclusterd rond de 200 μM. Met behulp van het systeem kan men het effect van serumsuppletie in de media op het mitochondriale metabolisme van RPE analyseren. Zoals te zien is in figuur 2C, veroorzaakten toenemende niveaus van serumsuppletie subtiel hogere RPE OCR-spiegels. Belangrijk is dat een hogere serumsuppletie het ook mogelijk maakte om het mitochondriale metabolisme voor een langere periode vol te houden. Zelfs zonder enige serumsuppletie wordt OCR ongeveer 90 uur volgehouden voordat de uitputting van mitochondriale metabole substraten een daling van OCR veroorzaakt. Mediaveranderingen met 100 μL per 96-put om de 3,5 dagen (twee keer per week) zijn dus voldoende, zelfs met serumvrije media, om uitputting van voedingsstoffen te voorkomen in volwassen, sterk gedifferentieerde en gepolariseerde RPE-culturen.
OCR-snelheden kunnen aanzienlijk variëren van put tot put, zelfs in culturen waar alle putjes hetzelfde celnummer en dezelfde morfologie lijken te hebben. Om te isoleren of verhogingen in OCR toe te schrijven zijn aan een experimentele aandoening of gewoon baselineverschillen in OCR tussen putten, is normalisatie noodzakelijk. De eerste stap in normalisatie is ervoor te zorgen dat het aantal cellen tussen putten consistent is, zoals uiteengezet in protocolsectie 1.3. Als het aantal cellen varieert tussen putten, moet de OCR voor het putje worden genormaliseerd naar het celnummer. Over het algemeen zijn voor zeer rijpe en gepolariseerde RPE-culturen het aantal cellen tussen putjes opmerkelijk consistent9. Zelfs in dergelijke scenario's kan de basislijn OCR tussen putten variëren, zoals aangetoond in figuur 3A. Hier varieert de OCR bij de basislijn, voorafgaand aan elke behandeling, met maar liefst 100 fmol/mm2/sec tussen putten. Door OCR voorafgaand aan de behandeling te meten, kan men vervolgens de Delta-OCR bepalen die door de experimentele behandeling wordt geactiveerd en dit isoleren van eventuele verschillen in baseline-OCR tussen putten. In dit geval vergelijken de behandelingen twee mitochondriale ontkoppelaars (FCCP vs. BAM15) met voertuigbesturing. Zodra baseline OCR wordt gebruikt voor normalisatie, worden de behandelingseffecten die specifiek zijn voor de ontkoppelaars versus de controle duidelijk (vergelijk Figuur 3B V. Figuur 3C). Over het algemeen moeten experimenten die OCR kunnen veranderen, worden opgesplitst in ten minste twee fasen: initiële OCR om een basis-OCR vast te stellen en een behandelingsfase om de Delta-OCR te bepalen.
Om te bevestigen dat RPE-culturen op verwachte manieren reageren op mitochondriale manipulatie en een bio-energetisch profiel voor RPE vast te stellen, kunnen de klassieke kleine molecuulhulpmiddelen die in de Mitochondriale Stresstest op de Seahorse Analyzer van Agilent worden gebruikt, met het systeem worden gebruikt. Ten eerste kan de reserve mitochondriale capaciteit worden gemeten met behulp van een mitochondriale ontkoppelaar19. In RPE-culturen vertoont de mitochondriale ontkoppelaar BAM15 een veel robuustere en duurzamere toename van OCR in vergelijking met FCCP (Figuur 3C,D), zonder toxiciteit te induceren. Andere parameters die beschikbaar zijn op de Seahorse Analyzer Mitochondrial Stress Test, waaronder basale ademhaling, ATP-gekoppelde ademhaling, protonlek en niet-mitochondriale ademhalingscapaciteit, kunnen met behulp van het systeem worden berekend. Terwijl de Seahorse Analyzer vertrouwt op injectiepoorten om achtereenvolgens toxines af te leveren die specifieke oxidatieve fosforyleringscomplexen remmen om de bovenstaande parameters af te leiden, heeft Resipher deze mogelijkheid niet. Elk mitochondriaal toxine kan echter aan afzonderlijke putjes worden toegevoegd en verschillende ademhalingsparameters kunnen worden berekend op basis van vouwverandering over putten die met vehiculum zijn behandeld. In figuur 4A worden de verschillen in OCR tussen putjes behandeld met de mitochondriale ontkoppelaar BAM15, de ATP-synthaseremmer oligomycine, de complex I- en III-remmers antimycine/rotenon en voertuigcontrole (DMSO) allemaal vergeleken. Omdat deze toxines gedurende langere tijd celdood kunnen veroorzaken en celdood OCR beïnvloedt, werden de OCR-metingen al na een paar uur behandeling uitgevoerd. Figuur 4B toont de verschillen in OCR tussen medium en behandelde putjes met elk mitochondriaal actief klein molecuul in staafdiagramvorm, geëxtrapoleerd vanaf de laatste tijdstippen in figuur 4A. De OCR-waarden in Figuur 4B kunnen vervolgens worden gebruikt om bio-energetische parameters voor de RPE-cultuur te berekenen, zoals te zien is in Figuur 4C. Elke kleurgecodeerde waarde in het bio-energetische profiel in Figuur 4C is afkomstig van dezelfde kleurgecodeerde waarde in Figuur 4B. Parameters zoals ATP-gekoppelde ademhaling, protonlek, maximale mitochondriale ademhalingscapaciteit en niet-mitochondriale ademhalingscapaciteit kunnen dus worden geschat met behulp van het OCR-systeem. Een samenvatting van het werkingsmechanisme van elk mitochondriaal actief klein molecuul is weergegeven in figuur 4D.
Na het protocol voor dit systeem te hebben gedemonstreerd op RPE-culturen en controle-experimenten om RPE-bio-energetische profielen te testen, kan men experimentele toepassingen van het systeem voor RPE-biologie en pathologie verkennen. Bij proliferatieve vitreoretinopathie (PVR), een aandoening die optreedt na netvliesloslating of oculair trauma, ondergaat RPE een dramatische transformatie die bekend staat als epitheliale-naar-mesenchymale overgang (EMT) waarbij de zeer regelmatige en geplaveide RPE hun celcelverklevingen verliezen en transdifferentiëren in spoelvormige mesenchymale cellen die contractiel en beweeglijk zijn 1,2. Dit veroorzaakt tangentiële contractiele krachten op het netvlies die netvliesloslating kunnen veroorzaken. Klassieke inductoren van EMT bij RPE zijn onder meer transformerende groeifactor-bèta (TGFβ) en tumornecrosefactor-alfa (TNFα)10,11,12. Van de drie TGFβ-isovormen van zoogdieren is TGFβ2 de meest prominente en krachtige inductor van EMT in het netvlies1, wat een duidelijke cellulaire verlenging van de typisch zeshoekige RPE-cellen en een verhoogde expressie van mesenchymale markers veroorzaakt. De EMT-respons geïnduceerd door TGFβ2 in RPE gaat gepaard met een onderdrukking van de mitochondriale ademhaling en een daaropvolgende toename van de glycolytische capaciteit, zoals eerder aangetoond met behulp van een Seahorse XFe9610. Hoewel het zeepaardje real-time bio-energetische profielen biedt, maakt het geen OCR-monitoring op lange termijn mogelijk. In de eerste toepassing van het OCR-systeem in deze studie (figuur 5) werd de mitochondriale ademhaling dus gedurende drie weken gevolgd terwijl EMT werd geïnduceerd met TGFβ2 in RPE, waardoor in vitro modellering van de metabole herprogrammering die optreedt tijdens PVR mogelijk werd. In tegenstelling tot de enkelvoudige tijdanalyse van RPE EMT met behulp van een Seahorse Analyzer, kan de metabolische toestand van RPE die EMT ondergaat gedurende enkele weken worden gevolgd. Het is duidelijk dat herhaalde blootstelling van RPE aan TGFβ2 een voortdurende progressieve achteruitgang van het mitochondriaal metabolisme veroorzaakt. Eerdere gegevens met behulp van de Seahorse XF Analyzer gaven aan dat TGFβ2 de maximale ademhalingscapaciteit na 24 uur en 72 uur aanzienlijk verminderde, maar geen invloed had op de basale OCR-niveaus10. De onveranderde basale OCR met TGFβ2 tot 72 uur wordt bevestigd door het OCR-systeem dat in deze studie wordt gebruikt (Figuur 5). Uit de langetermijngegevens van het OCR-systeem in deze studie blijkt echter dat na 5 dagen blootstelling aan TGFβ2 de basale OCR-spiegels beginnen af te nemen, waarbij een daling van de basale OCR het duidelijkst wordt na 20 dagen. Deze bevindingen benadrukken langetermijnveranderingen in basale OCR die niet werden vastgelegd met eerdere Seahorse-tijdstippen.
In een tweede toepassing kan het systeem worden gebruikt om het mitochondriaal metabolisme van RPE onder hypoxische omstandigheden te monitoren. Aangezien AMD verband houdt met choriocapillaris dunner wordend worden en hypoxie13,20, zou het begrijpen van de aanpassingen van de RPE aan subtoxische hypoxie inzicht moeten geven in de pathogenese van AMD. Om RPE-culturen te onderwerpen aan gecontroleerde hypoxie tijdens het monitoren van het mitochondriale metabolisme, kan het systeem in een hypoxiekamer worden geplaatst die op zijn beurt in een celcultuurincubator wordt geplaatst. Om deze opstelling te vergemakkelijken, wordt een klein gaatje in het deksel van een hypoxiekamer geboord, waardoor de USB-kabel van het systeem in de hypoxiekamer kan komen. Het gat wordt afgedicht met stopverf of siliconen (Figuur 6A). Een draagbare O2-sensor kan in de hypoxiekamer worden geplaatst om atmosferische O2-niveaus te bewaken en ervoor te zorgen dat de afdichting van de hypoxiekamer intact blijft. Met behulp van deze opstelling kan de evenwichtssnelheid tussen de atmosferische O2-concentratie en de media O2-concentratie worden bepaald. In figuur 6B worden media die in evenwicht zijn met atmosferisch O2 in individuele putjes op een plaat met 96 putjes geplaatst, zonder cellen, en ingebracht in een hypoxiekamer die slechts 5% O2 (~50 μM O2) bevat. Na verloop van tijd komen de media in elke put in evenwicht met de nieuwe atmosferische concentratie. Hoe hoger de hoogte van de mediakolom (meer volume), hoe langer het evenwicht duurt. Met 65 μL media in een putje van een plaat met 96 putjes duurt het evenwicht met atmosferisch O2 ongeveer 5 uur. De evenwichtstijd duurt echter meer dan 10 uur wanneer het mediavolume 100-200 μL is. Deze resultaten onderstrepen het belang van het vooraf in evenwicht brengen van media met de gewenste atmosferische O2-concentratie voordat de media op cellen worden aangebracht tijdens een hypoxie-experiment.
Voor hypoxie-experimenten is het belangrijk om ervoor te zorgen dat deO2-niveaus in de hypoxiekamer stabiel blijven. Door een van de randputten op de plaat met 96 putjes vrij te houden van cellen of media, kan een van de sensoren van het sensordeksel continu atmosferische O2 bewaken. In figuur 6C toont een dergelijke monitoring met een enkel putje dat aan lucht is blootgesteld, aan dat de hypoxiekamer een langzaam lek heeft, zodat de cellen na 30 uur dicht bij de atmosferischeO2-concentraties liggen. Als laatste controle voor hypoxie-experimenten is het belangrijk om te bepalen of de oplosbaarheid van O2 verschilt tussen "verse" en "geconditioneerde" media. Als de oplosbaarheid verschilt tussen media die oorspronkelijk op cellen zijn geplaatst en media die al een aanzienlijke tijd op cellen zitten, dan zal de O 2-gradiënt in de mediakolom boven cellen verschillen als media "omstandigheden" met de tijd over de cellen. Dit heeft op zijn beurt invloed op de berekening van OCR. In figuur 6D werd een plaat met 96 putjes met lege putjes ("lucht"), putjes zonder cellen maar met verse media ("nieuwe media") en putjes zonder cellen maar met media die eerder gedurende 48 uur via RPE-culturen waren geïncubeerd ("geconditioneerde media") eerst in atmosferisch O2 geplaatst om volledige evenwicht mogelijk te maken. De plaat werd vervolgens in een hypoxiekamer geplaatst bij ongeveer 3-4% O2 (30-40 μM) en mocht in evenwicht komen. Ten slotte werd de plaat weer teruggebracht naar atmosferischeO2-concentraties. De O 2-concentratiecurven voor nieuwe media en geconditioneerde media zijn identiek, wat aantoont dat de oplosbaarheid van O2 tussen nieuwe en geconditioneerde media identiek is, wat bevestigt dat veranderingen in de samenstelling van de media in de loop van de tijd wanneer voedingsstoffen worden geconsumeerd en bijproducten in de media worden uitgescheiden, de oplosbaarheid van O2 niet significant veranderen en daarom niet onbedoeld OCR beïnvloeden.
Aangezien de hoogte van de mediakolom boven cellen een dramatische invloed heeft op de beschikbaarheid van O2 bij de RPE-monolaag9, is het belangrijk om te bepalen of een bepaald mediavolume hypoxie, normoxie of hyperoxie induceert bij de RPE-monolaag. Met behulp van metingen van het systeem, gecombineerd met een online calculator (https://lucidsci.com/notes?entry=oxygen_diffusion (en in de vorm van een open-source interactief notitieboekje op https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture) - broncode van deze calculator op https://github.com/lucidsci/oxygen-diffusion-calculator), kan de zuurstofconcentratie bij de RPE-monolaag worden geschat. Figuur 7 toont een screenshot van de interactieve rekenmachine. RPE in vivo ziet doorgaans eenO2-concentratie van 4-9%, wat zich vertaalt in eenO2-molaire concentratie van ~40-90 μM.
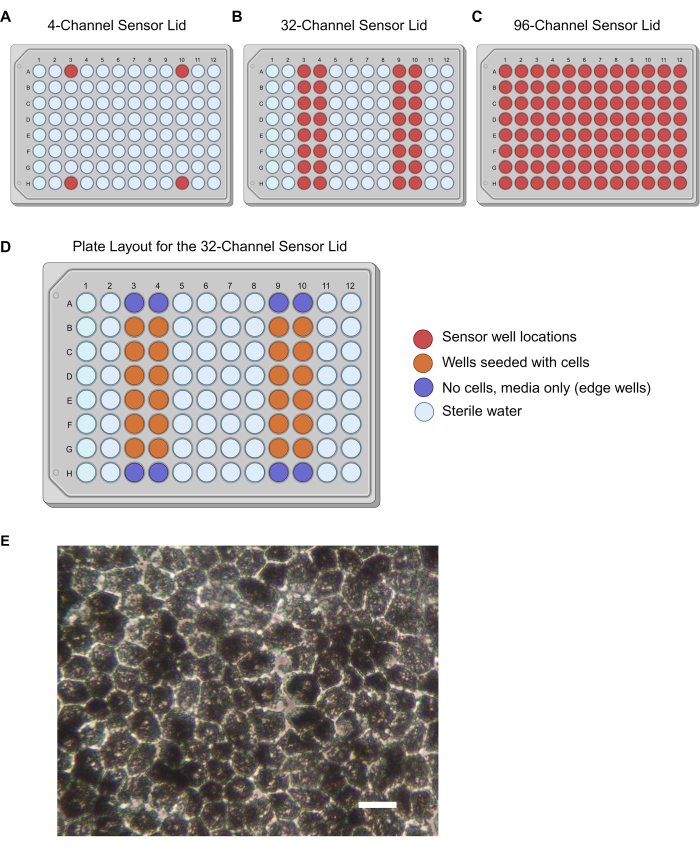
Afbeelding 1: Locatie van sensoren op verschillende sensordeksels, plaatlay-out voor het 32-kanaals sensordeksel en RPE-morfologie. Putten die overeenkomen met de locatie van de sensoren in de verschillende sensordeksels voor de (A) 4-kanaals, (B) 32-kanaals en (C) 96-kanaals dekselopties. (D) Aanbevolen plaatlay-out voor het 32-kanaals sensordeksel. Vanwege randeffecten mogen cellen niet in de randputjes worden gezaaid en moeten in plaats daarvan media in deze vier putjes (paars) worden geplaatst. Cellen worden gezaaid in oranje putjes. De overige putten moeten worden gevuld met steriel water (blauw) om verdampingseffecten te voorkomen. (E) Rijpe RPE-cultuur met zeshoekige, dicht opeengepakte, gepigmenteerde cellen. Schaal Bar = 20 μm. Afkortingen: RPE = retinaal pigmentepitheel. Klik hier om een grotere versie van deze figuur te bekijken.

Afbeelding 2: Installatie van het Resipher-systeem "sandwich" en kwaliteitscontrole. (A) Het sensordeksel vervangt een standaard plaatdeksel met 96 putjes en de sondes worden in de overeenkomstige putjes geplaatst. Het apparaat in het zwart zit via magneten stevig op het sensordeksel. De afbeeldingen aan de linkerkant van de afbeelding tonen het apparaat en het sensordeksel in de juiste richting. Voor de foto's aan de rechterkant zijn het apparaat en het sensordeksel echter naar hun kant gedraaid om hun onderprofiel beter weer te geven. (B) Kwaliteitscontrole voor het detecteren van deksels en het apparaat. (i,ii) Hetzelfde sensordeksel wordt in een lege ontvangerplaat met 96 putjes geplaatst (alleen lucht) en twee verschillende apparaten worden achtereenvolgens op het detectiedeksel geplaatst. (i) Het eerste apparaat demonstreert gegevens van acht sondes met een lage variabiliteit en O2-metingen ~ 200 μM, verwacht voor atmosferisch O2. (ii) Het tweede apparaat demonstreert gegevens van acht sondes waarin twee sondes abnormaal lezen (rode stippen). (iii) Eén apparaat werd gebruikt met een lege plaat met 96 putjes (alleen lucht), maar met twee verschillende detectiedeksels die achtereenvolgens werden getest. Gegevens van 16 sondes werden uitgezet, wat een grote variabiliteit aantoonde voor Lid1 (linkerkant) en een lage variabiliteit voor Lid2 (rechterkant). (C) OCR-plots van RPE-culturen in media van 100 μl met verschillende hoeveelheden serum werden gedurende 120 uur gecontroleerd. RPE-cellen in serumvrije media (magenta) hebben een lagere OCR, waarbij OCR eerder daalt dan media met hogere hoeveelheden serum. Afkortingen: OCR = zuurstofverbruik; RPE = retinaal pigmentepitheel. Klik hier om een grotere versie van deze figuur te bekijken.
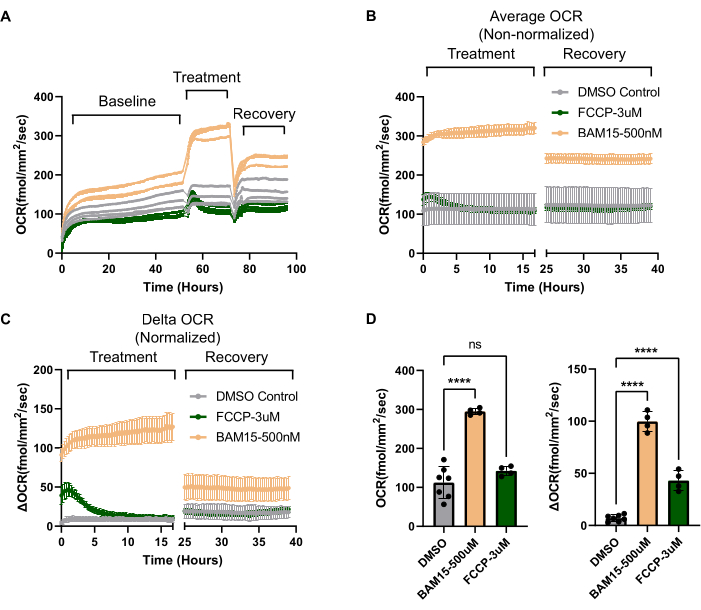
Figuur 3: Langetermijneffecten van mitochondriale ontkoppelaars uniek aangetoond met het OCR-systeem. (A) Ruwe OCR-gegevens in de loop van de tijd (uren) met de nadruk op de initiële OCR (vastgesteld gedurende 50 uur), de behandelingsfase (~20 uur na de toevoeging van geneesmiddelen) en de herstelfase (~20 uur na het uitspoelen van het geneesmiddel). RPE werd behandeld met twee verschillende mitochondriale ontkoppelingen, FCCP (3 μM, N = 4) of BAM15 (500 nM, N = 4) en vergeleken met DMSO-voertuigbesturing (0,6%, N = 7). Elk spoor vertegenwoordigt een enkele put. (B) Gemiddelde OCR van alle putjes voor elke aandoening in (A) uitgezet voor de behandelings- en herstelfasen. Zonder normalisatie (Y-as is absolute OCR) is het moeilijk om de omvang van het behandelingseffect met FCCP te zien. (C) Wanneer elk OCR-spoor wordt afgetrokken van de OCR voorafgaand aan de behandeling, kan een Delta-OCR worden berekend (uitgezet op de Y-as). Dit maakt het mogelijk om de effecten van de behandeling op OCR te isoleren, ondanks de variabiliteit in baseline OCR tussen putten. Met behulp van Delta OCR wordt het effect van FCCP duidelijk. Het wordt ook duidelijk hoe kortstondig het effect van FCCP is op mitochondriale ontkoppeling, vergeleken met BAM15. Ten slotte wordt duidelijk dat in vergelijking met FCCP, blootstelling aan BAM15, zelfs nadat het medicijn is afgewassen, een nieuwe "aangepaste" toestand van aanhoudende hogere OCR creëert. (D) Grafieken in (B) en (C) worden weergegeven in staafdiagramvorm, waardoor een directe vergelijking mogelijk is tussen niet-genormaliseerde (linker grafiek, van (B)) en genormaliseerde (Delta OCR, rechter grafiek, van (C)) gegevens. Afkortingen: OCR = zuurstofverbruik; RPE = retinaal pigmentepitheel; FCCP = carbonylcyanide-p-trifluoromethoxyfenylhydrazon; DMSO = dimethylsulfoxide. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Gebruik van een OCR-systeem om parameters van mitochondriale bio-energetica te berekenen. (A) Door gebruik te maken van dezelfde kleine moleculen die deel uitmaken van de Seahorse Analyzer Mitochondrial Stress Test, wordt OCR gedurende de eerste 2,5 uur van de behandelingsfase weergegeven voor RPE-culturen. (Linker grafiek) De ATP-synthaseremmer oligomycine (N = 3), de complex I- en III-remmers antimycine A/rotenon (N = 7), of vehiculum, DMSO 0,4% (N = 4). (Rechter grafiek) De mitochondriale ontkoppelaar BAM15 (N = 4) of voertuig DMSO 0,6% (N = 4). (B) Gemiddelde van de laatste drie tijdstippen voor elke behandelingsgroep (rode vakken in (A)). (C) Weergave van een gesimuleerd bio-energetisch profiel van de Seahorse Analyzer Mitochondrial Stress Test op basis van Resipher-gegevens. De kleurgecodeerde gegevenspunten op de gesimuleerde grafiek komen overeen met kleurgecodeerde staafdiagrammen in (B). Alle ademhalingsparameters kunnen worden berekend met behulp van Resipher-gegevens en geselecteerde kleine moleculen. (D) Schema van het werkingsmechanisme van de reagentia die worden gebruikt in figuur 3 en figuur 4. Afkortingen: OCR = zuurstofverbruik; RPE = retinaal pigmentepitheel; DMSO = dimethylsulfoxide; AA = Antimycine A; Rot = Rotenon. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 5: Langdurige OCR-monitoring van RPE die een epitheliale naar mesenchymale overgang ondergaat, gestimuleerd door TGFβ2. Rijpe primaire humane RPE-culturen werden elke 2-3 dagen behandeld met 10 ng/ml TGFβ2 of voertuigcontrole. (A) Real-time OCR-metingen werden gedurende 3 weken gevolgd met (B) Kwantificering van Delta OCR in de loop van de tijd (dag 19-dag 6). N = 6-7 putjes per aandoening, ongepaarde t-toets, * P < 0,05. Afkortingen: OCR = zuurstofverbruik; RPE = retinaal pigmentepitheel; TGFβ2 = transformerende groeifactor bèta-2. Klik hier om een grotere versie van deze figuur te bekijken.
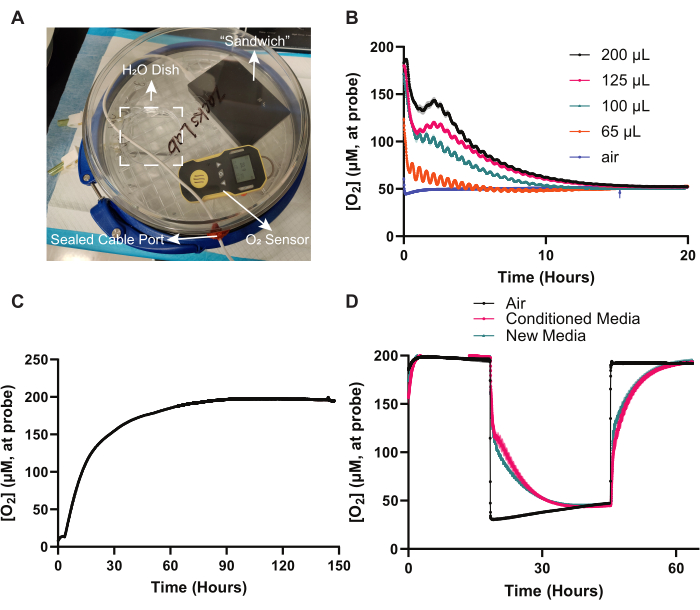
Figuur 6: Monitoring van de mitochondriale respons van RPE op hypoxie. (A) De "sandwich" van het OCR-systeem werd geassembleerd in een hypoxiekamer en de USB-kabel werd aangesloten op de Hub via een gat dat in het deksel was geboord en was afgedicht met siliconenvet of stopverf. Ook in de hypoxiekamer bevindt zich een petrischaal met steriel water om de luchtvochtigheid op peil te houden en een draagbare O2-sensor. Het hele systeem werd in een celcultuurincubator achtergelaten nadat de atmosfeer van de hypoxiekamer was vervangen door een lagereO2-concentratie. (B) Media hebben tijd nodig om in evenwicht te komen tot O2-concentraties boven het lucht-vloeistofgrensvlak. Verschillende volumes RPE-media die in evenwicht waren met atmosferisch O2 werden toegevoegd in lege putjes (geen cellen) van een plaat met 96 putjes. De hypoxiekamer werd vervolgens aangepast naar 5% (50 μM) O2. DeO2-concentratie in de media van elke put werd gedurende 20 uur gecontroleerd. Wells met hogere mediavolumes worden langzamer in evenwicht gebracht tot 5% O2 dan lagere mediavolumes. N = 8. (C) Het systeem kan worden gebruikt om luchtlekken in de hypoxiekamer op te sporen. De hypoxiekamer werd opgezet met 1% O2 en het sensordeksel werd over lege putten geplaatst (alleen lucht). De inlaat- en uitlaatpoorten van de hypoxiekamer werden open gelaten en de atmosfeer van de hypoxiekamer werd opnieuw in evenwicht gebracht tot atmosferische O2-niveaus gedurende ~ 90 uur. (D) Nieuwe media en supernatanten ("geconditioneerde media") hebben een vergelijkbareO2-oplosbaarheid. Dit elimineert de bezorgdheid over differentiële O 2-oplosbaarheid in media, aangezien de samenstelling ervan verandert tijdens de cultuur, wat de consistentie van OCR-metingen in de loop van de tijd zou beïnvloeden. Hetzelfde volume (100 μL) verse media ("nieuwe media") of media die gedurende 48 uur over cellen zijn geïncubeerd ("geconditioneerde media") werd toegevoegd aan putjes van een plaat zonder cellen. De "sandwich" van het OR-systeem werd aanvankelijk onderworpen aan atmosferische O2-niveaus, vervolgens overgebracht naar de hypoxiekamer (3-5% O2 of 30-50 μM) en vervolgens opnieuw overgebracht naar atmosferische O2-niveaus. O2 niveaus in de lucht werden gemonitord door sondes in lege (alleen lucht) putten. De verandering in de O2-concentratie tijdens elke overgang tussen de twee mediatypen is identiek, wat aantoont dat de oplosbaarheid van O2 tussen de twee mediatypen identiek is. N = 6. Afkortingen: OCR = zuurstofverbruik; RPE = retinaal pigmentepitheel. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 7: O2 concentraties bij de RPE monolaag bepaald met een online calculator. Screenshot van de online rekenmachine (https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture). Zie de tekst voor meer informatie over hoe de calculator kan worden gebruikt om de hoeveelheid zuurstof te bepalen die beschikbaar is bij de RPE-monolaag. Afkortingen: RPE = retinaal pigmentepitheel. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 8: Experimenten voor het oplossen van problemen: verdamping, ongezonde cellen en overmatige OCR-fluctuaties. (A) Overmatige verdamping. Wanneer er een onregelmatigheid is in de OCR-tracering voor een put, klikt u eerst op het tabblad Omgeving op de online interface van het systeem (links). Hier kunnen vochtigheid, temperatuur en atmosferische druk worden gecontroleerd. Het openen van de celcultuurincubator zal de luchtvochtigheid tijdelijk verstoren (zie 2 uur en 28 uur op het spoor). Vanaf 30 uur daalt het vochtspoor echter gestaag in de loop van de tijd, zelfs zonder de deur te openen. Dit suggereert dat de waterbak van de celcultuurincubator droog is. Elke verstoring van de vochtigheid of temperatuur zal de OCR-metingen veranderen. (Rechts) Een lage luchtvochtigheid verergert de verdamping. In het spoor rechts vertoont een put die snel verdampt steeds kleinere verschillen inO2-concentratie tussen de boven- en onderkant van de sensorsonde-excursie (1 mm tot 1,5 mm boven de RPE-monolaag). Dit suggereert dat de sondepunt zich dicht bij de lucht-media-interface bevindt. Wanneer deO2-concentratie "flatlines" leest bij een waarde die dicht bij de bekende atmosferische O2-concentraties (~200 μM) ligt, suggereert dit dat de sondepunt volledig uit de mediakolom is en alleen lucht bemonstert. OCR-metingen zijn niet langer geldig en dergelijke putten moeten onmiddellijk worden gewijzigd. (B) Ongezonde cellen. Door hetO2- en OCR-spoor van elke individuele put uit te zetten, kan een uitbijter worden geïdentificeerd, meestal veroorzaakt doordat de cellen ongezond zijn. Hier is de put die wordt aangeduid met het blauwe spoor ongezond. N = 6 putten. (C) Deuropeningen van de couveuse en mediawissel. Veranderingen in atmosferische vochtigheid, temperatuur, druk en CO2 tijdens het openen van de deur van de couveuse, samen met eventuele mediaveranderingen, verstoren tijdelijk de evenwichts-O 2-gradiënt die in de put is vastgesteld, waardoor afwijkende O2- en OCR-pieken vroeg en laat in deze grafieken ontstaan. N = 6 putten. Afkortingen: OCR = zuurstofverbruik. Klik hier om een grotere versie van deze figuur te bekijken.

Afbeelding 9: Experimenten voor probleemoplossing: mediavolume en normalisatie. (A) Het mediavolume beperkt de maximaal mogelijke OCR. Aangezien hogere mediavolumes leiden tot een lagere O2-beschikbaarheid bij de RPE-monolaag, heeft elk mediavolume in een enkele put van een plaat met 96 putjes een maximale OCR. Boven deze OCR is de O2 ter hoogte van de cellen in wezen 0% (anoxisch). Dus als men dicht bij de maximale theoretische OCR voor een bepaald mediavolume zit, is het nuttig om het mediavolume te verlagen, zodat er in de loop van het experiment geen OCR-"plafondeffect" wordt gezien. De maximale theoretische OCR die haalbaar is bij elk mediavolume (in een standaardplaat met 96 putjes) wordt weergegeven. Alle waarden zijn berekend met behulp van de online calculator die in protocolsectie 4 is besproken en in figuur 7 is weergegeven. (B) Passende normalisatie. Voor experimenten waarbij men geïnteresseerd is in het effect van de ene variabele op het vermogen van een andere variabele om mitochondriaal metabolisme te induceren, is een Delta-Delta OCR experimentele opstelling ideaal. In de opstelling in (B) wordt het vermogen van twee verschillende media om β-oxidatie van palmitaat te bevorderen getest. Als β-oxidatie van het vetzuur optreedt, zou er een significante toename van mitochondriale OCR moeten zijn. Sommige media kunnen palmitaat β-oxidatie beter promoten dan andere media. Aan de linkerkant van de OCR-grafiek worden twee verschillende media (Media 1 vs. Media 2) geïntroduceerd in parallelle putten van RPE-culturen. Baseline OCR wordt verkregen. Vervolgens wordt palmitaat toegevoegd aan de helft van de putjes die elk mediatype bevatten. Dit creëert vier voorwaarden: Media 1 - palmitaat, Media 1 + palmitaat, Media 2 - palmitaat, Media 2 + palmitaat. De OCR-reactie op elk van deze nieuwe mediacondities wordt vastgelegd. Vervolgens worden de OCR-waarden na experimentele behandelingen (het gemiddelde van het rood gestippelde vak onder de behandelingsfase) afgetrokken van de basislijn OCR-waarden vóór de behandeling (gemiddelde van het rood gestippelde vak onder de basislijnfase), waardoor Delta OCR-staafdiagrammen ontstaan (linksonder). Ten slotte wordt het vermogen van Media 1 vs. Media 2 om β-oxidatie te bevorderen bepaald in een Delta-Delta OCR-staafdiagram (rechtsonder). Hier wordt het verschil tussen "Delta OCR van Media 1 + palmitaat" en "Delta OCR van Media 1 - palmitaat" berekend en vergeleken met het verschil tussen "Delta OCR van Media 2 + palmitaat" en "Delta OCR van Media 2 - palmitaat". Dit type experimentele opzet en normalisatie isoleert de effecten van Media 1 vs. Media 2 op het bevorderen van β-oxidatie; de algemene structuur van deze normalisatie is van toepassing op elk experiment waarbij men het effect van een variabele meet op het vermogen van een andere variabele om OCR te veranderen. Afkortingen: OCR = zuurstofverbruik; RPE = retinaal pigmentepitheel. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Het recept voor RPE-celkweekmedia. Klik hier om deze tabel te downloaden.
Discussie
Het mitochondriale metabolisme van de RPE speelt een cruciale rol in de pathogenese van veel voorkomende verblindende netvliesaandoeningen, waaronder AMD en PVR. Door het mitochondriaal metabolisme van RPE in vitro te modelleren, kan men de metabolische toestand isoleren van die van de omliggende weefsels, en het weefsel op een gecontroleerde manier onderwerpen aan verschillende ziekte-simulerende beledigingen. Een dergelijke in vitro modellering van het mitochondriale metabolisme van RPE is mogelijk gemaakt door de komst van high-fidelity humane primaire en iPSC-RPE-culturen die de juiste differentiatietoestand en polariteit bereiken die nodig zijn om RPE in vivo nauw te benaderen. Hoewel het monitoren van het zuurstofverbruik (OCR) in dergelijke culturen een ideale methode is voor het monitoren van het mitochondriaal metabolisme, sluit de opzet voor OCR-monitoring vaak groeiende culturen uit in de omstandigheden die nodig zijn voor sterk gepolariseerde en volledig gedifferentieerde RPE. Hier beschrijven we Resipher als een nieuw systeem voor het monitoren van RPE mitochondriaal metabolisme via real-time, langdurige beoordeling van OCR in sterk gedifferentieerde en gepolariseerde RPE-culturen.
Andere methoden zijn gebruikt om OCR in RPE te monitoren. De Seahorse XF Analyzer is ontworpen om OCR gedurende korte perioden te bewaken met acute manipulaties van de mitochondriale functie. Seahorse-assays vereisen echter dat cellen worden gekweekt op aangepaste platen, die niet bevorderlijk zijn voor het ondersteunen van hoge RPE-polariteit en differentiatie21. Calton, Vollrath en collega's hebben het zeepaardje aangepast voor de beoordeling van sterk gedifferentieerde RPE-culturen gekweekt op microporeuze steunen door het microporeuze membraan in stukken te snijden en in de Seahorse-plaat te plaatsen, maar deze methode werkt nog steeds alleen voor kortetermijn, eindpuntbewaking van culturen omdat de cellen geen toegang hebben tot CO2 Tijdens de test kan de test alleen worden uitgevoerd onder niet-steriele omstandigheden, en het doorsnijden van de microporeuze ondersteuning zal na verloop van tijd de dood en disfunctie van het randgedeelte van de microporeuze ondersteuning veroorzaken22. De Barofuse is een pomploos perfusiesysteem waarbij stroken RPE gekweekt op microporeuze dragers in het perfusiesysteem kunnen worden geladen, waardoor OCR in realtime kan worden gemonitord23. Net als bij de aangepaste opstelling voor het zeepaardje door Calton, Vollrath en collega's, zijn de belangrijkste beperkingen van RPE-beoordeling met Barofuse de noodzaak om de microporeuze steunen te snijden en het kortetermijn, eindpunt van de test. De Oxygraph is ook ontworpen voor snelle kinetische veranderingen in OCR als reactie op metabole manipulaties24. Het is niet gebruikt voor RPE-culturen en zou dezelfde beperkingen ondervinden bij het beoordelen van sterk gepolariseerde en gedifferentieerde RPE-culturen als het zeepaardje en de barofuse.
In tegenstelling tot deze andere methoden, maakt het hier beschreven OCR-systeem het mogelijk om OCR te monitoren terwijl RPE wordt gekweekt in standaard celcultuurplaten/substraten onder standaardomstandigheden met standaard RPE-media in een standaard CO2-incubator voor celcultuur, waardoor zeer gedifferentieerde en gepolariseerde RPE-culturen gemakkelijk en gemakkelijk kunnen worden gesondeerd. Naast het genereren van gegevens over real-time OCR-veranderingen door het systeem, kunnen diezelfde cellen worden gebruikt voor aanvullende tests aan het einde van de OCR-bewakingsperiode. Dit maakt zeer flexibele experimenten mogelijk waarbij het effect van een interventie op OCR herhaaldelijk wordt getest gedurende een periode van weken (bijv. - RPE EMT-inductie in figuur 5) of waar het herstel op lange termijn van een interventie kan worden getest (bijv. - herstel van mitochondriale ontkoppeling in figuur 3) of waar trapsgewijze metabole veranderingen als reactie op een initiële interventie kunnen worden gevolgd (bijv. - effecten van serum op OCR zodra medianutriënten zijn uitgeput in figuur 2). Het OCR-systeem in dit artikel is bijzonder handig voor het meten van OCR in sterk gepolariseerde en gedifferentieerde RPE-culturen. Dergelijke culturen zijn functioneel postmitotisch, met een strakke verpakking en zware pigmentatie. Dit betekent dat elk putje bijna identieke celnummers9 bevat, waardoor het voor de meeste experimenten niet nodig is om OCR te normaliseren naar celnummer. Zelfs wanneer normalisatie naar het celaantal vereist is, zorgen de zware RPE-pigmentatie en goed afgebakende celgrenzen ervoor dat de normalisatie kan plaatsvinden met een niet-invasief eenvoudig celgetal op basis van helderveldbeeldvorming. Voor experimenten met ongedifferentieerde RPE en RPE-proliferatie, zoals de EMT-experimenten in figuur 5, wordt het normaliseren van de OCR per put naar het celnummer noodzakelijk om te weten wat de OCR "per cel" is.
Buiten het netvliesveld is het systeem gebruikt om cellulaire ademhaling en metabolische activiteit te bestuderen in verschillende celtypen, waaronder pancreaseilandjescellen25, skeletspier26, eierstokkanker27, cardiomyocyten28 en zelfs hele organismen, zoals C. elegans29. Realtime, langdurige monitoring van OCR met behulp van het hier beschreven OCR-systeem onthulde belangrijke inzichten in bio-energetische verschuivingen en mitochondriale disfunctie in deze diverse ziektemodellen.
Het Resipher systeem heeft wel beperkingen. De methode voor het bepalen van OCR is fundamenteel anders dan de Seahorse Analyzer, BaroFuse of Oxygraph. Het vereist de vaststelling van een O 2-gradiënt om OCR te berekenen, en het kan uren duren om de gradiënt vast te stellen. Snelle kinetische experimenten, die in de andere systemen mogelijk zijn, zijn met dit systeem dus niet mogelijk. Bovendien heeft Resipher, in tegenstelling tot de andere systemen, geen injectiepoorten voor de snelle afgifte van kleine moleculen of het verzamelen van metabolieten. In plaats daarvan moet het sensordeksel worden verwijderd in een celkweekkap, waarbij medicijnen worden ingespijkerd of media worden vervangen, samen met handmatige verzameling van metabolieten die moeten worden geanalyseerd.
Voor het instellen en oplossen van problemen met een experiment met behulp van het OCR-systeem dat in dit document wordt beschreven, wordt het volgende aanbevolen. Ten eerste, minimaliseer de verdamping. Bedenk dat de O 2-gradiënt in de mediakolom boven de RPE-monolaag sterk afhankelijk is van de hoogte van kolom9, en dat het systeem OCR berekent op basis van de O2-gradiënt. Dus als er tijdens het experiment een duidelijke verlaging van de mediakolom is als gevolg van verdamping, zal de O 2-gradiënt veranderen, wat van invloed is op de OCR-metingen. Het is van cruciaal belang om de waterbak voor de incubator vol te houden, maar er wordt ook voorgesteld om water in alle ongebruikte putten van de plaat met 96 putjes te plaatsen. Verder hebben de putjes aan de rand van de plaat hogere verdampingssnelheden, dus deze putjes worden leeg gelaten van cellen in typische experimenten die hierboven zijn gepresenteerd. De vochtigheidssensor op het OCR-systeem kan helpen bij het bewaken van de luchtvochtigheid van de couveuse. In figuur 8A suggereert de daling van de luchtvochtigheid tijdens het experiment dat de waterbak van de couveuse leeg is. Naarmate de verdamping in de put versnelt, zullen de O 2-concentratiemetingen voor de put hoger klimmen en uiteindelijk "vlak" worden bij de atmosferische O2-concentratie (~200 μM) (Figuur 8A).
Ten tweede, controleer of de "sandwich" van het OCR-systeem op de juiste manier is gemonteerd. De metalen contactplekken aan de onderkant van het apparaat en de bovenkant van het sensordeksel moeten schoon zijn, zonder vuil dat volledig contact belemmert. Het apparaat en het sensordeksel moeten volledig vlak en gelijkmatig uitgelijnd op de plaat met 96 putjes worden bevestigd zonder enige kanteling. De USB-kabel die het apparaat met de hub verbindt, mag niet onder spanning staan, wat kan leiden tot koppel van de "sandwich" en beperking van de juiste beweging van het apparaat.
Ten derde, zorg ervoor dat het apparaat en de sensoren van het sensordeksel zijn gekalibreerd. Figuur 2B geeft aan hoe aan het begin van elk experiment snel kan worden gecontroleerd of de sensor goed werkt. Ten vierde, zorg ervoor dat een bepaalde put geen uitbijter OCR vertoont voorafgaand aan de experimentele manipulatie. Nadat de sensoren werken, kan het bepalen van de OCR-waarden voor alle putjes met cellen helpen bepalen of bepaalde putjes ongezonde cellen bevatten. Figuur 8B toont verschillende putten die een baseline OCR-beoordeling ondergaan, waarbij de blauwgekleurde put duidelijk een lagere OCR (en dus hogeO2-concentratie ) vertoont. Deze put is een uitbijter en moet worden uitgesloten van experimentele manipulatie.
Ten vijfde, minimaliseer omgevingsmanipulaties tijdens actieve OCR-metingen. De O 2-gradiënt is zeer gevoelig voor veranderingen in temperatuur, vochtigheid, CO2 -niveaus van de incubator en atmosferische druk. Het openen van de deur van de couveuse heeft een aanzienlijke invloed op deze factoren, waardoor tijdelijke verstoringen in de OCR-metingen worden veroorzaakt totdat de O 2-gradiënt van de mediakolom weer in evenwicht komt (Figuur 8C). Parameters die van invloed zijn op OCR kunnen worden bewaakt in de online interface van het systeem onder het tabblad "Omgeving" (Figuur 8A).
Ten zesde, bepaal het optimale mediavolume voor het experiment. Hoewel een onvoldoende mediavolume artefacten kan veroorzaken door overmatige verdamping (zie de eerste maatregel voor probleemoplossing hierboven) of voortijdige uitputting van voedingsstoffen in de media, beperkt een te hoog mediavolume de beschikbaarheid van O2 tot de RPE-monolaag, waardoor hypoxie9 ontstaat. Figuur 7 is een screenshot van de online calculator die beschikbaar is voor het bepalen van het effect van het mediavolume op de O2-concentratie bij de RPE-monolaag. De maximale OCR die mogelijk is voor een bepaald mediavolume wordt weergegeven in figuur 9A. Als de OCR-snelheid voor een bepaald experiment met een bepaald volume de snelheid benadert die wordt weergegeven in figuur 9A, dan benadert de O2-concentratie op de RPE-monolaag anoxie (0%) en is een lager mediavolume nodig. Over het algemeen moeten experimenten met mitochondriaal intensieve processen in RPE-cultuur mediavolumes hebben die niet groter zijn dan 75 μl per 96-putje.
Ten zevende, voer de juiste normalisatie uit om de effecten van een experimentele interventie op OCR te isoleren. Aangezien verschillende putten verschillende basislijn-OCR kunnen hebben, is het van cruciaal belang om voorafgaand aan een experimentele interventie basislijn-OCR-metingen voor elke put te verkrijgen. Trek de basislijn OCR af van de OCR na de experimentele interventie om de "Delta OCR" te verkrijgen, die het effect van de experimentele interventie op OCR aantoont. De methode voor het verkrijgen van "Delta OCR" wordt gedemonstreerd in figuur 3 en figuur 9B. Als men geïnteresseerd is in de effecten van een experimentele interventie op het vermogen van een andere experimentele interventie om OCR te induceren, is een extra normalisatiestap, de "Delta-Delta OCR", nodig. Een dergelijk voorbeeld wordt geïllustreerd in figuur 9B, waar het vermogen van palmitaat (één experimentele interventie) om verhoogde OCR te induceren (via inductie van β-oxidatie) afhangt van het type media voor de RPE-cultuur (een tweede experimentele interventie).
Minimaliseer ten slotte het risico op besmetting. Het systeem bewaakt OCR door een zuurstofsensor in de media boven de cellen te introduceren. Dit verhoogt het risico op infectie. Onverwachte dalingen van de OCR tijdens het experiment of een onverwacht lage OCR aan het begin van het experiment kunnen tekenen zijn van een infectie. Platen moeten actief worden gecontroleerd op infectie onder een celcultuurmicroscoop. Kruisbesmetting tussen platen met 96 putjes kan optreden als een sensordeksel wordt hergebruikt. Om dergelijke kruisbesmetting tot een minimum te beperken, moet men het hele deksel gedurende 20 minuten onderdompelen in 70% ethanol voor ontsmetting nadat een experiment is uitgevoerd, voordat het sensordeksel opnieuw wordt gebruikt in een nieuw experiment (zie protocolparagraaf 1.2.15).
Tot slot wordt een protocol gepresenteerd voor real-time, langdurige monitoring van het mitochondriale metabolisme in high-fidelity RPE-culturen via beoordeling van OCR met behulp van een nieuw systeem genaamd Resipher. Het kan worden gebruikt voor tal van toepassingen op sterk gepolariseerde en gedifferentieerde RPE-culturen, in het bijzonder het onderzoeken van fysiologische metabolische eigenschappen van geïsoleerde RPE, evenals veranderd RPE-metabolisme in in vitro modellen van netvliesaandoeningen, waaronder AMD en PVR.
Openbaarmakingen
Richard A. Bryan en Kin Lo zijn werknemers van Lucid Scientific, dat het Resipher-systeem produceert.
Dankbetuigingen
We danken Drs. Daniel Hass en Jim Hurley voor het idee om de oplosbaarheid van O2 te testen in nieuwe versus geconditioneerde media als controle. We danken Dr. Magali Saint-Geniez voor de redactionele input op het manuscript. We danken Scott Szalay van Instrument and Electronic Services Core, Kellogg Eye Center, voor het achteraf uitrusten van de hypoxiekamer met de Resipher USB-kabel. Er werden geen federale fondsen gebruikt voor HFT-onderzoek. De Electronic Services Core wordt ondersteund door P30 EY007003 van het National Eye Institute. Dit werk wordt ondersteund door een onbeperkte afdelingssubsidie van Research to Prevent Blindness (RPB). J.M.L.M. wordt ondersteund door het James Grosfeld Initiative for Dry Age-Related Macular Degeneration, de E. Matilda Ziegler Foundation for the Blind, een Eversight eye-bank grant, een K08EY033420 grant van het National Eye Institute en steun van Dee en Dickson Brown, evenals de David and Lisa Drews Discovering Hope Foundation. D.Y.S. wordt ondersteund door het UNSW Scientia-programma. L.A.K. wordt ondersteund door de Iraty Award, Monte J. Wallace, Michel Plantevin, een R01EY027739 beurs van het National Eye Institute en het Department of Defense Army Medical Research Acquisition Activity VR220059.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Gibco | #25-200-056 | |
| 3,3',5-triiodo-L-thyronine sodium salt | Sigma | T5516 | |
| 32-channel Resipher lid | Lucid Scientific | NS32-101A for Falcon | |
| Antimycin A from streptomyces sp. | Sigma | A8674-25MG | Inhibitor van Complex III van de elektronentransportketen |
| BAM15 | Sigma | SML1760-5MG | Ontkoppelingsmiddel om mitochondriale ademhaling te verhogen |
| DMSO, celkweekkwaliteit | Sigma-aldrich | D4540-100ML | Drager voor het reconstitueren van mitochondriale geneesmiddelen |
| Extracellulaire matrix coating substrates: Synthemax II-SC | Corning | #3535 | Extracellulaire matrix voor hfRPE |
| Extracellulaire matrix coating substrates: Vitronectin | Gibco | A14700 | Extracellulaire matrix voor iPSC-RPE |
| FCCP | Sigma | C2920-10MG | Ontkoppelingsmiddel om mitochondriale ademhaling te verhogen |
| Fetal Bovine Serum (Bio-Techne S11550H) | Bio-Techne | S11550H | |
| Hydrocortison-Cyclodextrine | Sigma | H0396 | |
| Hypoxia kamer | Embrient Inc. | MIC-101 | |
| N1 Media Supplement | Sigma | N6530 | |
| Non-Essential Amino Acids Solution | Gibco | 11140050 | |
| O2 sensor | Sensit technology of Forensics Detectors | P100 of FD-90A-O2 | |
| Penicilline-Streptomycine | Gibco | 15140-122 | |
| Recombinant human TGFβ2 | Peprotech | 100-35B | Transformatiegroeifactor beta-2 om epitheliale-mesenchymale overgang te induceren |
| Rotenon | Sigma | R8875-1G | Remmer van Complex I van de elektronentransportketen |
| Systeem-compatibele plaat | Corning | #353072 | |
| Taurine | Sigma | T8691 | |
| αMEM (Alpha Modificatie van Eagle's Media) | Corning | 15-012-CV |
Referenties
- Shu, D. Y., Butcher, E., Saint-Geniez, M. EMT and EndMT: emerging roles in age-related macular degeneration. Int J Mol Sci. 21 (12), 4271(2020).
- Shu, D. Y., Lovicu, F. J. Myofibroblast transdifferentiation: the dark force in ocular wound healing and fibrosis. Prog Retin Eye Res. 60, 44-65 (2017).
- Hurley, J. B. Retina metabolism and metabolism in the pigmented epithelium: a busy intersection. Annu Rev Vis Sci. 7, 665-692 (2021).
- Wu, W., et al. Deficient RPE mitochondria energetics leads to subretinal fibrosis in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (8), 2420(2023).
- Hansman, D. S., et al. Metabolic reprogramming of the retinal pigment epithelium by cytokines associated with age-related macular degeneration. Biosci Rep. 44 (4), BSR20231904BSR20231904(2024).
- Li, K. X., et al. Modulation of pyruvate kinase M2 activity as a therapy in a primary RPE cell culture model of proliferative vitreoretinopathy. Invest Ophthalmol Vis Sci. 62 (8), 2213(2021).
- Gupta, S., et al. Progress in stem cells-based replacement therapy for retinal pigment epithelium: in vitro differentiation to in vivo delivery. Stem Cells Transl Med. 12 (8), 536-552 (2023).
- Wilson, D. F., et al. Oxygen distribution and vascular injury in the mouse eye measured by phosphorescence-lifetime imaging. Appl Opt. 44 (25), 5239-5248 (2005).
- Hass, D. T., et al. Medium depth influences O2 availability and metabolism in human RPE cultures. Invest Ophthalmol Vis Sci. 64 (14), 4(2023).
- Shu, D. Y., Butcher, E. R., Saint-Geniez, M. Suppression of PGC-1α drives metabolic dysfunction in TGFβ2-Induced EMT of retinal pigment epithelial cells. Int J Mol Sci. 22 (9), 4701(2021).
- Shu, D. Y., et al. Dimethyl fumarate blocks tumor necrosis factor-alpha-driven inflammation and metabolic rewiring in the retinal pigment epithelium. Front Mol Neurosci. 15, 896786(2022).
- Ng, P. Q., Saint-Geniez, M., Kim, L. A., Shu, D. Y. Divergent metabolomic signatures of TGFβ2 and TNFα in the induction of retinal epithelial-mesenchymal transition. Metabolites. 13 (2), 213(2023).
- Kar, D., et al. Choriocapillaris impairment is associated with delayed rod-mediated dark adaptation in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (12), 41(2023).
- Curcio, C. A., Kar, D., Owsley, C., Sloan, K. R., Ach, T. Age-related macular degeneration, a mathematically tractable disease. Invest Ophthalmol Vis Sci. 65 (3), 4(2024).
- Maminishkis, A., et al. Confluent monolayers of cultured human fetal retinal pigment epithelium exhibit morphology and physiology of native tissue. Invest Ophthalmol Vis Sci. 47 (8), 3612-3624 (2006).
- Maminishkis, A., Miller, S. S. Experimental models for study of retinal pigment epithelial physiology and pathophysiology. J Vis Exp: JoVE. (45), e2032(2010).
- Zhang, Q., et al. A platform for assessing outer segment fate in primary human fetal RPE cultures. Exp Eye Res. 178, 212-222 (2019).
- Sharma, R., Bose, D., Montford, J., Ortolan, D., Bharti, K. Triphasic developmentally guided protocol to generate retinal pigment epithelium from induced pluripotent stem cells. STAR Protoc. 3 (3), 101582(2022).
- Marchetti, P., Fovez, Q., Germain, N., Khamari, R., Kluza, J. Mitochondrial spare respiratory capacity: Mechanisms, regulation, and significance in non-transformed and cancer cells. FASEB J. 34 (10), 13106-13124 (2020).
- Rosenfeld, P. J., Trivizki, O., Gregori, G., Wang, R. K. An update on the hemodynamic model of age-related macular degeneration. Am J Ophthalmol. 235, 291-299 (2022).
- Fitch, T. C., et al. Real-time analysis of bioenergetics in primary human retinal pigment epithelial cells using high-resolution respirometry. J Vis Exp: JoVE. (192), (2023).
- Calton, M. A., Beaulieu, M. O., Benchorin, G., Vollrath, D. Method for measuring extracellular flux from intact polarized epithelial monolayers. Mol Vis. 24, 425-433 (2018).
- Grumbine, M. K., et al. Maintaining and assessing various tissue and cell types of the eye using a novel pumpless fluidics system. J Vis Exp: JoVE. (197), (2023).
- Mu, C., Shearer, J. Protocol for measuring respiratory function of mitochondria in frozen colon tissue from rats. STAR Protoc. 4 (4), 102560(2023).
- Rocha, D. S., Manucci, A. C., Bruni-Cardoso, A., Kowaltowski, A. J., Vilas-Boas, E. A. A practical and robust method to evaluate metabolic fluxes in primary pancreatic islets. Mol Metab. 83, 101922(2024).
- Kanaan, M. N., et al. Cystine/glutamate antiporter xCT controls skeletal muscle glutathione redox, bioenergetics and differentiation. Redox Biol. 73, 103213(2024).
- da Veiga Moreira, J., et al. Methylene blue metabolic therapy restrains in vivo ovarian tumor growth. Cancers. 16 (2), 355(2024).
- McNally, L. A., Altamimi, T. R., Fulghum, K., Hill, B. G. Considerations for using isolated cell systems to understand cardiac metabolism and biology. J Mol Cell Cardiol. 153, 26-41 (2021).
- Misare, K. R., et al. The consequences of tetraploidy on Caenorhabditis elegans physiology and sensitivity to chemotherapeutics. Sci Rep. 13 (1), 18125(2023).
Herprints en machtigingen
