Dit protocol beschrijft het gebruik van adeno-geassocieerde virus (AAV)-vectoren voor celspecifieke labeling en in vivo beeldvorming met behulp van een confocale scanning laseroftalmoscoop (CSLO). Deze methode maakt het mogelijk om verschillende soorten retinale cellen en hun bijdragen aan de retinale functie en ziekte te onderzoeken.
Methodenartikel
Longitudinale in vivo beeldvorming van retinale cellen met op maat gemaakte adeno-geassocieerde virusserotypen via confocale scanning laseroftalmoscopie
In dit artikel
Samenvatting
Samenvatting
De dynamische aard van retinale cellulaire processen vereist vooruitgang in genafgifte en live monitoringtechnieken om het begrip en de behandeling van oogziekten te verbeteren. Deze studie introduceert een geoptimaliseerde adeno-geassocieerde virus (AAV) -benadering, waarbij gebruik wordt gemaakt van specifieke serotypen en promotors om een optimale transfectie-efficiëntie te bereiken in gerichte retinale cellen, waaronder retinale ganglioncellen (RGC's) en Müller glia. Door gebruik te maken van de precisie van confocale scanning laser oftalmoscopie (CSLO), presenteert dit werk een niet-invasieve methode voor in vivo beeldvorming die de longitudinale expressie van AAV-gemedieerd groen fluorescerend eiwit (GFP) vastlegt. Deze aanpak elimineert de noodzaak van terminale procedures, waardoor de continuïteit van de observatie en het welzijn van de proefpersoon behouden blijft. Bovendien kan het GFP-signaal worden getraceerd in met AAV geïnfecteerde RGC's langs het visuele pad naar de superieure colliculus (SC) en de laterale geniculaire kern (LGN), waardoor het potentieel voor directe visuele routekartering mogelijk wordt. Deze bevindingen bieden een gedetailleerd protocol en demonstreren de toepassing van dit krachtige hulpmiddel voor real-time studies van het gedrag van retinale cellen, pathogenese van ziekten en de werkzaamheid van gentherapie-interventies, en bieden waardevolle inzichten in het levende netvlies en zijn verbindingen.
Inleiding
Als het enige optisch toegankelijke deel van het centrale zenuwstelsel dient het netvlies als een waardevol model voor neurowetenschappelijk onderzoek1. Retinale ganglioncellen (RGC's), de outputneuronen van het netvlies die visuele informatie naar de hersenen sturen, spelen een cruciale rol in de visuele functie. Hun verlies of disfunctie leidt tot slechtziendheid en onomkeerbare blindheid, zoals gezien bij glaucoom en andere optische neuropathieën2. Müller glia, de belangrijkste gliacellen in het netvlies, zijn essentieel voor het behoud van de homeostase van het netvlies, het bieden van structurele en metabolische ondersteuning aan neuronen, het reguleren van neurotransmitterniveaus en het bijdragen aan herstel en regeneratie van het netvlies3. Hun disfunctie is betrokken bij verschillende aandoeningen van het netvlies, waaronder diabetische retinopathie4, leeftijdsgebonden maculaire degeneratie5 en oculair ischemisch syndroom6. RGC's en Müller glia vertonen nauwe interacties en onderlinge afhankelijkheid; Müller glia bieden essentiële ondersteuning aan RGC's, terwijl RGC-activiteit de Müller glia-functie kan beïnvloeden 3,7. Het bestuderen van zowel RGC's als Müller glia is cruciaal voor het begrijpen van de netvliesfunctie en het ontwikkelen van effectieve behandelingen voor meerdere netvliesaandoeningen.
Huidige beoordelingen in netvliesonderzoek maken voornamelijk gebruik van technieken zoals optische coherentietomografie (OCT) om de dikte van de retinale zenuwvezellaag of de trajecten van axonbundels te meten 8,9. Hoewel deze methoden van onschatbare waarde zijn voor het detecteren van RGC-verlies, bieden ze geen gedetailleerd beeld van de RGC-morfologie en gliacellen vanwege de beperkte resolutie. Evenzo, hoewel geavanceerde technieken zoals adaptieve optische scanning laser oftalmoscopie (AO-SLO) beeldvorming op cellulair niveau van RGC's, fotoreceptoren en gliacellen in het levende menselijke netvlies mogelijk maken10, beperken hun technische complexiteit en beperkte toegankelijkheid het gebruik ervan voornamelijk tot gespecialiseerde onderzoeksomgevingen. Gezien deze beperkingen is er een voortdurende behoefte aan het ontwikkelen van meer toegankelijke en betrouwbare methoden voor de diepgaande studie van specifieke retinale celpopulaties in vivo.
Dienovereenkomstig heeft dit protocol tot doel een alternatieve beeldvormingsbenadering te introduceren die geschikt is voor onderzoekstoepassingen in retinale cellen. Het combineert de kracht van AAV-gemedieerde celtype-specifieke labeling met de niet-invasieve aard van CSLO-beeldvorming. Adeno-geassocieerde virussen (AAV's) zijn veelzijdige genafgiftevectoren die bekend staan om hun lage immunogeniciteit en het vermogen om een breed scala aan celtypen te transduceren, waaronder zowel delende als niet-delende cellen11. Dit maakt ze ideale hulpmiddelen om zich te richten op specifieke celpopulaties binnen de complexe retinale omgeving. Door gebruik te maken van AAV-vectoren met zorgvuldig geselecteerde serotypen en promotors, kan selectieve expressie van fluorescerende eiwitten worden bereikt in meerdere interessante celtypen, zoals RGC's en Müller-glia. AAV2 staat bijvoorbeeld bekend om zijn hogere transductie-efficiëntie in RGC's12,13, terwijl AAV8 duidelijk effectief is in het richten op fotoreceptoren14, en AAV9 sterke transfectiemogelijkheden vertoont in Müller glia15, met een brede efficiëntie in verschillende retinale cellagen. Het is belangrijk op te merken dat de effectiviteit van AAV niet alleen afhangt van de keuze van het serotype, maar ook van de promotors, die de intensiteit en celspecificiteit van transgenexpressie dicteren, wat het belang onderstreept van zorgvuldige selectie om optimale transductie te bereiken.
Voor RGC-etikettering maakt dit protocol gebruik van AAV2 met de humane synapsine (hSyn) promotor. AAV2 vertoont efficiënte transductie van RGC's na intravitreale injectie13, en de hSyn-promotor, een alomtegenwoordige neuronale promotor, zorgt voor sterke en specifieke transgenexpressie in deze cellen16. Voor Müller glia maakt het protocol gebruik van AAV9-vectoren die worden aangestuurd door de GfaABC1D-promotor17, die een sterke transgenexpressie in deze cellen vertoont15. Deze gerichte labelbenadering stelt onderzoekers in staat om deze cellen te onderscheiden van het omringende netvliesweefsel en ze in de loop van de tijd te volgen, wat een basis vormt voor in vivo surveillance van netvliescellen en hun reacties op bio-omgevingsveranderingen.
Confocale scanning laser oftalmoscopie (CSLO) is een niet-invasieve beeldvormingstechniek die beelden met een hoge resolutie van het levende netvlies oplevert, waardoor real-time visualisatie van fluorescerend gelabelde retinale celpopulaties mogelijk is 18,19,20. Een gefocusseerde laserstraal scant het netvlies en vangt uitgezonden licht op dat door een gaatje gaat om onscherpe signalen te elimineren, wat resulteert in scherpere beelden met verbeterd contrast. Dit protocol maakt gebruik van een Heidelberg Spectralis CSLO-systeem, dat veel wordt gebruikt voor beeldvorming van retinale cellen bij levende dieren, waaronder studies die transgene gelabelde RGC's21,22 en microglia23 visualiseren. Door gebruik te maken van de HRA CSLO-eenheid met een laser van 488 nm en geschikte filters, kunnen onderzoekers fluorescerend gelabelde RGC's of Müller-glia in levende dieren afbeelden na intravitreale injectie van AAV-vectoren die fluorescerende reportergenen dragen. Het longitudinale beeldvormingsprotocol, met wekelijkse sessies die zowel het centrale als het perifere netvlies bestrijken, volgt veranderingen in de loop van de tijd. Om dierenwelzijn voorop te stellen, maakt het protocol gebruik van het automatische eye-tracking-systeem (ART) van de HRA CSLO-eenheid, waardoor nauwkeurige beeldacquisitie mogelijk is zonder dat er algemene anesthesie of contactlenzen nodig zijn.
Dit protocol maakt gebruik van de gecombineerde kracht van AAV en CSLO om de longitudinale monitoring van specifieke retinale celtypen in vivo mogelijk te maken. Door de celtypespecificiteit van AAV-gemedieerde labeling te koppelen aan de niet-invasieve beeldvormingsmogelijkheden met hoge resolutie van CSLO, stelt deze methode onderzoekers in staat om de dynamische veranderingen in RGC's en Müller-glia te bestuderen als reactie op verschillende stimuli of interventies. Deze inzichten hebben een aanzienlijk potentieel voor de ontwikkeling van nieuwe diagnostische en therapeutische strategieën voor netvliesaandoeningen.
Protocol
Alle experimenten werden uitgevoerd in overeenstemming met de ARVO-verklaring voor het gebruik van dieren in oogheelkundig en gezichtsonderzoek en werden goedgekeurd door het Institutional Animal Care and Use Committee van Capital Medical University, Beijing. Vier weken oude volwassen mannelijke C57BL/6J-muizen (met een gewicht tussen 15-20 g) werden gebruikt voor alle experimenten en gehuisvest in temperatuurgecontroleerde kamers met een licht/donkercyclus van 12/12 uur. Standaard knaagdiervoer en water waren ad libitum beschikbaar. De details van de reagentia en apparatuur die in dit onderzoek zijn gebruikt, staan vermeld in de materiaaltabel.
1. AAV-gemedieerde retinale celtransfectie
OPMERKING: Voor gerichte transductie van RGC's maakt dit protocol gebruik van AAV2-hSyn-eGFP, dat de hSyn-promotor bevat om een robuuste expressie van verbeterde GFP te stimuleren. Müller glia is gericht met behulp van AAV9-GfaABC1D-eGFP. Om een optimale transductie-efficiëntie en robuuste transgenexpressie te bereiken, wordt een minimale AAV-titer van 1 x 10¹² virale genomen (vg)/ml aanbevolen voor intravitreale injecties bij muizen13.
- Houd u aan strikte veiligheidsprotocollen bij het uitvoeren van AAV-gemedieerde retinale celtransfectieprocedures om onbedoelde blootstelling te voorkomen en een veilige werkomgeving te garanderen.
- Voer alle procedures met virale vectoren uit in een gecertificeerde bioveiligheidskast (BSC). Rust het personeel uit met de juiste persoonlijke beschermingsmiddelen (PBM), waaronder laboratoriumjassen, handschoenen en oogbescherming, tijdens de duur van de procedure.
- Gooi alle scherpe voorwerpen en biologisch gevaarlijke materialen op de juiste manier weg in overeenstemming met de veiligheidsprotocollen van de instelling om de naleving te handhaven en al het laboratoriumpersoneel te beschermen.
2. Bereiding van virale vectoren en dieren
- Verkrijg AAV2-hSyn-eGFP of de AAV9-GfaABC1D-eGFP-vectoren die zijn opgeslagen bij -80 °C. Ontdooi vectoren onmiddellijk voor gebruik op ijs om de virale integriteit te behouden.
- Verdoof de muizen met een intraperitoneale injectie van pentobarbital-natrium in een dosering van 50 mg/kg. Bevestig de diepte van de anesthesie door de reflexen van de achterste voet te testen voordat u verdere acties onderneemt.
- Knip de snorharen bij om interferentie met het operatiegebied tijdens de procedure te voorkomen. Desinfecteer de oogkas gedurende 2 s met een 20% Povidon-jodiumoplossing en spoel vervolgens grondig af met steriele normale zoutoplossing.
- Breng plaatselijk een druppel van 0,5% proparacaïne aan om ongemak te minimaliseren en onwillekeurige oogbewegingen te voorkomen.
3. Behandeling en intravitreale injectie van virale vectoren
- Breng 1 μL geselecteerde AAV-oplossing (AAV2-hSyn-eGFP of AAV9-GfaABC1D-eGFP) over op een stuk schone, voorgekoelde paraffinefilm om temperatuurschommelingen te voorkomen die de virale activiteit kunnen beïnvloeden.
- Zuig de AAV-oplossing op met behulp van een glazen spuit van Hamilton met een afgeschuinde naald van 33 G onder de oogheelkundige chirurgische microscoop.
- Plaats de muis in buikligging onder de microscoop. Kantel het hoofd iets om de oogzijde die bedoeld is voor injectie omhoog te brengen. Pas de vergroting van de microscoop aan en optimaliseer deze om het superieure gebied van de baan van de muis duidelijk te identificeren.
- Steek de naald 1-2 mm achter de limbus aan de bovenste sclerale rand van het oog in de glasvochtholte. Injecteer de AAV-oplossingen langzaam om terugstroming of door druk veroorzaakte schade te voorkomen.
OPMERKING: Plaats van de injectieplaats: Voer de injectie uit in het kwadrant bovenste temporale van het oog, ongeveer 1 mm achter de limbus. Kies deze locatie om grote bloedvaten te vermijden en het risico op lensbeschadiging te minimaliseren. Vermijd injectieplaatsen die te dicht bij de limbus liggen om irritatie of slijtage van de lens te voorkomen. Vasculatuur vermijden: Gebruik een operatiemicroscoop om de geplande injectieplaats zorgvuldig te onderzoeken op zichtbare bloedvaten voordat u de injectie krijgt. Als er schepen aanwezig zijn, pas dan het invoerpunt enigszins aan om ze te vermijden. Steek de naald in een ondiepe hoek, evenwijdig aan de iris, om het risico op vaatbeschadiging verder te verminderen. Vermijd herhaalde injecties in hetzelfde gebied om het risico op subretinale bloeding te verminderen. - Houd de naald 30 s op zijn plaats zodat de vectoren zich in de glaskamer kunnen verspreiden en zich op het netvliesoppervlak kunnen nestelen, waardoor de kans op succesvolle transductie wordt gemaximaliseerd.
- Trek de naald langzaam terug om het risico op terugstroming van glasvocht te minimaliseren.
- Breng onmiddellijk na de injectie een actuele antibiotische zalf aan op de injectieplaats. Zorg ervoor dat de zalf gelijkmatig wordt aangebracht om het oogoppervlak volledig te bedekken, waardoor ooginfectie en ontsteking worden voorkomen.
OPMERKING: De antibiotische zalf bevat 1 mg/g dexamethason, 3500 IE/g neomycinesulfaat en 6000 IE/g polymyxine B-sulfaat. - Plaats de muis op een verwarmingskussen om de lichaamstemperatuur op peil te houden tijdens het herstel van de anesthesie en houd de muis nauwlettend in de gaten op tekenen van angst of afwijkingen. Zodra ze volledig hersteld zijn en geen complicaties vertonen, breng je ze terug naar hun kooien met toegang tot normaal voedsel en water.
4. In-vivobeeldvorming met CSLO
- Voorbereiding van dieren
- Selecteer de muis die is geïnfecteerd met AAV2-hSyn-eGFP of AAV9-GfaABC1D-eGFP na 4 weken intravitreale injectie. Breng een druppel van een oogoplossing met 0,5% tropicamide en 0,5% fenylefrine aan op het oogoppervlak om de pupil te verwijden tot ongeveer 2 mm in diameter22.
OPMERKING: Een tijdsinterval van minimaal 4 weken AAV-transductie wordt aanbevolen voor de optimale fluorescerende etikettering van retinale cellen na intravitreale injectie13. Bovendien werden in onze experimenten met oogzenuwverbrijzeling (ONC) het netvlies 4 weken na infectie in beeld gebracht, evenals op dag 7 en 14 na het verbrijzelingsletsel. Deze tijdstippen werden gekozen om zowel de initiële AAV-expressie als de progressie van retinale veranderingen na ONC vast te leggen. - Bedek het beeldvormingsplatform met een stuk van de schone pad om mogelijke besmetting van dierlijke uitwerpselen tijdens het operatieproces te voorkomen.
OPMERKING: Het op maat gemaakte beeldvormingsplatform biedt voldoende ruimte voor het dier om op zijn buik te liggen, zorgt voor stabiliteit en minimaliseert beweging tijdens handmatige fixatie voor optimale beeldacquisitie. - Breng de muis voorzichtig over op het beeldvormingsplatform en wacht een acclimatisatieperiode van 2-5 minuten voorafgaand aan de beeldvorming om stress te minimaliseren en aanpassing aan de beeldomgeving te vergemakkelijken.
- Met de hulp van een tweede technicus kunt u het dier voorzichtig in bedwang houden terwijl u tijdens de procedure bij bewustzijn blijft. Zorg voor een rustinterval van 10 s na 15 s beeldvorming om het oog te laten knipperen en het vocht van het hoornvlies op peil te houden.
OPMERKING: Schrob de hoofdhuid voorzichtig om het ooglid spontaan op te tillen, vermijd het gebruik van geforceerde ooglidfixatie of extra hulpmiddelen zoals clips, waardoor het risico op oogletsel wordt verkleind. Algemene anesthesie wordt niet gebruikt om de optische helderheid te behouden tijdens langdurige beeldvormingssessies, omdat het de opaciteit van de voorbijgaande lens kan verergeren. Breng hoogwaardige beeldacquisitie in evenwicht met diercomfort en veiligheid tijdens de procedure. Voltooi de hele procedure binnen 5 minuten om het welzijn van de dieren te garanderen en de beeldkwaliteit te behouden. - Pas de hoofdhouding aan en lijn de cameralens uit door de scherpstelknop (Afbeelding 1B) en micromanipulator (Afbeelding 1C) nauwkeurig af te stellen om het interessegebied (ROI) te richten op daaropvolgende in vivo beeldvorming.
- Selecteer de muis die is geïnfecteerd met AAV2-hSyn-eGFP of AAV9-GfaABC1D-eGFP na 4 weken intravitreale injectie. Breng een druppel van een oogoplossing met 0,5% tropicamide en 0,5% fenylefrine aan op het oogoppervlak om de pupil te verwijden tot ongeveer 2 mm in diameter22.
- Systeem configuratie
- Bevestig een contactloze groothoeklens van 55° op de camera om het gezichtsveld van het fundusgebied te vergroten.
- Zet het filterwiel op stand A (angiografie) om de beeldvormingsmodus voor infrarood (IR) en fluorescentieangiografie (FA) mogelijk te maken (Figuur 1A). Schakel de laser en voeding in om het CSLO-beeldvormingssysteem te activeren.
- Open de software Heidelberg Eye Explorer en maak een nieuw onderzoek aan door op het pictogram Nieuwe patiënt bovenaan de menubalk te klikken. Voer de relevante diergegevens in en accepteer de standaard hoornvlieskromming van 7,7 mm in het pop-upvenster.
- Selecteer de gele Start-knop (Figuur 1E) op het scherm van het bedieningspaneel om de live imaging-modus te starten.
- In vivo CSLO-beeldvorming
- Selecteer de IR-modus (Figuur 1G) met autofluorescentie bij een excitatiegolflengte van 820 nm op het bedieningspaneel. Om beeldvorming met hoge resolutie te bereiken, moet de High Res. De (HR)-modus wordt geactiveerd via de vensterinterface of het handmatige bedieningspaneel (Afbeelding 1F).
OPMERKING: Infraroodreflectie (IR) beeldvorming is doorgaans de eerste stap in CLSO-oogheelkundige beeldvorming, verkregen vóór fluoresceïne-angiografie (FA), om een basisbeeld te bieden. Zelfs verlichting, minimale artefacten en scherpe focus op de belangrijkste retinale vaten zijn cruciaal voor de betrouwbaarheid van de z-vlak-focussering en het bereiken van IR-beelden van hoge kwaliteit. - Beweeg de lens naar het oog van de muis met behulp van de joystick met de XYZ-micromanipulator voor fijnafstelling. Onderzoek de optische transparantie en draai de gevoeligheidsknop (Figuur 1D) tegen de klok in om de helderheid van het fundusbeeld te verlagen tot 40%-60%, waardoor overbelichting van de fundus wordt voorkomen en de visualisatie van retinale details wordt verbeterd.
- Pas de focusknop en micromanipulator aan totdat de optische schijf en de netvliesvaten ondubbelzinnig worden geïdentificeerd op de fundus.
OPMERKING: Criteria voor het optimale brandpuntsvlak: (1) Gelijkmatig verlichte fundusweergave zonder donkere hoeken. (2) Uniforme verlichting rond de optische schijf zonder focale donkere vlekken of vervorming. (3) Duidelijke lumenvorm van de grote netvliesvaten met de zichtbare beweging van de bloedstroom. - Schakel over naar de FA-modus (Figuur 1H) met een solid-state blauwe laser op een excitatiegolflengte van 488 nm en een barrièrefilter op 500 nm. Draai de gevoeligheidsknop (Figuur 1D) met de klok mee om de helderheid van het fundusbeeld te verhogen tot 50%-107% om het beoogde netvliesgebied te verlichten.
- Stel de ART-gemiddelde waarde (een blauwe balk linksonder in de software-interface) in op ten minste 15 om de signaal-ruisverhouding te verbeteren. Deze functie neemt het gemiddelde van een reeks B-scans die op dezelfde locatie zijn gemaakt, waardoor de beeldkwaliteit wordt verbeterd.
OPMERKING: Hoewel een hogere ART-middelingswaarde over het algemeen de beeldkwaliteit verbetert door middel van middeling, verlengt het ook de scanduur. Deze langere duur kan mogelijk het risico op uitdroging van het hoornvlies en vermoeidheid bij dieren verhogen, factoren die zorgvuldig moeten worden overwogen, vooral bij wakkere beeldvorming van dieren. - Lijn opnieuw uit met het binnenste vlak van het netvlies, specifiek gericht op de GFP die RGC's tot expressie brengt of de Müller-gliacellen. Er worden fijne aanpassingen gemaakt om te zorgen voor een scherpe verlichting van de gewenste celpopulatie, zoals RGC soma en axonen, of het Müller-cellichaam. De beeldgevoeligheid is uitgebalanceerd om een optimale visualisatie te bereiken en oververzadiging van de GFP-positieve cellen te voorkomen.
OPMERKING: Om de beelden met vergelijkbare helderheid en helderheid van het GFP-signaal te verkrijgen, moet de gevoeligheidsacquisitie constant zijn voor alle muizen in het experiment. - Druk op de gevoeligheidsknop (Figuur 1D) om de ART-modus te starten, die online een live gemiddeld beeld genereert. Wacht tot de blauwe balk (die de ART-gemiddelde waarde weergeeft) linksonder in de software-interface de ingestelde ART-waarde heeft bereikt (≥ 20 frames) en tik op de knop Verkrijgen op de bedieningsinterface om de fundusbeelden vast te leggen.
OPMERKING: Voor de ART-modus is eye-tracking ingebouwd om automatisch te compenseren voor kleine oogbewegingen tijdens in vivo beeldvorming, waardoor een consistente focus op het geselecteerde retinale brandpuntsvlak mogelijk is. - Zodra u de gewenste beelden hebt verkregen, verlaat u de ART-modus door op de gevoeligheidsknop op het aanraakscherm te drukken.
OPMERKING: Om uitdroging van het hoornvlies te voorkomen en spontaan met de ogen te knipperen, werden tijdens het beeldvormingsproces elke 15 s pauzes van 10 s geïmplementeerd. - Om door de nasale en temporale retinale gebieden te navigeren, beweegt u de camerakop horizontaal terwijl u het livebeeld op het scherm observeert. Zodra het doelgebied is bereikt, stelt u de scherpstelling nauwkeurig af en start u het beeldvormingsproces zoals beschreven in de stappen 2.3.1-2.3.8.
OPMERKING: Zorg voor langzame en gecontroleerde camerabewegingen en zorg tegelijkertijd voor een consistente en heldere verlichting van de fundus. Als er donkere gebieden verschijnen, gebruikt u de micromanipulator om de camerapositie verticaal aan te passen en het netvlies opnieuw te centreren. - Om het superieure netvlies in beeld te brengen, stelt u de houding van het muishoofd voorzichtig in op een positie met de voorkant naar boven. Kantel de camerakop matig omhoog om deze uit te lijnen met het superieure netvliesgebied. Pas de scherpstelling indien nodig aan en ga verder met beeldvorming.
- Na voltooiing van de beeldvorming verlaten alle gewenste retinale gebieden het acquisitievenster en worden de beelden automatisch opgeslagen. Breng topisch glijmiddel aan op het afgebeelde oog om de hydratatie van het hoornvlies te behouden.
- Om het onderzoek van het contralaterale oog te starten, plaatst u het dier terug naar de andere kant van het platform en herhaalt u de stappen 2.3.1-2.3.11.
- Selecteer de IR-modus (Figuur 1G) met autofluorescentie bij een excitatiegolflengte van 820 nm op het bedieningspaneel. Om beeldvorming met hoge resolutie te bereiken, moet de High Res. De (HR)-modus wordt geactiveerd via de vensterinterface of het handmatige bedieningspaneel (Afbeelding 1F).
5. Beeldverwerking en -analyse
- Export en voorbereiding van afbeeldingen
- Open de Heidelberg Eye Explorer-software en selecteer de gewenste CSLO-beeldvormingssessie met goede kwaliteit. Kies enkele of opeenvolgende afbeeldingen van dezelfde netvlieslocatie met consistente gevoeligheidsinstellingen in de loop van de tijd.
- Sluit wazige beelden met een slechte focus of helderheid van het hoornvlies uit en zorg ervoor dat alleen beelden met een duidelijke visualisatie van netvliesstructuren worden gebruikt voor analyse. Exporteer deze afbeeldingen in TIFF-formaat voor verdere verwerking.
- Afbeeldingen uitlijnen en bijsnijden
- Groepeer afbeeldingen per muizenoog op basis van hetzelfde netvliesgebied.
OPMERKING: De originele afbeeldingen die van het CSLO-systeem zijn verkregen, worden opgeslagen in het volgende formaat: TIFF, met een afmeting van 1536 x 1536 pixels, een resolutie van 5,69 um/pixel en een ART-waarde van ≥15. - Importeer voor vervolgonderzoeken afbeeldingen in geschikte beeldverwerkingssoftware. Roteer en lijn de afbeeldingen zo nodig uit om overeen te komen met de oriëntatie van de basislijnafbeelding. Gebruik bij het opslaan of exporteren van de verwerkte afbeeldingen instellingen die de hoogst mogelijke beeldkwaliteit behouden om mogelijke compressieartefacten te minimaliseren.
- Lijn de CSLO-beelden uit een tijdreeks van hetzelfde oog uit door ze te roteren zodat ze overeenkomen met het respectieve basislijnbeeld met behulp van het vaatstelsel en de optische schijf als oriëntatiepunten.
OPMERKING: Onderzoek elk uitgelijnd beeld zorgvuldig en zorg ervoor dat ze aan de volgende criteria voldoen voordat u overgaat tot bijsnijden: (1) Volledige opname van het netvliesgebied: Het beeld moet het beoogde netvliesgebied volledig omvatten, inclusief belangrijke oriëntatiepunten zoals de optische schijf en de belangrijkste bloedvaten; (2) Afwezigheid van bewegingsartefacten: Het beeld moet vrij zijn van vervaging, strepen of duplicatie van structuren veroorzaakt door oogbewegingen tijdens beeldvorming; (3) Minimale vervorming: Het beeld moet de netvliesstructuur nauwkeurig weergeven zonder kromtrekken, uitrekken of compressieartefacten die kunnen ontstaan door beeldhoeken of lenseffecten. (4) Balans van beeldkwaliteitsstatistieken: beoordelingen van achtergrondruisniveaus (standaarddeviatie van pixelintensiteiten in structuurvrije gebieden < 5 (schaal 0-255)); signaal-ruisverhouding (SNR >20), verlichtingsconsistentie (variatiecoëfficiënt tussen zes beeldkwadranten <10%) en beelduniformiteit (variatiecoëfficiënt in homogene gebieden <15%). - Selecteer de geroteerde afbeelding en exporteer deze in TIFF-indeling. Gebruik voor elk tijdstip het bijsnijdgereedschap om willekeurig 5-10 gebieden (elk 300 x 300 pixels) met GFP-positieve cellen te selecteren en bij te snijden uit de afbeeldingen die op kwaliteit zijn goedgekeurd. Exporteer elke bijgesneden afbeelding afzonderlijk in TIFF-indeling voor verdere analyse.
- Groepeer afbeeldingen per muizenoog op basis van hetzelfde netvliesgebied.
- Meting van de fluorescentie-intensiteit
- Open de bijgesneden CSLO-afbeeldingen (8-bits grijstinten, 300 x 300 pixels) in ImageJ/Fiji.
- Om algemene veranderingen in fluorescerende signalen te onderzoeken, meet u de totale fluorescentie-intensiteit per bijgesneden afbeelding met behulp van Analyseren > Meten (of Ctrl + M). Noteer de "Gemiddelde"-waarde, die de gemiddelde GFP-fluorescentie-intensiteit van het hele bijgesneden beeld weergeeft.
- Kwantificering van RGC
- Pas in ImageJ/Fiji de intensiteitsdrempel van de bijgesneden CSLO-afbeeldingen aan met behulp van Image > Adjust > TBrightness/Contrast om een optimale visualisatie van individuele witte soma-lichamen tegen de zwarte achtergrond te bereiken.
OPMERKING: Bepaal een geïndividualiseerde drempel na het bekijken van de batch bijgesneden afbeeldingen, of pas een consistent drempelalgoritme toe (bijv. Huang's methode5 in ImageJ/Fiji). Voor de methode van Huang: (1) Converteer afbeeldingen naar 8-bits grijstinten (afbeelding > Type > 8-bit). (2) Open de drempeltool (Afbeelding > Pas > drempel aan). (3) Selecteer Huang als drempelmethode. (4) Bekijk een voorbeeld van de segmentatie en klik op Toepassen. De drempel wordt automatisch berekend en weergegeven in het histogram van de afbeelding. - Activeer de Cell Counter-plug-in en klik op elke GFP-positieve RGC-soma om te tellen. Noteer het totale aantal cellen dat in het geanalyseerde gebied is gemarkeerd. Herhaal dit proces voor alle bijgesneden afbeeldingen van elk vervolgtijdstip.
- Pas in ImageJ/Fiji de intensiteitsdrempel van de bijgesneden CSLO-afbeeldingen aan met behulp van Image > Adjust > TBrightness/Contrast om een optimale visualisatie van individuele witte soma-lichamen tegen de zwarte achtergrond te bereiken.
- Gegevensanalyse
- Exporteer de gegevens over het aantal cellen en de fluorescentie-intensiteit naar een spreadsheet of statistische software (bijv. GraphPad Prism).
- Voer de juiste statistische tests uit op basis van de bijbehorende experimentele opzet en hypothesen. Interpreteer de resultaten en concludeer.
Resultaten
Volgens het gepresenteerde protocol werden verschillende retinale cellen met succes gevisualiseerd en in vivo gevolgd met behulp van een combinatie van AAV-gemedieerde genafgifte en CSLO. AAV2-hSyn-eGFP transduceerde effectief RGC's, wat resulteerde in robuuste eGFP-expressie door het hele netvlies, zoals bevestigd door CSLO en colokalisatie met de RGC-specifieke marker, RNA-bindend eiwit met meervoudige splitsing (RBPMS), specifiek gevonden in de ganglioncellaag (Figuur 2 en Figuur 3). Het protocol bevestigde ook de mogelijkheid om Müller glia te targeten met behulp van AAV9-GfaABC1D-eGFP. CSLO-visualisatie onthulde wijdverspreide eGFP-expressie, met name in de binnenste retinale lagen, consistent met het bekende grote distributiesegment van Müller glia. Het positieve GFP-signaal is ook sterk gelokaliseerd met de Müller-gliamarker glutaminesynthetase (GS), wat de specificiteit van deze benadering verder bevestigt (Figuur 2E, F en Figuur 3B). Deze bevindingen bevestigden opnieuw de veelzijdigheid van AAV-ondersteunde genafgifte voor het bestuderen van verschillende retinale celtypen. Om het vermogen om Müller glia te richten te bevestigen, werd AAV9-GfaABC1D-eGFP gebruikt. CSLO-beeldvorming toonde wijdverbreide eGFP-expressie, met name in de binnenste retinale lagen, consistent met de bekende verdeling van Müller glia (Figuur 2E,F). Dit selectieve expressiepatroon werd verder gevalideerd door de hoge mate van colokalisatie die werd waargenomen tussen het GFP-signaal en de Müller glia-marker glutaminesynthetase (GS) (Figuur 3B).
Om de specificiteit en efficiëntie van de virale targetingbenadering voor zowel RGC's als Müller glia te kwantificeren, werd een colokalisatieanalyse uitgevoerd om GFP-fluorescentie te vergelijken met standaard celtypemarkers (Figuur 3B,D). In totaal werden 6 muizenogen geanalyseerd. Voor RGC's gericht op AAV2-hSyn-GFP was de transductie-efficiëntie 64% ± 3%, terwijl de transductiespecificiteit 68% ± 3% was. Voor Müller-glia gericht op AAV9-GfaABC1D-GFP was de transductie-efficiëntie 58% ± 2% en de transductiespecificiteit 71% ± 2%. Deze resultaten tonen aan dat deze AAV-gemedieerde genafgiftebenadering selectieve labeling van verschillende retinale celtypen mogelijk maakt, wat de veelzijdigheid ervan benadrukt voor het bestuderen van cellulaire en moleculaire processen in het netvlies.
Om de geschiktheid van CSLO voor longitudinale monitoring van verstoringen van retinale cellen te beoordelen, werd een voorbijgaand ONC-model uitgevoerd bij met AAV2-hSyn-eGFP geïnfecteerde muizen. Een progressieve afname van het eGFP-signaal en de RGC-nummers werd waargenomen gedurende twee weken (Figuur 4). De overleving van RGC werd gekwantificeerd met drie maatstaven: CSLO-fluorescentie-intensiteit, in vivo celtellingen voor CSLO-beelden en ex vivo RGC-tellingen van RBPMS-positieve cellen. Na beeldverwerking zoals beschreven in stap 4, werden ten minste 10 interessegebieden (ROI's) van elk netvlies bijgesneden (6 ogen in totaal), zodat elke ROI dezelfde netvlieslocatie omvatte en op elk tijdstip duidelijke celsignalen vertoonde. De CSLO-fluorescentie-intensiteit werd vervolgens gekwantificeerd door de gemiddelde intensiteit binnen elke bijgesneden ROI op elk tijdstip te meten. In vivo werden celtellingen verkregen door handmatig individuele GFP-positieve RGC's te tellen binnen dezelfde bijgesneden ROI op elk tijdstip. Ten slotte werden netvliezen geoogst voor RBPMS-immunokleuring en werden RBPMS-positieve cellen geteld binnen 24 gedefinieerde gebieden die per netvliessector voor elk netvlies werden afgebeeld. Er werden significante negatieve correlaties gevonden tussen alle drie de RGC-overlevingsstatistieken (CSLO-fluorescentie-intensiteit, in vivo celtellingen en ex vivo RBPMS-positieve celtellingen) en de tijd na ONC (p < 0,001 voor iedereen, Figuur 4C), wat progressief RGC-verlies en degeneratie aantoont. Belangrijk is dat er geen significante verschillen werden waargenomen tussen de verschillende experimentele groepen in termen van initiële RGC-dichtheid of daalsnelheid, wat wijst op een grove consistentie in het ONC-model en de beeldvormingsbenadering. Deze bevindingen komen overeen met eerdere onderzoeken naar RGC-schade na ONC en valideren de effectiviteit van dit op CSLO gebaseerde protocol als een niet-invasief en betrouwbaar hulpmiddel voor het monitoren van de gezondheid van RGC.
Om de axonale projecties van RGC binnen het visuele pad verder te onderzoeken, werd een dual-labeling-benadering gebruikt met de combinatie van AAV-gemedieerde eGFP-labeling met de anterograde tracer choleratoxine subeenheid B (CTB)24. Muizen kregen een intravitreale injectie met CTB en werden 2 dagen later geofferd voor histologische analyse. Colocalisatie van eGFP- en CTB-signalen in oogzenuwen bevestigde de positieve tracering van RGC-axonen (Figuur 5A). Om de veranderingen van signalen na axonaal letsel verder te bestuderen, werden muizen onderworpen aan unilaterale oogzenuwverbrijzeling (ONC), een model van acute RGC-schade25. In het kort werden muizen verdoofd en werd één oogzenuw blootgelegd en ongeveer 1 mm achter de aardbol verpletterd met een fijne tang gedurende 5 s, wat aanzienlijke RGC-axotomie en daaropvolgende degeneratie veroorzaakte. Na ONC-letsel werd een duidelijke vermindering van zowel de eGFP- als de CTB-intensiteit waargenomen, wat wijst op aanzienlijk verlies van zenuwvezels en verstoring van het axonale transport. Verdere analyse van hersensecties onthulde RGC-projecties naar de Superior Colliculus (SC), een middenhersenstructuur die betrokken is bij sensomotorische integratie en oogbewegingen, en de Lateral Geniculate Nucleus (LGN), het primaire relaiscentrum voor visuele informatie naar de visuele cortex. Na ONC werd een verminderde GFP-intensiteit onthuld aan de contralaterale zijde van de verwonding (Figuur 5B-E). Deze bevindingen tonen het nut aan van deze methode voor het bestuderen van axonale degeneratie van RGC en het in kaart brengen van hun projectiepatronen in vivo, en biedt een potentieel alternatief voor traditionele invasieve traceringsmethoden.

Afbeelding 1: Confocaal scanning laser oftalmoscoop (CSLO) beeldvormingssysteem en bedieningspaneelinterface voor live beeldvorming van het netvlies. (A-D) Componenten beeldvormingssysteem: Deze afbeeldingen tonen de belangrijkste componenten van het HRA CSLO-apparaat. (A) De filterhendel staat in stand "A" voor gecombineerde beeldvorming met infraroodreflectie (IR) en fluoresceïne-angiografie (FA). (B) De scherpstelknop past de fijne scherpstelling van de objectieflens aan. (C) De micromanipulator zorgt voor een nauwkeurige positionering, uitlijning en verlichting van de lichtstraal naar het netvlies door middel van meerdere vrijheidsgraden (bijv. X-, Y-, Z-assen) en rotatie. (D) De gevoeligheidsknop regelt de helderheid van zowel IR- als FA-beelden door de versterking van het gedetecteerde lichtsignaal aan te passen. Door op de knop te drukken, wordt het beeldgemiddelde gestart, waarbij meerdere frames worden gecombineerd om ruis te verminderen en de signaal-ruisverhouding te verbeteren. (E-H) Configuratiescherminterface: De schermafbeeldingen geven het CSLO-configuratiescherm weer met de instellingen die worden gebruikt voor live beeldacquisitie en visualisatie. (E) Het acquisitiecontrolepaneel wordt gestart. (F) Voor een optimale beeldkwaliteit wordt de modus voor hoge resolutie aanbevolen. (G) De IR-beeldvormingsinstellingen zijn gemarkeerd, waardoor visualisatie van netvliesstructuren en bloedvaten mogelijk is. (H) De FA-beeldvormingsinstellingen geven opties weer voor zowel enkelpunts als meerpunts fluorescentiebeeldvorming, waardoor fluorescerende signalen in retinale cellen kunnen worden gedetecteerd. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: In vivo CSLO-beeldvorming van fluorescerend gelabelde retinale cellen na AAV-transfectie bij C57-muizen. (A) De experimentele tijdlijn van CSLO-ondersteunde longitudinale beeldvorming na AAV-transfectie in het muizenoog. (B) Representatieve CSLO-beelden van de superieure en centrale regio's van het netvlies van een C57-muis na 4 weken AAV2-hSyn-eGFP-expressie. Schaal balk: 500 μm. (C) Een handmatig gestikte netvliesmontage van (B) toont de verdeling van netvliescellen die eGFP tot expressie brengen. Schaalbalk: 500 μm. (D) Een vergroot CSLO-beeld van het omkaderde gebied in (C) en het bijbehorende confocale microscopiebeeld van een retinale flatmount. De colokalisatie van eGFP (groen) met de RGC-marker RBPMS (rood) bevestigt AAV-gemedieerde expressie in retinale ganglioncellen (voorbeelden omcirkeld). Schaalbalk: 50 μm. (E) Een handmatig gestikte montage van een C57-muizennetvlies 4 weken na injectie met AAV9-GfaABC1D-eGFP, waarbij Müller-glia-specifieke eGFP-expressie wordt gedemonstreerd. Schaalbalk: 500 μm. (F) Een vergroot CSLO-beeld van het omkaderde gebied in (E) en het bijbehorende confocale microscopiebeeld van een retinale flatmount. De colokalisatie van eGFP (groen) met de Müller glia-marker glutaminesynthetase (GS, rood) bevestigt AAV-gemedieerde expressie in Müller-gliacellen (voorbeelden omcirkeld). Schaal balk: 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: Celtypespecificiteit van AAV-gemedieerde genafgifte in het netvlies van de muis. (A) Immunohistochemie van een netvliessectie en flatmount van C57-muizen na 4 weken AAV2-hSyn-eGFP-infectie. De colokalisatie van GFP (groen) met RBPMS (rood) bevestigt de RGC-specifieke expressie. Schaalbalk: 50 μm. (B) Kwantificering van de efficiëntie en specificiteit van AAV2-hSyn-GFP-transductie in RGC's. Efficiëntie wordt weergegeven als het percentage RBPMS-positieve RGC's dat ook GFP tot expressie brengt in de retinale flatmount. Specificiteit wordt weergegeven als het percentage GFP-positieve cellen dat ook positief is voor RBPMS in het netvliesgedeelte (n = 6 ogen van 4 muizen). (C) Immunofluorescentiekleuring van een netvliessectie en flatmount van C57-muizen na 4 weken AAV9-GfaABC1D-eGFP-infectie. De colokalisatie van GFP (groen) met GS (rood) bevestigt Müller glia-specifieke expressie. Schaalbalk: 50 μm. (D) Kwantificering van AAV9-GfaABC1D-GFP transductie-efficiëntie en specificiteit in Müller glia. Efficiëntie wordt weergegeven als het percentage GS-positieve Müller-glia dat ook GFP tot expressie brengt in de retinale flatmount. Specificiteit wordt weergegeven als het percentage GFP-positieve cellen dat ook positief is voor GS in het netvliesgedeelte (n = 6 ogen van 3 muizen). Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Longitudinale CSLO-monitoring van RGC-overleving na acute verbrijzeling van de oogzenuw (ONC) bij AAV2-hSyn-eGFP-muizen. (A) Een schematisch diagram van de experimentele tijdlijn van acuut oogzenuwletsel na AAV-infectie. (B) Longitudinale CSLO-beeldvorming van hetzelfde netvlies in een AAV2-hSyn-eGFP-muis bij baseline, 7 dagen en 14 dagen na ONC, visualisatie van RGC's die GFP-signalen tot expressie brengen. Aan de rechterkant worden vergrote beelden van de omkaderde gebieden getoond, naast representatieve confocale microscopiebeelden van retinale flatmounts die de morfologie en distributie van RGC demonstreren. Schaalbalken: 100 μm. (C) Kwantificering van de RGC-overleving gedurende twee weken na ONC werd beoordeeld door de procentuele verandering in zowel het aantal cellen als de CSLO-fluorescerende intensiteit ten opzichte van de uitgangswaarde (gemiddelde ± SEM) te meten. Er werden geen significante verschillen waargenomen tussen de groepen op elk tijdstip (eenrichtings-ANOVA). Lineaire regressieanalyse onthulde significante negatieve correlaties tussen de tijd na het letsel en RGC-overlevingsstatistieken op basis van GFP-fluorescentie (r² = 0,945, p < 0,001), RBPMS-kleuring (r² = 0,888, p < 0,001), CSLO-celtelling (r² = 0,511, p < 0,001) en CSLO fluorescerende intensiteit (r² = 0,7486, p < 0,001). n = 6 muizen/groep/tijdstip. Klik hier om een grotere versie van deze figuur te bekijken.
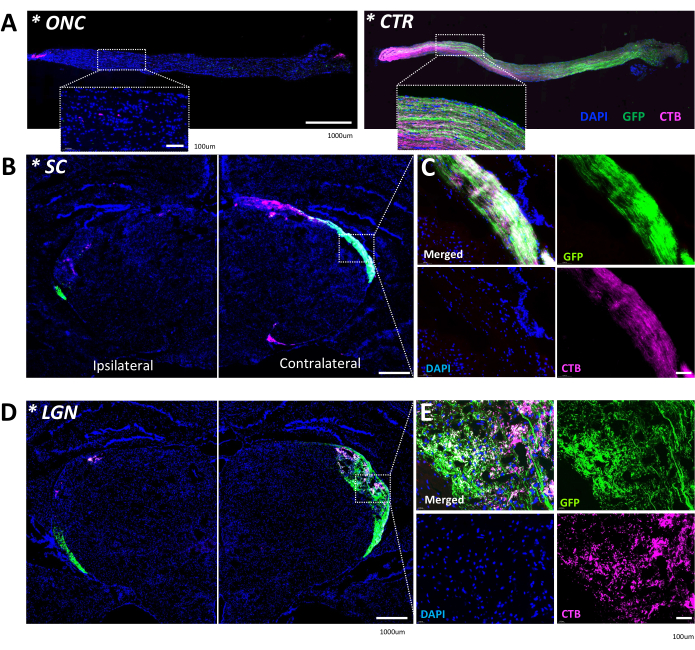
Figuur 5: AAV-ondersteunde kartering van RGC axonale projecties langs het visuele pad. (A) Representatieve fluorescentiemicroscopiebeelden van een paar oogzenuwen van een AAV2-hSyn-eGFP-muis, waarbij GFP-gelabelde RGC-axonen (groen) en colokalisatie met het anterograde axonale tracer choleratoxine B (CTB, magenta) worden aangetoond. Het bovenste paneel biedt een overzicht van de gehele oogzenuwen (schaalbalk: 1000 μm), terwijl het onderste paneel een vergroot beeld biedt van de omkaderde gebieden (schaalbalk: 100 μm). Twee weken na ONC-letsel vertonen zowel GFP- als CTB-signalen een duidelijke vermindering in de hele oogzenuw (linkerkant), wat wijst op axonaal verlies en verstoring van RGC langs het visuele pad. (B) RGC axonale projecties naar de superieure colliculus (SC). Coronale hersensecties van een AAV2-hSyn-eGFP-muis 2 weken na ONC markeren GFP-gelabelde RGC-axonen (groen) en CTB-kleuring (magenta) binnen de SC. Links (L): contralaterale SC; Rechts (R): ipsilaterale SC (ONC-geblesseerde zijde). Schaalbalk: 1000 μm. (C) Een vergrote weergave van het omkaderde gebied in (B) demonstreert de colokalisatie van GFP- en CTB-signalen (samengevoegd beeld), waarbij de axonale bundels van RGC en hun projectiepatronen binnen de SC worden benadrukt. Schaalbalk: 100 μm. (D) Axonale projecties van RGC naar de laterale geniculaire kern (LGN) na ONC, waarbij GFP-gelabelde RGC-axonen (groen) en CTB-kleuring (magenta) binnen de LGN worden onthuld. Links (L): contralateraal LGN; Rechts (R): ipsilaterale LGN (ONC-geblesseerde zijde). Schaalbalk: 1000 μm. (E) Een vergrote weergave van het omkaderde gebied in (D) markeert RGC axonale bundels en hun projectiepatronen binnen het LGN. Schaalbalk: 100 μm. Klik hier om een grotere versie van deze afbeelding te bekijken.
Discussie
Het gepresenteerde protocol beschrijft een robuuste en toegankelijke methode voor in vivo surveillance van specifieke retinale celpopulaties, waarbij gebruik wordt gemaakt van de kracht van zowel AAV-gemedieerde genafgifte als CSLO-beeldvorming. Deze benadering biedt verschillende voordelen ten opzichte van traditionele methoden, waardoor longitudinale studies van de dynamiek van retinale cellen en hun reacties op letsel of ziekte onder fysiologische of pathologische omstandigheden mogelijk zijn.
Het succes van deze methode hangt af van verschillende cruciale stappen. Ten eerste is het bereiken van een optimale AAV-transductie-efficiëntie cruciaal voor een robuuste en specifieke expressie van de fluorescerende reporter in de doelcelpopulatie. Dit kan worden beïnvloed door factoren zoals AAV-serotypeselectie, virale titer en injectietechniek 13,15,16. Ten tweede zijn de juiste behandeling en fixatie van dieren tijdens CSLO-beeldvorming essentieel om bewegingsartefacten te minimaliseren en de beeldkwaliteit te behouden. Het gebruik van een op maat gemaakt beeldvormingsplatform en het vermijden van algemene anesthesie dragen bij aan het bereiken van een duidelijke en consistente visualisatie van netvliesstructuren. Ten derde is een zorgvuldige optimalisatie van CSLO-beeldvormingsparameters, waaronder focus, gevoeligheid en middelingsinstellingen, noodzakelijk om beelden met een hoge resolutie te verkrijgen met minimale ruis en een optimale signaal-ruisverhouding26. Om de mogelijke beperkingen aan te pakken en de betrouwbaarheid van de gegevens te waarborgen, hebben we ten slotte strenge maatregelen voor de controle van de beeldkwaliteit geïmplementeerd en het aantal dieren in onze onderzoeksopzet verhoogd.
Het Spectralis HRA CSLO-systeem beschikt over automatische eye-tracking die de klinische longitudinale beeldvorming verbetert. De automatische real-time (ART) volgfunctie kan tijdens beeldvorming op een specifiek netvliesgebied worden vergrendeld, waardoor bewegingsartefacten worden verminderd. Voor klinische beeldvorming bij de mens bevat het systeem ook een algoritme voor het langdurig volgen van dezelfde anatomische retinale locatie27. Deze technologieën zijn echter niet geoptimaliseerd voor studies bij knaagdieren vanwege aanzienlijke anatomische verschillen tussen de ogen van mensen en knaagdieren. Knaagdierogen zijn veel kleiner (3-4 mm diameter vergeleken met 24 mm bij mensen) en missen bepaalde oriëntatiepunten zoals de macula, wat unieke uitdagingen vormt voor geautomatiseerde tracking28. Bijgevolg vertrouwen onderzoekers die knaagdiermodellen bestuderen voornamelijk op handmatige methoden, waarbij anatomische oriëntatiepunten zoals vaatpatronen en de oogzenuwkop worden gebruikt om specifieke retinale gebieden te lokaliseren en consistente beeldvormingsvlakken te behouden tijdens sessies13,22. Deze aanpak is niet alleen nodig vanwege de beperkte oriëntatiepunten in de ogen van knaagdieren, maar ook vanwege mogelijke substantiële veranderingen in het netvlies veroorzaakt door experimentele manipulaties, die geautomatiseerde systemen die niet zijn ontworpen voor deze specifieke uitdagingen in de war zouden kunnen brengen. Het ontwikkelen van gespecialiseerde eye-tracking- en uitlijningsalgoritmen voor beeldvorming van het netvlies bij knaagdieren vertegenwoordigt dus een cruciale toekomstige richting. Met name het aanpassen van langetermijnvolgalgoritmen voor het gebruik van kleine dieren zou de precisie en reproduceerbaarheid van longitudinale studies aanzienlijk kunnen verbeteren.
Terwijl traditionele histologische technieken dierenoffers vereisen en longitudinale studies uitsluiten, biedt deze AAV-ondersteunde CSLO-beeldvormingsmethode een niet-invasieve benadering voor het monitoren van de dynamiek van retinale cellen in vivo. Deze benadering bouwt voort op eerder werk dat het nut van cSLO-beeldvorming aantoont voor het volgen van longitudinale veranderingen in specifieke retinale cellen na verwonding, met name in diermodellen die gebruik maken van transgene fluorescerende eiwitlabeling 19,21,22,29. Deze studies hebben het vermogen van CSLO benadrukt om een reeks retinale celgebeurtenissen in vivo te visualiseren, waaronder celdood, overleving en mogelijk zelfs migratie of uitgroei van processen. Dit protocol breidt de toepassing van deze techniek uit om AAV-gemedieerde transductie van specifieke retinale celpopulaties te bestuderen, waardoor we de langetermijneffecten van AAV-afgifte en transgenexpressie in het netvlies kunnen volgen en cruciale inzichten kunnen verschaffen in de progressie van netvliesaandoeningen en de werkzaamheid van therapeutische interventies. Huidige klinische beoordelingen met OCT richten zich voornamelijk op RGC-axonverlies door de dikte van de retinale zenuwvezellaag9 te meten, maar ze missen de resolutie om individuele RGC-morfologie of betrokkenheid van gliacellen te beoordelen. Hoewel AO-SLO beeldvorming op cellulair niveau mogelijk maakt in het levende menselijke netvlies10, beperken de complexiteit en beperkte beschikbaarheid ervan het gebruik ervan, voornamelijk in onderzoeksomgevingen. Bovendien vereist het differentiëren van gliaceltypen binnen AO-SLO vaak aanvullende labelmethoden30. Deze methode overwint deze beperkingen door een meer uitgebreide en toegankelijke benadering te bieden voor het visualiseren en volgen van individuele RGC's en andere fluorescerend gelabelde retinale celpopulaties in de loop van de tijd. Dit opent wegen voor het onderzoeken van cellulaire reacties onder verschillende omstandigheden, wat helpt bij de ontwikkeling van gerichte therapieën. Bovendien kan het combineren van AAV-ondersteunde CSLO-beeldvorming met optogenetica31 of calciumbeeldvorming32 het begrip van de retinale celfunctie en zijn rol in visuele verwerking, circuitontwikkeling en regeneratie verder verdiepen.
Ondanks de kracht van deze aanpak, moeten enkele beperkingen en mogelijke overwegingen voor probleemoplossing worden erkend. Variabiliteit in de efficiëntie van AAV-transductie kan optreden, waardoor optimalisatie van injectieparameters of virale titer voor specifieke celtypen of experimentele omstandigheden nodig is. CSLO-beeldvorming kan worden beïnvloed door factoren zoals troebelheid van het hoornvlies, traanfilminstabiliteit en oogbewegingen, die zorgvuldige monitoring en aanpassingen tijdens beeldacquisitie vereisen. Bovendien beperkt de beperkte penetratiediepte van CSLO de visualisatie tot de binnenste retinale lagen, waardoor diepere structuren zoals fotoreceptoren mogelijk worden uitgesloten33. Het Spectralis cSLO-systeem zorgt voor een duidelijke visualisatie van verschillende cellulaire kenmerken en patronen in het netvlies34. Hoewel deze beeldvormingsmodaliteit onder bepaalde omstandigheden observatie van één cel kan vergemakkelijken, zoals aangetoond in een eerder werk dat individuele RGC's visualiseerde in schaars gelabelde Thy1-YFP-muizen22, kan het uitdagingen opleveren voor het kwantificeren van individuele cellen in dicht gelabelde scenario's. In deze studie kan bijvoorbeeld de massale labeling van RGC's met eGFP na AAV-gemedieerde netvliesinfectie soms de duidelijke visualisatie van individuele cellen belemmeren, vooral in gebieden met variaties in expressieniveaus en celoverlap. Deze uitdaging wordt nog groter bij het in beeld brengen van Müller glia, omdat hun langwerpige morfologie, die de gehele netvliesdikte35 beslaat, het moeilijk maakt om een enkele cel binnen een enkel focale vlak vast te leggen met behulp van cSLO. De beoordeling van de efficiëntie van AAV9-gemedieerde Müller-glia-infectie is daarom voornamelijk gebaseerd op het evalueren van algemene transductiepatronen en -distributie met behulp van CSLO-beeldvorming.
Bovendien, terwijl ART-middeling in het HRA-systeem de beeldkwaliteit verbetert, brengt de langere scanduur praktische beperkingen met zich mee, vooral bij wakkere beeldvorming van dieren. De geselecteerde ART-gemiddelde waarde van 15 is om de beeldkwaliteit in evenwicht te brengen met de scantijd, waarbij voldoende ruisonderdrukking wordt geboden met behoud van een redelijke scanduur. Om ongemak en stress bij dieren tot een minimum te beperken, moeten beeldvormingsprocedures worden geoptimaliseerd voor efficiëntie, getraind personeel in dienst nemen dat bekwaam is in het hanteren en afbeelden van wakkere dieren, en dieren tijdens beeldvormingssessies ijverig worden gecontroleerd op tekenen van ongemak of droog hoornvlies. Deze maatregelen waren cruciaal voor het waarborgen van zowel de gegevenskwaliteit als het dierenwelzijn, en benadrukten het belang van het in overweging nemen van beide factoren bij het gebruik van ART-middeling voor in vivo beeldvorming van het netvlies in wakkere diermodellen.
Door deze beperkingen en mogelijke bronnen van variabiliteit te erkennen, kunnen onderzoekers passende stappen ondernemen om beeldvormingsprotocollen te optimaliseren, artefacten te minimaliseren en de betrouwbaarheid en reproduceerbaarheid van hun gegevens te waarborgen.
Over het algemeen biedt deze toegankelijke en gemakkelijk te implementeren methode een krachtig middel om de complexe wisselwerking tussen RGC's en Müller-glia te onderzoeken, vooral als reactie op letsel of ziekte. Door onderzoekers in staat te stellen deze dynamische interacties te visualiseren en te kwantificeren, vergemakkelijkt deze aanpak de ontdekking van nieuwe cellulaire en moleculaire mechanismen die ten grondslag liggen aan retinale pathologieën. Dit werpt op zijn beurt licht op de ontwikkeling van gerichte therapeutische strategieën en verbeterde maatregelen tegen ziekten.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd ondersteund door een subsidie van de National Natural Science Foundation of China (82130029). Figuur 2A en Figuur 4A zijn gemaakt met BioRender.com.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 33 Gauge Needle | Hamilton Corp., Reno, NV, USA | 7803-05 | Voor intravitreale injectie |
| 0.5% proparacaine | Santen Pharmaceutical Co., Ltd. | Topical Anesthetica | |
| AAV2-hSyn-eGFP | OBiO Technology Corp., China | Virus titer: 2,7 x 10¹² virale genomen (vg)/mL | |
| AAV9-GfaABC1D-eGFP | WZ Biosciences Inc., China | Virus titer: 4,5 x 10¹² virale genomen (vg)/mL | |
| Betadine | Healthy medical company | 001651 | Topical Antiseptica |
| Corneal scelar forceps (getand) | Mingren Eye Instruments, China | MR-F301A | Voor het vastzetten van het ooglid tijdens intravitreale injectie |
| Dumont 05# forceps | FST | 51-AGT5385 | Voor het verpletteren van de oogzenuw |
| Graphpad prism | GraphPad Prism, USA | Grafiek tekenen en statistische analyse | |
| HRA Spectralis | Heidelberg Engineering, GmbH, Dossenheim, Duitsland | 'IR' en 'FA' modus voor CSLO beeldvorming | |
| Image J/Fiji | National Institutes of Health, USA | Beeldverwerking | |
| Maxitrol antibioticumzalf | Alcon Laboratories, INC. USA | 0065-0631 | Topical antibiotica |
| Microliterspuiten | Hamilton Corp., Reno, NV, USA | 7633-01 | Voor intravitreale injectie |
| Mydrin-P Oogheelmiddel | Santen Pharmaceutical Co., Ltd, Japan | Pupilverwijding | |
| Oogheelkundige operatiemicroscoop | Leica AG, Heerbrugg, Zwitserland | M220 | Voor chirurgische ingrepen |
| Pentobarbital natrium | Sigma Aldrich, USA | 57-33-0 | Algemeen Anesthetica |
| Powerpoint | Microsoft Corporation, USA | Beelduitlijning en bijsnijden | |
| VISCOTEARS Liquid Gel (Carbomer) | Dr. Gerhard Mann, Chem.-Pharm. Fabrik, Duitsland | Topical smeermiddel |
Referenties
- Cheung, C. Y., Ikram, M. K., Chen, C., Wong, T. Y. Imaging retina to study dementia and stroke. Prog Retin Eye Res. 57, 89-107 (2017).
- Ju, W. K., et al. Glaucomatous optic neuropathy: Mitochondrial dynamics, dysfunction and protection in retinal ganglion cells. Prog Retin Eye Res. 95, 101136(2023).
- Vecino, E., Rodriguez, F. D., Ruzafa, N., Pereiro, X., Sharma, S. C. Glia-neuron interactions in the mammalian retina. Prog Retin Eye Res. 51, 1-40 (2016).
- Llorián-Salvador, M., Cabeza-Fernández, S., Gomez-Sanchez, J. A., De La Fuente, A. G. Glial cell alterations in diabetes-induced neurodegeneration. Cell Mol Life Sci. 81 (1), 47(2024).
- Zhao, N., Hao, X. N., Huang, J. M., Song, Z. M., Tao, Y. Crosstalk between microglia and müller glia in the age-related macular degeneration: Role and therapeutic value of neuroinflammation. Aging Dis. 15 (3), 1132-1154 (2023).
- Minhas, G., Sharma, J., Khan, N. Cellular stress response and immune signaling in retinal ischemia-reperfusion injury. Front Immunol. 7, 444(2016).
- Miao, Y., Zhao, G. L., Cheng, S., Wang, Z., Yang, X. L. Activation of retinal glial cells contributes to the degeneration of ganglion cells in experimental glaucoma. Prog Retin Eye Res. 93, 101169(2023).
- Leung, C. K. S., et al. Diagnostic assessment of glaucoma and non-glaucomatous optic neuropathies via optical texture analysis of the retinal nerve fibre layer. Nat Biomed Eng. 6 (5), 593-604 (2022).
- Hood, D. C., et al. Detecting glaucoma with only OCT: Implications for the clinic, research, screening, and AI development. Prog Retin Eye Res. 90, 101052(2022).
- Burns, S. A., Elsner, A. E., Sapoznik, K. A., Warner, R. L., Gast, T. J. Adaptive optics imaging of the human retina. Prog Retin Eye Res. 68, 1-30 (2019).
- Dinculescu, A., Glushakova, L., Min, S. H., Hauswirth, W. W. Adeno-associated virus-vectored gene therapy for retinal disease. Hum Gene Ther. 16 (6), 649-663 (2005).
- Nickells, R. W., Schmitt, H. M., Maes, M. E., Schlamp, C. L. AAV2-mediated transduction of the mouse retina after optic nerve injury. Invest Ophthalmol Vis Sci. 58 (14), 6091-6104 (2017).
- Cao, X., Yung, J., Mak, H., Leung, C. K. S. Factors governing the transduction efficiency of adeno-associated virus in the retinal ganglion cells following intravitreal injection. Gene Ther. 26 (3-4), 109-120 (2019).
- Vandenberghe, L. H., et al. Dosage thresholds for AAV2 and AAV8 photoreceptor gene therapy in monkey. Sci Transl Med. 3 (88), 88ra54(2011).
- Gao, Y., et al. Develop an efficient and specific AAV-based labeling system for Muller glia in mice. Sci Rep. 12 (1), 22410(2022).
- Nieuwenhuis, B., et al. Improving adeno-associated viral (AAV) vector-mediated transgene expression in retinal ganglion cells: Comparison of five promoters. Gene Ther. 30 (6), 503-519 (2023).
- Kawabata, H., et al. Improving cell-specific recombination using AAV vectors in the murine CNS by capsid and expression cassette optimization. Mol Ther Methods Clin Dev. 32 (1), 101185(2024).
- Smith, C. A., Chauhan, B. C. In vivo imaging of adeno-associated viral vector labelled retinal ganglion cells. Sci Rep. 8 (1), 1490(2018).
- Smith, C. A., Chauhan, B. C. Imaging retinal ganglion cells: Enabling experimental technology for clinical application. Prog Retin Eye Res. 44, 1-14 (2015).
- Leung, C. K. S., et al. Longitudinal profile of retinal ganglion cell damage after optic nerve crush with blue-light confocal scanning laser ophthalmoscopy. Invest Ophthalmol Vis Sci. 49 (11), 4898(2008).
- Leung, C. K. S., et al. In vivo imaging of murine retinal ganglion cells. J Neurosci Methods. 168 (2), 475-478 (2008).
- Mak, H. K., Ng, S. H., Ren, T., Ye, C., Leung, C. K. S. Impact of PTEN/SOCS3 deletion on amelioration of dendritic shrinkage of retinal ganglion cells after optic nerve injury. Exp Eye Res. 192, 107938(2020).
- Kokona, D., Jovanovic, J., Ebneter, A., Zinkernagel, M. S. In Vivo imaging of Cx3CR1GFP/GFP reporter mice with spectral-domain optical coherence tomography and scanning laser ophthalmoscopy. J Vis Exp. (129), e55984(2017).
- Abbott, C. J., et al. Imaging axonal transport in the rat visual pathway. Biomed Opt Express. 4 (2), 364-386 (2013).
- Levkovitch-Verbin, H., et al. RGC death in mice after optic nerve crush injury: Oxidative stress and neuroprotection. Invest Ophthalmol Vis Sci. 41 (13), 4169-4174 (2000).
- LaRocca, F., et al. Optimization of confocal scanning laser ophthalmoscope design. J Biomed Opt. 18 (7), 076015(2013).
- Vienola, K. V., et al. Real-time eye motion compensation for OCT imaging with tracking SLO. Biomed Opt Express. 3 (11), 2950-2963 (2012).
- Geng, Y., et al. Optical properties of the mouse eye. Biomed Opt Express. 2 (4), 717-738 (2011).
- Bosco, A., Romero, C. O., Ambati, B. K., Vetter, M. L. In vivo dynamics of retinal microglial activation during neurodegeneration: Confocal ophthalmoscopic imaging and cell morphometry in mouse glaucoma. J Vis Exp. (99), e52731(2015).
- Joseph, A., Power, D., Schallek, J. Imaging the dynamics of individual processes of microglia in the living retina in vivo. Biomed Opt Express. 12 (10), 6157-6170 (2021).
- Chaffiol, A., et al. A new promoter allows optogenetic vision restoration with enhanced sensitivity in macaque retina. Mol Ther. 25 (11), 2546-2560 (2017).
- Li, L., et al. Longitudinal in vivo Ca2+ imaging reveals dynamic activity changes of diseased retinal ganglion cells at the single-cell level. Proc Natl Acad Sci U S A. 119 (48), e2206829119(2022).
- Bille, J. F. Optical Coherence Tomography (OCT): Principle and technical realization. High-resolution imaging in microscopy and ophthalmology: New Frontiers in Biomedical Optics. , Springer International Publishing. 59-85 (2019).
- Spaide, R. F., et al. Lateral resolution of a commercial optical coherence tomography instrument. Transl Vis Sci Technol. 11 (1), 28(2022).
- Franze, K., et al. Muller cells are living optical fibers in the vertebrate retina. Proc Natl Acad Sci U S A. 104 (20), 8287-8292 (2007).
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar