Dit protocol beschrijft het ontwerp, de creatie en de toepassing van rapamycine-gereguleerde fosfatasen. Deze methode zorgt voor een hoge specificiteit en strakke temporele controle van de activering van fosfatase in levende cellen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Ontwikkeling en toepassing van rapamycine-gereguleerde tyrosinefosfatasen
In dit artikel
Samenvatting
Samenvatting
Tyrosinefosfatasen zijn een belangrijke familie van enzymen die kritieke fysiologische functies reguleren. Ze zijn vaak ontregeld bij ziekten bij de mens, waardoor ze belangrijke doelwitten zijn van biologische studies. Instrumenten die de regulatie van de fosfatase-activiteit mogelijk maken, zijn van groot belang bij de ontleding van hun functie. Traditionele benaderingen, zoals overexpressie van constitutief actieve of dominante negatieve mutanten, of downregulatie met behulp van siRNA, missen temporele controle. Fosfataseremmers hebben vaak een slechte specificiteit en stellen onderzoekers alleen in staat om te bepalen welke processen worden beïnvloed door de remming van de fosfatase.
We ontwikkelden een chemogenetische benadering, het Rapamycine-gereguleerde (RapR) systeem, dat allosterische regulatie van een fosfatase-katalytisch domein mogelijk maakt dat een strakke temporele controle van de fosfatase-activering mogelijk maakt. Het RapR-systeem bestaat uit een iFKBP-domein dat in een allosterische plaats in de fosfatase wordt ingevoegd. De intrinsieke structurele dynamiek van het RapR-domein verstoort het katalytische domein, wat leidt tot de inactivatie van het enzym. De toevoeging van rapamycine bemiddelt bij de vorming van een complex tussen iFKBP en een gezamenlijk tot expressie gebracht FRB-eiwit, dat iFKBP stabiliseert en de activiteit in het katalytische domein van de fosfatase herstelt.
Dit systeem zorgt voor een hoge specificiteit en strakke temporele controle van de activering van fosfatase in levende cellen. De unieke mogelijkheden van dit systeem maken de identificatie van voorbijgaande gebeurtenissen en het ondervragen van individuele signaalroutes stroomafwaarts van een fosfatase mogelijk. Dit protocol beschrijft richtlijnen voor de ontwikkeling van een RapR-fosfatase, de biochemische karakterisering ervan en de analyse van de effecten ervan op stroomafwaartse signalering en regulatie van celmorfodynamiek. Het biedt ook een gedetailleerde beschrijving van een strategie voor eiwitengineering, in vitro-assays die de fosfatase-activiteit analyseren en live celbeeldvormingsexperimenten die veranderingen in de celmorfologie identificeren.
Inleiding
Eiwittyrosinefosfatasen zijn een cruciale familie van eiwitten die betrokken zijn bij een overvloed aan celsignaleringsgebeurtenissen. Het is aangetoond dat ze een sleutelrol spelen bij de regulatie van celproliferatie, migratie en apoptose 1,2,3. Bijgevolg leidt de ontregeling van eiwittyrosinefosfatasen tot een verscheidenheid aan slopende ziekten en aandoeningen 4,5,6,7. Het bestuderen van de fysiologische functie van tyrosinefosfatasen en hun rol in de ontwikkeling van deze pathologieën is van oudsher belemmerd door een gebrek aan hulpmiddelen die nodig zijn om de fijne kneepjes van fosfatasesignalering te onderzoeken8.
Traditioneel worden fosfatasen bestudeerd met behulp van methoden die niet de gewenste specificiteit hebben en/of geen temporele controle van hun activiteit bieden. Deze kritische beperkingen van de beschikbare instrumenten maken het een uitdaging om specifieke rollen van fosfatasen in signaalroutes te ontleden. Overexpressie van constitutief actieve en dominante negatieve mutanten of neerwaartse regulatie van de expressie van de fosfatase zorgen voor specificiteit, maar missen temporele controle en kunnen vaak compensatiemechanismen in gang zetten die de ware functie van het enzym maskeren.
Farmacologische remmers zorgen voor de temporele regulatie van fosfatasen. Veel fosfataseremmers zijn echter notoir niet-specifiek vanwege de goed geconserveerde samenstelling van de actieve plaats in tyrosinefosfatasen9. Bovendien vertonen remmers die zich op de katalytische plaats richten vanwege ontwerpbeperkingen een slechte permeabiliteit van het celmembraan10. Een andere beperking van remmers is dat ze alleen het onderzoek naar de effecten van fosfatase-inactivatie mogelijk maken11. Er is dus nood aan instrumenten die een specifieke, temporeel regelbare activatie van fosfatasen mogelijk maken. Deze tools zullen onderzoekers in staat stellen om de directe effecten van fosfatase-activering te identificeren, door ze te scheiden van meerdere parallelle signaalcascades die vaak worden geactiveerd door biologische stimuli. Belangrijk is dat een strakke temporele controle van de activiteit de identificatie van voorbijgaande gebeurtenissen die door een fosfatase worden geïnduceerd, mogelijk maakt en de effecten van acute en langdurige fosfatase-activiteit scheidt. De combinatie van temporele regulatie met mutatieanalyse zal een gedetailleerde ontleding van specifieke rollen van individuele domeinen van de fosfatase mogelijk maken en de stroomafwaartse signalering ervan ondervragen12.
Om het gebrek aan gewenste mogelijkheden in de bestaande tools aan te pakken, heeft de Karginov-groep het Rapamycine Regulated (RapR) -systeem 13,14,15 ontwikkeld. Het RapR-systeem maakt gebruik van een speciaal ontwikkeld schakeldomein, iFKBP, dat allosterische regulatie van het eiwit van belang (POI) mogelijk maakt. De insertie van het iFKBP-domein op een positie die allosterisch gekoppeld is aan de katalytische plaats van de POI, maakt het vatbaar voor regulatie door rapamycine. Bij afwezigheid van rapamycine verstoort iFKBP de katalytische plaats als gevolg van de intrinsiek hoge structurele dynamiek van iFKBP en inactiveert zo de POI. De toevoeging van rapamycine induceert de interactie van iFKBP met het co-expressie eiwit FRB (Figuur 1). Dit zorgt voor stabilisatie van het switchdomein, waardoor de structuur en functie van het katalytische domein van de POI wordt hersteld. Als zodanig maakt de tool een specifieke en in de tijd regelbare activering van de POI mogelijk.
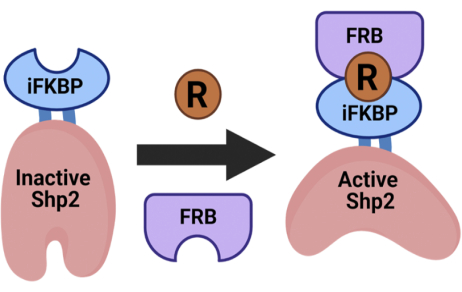
Figuur 1: Schema van het RapR-Shp2 rapamycine-gereguleerde systeem. RapR zorgt voor allosterische activering van het betreffende eiwit met de toevoeging van rapamycine. Dit cijfer is aangepast van Fauser et al.12. Afkortingen: iFKBP = invoegbaar FKBP12; FRB = FKBP-rapamycine-bindend domein; R = rapamycine; Shp2 = Src homologie-2 domein-bevattend eiwit tyrosinefosfatase. Klik hier om een grotere versie van deze figuur te bekijken.
De RapR-tool kan worden toegepast op verschillende eiwitfamilies. Het kan worden gebruikt om zowel eiwitkinasen als fosfatasen te reguleren12,14. Dit protocol zal zich richten op de toepassing van de RapR-tool om Shp2-fosfatase te beheersen. Shp2 is een alomtegenwoordig tot expressie gebracht eiwit tyrosinefosfatase dat betrokken is bij signaleringsprocessen zoals proliferatie, migratie, immunomodulatie en differentiatie 1,16,17,18. Ontregeling van Shp2 is in verband gebracht met een aantal solide kankers, myeloïde leukemie en ontwikkelingsstoornissen 5,7. Shp2 is echter het slachtoffer geworden van dezelfde tekortkomingen in de tool als hierboven beschreven. Om deze beperkingen tegen te gaan, werd RapR-Shp2, een specifiek en tijdelijk reguleerbaar Shp2-construct, ontwikkeld en gekarakteriseerd12.
Voorafgaand aan de ontwikkeling van RapR-Shp2 was bekend dat Shp2 betrokken was bij celmigratie 19,20,21. De specifieke rol ervan in de signalering die bij dit proces betrokken was, was echter onbekend. Het was ook onbekend op welke tijdschaal Shp2 de migratie van cellen reguleert en welke specifieke morfodynamische veranderingen het induceert op verschillende tijdstippen van zijn activering. Verder was het onduidelijk of acute en langdurige activering van Shp2 verschillende effecten zal veroorzaken. Met behulp van RapR-Shp2 werd vastgesteld dat acute activering van Shp2 voorbijgaande celverspreiding, een toename van uitsteeksels, celpolarisatie en migratie induceert. Specifieke routes stroomafwaarts van Shp2 die verschillende morfodynamische veranderingen reguleren, werden ook geïdentificeerd12. Dit protocol biedt details voor het ontwerp en de karakterisering van RapR-Shp2, die kunnen worden gebruikt om de ontwikkeling en toepassing van andere RapR-fosfatasen te begeleiden.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Ontwerp van RapR-fosfatasen
- Planning
OPMERKING: Met RapR-Shp2 als voorbeeld, beschrijft dit protocol de belangrijke stappen voor het maken van een rapamycine-gereguleerde tyrosinefosfatase. Het beschreven protocol is geoptimaliseerd voor Shp2 en er kunnen aanvullende aanpassingen nodig zijn om aan specifieke eigenschappen van individuele fosfatasen te voldoen.- Om ervoor te zorgen dat de katalytische activiteit van Shp2 uitsluitend wordt gecontroleerd door rapamycine en niet door endogene mechanismen, introduceert u een mutatie in de fosfatase om deze in een constitutief actieve conformatie te houden. Introduceer in het geval van Shp2 de D61A-mutatie.
OPMERKING: Als er geen activerende mutatie wordt geïntroduceerd voor een specifieke PTPase, dan zal de RapR-variant functioneren als een AND-gated systeem dat wordt gereguleerd door endogene signalen en rapamycine. - Identificeer iFKBP-insertieplaatsen in het katalytische domein van de fosfatase met behulp van de kristalstructuur om de selectie te sturen, zoals eerder beschreven13. Als er geen structuur beschikbaar is, voer dan de aminozuursequentie uit op uitlijning met het katalytische domein van Shp2-fosfatase om de insertieplaatsen te identificeren (Figuur 2A). Zorg ervoor dat de inbrengplaats zich in een flexibele lus bevindt die structureel is gekoppeld aan de katalytische pocket, maar weg van de pocket is geplaatst om sterische belemmering van de substraatbinding door iFKBP te voorkomen.
OPMERKING: Verdere details van het invoegen worden besproken in de Discussie. - Beschouw het type linkersequentie dat moet worden gebruikt tussen het ingevoegde iFKBP-domein en de fosfatase van belang. Het kiezen van de optimale linkersequentie is uiterst belangrijk voor het succes van de RapR-tool en wordt verder besproken in de discussie (Figuur 2B).
- Om ervoor te zorgen dat de katalytische activiteit van Shp2 uitsluitend wordt gecontroleerd door rapamycine en niet door endogene mechanismen, introduceert u een mutatie in de fosfatase om deze in een constitutief actieve conformatie te houden. Introduceer in het geval van Shp2 de D61A-mutatie.
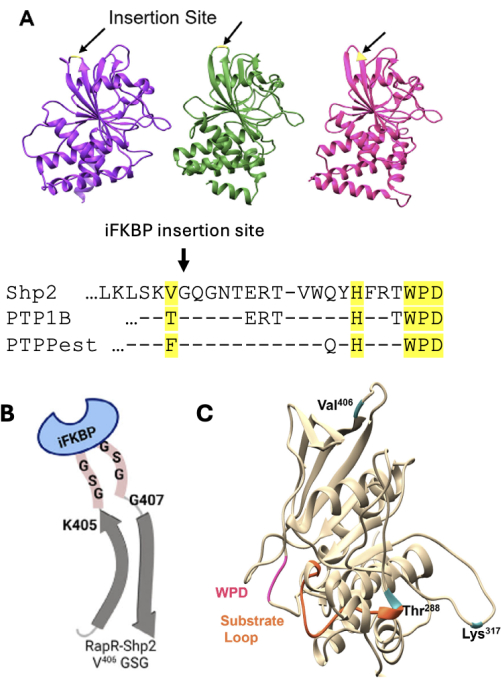
Figuur 2: Schema van overwegingen bij het ontwerpen van RapR-fosfatase. (A) Uitlijning van Shp2 (paars), PTP1B (groen) en PTP-PEST (roze) met de geconserveerde invoegplaatsen gemarkeerd. (B) Weergave van linker-insertie tussen Shp2 en iFKBP. (C) Fosfatasedomein van Shp2 in beige met invoegplaatsen aangegeven in blauw. Dit cijfer is aangepast van Fauser et al.12. Afkortingen: Shp2 = Src homologie-2 domein-bevattend eiwit tyrosinefosfatase; iFKBP = invoegbare FKBP12; PTP = eiwit tyrosinefosfatase; RapR = Rapamycine-gereguleerd. Klik hier om een grotere versie van deze figuur te bekijken.
2. Ontstaan van de RapR-fosfatase
- Invoeging van iFKBP in de betreffende fosfatase met behulp van gemodificeerde plaatsgerichte mutagenese
- Genereer een iFKBP-codering "megaprimer" via PCR.
- Ontwerp primers voor "megaprimer"-synthese die 20-25 nucleotiden bevatten die gloeien naar het 5' of 3' uiteinde van iFKPB, een linkersequentie die iFKPB verbindt met de fosfatase van belang, en 28-32 nucleotiden die overeenkomen met de insertieplaats (Figuur 3). Controleer of het resulterende product de iFKPB bevat, geflankeerd door fragmenten die voor en na de inbrengplaats in de betreffende fosfatase zijn gegloeid.
- Synthese de iFKBP-bevattende "megaprimer" via PCR (10 μL 5x polymerasebuffer, 1 μL 50 ng/μL sjabloon-DNA dat iFKBP bevat, 2 μL 10 mM dNTP, 0,5 μL van een 100 μM-voorraad van elke "megaprimer"-primer [vooruit en achteruit], 35 μL water, 1 μL DNA-polymerase). Splits deze PCR-reactie in 2 afzonderlijke reacties van 25 μL voordat u de PCR uitvoert. Voer de PCR-cyclus uit volgens de aanbevelingen van de fabrikant van DNA-polymerase of de volgende standaard PCR-cyclus: (i) 98 °C gedurende 2 min, (ii) 98 °C gedurende 30 s, (iii) 55-70 °C gedurende 30 s, (iv) 72 °C gedurende 30 s, (v) herhaal stap ii-iv 25x, (vi) 72 °C gedurende 2 min.
- Zuiver de "megaprimer" met behulp van agarosegelelektroforese. Laad de PCR-inhoud van de vorige stap in een 1% agarosegel en breng 120 V aan gedurende ongeveer 30 minuten. Zoek naar de 400 nucleotide-lange "megaprimer" in de gel, snijd het fragment weg en zuiver met behulp van een gelextractiekit (zie Tabel met materialen).
OPMERKING: Het protocol kan hier worden gepauzeerd.
- Gemodificeerde plaatsgerichte mutagenese
- Bereid de gemodificeerde plaatsgerichte mutagenesereactie voor met behulp van een plasmide dat het gen van de betreffende fosfatase als sjabloon bevat (5 μL 5x polymerasebuffer, 2 μL 50 ng/μL sjabloon, 2 μL 10 mM dNTP, 10 μL geëxtraheerde "megaprimer", 2,5 μL water, 2,5 μL DMSO, 1 μL DNA-polymerase).
OPMERKING: De toevoeging van DMSO aan het reactiemengsel verlaagt de gloeitemperatuur22. - Voer de volgende PCR-cyclus uit: eerste denaturatiestap bij 98 °C gedurende 3 min, gevolgd door 18 cycli van opeenvolgende incubatiestappen bij 98 °C gedurende 30 s, 65 °C gedurende 20 s, 60 °C gedurende 20 s, 55 °C gedurende 20 s, 50 °C gedurende 20 s, 72 °C gedurende 18 min. Voer de cyclus een nacht uit (cyclustijd is 7 uur). Zodra de cyclus is voltooid, bewaart u de PCR-reactie bij 4 °C.
OPMERKING: Het protocol kan hier worden gepauzeerd. - Voeg na voltooiing van de cyclus 1 μL DpnI-enzym toe en incubeer gedurende 1 uur bij 37 °C.
OPMERKING: DpnI zal het resterende sjabloon verteren, waardoor de opbrengst van het nieuw gesynthetiseerde product toeneemt. - Transformeer het verteerde product in DH5α competente cellen volgens de instructies van de fabrikant. Bekleed de transformatie op LB-agarplaten met het juiste antibioticum voor selectie (carbenicilline voor het pcDNA RapR-Shp2-construct). 's Nachts incuberen bij 37 °C. Zodra de kolonies zijn gegroeid, bewaart u de LB-platen maximaal 1 maand bij 4 °C.
OPMERKING: Het protocol kan hier worden gepauzeerd.
- Bereid de gemodificeerde plaatsgerichte mutagenesereactie voor met behulp van een plasmide dat het gen van de betreffende fosfatase als sjabloon bevat (5 μL 5x polymerasebuffer, 2 μL 50 ng/μL sjabloon, 2 μL 10 mM dNTP, 10 μL geëxtraheerde "megaprimer", 2,5 μL water, 2,5 μL DMSO, 1 μL DNA-polymerase).
- Genereer een iFKBP-codering "megaprimer" via PCR.
- Isolatie van het gewenste DNA-construct dat RapR-fosfatase bevat
- Voer een PCR-screening uit van bacteriekolonies23. Aangezien niet alle kolonies die op een LB-plaat worden gekweekt het gewenste plasmide bevatten, moet u ervoor zorgen dat u het plasmide-DNA isoleert voordat het wordt geïsoleerd.
OPMERKING: Gebruik primers voor het scherm die zullen gloeien naar de sjabloon en in het iFKBP-gen. De zeef kan worden gedaan met behulp van Taq polymerase mastermix (zie Tabel met materialen). - Zodra positieve kolonies zijn geïdentificeerd, inoculeert u één positieve kolonie in 3 ml LB-bouillon inclusief het juiste antibioticum, incubeert u en schudt u 's nachts bij 37 °C.
- Extraheer plasmide-DNA uit de vloeibare cultuur volgens de instructies van de fabrikant voor de plasmide-DNA-extractiekit (zie Materiaaltabel)
OPMERKING: Het wordt aanbevolen om de sequentie van het nieuw gecreëerde RapR PTPase-construct te bepalen voordat u doorgaat met in-vitro-evaluatie .
- Voer een PCR-screening uit van bacteriekolonies23. Aangezien niet alle kolonies die op een LB-plaat worden gekweekt het gewenste plasmide bevatten, moet u ervoor zorgen dat u het plasmide-DNA isoleert voordat het wordt geïsoleerd.
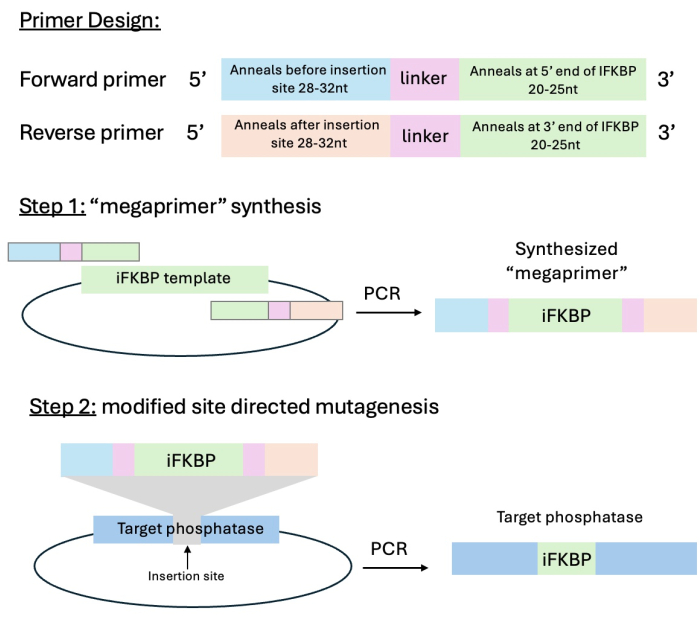
Figuur 3: Schema van het ontwerp van de primer en de gewijzigde strategie voor het klonen van plaatsgerichte mutagenese. Stap 1 is de synthese van de iFKBP bevattende "megaprimer" met "kleverige uiteinden" die uitgloeien naar de inbrengplaats van de betreffende fosfatase, en stap 2 is het inbrengen van de "megaprimer" in de fosfatase van belang. Dit cijfer is aangepast van Karginov et al.13. Afkorting: iFKBP = invoegbaar FKBP12. Klik hier om een grotere versie van deze figuur te bekijken.
3. Evaluatie van RapR-PTPase door middel van in vitro activiteitstest
OPMERKING: Dit protocol wordt gebruikt om de regulatie van de activiteit van gemanipuleerd RapR-PTPase te beoordelen. Hieronder wordt de analyse van immunoprecipiteerd Shp2 beschreven met behulp van een gefosforyleerd N-terminaal fragment van paxilline als substraat. Het kan nodig zijn een ander substraat te selecteren voor een specifiek PTPase dat van belang is.
- Dag 1
- Plaat 800.000 HEK293T cellen/putje in een weefselkweekplaat met 6 putjes in DMEM-media aangevuld met L-glutaminesupplement (eindconcentratie van 2 mM) en 10% FBS per volume. Zet een nacht in een incubator van 37 °C en 5% CO2 .
- Dag 2
- Zodra de cellen ~60-80% samenvloeien, transfecteer je ze volgens het protocol van de voorkeursfabrikant van de transfectieregent (zie Materiaaltabel).
- Voorbeeld van een transfectieprotocol: Voeg 1 μg plasmide-DNA (pcDNA-mCherry-FRB en pcDNA-flag-RapR-Shp2, elk) toe aan 200 μl serumvrije DMEM en 6 μl transfectiereagens en incubeer het mengsel gedurende 15 minuten bij kamertemperatuur. Voeg 100 μL transfectiemengsel toe per putje cellen. Neem monsters op die zijn getransfecteerd met constitutief actieve en dominante negatieve Shp2-constructen als controles. 's Nachts incuberen in een incubator van 37 °C en 5% CO2 .
- Zodra de cellen ~60-80% samenvloeien, transfecteer je ze volgens het protocol van de voorkeursfabrikant van de transfectieregent (zie Materiaaltabel).
- Dag 3
- Bereiding van Protein-G Sepharose
OPMERKING: Bereid gesneden pipetpunten voor voordat u Sepharose aanraakt. Snijpunten moeten worden gebruikt in elke stap waar Sepharose wordt gehanteerd. Sepharose moet in elke stap voorafgaand aan het pipetteren grondig worden geresuspendeerd.- Resuspendeer en neem de juiste hoeveelheid Protein-G Sepharose in een buisje van 1,5 ml. Gebruik voor elk putje in een plaat met 6 putjes 10 μL Protein-G Sepharose. Gebruik voor een volle plaat met 6 putjes 60 μL Sepharose.
- Was de sepharose met 1 ml Lysis Buffer (zie Materiaaltabel). Microcentrifugeer gedurende 1 minuut op 2.000 × g en verwijder voorzichtig de lysisbuffer. Herhaal 2x.
- Resuspendeer de sepharose in 380 μL lysisbuffer. Voeg BSA toe aan een eindconcentratie van 1 mg/ml en antilichaam (0,5 μl voor elk IP-monster, anti-vlagantilichaam [zie materiaaltabel]). Keer om op een rotator bij 4 °C gedurende 1,5 uur.
OPMERKING: De optimale hoeveelheid antilichaam moet experimenteel worden bepaald voor elk gebruikt antilichaam.
- Bereid cellen voor op immunoprecipitatie.
- Voeg een geschikte hoeveelheid rapamycine (1 mM stockoplossing in ethanol) toe tot een eindconcentratie van 1 μM of voeg hetzelfde volume ethanol (negatieve controle) toe aan de monsters. Incubeer gedurende 1 uur in een incubator van 37 °C en 5% CO2 .
- Leg de plaat met 6 putjes met cellen op ijs en was de cellen voorzichtig met 3 ml koude PBS. Aspireer de PBS en voeg 300 μL lysisbuffer toe (met 1 μM rapamycine voor het geactiveerde fosfatasemonster of een equivalent volume ethanol in het negatieve controlemonster) en schraap met een celschraper. Breng de monsters over in buisjes van 1,5 ml en microcentrifugeer gedurende 10 minuten bij 1.000 × g bij 4 °C.
- Breng 20 μl van het supernatans over in een nieuw buisje van 1,5 ml om te controleren op expressieniveaus. Voeg 20 μl 2x Laemmli-buffer met 5% β-mercaptoethanol toe aan elke buis om de expressie te controleren en te incuberen bij 95-100 °C gedurende 5 minuten. Gebruik het resterende supernatans voor de immunoprecipitatie in stap 3.3.3.3.
- Immunoprecipitatie van RapR-Shp2
- Was de Protein-G Sepharose uit stap 3.3.1.3. met 1 ml Lysis Buffer. Microcentrifugeer gedurende 1 minuut bij 2.000 × g bij 4 °C elke keer en zuig de lysisbuffer voorzichtig op. Herhaal deze stap 2x.
- Resuspendeer de sepharose met behulp van afgesneden tips in lysisbuffer (50 μl per monster, dus voor een plaat met 6 putjes, resuspendeer in 300 μl lysisbuffer). Pipette 50 μl van het gesuspendeerde sepharosemengsel in een apart nieuw buisje van 1,5 ml voor elk monster.
OPMERKING: Er zal geresuspendeerde sepharose in Lysis Buffer-oplossing overblijven als gevolg van het volume van de sepharose. - Voeg het resterende supernatans van de voorbereide cellen van stap 3.3.2.3 toe aan elk buisje sefarijs. Draai op 4 °C gedurende 1,5-2 uur.
- Bepaling van de fosfatase-activiteit
OPMERKING: Het Shp2-substraat moet worden bereid door gezuiverd N-terminaal fragment van paxilline te fosforyleren met behulp van constitutief actief Src-kinase volgens het eerder beschreven kinasereactieprotocol12.- Bereid tegen het einde van stap 3.3.3.3 de fosfo-paxillinoplossing voor. Voeg per monster fosfo-paxillineoplossing (eindconcentratie van 3 μg/ml) toe aan 40 μl totale imidazoolbuffer (zie materiaaltabel). Voeg rapamycine toe tot de eindconcentratie van 1 μM aan het aliquot fosfo-paxillineoplossing voor geactiveerde RapR-Shp2-monsters en een equivalent volume ethanol aan de oplossing voor niet-geactiveerde monsters.
- Stel de verwarmingsschudder in op 32 °C.
OPMERKING: Andere fosfatasen hebben mogelijk een andere temperatuur nodig voor een optimale activiteit. - Was Sepharose met monsters uit stap 3.3.3.3 2x met 0,5 ml Lysis Buffer (zie Materiaaltabel). Was de monsters 2x met 0,5 ml wasbuffer. Elke buffer moet ofwel rapamycine van 1 μM bevatten voor geactiveerde monsters of een equivalent volume ethanol voor niet-geactiveerde monsters. Verwijder zoveel mogelijk buffer na de laatste wasbeurt.
OPMERKING: Zodra deze stap is bereikt, kan het nuttig zijn om een pipet te gebruiken om langzaam en voorzichtig de laatste hoeveelheden buffer te verwijderen om er zeker van te zijn dat er geen van de Sepharose wordt opgezogen. Elke overgebleven buffer zal de concentratie van fosfo-paxilline beïnvloeden en leiden tot onnauwkeurige uitlezing. - Voeg 40 μl van het bereide fosfo-paxilline imidazoolbuffermengsel toe aan elk monster, met of zonder rapamycine (afhankelijk van het monster). Veeg heel voorzichtig om te mengen en plaats onmiddellijk in de verwarmingsshaker en incubeer gedurende 40 minuten bij 32 °C. Stel de verwarmingsshaker in op minimaal 1,000 tpm om ervoor te zorgen dat het monster volledig wordt geschud voor de duur van de incubatie.
- Stop de reactie door 40 μL 2x Laemmli Buffer toe te voegen aan elk monster. Incubeer de monsters bij 95-100 °C gedurende 5 minuten. Koel de monsters.
- Laad 15 μl van elk monster (inclusief de lysaatmonsters uit stap 3.3.2.3.) op een SDS-polyacrylamidegel met een gradiënt van 4-15% en voer een standaard western blot-protocol uit met behulp van PVDF-membranen.
- Dep met een anti-vlag-antilichaam om het RapR-Shp2-construct te detecteren, anti-mCherry om mCherry-FRB te detecteren en anti-pY118 of anti-pY31 paxilline om paxillinefosforylering te detecteren.
OPMERKING: De resulterende westelijke vlekken moeten er ongeveer zo uitzien als in figuur 4.
- Bereiding van Protein-G Sepharose
4. Analyse van RapR-Shp2 activiteit in levende cellen
OPMERKING: Dit protocol wordt gebruikt om het vermogen van RapR-Shp2 te bepalen om endogene substraten te defosforylaten en stroomafwaartse signalering te induceren. Andere RapR-PTPases vereisen analyse van hun specifieke substraten en routes.
- Dag 1
- Plaat 198.000 A431 cellen/putje in een weefselkweekplaat met 6 putjes in DMEM-media aangevuld met 10% FBS en L-glutamine (eindconcentratie van 2 mM). Zet een nacht in een incubator van 37 °C en 5% CO2 .
- Dag 2
- Infecteer cellen met adenovirale constructen die RapR-Shp2 en FRB tot expressie brengen door het adenovirus rechtstreeks toe te voegen aan de media die al in de schaal zitten. Laat het adenovirus een nacht op de cellen in een incubator van 37 °C en 5% CO2 . Gebruik cellen die besmet zijn met FRB alleen als negatieve controle.
OPMERKING: De hoeveelheden adenovirus moeten van geval tot geval worden bepaald, afhankelijk van de titer.
- Infecteer cellen met adenovirale constructen die RapR-Shp2 en FRB tot expressie brengen door het adenovirus rechtstreeks toe te voegen aan de media die al in de schaal zitten. Laat het adenovirus een nacht op de cellen in een incubator van 37 °C en 5% CO2 . Gebruik cellen die besmet zijn met FRB alleen als negatieve controle.
- Dag 3
- Verhonger A431-cellen door 4 uur voor het experiment te incuberen in DMEM met 0,5% FBS.
- Voeg rapamycine toe aan de cellen in een eindconcentratie van 1 μM of hetzelfde volume ethanol (negatieve controle) gedurende 2-4 uur.
OPMERKING: De incubatie kan anders zijn voor andere fosfatasen. - Leg de plaat met 6 putjes met cellen op ijs en was de cellen voorzichtig met 3 ml koude PBS. Zuig de PBS op, voeg 300 μL lysisbuffer toe (zie materiaaltabel) en schraap krachtig met een celschraper. Breng de monsters over in buisjes van 1,5 ml en microcentrifugeer gedurende 5 minuten bij 2.000 × g bij 4 °C.
- Breng 250 μl van elk monster over in een nieuw buisje van 1,5 ml. Voeg 250 μL 2x Laemmli-buffer met 5% β-mercaptoethanol toe en incubeer bij 95-100 °C gedurende 5 min.
- Laad 25 μL van elk monster op een SDS-PAGE-gel met een gradiënt van 4-15% en voer een standaard western blot-protocol uit met behulp van PVDF-membranen.
- Evalueer RapR-Shp2 gemedieerde defosforylering van EGFR en PLCγ met behulp van anti-pY992 EGFR en anti-pY783 PLCγ antilichamen. Beoordeel de stroomafwaartse activering van MAP-kinase Erk1/2 door de fosforylering ervan op de pT202/pY204-residuen te evalueren.
OPMERKING: De resulterende westelijke vlekken moeten er ongeveer zo uitzien als in figuur 5.
5. Analyse van morfodynamische veranderingen geïnduceerd door RapR-Shp2-activering in HeLa-cellen met behulp van live celbeeldvorming
OPMERKING: Dit protocol wordt gebruikt om het effect van RapR-Shp2-activering op de vorming van celuitsteeksels, celverspreiding en migratie te bepalen.
- Dag 1
- Plaat 700.000 HeLa-cellen in een celkweekschaaltje van 35 mm en plaats ze in een incubator van 37 °C en 5% CO2 . Laat de cellen zich aan de schaal hechten (~2-3 uur).
- Transfecteer de cellen volgens het protocol van de fabrikant van de voorkeur voor transfectiereagens (zie Materiaaltabel).
- Voorbeeld transfectieprotocol: Voeg 0,5 μg DNA (pcDNA-mCherry-FRB en pcDNA-Venus-RapR-Shp2 plasmiden, elk) toe aan 100 μL serumvrije DMEM en 6 μL transfectiereagens. Incubeer bij kamertemperatuur gedurende 15 min. Voeg het transfectiemengsel toe aan de cellen en incubeer een nacht in een incubator van 37 °C en 5% CO2 . Gebruik cellen getransfecteerd met pcDNA-mCherry-FRB alleen als negatieve controle.
- Smeer een live imaging #1.5 25 mm rond glazen dekglaasje in met fibronectine (5 mg/L) door gedurende 1 uur bij 37 °C te incuberen.
- Dag 2
- Was het gecoate glazen dekglaasje met PBS.
- Plaat de getransfecteerde HeLa-cellen op de gecoate glazen dekglaasje in DMEM-media aangevuld met 10% FBS en L-glutamine (eindconcentratie van 2 mM) om 30% confluentie te bereiken 4 uur voorafgaand aan de beeldvorming.
- Twee uur na het plateren schakelt u het medium in de plaat voorzichtig over naar voorverwarmd serumvrij Leibovitz L-15-media gedurende 2 uur.
- Kleuring de cellen met CellMask Deep Red plasmamembraan kleuring volgens het protocol van de fabrikant.
- Plaats het dekglaasje in een schone beeldvormingscelkamer (zie Tabel met materialen). Voeg 1 ml voorverwarmd L-15 media toe en bedek met 1 ml voorverwarmde minerale olie om verdamping te voorkomen. Houd de kamer op 37 °C tot de beeldvorming.
- Beeld de cellen af bij 37 °C met behulp van een verwarmde fase.
- Selecteer de juiste kanalen voor beeldvorming van het RapR-construct en CellMask voor epifluorescentiebeeldvorming. Om dit protocol te volgen, gebruikt u het 40x-objectief waarnaar wordt verwezen (zie Materiaaltabel) en de volgende filtersets: 514/10 excitatie- en 540/21 emissiefilters voor Venus-RapR-Shp2-beeldvorming, 561/10 excitatie- en 595/40-emissiefilters voor mCherry-FRB-beeldvorming, en 640/20 excitatie- en 655LP-emissiefilters voor CellMask Deep Red-beeldvorming. Gebruik een multiband polychroïsche spiegel voor alle fluorescerende kanalen (zie Tabel met materialen).
- Maak elke 2 minuten foto's gedurende 4-4,5 uur.
OPMERKING: Snellere morfodynamische veranderingen vereisen frequentere acquisitie. - Voeg na 1 uur beeldvorming rapamycine toe aan een eindconcentratie van 1 μM om RapR-Shp2 te stimuleren.
6. Analyse van het beeld
OPMERKING: Dit protocol beschrijft het maken van celmaskers op basis van . TIF-stapelbestanden die zijn verzameld uit live beeldvormingsexperimenten. Vervolgens wordt beschreven hoe u een macro in ImageJ kunt maken om de maskers te analyseren, wat zal resulteren in een spreadsheet met het celgebied dat vervolgens wordt geanalyseerd op veranderingen in de loop van de tijd. Ten slotte zal de protrusieve en intrekkingsactiviteit van cellen worden geanalyseerd met behulp van Metamorph.
- Genereer een binair masker van CellMask-afbeeldingen met behulp van de MovThresh-functie van CellGeo-softwarepakket24.
- Kopieer de map MovThresh naar de map voor afbeeldingsanalyse.
- Kopieer de afbeeldingen van het CellMask- of andere membraanmarkeringskanaal naar de map MovThresh.
- Als er meerdere cellen op één positie zijn afgebeeld, snijdt u de afbeeldingen bij om bestanden te genereren die slechts één cel bevatten voordat u het masker in MatLab maakt.
- Zorg ervoor dat de map correct is ingesteld op de map MovThresh in MatLab.
- Voer MovThresh uit.
- Importeer afbeeldingsstapels één voor één.
- Selecteer Afgevlakte curve en voer vervolgens Rethreshold uit.
- Sla op als Mask_Image nummer in een nieuwe map met het label Maskers.
- Zodra alle afbeeldingsstapels zijn geconverteerd naar maskers, opent u de afbeeldingsstapels in de ImageJ-software25.
- Analyse van celgebieden in ImageJ
- Open alle stapels Maskerafbeeldingen in ImageJ.
- Pas de ingestelde afmetingen aan het gebied aan.
- Klik op Plug-ins | Macro's | Record.
- Klik op Verwerken | Binair | Binair maken.
- Selecteer de standaardoptie .
OPMERKING: Klik niet op iets extra's tijdens het opnemen van de macro. Als er extra stappen zijn opgenomen, wordt aanbevolen om opnieuw te starten vanaf stap 6.9.1.3.
- Selecteer de standaardoptie .
- Klik op Analyseren | Analyseer deeltjes.
- Schakel alle vakjes uit, behalve Samenvatting.
- Voltooi de opname en klik op Maak de macro maken.
- Druk op Uitvoeren voor elke afbeeldingsstapel nadat u deze hebt geselecteerd en sla de resultatentabel voor elke afbeeldingsstapel op. De standaardoptie wordt opgeslagen als een csv-bestand.
- Sla de macro op en hergebruik deze voor toekomstige analyses (optioneel).
- Gebiedsgegevens verwerken in een spreadsheet
- Gemiddeld voor elke geanalyseerde cel het gemiddelde van de oppervlakte van de cel van foto's die zijn gemaakt vóór activering met rapamycine.
- Deel alle oppervlaktewaarden door de gemiddelde oppervlakte van de cel voorafgaand aan de toevoeging van rapamycine.
- Bereken de gemiddelde waarde voor elk tijdstip voor alle afgebeelde cellen en bepaal de 90%-betrouwbaarheidsintervallen. Plot de gegevens.
- Analyse van uitsteekselactiviteit van cellen
- Kopieer de ProActive-map naar de map voor beeldanalyse.
- Kopieer de gemaskeerde afbeeldingsstapels van MovThresh naar de nieuw gemaakte ProActive-map.
- Open MatLab en stel de directory in op de ProActive-map.
- Voer ProActive uit.
- Importeer de stapelbestanden van de gemaskeerde celafbeeldingen in de ProActive GUI.
- Definieer het type activiteit. Analyse van uitsteeksels zal gegevens over het gebied winnen ; Analyse van intrekkingsactiviteiten genereert gegevens over het gebied dat verloren is gegaan ; en de totale activiteit genereert gegevens over de algehele gebiedsverandering (zowel verloren als gewonnen).
- Stel het gebied in om normalisatie te definiëren.
- Vloeiende curve met behulp van de voorgestelde drempelwaarden of met behulp van het gemiddelde om elk tijdstip opnieuw te drempelen. Hiermee wordt het gemiddelde genomen van de drempels over een specifiek venster, waardoor inconsistenties in de drempels tussen tijdstippen worden geminimaliseerd.
- Klik op Bestand | Opslaan als | Resultaten (.mat)
- Als u alle drie de typen gebiedsactiviteit verwerkt, geeft u de verwerkte gegevensbestanden de volgende naam: ProResultData #, RetResultData # of ResultData #.
OPMERKING: Voeg de spatie voor het nummer toe en nummer de gegevens vanaf 1.
- Als u alle drie de typen gebiedsactiviteit verwerkt, geeft u de verwerkte gegevensbestanden de volgende naam: ProResultData #, RetResultData # of ResultData #.
- Herhaal vanaf stap 6.9.3.6. voor alle gemaskeerde afbeeldingsstapels die zijn geïmporteerd.
- Zodra alle cellen zijn verwerkt, sluit u de ProActive GUI.
- Open DataToFileTotalArea in de Matlab-editor om "ResultData"-bestanden met totale activiteit te verwerken.
- Wijzig het aantal cellen dat overeenkomt met het aantal resultaatbestanden dat is gegenereerd. Als er 7 cellen zijn verwerkt in de stappen 6.9.3.5–6.9.3.10, zorg er dan voor dat de eerste drie regels van het script als volgt zijn:
filename='Resultaat Gegevens ';
cellen=1:7;
vertraging=1; - Druk op Uitvoeren en herhaal dit voor DataToFileProtArea en DataToFileRetArea om respectievelijk uitsteeksels en intrekbare gegevens te verwerken. Deze analyse levert drie tekstbestanden op: "AllCells.txt", "AllCellsPro.txt" en "AllCellsRet.txt"
- Open de .txt bestanden in een spreadsheet en normaliseer zoals in paragraaf 6.9.2. Bereken de gemiddelde waarde voor elk tijdstip voor alle afgebeelde cellen en bepaal 90% betrouwbaarheidsintervallen. Plot de gegevens.
OPMERKING: De resulterende grafieken van de bovenstaande stappen moeten er ongeveer zo uitzien als in afbeelding 6.
- Analyse van celgebieden in ImageJ
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Figuur 4 toont de resultaten die kunnen worden verwacht van de op paxilline gebaseerde fosfatase-activiteitstest. In dit experiment werd constitutief actieve en dominante negatieve Shp2-fosfatase-activiteit vergeleken met die van actief en inactief RapR-Shp2 met fosfo-paxillin als uitlezing. De Shp2-constructen werden immunoprecipiteerd en onderworpen aan de activiteitstest zoals beschreven in het protocol. De fosfo-paxilline-uitlezingen voor constitutief ac...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Dit protocol biedt gedetailleerde stappen voor de ontwikkeling, karakterisering en toepassing van chemogenetisch gecontroleerde fosfatasen. De RapR-Shp2-tool is gebaseerd op een rapamycine-gereguleerde schakelaar die in het Shp2-katalytische domein is ingevoegd. De kracht van deze tool is de specificiteit en strakke temporele controle van de fosfatase-activiteit. De tool is toepasbaar op andere fosfatasen en maakt, in combinatie met de eerder beschreven RapR-TAP-technologie, de reconstru...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten bekend te maken.
Dankbetuigingen
De auteurs erkennen Dr. Jordan Fauser voor haar bijdrage aan de ontwikkeling van RapR-Shp2 en bijbehorende protocollen. Het werk werd ondersteund door een 5R35GM145318-prijs van NIGMS, een R33CA258012-prijs van NCI en een P01HL151327-prijs van NHLBI.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| #1.5 Glass Coverslips 25 mm Round | Warner Instruments | 64-0715 | |
| 1.5 mL Tubes | USA Scientific | cc7682-3394 | |
| 2x Laemmli Buffer | Voor 500 mL: 5.18 g Tris-HCL, 131.5 mL glycerol, 52.5 mL 20% SDS, 0.5 g bromofenolblauw, pH 6.8 | ||
| 4-20% Mini-PROTEAN TGX Precast Gel | Biorad | 4561096 | |
| 5x Phusion Plus Buffer | Thermo Scientific | F538L | |
| A431 Cells | ATCC | CRL-1555 | |
| Agarsose | GoldBiotech | A-201 | |
| Attofluor Cell Chamber | invitrogen | A7816 | |
| Benchmark Fetal Bovine Serum (FBS) | Gemini Bio-products | 100-106 | Heat geïnactiveerd Triple 0.1 µm sterieel gefilterd |
| Brig 35,30 w/v % | Acros | 329581000 | |
| BSA | GoldBiotech | A-420 | |
| CellGeo | N/A | N/A | Gepubliceerd in 10.1083/jcb.201306067 |
| CellMask Deep Red plasma membrane dye | invitrogen | c10046 | |
| Colony Screen MasterMix | Genesee | 42-138 | |
| DH5a competent cells | NEB | C2987H | |
| DMEM | Corning | 15-013-CV | |
| DMSO | Thermo Scientific | F-515 | |
| DNA Ladder | GoldBio | D010-500 | |
| dNTPs | NEB | N04475 | |
| DpnI Enzyme | NEB | R01765 | |
| DTT | GoldBio | DTT10 | DL-Dithiothreitol, Clelands Reagents |
| EGTA | Acros | 409910250 | |
| Fibronectin from bovine plasma | Sigma | F1141 | |
| FuGENE(R) 6 Transfection Reagent | Promega | E2692 | transfectiereagens |
| Gel extraction Kit | Thermo Scientific | K0692 | GeneJET Gel Extraction Kit |
| Gel Green Nucleic Acid Stain | GoldBio | G-740-500 | |
| Gel Loading Dye Purple 6x | NEB | B7024A | |
| Glutamax | Gibco | 35050-061 | GlutaMAX-l (100x) 100 mL |
| HEK 293T Cells | ATCC | CRL-11268 | |
| HeLa Cells | ATCC | CRM-CCL-2 | |
| HEPES | Fischer | BP310-500 | |
| ImageJ Processing Software | N/A | N/A | |
| Igepal CA-630 (NP40) | Sigma | I3021 | |
| Imidazole Buffer | 25 mM Imidazol pH 7.2, 2.5 mM EDTA, 50 mM NaCl, 5 mM DTT | ||
| KCl | Sigma | P-4504 | |
| L-15 1x | Corning | 10-045-CV | |
| LB Agar | Fisher | BP1425-2 | |
| Lysis Buffer | 20 mM Hepes-KOH, pH 7.8, 50 mM KCl, 1 mM EGTA, 1% NP40 | ||
| MATLAB | MathWorks | N/A | R 2022b update werd gebruikt om CellGeo-functies uit te voeren |
| Metamorph Microscopy Automation and Image Analysis Software | N/A | N/A | |
| MgCl2 | Fisher Chemical | M33-500 | |
| Mineral Oil | Sigma | M5310 | |
| MiniPrep Kit | Gene Choice | 96-308 | |
| Mini-PROTEAN TGX Precast Gels 12 well | Bio-Rad | 4561085 | |
| Molecular Biology Grade Water | Corning | 46-000-CV | |
| Multiband Polychroic Mirror | Chroma Technology | 89903BS | |
| NaCl | Fisher Chemical | S271-3 | |
| Olympus UPlanSAPO 40x objectief | Olympus | N/A | |
| PBS zonder Ca en Mg | Corning | 21-031-CV | |
| PCR Tubes | labForce | 1149Z65 | 0.2 mL 8-Strip Tubes and Caps, Rigid Strip Individually Attached Dome Caps |
| Phusion Plus DNA Polymerase | Thermo Scientific | F630S | |
| Primers | IDT | ||
| Protein-G Sepharose | Millipore | 16-266 | |
| PVDF Membranes | BioRad | 1620219 | Immun-Blot PVDF/Filter Paper Sandwiches |
| Rapamycin | Fisher | AAJ62473MF | |
| 0.25% Trypsin, 2.21 mM EDTA, 1x [-] natrium | Corning | 25-053-CI | |
| Tris-Acetaat-EDTA (TAE) 50x | Fischer | BP1332-1 | voor elektroforese |
| Wasbuffer | 20 mM Hepes-KOH, pH 7.8, 50 mM KCl, 100 mM NaCl, 1 mM EGTA, 1% NP40 | ||
| β-Mercaptoethanol | Fisher Chemical | O3446I-100 | |
| Antilichamen | |||
| Anti-EGFR Antilichaam | Cell Signaling | 2232 | |
| Anti-Erk 1/2 Antilichaam | Cell Signaling | 9102 | |
| Anti-Flag Antilichaam | Millipore-Sigma | F3165 | |
| Anti-GAPDH Antilichaam | invitrogen | AM4300 | |
| Anti-GFP Antilichaam | Clontech | 632380 | |
| Anti-mCherry Antilichaam | invitrogen | M11217 | |
| Anti-paxillin Antilichaam | Thermo Fischer | BDB612405 | |
| Anti-fosfo-EGFR Y992 Antilichaam | Cell Signaling | 2235 | |
| Anti-fosfo-Erk 1/2 T202/Y204 Antilichaam | Cell Signaling | 9101 | |
| Anti- |
Referenties
- Amin, A. R. M. R., et al. SHP-2 tyrosine phosphatase inhibits p73-dependent apoptosis and expression of a subset of p53 target genes induced by EGCG. Proc Natl Acad Sci U S A. 104 (13), 5419-5424 (2007).
- Niogret, C., et al. Shp-2 is critical for ERK and metabolic engagement downstream of IL-15 receptor in NK cells. Nat Commun. 10, 1-14 (2019).
- Wang, Y. -C., et al. Helicobacter pylori infection activates Src homology-2 domain-containing phosphatase 2 to suppress IFN-γ signaling. J Immunol. 193 (8), 4149-4158 (2014).
- Yu, M., et al. The tyrosine phosphatase SHP2 promotes proliferation and oxaliplatin resistance of colon cancer cells through AKT and ERK. Biochem Biophys Res Commun. 563, 1-7 (2021).
- Lauriol, J., et al. Developmental SHP2 dysfunction underlies cardiac hypertrophy in Noonan syndrome with multiple lentigines. J Clin Invest. 126 (8), 2989-3005 (2016).
- Tartaglia, M., et al. Mutations in PTPN11, encoding the protein tyrosine phosphatase SHP-2, cause Noonan syndrome. Nat Genet. 29, 465-468 (2001).
- Xu, R., et al. Overexpression of Shp2 tyrosine phosphatase is implicated in leukemogenesis in adult human leukemia. Blood. 106 (9), 3142-3149 (2005).
- Mustelin, T., et al. Protein tyrosine phosphatases. Front Biosci. 7 (4), d85-d142 (2002).
- Stanford, S. M., Bottini, N. Targeting tyrosine phosphatases: time to end the stigma. Trends Pharmacol Sci. 38 (6), 524-540 (2017).
- Guo, M., et al. Targeting phosphatases: From molecule design to clinical trials. Eur J Med Chem. 264, 116031(2024).
- Weiser, D. C., Shenolikar, S. Use of protein phosphatase inhibitors. Curr Protoc Mol Biol. 62, 1-18 (2003).
- Fauser, J., et al. Dissecting protein tyrosine phosphatase signaling by engineered chemogenetic control of its activity. J Cell Biol. 221 (8), e202111066(2022).
- Karginov, A. V., Hahn, K. M. Allosteric activation of kinases: design and application of RapR kinases. Curr Protoc Cell Biol. , Chapter 14, Unit 14.13 (2011).
- Karginov, A. V., Ding, F., Kota, P., Dokholyan, N. V., Hahn, K. M. Engineered allosteric activation of kinases in living cells. Nat Biotechnol. 28, 743-747 (2010).
- Dagliyan, O., Dokholyan, N. V., Hahn, K. M. Engineering proteins for allosteric control by light or ligands. Nat Protoc. 14, 1863-1883 (2019).
- Wang, Y., et al. Targeting the SHP2 phosphatase promotes vascular damage and inhibition of tumor growth. EMBO Mol Med. 13, e14089(2021).
- Wang, L., et al. SHP2 regulates the development of intestinal epithelium by modifying OSTERIX+ crypt stem cell self-renewal and proliferation. FASEB J. 35, e21106(2021).
- Zhang, E. E., Chapeau, E., Hagihara, K., Feng, G. -S. Neuronal Shp2 tyrosine phosphatase controls energy balance and metabolism. Proc Natl Acad Sci U S A. 101 (45), 16064-16069 (2004).
- Song, Y., Zhao, M., Zhang, H., Yu, B. Double-edged roles of protein tyrosine phosphatase SHP2 in cancer and its inhibitors in clinical trials. Pharmacol Ther. 230, 107966(2022).
- Hartman, Z. R., Schaller, M. D., Agazie, Y. M. The tyrosine phosphatase SHP2 regulates focal adhesion kinase to promote EGF-induced lamellipodia persistence and cell migration. Mol Cancer Res. 11 (6), 651-664 (2013).
- Yu, D. H., Qu, C. K., Henegariu, O., Lu, X., Feng, G. S. Protein-tyrosine phosphatase Shp-2 regulates cell spreading, migration, and focal adhesion. J Biol Chem. 273 (33), 21125-21131 (1998).
- Kramer, M. F., Coen, D. M. Enzymatic amplification of DNA by PCR: standard procedures and optimization. Curr Protoc Cell Biol. 10, 1-14 (2001).
- Sandhu, G. S., Precup, J. W., Kline, B. C. Rapid one-step characterization of recombinant vectors by direct analysis of transformed Escherichia coli colonies. Biotechniques. 7, 689-690 (1989).
- Tsygankov, D., et al. CellGeo: A computational platform for the analysis of shape changes in cells with complex geometries. J Cell Biol. 204 (3), 443-460 (2014).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9, 671-675 (2012).
- Ray, A. -M., Klomp, J. E., Collins, K. B., Karginov, A. V. Dissecting kinase effector signaling using the RapRTAP methodology. Kinase Signaling Networks. Tan, A. -C., Huang, P. H. , Springer. New York, NY. 21-33 (2017).
- Mercan, F., Bennett, A. M. Analysis of protein tyrosine phosphatases and substrates. Curr Protoc Mol Biol. 18, Unit 18.16 (2010).
- Karginov, A. V., et al. Light regulation of protein dimerization and kinase activity in living cells using photocaged rapamycin and engineered FKBP. J Am Chem Soc. 133 (3), 420-423 (2011).
- Karginov, A. V., Hahn, K. M., Deiters, A. Optochemical activation of kinase function in live cells. Methods Mol Biol. 1148, 31-43 (2014).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
