Hier presenteren we een protocol voor het transplanteren van cellen met een hoge ruimtelijke en temporele resolutie in zebravisembryo's en -larven in elk stadium tussen ten minste 1 en 7 dagen na de bevruchting.
Methodenartikel
Celtransplantatie met hoge resolutie bij embryonale en larvale zebravissen
In dit artikel
Samenvatting
Samenvatting
Ontwikkeling en regeneratie vinden plaats door een proces van genetisch gecodeerde spatiotemporeel dynamische cellulaire interacties. Het gebruik van celtransplantatie tussen dieren om het lot van cellen te volgen en om mismatches in de genetische, ruimtelijke of temporele eigenschappen van donor- en gastheercellen te induceren, is een krachtig middel om de aard van deze interacties te onderzoeken. Organismen zoals kuikens en amfibieën hebben cruciale bijdragen geleverd aan ons begrip van respectievelijk ontwikkeling en regeneratie, grotendeels vanwege hun vatbaarheid voor transplantatie. De kracht van deze modellen is echter beperkt door een lage genetische traceerbaarheid. Evenzo hebben de belangrijkste genetische modelorganismen een lagere ontvankelijkheid voor transplantatie.
De zebravis is een belangrijk genetisch model voor ontwikkeling en regeneratie, en hoewel celtransplantatie gebruikelijk is bij zebravissen, is het over het algemeen beperkt tot de overdracht van ongedifferentieerde cellen in de vroege stadia van ontwikkeling van blastula en gastrula. In dit artikel presenteren we een eenvoudige en robuuste methode die het transplantatievenster van zebravissen verlengt tot elk embryonaal of larvale stadium tussen ten minste 1 en 7 dagen na de bevruchting. De precisie van deze aanpak maakt de transplantatie van slechts één cel mogelijk met een bijna perfecte ruimtelijke en temporele resolutie bij zowel donor- als gastdieren. Hoewel we hier de transplantatie van embryonale en larvale neuronen voor de studie van respectievelijk zenuwontwikkeling en regeneratie belichten, is deze benadering van toepassing op een breed scala aan voorloper- en gedifferentieerde celtypen en onderzoeksvragen.
Inleiding
Celtransplantatie heeft een lange en legendarische geschiedenis als een fundamentele techniek in de ontwikkelingsbiologie. Rond de eeuwwisseling van de 20eeeuw veranderden benaderingen die fysieke manipulaties gebruikten om het ontwikkelingsproces te verstoren, inclusief transplantatie, de embryologie van een observationele wetenschap in een experimentele 1,2. In een baanbrekend experiment transplanteerden Hans Spemann en Hilde Mangold ectopisch de dorsale blastopore lip van een salamanderembryo aan de andere kant van een gastheerembryo, waardoor het nabijgelegen weefsel een secundaire lichaamsas3 vormde. Dit experiment toonde aan dat cellen andere cellen ertoe konden aanzetten bepaalde lotgevallen aan te nemen, en vervolgens ontwikkelde transplantatie zich als een krachtige methode voor het ondervragen van kritische vragen in de ontwikkelingsbiologie met betrekking tot competentie en bepaling van het lot van cellen, celafstamming, inductief vermogen, plasticiteit en stamcelpotentie 1,4,5.
Recentere wetenschappelijke ontwikkelingen hebben de kracht van de transplantatiebenadering vergroot. In 1969 maakte de ontdekking van Nicole Le Douarin dat nucleolaire kleuring soorten van oorsprong kon onderscheiden in kwartel-kuikenchimaera's, het mogelijk om getransplanteerde cellen en hun nageslacht te volgen6. Dit concept werd later versterkt door de komst van transgene fluorescerende markers en geavanceerde beeldvormingstechnieken5, en is gebruikt om het lot van cellen te volgen 6,7, stamcellen en hun potentie te identificeren 8,9 en celbewegingen te volgen tijdens de ontwikkeling van de hersenen10. Bovendien vergemakkelijkte de opkomst van moleculaire genetica transplantatie tussen gastheren en donoren van verschillende genotypen, ter ondersteuning van nauwkeurige ontleding van autonome en niet-autonome functies van ontwikkelingsfactoren11.
Transplantatie heeft ook een belangrijke bijdrage geleverd aan de studie van regeneratie, met name in organismen met een sterk regeneratief vermogen zoals planarians en axolotl, door de cellulaire identiteiten en interacties op te helderen die de groei en patronen van regenererende weefsels reguleren. Transplantatiestudies hebben principes van potentie12, ruimtelijke patronen13,14, bijdragen van specifieke weefsels15,16 en rollen voor cellulair geheugen12,17 bij regeneratie onthuld.
Zebravissen zijn een toonaangevend model voor gewervelde dieren voor de studie van ontwikkeling en regeneratie, ook in het zenuwstelsel, vanwege hun geconserveerde genetische programma's, hoge genetische traceerbaarheid, externe bevruchting, grote koppelingsgrootte en optische helderheid 18,19,20. Zebravissen zijn ook zeer vatbaar voor transplantatie in vroege ontwikkelingsstadia. De meest prominente benadering is de transplantatie van cellen van een gelabeld donorembryo naar een gastheerembryo in het blastula- of gastrula-stadium om mozaïekdieren te genereren. Cellen die tijdens het blastula-stadium worden getransplanteerd, zullen zich verspreiden en verspreiden als de epiboly begint, waardoor een mozaïek van gelabelde cellen en weefsels over het embryo wordt geproduceerd21. Gastrula-transplantaties maken het mogelijk om getransplanteerde cellen te targeten volgens een ruwe lotkaart, aangezien het schild zich vormt en de A-P- en D-V-assen kunnen worden bepaald21. De resulterende mozaïeken zijn waardevol geweest bij het bepalen of genen autonoom werken, het testen van celbinding en het in kaart brengen van weefselbeweging en celmigratie tijdens de ontwikkeling 5,11. Mozaïekzebravissen kunnen op verschillende manieren worden gegenereerd, waaronder elektroporatie22, recombinatie23 en F0-transgenese24 en mutagenese25, maar transplantatie biedt de grootste manipuleerbaarheid en precisie in ruimte, tijd en aantal en soorten cellen. De huidige staat van zebravistransplantatie is grotendeels beperkt tot voorlopercellen in vroege stadia, met enkele uitzonderingen, waaronder transplantatie van spinale motorneuronen26,27, retinale ganglioncellen28,29 en neurale topcellen in de eerste 10-30 uur na de bevruchting (hpf)30, en van hematopoëtische en tumorcellen in volwassen zebravissen 5,31. Het uitbreiden van transplantatiemethoden naar een breed scala aan leeftijden, differentiatiestadia en celtypen zou de kracht van deze benadering om inzicht te geven in ontwikkelings- en regeneratieve processen aanzienlijk vergroten.
Hier demonstreren we een flexibele en robuuste techniek voor celtransplantatie met hoge resolutie, effectief in zebravisembryo's en -larven tot ten minste 7 dagen na de bevruchting. Transgene gastheer- en donorvissen die fluorescerende eiwitten in doelweefsels tot expressie brengen, kunnen worden gebruikt om afzonderlijke cellen te extraheren en deze te transplanteren met een bijna perfecte ruimtelijke en temporele resolutie. De optische helderheid van zebravisembryo's en -larven maakt het mogelijk om de getransplanteerde cellen live in beeld te brengen terwijl het gastdier zich ontwikkelt of regenereert. Deze benadering is eerder gebruikt om te onderzoeken hoe spatiotemporele signaleringsdynamiek de neuronale identiteit en axongeleiding in het embryo beïnvloedt32, en om de logica te onderzoeken waarmee intrinsieke en extrinsieke factoren axongeleiding bevorderen tijdens regeneratie in larvale vissen33. Hoewel we ons hier richten op de transplantatie van gedifferentieerde neuronen, is onze methode breed toepasbaar op zowel ongedifferentieerde als gedifferentieerde celtypen in vele stadia en weefsels om vragen in ontwikkeling en regeneratie te beantwoorden.
Protocol
Alle aspecten van deze procedure die betrekking hebben op het werken met levende zebravissen zijn goedgekeurd door het Institutional Animal Care and Use Committee (IACUC) van de Universiteit van Minnesota en worden uitgevoerd in overeenstemming met de IACUC-richtlijnen.
1. Eenmalige eerste installatie van transplantatieapparatuur (Figuur 1)
- Monteer de transplantatiemicroscoop volgens de instructies van de fabrikant.
OPMERKING: Dit protocol maakt gebruik van een rechtopstaande fluorescentiemicroscoop met een 40x waterdipobjectief. - Monteer de grove en fijne micromanipulatoren en monteer ze aan de rechterkant van de microscoop volgens de instructies van de fabrikant.
OPMERKING: Omdat het belangrijk is dat de tafel niet in de Z-dimensie beweegt ten opzichte van de naald, gebruiken we een microscoop met een vaste tafel waarbij de micromanipulatoren op de microscoopbasis zijn gemonteerd. Als er geen microscoop met een vaste tafel beschikbaar is, kan de micromanipulator op de tafel worden gemonteerd. - Bevestig de micro-elektrodehouder aan het handvat van de elektrode en monteer deze op de micromanipulator.
- Sluit één kant van de driewegkraan aan op de pomp van de injectiespuit. Sluit de andere kant van de kraan aan op de polyethyleen slang met behulp van de chromatografieadapter.
- Sluit de andere kant van de polyethyleenslang aan op de micro-elektrodehouder met behulp van de chromatografieadapter.
- Vul de reservoirspuit van 10 ml met lichte minerale olie en monteer deze aan de bovenkant van de kraan.
- Vul de pomp van de injectiespuit en de slang (de hydraulische leiding) met minerale olie uit het reservoir en zorg ervoor dat alle luchtbellen worden verwijderd.
NOTITIE: Als het apparaat eenmaal is opgesteld, heeft het slechts af en toe onderhoud aan de hydraulische leiding nodig. De reservoirspuit kan indien nodig worden verwijderd en bijgevuld met minerale olie.
2. Bereid embryopushers voor.
- Knip een stuk vislijn van 2 cm af en steek het gedeeltelijk in het smalle uiteinde van een P1000-pipetpunt, zodat ~1,5 cm zichtbaar blijft. Zet de vislijn vast met een klein druppeltje secondelijm en laat drogen.
3. Bereid oplossingen voor.
- Om agarose met een laag smeltpunt opgelost in embryomedia (LMA) met een laag smeltpunt te bereiden, lost u agarose op in kokende embryomedia34. Maak aliquots van 1-2 ml in reageerbuisjes met ronde bodem en bewaar bij 4 °C.
- Bereid Ringer's oplossing met penicilline-streptomycine en tricaïne (RPT) door de volgende ingrediënten te combineren tot eindconcentraties van 116 mM NaCl, 2,9 mM KCl, 1,8 mM CaCl2, 5 mM HEPES pH 7,2, 50 eenheden/ml penicilline en 50 ug/ml streptomycine, roer tot het is opgelost en passeer door een vacuümfilter. Bewaren bij kamertemperatuur. Voeg tricaïne direct voor gebruik toe tot een concentratie van 0,02%.
4. Bereid donor- en gastdieren voor op transplantatie.
- Voed gastheer- en donordieren op met de juiste genotypen, en met cellen van belang die fluorescerend zijn geëtiketteerd, tot de gewenste leeftijd.
OPMERKING: Voor deze transplantaties gebruikten we Tg(isl1:EGFPCAAX)fh474 donordieren32 en Tg(isl1:mRFP)fh1 gastheerdieren35 en getransplanteerde neuronen van donor naar gastheer vagusmotorkernen bij 3dpf. - Bereid transplantatieglaasjes voor door op elk glasplaatje een rechthoekige omtrek van doorzichtige nagellak aan te brengen (Figuur 2A). De nagellak creëert een hydrofobe barrière om de RPT vast te houden die in stap 4.8 is toegevoegd. Laat volledig drogen voor gebruik.
OPMERKING: Dia's kunnen van tevoren worden voorbereid en voor onbepaalde tijd worden bewaard. - Smelt een LMA-aliquot door een tube LMA in een bekerglas van 50 ml met 40 ml water te doen en 1 minuut in de magnetron te zetten op 50% vermogen of tot het gesmolten is. Houd LMA op 40 °C in een droge badverwarmer.
- Dechorioneer gastheer- en donordieren met een tang (indien van toepassing) en verdoven ze door ze in kleine petrischaaltjes te plaatsen die gevuld zijn met RPT op kamertemperatuur. Wacht 5 minuten totdat de dieren volledig zijn verdoofd voordat u verder gaat.
- Monteer individuele donor- en gastdieren: Gebruik de Pasteur-pipet en pipetpomp om dieren over te brengen van RPT naar LMA en breng vervolgens dieren in kleine druppels LMA over op dia's binnen de omtrek van de nagellak. Minimaliseer de hoeveelheid RPT die in de LMA wordt overgebracht, zodat de LMA niet verdund raakt. Voordat de LMA stolt, gebruikt u een embryoduwer om de dieren te oriënteren, waarbij u ervoor zorgt dat elk dier wordt gemonteerd met de beoogde naaldinbrengplaats naar rechts en dat alle dieren verticaal zijn uitgelijnd (Figuur 2B); Laat de agarose volledig uitharden (~5 min) voordat u verder gaat.
OPMERKING: Omdat er veel cellen van elk donordier kunnen worden genomen, is het efficiënter om 2-4 gastdieren te monteren met één donor op elk objectglaasje. - Snijd met een scalpel een rechte verticale snede door alle agarosedruppels net rechts van de opgezette dieren (Figuur 2C). Verwijder losse agarose van het objectglaasje met laboratoriumdoekjes.
- Snijd met een scalpel partjes uit de agarose om de plaats van het inbrengen van de naald bloot te leggen (Figuur 2C). Verwijder losse agarose van het objectglaasje met laboratoriumdoekjes.
- Breng RPT aan op het objectglaasje totdat de agarosedruppels volledig zijn ondergedompeld (Figuur 2D).
- Monteer het voorbereide objectglaasje op de transplantatiemicroscoop. Breng het donordier in beeld onder de 40x doelstelling. Om dit te doen, laat u het objectief zakken totdat het het oppervlak van de media breekt en tilt u vervolgens het objectief op tot het gewenste brandpuntsvlak.
OPMERKING: Het vloeistofcontact met het objectief moet worden gehandhaafd totdat de transplantatie is voltooid (Figuur 3C). - Breng de fluorescerend gelabelde donorcel(len) van belang in beeld; Verplaats vervolgens de tafel naar links ter voorbereiding om de transplantatienaald te lokaliseren.
OPMERKING: Pas op dit punt de microscoop niet aan op de Y- of Z-as, om ervoor te zorgen dat u het donordier in sectie 5 gemakkelijk kunt terugvinden.
5. Bereid de transplantatienaald voor.
- Steek een micropipet in de micropipettrekker en trek aan een microinjectienaald.
OPMERKING: De vorm van de naald moet vergelijkbaar zijn met die welke worden gebruikt voor injecties met zebravisembryo's in het 1-cellige stadium of het klemmen van de pleister. We gebruiken een micropipettrekker met het volgende programma: DRUK = 500, WARMTE = helling + 80, TREK = 90, SNELHEID = 70, TIJD = 250 (zie Materiaaltabel), hoewel de juiste instellingen voor elke trekker waarschijnlijk empirisch moeten worden bepaald. - Lijn de punt van de naald uit met de verdelingen van de micrometer onder een snijscoop. Gebruik de micrometer als meetgeleider en gebruik een geslepen pincet om de naald te breken tot een boring die iets groter is dan de diameter van de cellen in kwestie (Figuur 3A). Zorg ervoor dat de breuk zo schoon mogelijk is, omdat gekartelde randen kunnen bijdragen aan verstopping van de naald. OPMERKING: Voor vagusmotorneuronen (diameter 5-7 μm) moeten naalden worden gebroken tot een binnendiameter van 10 μm, wat overeenkomt met een buitendiameter van 20 μm. Indien nodig kan de grootte, vorm en/of hoek van de naaldpunt worden verfijnd met een microforge of microgrinder36.
- Gebruik een spuit van 50 ml gevuld met lichte minerale olie en uitgerust met een pipetvuller om de naald volledig met minerale olie te vullen (Figuur 3B). Zorg ervoor dat er geen luchtbellen zijn. Leg de gevulde naald opzij totdat deze klaar is voor montage.
NOTITIE: Om er zeker van te zijn dat er geen luchtbellen zijn, steekt u de pipetvuller helemaal in de naald en laat u de olie ontsnappen terwijl u de vuller langzaam uit de naald trekt. - Draai op het transplantatieapparaat de driewegkraan zodat de lange arm naar de microspuitpomp wijst en druk de zuiger van de reservoirspuit in om alle luchtbellen uit de hydraulische leiding te spoelen. Houd lichte druk op de zuiger (om terugstroming van lucht in de leiding te voorkomen) en draai de driewegkraan zo dat de lange arm naar de reservoirspuit wijst.
- Steek de naald in de houder en zorg ervoor dat er geen luchtbellen ontstaan. Pas de hoek van de naald zo aan dat deze recht naar links wijst in een hoek van 10-15° ten opzichte van horizontaal (Figuur 3C).
- Gebruik de grove en fijne micromanipulatoren om de punt van de naald onder het microscoopobjectief te manoeuvreren en in beeld te brengen (Figuur 3D).
OPMERKING: Grove positionering van de naald in de X- en Y-vlakken kan worden gedaan door het gebied onder het objectief direct te observeren terwijl u de naald manoeuvreert, aangezien de naald de doorgelaten lichtstraal zal weerkaatsen wanneer deze onder het objectief wordt geplaatst. De microscoopoculairs kunnen dan worden gebruikt voor een fijne positionering. Pas de positie van de microscooptafel of de scherpstelling tijdens deze stap niet aan. Gebruik de micromanipulatoren om de naaldpunt in de bestaande brandpuntspositie te brengen. - Als er vloeistof in of uit de punt van de naald stroomt, pas dan de druk aan met behulp van de spuitpomp totdat een stabiele meniscus tussen de minerale olie en de oplossing van Ringer wordt waargenomen (Figuur 3D).
OPMERKING: Als er na stabilisatie een oliebel aan de naaldpunt achterblijft, kan deze worden verwijderd door de X-vlakaanpassing op de grove micromanipulator te gebruiken om de naald naar rechts te bewegen totdat de punt uit de RPT is getrokken, en vervolgens terug naar links totdat deze onder het objectief wordt geplaatst.
6. Transplantatie
OPMERKING: Alle naaldbewegingen moeten worden uitgevoerd met behulp van de fijne micromanipulator voor dit gedeelte.
- Verplaats het podium naar rechts totdat het donordier weer in beeld is gebracht, en wees voorzichtig om onbedoelde penetratie met de naald te voorkomen.
- Centreer en concentreer u op de cellen die moeten worden getransplanteerd en lijn de naald uit met de cellen net buiten het dier (Figuur 4A).
OPMERKING: Mogelijk moet u vaak schakelen tussen helderveld en fluorescentie om een goede uitlijning te garanderen. Het gebruik van een filter met neutrale dichtheid kan helpen om beide tegelijkertijd te visualiseren. - Steek de naald in het donordier.
OPMERKING: Herhaalde in- en uitbewegingen met de naald kunnen helpen bij het doordringen van de huid. - Stabiliseer de oliemeniscus onmiddellijk opnieuw in de punt van de naald met de pomp voor injectiespuiten, zoals beschreven in stap 5.7.
- Plaats de punt van de naald tegen de cellen die u nodig heeft en zuig voorzichtig aan met de pomp van de injectiespuit (Figuur 4B).
NOTITIE: Zachte in- en uitbewegingen tijdens het zuigen kunnen helpen om cellen los te maken. - Wanneer een voldoende aantal cellen is opgenomen, verwijdert u de naald van de donor en stabiliseert u de oliemeniscus in de naaldpunt onmiddellijk opnieuw met de microspuitpomp.
- Zorg ervoor dat u geen contact met dieren of agarose met de naald vermijdt en verplaats het podium om het eerste gastdier in beeld te brengen.
- Centreer en concentreer u op het gebied waarin de cellen moeten worden geplaatst en lijn de naald uit met dit gebied net buiten het dier (Figuur 4C).
- Steek de naald in het gastdier en stabiliseer de oliemeniscus in de naaldpunt onmiddellijk opnieuw met de injectiespuitpomp.
- Plaats de punt van de naald op de afzettingsplaats en oefen lichte druk uit met de pomp van de injectiespuit totdat het juiste aantal donorcellen uit de naald is vrijgekomen (Figuur 4D).
OPMERKING: Als donor- en gastheercellen zijn gelabeld met verschillende fluoroforen, kan een multibandfilter om gelijktijdige visualisatie mogelijk te maken in dit stadium zeer nuttig zijn. - Verwijder de naald uit de gastheer en stabiliseer de oliemeniscus onmiddellijk opnieuw in de naaldpunt met de microspuitpomp.
- Herhaal stap 6.7-6.11 voor alle resterende hosts.
7. Herstel van gastdieren
- Til het 40x objectief op en gebruik de grove micromanipulator om de naald terug naar de laadpositie te manoeuvreren.
OPMERKING: De naald kan voor meerdere objectglaasjes worden hergebruikt. - Verwijder het objectglaasje van de transplantatiemicroscoop en plaats het onder een ontleedmicroscoop.
- Demonteer de gastheerdieren door ze voorzichtig met een tang uit de LMA-druppel te halen. Breng de gastheerdieren met behulp van een glazen pasteurpipet over in een schaal met verse Ringer-oplossing met penicilline/streptomycine. Zorg ervoor dat de dieren herstellen van de narcose en bewaar ze in een embryo-incubator totdat ze klaar zijn om te fotograferen. Euthanaseer de donordieren volgens goedgekeurde protocollen.
OPMERKING: Onze methode voor euthanasie is om dieren gedurende ten minste 1 uur onder te dompelen in een ijsbad, gevolgd door onderdompeling in 500 mg/L natriumhypochloriet.
Resultaten
De resultaten van transplantatie-experimenten worden direct waargenomen door fluorescerend gelabelde donorcellen in gastheerdieren op geschikte tijdstippen na transplantatie te visualiseren met behulp van een fluorescentiemicroscoop. Hier hebben we individuele anterieure vagusneuronen getransplanteerd met 3 dpf. Gastdieren werden vervolgens gedurende 12 of 48 uur geïncubeerd, verdoofd, in LMA op een glazen dekglaasje gemonteerd en in beeld gebracht met een confocale microscoop (figuur 5). 12 uur na de transplantatie (hpt) zien we een succesvol getransplanteerd donorneuron (Figuur 5A). We kunnen de juiste positionering van de cel bevestigen, aangezien deze zich tussen de vagusneuronen van de gastheer bevindt in het voorste gebied van de vagusmotorkern van de gastheer; de cel ziet er ook intact en gezond uit, zoals blijkt uit de uitbreiding van verschillende korte neurietuitsteeksels (Figuur 5A). 2 dagen na de transplantatie (dpt) kunnen we opnieuw bevestigen dat een enkel neuron met succes is getransplanteerd in de juiste positie van de gastheerkern (Figuur 5B). Op dit punt zien we dat het neuron een nieuw axon heeft uitgebreid naar de 4e faryngeale boog (Figuur 5B). Directe observatie maakt ook duidelijk wanneer de procedure heeft gefaald. In dit voorbeeld zien we een 2 dpt gastheer waarin geen donorneuron aanwezig is; in plaats daarvan is een klein groen stipje zichtbaar, waarschijnlijk een fragment van een donorneuron dat na transplantatie stierf (Figuur 5C). Hoewel de slagingspercentages van transplantaties variëren op basis van de gebruikerservaring en het aantal en type getransplanteerde cellen, ervaren we een succespercentage (gedefinieerd als de aanwezigheid van een overlevend neuron dat een axon in de gastheer heeft uitgebreid met 2-3 dpt) van 66% (n = 453 transplantaties) voor transplantaties van vagusmotorneuronen uitgevoerd bij 3-4 dpf33.
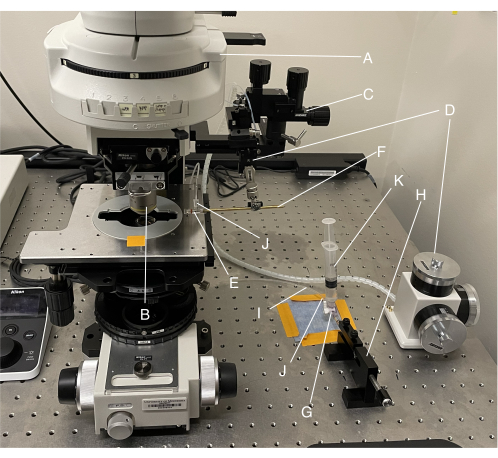
Figuur 1: Overzicht van het transplantatieapparaat. (A) Rechtopstaande fluorescentiemicroscoop; (B) 40x onderdompelingsobjectief; (C) grove micromanipulator; D) fijne micromanipulator; E) houder voor micro-elektroden; (F) handvat van de elektrode; G) driewegkraan; H) pomp voor de injectiespuit; (I) buizen van polyethyleen; (J) chromatografie-adapters; (K) Spuit met reservoir van 10 ml. Klik hier om een grotere versie van deze figuur te bekijken.
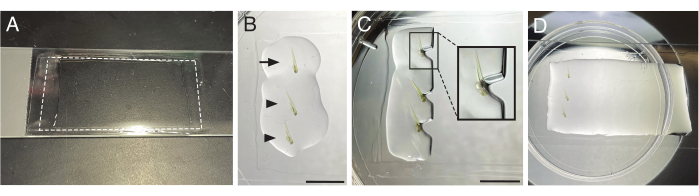
Figuur 2: Dieren monteren voor transplantatie. (A) Een matglazen objectglaasje van 3 inch x 1 inch met doorzichtige nagellak aangebracht in een rechthoekige omtrek (stippellijn). (B) Donordieren (pijl) en gastheerdieren (pijlpunt) gemonteerd in druppels agarose, verticaal uitgelijnd met de naar rechts gerichte plaats van de transplantatie (achterhersenen). (C) Agarose met rechterrand en wiggen uitgesneden om de doellocatie van de transplantatie bloot te leggen. Inzet: zoom van het gebied in een doos. (D) Transplanteerglaasje overspoeld met Ringer's oplossing met penicilline-streptomycine en tricaïne. Schaal balken = 5 mm. Klik hier om een grotere versie van deze figuur te bekijken.
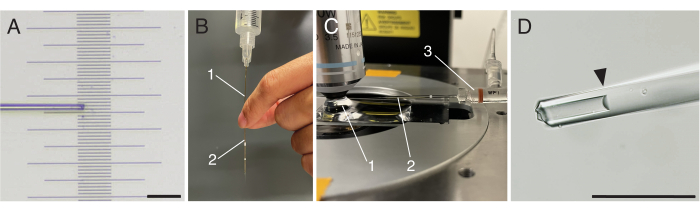
Figuur 3: Voorbereiding van de transplantatienaald. (A) Gebroken transplantatienaald bovenop een micrometer in een stadium. (B) Pipetvuller (1) in de transplantatienaald (2) gestoken om de naald met minerale olie te vullen. (C) Bereid het transplanteerglaasje en de naald op hun plaats op de transplantatiemicroscoop. 1: Watermeniscus tussen het 40x dompelobjectief en het ondergelopen objectglaasje 2: Transplantatienaald 3: Micro-elektrodehouder. (D) Tip van een gebroken transplantatienaald met stabiele oliemeniscus (pijlpunt) bekeken door transplantatiemicroscoop met een vergroting van 40x. Schaalbalken = 100 μm Klik hier om een grotere versie van deze figuur te bekijken.
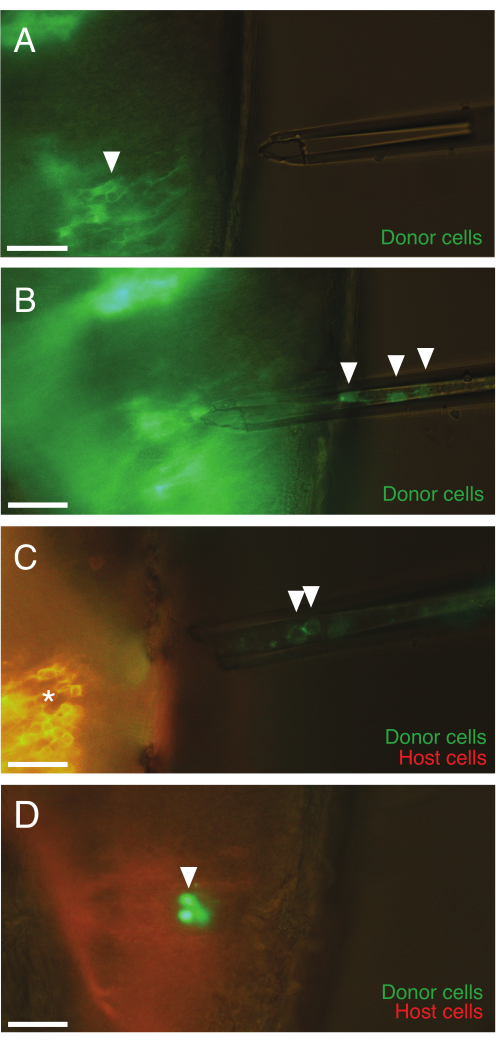
Figuur 4: Het transplantatieproces onder de microscoop. (A) Naald geplaatst buiten het donordier, gericht op vagus motorneuronen (groen, pijlpunt). (B) Naald geplaatst in het donordier na het opnemen van fluorescerend gemarkeerde donorneuronen (pijlpunten). (C) Naald met meerdere donorneuronen (pijlpunten) die zich buiten het gastdier bevinden, gericht op de motorneuronen van de vagus van de voorste gastheer (rood, sterretje). (D) Gastdier na transplantatie met teruggetrokken naald. Een cluster van getransplanteerde donorneuronen die GFP (pijlpunt) tot expressie brengen, zijn in de gastheer verdreven. Schaalbalken = 30 μm Klik hier om een grotere versie van deze figuur te bekijken.
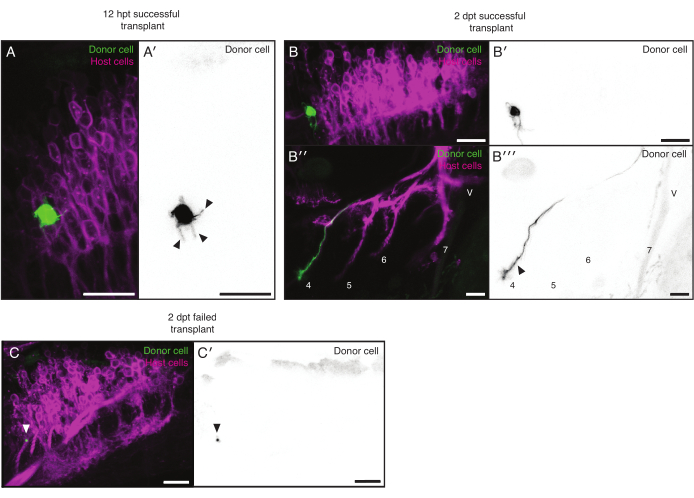
Figuur 5: Representatieve resultaten. (A,B) Succesvolle transplantaties. (A) Het voorste gebied van een 12 hpt gastheer vagus motorische kern (magenta) die een donorneuron bevat (groen, zwart in A'). Het donorneuron heeft meerdere neurieten (pijlen in A') verlengd. (B) De vagus-motorkern (B-B') en faryngeale axontakken (B''-B''', axontakken gelabeld) van een 2 dpt-gastheer (magenta) die een donorneuron bevat (groen, zwart in B', B'''). Het donorneuron heeft een nieuw axon uitgebreid naar tak 4 (pijlpunten). Figuur 5A,B stellen verschillende dieren voor. (C) Mislukte transplantatie. De vagus motorische kern van een 2 dpt gastheer (magenta). Er is geen donorneuron aanwezig; in plaats daarvan is er een klein stipje (groen, zwart in C'), dat waarschijnlijk een fragment van een dood donorneuron (pijlpunt) voorstelt. Schaal balken = 20 μm. Afkortingen: dpt = dagen na transplantatie; HPT = uur na transplantatie. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Ontwikkelings- en regeneratieve biologie vertrouwt al meer dan een eeuw op transplantatie-experimenten om de principes van celsignalering en bepaling van het lot van cellen te onderzoeken. Het zebravismodel vertegenwoordigt al een krachtige samensmelting van genetische en transplantatiebenaderingen. Transplantatie in blastula- en gastrula-stadia om mozaïekdieren te genereren is gebruikelijk, maar beperkt in wat voor soort vragen het kan beantwoorden. Transplantatie in een later stadium is zeldzaam, hoewel methoden voor het transplanteren van embryonale spinale motorneuronen en retinale ganglioncellen met respectievelijk 16-18 hpf en 30-33 hpf zijn gerapporteerd 26,27,28. Geïnspireerd door deze eerdere inspanningen, versterkt dit werk de kracht van zebravistransplantatie verder door een benadering te beschrijven die van toepassing is op late embryonale en larvale stadia, de deur opent voor het gebruik ervan in regeneratiestudies en die moderne fluorescerende transgene benaderingen integreert om labeling, overdracht en langetermijntracking van cellen te verbeteren.
Dit protocol biedt nieuwe mogelijkheden om cellen van veel verschillende differentiatiestadia en leeftijden te transplanteren, ook in de regeneratieve context. Transplantatie van gedifferentieerde neuronen is bijvoorbeeld gebruikt om te onderzoeken hoe signaaldynamiek de neuronale identiteit beïnvloedt door de ruimtelijke en temporele contexten waarin neuronen zich ontwikkelen te veranderen32; om de timing van neuronale bepaling te onderzoeken26; als middel om axonen te beschadigen en hun hergroei te volgen met een resolutie van één cel33; het onderzoeken van de cel-autonome rol van een receptor tijdens axonregeneratie via mutant-naar-wild-type transplantaties33; en om de rol van doelgeheugen in regeneratieve axongeleiding te onderzoeken33. Hoewel we ons tot nu toe hebben gericht op neuronale transplantatie, zijn we ons niet bewust van enig kenmerk van neuronen dat ze bij uitstek geschikt maakt voor deze benadering; Wij zijn eerder van mening dat deze benadering van toepassing is op veel celtypen. We hopen en verwachten dat onderzoekers creatieve manieren zullen vinden om de dynamiek van ontwikkeling en regeneratie in vele contexten te onderzoeken met behulp van deze techniek.
Kritische overwegingen in dit protocol zijn onder meer de selectie van cellabels, de geschiktheid van cellen voor transplantatie en de toegankelijkheid van weefsel. Een helder, stabiel, permanent fluorescerend label voor donorcellen is belangrijk om zowel de transplantatie als de daaropvolgende tracking te vergemakkelijken. Zowel geïnjecteerde kleurstoffen als transgenen kunnen worden gebruikt, hoewel transgenen permanenter en specifieker kunnen zijn voor de cellen van belang. Resistentie tegen fotobleken verlengt ook de tijd die men kan nemen bij het uitvoeren van transplantatie. De donorcellen moeten voldoende losjes hechten en de juiste vorm hebben om zonder overmatige schade vanuit het omringende weefsel/extracellulaire matrix in de naald te worden getrokken. Aanpassingen voor verschillende celtypen omvatten het aanpassen van de naaldboring, die iets groter moet zijn dan de diameter van de cel in kwestie; het dier tijdens het opzetten goed oriënteren om de toegang tot de cellen van belang te vergemakkelijken; en het optimaliseren van het niveau van zuigkracht of fysieke verstoring dat nodig is om cellen los te maken en omhoog te trekken. Naarmate het dier ouder wordt, kunnen bepaalde weefsels visueel en/of fysiek ontoegankelijk worden, hoewel we niet op de hoogte zijn van specifieke leeftijdsgrenzen. De schedel zal bijvoorbeeld waarschijnlijk uiteindelijk de toegang tot neuronen beperken. Aanpassingen kunnen bestaan uit het gebruik van niet-gepigmenteerde dieren om inwendige weefsels gemakkelijker te visualiseren, of het maken van voorlopige kleine incisies, aanpassingen aan de dikte van de microcapillaire buis of de vorm van de getrokken naald om het binnendringen van de naald te vergemakkelijken.
Beperkingen van dit protocol zijn onder meer dat cellen van bepaalde typen en leeftijden niet vatbaar zijn voor transplantatie, zoals hierboven beschreven, en de moeilijkheid om tijdens transplantatie structuren op weefselniveau te behouden. Omdat deze procedure vereist dat individuele cellen tijdens de verwijdering worden losgekoppeld van hun omgeving, gaan cel-celinteracties en structuren van hogere orde verloren. Het aangeboren immuunsysteem, dat tijdens de embryogenese functioneel wordt, kan reageren op weefselbeschadiging of de aanwezigheid van dode cellen en puin op de transplantatieplaats, wat de overleving van donorcellen kan beïnvloeden37,38. In latere stadia kunnen donorcellen ook worden afgestoten door het adaptieve immuunsysteem, dat 3-6 weken na de bevruchting functioneel wordt 39,40. Dit probleem kan worden vermeden door te transplanteren naar gastheren zonder adaptieve of aangeboren immuniteit 41,42,43,44.
Mogelijke problemen met het protocol waarvoor mogelijk problemen moeten worden opgelost, zijn onder meer: Ten eerste moet het materiaal in de naald op een soepele en responsieve manier bewegen tijdens het zuigen en drukken. Springerige en inconsistente beweging wordt waarschijnlijk veroorzaakt door de aanwezigheid van luchtbellen in de hydraulische leiding of een gedeeltelijke verstopping in de naald; Daarom moet voorzichtigheid worden betracht om tijdens de installatie alle luchtbellen uit de naald en de hydraulische leiding te verwijderen. Als er luchtbellen worden gevonden, brengt u de naald terug naar de laadpositie met behulp van de grove micromanipulator, verwijdert u de naald uit de houder en spoelt u de naald en lijn met minerale olie voordat u deze weer in elkaar zet. Verstopping van de naald kan worden beperkt door gekartelde naaldbreuken te voorkomen. Verstoppingen kunnen soms worden opgelost door minerale olie uit de naaldpunt te verwijderen om de verstopping eruit te duwen of door de naald volledig in te trekken en vervolgens weer in de RPT te steken; anders moet een nieuwe naald worden gebruikt. Ten tweede kunnen er problemen zijn met het losmaken van cellen tijdens het verwijderen. Door de naaldpunt onder een hoek te breken voor een afgeschuinde vorm, de naald heen en weer te bewegen tijdens het zuigen en de zuigkracht aan te passen, kunnen de cellen worden losgemaakt voor loslating van het weefsel. Een micromolen kan ook worden gebruikt om afgeschuinde naalden met een specifieke openingsmaat en hoek36 voor te bereiden. Ten slotte kan er tijdens het verwijderen schade aan cellen optreden. Ernstig beschadigde cellen kunnen hun gedefinieerde vorm verliezen en verschijnen als kleine fragmenten of amorfe fluorescerende klodders in de injectienaald. Het falen van cellen om te overleven na transplantatie kan ook een indicatie zijn van schade en kan gemakkelijk worden beoordeeld door een afwezigheid van fluorescerend gemarkeerde cellen in de gastheer. Het oplossen van problemen bij herhaalde celbeschadiging kan bestaan uit het vergroten van de boring van de naald en het beperken van de hoeveelheid zuigkracht die wordt uitgeoefend om de schuifkracht te verminderen. Een gedeeltelijk verstopte naald kan ook de schuifkrachten verhogen, wat tot schade kan leiden.
Openbaarmakingen
De auteurs hebben geen belangenconflicten bekend te maken.
Dankbetuigingen
We danken Cecilia Moens voor haar training in zebravistransplantatie; Marc Tye voor uitstekende verzorging van de vissen; en Emma Carlson voor feedback op het manuscript. Dit werk werd ondersteund door NIH-subsidie NS121595 aan A.J.I.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10 mL "reservoir syringe" | Fisher Scientific | 14-955-459 | |
| 150 mL disposable vacuum filter,.2 µm, PES | Corning | 431153 | |
| 20 x 12 mm heating block | Corning | 480122 | |
| 3-way stopcock | Braun Medical Inc. | 455991 | |
| 3 x 1 Frosted glass slide | VWR | 48312-004 | |
| 40x water dipping objective | Nikon | MRD07420 | |
| Calcium chloride dihydrate | Sigma-Aldrich | C3306 | |
| Coarse Manipulator | Narishige | MN-4 | |
| Custom microsyringe pump | University of Oregon | N/A | Gemaakt door University of Oregon machine shop (tsa.uoregon@gmail.com). Een commercieel verkrijgbaar alternatief staat hieronder vermeld. |
| Dumont #5 Forceps | Fine Science Tools | 1129500 | |
| Eclipse FN1 "Transplant Microscope" | Nikon | N/A | |
| electrode handle | World Precision Instruments | 5444 | |
| Feather Sterile Surgical Blade, #11 | VWR | 21899-530 | |
| Fine micromanipulator, Three-axis Oil hydraulic | Narishige | MMO-203 | |
| HEPES pH 7.2 | Sigma-Aldrich | H3375-100G | |
| High Precision #3 Style Scalpel Handle | Fisher Scientific | 12-000-163 | |
| Kimble Disposable Borosilicate Pasteur Pipette, Wide Tip, 5.75 in | DWK Life Sciences | 63A53WT | |
| KIMBLE Chromatography Adapter | DWK Life Sciences | 420408-0000 | |
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| Light Mineral Oil | Sigma-Aldrich | M3516-1L | |
| LSE digital dry bath heater, 1 block, 120 V | Corning | 6875SB | |
| Manual microsyringe pump | World Precision Instruments | MMP | Commercieel alternatief voor custom microsyringe pump |
| Microelectrode Holder | World Precision Instruments | MPH310 | |
| MicroFil Pipette Filler | World Precision Instruments | MF28G67-5 | |
| Nail Polish | Electron MIcroscopy Sciences | 72180 | |
| Nuclease-free water | VWR | 82007-334 | |
| P-97 Flaming/Brown Type Micropipette Puller | Sutter Instruments | P-97 | |
| Penicillin-streptomycin | Sigma-Aldrich | p4458-100ML | 5.000 eenheden penicilline en 5 mg streptomycine/mL |
| pipette pump 10 mL | Bel-Art | 37898-0000 | |
| Potassium chloride | Sigma-Aldrich | P3911 | |
| Professional Super Glue | Loctite | LOC1365882 | |
| Round-Bottom Polystyrene Test Tubes | Falcon | 352054 | |
| Sodium chloride | Sigma-Aldrich | S9888 | |
| Stage micrometer | Meiji Techno America | MA285 | |
| Syringes without Needle, 50 mL | BD Medical | 309635 | |
| Tricaine Methanosulfonate | Syndel USA | SYNCMGAUS03 | |
| Trilene XL smooth casting Fishing line | Berkley | XLFS6-15 | |
| Tubing, polyethylene No. 205 | BD Medical | 427445 | |
| UltraPure Low Melting Point Agarose | Invitrogen | 16520050 | |
| Wiretrol II calibrated micropipettes | Drummond | 50002010 |
Referenties
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
Herprints en machtigingen
