Hier schetsen we de procedure voor het analyseren van replicatieprogressie door pathogene, structuurgevoelige herhalingen met behulp van 2-dimensionale gelelektroforese.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Elektroforetische analyse van replicatie door middel van structuurgevoelige DNA-herhalingen binnen het op SV40 gebaseerde menselijke episoom
In dit artikel
Samenvatting
Samenvatting
Tweedimensionale neutrale/neutrale gel-elektroforese (2DGE) kwam naar voren als een benchmarktechniek om DNA-replicatie door natuurlijke belemmeringen te analyseren. Dit protocol beschrijft hoe de progressie van de replicatievork kan worden geanalyseerd door middel van structuurgevoelige, uitbreidbare DNA-herhalingen binnen het op apenvirus 40 (SV40) gebaseerde episoom in menselijke cellen. Kortom, bij plasmidetransfectie in menselijke cellen worden replicatietussenproducten geïsoleerd door het gewijzigde Hirt-protocol en behandeld met het DpnI-restrictie-enzym om niet-gerepliceerd DNA te verwijderen. Tussenproducten worden vervolgens verteerd door geschikte restrictie-enzymen om de herhaling van interesse binnen de oorsprong-distale helft van een 3-5 kb lang DNA-fragment te plaatsen. De replicatietussenproducten zijn gescheiden in twee loodrechte afmetingen, eerst op grootte en vervolgens op vorm. Na Southern Blot-hybridisatie stelt deze benadering onderzoekers in staat om het vastlopen van de vork te observeren bij verschillende structuurvormende herhalingen op de aflopende helft van de replicatie Y-boog. Bovendien maakt deze positionering van de stall-site de visualisatie mogelijk van verschillende uitkomsten van repeat-gemedieerde fork stalling, zoals fork reverssal, de komst van een convergerende fork en recombinational fork herstart.
Inleiding
Korte tandemherhalingen (STR) zijn kleine, meestal 2-9 basenparen (bp), repetitieve DNA-sequenties die ongeveer 3% van het menselijk genoom vormen1. STR spelen een belangrijke rol bij genregulatie2; hun repetitieve samenstelling maakt ze echter vatbaar voor de vorming van secundaire DNA-structuren en de daaropvolgende genetische instabiliteit 3,4. Van linkshandige helices tot haarspelden/kruisvormen, tot drie- en vierstrengs helices, deze alternatieve DNA-structuren veroorzaken intrinsieke uitdagingen voor het replisoom. Een natuurlijke voorwaarde voor secundaire structuurvorming is DNA-afwikkeling, wat een voorwaarde is voor DNA-replicatie. Dit vormt een uniek raadsel voor het functioneren van het genoom, aangezien veel van deze structuren zich tijdens replicatie kunnen vormen, waardoor de progressie van de respons wordt belemmerd en uiteindelijk de replicatievork 5,6,7 vastloopt, of in ernstige gevallen de instorting van de vork en DNA-breuk 8,9. Zowel het opnieuw opstarten van vastgelopen vorken als DNA-reparatieroutes is aangetoond dat ze leiden tot herhalingsinstabiliteit, zoals herhalingsexpansies10,11 en complexe genoomherschikkingen (CGR)12,13. Deze gebeurtenissen kunnen leiden tot de ontwikkeling van ongeveer 60 ziekten bij de mens die bekend staan als repeat expansiestoornissen, waaronder het fragiele X-syndroom, de ziekte van Huntington, de ziekte van Friedreich en andere14,15, evenals CGR-ziekten, zoals het Emmanuel-syndroom16. Daarom, om de mechanismen van menselijke ziekten die worden veroorzaakt door repeat-instabiliteit beter te begrijpen, is het noodzakelijk om de details van de progressie van de replicatievork door die herhalingen te bestuderen.
Een techniek voor het bestuderen van replicatieprogressie ontstond in het midden van de jaren 1980 toen Brewer en Fangman direct bewijs probeerden te leveren dat replicatie-initiatie in Saccharomyces cerevisiae plaatsvindt bij autonome replicatiesequentie (algemeen bekend als ARS) elementen17. Daarbij scheidden ze structuren van gistreplicatie-tussenproducten in agarose, waarbij ze een eerdere methode van Bell en Byers aanpasten die bekend staat als 2-dimensionale neutrale/neutrale gel-elektroforese (2DGE)18. Deze techniek maakte gebruik van het feit dat niet-lineair DNA anders reist in agarosegel dan het lineaire equivalent van dezelfde massa. Meer specifiek wordt in 2DGE geïsoleerd DNA gescheiden in twee loodrechte dimensies, eerst voornamelijk op grootte en vervolgens voornamelijk op vorm, om een uitgebreide kaart van replicatie in een bepaald interessegebied te creëren. In hun oorspronkelijke paper toonden Brewer en Fangman dit aan als een boog die bestaat uit "eenvoudige Y"-structuren of replicatievorken die niet-gerepliceerd DNA overbruggen naar hun gerepliceerde tegenhangers. Ze beschrijven verder andere waargenomen tussenproducten als "bubbels" en "dubbele Y's", die respectievelijk de oorsprong van replicatie en convergerende vorken vertegenwoordigen.
2DGE kan worden gebruikt om de relatieve populaties van DNA-replicatie-tussenproducten op een bepaald moment te bestuderen. Daarom, als de ene populatie van tussenproducten vaker voorkomt dan de andere, zou dit duidelijk zijn bij visualisatie. Dit maakt 2DGE een bijzonder nuttig hulpmiddel voor het bestuderen van replicatieprogressie door middel van uitdagende sequenties, zoals structuurvormende herhalingen. Als het geanalyseerde gebied bijvoorbeeld een sequentie bevat die in staat is om replicatievorkblokkering te induceren, zou dit zich voordoen als een uitstulping op de boog (Figuur 1A), wat wijst op een opeenhoping van replicatievorken op die locus. Dit is te zien aan de replicatie van zowel haarspeldvormende herhalingsequenties in gist 19,20,21 als triplexvormende herhalingen in menselijke cellen 22,23,24. Naast stalling kan 2DGE worden gebruikt om DNA-structuren te observeren die niet voldoen aan de standaard eenvoudige Y's die tijdens replicatie worden gevormd, zoals in het geval van recombinante tussenproducten25. Deze tussenproducten hebben een zwaardere en meer vertakte X-vormige structuur en reizen daarom langzamer in zowel de eerste als de tweede dimensie dan standaard replicatievorken. Vergelijkbare resultaten kunnen ook worden waargenomen met betrekking tot replicatievorkomkering 20,24,26. Als reactie op sterke replicatiestress is aangetoond dat eukaryote cellen replicatievorkomkering gebruiken om vastgelopen vorken te redden. Deze omgekeerde vorken hebben een vergelijkbaar moleculair gewicht als vastgelopen vorken; maar hun kippenpootstructuur resulteert in een langzamere elektroforetische mobiliteit in de tweede dimensie ten opzichte van hun Y-vormige complementen, wat resulteert in een uitbreiding naar boven en naar buiten van de boog.
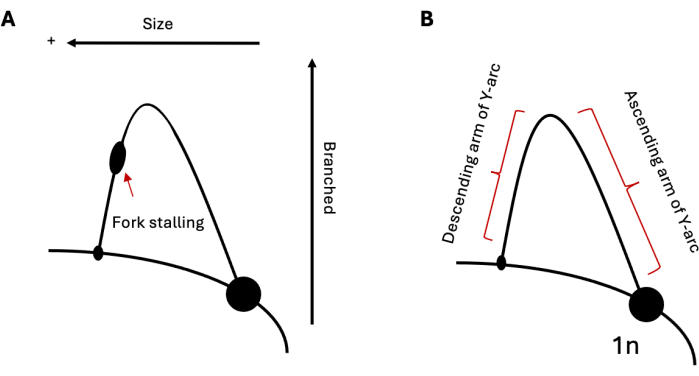
Figuur 1: 2D Gel elektroforese analyse van DNA-replicatie. (A) Schema van een typische 2DGE die replicatie weergeeft door middel van een structuurvormende herhaling die het afslaan van de vork kan induceren. Tussenliggende grootte en structuur zullen de elektroforetische mobiliteit beïnvloeden. (B) Monster Y-boog met respectievelijk oplopende en aflopende armen gelabeld. Afkorting: 2DGE = Tweedimensionale neutrale/neutrale gel-elektroforese. Klik hier om een grotere versie van deze figuur te bekijken.
Een van de belangrijkste aspecten van 2DGE betreft natuurlijk de kwaliteit en kwantiteit van replicatietussenproducten. De resolutie van 2DGE-analyse van replicatie via endogene loci in zoogdiercellen is echter onvoldoende voor een doelsequentie met één kopie binnen het diploïde menselijke genoom van 6 × 10⁹ bp, hoewel dit is gedaan voor genen met meerdere kopieën, zoals zwaar geamplificeerde DHFR-locus27 of ribosomaal RNA28. Op SV40 gebaseerde replicatie is een efficiënte en goed gekarakteriseerde manier om replicatie in eukaryote cellen te bestuderen29. Het biedt een betrouwbaar model van eukaryote replicatie dat het grootste deel van de replisoommachinerie van de gastheer gebruikt om het virale genoom te repliceren, dat bij infectie in nucleosomen wordt verpakt30,31. Twee opmerkelijke uitzonderingen op het replisoom van zoogdieren zijn dat het T-antigeen (Tag), in plaats van het gastheer CMG-complex, dient als replicatieve DNA-helicase, en DNA-polymerasedelta synthetiseert zowel leidende als achterblijvende DNA-strengen32. We hebben van dit systeem geprofiteerd door pathogene stukken van structuurvormende herhalingen stroomafwaarts van een SV40-replicatieoorsprong te plaatsen in een plasmide dat oorspronkelijk is gemaakt in het Massimo Lopes-lab22. Belangrijk is dat dit plasmide ook het gen bevat dat codeert voor Tag zelf, wat resulteert in zijn constitutieve en uiterst krachtige replicatie bij transfectie in een verscheidenheid aan gekweekte menselijke cellen. Deze eigenschap leidt tot een grote hoeveelheid producten, ideaal voor 2DGE-analyse van de tussenproducten die worden gevormd tijdens en als reactie op de replicatie van pathogene herhalingen in menselijke cellen. Hier beschrijven we een gedetailleerde methode voor het visualiseren van de replicatie van structuurvormende herhalingen binnen het op SV40 gebaseerde menselijke episoom met behulp van 2-dimensionale gelelektroforese.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
OPMERKING: Het plasmide dat is ontworpen voor onze geschetste 2DGE-analyse in zoogdiercellen moet een SV40-oorsprong van replicatie bevatten die enkele kb stroomopwaarts van structuurgevoelige herhalingen is (Figuur 2). Leidende en achterblijvende synthese moeten in gedachten worden gehouden bij het kiezen van welke oriëntatie ten opzichte van de oorsprong de herhalingen in het plasmide moeten worden gekloond.

Figuur 2: Vertering van repeat-bevattend plasmide voor 2DGE analyse. Structuurgevoelige herhalingen worden enkele kb stroomafwaarts van de naar rechts bewegende replicatievork weergegeven. Vergisting met unieke snijders 1 en 2 zal de herhalingssequentie op de dalende arm van de Y-boog plaatsen, gegeven de sequentie voorbij de helft van het verteerde fragment. Afkorting: 2DGE = Tweedimensionale neutrale/neutrale gel-elektroforese. Klik hier om een grotere versie van deze figuur te bekijken.
1. Plasmidetransfectie in zoogdiercellen
- Zaai 600.000 HEK293T cellen in een weefselkweekplaat van 10 cm voorafgaand aan de transfectie. Laat de cellen een nacht herstellen bij 37 °C.
OPMERKING: Voor dit experiment kunnen veel cellijnen worden gebruikt, hoewel cellen met de SV40-tag worden aanbevolen voor optimale resultaten. LET OP: HEK293T cellen worden beschouwd als BSL-2 en alle kweekwerkzaamheden moeten worden uitgevoerd in een bioveiligheidskast met behulp van de juiste aseptische techniek en de juiste persoonlijke beschermingsmiddelen. - Wanneer de cellen 60% confluentie bereiken, transfecteert u 8 μg repeat-bevattend plasmide-DNA in de gezaaide cellen met behulp van geschikte transfectiereagentia in overeenstemming met het protocol van de fabrikant.
- Als u op dit tijdstip geen tussenproducten isoleert, zuig dan oude media op en vervang deze na 24 uur door 10 ml verse media.
- Begin 24-48 uur na transfectie met het verzamelen van cellen.
- Zuig media op en was ze zorgvuldig met 10 ml fosfaatgebufferde zoutoplossing (PBS). Maak de cellen los en verzamel ze met 0,5 ml trypsine en draai ze gedurende 4 minuten af op 340 × g .
- Zuig het supernatans op en was de celpellets met PBS. Draai opnieuw op 340 × g gedurende 4 minuten en zuig de supernatant op.
OPMERKING: Het experiment kan hier worden onderbroken door celpellets bij -80 °C in te vriezen. We hebben 48 uur na transfectie de beste resolutie isolerende replicatietussenproducten gevonden; 24 uur heeft echter haalbare resultaten opgeleverd.
2. Isolatie van replicatietussenproducten
- Resuspendeer de cellen in 1,5 ml gemodificeerde Hirt-lysisbuffer [10 mM tris-HCl (pH 7,5), 10 mM ethyleendiaminetetra-azijnzuur (EDTA)] in conische buisjes van 50 ml en begin met cellyse.
- Voeg natriumdodecylsulfaat (SDS) toe aan een eindconcentratie van 0,6% (ongeveer 650 μL bouillon 2% SDS) en proteïnase K aan een eindconcentratie van 100 μg/ml (ongeveer 10 μL bouillon 20 mg/ml proteïnase K) om nucleasen te verwijderen.
- Meng voorzichtig door te pipetteren tot een homogeen mengsel en incubeer het mengsel bij 37 °C gedurende ten minste 90 min.
- Verhoog de NaCl-concentratie tot 1 M (ongeveer 540 μL bouillon 5 M NaCl) en meng voorzichtig tot een homogene massa. Incubeer 's nachts (18-24 uur) bij 4 °C om precipitatie van celresten, RNA en eiwitten mogelijk te maken door uit te zouten.
OPMERKING: Het mengsel zal zeer stroperig zijn, dus wees voorzichtig en wees geduldig terwijl u goed mengt. - Scheid de volgende dag het DNA van celresten, RNA en eiwitten.
- Centrifugeer het mengsel bij 29.500 × g gedurende 45 minuten bij 4 °C.
- Breng het supernatans bevattende DNA over, voeg een volume fenol:chloroform:isoamylalcohol 25:24:1 (v/v) toe en meng kort tot het homogeen is.
LET OP: Fenol:chloroform:isoamylalcohol is een gevaarlijk materiaal en moet worden behandeld met de juiste persoonlijke beschermingsmiddelen in een chemische zuurkast. - Centrifugeer opnieuw bij 15.000 × g gedurende 5 minuten bij kamertemperatuur. Breng de waterige laag over in een nieuwe conische buis.
- Precipiteer en was het geïsoleerde DNA.
- Voeg een volume pure isopropanol toe en incubeer bij kamertemperatuur gedurende ten minste 5 minuten. Draai het DNA af bij 15.000 × g gedurende 30 minuten bij 4 °C.
- Decanteer het supernatans en was de pellet met koude 70% ethanol om overtollig zout te verwijderen.
- Centrifugeer nogmaals op 15.000 × g gedurende 30 minuten bij 4 °C, laat aan de lucht drogen en resuspendeer de pellet voorzichtig in Tris-EDTA (TE)-buffer (10 mM Tris-HCl, 1 mM EDTA).
OPMERKING: Het experiment kan hier worden gepauzeerd en monsters kunnen worden ingevroren bij -20 °C; vries/dooi-cycli moeten echter worden vermeden, omdat dit de kwaliteit van de DNA-replicatietussenproducten kan verminderen.
3. Monstervoorbereiding en 2-dimensionale gelelektroforese
- Verteer de geïsoleerde tussenproducten van plasmidereplicatie.
- Voeg 100 eenheden van de juiste restrictie-enzymen toe aan het monster om het plasmide-DNA te verteren, waarbij de herhalingsbevattende sequentie specifiek op de oorsprong-distale helft van het lineaire fragment wordt geplaatst (Figuur 2). Voeg bovendien DpnI toe om het gemethyleerde DNA te knippen, waardoor al het plasmide-DNA wordt verwijderd dat niet volledig is gerepliceerd in gekweekte menselijke cellen.
OPMERKING: Voor de beste resultaten moeten restrictie-enzymen unieke snijders zijn die een fragment van 3-5 kb opleveren dat de structuurgevoelige sequentie op de dalende arm van de Y-boog plaatst. - Incubeer de monsters bij 37 °C gedurende 6-10 uur om volledige plasmidevertering mogelijk te maken.
- Sla het DNA neer met 2,5 volume koude zuivere ethanol en incubeer 's nachts bij -20 °C, of voeg een volume isopropanol toe en incubeer gedurende 5 minuten bij kamertemperatuur.
- Centrifugeer de vergiste en geprecipiteerde monsters bij 15.000 × g gedurende 30 minuten bij 4 °C.
- Decanteer het supernatans en was het monster met koude 70% ethanol. Centrifugeer opnieuw op 15.000 × g gedurende 30 minuten bij 4 °C.
- Decanteer het supernatant, laat 10 minuten aan de lucht drogen en resuspendeer de monsters in 15 μL TE-buffer.
- Voeg 100 eenheden van de juiste restrictie-enzymen toe aan het monster om het plasmide-DNA te verteren, waarbij de herhalingsbevattende sequentie specifiek op de oorsprong-distale helft van het lineaire fragment wordt geplaatst (Figuur 2). Voeg bovendien DpnI toe om het gemethyleerde DNA te knippen, waardoor al het plasmide-DNA wordt verwijderd dat niet volledig is gerepliceerd in gekweekte menselijke cellen.
- Bereid de eerste-dimensie agarosegel op 0,4-0,5% in 1x Tris-boraat-EDTA (TBE) (89 mM trisbase, 89 mM boorzuur, 2 mM EDTA). Laat de oplossing minimaal 1 uur stollen.
- Begin met het laden van de monsters in de eerste dimensie.
- Laad de ladder binnen de eerste 3 cm ten opzichte van de meest linkse rand van de gel. Laad vervolgens het geheel van de voorbereide monsters en zorg ervoor dat er 3 cm tussen elk paar zit.
- Laat de gel 19-24 uur in 1x TBE draaien op 0,85 V/cm om de tussenproducten te scheiden met betrekking tot hun grootte. Zorg ervoor dat de kamer bedekt is om de monsters te beschermen tegen licht, dat schade aan het DNA kan veroorzaken.
- Verwijder de volgende dag de gel uit de buffer en schat de locatie van het verteerde lineaire fragment met behulp van een liniaal.
- Snijd de eerste 3 cm van de gel met de ladder weg en kleur het gelsegment in 1x TBE met 0,3 μg/ml ethidiumbromide gedurende 10-15 minuten. Visualiseer de ladder met behulp van een geldocumentatiesysteem.
- Tel 1,3 cm op bij de geschatte standplaats, dit levert waarde a op. Trek vervolgens 7,5 cm af van waarde a, wat waarde b oplevert. Lijn de liniaal uit met de gel van de eerste dimensie en snijd horizontaal over de waarden a en b. Snijd vervolgens de 3 cm ruimte die voor elk monster is gereserveerd verticaal af. Zie Figuur 3 voor een visueel schema.
- Draai de segmenten in een nieuwe gietbak met de klok mee en plaats ze in de positie van de monsterputjes (Figuur 3).
- Bereid de tweededimensionale agarosegel in een concentratie van 1-1,3% in 1x TBE bij 0,3 μg/ml ethidiumbromide.
- Na afkoeling tot ongeveer 55 °C giet u de gel van de tweede dimensie over de gedraaide segmenten van de eerste dimensie en laat u deze minimaal 1 uur stollen.
- Breng de tweede dimensie over naar een kamer met 1x TBE bij 0,3 μg/ml ethidiumbromide en laat de gel minstens 30 minuten in evenwicht zijn.
- Laat de gel, opnieuw afgedekt, 9-10 uur draaien op 4,23 V/cm bij 4 °C om de tussenproducten te scheiden met betrekking tot hun vorm.
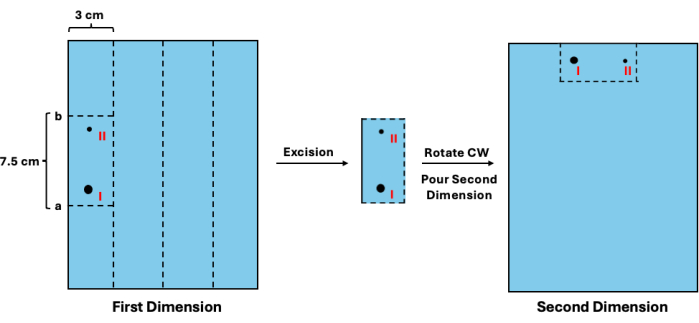
Figuur 3: Excisie van eerste-dimensie tussenproducten voorafgaand aan tweede-dimensie scheiding. Na visualisatie van de ladder kan de mobiliteit van niet-gerepliceerde fragmenten worden geschat. (I) Deze waarde kan vervolgens worden gebruikt om de geschikte snijlocaties (a en b) te bepalen om het en zijn gerepliceerde tegenhangers te accijnzen (II). Het gedeelte van de gel moet vervolgens worden gedraaid en in de positie van putjes worden geplaatst voor de tweededimensionale scheiding. Afkorting: CW = met de klok mee. Klik hier om een grotere versie van deze figuur te bekijken.
4. Zuidelijke blotting en hybridisatie met radioactief gelabelde sonde
- Verwijder de tweededimensionale gel uit de kamer en depurineer de DNA-fragmenten gedurende 10 minuten in een 0,24 M HCl-oplossing met zacht schudden. Spoel de gel af met gedeïoniseerd water en week deze 10-15 minuten in 0,4 M NaOH.
LET OP: HCl en NaOH zijn corrosief en moeten worden behandeld met geschikte persoonlijke beschermingsmiddelen in een chemische zuurkast. - Begin met het monteren van de zuidelijke blot om de overdracht van de gescheiden tussenproducten van de gel naar het membraan te vergemakkelijken. Zie afbeelding 4 voor een uitgebreid schema.
- Vul een voldoende grote container met 1 L 0,4 M NaOH.
- Lijn een lange glasplaat uit over de container en vouw (over de lengte) twee lange vellen chromatografiepapier loodrecht over de glasplaat, die zich uitstrekken tot in de container van NaOH.
- Maak de bovenkant van het papier nat met NaOH en verwijder voorzichtig eventuele luchtbellen onder het oppervlak.
- Doordrenk drie vellen chromatografiepapier met NaOH en leg ze over het gevouwen papier, waarbij u opnieuw eventuele luchtbellen verwijdert.
- Draai de tweededimensionale gel ondersteboven en breng deze over de vloeitjes.
- Bevochtig een positief geladen nylon membraan (0,45 μm poriegrootte) met DI-water en plaats het over de gel.
- Voeg ten slotte nog drie vellen papier toe, nat met DI-water, over het membraan.
- Dek blootgestelde NaOH in de onderste container af met plasticfolie om verdamping te voorkomen. Leg een stapel servetten of keukenpapier over de vlek en zorg ervoor dat deze 0,3-0,5 m hoog is. Plaats een gewicht op de bovenkant en druk de hele vlek samen om een strakke capillaire werking te vergemakkelijken. Wacht ten minste 2 dagen totdat DNA naar het membraan is overgebracht.
OPMERKING: De lengte en breedte van het chromatografiepapier en het membraan zijn afhankelijk van de grootte van de agarosegel die voor de tweede dimensie wordt gebruikt. Gebruik voor de meest efficiënte overdracht papier en membraan met dezelfde afmetingen als die van de gel.
- Na de overdracht verknoopt u het DNA met behulp van een UV-crosslinker bij 120 μJ/cm2 gedurende 1 min.
OPMERKING: Het experiment kan hier worden onderbroken door het membraan bij kamertemperatuur in een luchtdichte, droge en schone lakenbeschermer te plaatsen. - Was het membraan 2x gedurende 5 min met 2x zoutoplossing natriumcitraat (SSC-buffer) (0,3 M NaCl, 0,03 M natriumcitraat).
- Prehybridiseer het membraan met 0,18 ml/cm2 van de hybridisatiebuffer van Church & Gilbert [1 mM EDTA, 1% runderserumalbumine (BSA), 0,5 m natriumfosfaat, 7% SDS] bij 65 °C, roterend in een hybridisatie-incubator gedurende ten minste 2 uur.
OPMERKING: Het membraan kan enkele dagen prehybridiseren. - Bereid de radioactief gelabelde sonde voor met behulp van α-32P, dATP of dCTP en een DNA-labelkit in overeenstemming met het protocol van de fabrikant.
LET OP: Radioactief gelabelde dNTP's zijn gevaarlijk en er moeten geschikte persoonlijke beschermingsmiddelen worden gedragen bij het hanteren ervan. Al het radioactieve werk moet achter de afscherming worden uitgevoerd en getrainde personen moeten met behulp van dosimeters worden gecontroleerd op stralingsopname.- Ontwerp een lineair DNA-fragment van 400-900 bp dat complementair is aan de restrictieverteerde sequentie (Figuur 2) en amplificeer het fragment met behulp van polymerasekettingreactie (PCR).
OPMERKING: We raden aan om een voorraad PCR-fragment van 50-100 ng/μL te hebben - Combineer 100 ng van het complementaire PCR-fragment met DNA Pol I, Klenow-fragment (3' 5' exo-) buffer en willekeurige decanucleotide-oligo's.
- Denatureer het fragment bij 100 °C gedurende 10 min.
- Voeg 5 eenheden DNA Pol I, Klenow-fragment (3' 5' exo-), 50 μCi α-32P dNTP en 30-50 μmol dNTP-mix met een tekort aan radioactief gelabeld dNTP-type toe aan het monster.
- Incubeer bij 37 °C gedurende 10 minuten om polymerisatie en radioactief gelabelde dNTP-opname mogelijk te maken.
- Voeg 30-50 μmol van het voorheen afwezige dNTP-type toe aan het monster en incubeer gedurende 10 minuten bij 37 °C.
- Zuiver het radioactief gelabelde fragment met behulp van een draaikolom bij 3.000 × g gedurende 2 minuten.
- Ontwerp een lineair DNA-fragment van 400-900 bp dat complementair is aan de restrictieverteerde sequentie (Figuur 2) en amplificeer het fragment met behulp van polymerasekettingreactie (PCR).
- Voeg radioactief gelabelde sonde toe aan 50 ml hybridisatiebuffer en incubeer met het membraan een nacht bij 65 °C roterend in een hybridisatie-incubator.
- Verwijder de volgende dag de sonde en was het membraan 2x met wasbuffer 1 (0,1x SSC, 0,1% SDS) op 42 °C en 2x met wasbuffer 2 (2x SSC, 0,1% SDS) op 65 °C.
NOTITIE: Alle wasbeurten moeten worden uitgevoerd met snelle rotaties gedurende 15 minuten in de couveuse. - Droog het membraan 10 minuten en plaats het in een dunne, transparante velbeschermer. Bewaar het verzegelde membraan in een gecontroleerde, stralingsbestendige cassette met een fosforgevoelig scherm. Laat het membraan 1-10 dagen aan het scherm worden blootgesteld.
- Visualiseer de resultaten met behulp van een biomoleculaire imager die is ingesteld op fosforbeeldvorming. Wassen en indien nodig opnieuw blootstellen.

Figuur 4: Assemblage van Southern blot. Uitgebreid schema van een typisch apparaat dat wordt gebruikt voor de overdracht van tussenproducten uit de tweede dimensie op een nylon membraan. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Als dit lukt, kan bij visualisatie een scherpe boog van replicatievorken worden waargenomen die zich omhoog en naar buiten uitstrekt vanaf de massieve 1n-plek (Figuur 5A). De grootte van een fragment, of het percentage dat wordt gerepliceerd, bepaalt de mobiliteit van het fragment in de eerste dimensie. Naarmate de tussenproducten een meer verbonden structuur ontwikkelen, zullen ze langzamer beginnen te reizen in de tweede dimensie. Daarom, als een tussenpro...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
2DGE geeft een semi-kwantitatief en volledig beeld van de relatieve populaties van tussenproducten die ontstaan tijdens de replicatie van een bepaalde sequentie. Aangezien de fragiele moleculaire structuren van replicatievorken tijdens deze procedure moeten worden gehandhaafd, moet grote zorg worden besteed aan het voorkomen van fysieke afschuiving en chemische denaturatie. Daarom wordt het ten zeerste aanbevolen om elke alkalische behandeling te vermijden tijdens plasmide-isolatie. Om d...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten bekend te maken.
Dankbetuigingen
We danken Jorge Cebrian en Anastasia Rastokina die deze aanpak in ons lab zijn gaan ontwikkelen, Massimo Lopes voor het verstrekken van pML113-plasmide en advies van onschatbare waarde, Ylli Doksani voor inzichtelijke discussies en leden van het Mirkin-lab voor hun steun. Het werk in het Mirkin-lab wordt ondersteund door het National Institute of General Medical Sciences [R35GM130322] en NSF-BSF [2153071].
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10x TBE Buffer | Bio Rad | 1610733 | |
| 20x SSC Buffer | Fisher Scientific | BP1325-1 | |
| 293T cells | ATCC | CRL-3216 | |
| a-32P dATP, 3000 Ci/mmol | Revvity | BLU512H250UC | |
| Agarose | Fisher Scientific | BP160-500 | |
| Amersham Hybond-N+ | Fisher Scientific | RPN303B | |
| BAS Storage Phosphor Screens | Fisher Scientific | 28956482 | |
| Church and Gibert's hybriddization buffer | Fisher Scientific | 50-103-5408 | |
| DecaLabel DNA labeling kit | ThermoFisher Scientific | K0622 | |
| DMEM, high gluctose, GltaMAX Supplement, pyruvate | ThermoFisher Scientific | 10569010 | |
| DpnI | New England Biolabs | R0176S | Aanvullende restrictie-enzymen moeten ook worden aangeschaft |
| EDTA 0.5 M, pH 8 | Fisher Scientific | BP2482500 | |
| Ethanol, 70% | Fisher Scientific | BP82031GAL | |
| Fetal Bovine Serum | VWR | 97068-085 | |
| Hydrochloric acid solution, 12 M | Millipore Sigma | 13-1683 | |
| Isopropanol | Fisher Scientific | BP26184 | |
| jetPRIME DNA and siRNA Transfection Reagent with Buffer | VWR | 101000027 | |
| MycoZap Plus-CL | VWR | 75870-448 | |
| NaCl | Millipore Sigma | 746398-500G | |
| Nalgene Oak Ridge High-Speed Centrifuge Tubes | ThermoFisher Scientific | 3139-0050 | |
| Phosphate Buffer Saline, pH 7.4 | ThermoFisher Scientific | 10010023 | |
| Phosphate Buffer Saline, pH 7.5 | ThermoFisher Scientific | 10010024 | |
| Proteinase K | ThermoFisher Scientific | EO0491 | |
| Proteinase K | ThermoFisher Scientific | EO0492 | |
| Pure Cellulose Chromatography Paper | Fisher Scientific | 05-714-4 | |
| Pure Cellulose Chromatography Paper | Fisher Scientific | 05-714-5 | |
| Ruler | Fisher Scientific | 09-016 | |
| Scalpel | Fisher Scientific | 12-460-451 | |
| Sodium dodecyl sulfate | Millipore Sigma | 436143-25G | |
| Sodium hydroxide | Fisher Scientific | S25548 | |
| Sorval LYNX 4000 Superspeed Centrifuge | ThermoFisher Scientific | 75006580 | |
| Sub-cell Horizontal Electrophoresis System | Bio Rad | 1704401 | |
| TH13-6 x 50 Swinging Bucket Rotor | ThermoFisher Scientific | 75003010 | |
| Tris-HCl 1 M, pH 7.5 | Fisher Scientific | BP1757-500 | |
| Trypsin-EDTA (0.25%), phenol red | ThermoFisher Scientific | 25200056 |
Referenties
- Liao, X., et al. Repetitive DNA sequence detection and its role in the human genome. Commun Biol. 6 (1), 1-21 (2023).
- Fotsing, S. F., et al. The impact of short tandem repeat variation on gene expression. Nat Genet. 51 (11), 1652-1659 (2019).
- Fan, H., Chu, J. -Y. A brief review of short tandem repeat mutation. GPB. 5 (1), 7-14 (2007).
- Khristich, A. N., Mirkin, S. M. On the wrong DNA track: Molecular mechanisms of repeat-mediated genome instability. J Biol Chem. 295 (13), 4134-4170 (2020).
- Samadashwily, G. M., Raca, G., Mirkin, S. M. Trinucleotide repeats affect DNA replication in vivo. Nat Genet. 17 (3), 298-304 (1997).
- Khristich, A. N., Armenia, J. F., Matera, R. M., Kolchinski, A. A., Mirkin, S. M. Large-scale contractions of Friedreich's ataxia GAA repeats in yeast occur during DNA replication due to their triplex-forming ability. Proc Natl Acad Sci USA. 117 (3), 1628-1637 (2020).
- Shishkin, A. A., et al. Large-scale expansions of Friedreich's ataxia GAA repeats in yeast. Mol Cell. 35 (1), 82-92 (2009).
- Sundararajan, R., Gellon, L., Zunder, R. M., Freudenreich, C. H. Double-strand break repair pathways protect against CAG/CTG repeat expansions, contractions and repeat-mediated chromosomal fragility in Saccharomyces cerevisiae. Genetics. 184 (1), 65-77 (2010).
- Kim, H. -M., et al. Chromosome fragility at GAA tracts in yeast depends on repeat orientation and requires mismatch repair. EMBO J. 27 (21), 2896-2906 (2008).
- Polleys, E. J., House, N. C. M., Freudenreich, C. H. Role of recombination and replication fork restart in repeat instability. DNA Repair. 56, 156-165 (2017).
- Gold, M. A., et al. Restarted replication forks are error-prone and cause CAG repeat expansions and contractions. PLoS Genet. 17 (10), e1009863(2021).
- Lambert, S., et al. Homologous recombination restarts blocked replication forks at the expense of genome rearrangements by template exchange. Mol Cell. 39 (3), 346-359 (2010).
- Burssed, B., Zamariolli, M., Bellucco, F. T., Melaragno, M. I. Mechanisms of structural chromosomal rearrangement formation. Mol Cytogenet. 15 (1), 23(2022).
- Paulson, H. Repeat expansion diseases. Handb Clin Neurol. 147, 105-123 (2018).
- Malik, I., Kelley, C. P., Wang, E., Todd, P. Molecular mechanisms underlying nucleotide repeat expansion disorders. Nat Rev Mol Cell Biol. 22 (9), 589-607 (2021).
- Emanuel, B. S., Zackai, E. H., Medne, L. Emanuel Syndrome. GeneReviews®. Adam, M. P. , University of Washington. Seattle, Seattle, WA. (1993).
- Brewer, B. J., Fangman, W. L. The localization of replication origins on ARS plasmids in S. cerevisiae. Cell. 51 (3), 463-471 (1987).
- Bell, L., Byers, B. Separation of branched from linear DNA by two-dimensional gel electrophoresis. Anal Biochem. 130 (2), 527-535 (1983).
- Voineagu, I., Narayanan, V., Lobachev, K. S., Mirkin, S. M. Replication stalling at unstable inverted repeats: Interplay between DNA hairpins and fork stabilizing proteins. Proc Natl Acad Sci USA. 105 (29), 9936-9941 (2008).
- Nguyen, J. H. G., et al. Differential requirement of Srs2 helicase and Rad51 displacement activities in replication of hairpin-forming CAG/CTG repeats. Nucleic Acids Res. 45 (8), 4519-4531 (2017).
- Krasilnikova, M. M., Mirkin, S. M. Analysis of triplet repeat replication by two-dimensional gel electrophoresis. Trinucleotide Repeat Protocols. Kohwi, Y. , Humana Press. Totowa, NJ. (2004).
- Follonier, C., Oehler, J., Herrador, R., Lopes, M. Friedreich's ataxia-associated GAA repeats induce replication-fork reversal and unusual molecular junctions. Nat Struct Mol Biol. 20 (4), 486-494 (2013).
- Chandok, G. S., Patel, M. P., Mirkin, S. M., Krasilnikova, M. M. Effects of Friedreich's ataxia GAA repeats on DNA replication in mammalian cells. Nucleic Acids Res. 40 (9), 3964-3974 (2012).
- Rastokina, A., et al. Large-scale expansions of Friedreich's ataxia GAA•TTC repeats in an experimental human system: role of DNA replication and prevention by LNA-DNA oligonucleotides and PNA oligomers. Nucleic Acids Res. 51 (16), 8532-8549 (2023).
- Giannattasio, M., et al. Visualization of recombination-mediated damage-bypass by template switching. Nat Struct Mol Biol. 21 (10), 884-892 (2014).
- Hisey, J. A., et al. Pathogenic CANVAS (AAGGG)n repeats stall DNA replication due to the formation of alternative DNA structures. Nucleic Acids Res. 52 (8), 4361-4374 (2024).
- Kalejta, R. F., Lin, H. B., Dijkwel, P. A., Hamlin, J. L. Characterizing replication intermediates in the amplified CHO dihydrofolate reductase domain by two novel gel electrophoretic techniques. Mol Cell Biol. 16 (9), 4923-4931 (1996).
- Little, R. D., Platt, T. H., Schildkraut, C. L. Initiation and termination of DNA replication in human rRNA genes. Mol Cell Biol. 13 (10), 6600-6613 (1993).
- Fanning, E., Zhao, K. SV40 DNA replication: From the A gene to a nanomachine. Virology. 384 (2), 352-359 (2009).
- Sogo, J. M., Stahl, H., Koller, T., Knippers, R. Structure of replicating simian virus 40 minichromosomes: The replication fork, core histone segregation and terminal structures. J Mol Biol. 189 (1), 189-204 (1986).
- Weisshart, K., Taneja, P., Fanning, E. The replication protein A binding site in simian virus 40 (SV40) T antigen and its role in the initial steps of SV40 DNA replication. J Virol. 72 (12), 9771-9781 (1998).
- Sowd, G. A., Fanning, E. A Wolf in sheep's clothing: SV40 co-opts host genome maintenance proteins to replicate viral DNA. PLoS Pathog. 8 (11), e1002994(2012).
- National Library of Medicine: National Center for Biotechnology Information. BLAST: Basic Local Alignment Search Tool. , https://blast.ncbi.nlm.nih.gov/Blast.cgi (2024).
- Hirt, B. Selective extraction of polyoma DNA from infected mouse cell cultures. J Mol Biol. 26 (2), 365-369 (1967).
- Lopes, M., Foiani, M., Sogo, J. M. Multiple mechanisms control chromosome integrity after replication fork uncoupling and restart at irreparable UV lesions. Mol Cell. 21 (1), 15-27 (2006).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
