Hier stellen we een protocol op met behulp van minimale hoeveelheden vers ingevroren hersenweefselsecties en een toegankelijke hogesnelheidscentrifugatiemethode in combinatie met chromatografie met uitsluiting van grootte om kleine extracellulaire blaasjes te verkrijgen als bronnen voor microRNA (miRNA) biomarkers voor neurologische aandoeningen.
Methodenartikel
Benutting van de kracht van microRNA-ladingen in kleine extracellulaire blaasjes die vrijkomen uit vers ingevroren menselijke hersensecties
In dit artikel
Samenvatting
Samenvatting
Kleine extracellulaire blaasjes (sEV's) zijn cruciale bemiddelaars van cel-celcommunicatie en transporteren diverse ladingen zoals eiwitten, lipiden en nucleïnezuren (microRNA, mRNA, DNA). De microRNA sEV-lading heeft potentieel nut als een krachtige niet-invasieve ziektebiomarker vanwege het vermogen van sEV om biologische barrières te overschrijden (bijv. bloed-hersenbarrière) en toegankelijk te worden via verschillende lichaamsvloeistoffen. Ondanks talrijke studies naar sEV-biomarkers in lichaamsvloeistoffen, blijft het identificeren van weefsel- of celspecifieke sEV-subpopulaties een uitdaging, met name vanuit de hersenen. Onze studie pakt deze uitdaging aan door bestaande methoden aan te passen om sEV's te isoleren uit minimale hoeveelheden bevroren menselijke hersensecties met behulp van grootte-uitsluitingschromatografie (SEC).
Na ethische goedkeuring werd ongeveer 250 μg vers ingevroren menselijk hersenweefsel (verkregen van Manchester Brain Bank [UK]) uit de 3 donorweefsels gesneden en geïncubeerd in collagenase type 3/Hibernate-E-oplossing, met tussenliggende agitatie, gevolgd door seriële centrifugatie- en filtratiestappen. Vervolgens werden sEV's geïsoleerd met behulp van de SEC-methode en gekarakteriseerd door het volgen van MISEV-richtlijnen. Voordat RNA uit deze sEV's werd geïsoleerd, werd de oplossing behandeld met proteïnase-K en RNase-A om niet-sEV extracellulair RNA te verwijderen. De kwantiteit en kwaliteit van het RNA werden gecontroleerd en verder verwerkt voor qPCR- en kleine RNA-sequencing-experimenten.
De aanwezigheid van sEV's werd bevestigd door middel van fluorescentie-nanodeeltjes-trackinganalyse (fNTA) en western blot voor oppervlaktemarkers (CD9, CD63, CD81). Grootteverdeling (50-200 nm) werd bevestigd door NTA en elektronenmicroscopie. De totale RNA-concentratie in gelyseerde sEV's varieerde van 3-9 ng/μL en werd gebruikt voor succesvolle kwantificering door qPCR voor geselecteerde kandidaat-microRNA's. Kleine RNA-sequencing op MiSeq leverde gegevens van hoge kwaliteit op (Q >32) met 1,4-5 miljoen lezingen per monster.
Deze methode maakt efficiënte isolatie en karakterisering van sEV's uit minimale hersenweefselvolumes mogelijk, waardoor niet-invasief biomarkeronderzoek wordt vergemakkelijkt en is veelbelovend voor biomarkerstudies voor rechtvaardige ziekten, die inzicht bieden in neurodegeneratieve ziekten en mogelijk andere aandoeningen.
Inleiding
Extracellulaire blaasjes (EV's) zijn een van de belangrijkste spelers van intercellulaire communicatie in alle meercellige organismen1. EV's zijn van cellen afgeleide lipide dubbellaagse membraandeeltjes die de overdracht van een verscheidenheid aan vrachtladingen, zoals eiwitten, lipiden en nucleïnezuren, naar ontvangende cellen kunnen vergemakkelijken. EV's kunnen een breed groottebereik hebben, variërend van 30 nm tot 1 μM. Kleine EV's (sEV's), gedefinieerd als lipidegebonden blaasjes met een gemiddelde diametergrootte van <200 nm, hebben het vermogen om de bloed-hersenbarrière te passeren; daarom zijn ze betrokken bij de prionachtige verspreiding en verergering van neurodegeneratieve ziekten en andere aandoeningen zoals de ziekte van Alzheimer (AD), frontotemporale dementie (FTD), de ziekte van Parkinson (PD) en kanker 2,3. Bovendien, aangezien sEV's kunnen worden aangetroffen in een reeks biovloeistoffen zoals bloed, hersenvocht (CSF), speeksel en zelfs urine, kan het nuttige gebruik ervan zich uitstrekken over het gebied van biomarkers en niet-invasieve diagnostiek. Onderzoek naar AD kan bijvoorbeeld wijzen op het gebruik van biovloeibare pathogene eiwitverhoudingen, zoals tau/Aβ, of zelfs Aβ42/Aβ404.
Een bekende lading sEV's is microRNA (miRNA), een groep kleine, niet-coderende RNA-moleculen met een lengte van ongeveer 22 nucleotiden die binden aan de 3'-UTR-regio's van mRNA en meestal de eiwitexpressie negatief reguleren. MiRNA's zijn betrokken bij veel cellulaire rollen en zijn ook betrokken bij de pathogenese van verschillende ziekten, waaronder kanker en neurodegeneratieve ziekten. Cheng et al. voerden een high-throughput sequencing-analyse uit van serum-afgeleide sEV-miRNA-expressiesignaturen van AD-patiënten5. Eenmaal gekoppeld aan neuroimaging-records en bekende risicofactoren van leeftijd, geslacht en presentatie van het APOE ε4-allel, bleken de resultaten AD te voorspellen met 87% gevoeligheid en 77% specificiteit. Bovendien heeft onderzoek twee geüpreguleerde CSF-miRNA's (miR-151a-3p, let-7f-5p) en 3 gedownreguleerde miRNA's (miR-27a-3p, miR-125a-5p en miR-423-5p) geïdentificeerd die mogelijk PD6 in een vroeg stadium kunnen diagnosticeren. Bij pathologische aandoeningen kan de pathologische status voorafgaan aan bepaalde karakteristieke symptomen van ziekten, terwijl bij neurodegeneratie de accumulatie van pathologische kenmerken veel eerder optreedt dan cognitieve achteruitgang.
MicroRNA's zijn mogelijk een effectievere biomarker dan eiwitten, vanwege hun diverse functies en epigenetische regulatie van een hogere orde. Met behulp van hersenweefsel kunnen onderzoekers mogelijk specifieke van de hersenen afgeleide sEV (BDsEV) miRNA-handtekeningen identificeren voor ziekten en hun subtypes. SEV's met neuronale en gliale markers kunnen bijvoorbeeld verschillende miRNA-ladingen presenteren en de analyse kan resulteren in nauwkeurigere methoden voor het opsporen van ziekten. Bovendien wordt gesuggereerd dat BDsEV's een grote rol spelen in de transsynaptische verspreiding van neuropathogene eiwitten7. Eerdere rapporten hebben immunoprecipitatie en dichtheidsgradiënt (sucrosegradiënt) ultracentrifugatie gesuggereerd om sEV's te verkrijgen uit vers ingevroren hersenweefsel 8,9. Deze benaderingen vereisen echter specifieke infrastructuur met ultracentrifuge en stroomafwaartse zuiveringsmethoden om sEV-monsters van hoge kwaliteit te verkrijgen10. Meer recente rapporten hebben verschillende wijzigingen en verbeteringen in de aanpak voorgesteld 11,12,13; desondanks worden isolatie en studie van sEV-afgeleid microRNA uit menselijke weefsels nog steeds niet op grote schaal toegepast. De aanpak die in dit protocol wordt beschreven, is gericht op het bieden van een verfijnd, stapsgewijs protocol voor van de hersenen afgeleid sEV-onderzoek om de toegankelijkheid van deze techniek te verbeteren. We hebben een protocol opgesteld met minimale hoeveelheden hersenweefsel, waaruit we zuivere sEV's hebben geïsoleerd met behulp van chromatografie met uitsluiting van grootte en hoogwaardige sequencinggegevens van de volgende generatie tonen van de microRNA-lading van deze sEV's.
Protocol
Het werk is ethisch goedgekeurd door de Manchester Brain Bank (REC-referentie 09/H0906/52) en door de ethische commissie van de Universiteit van Salford (Application ID: 3408).
1. Afbraak van de intracellulaire matrix met behulp van collagenase op ingevroren hersenweefselcoupes
- Snijd 250 mg bevroren hersenweefsel (ongeveer 0,4 mm dikke fragmenten) dun met een gesteriliseerd scalpel op een koude plaat en voeg 2 ml 75 E/ml collagenase type-III/ Hibernate-E-oplossing toe.
- Incubeer elk monster gedurende 20 minuten in een waterbad bij 37 °C. Keer elk monster na 5 minuten twee keer om om te mengen; pipetteer elk monster op het 10 min-punt drie keer voorzichtig met een plastic wegwerpstrip van 10 ml.
- Leg elk monster op ijs en voeg 1x proteaseremmercocktail en 1x fosfataseremmer toe. Dit stopt de enzymreactie en is het eindpunt van de spijsvertering met behulp van collagenase type-III.
- Centrifugeer elk hersenweefselmonster bij 300x g gedurende 10 minuten bij 4 °C. Vang elk bovenproduct op en centrifugeer verder bij 2000 x g gedurende 15 minuten bij 4 °C.
- Verzamel elk supernatans opnieuw en filtreer door een filter van 0,22 μm. Centrifugeer elk filtraat bij 10 000 x g gedurende 48 minuten bij 4 °C.
- Verzamel het bovenstaande en voeg aan elk monster een neerslagbuffer toe in een verhouding van 2:1. Incubeer een nacht bij 4 °C.
- Centrifugeer elk monster bij 10 000 x g gedurende 96 minuten bij 4 °C en suspendeer de pellet opnieuw in 100 μl extracellulair blaasje (EV) vrij PBS.
2. Voorbereiding van chromatografiekolommen met uitsluiting van grootte
- Breng voor gebruik de vooraf voorbereide SEC-kolom gedurende 15 minuten in evenwicht bij kamertemperatuur (RT).
OPMERKING: De bodemdop moet vóór de schroefdop worden verwijderd. - Verwijder na equilibratie de conserveringsbuffer van de bovenkant van de kolom en was de kolom twee keer met 250 μL EV-vrije PBS. Elke PBS-wasbeurt wordt achtergelaten om door de zwaartekracht de kolom binnen te gaan.
3. Isolatie van kleine extracellulaire blaasjes met behulp van chromatografie met uitsluiting van grootte
- Voeg de geresuspendeerde pellet toe aan de bovenkant van de SEC-kolom en centrifugeer de kolom gedurende 30 s op 50 x g . Gooi de doorstroom weg.
- Voeg 180 μL EV-vrije PBS toe aan de bovenkant van de SEC-kolom en centrifugeer de kolom gedurende 1 minuut op 50 x g , zodat de van de hersenen afgeleide sEV's uit de kolom kunnen elueren.
OPMERKING: Het deel van het protocol dat hierboven is beschreven, is samengevat in figuur 1.
4. Bevestiging van kleine extracellulaire blaasjesmarkers door western blotting
- Om sEV's te lyseren voorafgaand aan de western blot-analyse (om ervoor te zorgen dat alle membraan- en cytosolische ladingen worden geanalyseerd), verdunt u het geïsoleerde sEV-monster 1:1 in lysis en extractiebuffer (1x proteaseremmer en 1x fosfataseremmer).
- Schud het monster gedurende 30 minuten bij 4 °C.
- Centrifugeer het monster bij 14 000 x g gedurende 15 min.
- Verzamel het eiwitsupernatans en meet de eiwitconcentraties met behulp van een eiwittestkit.
- Meng monsters met 4x Laemmli-buffer en laad 20 μg eiwit in elk putje tegen een voorgekleurd eiwitladder.
- Eenmaal opgelost, brengt u de eiwitten over op een nitrocellulosemembraan van 0,45 μm. Blokkeer na de overdracht het membraan gedurende 2 uur in 5% BSA.
- Incubeer de membranen met primaire antilichamen (Tabel 1) gedurende een nacht.
- Was het membraan drie keer met wasbuffer (1% Tween20 in PBS) en kleur het met een secundair antilichaam tegen muizen. Was daarna drie keer met wasbuffer (1% Tween20 in PBS).
- Volg de bovenstaande stappen in het manuscript voordat u de vlekken in beeld brengt.
- Afbeelding met mierikswortelperoxidase (HRP) substraat.
5. Bevestiging van kleine extracellulaire blaasjes door nanoparticle tracking analysis (NTA)
- Voer NTA uit om de concentratie en grootte van alle deeltjes in het monster te analyseren. Voer dit uit door elk monster in PBS te verdunnen met een verdunningsfactor van 1:1000.
- Injecteer het monster in het NTA-instrument en lees het monster af op een golflengte van 550 nm. Gebruik in dit stadium de deeltjeshoeveelheid om de hoeveelheid eiwit per deeltje te meten (meestal uitgedrukt in femtogram) zoals aanbevolen in de MISEV-richtlijnen.
- Vervolgens, voor fluorescerende NTA, verdund celmasker oranje (CMO) (kleurt alle biologische deeltjes in een monster) in PBS met een verdunningsfactor van 1:1000. Verdun hieruit de CMO-kleurstof met behulp van een sEV-monster met een verdunningsfactor van 1:10 - Incubeer deze verdunningsstap 30 minuten in het donker bij 4 °C.
- Verdun de tweede GMO-verdunning met behulp van PBS met een verdunningsfactor van 1:1000.
OPMERKING: De uiteindelijke verdunning van de CMO-kleurstof moet 1:10 000 000 bedragen. - Lees de CMO van elk sEV-monster af bij een golflengte van 550 nm met behulp van het NTA-instrument.
- Voor de tetraspanine fluorescerende antilichamen (zie Tabel met materialen) verdun eerst elk respectieve antilichaam in PBS met een verdunningsfactor van 1:10. Verdun hieruit elk van de kleurstoffen met behulp van een sEV-monster met een verdunningsfactor van 1:10 - Incubeer de verdunningsstap in het donker gedurende 2 uur bij 4 °C.
- Verdun de tweede antilichaamverdunning met behulp van PBS met een verdunningsfactor van 1:1000.
OPMERKING: De uiteindelijke verdunning van elk tetraspanine-antilichaam moet 1:100 000 zijn. - Lees de fluorescerende antilichaammetingen van het sEV-monster af bij een golflengte van 550 nm met behulp van het NTA-instrument.
6. Bevestiging van kleine extracellulaire blaasjes door transmissie-elektronenmicroscopie (TEM)
OPMERKING: Dit protocol werd uitgevoerd door de Biomedical Microscopy Facility van de Universiteit van Liverpool.
- Fixeer eerst sEV-monsters met glutaaraldehyde en kleuring met uranylacetaat.
- Dehydrateer het monster door middel van een graduele reeks alcoholen die klaar is voor TEM.
- Beeldmonsters met behulp van een geschikte transmissie-elektronenmicroscoop.
7. Proteïnase K en RNase A behandeling
- Voeg aan 50 μl geïsoleerde van de hersenen afgeleide EV's 1 μl 20 μg/μl proteïnase K toe en incubeer gedurende 30 minuten bij 37 °C.
- Stop elke reactie door 1x proteïnaseremmercocktail toe te voegen en incubeer gedurende 10 minuten op ijs.
- Voeg na de incubatie 1 μl 10 μg/μl RNase A toe aan elk monster en incubeer verder bij 37 °C gedurende 30 min.
OPMERKING: Ga onmiddellijk verder met sectie 8.
8. Totale RNA-isolatie uit kleine extracellulaire blaasjes
- Om het totale RNA te isoleren, voegt u 700 μL hoogwaardig RNA-herstellysisagens toe aan 50 μL van de hersenen afgeleide EV (BDsEV) monster. Schud elk monster gedurende 1 uur.
- Voeg 140 μL chloroform toe, schud elk monster krachtig gedurende 20 s en laat 3 minuten bij RT incuberen.
- Centrifugeer het monster bij 12 000 x g gedurende 15 minuten bij 4 °C en neem de tussenfase uit het monster. Voeg 1,5x volume 100% ethanol toe.
- Voeg 700 μL RNA-isolatiekolommen van het interfase/ethanolmengsel toe en centrifugeer bij ≥8000 x g gedurende 15 s bij RT.
OPMERKING: Herhaal deze stap met alle interfase-/ethanolmonsters. - Voeg aan de kolom 700 μL wasbuffer toe en centrifugeer op ≥8000 x g gedurende 15 s. Gooi de doorstroom weg.
- Voeg 500 μL buffer RPE toe en centrifugeer opnieuw bij ≥8000 x g gedurende 15 s. Gooi de doorstroom weg.
- Voeg 500 μL 80% ethanol toe en centrifugeer op ≥8000 x g gedurende 2 min. Gooi de doorstroom weg.
- Droog nu het kolommembraan door de kolommen 5 minuten op volle snelheid (>8000 x g) te centrifugeren met het deksel open.
- Breng de kolom over naar een nieuwe verzamelbuis, voeg 14 μL RNasevrij water rechtstreeks toe aan het kolommembraan en centrifugeer gedurende 1 minuut bij ≥8000 x g om het totale RNA van BDsEV's te elueren.
- Kwantificeer het totale microRNA met monsters met behulp van een miRNA-kwantificeringstestkit, waarbij monsters werden gemeten op een kwantificeringsfluorometer, waarbij het miRNA-testtype werd geselecteerd.
9. Kleine RNA-sequencing
- Na kwantificering van miRNA in het monster, synthetiseer je een cDNA-bibliotheek met behulp van de Small RNA-Seq Library Prep Kit.
OPMERKING: Met behulp van dit protocol omvatte het genereren van de bibliotheek vier stappen: 3' adapterligatie, zuivering, 5'-adapterligatie en omgekeerde transcriptie - waarbij uiteindelijk een RNA/cDNA-bibliotheek wordt gevormd. Na het genereren van de bibliotheek vindt PCR-amplificatie van het eindpunt plaats waarbij indexprimers worden toegevoegd (gebruikt voor multiplexingdoeleinden), waarna de monsters worden gezuiverd. - Om de RNA-kwaliteit te testen, gebruikt u een test voor kwaliteitscontrole die de grootte van elk preparaat en de piekintensiteit beschrijft.
- Om de DNA-concentratie te testen, meet u de DNA-kwantificering op een kwantificeringsfluorometer en selecteert u het dsDNA-testtype.
- Bereid de monsters voor op Small RNA Seq met behulp van de reagenskit, waarna de monsters in de flowcel worden geladen.
Resultaten
Om de aanwezigheid van BDsEV's te bevestigen, werden drie technieken gebruikt: western blotting, NTA en TEM (Figuur 3). Western blot-resultaten (Figuur 3A en aanvullend bestand 1) tonen de aanwezigheid van alle vijf positieve markers (CD9, CD63, CD81, Flot-1 en TSG101) en de afwezigheid van Calnexine in sEV's (gebruikt als negatieve controle), wat bevestigt dat er geen besmetting met cellulaire inhoud is. Zoals verwacht vertonen de hersenhomogenaten (BH) meer eiwit dan waargenomen in de sEV's voor de geteste markers. TEM-beelden bevestigden de morfologie van BDsEV's en hun relatieve grootte binnen de steekproef (Figuur 3B), wat verder werd bevestigd door analyse van het volgen van nanodeeltjes (Figuur 3C).
Figuur 3C (bovenste paneel) toont de geïsoleerde deeltjesgroottes tussen 50-200 nm. Uit de NTA-gegevens, waarbij het verstrooiingsresultaat wordt genomen als 100% van de weergegeven deeltjes, vertegenwoordigt CMO ongeveer 52,35% van de deeltjes (Figuur 3C, onderste paneel) om een lipidedubbellaag te hebben. Van deze CMO-gekleurde deeltjes bevatte 34,66% CD9, 15,49% bevatte CD63 en 12,01% bevatte CD81. Raadpleeg aanvullend bestand 2 voor NTA-controlegegevens.
Kwantificeringsgegevens van geïsoleerd RNA (tabel 2) tonen niveaus variërend van 3,24-8,76 (ng/μL), waarden die werden genormaliseerd bij het genereren van de cDNA-bibliotheken. De resultaten van de TapeStation-test (figuur 4) tonen grote pieken van ongeveer 120-160 bp, met kleinere pieken daaronder van ongeveer 50 bp en andere kleinere pieken die hoger zijn van ongeveer 484 bp.
Kwaliteitscontroles voor de sequencinggegevens van de volgende generatie tonen lezingen van zeer hoge kwaliteit na het bijsnijden van de adapter (Afbeelding 5A). Alle sequentieposities vertonen een Phred-score van >30, wat wijst op foutenpercentages van minder dan 1 op 1000 nucleotiden. Figuur 5B laat zien dat de meeste sequenties rond de 21-22 bp liggen, wat overeenkomt met het verwachte groottebereik voor microRNA's. Door verdere downstream mapping (met behulp van BowTie2), met behulp van de Samtools flagstat analyse biotool, werden van de 1.304.100 uitgelijnde sequenties, 1.116 264 (85%) in kaart gebracht op de microRNA-regio's in het menselijk genoom (bouw hg38; Tabel 3).
Van het totale aantal miRNA's werden 808 miRNA's tot expressie gebracht via alle 3 de monsters, waarbij 344 miRNA's werden gedeeld tussen alle drie de monsters (~43%), 5 gedeeld tussen controle 1 en controle 2, 183 gedeeld tussen controle 1 en controle 3, en 16 gedeeld tussen controle 2 en controle 3 (Figuur 6). Uit deze gegevens blijkt dat het miRNA met het hoogste tot expressie komt in alle drie de BDsEV's has-let-7b-5p, has-miR-143-3p, has-miR-30a-5p, has-miR-221-3p en has-let7i-5p is. Evenzo zijn de top 5 van minst differentieel tot expressie gebrachte miRNA over BDsEVs-monsters (leest >10) has-miR-128-2-5p, has-miR-182-5p, has-miR-193b-5p, has-miR-448 en has-miR-505-3p. Alle onbewerkte en genormaliseerde leestellingen worden gegeven in aanvullend bestand 3.
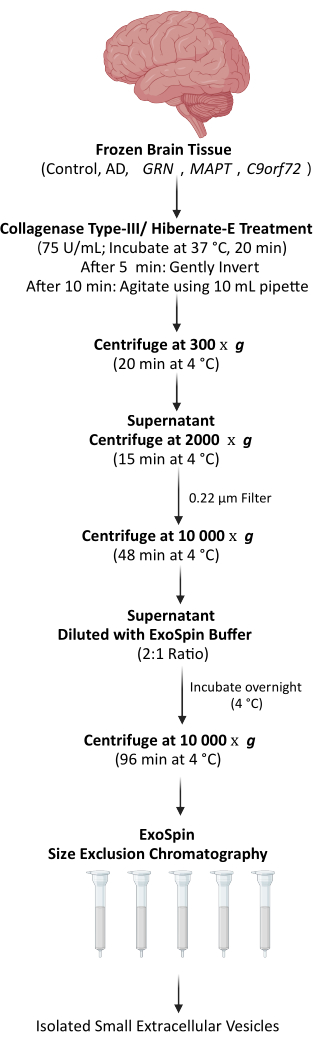
Figuur 1: Workflow voor weefselverwerking. De figuur toont het stapsgewijze proces voor de isolatie van van de hersenen afgeleide sEV's (BDsEV's) uit vers ingevroren hersensecties met behulp van chromatografie met uitsluiting van grootte. Klik hier om een grotere versie van deze figuur te bekijken.
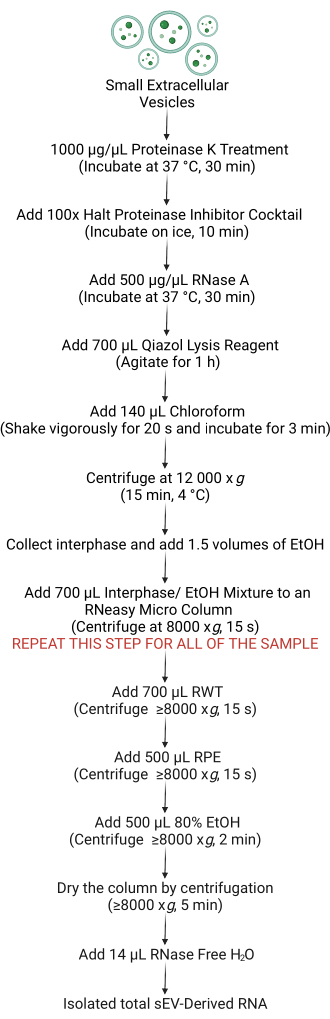
Figuur 2: RNA-isolatieworkflow van BDsEV's. De figuur toont het stapsgewijze proces van het isoleren van het totale RNA uit de BDsEV's, inclusief de voorbehandelingsstap van het verwijderen van extracellulair RNA met behulp van proteïnase K en RNase A. Klik hier om een grotere versie van deze figuur te bekijken.
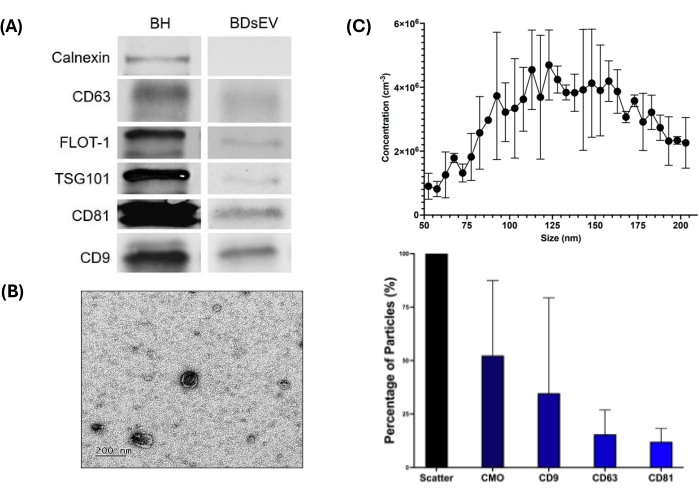
Figuur 3: Workflow voor BDsEV-karakterisering. De figuur toont verschillende methoden om de BDsEV's te karakteriseren. (A) Western blot om sEV-specifieke eiwitmarkers te detecteren. BH Hersenen homogenaat. Calnexine is een negatieve controle voor sEV's - afwezigheid in sEV en aanwezigheid in BH bevestigt de zuiverheid van het sEV-monster. Voor andere markers is de eiwithoeveelheid, zoals verwacht, hoger in BH dan in de sEV-monsters (20 μg eiwit geladen per putje). (B) Representatief transmissie-elektronenmicroscopie (TEM)-beeld voor BDsEV's op een schaal van 200 μM, ter bevestiging van de verwachte morfologie met een lipidedubbellaags membraan. (C) Grootteverdelingsgrafiek voor Nanoparticle Tracking Analysis (NTA) voor alle deeltjes (bovenste paneel). Elk gegevenspunt vertegenwoordigt de variatie over drie replicaten. Genormaliseerde verhoudingen voor biologische deeltjes (sEV's) en relatieve verhoudingen voor specifieke oppervlaktemarkeringen (onderste paneel) (gegevens weergegeven als gemiddelde ± SEM van drievoudige putten (n = 3)). Klik hier om een grotere versie van deze figuur te bekijken.
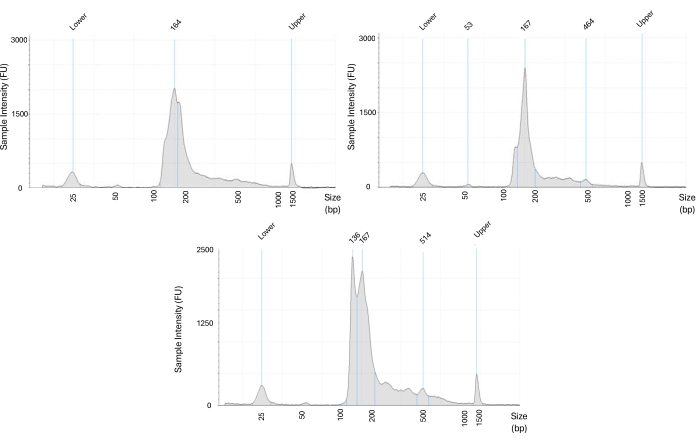
Figuur 4: Kwaliteitscontrole voor de voorbereiding van de cDNA-bibliotheek. Tapestation-analyse voor individuele monsters na voorbereiding van de cDNA-bibliotheek. De pieken die in elke grafiek worden weergegeven, geven de grootte van elk preparaat weer (horizontale as, in bp) en de respectieve intensiteit van elke piek (verticale as, FU). De verwachte kleine RNA-bibliotheek piekt rond 120-160 bp, zoals te zien is in de figuur. Klik hier om een grotere versie van deze figuur te bekijken.
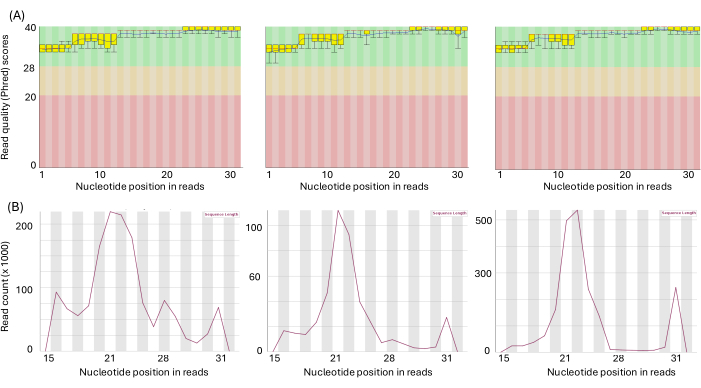
Figuur 5: Kwaliteitscontrole voor miRnome-sequencing. (A) FASTQC-plot voor leeskwaliteit voor de afzonderlijke monsters na het bijsnijden van de adapter. De horizontale as is voor de nucleotidepositie en de verticale as is voor Phred-scores. Boxplots voor elke positie tonen de verdeling van de Phred-score over alle reads voor elke positie. Alle verdelingen binnen de groene zone bevestigen gegevens van zeer hoge kwaliteit (>Q30) die een hoogwaardige monstervoorbereiding impliceren. (B) De verdeling van de sequentielengte voor elk monster laat zien dat voor alle drie de monsters de meerderheid van de metingen ongeveer 21-22 nucleotiden bedroeg - het verwachte groottebereik voor microRNA. Klik hier om een grotere versie van deze figuur te bekijken.
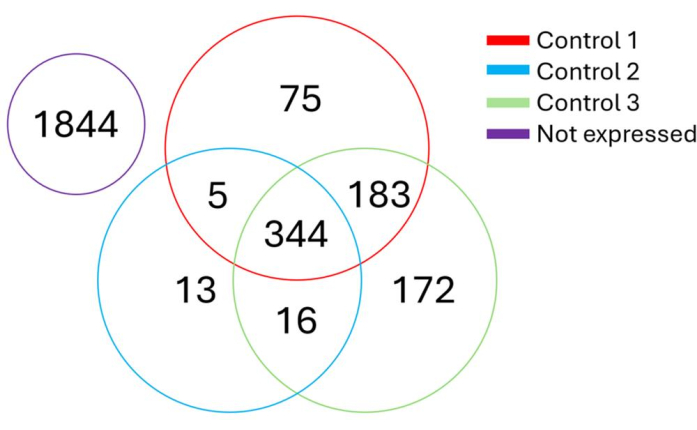
Figuur 6: Overlap van MicroRNA-expressie over alle monsters. Het aantal miRNA's dat uit elk monster is gedetecteerd (leestelling ≥ 10) en specifieke microRNA's die in meer dan één monster worden gedeeld, worden weergegeven in het Venn-diagram. Alle onbewerkte en genormaliseerde lezingen worden weergegeven in aanvullend bestand 3. Klik hier om een grotere versie van deze figuur te bekijken.
| Antilichaam epitoop | Verdunningsfactor van antilichaam |
| Muis Anti-CD9 | 1:2000 |
| Muis Anti-CD63 | 1:2000 |
| Muis Anti-CD81 | 1:2000 |
| Anti-flotillline 1 van de muis | 1:2000 |
| Muis Anti-TSG101 | 1:1000 |
| Muis Anti-Calnexin | 1:10 000 |
| Anti-muis secundair antilichaam | 1:3000 |
Tabel 1: Antilichaamepitopen gebruikt voor de karakterisering van BDsEV's en hun respectievelijke verdunningsfactoren.
| Monster | miRNA-concentratie (ng/μL) |
| 1 | 8.76 |
| 2 | 3.24 |
| 3 | 5.33 |
Tabel 2: Kwantificeringsgegevens van geïsoleerd RNA.
| Monster | Uitgelijnde sequenties | In kaart gebracht miRNA | Percentage (%) |
| Controle monster 1 | 1 444 665 | 1 133 437 | 78.46 |
| Controle monster 2 | 442 808 | 381 631 | 86.18 |
| Controle monster 3 | 2 024 828 | 1 983 726 | 97.97 |
| Gemiddeld | 1 304 100.33 | 1 166 264.67 | 89.43 |
Tabel 3: Hoeveelheid uitgelijnde en succesvol in kaart gebrachte miRNA-sequenties.
Aanvullend bestand 1: Aanvullende gegevens voor de analyse van de westelijke vlek. Klik hier om dit bestand te downloaden.
Aanvullend bestand 2: Aanvullende NTA-controlegegevens. Klik hier om dit bestand te downloaden.
Aanvullend bestand 3: Ruwe en genormaliseerde leestellingen van miRNA-expressieanalyse. Klik hier om dit bestand te downloaden.
Aanvullend bestand 4: Aanvullende gegevens over de eiwitconcentratie. Klik hier om dit bestand te downloaden.
Discussie
Dit aangepaste en verbeterde protocol voor het isoleren van van de hersenen afgeleide kleine extracellulaire blaasjes en hun microRNA-lading toont de haalbaarheid aan van het gebruik van minimaal weefsel zonder de kwaliteit en kwantiteit van de producten stroomafwaarts in gevaar te brengen. Op het gebied van de ontdekking van biomarkers kan het identificeren van moleculaire identificatiemiddelen die specifiek zijn voor cel- en weefseltypen leiden tot meer toegankelijke middelen voor niet-invasieve diagnostische tests met behulp van lichaamsvloeistoffen. Bovendien biedt de hier beschreven aanpak het kader voor de identificatie van specifieke sEV-subpopulaties binnen verschillende celtypen (neuronaal vs. gliaal), weefseltypes (hippocampusweefsel versus prefrontaal cortexweefsel) en biovloeistoffen - wat een beter begrip zal bieden van de handtekeningen van ladingsbelasting, pathofysiologie en ziekteomvang. Eerder uiteengezet in Vella et al., werd gesuggereerd dat 450 mg tot 1 g zou moeten worden gebruikt voor BDsEV-isolatie, in combinatie met ultracentrifugatie met dichtheidsgradiënt (met snelheden tot 180.000 x g)8. In deze methodologie zijn sEV's met succes geïsoleerd met behulp van lagere hoeveelheden (>50% reductie) van vers ingevroren hersenweefselmonsters (250-450 mg). De vermindering van de hoeveelheid hersenweefsel die wordt gebruikt om sEV's te isoleren, leidt tot lagere kosten en verbruiksartikelen. Evenzo is het protocol toegankelijker gemaakt door de toepassing van SEC in combinatie met hogesnelheidscentrifugatie (10.000 x g) in plaats van ultracentrifugatie (180.000 x g).
Met behulp van fNTA en TEM hebben we vastgesteld dat het groottebereikprofiel van de sEV's binnen het karakteristieke groottebereik van 30-200 nm valt, zoals aanbevolen door de MISEV-richtlijnen13,14, waarbij TEM een morfologische bevestiging geeft van de verkregen sEV's. Zoals te zien is in figuur 3C en in aanvullend bestand 4, heeft >87% van de deeltjes een groottebereik van <250 nm en vertonen de monsters gemiddeld 10,56 fg-eiwit/BDsEV. Specifieke soorten kleine extracellulaire blaasjes variëren in grootte en vorm, waarbij wordt waargenomen dat karakteristiek kleinere subpopulaties, zoals exosomen, een uniforme morfologie hebben in vergelijking met microblaasjes waarvan wordt gezegd dat ze een onregelmatige structuur hebben vanwege hun aard van biogenese15. Voor de fNTA werd een verstrooiingsmeting (520 nm) geproduceerd om het totale aantal deeltjes in monsters te analyseren, met details over het grootteprofiel en de concentraties. Uit de metingen blijkt dat meer dan 50% van de deeltjes biologisch was (door de kleuring van CMO), waarbij populaties van biologische deeltjes die binnen het groottebereik van sEV's vallen, tetraspaninemarkers vertonen, waarbij CD9 de meest overheersende is in onze controlemonsters (34,66%). Terwijl voor western blotting de aanwezigheid van karakteristieke membraan- en cytosolische eiwitladingen bewijs leverde van de aanwezigheid van sEV, waarbij de afwezigheid van Calnexin bevestigde dat BDsEV's vrij zijn van enige cellulaire besmetting. Om er verder voor te zorgen dat het miRNA dat beschikbaar was voor stroomafwaartse verwerking deel uitmaakte van sEV-lading (en niet van ander extracellulair RNA), behandelden we de sEV's met proteïnase K- en RNase A-enzymen voordat we de sEV-membranen verstoorden om eiwitten en RNA af te breken die extern aanwezig waren in de extracellulaire ruimte buiten de BDsEV's16.
Totaal RNA werd geëxtraheerd uit de sEV's en voorbereid voor downstream-toepassingen zoals qRT-PCR en sequencing van de volgende generatie (voor klein RNA). Standaardcontroles met behulp van kwaliteitscontroletests toonden aan dat monsters en cDNA-bibliotheken van hoge kwaliteit klaar waren voor sequencing. De cDNA-bibliotheken pieken rond de 120-160 bp, wat wordt toegeschreven aan miRNA-afgeleide cDNA-pieken met adaptersequenties van verschillende lengtes, waarbij eventuele kleinere pieken mogelijk adaptordimeren vertegenwoordigen.
Analyse van de volgende generatie sequencinggegevens met behulp van FASTQC en CutAdapt toont hoogwaardige resultaten verkregen uit BDsEV-miRNA's. Zoals te zien is in figuur 5, heeft elke gelezen positie een Q-score hoger dan 30 (Q30), wat een foutkans van 0,001-0,0001 (1 op 1000-10.000) aangeeft. Bovendien toont de analyse van de sequentielengteverdeling (Figuur 6) overheersende pieken die binnen het karakteristieke bereik van miRNA (19-25 bp) vallen, wat wijst op een hoge kwaliteit en specificiteit van de verkregen gegevens.
Talrijke toekomstige studies zullen baat hebben bij deze methode vanwege de verbeterde toegankelijkheid, naast het besparen van kosten en middelen door niet alleen de hoeveelheid weefselmonsters te verminderen, maar ook te besparen op de kosten van reagentia. De vermindering (>50%) van de benodigde hoeveelheid weefsel maakt deze methode ook ethischer. In lijn met de wereldwijde inspanningen op het gebied van precisiegezondheid, biedt de verbeterde workflow die hier wordt beschreven relatief meer betaalbare hulpmiddelen om te beginnen met nauwkeurige celtypespecifieke biomarkers via niet-invasieve (of minimaal invasieve) routes met behulp van BDsEV's en hun lading. Dit kan worden gebruikt voor een breed scala aan neurologische aandoeningen. Een mogelijke beperking van deze methode is dat het protocol moet worden aangepast als onderzoekers een ander weefsel dan het menselijk brein willen gebruiken voor sEV-isolatie. Op de lange termijn zal deze verbeterde methode de ontdekking en validatie van niet-invasieve, weefselspecifieke biomarkers rechtvaardiger en toegankelijker maken over de hele wereld.
Openbaarmakingen
Er zijn geen belangenconflicten voor een van de auteurs.
Dankbetuigingen
Dit werk werd gefinancierd door het PhD-studentschap voor Joseph Morgan van Alzheimer's Society UK (subsidienummer 549/SERA-52) en door de Innovation Strategy-fondsen van de Universiteit van Salford (subsidie SEFA-39). Het hersenweefsel werd verkregen uit de Manchester hersenbank (REC Reference 09/H0906/52) van het Brains for Dementia Network.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Bovine Serum Albumin | Merck | A9418-100G | |
| Cell Mask Orange Plasma Membrane Stain | ThermoFisher Scientific | C10045 | |
| Collagenase Type-III | StemCell Technologies | 07422 | |
| ExoSpin Columns and Buffer | Cell Guidance Systems Ltd. | EX01-50 | Deze kit bevat SEC kolommen gebruikt in dit experiment, precipitatie buffer en EV vrije PBS. |
| Halt Protease Inhibitor Cocktail (100x) | ThermoFisher Scientific | 78429 | |
| Hibernate-E Medium | ThermoFisher Scientific | A1247601 | |
| Laemmli Sample Buffer (4x) | BioRad | 1610747 | |
| Lexogen Small RNA-Seq Library Prep Kit | Lexogen | 052.24 | Deze kit bevat een Small RNA voorbereidingsreagensbox met i7 Index primer plate. |
| miRNeasy Micro Kit (50) | Qiagen | 217084 | Deze kit bevat hoogwaardig RNA herstel lysis reagens (Qiazol), RNA isolatie kolommen, isolatie buffers (RWT, RPE) en RNase vrije water. |
| MiSeq Reagent Kit v3 | Illumina | MS-102-3001 | Dit is de Illumina Voorbereiding Kit |
| Nitrocellulose Membrane, 0.45 μm | ThermoFisher Scientific | 88018 | |
| PE/Dazzle 594 anti-human CD63 Antibody | BioLegend | 143914 | Gebruikt voor fNTA Analyse |
| PE/Dazzle 594 anti-human CD81 Antibody | BioLegend | 349520 | Gebruikt voor fNTA Analyse |
| PE/Dazzle 594 anti-human CD9 Antibody | BioLegend | 312118 | Gebruikt voor fNTA Analyse |
| PhosSTOP | Merck | 4906845001 | |
| Pierce BCA Protein Assay Kit | ThermoFisher Scientific | 23225 | |
| Proteinase K | ThermoFisher Scientific | 25530049 | |
| Qubit microRNA Assay Kit | ThermoFisher Scientific | Q32880 | |
| Qubit 1X dsDNA HS assay kit | ThermoFisher Scientific | Q33230 | |
| Qubit 3.0 Fluorometer | ThermoFisher Scientific | Q33216 | |
| RIPA Lysis and Extraction Buffer | ThermoFisher Scientific | 89901 | |
| RNase A | ThermoFisher Scientific | EN0531 | |
| SuperSignal West Femto Maximum Sensitivity Substrate | ThermoFisher Scientific | 34094 |
Referenties
- Jia, Y., et al. Small extracellular vesicles isolation and separation: Current techniques, pending questions and clinical applications. Theranostics. 12 (15), 6548-6575 (2022).
- Fornari, S., Schäfer, A., Jucker, M., Goriely, A., Kuhl, E. Prion-like spreading of Alzheimer's disease within the brain's connectome. J R Soc Interface. 16 (159), 20190356(2019).
- Zhang, P., et al. Tumor-derived small extracellular vesicles in cancer invasion and metastasis: molecular mechanisms, and clinical significance. Mol Cancer. 23 (1), 18(2024).
- Constantinides, V., et al. CSF Aβ42 and Aβ42/ Aβ40 ratio in Alzheimer's disease and frontotemporal dementia. Diagnostics. 13 (4), 783(2023).
- Cheng, L., et al. Prognostic serum miRNA biomarkers associated with Alzheimer's disease shows concordance with neuropsychological and neuroimaging assessment. Mol Psychiatry. 20 (10), 1188-1196 (2015).
- Roser, A. E., Caldi Gomes, L., Schünemann, J., Maass, F., Lingor, P. Circulating miRNAs as diagnostic biomarkers for Parkinson's disease. Front Neurosci. 12, 625(2018).
- Jackson, N., Guerrero-Muñoz, M. J., Castillo-Carranza, D. L. The prion-like transmission of tau oligomers via exosomes. Front Aging Neurosci. 14, 974414(2022).
- Vella, L., et al. A rigorous method to enrich for exosomes from brain tissue. J Extracell Vesicles. 6 (1), 1348885(2017).
- Yousif, G., Qadri, S., Parray, A., Akhthar, N., Shuaib, A., Haik, Y. Exosomes derived neuronal markers: Immunoaffinity isolation and characterization. Neuromolecular Med. 24 (3), 339-351 (2022).
- Kumar, K., et al. Recent advances in microfluidic approaches for the isolation and detection of exosomes. TRAC-Trend Anal Chem. 159, 116912(2023).
- Ransom, L., et al. Human brain small extracellular vesicles contain selectively packaged, full-length mRNA. Cell Rep. 43 (4), 114061(2024).
- Gomes, P., et al. A novel isolation method for spontaneously released extracellular vesicles from brain tissue and its implication for stress-driven brain pathology. Cell Commun Signal. 21 (1), 35(2023).
- Welsh, J., et al. Minimal information for studies of extracellular vesicles (MISEV 2023): From basic to advanced approaches. J Extracell Vesicles. 13 (2), e12404(2023).
- Théry, C., et al. Minimal information for studies of extracellular vesicles 2018 (MISEV2018): a position statement of the International Society for Extracellular Vesicles and update of the MISEV2014 guidelines. J Extracell Vesicles. 7 (1), 1535750(2018).
- Pirisinu, M. The long journey of extracellular vesicles towards global scientific acclamation. Adv Pharm Bull. 13 (3), 489-501 (2023).
- Bender, A., Sullivan, B. P., Lillis, L., Posner, J. D. Enzymatic and chemical-based methods to inactivate endogenous blood ribonucleases for nucleic acid diagnostics. J Mol Diagn. 22 (8), 1030-1040 (2020).
Herprints en machtigingen
