Dit artikel behandelt de procedures om stressreacties op te wekken met behulp van fysieke fixatiestress bij muizen en ratten. Aanvullende overwegingen die in acht moeten worden genomen bij het selecteren en gebruiken van fixatiestress in knaagdiermodellen worden besproken.
Methodenartikel
Terughoudendheid om stress op te wekken bij muizen en ratten
In dit artikel
Samenvatting
Samenvatting
Bij alle diersoorten veroorzaakt blootstelling aan stressvolle omstandigheden stressreacties. Een methode om de effecten van stress te bestuderen met behulp van knaagdiermodellen is de fixatiestressprocedure. Terughoudendheidsstress wordt al tientallen jaren gebruikt om veranderingen in fysiologie, genetica, neurobiologie, immunologie en andere systemen die door stress worden beïnvloed, te onderzoeken. Vanwege het gemak van het uitvoeren van de procedure, de lage kosten en de talrijke aanpassingen aan de schaal voor de intensiteit en duur van blootstelling aan stress, heeft een uitgebreide literatuur van studies fixatiestress gebruikt bij muizen en ratten. Deze studie presenteert bijvoorbeeld eerder gepubliceerde gegevens die de impact aantonen van fixatiestress bij transgene muizen op plasmacorticosteronspiegels en optogenetisch geïnduceerde afgifte van noradrenaline. Acute fixatiestress verhoogde de plasmacorticosteronspiegels, maar dit effect werd bij muizen afgezwakt na herhaalde fixatiestress. De gestimuleerde afgifte van noradrenaline in de bedkern van de stria-terminalis was echter alleen verhoogd in de stressgroep met herhaalde fixatie. Deze gegevens benadrukken belangrijke overwegingen van beperkingsparameters op afhankelijke maatregelen. Ter vergelijking zijn ook aanvullende beschrijvingen van fixatiestress bij ratten opgenomen. Ten slotte wordt de invloed van de parameters van de fixatie (bv. acuut vs. chronisch) en kenmerken van de proefdieren (stam, geslacht, leeftijd) besproken.
Inleiding
Vanwege de universele ervaring van stress is onderzoek naar de mechanismen van veranderde reacties na blootstelling aan stressal tientallen jaren een consistent onderzoeksgebied 1. Deze onderzoeken zijn begonnen met het ontleden van aspecten van stress die gunstig kunnen zijn voor het vergroten van het aanpassingsvermogen en het reactievermogen op acute stressoren van stresservaringen die onaangepaste veranderingen van fysiologische en gedragsfuncties veroorzaken, vaak als gevolg van langdurige blootstelling aan herhaalde en/of onvoorspelbare stressoren. Veel van deze reacties op stressoren hebben invloed op de hersenfunctie, de hypothalamus-hypofyse-bijnier (HPA) -as, de sympathische en parasympathische takken van het autonome zenuwstelsel en het immuunsysteem. Blootstelling aan stressoren initieert de verhoogde afgifte van corticotropine-releasing factor (CRF) om adrenocorticotroop hormoon (ACTH) en glucocorticoïde hormonen te verhogen, zoals cortisol bij primaten en vele andere zoogdieren en corticosteron bij knaagdieren2. Bovendien worden epinefrine en noradrenaline vrijgegeven in de periferie en de hersenen als onderdeel van de reactie van het sympathische zenuwstelsel3. Deze chemische signalen interageren vervolgens met een aantal fysiologische systemen, zoals immuunfunctie, metabolisme, voortplanting en neuronale reactiviteit4.
Stressvolle ervaringen worden in verband gebracht met een groot aantal aandoeningen, waaronder toename van angst en depressie, veranderingen in leren en geheugen, stoornissen in besluitvorming en uitvoerende functie, en vatbaarheid voor stoornissen in het gebruik van middelen. Elk van deze effecten is afhankelijk van zowel de parameters van de stressor als de kenmerken van het individu dat stress ervaart4. De aard van de stressor, als acuut of chronisch en als controleerbaar of onvoorspelbaar, verandert de waargenomen resultaten aanzienlijk. Deze aspecten van stress lijken consistent tussen menselijke ervaringen en diermodellen. Om stress in dierstudies te modelleren, moet dus zorgvuldig worden nagedacht over het selecteren van parameters van blootstelling aan stress die geschikt zijn voor de soort, het geslacht en de toestand.
Hoewel er een aantal stressoren beschikbaar zijn voor studies met knaagdieren (waaronder psychosociale stressoren zoals sociale isolatiestress of sociale nederlaag, farmacologische stressoren zoals toediening van cortisol of yohimbine, fysieke stressoren zoals voetschok en terughoudendheid, en multimodale stressoren die aandoeningen combineren of afwisselen), zal de focus van dit manuscript liggen op het gebruik van fixatiestress bij muizen en ratten. Terughoudendheidsstress kan worden gekozen boven andere stressoren omdat het gemakkelijk uit te voeren is, goedkoop, aanpasbaar aan verschillende maten knaagdieren, schaalbaar voor zowel acute als langdurige perioden, en zelden leidt tot nadelige schade aan de proefpersoon5. Hoewel dit manuscript zich richt op de blijvende veranderingen die worden veroorzaakt door blootstelling aan fixatiestress, gebruiken sommige studies fixatie bij knaagdieren om mechanismen en gedragingen te onderzoeken die optreden tijdens fixatie, inclusief actief copinggedrag dat betrokken is bij het ontsnappen aan de stressor 6,7,8,9. Het doel van dit manuscript is om methodologische overwegingen te bieden om de impact van fixatiestress op muizen of ratten te beoordelen.
Protocol
De experimenten en protocollen zijn goedgekeurd door de Institutional Animal Care and Use Committee (IACUC) van de University of North Carolina in Chapel Hill (muizen) en Fairfield University (ratten) en volgen de richtlijnen van NIH10.
1. Fixatiestress bij muizen
OPMERKING: Muizen bieden een aantal voordelen bij het bestuderen van de effecten van stress op fysiologie en neuronale systemen. Met de prevalentie van transgene muizenlijnen is mechanistisch onderzoek naar de interacties tussen genen en blootstelling aan stress gemakkelijk haalbaar. Of u nu transgene of wildtype muizen gebruikt, het wordt aanbevolen om rekening te houden met de achtergrondstam. Bovendien bieden muizen vanwege hun grootte en sociale huisvesting een voordeel bij het gebruik van de ruimte ten opzichte van andere soorten.
- Blootstelling aan fixatie
- Wijs muizen willekeurig toe aan groepen voor thuiskooicontrole, acute fixatiestress of chronische fixatiestress.
- Bepaal de duur van de blootstelling aan stress. Gebruik voor acute stressoren een enkele sessie van 5 minuten tot 12 uur opgesloten in het fixatieapparaat. Zorg er bij chronische stressoren voor dat de sessie overeenkomt met de duur van de acute stressor, maar dagelijks wordt herhaald gedurende slechts 3 dagen en zo lang als 21 dagen.
OPMERKING: Omdat muizen geen toegang hebben tot voedsel en water terwijl ze zich in de fixatieomstandigheden bevinden, moet u overwegen of dieren in de thuiskooi ook geen toegang mogen hebben tot voedsel en water. - Pas conische buizen van 50 ml aan om ventilatieopeningen toe te voegen.
- Gebruik een boormachine met een 1/8" bit om de gaten rond elke conische buis gelijkmatig te verdelen om luchtstroom door alle delen van de buis te garanderen.
- Plaats deze gaten om de muis toegang te geven tot lucht, ongeacht in welke richting de muis in de buis kijkt. Zorg ervoor dat er geen scherpe randen achterblijven na aanpassing.
OPMERKING: Deze gemodificeerde conische buizen zouden effectief moeten zijn voor de meeste volwassen muizen (~20-40 g), maar mogen kleine/jonge muizen of grotere stammen niet tegenhouden.
- Plaats in een testruimte, gescheiden van dierhuisvesting en gedragstesten, het aan fixatie toegewezen dier in de gemodificeerde conische buis met de dop eraan bevestigd om de muis in de buis op te sluiten voor de aangegeven duur van het fixatie.
OPMERKING: De specifieke kenmerken van het ontwerp van de testruimte kunnen variëren, afhankelijk van de beschikbare ruimte in de faciliteit; De ruimte kan bestaan uit zuurkasten en andere laboratoriumapparatuur en/of laboratoriumtafels/-banken of een lege behandelkamer zijn. Ongeacht de opstelling van de ruimte moet de omgeving van de fixatieruimte echter consistent blijven bij herhaalde blootstelling aan fixatie om contextgeïnduceerde veranderingen in stressreacties te voorkomen11. - Plaats de bevestigingsbuis horizontaal op een vlakke ondergrond. Zet de slang indien nodig vast met laboratoriumtape of een pipetbakje/reagensreservoir zodat deze niet rolt met de muis erin.
OPMERKING: Onder stressomstandigheden produceren muizen ultrasone vocalisaties. Overweeg of de onderzoeksopzet geluidsisolatie vereist van andere in bedwang gehouden proefpersonen12. Corticosteron en andere markers van stressreacties volgen circadiane ritmes. Als zodanig moeten overwegingen worden gemaakt met betrekking tot de lichtomstandigheden en de tijd van de stressor. In alle stressgroepen moet fixatie op een consistent tijdstip van de dag plaatsvinden, bij voorkeur vroeg in de lichtcyclus 13,14,15. Voor de hier gepresenteerde studie werden muizen ongeveer 3 uur vastgehouden na het aangaan van de lichten. - Controleer elk dier tijdens fixatiestress ten minste elke 20 minuten. Bepaal visueel of het dier ongebruikelijke reacties vertoont (langzame ademhaling, gebrek aan beweging). Indien waargenomen, verwijder de muis dan uit de fixatiebuis, neem contact op met een dierenarts en sluit de muis uit van het onderzoek.
- Breng de muis terug naar de kooi en zorg voor toegang tot voedsel en water.
2. Fixatiestress bij ratten
OPMERKING: Als grotere knaagdieren hebben ratten voordelen om rekening mee te houden bij het onderzoeken van de effecten van stress. Net als muizen hebben ratten verschillende stammen met differentiële reacties op blootstelling aan stress16,17. Bovendien maakt de grotere omvang van ratten ratten gemakkelijker te gebruiken met bepaalde gedragsmaatregelen, bijvoorbeeld zelftoediening van medicijnen.
- Blootstelling aan fixatie
- Wijs de rat willekeurig toe aan thuiskooicontrole, acute fixatiestress of chronische fixatiestressgroepen.
- Bepaal de duur van de blootstelling aan stress. Gebruik voor acute stressoren een enkele sessie van 5 minuten tot 12 uur opgesloten in het fixatieapparaat. Zorg er bij chronische stressoren voor dat de sessie overeenkomt met de duur van de acute stressor, maar dagelijks wordt herhaald gedurende slechts 3 dagen en zo lang als 21 dagen.
OPMERKING: Omdat ratten geen toegang hebben tot voedsel en water terwijl ze zich in de fixatietoestand bevinden, moet u overwegen of dieren in de thuiskooi ook geen toegang mogen hebben tot voedsel en water. - Volg de onderstaande stappen voor een in de handel verkrijgbare spanbuis.
OPMERKING: In de handel verkrijgbare bevestigingsbuizen voor ratten zijn beschikbaar. Deze apparaten hebben verschillende ontwerpen, waaronder metaaldraad, containers en plastic/plexiglas buizen met afgeronde en platte bodem. Elke optie is eenvoudig te gebruiken.- Plaats de rat in het apparaat, voeg vervolgens een stekker toe die is aangepast aan de grootte van het onderwerp en vergrendel deze op zijn plaats. Wanneer de rat in de fixatiebuis wordt geplaatst, zorg er dan voor dat de rat goed vastzit om kop-tot-staart draaien te voorkomen, maar gemakkelijk kan ademen.
OPMERKING: Deze apparaten zijn ontworpen voor het in bedwang houden van ratten en hoeven niet te worden aangepast voor de ademhaling. Deze studie maakt gebruik van de tailveiner-fixatie (Table of Materials), die zuignappen op een platform onder de buis bevat om het apparaat vast te zetten. Een bijkomend voordeel van dit apparaat is dat de staart buiten het apparaat toegankelijk is voor controle over de proefpersoon tijdens het inbrengen en verwijderen uit de buis of staartader bloedafname tijdens fixatie.
- Plaats de rat in het apparaat, voeg vervolgens een stekker toe die is aangepast aan de grootte van het onderwerp en vergrendel deze op zijn plaats. Wanneer de rat in de fixatiebuis wordt geplaatst, zorg er dan voor dat de rat goed vastzit om kop-tot-staart draaien te voorkomen, maar gemakkelijk kan ademen.
- Plaats in een testruimte die gescheiden is van dierhuisvesting en gedragstesten de aan een beveiligingssysteem toegewezen animas in de fixatiebuis voor de aangegeven lengte van de fixatie. Plaats de bevestigingsbuis horizontaal op een vlakke ondergrond.
OPMERKING: Onder stressomstandigheden produceren ratten ook ultrasone vocalisaties. Overweeg of de onderzoeksopzet geluidsisolatie vereist van andere ingetogen proefpersonen. - Controleer elk dier tijdens fixatiestress ten minste elke 20 minuten. Bepaal visueel of het dier ongebruikelijke reacties vertoont (langzame ademhaling, gebrek aan beweging). Indien waargenomen, verwijder de rat dan uit de fixatiebuis, neem contact op met een dierenarts en sluit de rat uit van het onderzoek.
- Breng de rat terug naar de thuiskooi en zorg voor toegang tot voedsel en water.
3. Beoordelingen van stress
- Meting van HPA-activering
- Indien van toepassing, na blootstelling aan fixatie, stress of verwijdering uit de thuiskooi, onthoofden proefpersonen snel om stambloed op te vangen in gehepariniseerde buisjes.
- Isoleer plasma via centrifugatie en bewaar plasmamonsters bij -80 °C. Analyseer bloedcorticosteron met behulp van een enzymgekoppelde immunosorbenttest (ELISA)-kit.
OPMERKING: Hoewel corticosteron vaak wordt gebruikt als een uitlezing van de ernst van blootstelling aan stress, met name acute stress, correleren corticosteronspiegels niet altijd met door stress veroorzaakte gedragsveranderingen6. Bovendien went de respons van de HPA-as die de afgifte van corticosteron reguleert aan herhaalde blootstelling aan dezelfde stressor18. Als alternatief kan adrenocorticotroop hormoon (ACTH) een betrouwbaardere maatstaf zijn voor de intensiteit van een acute stressor4. Het blijft ongeveer een uur na het stoppen van de blootstelling aan stressfactoren verhoogd, maar ernstige en langdurige (ongeveer > 2 uur) stress kan de productie ervan vermoeien.
- Gedragseffecten
- Beoordeel, indien van toepassing, na blootstelling aan fixatiestress of verwijdering uit de huiskooi, de gedragsprestaties van het knaagdier met de juiste gedragstaak.
OPMERKING: Meer informatie over de effecten van fixatie op verschillende gedragsmodellen is te vinden in het discussiegedeelte.
- Beoordeel, indien van toepassing, na blootstelling aan fixatiestress of verwijdering uit de huiskooi, de gedragsprestaties van het knaagdier met de juiste gedragstaak.
- Neurobiologie
- Als alternatief of aanvullend beoordelen van de neurobiologische functie na beperking, stress, blootstelling of controle. Een breed scala aan tests kan de effecten van terughoudendheidsstress op cellulaire, synaptische en circuits onderzoeken. Implanteer, afhankelijk van de test, een in vivo meetapparaat of oogst hersenweefsel om de geselecteerde analyse uit te voeren.
OPMERKING: De effecten van stress op celtype-specifieke veranderingen in eiwitsynthese en epigenetische modificaties zijn grondig beoordeeld door McEwen en collega's1. Deze genetische en eiwitmodificaties induceren plasticiteit om synaptische verbindingen en circuits te veranderen. Om deze onderzoeken uit te voeren, moet hersenweefsel worden geoogst na blootstelling aan stress en genomische, proteomische, ex vivo fysiologie en andere analyses worden uitgevoerd. U kunt ook neurobiologische veranderingen beoordelen door middel van in vivo metingen zoals microdialyse, fast-scan cyclische voltammetrie (FSCV), vezelfotometrie en andere. Deze benaderingen registreren neurochemische afgifte en neuronale activering, zowel na blootstelling aan fixatiestress 2,19 als nu tijdens fixatie 8,9,20. De toolbox om de neurobiologische mechanismen die ten grondslag liggen aan de effecten van fixatiestress te beoordelen, breidt zich snel uit, waardoor nieuwe inzichten in de complexiteit van stress mogelijk worden.
- Als alternatief of aanvullend beoordelen van de neurobiologische functie na beperking, stress, blootstelling of controle. Een breed scala aan tests kan de effecten van terughoudendheidsstress op cellulaire, synaptische en circuits onderzoeken. Implanteer, afhankelijk van de test, een in vivo meetapparaat of oogst hersenweefsel om de geselecteerde analyse uit te voeren.
Resultaten
In een eerder gepubliceerde studie21 werden de in dit manuscript beschreven procedures voor fixatiestress gebruikt om de impact van fixatiestress op de regulatie van cortisol en noradrenaline te beoordelen, vallend onder de brede mogelijkheden van veranderingen in de neurobiologie veroorzaakt door stress vermeld in protocol 3.3. In deze studie hebben we het hierboven beschreven protocol gebruikt voor het in bedwang houden van muizen. Aanvullende details die buiten het bestek van de terughoudendheidsfocus van dit artikel vallen, bijvoorbeeld de grondgedachte voor het hersengebied, optogenetische stimulatieparameters of FSCV, zijn te vinden in het manuscript waarnaar wordt verwezen.
We gebruikten mannelijke en vrouwelijke transgene muizen (DBH:Cre+/-::Ai32+/-) die selectief channelrhodopsine tot expressie brachten in noradrenerge neuronen en maten de gestimuleerde afgifte van noradrenaline in de bedkern van de stria terminalis (BNST) met ex vivo FSCV21. Muizen werden vastgehouden zoals beschreven in protocol 1 acuut (2 uur) en chronisch (2 uur/dag gedurende 5 dagen) of thuiskooicontrole. Na blootstelling werd bij sommige proefpersonen bloed afgenomen voor corticosteronanalyse, zoals beschreven in protocol 3.1. Onmiddellijk na acute fixatiestress vertoonden muizen verhoogde corticosteronspiegels, maar de respons werd afgezwakt na herhaalde stress (zie figuur 1). Extra muizen werden gebruikt om de impact van fixatiestress op de afgifte van noradrenaline te beoordelen. 24 uur na de laatste blootstelling aan stress werd hersenweefsel snel geoogst en in plakjes gesneden om de afgifte van noradrenaline in de BNST te registreren. Interessant is dat de acute fixatie geen invloed had op de gestimuleerde afgifte van noradrenaline, maar herhaalde blootstelling aan stress veroorzaakte een significante toename van de gestimuleerde noradrenalineafgifte over stimulatieparameters heen (zie figuur 2). Deze resultaten komen overeen met eerdere onderzoeken naar de impact van fixatiestress op de afgifte van noradrenaline bij ratten met behulp van de benaderingen beschreven in protocol 2 17,22.

Figuur 1: Corticosteron in het plasma van controles in de thuiskooi (naïef) en na acute (enkelvoudige) en chronische (herhaalde) fixatiestress. Na een enkele sessie van 2 uur van acute fixatiestress waren de plasmacorticosteronspiegels verhoogd in vergelijking met zowel naïeve als herhaalde stressproefpersonen. De resultaten worden uitgedrukt als gemiddelde ± SEM. N = 5-6 muizen per groep. **p < 0,05, ***p < 0,005. Dit cijfer is aangepast met toestemming van Schmidt et al.21. Klik hier om een grotere versie van deze figuur te bekijken.
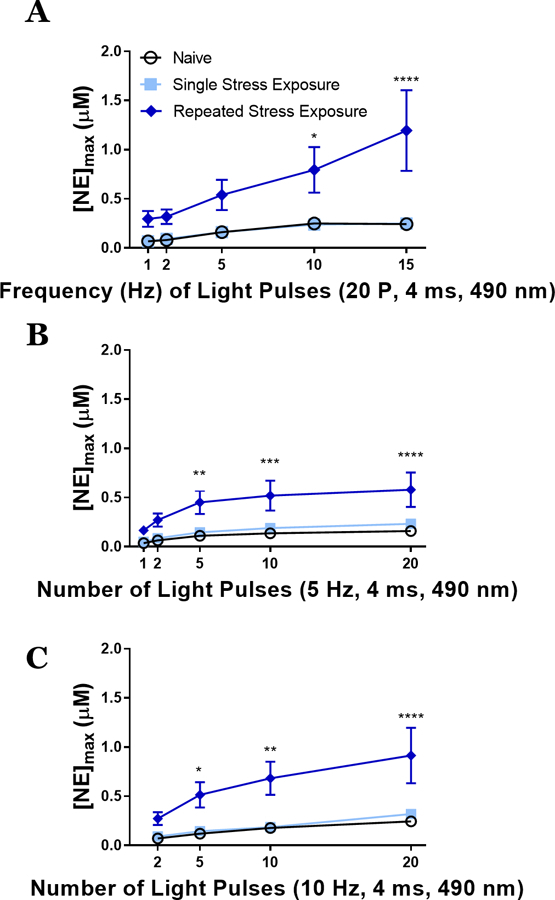
Figuur 2: Optogenetisch gestimuleerde afgifte van noradrenaline is verhoogd na chronische (herhaalde) fixatiestress. De dag na de laatste blootstelling aan stress werd ex vivo fast-scan cyclische voltammetrie uitgevoerd om de optogenetisch gestimuleerde afgifte van noradrenaline in de bedkern van de stria terminalis van muizen te meten. (A) Variaties in frequentie (Hz) van 20 pulsen (20 P) stimulaties maakten meer noradrenaline vrij in de groep met herhaalde stress. (B, C) Variaties in het aantal pulsen (2-20) bij een stimulatiefrequentie van 5 Hz (B) of 10 Hz (C) duidden op meer afgifte van noradrenaline in de groep met herhaalde stress. Gemiddelde ± SEM; n = 5−6 muizen/groep die 7−8 plakjes per groep levert. *p < 0,05, **p < 0,05, ***p < 0,005 en ****p < 0,0001. Dit cijfer is aangepast met toestemming van Schmidt et al.21. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Om de effecten van stress op fysiologische, neurobiologische en gedragsfuncties in knaagdiermodellen te onderzoeken, moeten aandoeningen worden gebruikt die stress bij knaagdieren veroorzaken. Een van deze overwegingen zijn de omstandigheden die stressreacties bij de proefpersoon veroorzaken. Terughoudendheid is een gevalideerde procedure om fysiologische en gedragsmatige reacties bij knaagdieren te produceren die overeenkomen met stresseffecten bij mensen. Met behulp van een methodologie die vergelijkbaar is met dit protocol, is terughoudendheid gebruikt om een aantal moleculaire, cellulaire, endocriene en fysiologische reacties te beoordelen die verband houden met modellen van psychiatrische stoornissen, waaronder angst, depressie, pijn en stoornis in het gebruik van middelen 1,19. Hier worden gegevens uit een gepubliceerde studie gepresenteerd als een voorbeeld van terughoudendheid bij knaagdieren, maar de effecten van terughoudendheid reiken verder dan dit specifieke voorbeeld en omvatten een breed scala aan afhankelijke maatregelen. Terughoudendheid kan worden gekozen voor gebruik als stressfactor, omdat het gemakkelijk uit te voeren is bij muizen en ratten, goedkoop op te zetten is en kan worden aangepast om verschillende niveaus van stressreacties op te wekken, afhankelijk van de gebruikte parameters.
In vergelijking met andere stress-inducerende benaderingen, heeft terughoudendheid enkele beperkingen waarmee rekening moet worden gehouden tijdens de onderzoeksopzet 4,23. Met name fixatiestress veroorzaakt niet altijd gedragsveranderingen die worden waargenomen bij andere fysieke stressoren, zoals intermitterende voetschok24. Deze inconsistenties kunnen het gevolg zijn van het voordeel van terughoudendheid dat het in verschillende omgevingen kan voorkomen, terwijl voetschok meer beperkt is tot een testkamer die is uitgerust met schokroostervloeren. Stresscontexten hebben een grote invloed op de resulterende effecten11. Bovendien is opsluiting in een traditionele veiligheidskoker of -apparaat een nadeel omdat het de toegang tot de persoon tijdens de fixatie beperkt. Er zijn nieuwere beveiligingsapparaten ontwikkeld, bijvoorbeeld "REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)", om deze beperking te overwinnen en tethering mogelijk te maken voor het verzamelen van neurobiologische gegevens tijdens fixatiesessies 8,9,20. Een andere benadering om dit obstakel aan te pakken gebruikt immobilisatiestress als een vergelijkbare techniek als fixatie - vaak worden immobilisatie en fixatie als synoniemen gebruikt, maar met belangrijke verschillen25. Immobilisatiestress houdt in dat de armen, benen en kop van een dier aan een oppervlak worden vastgemaakt, terwijl fixatie inhoudt dat het in een beperkend apparaat wordt geplaatst. Als zodanig beperkt immobilisatiestress de beweging en biedt het toegang tot de proefpersoon voor het verzamelen van bloed, hersenvocht, pupilreacties of andere fysiologische effecten die van belang kunnen zijn voor stressonderzoek. Bijkomende stressfactoren die zijn gebruikt om stress bij knaagdieren op te wekken, zijn onder meer koudestress in de omgeving, toediening van farmacologische middelen zoals corticosteron of yohimbine, ethologisch relevante ervaringen van sociale nederlaag of blootstelling aan roofdiergeur, en multimodale stress zoals chronische onvoorspelbare stress (CUS). Deze alternatieve stressmodaliteiten zijn geselecteerd voor gebruik vanwege hun voordelen bij het modelleren van specifieke aspecten van stress. Ondanks dat terughoudendheid bijvoorbeeld een aspect is van CUS-modellen bij muizen en ratten26, kunnen de effecten van CUS verschillen van die veroorzaakt door een gelijkwaardige blootstelling aan chronische fixatiestress27,28. De voorspelbaarheid van herhaalde fixatie vermindert de respons op toekomstige fixatie-episodes, wat de effectiviteit van homotypische fixatiestress beperkt. Als alternatief roteren CUS en andere heterotypische stressmodellen stressoren of contexten om gewenning te minimaliseren11,18. Deze onvoorspelbare stressmodellen kunnen aspecten van menselijke psychiatrische aandoeningen beter modelleren om verlies van controle en verwachting volledig in te kapselen. Een ander nadeel van terughoudendheid dat andere stressmodaliteiten beter kunnen aanpakken, is de sociale bijdrage aan stressgevoeligheid en stressbuffering 29,30,31. Knaagdieren en mensen zijn sociale dieren met soortgenoten en hiërarchieën. Hoewel fixatiestress geen socialisatie omvat, vormen psychosociale stressoren zoals sociale nederlaagstress een ethologisch relevante stressfactor voor knaagdieren 32,33,34.
Binnen het gebruik van fixatiestress is de intensiteit en herhaling van de toediening een parameter die kan worden gemanipuleerd5. Om een robuustere fixatiespanning te creëren, kan het onderzoeksontwerp een langere tijd in het beveiligingsapparaat vereisen. Zo kort als 5 minuten of zo lang als 12 uur zijn mogelijke parameters voor acute of langdurige fixatiesessies, respectievelijk35,36. Zodra de duur van de blootstelling aan de fixatie is bepaald, kan de herhaling van de stressor ook een factor zijn bij het induceren van verschillende niveaus van stress35,37. Opgemerkt moet worden dat herhaalde fixatiestress niet noodzakelijkerwijs een toename van de waargenomen effecten betekent. Vaak zorgt herhaalde fixatie ervoor dat stress gewend raakt of anderszins vermindert18. In de hier gepresenteerde gegevens zagen we gewenning met de corticosteronrespons op herhaalde fixatiestress, terwijl we tegelijkertijd verschillen in gestimuleerde noradrenalineafgifte alleen maten in de groep met herhaalde blootstelling aan stress. Daarom moeten de effecten van herhaalde fixatie zorgvuldig worden onderzocht voordat gewenningseffecten worden bepaald35.
Bovendien moet rekening worden gehouden met de gevolgen van de huisvestingsomstandigheden die worden gebruikt in onderzoeken met behulp van fixatiestress. Interactie met gestresste soortgenoten heeft invloed op stressreacties bij knaagdieren 30,38,39. Om consistente reacties in verschillende experimentele groepen te behouden, moeten proefpersonen dus individueel worden gehuisvest of als een groep worden gehuisvest met alle kooigenoten die dezelfde stressconditie ervaren37. Cruciaal is dat een nadeel van deze benadering van sociaal isolement van alle proefpersonen is dat huisvesting in sociaal isolement ook een stressfactor is40,41. Ongeacht de woonomstandigheden moet blootstelling aan stress echter, indien mogelijk, geïsoleerd plaatsvinden om te voorkomen dat sociale buffering van stress de uitkomstmetingen beïnvloedt30. Samen met deze huisvestingsomstandigheden moet de timing van de blootstelling aan stress in relatie tot omgevingslichtcycli in overweging worden genomen14,15. Zoals sommige studies opmerken37, volgen corticosteroïdspiegels circadiane ritmes, dus het toedienen van stressoren op verschillende tijdstippen in de lichtcyclus kan inconsistente effecten veroorzaken. Daarom is het essentieel om een uniforme starttijd voor fixatie vast te stellen en aan te houden. Een paper waarin de effecten van inspanningsstress op de circadiane controle van corticosteron worden onderzocht, toont bijvoorbeeld aan dat corticosteron bij controlemuizen laat in de lichtcyclus piekt, maar bij gestreste muizen blijft corticosteron verhoogd zonder een stabiele piek13. In het licht van deze bevindingen wordt aanbevolen om knaagdieren vroeg in de lichtcyclus te stressen om de grootste effecten te produceren.
Naast de parameters van de fixatiecondities, waren de kenmerken van de proefpersoon ook belangrijk om te overwegen in studies met behulp van fixatiestressoren. Talrijke onderzoeken rapporteerden bijvoorbeeld sekseverschillen met behulp van fixatiestress 12,35,37,42,43,44. Het begrijpen van de mechanismen die aan deze verschillen ten grondslag liggen, is het onderzoeken waard en kan leiden tot betere resultaten voor rechtvaardige behandelingen wanneer mensen stress ervaren. Misschien ervaren en verwerken vrouwen en mannen stressoren anders, wat leidt tot een toename van angst en depressie bij vrouwen44. Fixatiestress vermindert bijvoorbeeld de leerprestaties bij mannen, maar verhoogt de leerprestaties bij vrouwenvan 45 jaar. Historisch gezien hebben studies naar fixatie bij knaagdieren hun proefpersonen beperkt tot mannetjes, maar in de toekomst moeten we experimenten ontwerpen om beide geslachten op te nemen. Een ander kenmerk waarmee rekening moet worden gehouden bij het ontwerpen van experimenten met behulp van fixatie (en andere) stressoren bij muizen- of rattensoorten is de stam 46,47,48,49,50,51. Spanningseffecten zijn waargenomen in een aantal paradigma's, waarbij sommige stammen verergerde reacties op terughoudendheidsstress vertonen. Ten slotte moet rekening worden gehouden met de leeftijd van de proefpersoon bij het gebruik van fixatiestress. Van prenatale blootstelling aan stress door een zwangere moeder in bedwang te houden tot terughoudendheid bij oudere populaties, fixatiestress kan op elk moment worden aangepast. Verschillen in de stressrespons zijn aangetoond gedurende de levensduur 45,52,53,54,55,56. Naast het vereisen van verschillende fixatiemiddelen om veranderingen in lichaamsgrootte op te vangen naarmate veroudering optreedt, moet rekening worden gehouden met leeftijdsgerelateerde stresservaringen bij het gebruik van fixatiestressoren.
De selectie van de juiste uitkomstmeting, of het nu gaat om een gedragstaak beschreven in 3.2 of een neurobiologische variabele beschreven in 3.3, vereist overweging. Ten eerste is aangetoond dat acute, milde blootstelling aan stress de prestaties bij sommige leertaken verbetert, maar intense of chronische blootstelling aan stress schaadt de prestaties bij leer- en geheugentaken57. Aangenomen wordt dat deze verschuivingen in cognitieve prestaties worden gereguleerd door circuitontregeling tussen de prefrontale cortex, amygdala en hippocampus. De effecten van fixatiestress op cognitieve flexibiliteit zijn echter meer gemengd met inconsistente bevindingen die een duidelijk beeld belemmeren van hoe gevarieerde parameters van fixatie het omkeringsleren of setshifting veranderen58. Met betrekking tot de gedragseffecten van drugs is aangetoond dat fixatiestress, net als andere stressoren, het gedrag dat verband houdt met een stoornis in het gebruik van middelen verhoogt in een aantal drugsklassen59. Deze effecten zijn echter enigszins selectief in die zin dat fixatiestress niet wordt gerapporteerd als drijvend voor het zoeken naar drugs in operante conditioneringsmodellen van terugval, maar wel het associatief leren van drugseffecten verhoogt, zoals gemeten door geconditioneerde plaatsvoorkeurstaken, waaronder herstel60. Men denkt dat deze discrepantie optreedt omdat fixatieapparaten een andere context creëren dan operante conditioneringskamers, terwijl voetschokstress kan optreden in de operante omgeving. Om deze beperking te overwinnen, heeft het koppelen van blootstelling aan stress met signalen die kunnen worden gepresenteerd tijdens operante zelftoedieningssessies aangetoond dat de door stress geïnduceerde toename van het gebruik van drugs en het zoeken naar drugs61. De effecten van chronische terughoudendheid op drugsgerelateerd gedrag zijn minder goed gekarakteriseerd. Rekening houdend met modellen van affectieve stoornissen zoals angst en depressie, zowel bij mensen als bij diermodellen, verhoogt blootstelling aan stress de angstmaatregelen. Bij knaagdieren omvatten stressbeoordelingen van angst thigmotaxis-reacties in het open veldapparaat, gemeten door de locomotorische respons van het dier langs de muren in de arena te volgen in vergelijking met het centrum. Dieren die angstachtig gedrag vertonen na fixatie, zullen meer tijd doorbrengen in de buurt van de zijkanten en hebben minder kruisingen in het midden. Een andere benadering om angst te meten is het verhoogde plusdoolhof. Deze taak maakt gebruik van een apparaat in de vorm van een kruis dat ongeveer 3 voet boven de vloer is verheven. Twee armen van het apparaat zijn voorzien van muurbarrières; Twee armen hebben open zijkanten. Dieren die angstachtig gedrag vertonen, zullen meer tijd doorbrengen in de gesloten armen dan in de open armen62,63. Depressie-achtig gedrag wordt beoordeeld door middel van de gedwongen zwemtaak waarbij knaagdieren in een cilinder met water worden geplaatst en gemeten op worstelende reacties in vergelijking met drijvende reacties64. Of het stoppen met ontsnappen echt depressief gedrag vertegenwoordigt, is in twijfel getrokken65, maar de taak heeft nut getoond als een scherm voor antidepressiva. Depressie-achtig gedrag kan ook worden beoordeeld door door stress veroorzaakte verminderingen van de sucrosevoorkeur66. Deze veranderingen in de consumptie van zoete vloeistof worden genomen als een beoordeling van de anhedonie-aspecten van klinische depressie.
Samenvattend is terughoudendheid bij muizen en ratten een gevalideerde procedure om stress- en angstreacties te produceren in studies van fysiologie, genetica, immunologie en neurowetenschappen. In vergelijking met andere stress-inducerende benaderingen is fixatie goedkoop, gemakkelijk uit te voeren, nuttig om aspecten van menselijke stoornissen te modelleren, waaronder angst, depressie, stoornis in het gebruik van middelen en posttraumatische stressstoornis, en kan het worden aangepast met een breed scala aan parameters. Om deze redenen blijft fixatiestress een nuttige methode om de impact van stress bij knaagdieren te bepalen.
Openbaarmakingen
Geen belangenconflicten te melden.
Dankbetuigingen
Ik waardeer de redactionele feedback van Holly Rahurahu en Sam Shaffer.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 50 mL Algemeen Gebruik Schroefdop Kegelbuis | Globe Scientific | 6288 | |
| Vaste Pipet Wasbak | Fisher Scientific | 13-681-500 | |
| ELISA Kit voor Corticosteron | Arbor Assays | K014-H | |
| Staartvenerfoutbegrenzer Buis | Braintree Scientific | RTV |
Referenties
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
Herprints en machtigingen
