Alcoholmisbruik schaadt de immuniteit van alveolaire macrofagen (AM) als gevolg van onderdrukte mitochondriale ademhaling en bio-energetica. We hebben onlangs aangetoond dat blootstelling aan ethanol (EtOH) de afhankelijkheid van glutamine voor mitochondriale ademhaling in AM's verhoogt. Hierin worden methoden aangereikt om het gebruik van glutamine voor mitochondriale ademhaling in met EtOH behandelde AM's te bepalen met behulp van een extracellulaire fluxbioanalysator.
Methodenartikel
Beoordeling van glutamine als brandstofbron voor alveolaire macrofagen blootgesteld aan chronische ethanol met behulp van een extracellulaire fluxbioanalysator
In dit artikel
Samenvatting
Samenvatting
Alveolaire macrofagen (AM's) zijn de eerste verdedigingslinie in de onderste luchtwegen tegen ziekteverwekkers. Chronisch en overmatig alcoholgebruik schaadt echter het vermogen van AM's om te fagocytoseren en ziekteverwekkers uit de alveolaire ruimte te verwijderen, deels door een ontregeld brandstofmetabolisme en bio-energetica. Ons eerdere werk heeft aangetoond dat chronische consumptie van ethanol (EtOH) de mitochondriale bio-energetica schaadt en het lactaatgehalte in AM's verhoogt. Verder hebben we onlangs aangetoond dat EtOH de glutamineafhankelijkheid en glutamine-afhankelijke maximale ademhaling verhoogt, terwijl het de flexibiliteit vermindert, verschuivend van pyruvaat-afhankelijke ademhaling naar glutamine-afhankelijke ademhaling. Glutaminolyse is een belangrijke compenserende route voor mitochondriale ademhaling wanneer pyruvaat wordt gebruikt voor de productie van melkzuur of wanneer andere brandstofbronnen onvoldoende zijn. Met behulp van een AM-cellijn van muizen, MH-S-cellen, blootgesteld aan geen EtOH of EtOH (0,08%) gedurende 72 uur, bepaalden we de afhankelijkheid van mitochondriale ademhaling en bio-energetica van glutamine als brandstofbron met behulp van een extracellulaire fluxbioanalysator. Real-time metingen werden uitgevoerd als reactie op bis-2-(5-fenylacetamido-1,3,4-thiadiazol-2-yl) ethylsulfide (BPTES), een remmer van glutaminase 1, die de enzymatische omzetting van glutamine in glutamaat voorkomt, in media-vehicula of als reactie op vehiculum alleen, gevolgd door het testen van mitochondriale stress. Het stapsgewijze protocol dat hierin wordt aangeboden, beschrijft onze methoden en berekeningen voor het analyseren van gemiddelde niveaus van glutamine-afhankelijke basale mitochondriale ademhaling, mitochondriale ATP-gekoppelde ademhaling, maximale mitochondriale ademhaling en mitochondriale reserve-ademhalingscapaciteit over meerdere biologische en experimentele replicaten.
Inleiding
Alcoholgebruiksstoornis (AUD) treft meer dan 28 miljoen mensen in de Verenigde Staten1. Mensen met AUD hebben 2-4 keer meer kans op het ontwikkelen van luchtweginfecties 2,3, waardoor het risico op vroegtijdige morbiditeit en mortaliteittoeneemt 3,4,5. Alcoholmisbruik verhoogt de vatbaarheid voor luchtweginfecties, deels door de onderdrukkende immuunfunctie van de longen. Alveolaire macrofagen (AM's) zijn de eerste linie van cellulaire afweer tegen ziekteverwekkers in de onderste longen, waar ze fagocyën en ingeademde microben verwijderen. Chronisch alcoholgebruik schaadt echter het vermogen van AM's om ziekteverwekkers op te slokken en te doden 6,7.
De immuunfuncties van AM's, zoals fagocytose, zijn energie-eisende processen die metabolisch actieve routes vereisen die nodig zijn voor de aanmaak van hoge adenosinetrifosfaat (ATP). Mitochondriale oxidatieve fosforylering is het meest efficiënte cellulaire proces voor het produceren van ATP, maar chronische blootstelling aan ethanol (EtOH) verhoogt de mitochondriale oxidatieve stress, wat kan resulteren in mitochondriale disfunctie bij AM's 8,9,10. Mitochondriale ademhaling gemeten met behulp van cellulaire zuurstofverbruikssnelheid (OCR) kan in realtime worden gekwantificeerd met behulp van een extracellulaire fluxbioanalysator. Mitochondriale ademhalingsprofielen beoordeeld als reactie op oligomycine (ATP-synthaseremmer), carbonylcyanide-p-trifluormethoxyfenylhydrazon (FCCP, protonontkoppeling) en rotenon/antimycine A (R/A, mitochondriaal complex I- en III-remmers, respectievelijk) worden gebruikt om mitochondriale bio-energetica te bepalen. Chronische EtOH verlaagt de mitochondriale bio-energetica in AM's, zoals blijkt uit verminderde mitochondriale basale ademhaling, ATP-gekoppelde ademhaling, maximale ademhaling en reserve ademhalingscapaciteit10.
Cellen zijn in verschillende mate afhankelijk van bronnen van brandstoffen, zoals pyruvaat, glutamine of vetzuren, voor de productie van ATP. Ze hebben ook een zekere mate van flexibiliteit waarbij ze het brandstofverbruik kunnen omschakelen om cellulaire bio-energetica te reguleren. Glutaminolyse is een belangrijke route voor mitochondriale ademhaling, vooral wanneer pyruvaat wordt omgeleid naar melkzuurproductie of wanneer vetzuren onvoldoende zijn. Onze recente studie toonde aan dat chronische blootstelling aan EtOH de AM-afhankelijkheid van glutamine verhoogt en de AM-flexibiliteit vermindert om glutamine en andere brandstofbronnen te gebruiken voor mitochondriale ademhaling11. Deze resultaten, samen met gegevens die aantonen dat behandeling van EtOH-blootgestelde MH-S-cellen met de pyruvaatoxidatieremmer UK5099 de mitochondriale bio-energetica niet veranderde in vergelijking met aan mediacontrole blootgestelde MH-S-cellen die met UK5099 werden behandeld, suggereerden een verschuiving van pyruvaatafhankelijke ademhaling naar glutamine-afhankelijke ademhaling in EtOH MH-S-cellen. Deze verschuiving is echter onvoldoende om te voldoen aan de bio-energetische eisen van AM11. Hierin beschrijven we de methoden om glutamine te beoordelen als brandstofbron voor mitochondriale ademhaling in chronische aan EtOH blootgestelde AM's met behulp van een extracellulaire fluxbioanalysator. Dit protocol is gemaakt en geoptimaliseerd voor een formaat met 96 putjes (11,04 mm2 gebied) en moet worden aangepast voor grotere celkweekputjes. De afhankelijkheid van glutamine voor mitochondriale bio-energetica wordt bepaald met behulp van bis-2-(5-fenylacetamido-1,3,4-thiadiazol-2-yl) ethylsulfide (BPTES, remmer van glutaminase 1) om de enzymatische omzetting van glutamine in glutamaat selectief te remmen. De gegevens die in deze studie worden gepresenteerd, zijn aanvullende biologische replicaten voor de met mediacontrole en BPTES behandelde experimentele groepen van onbehandelde controle- en chronische EtOH-blootgestelde AM-cellijn van muizen, MH-S-cellen, die zijn gepubliceerd in Crotty et al.11.
Protocol
1. Chronische blootstelling aan EtOH in vitro
- Kweek MH-S-cellen, een alveolaire macrofaagcellijn van muizen, in volledige media die RPMI-1640 bevatten met 10% foetaal runderserum, 1% penicilline/streptomycine, 11,9 mM natriumbicarbonaat, 40 mg/ml gentamicine en 50 μM 2-mercaptoethanol bij 37°C met 5% CO2 in een bevochtigde incubator.
- Behandel gekweekte MH-S-cellen met of zonder EtOH (0,8 mg/ml of 0,08%) gedurende 72 uur, waarbij EtOH elke 24 uur moet worden vervangen. Incubeer met EtOH behandelde MH-S-cellen bij 37 °C met 5% CO2 in een aparte bevochtigde incubator met 0,08% EtOH in het incubatorwater.
2. Het plateren van MH-S-cellen voor het beoordelen van glutamine als brandstofbron met behulp van een extracellulaire fluxbioanalysator
- Zorg ervoor dat onbehandelde controle (Con)- en chronische EtOH-behandelde MH-S-cellen worden gekweekt tot ten minste 50% confluentie (70%-90% confluentie is ideaal) in T-75-kolven om in een 96-well extracellulaire flux microcultuurplaat te gaan. Maak een plaatkaart voor 5-6 technische replicaten per biologisch replicaat van Con- en EtOH-experimentele omstandigheden en mediacontroles voor elk om te vergelijken met BPTES-injecties (vier groepen in totaal voor biologische n= 1).
- Spoel de cellen af met media of fosfaatgebufferde zoutoplossing.
- Voeg 6 ml serumbevattend medium toe aan de kolf.
- Schraap de cellen totdat ze loskomen en de bodem van de plaat vrij is. Trypsine is niet nodig voor MH-S-celloslating, maar kan nuttig zijn bij andere celtypen.
- Scheid de cellen met behulp van een serologische pipet of een pipet van 1 ml.
- Breng de zwevende cellen over in een conische buis van 15 ml en centrifugeer ze gedurende 6 minuten bij 200 x g .
- Aspireer de supernatant.
- Voeg 1 ml media toe en resuspendeer de cellen grondig.
- Breng 10 μL over in een microcentrifugebuisje en voeg 10 μL trypanblauw toe. Goed mengen.
- Breng 10 μL van het mengsel van cel en trypanblauw over naar één kant van een hemocytometer of celteller.
- Tel het aantal cellen met behulp van een lichtmicroscoop of cellenteller.
- Bereken de celdichtheid als een gemiddeld levend celgetal per milliliter.
- Maak berekeningen voor de verdunningen die nodig zijn:
Aantal benodigde putjes x 10000-15000 cellen = totaal aantal benodigde cellen.
Aantal benodigde putjes x 80 μL = totaal volume benodigde geresuspendeerde cellen. - Breng 80 μL cellen aan op de benodigde putjes van de 96-well extracellulaire flux microcultuurplaat.
- Laat de hoekputten volledig vrij van cellen of media. Deze putjes zullen worden gebruikt voor achtergrondmetingen.
- Incubeer cellen in een bevochtigde incubator van 37 °C met 5% CO2 's nachts om de cellen te laten hechten en in evenwicht te brengen in de extracellulaire flux-microcultuurplaat.
- Behandel MH-S-cellen in de 96-well extracellulaire flux microcultuurplaat gedurende 72 uur met behulp van stap 1.
- Hydrateer ten minste 4 uur en tot 24 uur voordat u het extracellulaire fluxbioanalyzer-experiment uitvoert een extracellulaire flux pak-cartridge met 96 putjes.
- Verwijder het bovenste gedeelte van het extracellulaire fluxpak en plaats het gesonde gedeelte van het fluxpak met de voorkant naar boven op de bank. Breng 200 μL extracellulaire fluxcalibrantoplossing aan op elk putje in het onderste deel van de extracellulaire flux pak-patroon.
- Leg de secties in elkaar en wikkel de extracellulaire flux pak-cartridge in parafilm. Plaats het in een 37 °C niet-CO2 bevochtigde incubator of 37 °C parelbad.
- Schakel de computer met het testontwerp in en open de hardloop-/analysesoftware die is aangesloten op het extracellulaire fluxbioanalyser-instrument om het ten minste 4 uur voorafgaand aan het uitvoeren van het experiment op te warmen.
3. Gebruik van een extracellulaire fluxbioanalysator om glutamine te beoordelen als brandstofbron voor mitochondriale ademhaling in MH-S-cellen
OPMERKING: Het algemene overzicht van deze procedure wordt weergegeven in afbeelding 1.
- Controleer Con- en EtOH-behandelde gekweekte MH-S-cellen onder een lichtmicroscoop en zorg ervoor dat de cellen gezond zijn en in een monolaag aan de putjes hechten. Zorg ervoor dat de cellen ten minste 70% confluent zijn (90% confluentie is ideaal) om de test betrouwbaar uit te voeren.
- Bereid het extracellulaire flux basismedium voor met de volgende supplementen:
- Aliquot 35 ml extracellulair fluxbasismedium in een buisje van 50 ml.
- Voeg 350 μl 100 mM natriumpyruvaat toe (1 mM eindconcentratie), 350 μL D-glucose (10 mM eindconcentratie) en 350 μL GlutaMAX, dat beter houdbaar is in vergelijking met L-glutamine (2 mM eindconcentratie).
OPMERKING: Verse L-glutamine kan ook in dezelfde concentratie worden gebruikt. - Verwarm de oplossing tot 37 °C en zorg ervoor dat de pH 7,4 ± 0,05 is bij 37 °C.
- Zuig de groeimedia voorzichtig uit de extracellulaire microcultuurplaat. Laat zo min mogelijk media over zonder cellen van onderaf op te zuigen. Eenmaal wassen met maximaal 50 μl van het extracellulaire flux-aangevuld basismedium.
- Voeg 180 μL extracellulair flux aangevuld basismedium toe aan elk putje en incubeer de extracellulaire microcultuurplaat in een 37 °C niet-CO2 bevochtigde incubator gedurende 30 minuten tot 1 uur om evenwicht mogelijk te maken.
- Los de reagentia van de glutamineoxydatietest op:
- Voeg in de BPTES-buis 700 μL extracellulair flux-gesupplementeerd basismedium toe om een voorraadoplossing van 120 mM te maken. Pipeteer 10 keer op en neer om de verbinding goed op te lossen.
LET OP: BPTES veroorzaakt huid- en oogirritatie en kan irritatie van de luchtwegen veroorzaken. Draag beschermende handschoenen, oogbescherming en gelaatsbescherming bij het hanteren. Gooi de inhoud en containers weg bij een erkend afvalverwerkingsbedrijf. - Voeg in de oligomycinebuis 630 μL extracellulair flux aangevuld basismedium toe om een voorraadoplossing van 100 mM te maken. Pipeteer 10 keer op en neer om de verbinding goed op te lossen.
- Voeg in de FCCP-buis 720 μL extracellulair flux-aangevuld basismedium toe om een voorraadoplossing van 100 mM te maken. Pipeteer 10 keer op en neer om de verbinding goed op te lossen.
LET OP: FCCP is schadelijk bij inslikken, veroorzaakt ernstige brandwonden en oogletsel, kan een allergische huidreactie veroorzaken en kan langdurige schadelijke effecten hebben op in het water levende organismen. Draag beschermende handschoenen, beschermende kleding, oogbescherming en gelaatsbescherming bij het hanteren. Gooi de inhoud en containers weg bij een erkend afvalverwerkingsbedrijf. - Voeg in de R/A-buis 540 μL extracellulair flux-gesupplementeerd basismedium toe om een voorraadoplossing van 50 mM te maken. Pipeteer 10 keer op en neer om de verbinding goed op te lossen.
LET OP: Rotenon is dodelijk bij inslikken of inademen, veroorzaakt huidirritatie, veroorzaakt ernstige oogirritatie, kan irritatie van de luchtwegen veroorzaken en is zeer giftig voor in het water levende organismen, met langdurige gevolgen. Draag beschermende handschoenen, oogbescherming, gelaatsbescherming en ademhalingsbescherming. Gooi de inhoud en containers weg bij een erkend afvalverwerkingsbedrijf. Antimycine A is dodelijk als het wordt ingeslikt en is zeer giftig voor in het water levende organismen, met langdurige gevolgen. Gooi de inhoud en containers weg bij een erkend afvalverwerkingsbedrijf.
- Voeg in de BPTES-buis 700 μL extracellulair flux-gesupplementeerd basismedium toe om een voorraadoplossing van 120 mM te maken. Pipeteer 10 keer op en neer om de verbinding goed op te lossen.
- Bereid werkconcentraties van reagentia voor substraatoxidatie en mitochondriale stresstest voor:
- Meng voor BPTES 1.500 μL extracellulaire flux aangevuld basismedium met 500 μL 120 mM BPTES-voorraadoplossing om een 30 μM BPTES-werkoplossing te maken.
- Meng voor oligomycine 2.520 μL extracellulaire flux aangevuld basismedium met 480 μL 100 mM oligomycine om een 16 mM oligomycine werkoplossing te maken.
- Meng voor FCCP 2.865 μL extracellulaire flux aangevuld basismedium met 135 μL 100 mM FCCP om een 4,5 mM FCCP-werkoplossing te maken.
- Meng voor R/A 2.700 μL extracellulaire flux aangevuld basismedium met 300 μL 50 mM R/A om een werkende oplossing van 5 mM R/A te maken.
- Laad de poorten van de bovenkant van de extracellulaire flux pak-cartridge met het volgende:
- Laad de achtergrond- en mediacontroleputten met 20 μl extracellulair flux aangevuld basismedium in poort A, 22 μl oligomycine in poort B, 25 μl FCCP in poort C en 27 μl R/A in poort D.
- Laad de celbevattende putjes met 20 μL mediacontrole of BPTES in poort A (eindconcentratie van 3 μM voor BPTES), 22 μL oligomycine in poort B (eindconcentratie van 2 μM voor oligomycine), 25 μL FCCP in poort C (eindconcentratie van 0,5 μM voor FCCP) en 27 μL R/A (eindconcentratie van 0,5 μM voor R/A) in poort D.
- Voer het extracellulaire fluxbioanalyser-experiment uit met behulp van het computersoftwareprogramma voor het ontwerp en de analyse van de test dat aan het instrument is bevestigd met behulp van de volgende timing en injectiestrategie:
- Voor de injectie met poort A voor BPTES stelt u het aantal metingen in op 6. Stel de mengtijd in op 3 minuten, met een wachttijd van 0 minuten en een meettijd van 3 minuten.
- Voor de injectie met poort B voor oligomycine stelt u het aantal metingen in op 3. Stel de mengtijd in op 3 minuten, met een wachttijd van 0 minuten en een meettijd van 3 minuten.
- Voor de injectie met poort C voor FCCP stelt u het aantal metingen in op 3. Stel de mengtijd in op 3 minuten, met een wachttijd van 6 minuten en een meettijd van 3 minuten.
- Voor de injectie met poort D voor R/A stelt u het aantal metingen in op 3. Stel de mengtijd in op 3 minuten, met een wachttijd van 0 minuten en een meettijd van 3 minuten.
- Bekijk alle ingestelde achtergrond-, mediacontrole- en experimentele groepsputten. Sla de test op en voer deze uit. Laad eerst het extracellulaire fluxpak met AD-injecties. De kalibratie vindt plaats totdat de celplaat klaar is om te laden.
- Verwijder de celplaat onmiddellijk aan het einde van de test. Sla de resultaten op om ze later op een ander apparaat te analyseren.
- Controleer met een lichtmicroscoop of de cellen nog vastzitten. 1x wassen met fosfaatgebufferde zoutoplossing en lysecellen met een voorkeurscellysebuffer. Bewaren bij -80 °C of onmiddellijk testen voor eiwitconcentratie.
4. Analyse van resultaten om glutamine te beoordelen als brandstofbron voor mitochondriale ademhaling in MH-S-cellen
- Haal eiwit uit cellen in elk putje om de gegevens over het zuurstofverbruik (OCR) te normaliseren naar eiwit:
- Bereken de concentratie (nanogram/microliter [ng/μL]) eiwit per putje.
- Bereken de gemiddelde eiwitconcentratie (ng/μL) voor de gehele extracellulaire flux microcultuurplaat.
- Deel de eiwitconcentratie van elk putje door de gemiddelde eiwitconcentratie van de plaat om een normalisatiefactor te krijgen.
- Pas de normalisatiefactor toe op het gegevensbestand van belang met behulp van het computersoftwareprogramma voor het ontwerpen en analyseren van de test.
- Zorg ervoor dat de OCR-waarden van alle achtergrondputten dicht bij 0 liggen.
- Deselecteer alle celwells waarvan de OCR bij baseline < 10 is. Gegevens worden niet verwijderd, maar gemarkeerde putten worden weergegeven in het geëxporteerde gegevensbestand.
- Exporteer de gegevens uit het computersoftwareprogramma voor het ontwerp en de analyse van de test naar een computerspreadsheetprogramma.
- Open het bestand in het computerspreadsheetprogramma en sorteer alle gegevens door de OCR-waarden te verlagen. Verwijder achtergrondputten, putten die eerder zijn gedeselecteerd (en niet waren verwijderd), putten met een lage cellevensvatbaarheid, putten met een lage celconfluentie, putten zonder volledige voltooiing van de injectiestrategie, putten met onnauwkeurige eiwitconcentratiemetingen, putten met baseline OCR < 10 en alle andere vooraf bepaalde criteria.
- Sorteer alle resterende gegevens op meting, vervolgens op groep en vervolgens op OCR.
- Gemiddelde de technische replica's van elke biologische N onafhankelijk door meting. Zorg ervoor dat er minimaal 18 verschillende waarden zijn (3 baseline, 3 na media/BPTES, 3 na oligomycine, 3 na FCCP en 6 na rotenon/antimycine A) per experimentele groep per biologische N na het gemiddelde van de technische replicaten. Doe dit voor elke biologische N afzonderlijk, zodat de standaarddeviatie of standaardfout van het gemiddelde later kan worden berekend voor geanalyseerde gegevens.
- Kopieer alle gemiddelde waarden naar een nieuwe spreadsheet, gescheiden per experimentele groep.
- Gemiddeld het gemiddelde van de OCR-waarden per injectiestrategie in elke experimentele groep.
- Bereken parameters van mitochondriale bio-energetica op basis van zuurstofverbruik:
- Bereken de basale ademhaling:
- Bereken de basale mitochondriale ademhaling als volgt:
Basale mitochondriale ademhaling (pmol O2 verbruikt) = ([AVG OCR-metingen #1, 2, 3 - AVG OCR-metingen #16, 17, 18] x [Tijd #3 - Tijd #1])
OPMERKING: De basale ademhaling moet vergelijkbaar zijn tussen mediacontrole- en BPTES-groepen, omdat dit is voordat de remmer wordt geïnjecteerd. - Bereken de basale mitochondriale ademhaling die niet afhankelijk is van glutamine als volgt:
Basale mitochondriale ademhaling niet afhankelijk van glutamine (pmol O2 verbruikt) = ([AVG OCR-metingen #4, 5, 6, 7, 8, 9 - AVG OCR-metingen #16, 17, 18] x [Tijd #9 - Tijd #4])
OPMERKING: Basale mitochondriale ademhaling die niet afhankelijk is van glutamine moet minder zijn dan basale mitochondriale ademhaling, tenzij cellen niet sterk afhankelijk zijn van glutamine. - Bereken de basale mitochondriale ademhaling afhankelijk van glutamine als volgt:
Basale mitochondriale ademhaling afhankelijk van glutamine (pmol O2 geconsumeerd) = ([AVG OCR-metingen #1, 2, 3 - AVG OCR-metingen #4, 5, 6, 7, 8, 9] x [Tijd #9 - Tijd #4])
OPMERKING: De totale basale mitochondriale ademhaling mag niet worden afgetrokken van de basale mitochondriale ademhaling en mag niet afhankelijk zijn van glutamine, aangezien deze op verschillende tijdstippen worden berekend.
- Bereken de basale mitochondriale ademhaling als volgt:
- Bereken de ATP-gekoppelde ademhaling als volgt:
- Bereken de totale mitochondriale ATP-gekoppelde ademhaling van alle brandstoffen als volgt:
Totale mitochondriale ATP-gekoppelde ademhaling van alle brandstoffen (pmol O2 verbruikt) = ([AVG OCR-metingen #1, 2, 3 - AVG OCR-metingen #10, 11, 12] x [Tijd #12 - Tijd #10])
OPMERKING: De gemiddelde OCR voor metingen #10, 11 en 12 moet vergelijkbaar zijn tussen mediacontrole- en BPTES-groepen, aangezien oligomycine ATP-synthase sterk zou moeten remmen en het remmen van één brandstofroute de totale ATP-gekoppelde ademhaling niet zou moeten veranderen. - Bereken ATP-gekoppelde mitochondriale ademhaling die niet afhankelijk is van glutamine als volgt:
ATP-gekoppelde mitochondriale ademhaling niet afhankelijk van glutamine (pmol O2 verbruikt) = ([AVG OCR-metingen #4, 5, 6, 7, 8, 9 - AVG OCR-metingen #10, 11, 12] x [Tijd #12 - Tijd #10])
OPMERKING: ATP-gekoppelde mitochondriale ademhaling die niet afhankelijk is van glutamine, moet minder zijn dan ATP-gekoppelde mitochondriale ademhaling, tenzij cellen niet sterk afhankelijk zijn van glutamine. - Bereken ATP-gekoppelde mitochondriale ademhaling afhankelijk van glutamine als volgt:
ATP-gekoppelde mitochondriale ademhaling afhankelijk van glutamine (pmol O2 verbruikt) = Totale ATP-gekoppelde mitochondriale ademhaling van alle brandstoffen - ATP-gekoppelde mitochondriale ademhaling niet afhankelijk van glutamine
- Bereken de totale mitochondriale ATP-gekoppelde ademhaling van alle brandstoffen als volgt:
- Bereken de maximale ademhaling als volgt:
- Bereken de totale maximale mitochondriale ademhaling als volgt:
Totale maximale mitochondriale ademhaling (pmol O2 verbruikt) = ([AVG OCR-metingen #13, 14, 15 - AVG OCR-metingen #16, 17, 18] x [Tijd #15 - Tijd #13]) - Bereken de maximale mitochondriale ademhaling die niet afhankelijk is van glutamine als volgt:
Maximale mitochondriale ademhaling niet afhankelijk van glutamine (pmol O2 verbruikt) = ([AVG OCR-metingen #13, 14, 15 van BPTES-groepen - AVG OCR-metingen #16, 17, 18 van BPTES-groepen] x [Tijd #15 - #Time 13]) - Bereken de maximale mitochondriale ademhaling afhankelijk van glutamine als volgt:
Maximale mitochondriale ademhaling afhankelijk van glutamine (pmol O2 verbruikt) = Totale maximale mitochondriale ademhaling van alle brandstoffen - Maximale mitochondriale ademhaling niet afhankelijk van glutamine
OPMERKING: Deze berekening kan worden gebruikt om de celafhankelijkheid te bepalen voor de reservecapaciteit van glutamine in vergelijking met andere brandstoffen. Hoe groter de maximale mitochondriale ademhaling, hoe groter de afhankelijkheid van glutamine, die kan worden uitgedrukt in BPTES-groepen - controlegroepen om een verlies in maximale mitochondriale ademhaling of als percentage van de totale ademhaling te laten zien.
- Bereken de totale maximale mitochondriale ademhaling als volgt:
- Bereken de vrije ademhalingscapaciteit als volgt:
- Bereken de totale reserve-ademhalingscapaciteit als volgt:
Totale vrije ademhalingscapaciteit (pmol O2 verbruikt) = ([AVG OCR-metingen #13, 14, 15 - AVG OCR-metingen #1, 2, 3] x [Tijd #15 - Tijd #13]) - Bereken de vrije ademhalingscapaciteit die niet afhankelijk is van glutamine als volgt:
Reserve ademhalingscapaciteit niet afhankelijk van glutamine (pmol O2 verbruikt) = ([AVG OCR-metingen #13, 14, 15 van BPTES-groepen - AVG OCR-metingen #1, 2, 3 van BPTES-groepen] x [Tijd #15 - Tijd #13]) - Bereken de reserve ademhalingscapaciteit afhankelijk van glutamine als volgt:
Reserveademhalingscapaciteit afhankelijk van glutamine (pmol O2 verbruikt) = Totale reserveademhalingscapaciteit van alle brandstoffen - Reserveademhalingscapaciteit niet afhankelijk van glutamine
OPMERKING: Deze berekening geeft de flexibiliteit weer van cellen die afhankelijk zijn van glutamine en of ze indien nodig een grotere ademhaling kunnen bereiken zonder glutamine.
- Bereken de totale reserve-ademhalingscapaciteit als volgt:
- Bereken de basale ademhaling:
- Trek de mediacontroles af van de remmergroepen en normaliseer desgewenst de geconsumeerde pmol O2 ten opzichte van de controlegroep.
- Maak grafieken van OCR-bio-energetische profielen (pmol O2/min), basale ademhaling (pmol O2), ATP-gekoppelde ademhaling (pmol O2), maximale ademhaling (pmol O2) en reserve ademhalingscapaciteit (pmol O2) afhankelijk van glutamine.
- Mitochondriale bio-energetische eindpuntwaarden weergeven in staafdiagrammen of uitdrukken als gemiddelden van de remmergroepen ten opzichte van de mediacontrolegroepen. Als elke biologische N afzonderlijk wordt berekend, bereken dan de standaarddeviatie of standaardfout van het gemiddelde voor geanalyseerde gegevens over alle biologische N's.
5. Statistische analyse
- Voer alle statistische analyses uit met behulp van de juiste software voor gegevensanalyse.
- Voor lineaire punten van OCR-bio-energetische profielen voert u tweerichtings-ANOVA uit, gevolgd door Tukey's post-hocanalyses om gegevens van deze vier experimentele groepen te vergelijken met twee factoren (behandelings- en injectiestrategie): Con + media, Con + BPTES, EtOH + media en EtOH + BPTES.
- Voor staafdiagrammen van basale ademhaling, ATP-gekoppelde ademhaling, maximale ademhaling en reserveademhalingscapaciteit afhankelijk van glutamine, voert u Student's t-testanalyses uit om gegevens van twee experimentele groepen, Con + BPTES en EtOH + BPTES, te vergelijken.
- Presenteer gegevens als gemiddelden ± standaardfout van het gemiddelde (SEM). Beschouw p < 0,05 als statistisch significant.
Resultaten
Chronische blootstelling aan EtOH vermindert de afhankelijkheid van glutamine in MH-S-cellen.
Glutaminolyse is een kritieke route voor mitochondriale ademhaling en ondersteunt glutamine als een belangrijke brandstofbron voor cellulaire bio-energetica. Om te bepalen of chronische blootstelling aan EtOH de afhankelijkheid van MH-S-cellen van glutamine als brandstofbron voor mitochondriale ademhaling verandert, werden MH-S-cellen behandeld zonder EtOH-controle (Con) of EtOH, en OCR werd in de loop van de tijd gemeten als reactie op seriële injecties van reagentia geassocieerd met mitochondriale ademhaling. OCR-bio-energetische profielen als reactie op seriële injecties van oligomycine (ATP-synthaseremmer), FCCP (protonontkoppeling) en R/A (respectievelijk mitochondriaal complex I- en complex III-remmers) worden gebruikt om andere parameters van mitochondriale bio-energetica te berekenen, zoals ATP-gekoppelde ademhaling, maximale ademhaling en reserve-ademhalingscapaciteit. Alle getoonde gegevens zijn aanvullende biologische replicaten van Con + media, Con + BPTES en EtOH + media, EtOH + BPTES MH-S celexperimentele groepen die zijn gepubliceerd in Crotty et al.11. Zoals te zien is in figuur 2A, verminderde oligomycine de OCR als gevolg van remming van complex V, FCCP verhoogde de OCR als gevolg van mitochondriale ontkoppeling van membraanpotentiaal en mitochondriënafhankelijke ATP-generatie12, en R/A sloot mitochondriën-afhankelijke OCR effectief af. Deze profielen van OCR-bio-energetische reacties op de seriële injecties komen overeen met de gebruikershandleiding voor het beoordelen van mitochondriale stress met behulp van een extracellulaire fluxbioanalysator13,14.
Nadat basale OCR was gemeten in met Con- en EtOH behandelde MH-S-cellen, werd een injectie van media control of BPTES, een remmer van glutaminase 1, geladen. Con + media versus Con + BPTES MH-S-cellen en EtOH + media versus EtOH + BPTES MH-S-cellen vertoonden geen verschillen in OCR-bio-energetische profielen (Figuur 2A). EtOH + BPTES MH-S-cellen vertoonden een afname van glutamine-afhankelijke basale ademhaling in vergelijking met Con + BPTES (meting #4 vergeleken met meting #3 in Figuur 2A en Figuur 2B), wat suggereert dat EtOH de basale glutamine-oxidatie van MH-S-cellen vermindert, wat bijdraagt aan de mitochondriale ademhaling. EtOH + BPTES MH-S-cellen vertoonden een verlies van glutamine-afhankelijke-ATP-gekoppelde mitochondriale ademhaling in vergelijking met Con + BPTES (Figuur 2C). Hoewel EtOH + BPTES MH-S-cellen een afgestompt verlies van glutamine-afhankelijke maximale ademhaling vertoonden in vergelijking met Con + BPTES (Figuur 2D), vertoonden EtOH + BPTES MH-S-cellen een afname van de glutamine-afhankelijke reserve-ademhalingscapaciteit in vergelijking met Con + BPTES (Figuur 2E). Deze resultaten suggereren dat EtOH MH-S-cellen het vermogen hebben om meer afhankelijk te zijn van glutamine voor ademhaling, zoals wanneer ze worden gestrest met FCCP, maar dat ze dit mogelijk niet kunnen doen omdat een toename van de vraag naar glutamine wordt gecompenseerd door een afname van de biologische beschikbaarheid van glutamine.
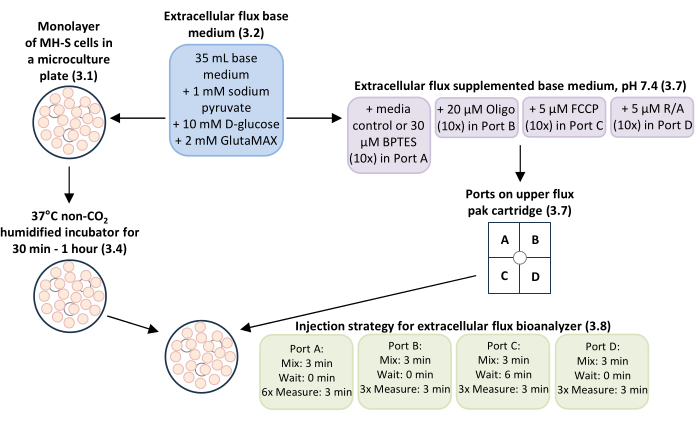
Figuur 1: Algemeen overzicht van de workflow voor het meten van glutamine-afhankelijke mitochondriale ademhaling en bio-energetica in MH-S-cellen, een alveolaire macrofaagcellijn van muizen. Monolagen van MH-S-cellen gekweekt in extracellulaire flux microcultuur plaatputjes (stap 3.1) werden geïncubeerd met extracellulair flux basismedium met supplementen toegevoegd (stap 3.2) bij 37°C in een niet-CO2 bevochtigde incubator gedurende 30 min-1 uur (stap 3.4). Het extracellulaire fluxbasismedium met toegevoegde supplementen (stap 3.2) werd gebruikt als mediacontrole en om de werkconcentraties van de glutamineoxidatieremmer BPTES te verdunnen tot de eindconcentratie van 3 μM, de mitochondriale complex V-remmer oligomycine (Oligo) tot de eindconcentratie van 0,5 μM, de mitochondriale ontkoppelingscarbonylcyanide-p-trifluormethoxyfenylhydrazon (FCCP) tot de eindconcentratie van 0,5 μM, en de mitochondriale complex I- en complex III-remmers rotenon/antimycine A (R/A) tot 0,5 μM eindconcentratie voor de laadpoorten A-D in de bovenste extracellulaire flux pak-cartridge (stap 3.7). De injectiestrategie voor meng-, wacht- en meettijden voor de experimentele run met behulp van de extracellulaire fluxbioanalysator was: 3 minuten mengtijd, 0 minuten wachttijd en 6 metingen van 3 minuten meettijd voor poort A (mediaregeling of BPTES); 3 minuten mengtijd, 0 minuten wachttijd en 3 metingen van 3 minuten meettijd voor poort B (Oligo); 3 minuten mengtijd, 6 minuten wachttijd en 3 metingen van 3 minuten meettijd voor poort C (FCCP); en 3 minuten mengtijd, 0 minuten wachttijd en 3 metingen van 3 minuten meettijd voor poort D (R/A). Klik hier om een grotere versie van deze figuur te bekijken.
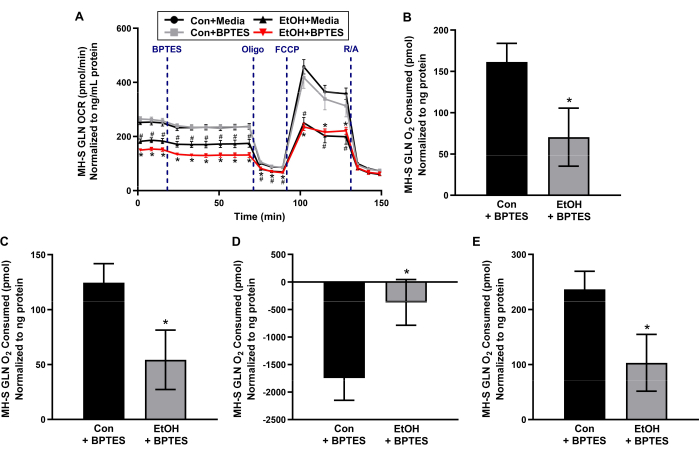
Figuur 2: Chronische ethanol (EtOH) vermindert glutamine-afhankelijke mitochondriale ademhaling in MH-S-cellen, een alveolaire macrofaagcellijn van muizen. MH-S-cellen waren onbehandeld (Con) of behandeld met EtOH (0,08%, 72 uur), en het zuurstofverbruik (OCR) werd in de loop van de tijd gemeten met behulp van een extracellulaire fluxbioanalysator voor en na injectie met mediacontrole of een glutamine (GLN) oxidatieremmer (3 μM BPTES), gevolgd door seriële injecties van mitochondriaal complex V-remmer (0,5 μM oligomycine, Oligo), mitochondriale ontkoppelaar (0,5 μM carbonylcyanide-p-trifluormethoxyfenylhydrazon, FCCP) en mitochondriaal complex I- en complex III-remmers (0,5 μM rotenon/0,5 μM antimycine A, R/A). (A) OCR-bio-energetische profielen werden gebruikt om glutamine-afhankelijke (B) basale ademhaling, (C) ATP-gekoppelde ademhaling, (D) maximale ademhaling en (E) reserve ademhalingscapaciteit te berekenen. Lineaire punten vertegenwoordigen gemiddelden ± SEM (n = 4, #p < 0,05 versus Con + media en *p < 0,05 versus Con + BPTES, eenrichtingsverkeer ANOVA met Tukey's post hoc). Balken vertegenwoordigen gemiddelden ± SEM (n = 4, *p < 0,05 versus Con + BPTES, Student's t-toets). De gepresenteerde gegevens zijn aanvullende biologische replicaten voor de met mediacontrole en BPTES behandelde experimentele groepen van onbehandelde controle- en chronische aan EtOH blootgestelde MH-S-cellen, die zijn gepubliceerd in Crotty et al.11. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De hierin gepresenteerde gegevens zijn aanvullende biologische replicaten voor onbehandelde en chronische aan EtOH blootgestelde MH-S-cellen die zijn behandeld met mediacontrole of BPTES, die zijn gepubliceerd in Crotty et al.11. Het beschreven protocol wordt gebruikt om de afhankelijkheid van aan EtOH blootgestelde MH-S-cellen van glutamine als brandstofbron voor mitochondriale ademhaling en bio-energetica te beoordelen met behulp van een extracellulaire fluxbioanalysator. Er zijn verschillende kritieke stappen in het protocol. Ten eerste zijn de vorming en samenvloeiing van MH-S-cellen belangrijk. MH-S-cellen worden in eerste instantie gekweekt in extracellulaire fluxmicrocultuurputjes bij lage confluentie en gebruikt wanneer cellen zich in een monolaag bevinden met een uiteindelijke confluentie van 90%. Aangezien de blootstelling aan EtOH van MH-S-cellen 72 uur duurde, werd de uiteindelijke samenvloeiing van 90% bereikt voorafgaand aan de experimentele run op de extracellulaire fluxbioanalysator. Dit komt overeen met andere rapporten van de vorming van celmonolagen en 90%-100% samenvloeiing voordat deze experimenten worden uitgevoerd 15,16,17. Ten tweede is de normalisatie van mitochondriale ademhalingswaarden naar eiwit in elk monster van cruciaal belang. Sommige studies normaliseren mitochondriale bio-energetica tot celnummer 18,19,20. De seriële injectiestrategie in deze test is echter bedoeld om de mitochondriën achtereenvolgens te belasten. In cellen die voornamelijk afhankelijk zijn van oxidatieve fosforylering, zoals AM's, kan dit leiden tot celdood tijdens de experimentele run op de extracellulaire fluxbioanalysator. Daarom is het mogelijk dat het aantal cellen niet consistent is vanaf het begin van het experiment tot het einde van de experimentele run, en is de normalisatie van mitochondriale ademhalingswaarden naar eiwit optimaal21,22. Een eiwitnormalisatiefactor met behulp van gemiddeld eiwit in alle putjes wordt hier voorgesteld om nauwkeurigere celspecifieke OCR-profielen te rapporteren. Ten derde is de analyse van de resultaten van biologische replicaten van cruciaal belang. Soms worden representatieve beelden van mitochondriale bio-energetische profielen gepresenteerd22,23 in plaats van de gemiddelde mitochondriale ademhaling over meerdere biologische replicaten 10,11,24. Deze representatieve afbeeldingen geven echter geen volledig beeld van de variaties tussen experimenten. Door elk biologisch duplo afzonderlijk te berekenen, kan de standaardfout van het gemiddelde de variatie van de gemiddelde mitochondriale ademhalingswaarden over alle biologische replicaten laten zien en worden gebruikt om statistische verschillen tussen mitochondriale bio-energetische profielen te berekenen.
Voorafgaand aan het uitvoeren van de test op de extracellulaire flux bioanalyzer, moest de optimale celdichtheid van MH-S-cellen voor kweek in de extracellulaire flux microcultuurplaat worden bepaald om een monolaag van cellen in elk putje te bereiken. Aangezien ook de juiste concentraties van Oligo en FCCP voor MH-S-cellen moesten worden vastgesteld, werden tests van verschillende MH-S-celdichtheden met seriële verdunningen van Oligo en FCCP uitgevoerd21,25. De eerste kweek van 10.000-15.000 MH-S-cellen resulteerde in een monolaag van cellen met 90% confluentie na 72 uur blootstelling met en zonder EtOH10. Op basis van deze optimalisatie-experimenten werd vastgesteld dat 2 μM Oligo en 0,5 μM FCCP de minimale concentraties van deze reagentia waren die veranderingen in de mitochondriale ademhaling veroorzaakten10.
Real-time metingen van mitochondriale ademhaling bij aanvang en na behandeling met BPTES, een remmer van glutaminase 1, die de enzymatische omzetting van glutamine in glutamaat voorkomt, wordt gebruikt om de glutamineafhankelijkheid voor basale ademhaling te bepalen in aan Con- en EtOH blootgestelde MH-S-cellen. Een beperking van de gegevens die in deze studie worden gepresenteerd, is dat de rol van vetzuren met korte en middellange ketens als brandstofbronnen voor mitochondriale ademhaling en bio-energetica, naast glutamine in aan EtOH blootgestelde MH-S-cellen, niet is onderzocht. Resultaten van de vorige studie van Crotty et al.11 suggereerden dat EtOH MH-S-cellen een verschuiving vertoonden van pyruvaat-afhankelijke ademhaling naar glutamine-afhankelijke ademhaling zonder volledige compensatie voor het verlies in totale mitochondriale ademhaling. Verder, door hetzelfde experiment uit te voeren met een gecombineerde injectie van UK5099 (een pyruvaatoxidatieremmer) en etomoxir (een lange-keten vetzuuroxidatieremmer), kon de bijdrage van glutamine in de afwezigheid van zowel pyruvaat als vetzuren als brandstofbronnen voor mitochondriale ademhaling worden bepaald in aan EtOH blootgestelde MH-S-cellen.
Mitochondriale ademhaling wordt al bijna zeventig jaar gemeten met behulp van een Clark-elektrode26, en er zijn ook plaatgebaseerde fluorescentietesten om mitochondriale ademhaling te meten27. Deze methoden zijn echter aanzienlijk tijdrovender en/of missen de gevoeligheid van metingen die kunnen worden bereikt met een extracellulaire fluxbioanalysator. Het voordeel van het gebruik van een extracellulaire fluxbioanalysator om glutamine te beoordelen als brandstofbron voor mitochondriale ademhaling en bio-energetica is dat experimenten met meerdere biologische replicaten tegelijkertijd kunnen worden uitgevoerd. Bovendien biedt de extracellulaire fluxbioanalysator de flexibiliteit om te experimenteren met geïsoleerde mitochondriën of intacte cellen. Voor cellen die geen hoge concentratie mitochondriën hebben, zoals gladde spiercellen van de longslagader, is het een uitdaging om voldoende mitochondriën te isoleren uit beperkte monsters. Met behulp van de extracellulaire fluxbioanalyzer kan mitochondriale ademhaling worden gemeten in intacte gladde spiercellen van de longslagader28 of primaire muis AM's10,11. Het protocol dat in deze studie wordt gebruikt, kan worden gebruikt om glutamine te beoordelen als brandstofbron voor mitochondriale ademhaling en bio-energetica van andere monsters met een beperkte steekproefomvang, zoals primaire menselijke AM's. We hebben eerder aangetoond dat EtOH-geïnduceerde mitochondriale afgeleide oxidatieve stress en verstoringen in MH-S-cellen een vergelijkbaar profiel van mitochondriale ontregeling vertonen in primaire AM's van muizen en menselijke AM's 6,7,11,28,29,30. Gezamenlijk ondersteunen studies het gebruik van deze methode voor het beoordelen van glutamine als brandstofbron voor mitochondriale ademhaling en bio-energetica in AM's bij pathologische aandoeningen die worden gekenmerkt door mitochondriale afgeleide oxidatieve stress.
Openbaarmakingen
Alle auteurs hebben geen relevante financiële belangenconflicten te melden.
Dankbetuigingen
We erkennen de bijdragen van Sarah S. Chang, BS, voor de eerste celkweek en voorbereiding van MH-S-cellen voor experimenten. Dit werk werd ondersteund door NIAAA R01-AA026086 naar SMY (ORCID: 0000-0001-9309-0233), NIAAA F31-F31AA029938 naar KMC en NIGMS T32-GM008602 naar Randy Hall, Department of Pharmacology and Chemical Biology, Emory University. De inhoud van dit rapport vertegenwoordigt niet de standpunten van het Department of Veterans Affairs of de Amerikaanse regering.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 15 mL conische buis | VWR International, Inc. | 21008-670 | Gebruikt voor het bereiden van stamconcentraties van mitochondria-gerelateerde reagentia. |
| 2-mercaptoethanol | Sigma Aldrich Co. | M6250 | Gebruikt voor het kweken van MH-S cellen. |
| Celkrabber | Dot Scientific, Inc. | 70-1180 | Gebruikt voor het schrappen van MH-S cellen uit T-75 flacons. |
| Countess 3 FL Instrument: celteller | Fisher Scientific Company | AMQAF2000 | Gebruikt voor het tellen van het aantal MH-S cellen om voor experimenten te plateren. |
| D-glucose | Sigma Aldrich Co. | G8270 | Gebruikt voor het extracellulaire flux basismedium. |
| Ethanol | Fisher Scientific Company | 4355720 | Experimentele behandeling voor MH-S cellen. |
| Fetaal bovien serum | Sciencell Research Laboratories | 500 | Gebruikt voor het kweken van MH-S cellen. |
| Gentamicine | Sigma Aldrich Co. | G1397 | Gebruikt voor het kweken van MH-S cellen. |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | Gebruikt voor het extracellulaire flux basismedium. |
| GraphPad Prism 10.2.3 | GraphPad Software | N/A | Software voor statistische analyse. Downloadbaar na aankoop op https://www.graphpad.com/features. |
| MH-S cellen | American Type Culture Collection | CRL-2019 | Muis alveolaire macrofaag cellijn. |
| Microcentrifugebuis | USA Scientific, Inc. | 4036-3212 | Gebruikt voor het bereiden van werkconcentraties van mitochondria-gerelateerde reagentia. |
| Microsoft 365 Excel: computer spreadsheet programma | Microsoft | N/A | Software voor gegevensorganisatie en mitochondriale bioenergetische berekeningen. Downloadbaar na aankoop op https://www.microsoft.com/en-us/microsoft-365/excel. |
| Penicilline/streptomycine | Fisher Scientific Company | 15140122 | Gebruikt voor het kweken van MH-S cellen. |
| Fosfaat gebufferde zoutoplossing | VWR International, Inc. | 45000-446 | Gebruikt voor het wassen van MH-S cellen. |
| RPMI-1640 | VWR International, Inc. | 45000-396 | Gebruikt voor het kweken van MH-S cellen. |
| Seahorse Wave Pro Software: computersoftwareprogramma voor assay ontwerp en analyse | Agilent Technologies, Inc. | N/A | De computer is aangesloten op het Seahorse XF Pro Analyzer instrument. Downloadbaar van https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523. |
| Seahorse XF Basismedium: extracellulair flux basismedium, pH 7.4 | Agilent Technologies, Inc. | 103334-100 | Gebruikt voor het bereiden van stam- en werkconcentraties van mitochondria-gerelateerde reagentia en het kweken van MH-S cellen voorafgaand aan experimentele runs. |
| Seahorse XF Glutamine Oxidatiestress Test Kit | Agilent Technologies, Inc. | 103674-100 | Bevat stam BPTES, oligomycine, FCCP en rotenone/antimycine A. |
| Seahorse XF Pro Analyzer: extracellulair flux bioanalyzer | Agilent Technologies, Inc. | N/A | Extracellulair flux bioanalyzer. |
| Seahorse XFe96 FluxPak: 96-wels extracellulair flux pak cartridges, 96-wels extracellulair flux microcultuur platen en calibratieoplossing | Agilent Technologies, Inc. | 102416-100 | Gebruikt om MH-S cellen voor te bereiden voor assays met behulp van een extracellulair flux bioanalyzer. |
| Serologische pipet | Santa Cruz Biotechnology, Inc. | sc-550678 | Gebruikt voor het verwijderen van media van MH-S cellen. |
| Natriumbicarbonaat | Sigma Aldrich Co. | S6014 | Gebruikt voor het kweken van MH-S cellen. |
| Natriumpyruvaat | Sigma Aldrich Co. | P4562 | Gebruikt voor het extracellulaire flux basismedium. |
| T-75 flacons | Santa Cruz Biotechnology, Inc. | sc-200263 | Gebruikt voor het kweken van MH-S cellen. |
Referenties
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
Herprints en machtigingen
