Hier beschrijven we een methode voor het maken van dubbele emulsiedruppeltjes die één T-cel en een kankerdoelcel inkapselen om celdoding op eencellig niveau te onderzoeken. Deze methode maakt dubbele kwantificering mogelijk van zowel cytotoxische moleculen als apoptose van doelcellen binnen een grote populatie T-cellen.
Methodenartikel
Op druppels gebaseerde cytotoxiciteitstest om chimere antigeenreceptor-T-cellen op eencellig niveau te beoordelen
In dit artikel
Samenvatting
Samenvatting
De beoordeling van het cytotoxische potentieel van op T-cellen gebaseerde therapieën, zoals behandelingen met chimere antigeenreceptor (CAR) T-cellen, is van groot belang bij het beoordelen van hun werkzaamheid en is een voorwaarde voor klinische toepassing. Traditionele cytotoxiciteitstesten worden echter uitgevoerd als bulktests en geven geen gedetailleerde informatie over de functionele heterogeniteit van de CAR T-celpopulatie. In deze studie beschrijven we een methode op basis van dubbele emulsiedruppels die grootschalige co-inkapseling van CAR T-cellen met enkele effector mogelijk maakt, terwijl dubbele kwantificering van zowel cytotoxische effectormoleculen van T-cellen als celdood van de doelcel mogelijk is. Het protocol schetst een methode voor het genereren en zuiveren van CD19-specifieke CAR T-cellen, gevolgd door hun co-inkapseling in druppeltjes met de CD19+ -cellijn JeKo-1, samen met reagentia om de secretie van cytotoxische effectormoleculen (Granzyme B) en celdood (met behulp van propidiumjodide, PI) te visualiseren. We demonstreren hoe druppeltjes met enkele CAR T en doelcellen kunnen worden gegenereerd met behulp van een in de handel verkrijgbaar microfluïdisch apparaat voor het genereren van dubbele emulsiedruppels. Daarnaast geven we voorbeelden van hoe de functionele diversiteit van CAR T-cellen in druppeltjes kan worden getest met behulp van standaard flowcytometrieapparatuur. Ten slotte beschrijven we kort de temporele kinetiek en heterogeniteit van CD19-specifieke CAR T-celdoding. Hoewel deze methode zich richt op celdood na een CAR T-celaanval, is deze ook geschikt voor het onderzoeken van andere soorten T-cellen, cytotoxische immuuncellen en effectorcelfuncties, zoals cytokinesecretie.
Inleiding
Chimere antigeenreceptor (CAR) T-celtherapie is een snel groeiend gebied van cellulaire kankerimmunotherapie dat effectief is gebleken tegen verschillende vormen van leukemie, lymfoom1 en multipel myeloom2. CAR T-cellen worden gegenereerd door T-cellen te modificeren met een synthetische antigeenreceptor die selectief kan binden aan oppervlakte-eiwitten zoals CD19 of B-celrijpingsantigeen (BCMA), tot expressie gebracht op B-cellen, plasmacellen en hun kwaadaardige tegenhangers. Recente ontwikkelingen in het CAR-ontwerp hebben het mogelijk gemaakt om meerdere antigenen tegelijk te targeten3, vertrouwend op meerdere invoersignalen, of uitsluitend te binden aan tumor-geassocieerde antigenen, zoals specifieke eiwitisovormen4. Bovendien worden nu verschillende CAR's getest tegen doelen van niet-hematologische kankers5.
Cytotoxiciteitstesten zijn essentieel voor zowel de ontwikkeling van CAR als de kwaliteitscontrole voordat klinische producten worden vrijgegeven 6,7,8. De meeste huidige tests zijn echter afhankelijk van bulkpopulaties van effector-CAR T-cellen die in overmaat aan kankercellijnen worden toegevoegd, wat kan leiden tot vals-positieve resultaten als gevolg van omstandereffecten9 en kan resulteren in een slechte correlatie tussen in vitro en in vivo uitkomsten10. Aangezien de proliferatie van T-cellen en persistentie op lange termijn afhankelijk zijn van de signalen die worden ontvangen tijdens de eerste activeringsgebeurtenissen11,12, is het van groot belang om cytotoxische gebeurtenissen op het niveau van één cel nauwkeurig te onderzoeken.
Om de beperkingen van bulkmethodologieën aan te pakken, kunnen cytotoxiciteitsonderzoeken op eencellig niveau worden uitgevoerd met behulp van flowcytometrie 13,14,15,16,17 en op beeldvorming gebaseerde assays 18. Hoewel standaard flowcytometrie een eencellige resolutie biedt voor het kwantificeren en karakteriseren van zowel effector- als doelcellen, kan het niet direct het specifieke cytotoxische vermogen van individuele CAR T-cellen ten opzichte van doelcellen bepalen. Bovendien is het in beeld brengen van individuele CAR T-cellen die in bulk interageren met hun respectievelijke doelen uitdagend en tijdrovend vanwege de consistente beweeglijkheid van cellen. Om deze uitdagingen aan te gaan, zijn nieuwe instrumenten voor analyse van afzonderlijke cellen ontwikkeld die gebaseerd zijn op het koppelen van effector- en doelcellen in ruimtelijk beperkte ruimtes met behulp van microwell-arrays19,20,21, microraft-arrays22, microchips23 en druppelmicrofluïdica 24,25,26. Deze tools bieden een verbeterde meetgevoeligheid, waardoor minder cellen kunnen worden onderzocht met verminderde reagensvolumes. Er blijven echter verschillende uitdagingen bestaan, waaronder efficiënte celparing, het beperkte aantal monsters dat kan worden geanalyseerd, het vertrouwen op alleen op beeldvorming gebaseerde analyse en moeilijkheden bij het verkrijgen van levensvatbare celpopulaties voor verdere analyses.
Hier gebruiken we een in de handel verkrijgbaar microfluïdica-apparaat dat een enorm vereenvoudigde benadering van op druppels gebaseerde microfluïdica mogelijk maakt. Met dit apparaat kunnen geavanceerde analyses en tests van één cel worden uitgevoerd met behulp van zeer stabiele druppels met dubbele emulsie (DE). Vergeleken met microwell- en traditionele druppel-microfluïdica-assays, vereist het hier beschreven protocol geen uitgebreide expertise op het gebied van microfludices.
DE-druppels zijn kleine bolvormige compartimenten die zijn samengesteld uit een olieomhulsel met een waterige kern gesuspendeerd in een waterige oplossing. De waterige druppel bevat en bewaart cellen, celsecretoom, celmedium en testreagentia, waardoor binnen elk compartiment complexe tests kunnen worden uitgevoerd. Met behulp van het microfluïdica-apparaat worden DE-druppels gegenereerd met een ingesteld volume (ongeveer 100 pL) dat geschikt is voor eencellige of cel-celinteractietests bij zoogdieren, die in zeer hoge aantallen (ongeveer 750.000 druppels per monster) en in een kort tijdsbestek (ongeveer 10 minuten voor 8 monsters) kunnen worden gegenereerd door algemene laboratoriumgebruikers zonder gespecialiseerde kennis van microfluïdica. De gegenereerde druppeltjes kunnen in het celmedium worden gesuspendeerd, waardoor trans-shell diffusie van O2 en CO2 mogelijk is en het inwendige wordt gebufferd, terwijl tegelijkertijd hydrofiele en grotere moleculen zoals door cellen uitgescheiden effectormoleculen behouden blijven. De onderzochte cellen worden dus adequaat gebufferd, waardoor in de loop van de tijd onderzoek kan worden gedaan naar cel-celinteracties en temporele dynamiek. In tegenstelling tot enkelvoudige emulsiedruppels (bijv. water-in-oliedruppels)27 zijn de DE-druppels robuuste structuren die niet samensmelten of samensmelten in standaard celincubatoren. Vanwege hun stabiliteit en een waterige buitenfase zijn ze ook compatibel met stroomafwaartse analyseprocedures zoals traditionele flowcytometrie. Deze picoliterdruppeltjes die door het microfluïdica-apparaat worden gegenereerd, kunnen daarom worden gebruikt voor single-cell analyse van de celfunctie met hoge doorvoer om functionele heterogeniteit op te helderen die verborgen is in traditionele bulktesten.
Hier schetsen we een protocol dat DE-druppeltjes gebruikt om het cytotoxische potentieel van CD19-specifieke CAR's in de richting van lymfoomcellen te onderzoeken. Ons protocol maakt eencellige analyse mogelijk van het doden van doelwitten en Granzyme B (GzmB) secretie en onthult dat ongeveer 20% van de hier onderzochte CAR T-cellen onmiddellijk dodingspotentieel hebben.
Protocol
De CAR T-cellen die in deze studie werden gebruikt, werden gegenereerd door lentivirale transductie van primaire T-cellen met een CD19scFv-CD28-CD3ζ-tNGFR CAR-construct in een gecertificeerd biosafety GMO klasse 2-laboratorium en na 4 dagen gedeclassificeerd volgens de instituutsnorm. Gezuiverde T-cellen waren afkomstig van weggegooid overtollig materiaal van geanonimiseerde bloeddonaties en waren vrijgesteld van verdere ethische goedkeuringen volgens de Deense wet.
1. Generatie van CAR T-cellen
OPMERKING: De naam van de hieronder gebruikte reagentia gebruikt algemene en afgekorte namen. De volledige commerciële naam staat tussen haakjes in de materiaaltabel.
- T-cel activering, transductie en expansie
OPMERKING: Stabiele expressie van CD19 CAR T-cellen werd bereikt door lentivirale transductie van primaire menselijke T-cellen geïsoleerd uit verse perifere mononucleaire bloedcellen (PBMC's) met behulp van een negatieve selectie T-celisolatiekit. Het gebruikte anti-CD19 CAR is een construct van de tweede generatie dat bestaat uit een FMC63 single-chain variable fragment (scFv), een CD28 scharnier- en transmembraandomein, een CD28 costimulatoir domein, een CD3ζ activeringsdomein28 en een afgekapte versie van de zenuwgroeifactorreceptor (tNGFR) voor monitoring en verrijking van cellen die CAR tot expressie brengen29. Het transfervectorplasmide werd de novo gesynthetiseerd en lentivirus van de derde generatie werd gemaakt door dit te combineren met pMDLg/pRRE (Addgene-plasmide #12251), pRSV-Rev (Addgene-plasmide #12253) en pMD2.G (Addgene-plasmide #12259)30. De latere drie plasmiden waren een geschenk van Didier Trono. Het ruwe virus werd geconcentreerd met behulp van een op PEG gebaseerd reagens en de multipliciteit van infectie (MOI) werd bepaald door SUP-T1-cellen te transduceren en tNGFR te meten door middel van flowcytometrie volgens standaardprotocol31.- Breng 2 x 10⁶ primaire menselijke T-cellen over naar een kweekschaaltje met 12 putjes en stimuleer ze met CD3/CD28-gecoate kralen in een 1:1 kralen-tot-celverhouding in 1 ml compleet RPMI-1640-medium (10% door warmte geïnactiveerd foetaal runderserum, 1% penicilline/streptomycine) aangevuld met 100 eenheden/ml recombinant humaan interleukine-2 (IL-2). Incubeer de cellen gedurende 24 uur bij 37°C in een bevochtigde 5% CO2 -incubator.
- Voeg lentivirale deeltjes toe aan de geactiveerde T-cellen met een MOI van 5-10. Meng voorzichtig en incubeer de cellen gedurende 72 uur. Neem niet-getransduceerde (NTD) T-cellen op als negatieve controle.
- Verwijder op dag 3 na transductie de CD3/CD28-activeringskralen door de T-cellen in een buis van 1.5 ml te oogsten en de buis 1-2 minuten op een magnetische standaard te plaatsen. Breng het bovenstaande met de cellen over in een nieuw buisje van 1,5 ml.
- Voer een celtelling uit met behulp van een geautomatiseerde cellenteller en pas de celdichtheid aan op 1 x 10⁶ cellen/ml in een compleet RPMI-1640-medium aangevuld met 100 E/ml IL-2. Ga door met het uitbreiden van de T-cellen totdat het totale aantal CAR T-cellen ten minste 1,5 x 10⁶ bereikt (meestal ongeveer 6 x 10⁶ T-cellen in totaal) in de suspensie voordat u doorgaat met NGFR-verrijking (zie hieronder).
- Controleer het aantal cellen om de dag en pas de concentratie aan op 1 x 10⁶ cellen/ml door vers medium toe te voegen aangevuld met 100 eenheden/ml IL-2 om een optimale celtoestand tijdens de expansie te garanderen.
- Verrijking van T-cellen die CAR tot expressie brengen
- Breng 6 x 10⁶ of meer getransduceerde T-cellen over in een buis van 15 ml en centrifugeer gedurende 5 minuten bij 300 x g . Resuspendeer de celpellet in 320 μl PBS aangevuld met 0,5% runderserumalbumine (BSA) om PBSA te maken en voeg 40 μl anti-NGFR magnetische kralen toe. Meng goed en incubeer 15 minuten op ijs.
OPMERKING: Dit protocol gaat uit van een transductie-efficiëntie van ongeveer 25%, wat resulteert in >1,5 x 10⁶ CAR T-cellen na verrijking. We raden af om te beginnen met minder dan 6 x 10⁶ cellen, omdat dit kan leiden tot een slecht herstel van de CAR T-cellen. - Voeg 1640 μL PBSA toe om het uiteindelijke volume op 2 ml te brengen en ga vervolgens verder met magnetische scheiding met behulp van scheidingskolommen volgens de instructies van de fabrikant.
- Breng 6 x 10⁶ of meer getransduceerde T-cellen over in een buis van 15 ml en centrifugeer gedurende 5 minuten bij 300 x g . Resuspendeer de celpellet in 320 μl PBS aangevuld met 0,5% runderserumalbumine (BSA) om PBSA te maken en voeg 40 μl anti-NGFR magnetische kralen toe. Meng goed en incubeer 15 minuten op ijs.
- Detectie van CAR-expressie door flowcytometrie
OPMERKING: We raden aan om het percentage cellen met CAR-expressie en hun levensvatbaarheid op dit moment te bepalen, om zeker te zijn van de juiste cellen voordat u de onderstaande test uitvoert. De CD4- en CD8-verhouding en het geheugenfenotype kunnen op dit punt ook worden bepaald. Zie figuur 1 voor representatieve waarnemingspunten.- Breng 2,5 x 10⁵ T-cellen van zowel getransduceerde als niet-getransduceerde culturen over in afzonderlijke flowcytometriebuisjes. Was de cellen 2x met 200 μL PBS en centrifugeer na elke wasbeurt 5 minuten op 300 x g .
- Bereid een antilichaammix voor met anti-CD19 CAR FMC63 Idiotype PE, anti-CD3 BV480 en anti-NGFR FITC-antilichamen, elk verdund 1:100 in PBS. Resuspendeer de cellen in 50 μl van het antilichaammengsel en incubeer gedurende 20 minuten bij 4 °C.
- Was de cellen 2x met 200 μL PBS en centrifugeer na elke wasbeurt 5 minuten op 300 x g . Resuspendeer de cellen in 200 μL PBS en analyseer met behulp van flowcytometrie.
2. Vorming van druppeltjes die T-cellen en doelcellen inkapselen
OPMERKING: Voorafgaand aan de inkapseling worden T-cellen en JeKo-1-cellen gekleurd met verschillende celkleuringen om de cellulaire inhoud van druppels te controleren. Cellen worden ingekapseld met testreagentia en gedurende 2-6 uur geïncubeerd voordat de druppels worden geanalyseerd op de flowcytometer (zie figuur 2).
- Cellen kleuren vóór inkapseling
- Bereid werkoplossingen van twee fluorescerende kleurstoffen (we gebruikten een violette kleurstof en een verrode kleurstof) door de voorraadoplossingen (bereid volgens de instructies van de fabrikant) 1:5.000 in dPBS te verdunnen.
- Breng voor elke donor 2,5 x 10⁶ CAR T-, 2,5 x 10⁶ NTD T- en 15 x 106 JeKo-1-cellen over in afzonderlijke centrifugebuisjes (buisjes van 15 ml of 50 ml) en centrifugeer gedurende 5 minuten bij 300 x g . In dit experiment werden 0,5 x 10⁶ effectorcellen ingekapseld met 1,5 x 10⁶ doelcellen voor elk geprepareerd monster.
OPMERKING: Het aantal cellen dat hier wordt overgedragen, is bedoeld voor 4x inkapselingsmonsters met elk effectorceltype voor elke donor. Schaal het aantal cellen en reagentia af op basis van het aantal benodigde monsters. Bovendien kan het exacte aantal cellen per monster worden geschaald op basis van experimentele behoeften. - Verwijder het bovenstaande en suspendeer effectorcelpellets in de 1:5.000 werkoplossing van de violette fluorescerende kleurstof en doelcelpellets (JeKo-1) in de 1:5.000 werkoplossing van de verrode fluorescerende kleurstof. Resuspendeer de cellen goed met een pipet en tot een celconcentratie van 1 x 10kleuroplossing van 6 cellen/ml.
- Incubeer de cellen gedurende 20 minuten in een bevochtigde CO2 -incubator van 37 °C. Centrifugeer de cellen gedurende 5 minuten op 300 x g , verwijder het supernatant en suspendeer opnieuw in 15 ml volledig RPMI-1640-medium om de cellen te wassen.
- Herhaal de was en centrifugeer op 300 x g gedurende 5 min. Verwijder het bovenstaande en suspendeer de effectorcelpellets in 225 μl volledig RPMI-1640 en de doelcelpellets in 450 μl volledig RPMI-1640.
- Voeg 30 μL van een gradiëntmedium toe aan de effectorcelsuspensies en 60 μL van hetzelfde gradiëntmedium aan de doelcelsuspensies. Resuspendeer de gradiënt medium papieroplossing goed voor het pipetteren.
- Voeg 15 μL van een PI-voorraad van 20 μg/ml toe aan de effectorcelsuspensies en 30 μL van de PI-voorraad aan de doelcelsuspensies. De uiteindelijke PI-concentratie zal uiteindelijk 1 μg/ml zijn nadat het Granzyme B (GzmB) substraat hieronder is toegevoegd.
- Bereid een 1:10 verdunning van GzmB-substraat in volledige RPMI-1640 en voeg 30 μL van deze GzmB-substraatverdunning toe aan de effectorcelsuspensie en 60 μL ervan aan de doelcelsuspensies. Meng goed met de pipet.
OPMERKING: Het totale volume van de reagentia die aan elke effectorcelpellets worden toegevoegd, moet nu 300 μl zijn en aan de doelcelpellets 600 μl. De concentratie van het gradiëntmedium in deze oplossingen moet 10% zijn, de PI-concentratie 1 μg/ml en de concentratie GzmB-substraat 1:100. - Alternatieve etikettering met behulp van CD3-, CD4- en CD8-antilichamen
OPMERKING: In sommige gevallen kan het interessant zijn om effectorcellen verder te labelen voordat ze samen met doelcellen worden ingekapseld. Hier tonen we proof-of-principle voor dit type etikettering met behulp van CD3-, CD4- en CD8-antilichamen en PBMC (zie figuur 3).- Breng 2,0 x 10⁶ PBMC over in een buis van 1,5 ml en draai de cellen 5 minuten rond op 300 x g. Verwijder het bovenstaande en suspendeer de celpellet opnieuw in 200 μl dPBS met 0,5% BSA. Verdeel de inhoud over twee tubes van 2 ml.
- Voeg 5 μL anti-CD3-APC en 5 μL anti-CD4-StarBright Violet 760 toe aan een van de buisjes. Voeg 20 μL anti-CD3-FITC en 5 μL anti-CD8-StarBright Violet 760 toe aan de andere buis.
- Meng goed en incubeer 30 minuten bij kamertemperatuur in het donker. Voeg 1 ml wasbuffer toe aan de cellen, draai gedurende 5 minuten op 300 x g , verwijder de supernatant en suspendeer de celpellets opnieuw in 1 ml dPBS met 0,5% BSA.
- Draai de cellen gedurende 5 minuten op 300 x g naar beneden, verwijder de supernatant en suspendeer de celpellets opnieuw in 150 μL RPMI zonder fenolrood en 10% gradiëntmedium. Kapsel in zoals beschreven in stap 2.2 met behulp van RPMI zonder fenolrood, 33% stabiliserende oplossing voor cellen en 10% gradiëntmedium als buitenste medium.
- Inkapselen van de cellen
- Verwarm een inkapselingspatroon en stabilisatieoplossing voor op kamertemperatuur voordat u het inkapselt. Bereid een voorraad buitenmedium voor die bestaat uit een compleet RPMI-1640-medium, 33% stabiliserende oplossing voor cellen en 10% gradiëntmedium.
- Bereid voor elk inkapselingsmonster een celmonsteroplossing voor met cellen met gemengde doelwiteffectorcellen. Resuspendeer de goed bereide celoplossingen met een pipet en meng 65 μl bereide effectorcelsuspensie met 65 μl bereide doelcelsuspensie in buisjes van 1,5 ml (beide bereid in stap 2.1).
- Ga onmiddellijk verder met het vullen van de aangegeven putjes van de inkapselingspatroon met reagentia in de volgende volgorde om een goede inkapseling te garanderen. Laad een set putjes voor elk voorbereid inkapselingsmonster.
Wel #A: 400 μL buitenste media.
Wel #D: 40 μL buitenmedia op het kleine schap.
Wel #C: 120 μL voorgemengde oplossing met doelwitcellen (JeKo-1) en effectorcellen. Resuspendeer de cellen goed met een pipet vlak voor het laden.
Goed #B: 250 μL olie.
OPMERKING: Elke cartridge kan worden gevuld met maximaal 8 monsters voor parallelle inkapseling. - Ga onmiddellijk verder met het afdichten van de pakking en het plaatsen van de cartridge in het instrument, terwijl u het kantelen, schudden of stoten van de geladen cartridge vermijdt. Sluit de pakking voorzichtig af op de cartridge.
- Breng de cartridge voorzichtig over naar het microfluïdische apparaat en start de inkapseling zoals beschreven in de gebruikershandleiding.
- De gegenereerde druppels hebben een hogere dichtheid dan het omringende buitenste medium en zullen snel bezinken op de bodem van de verzamelput (put #D). Verzamel elke druppelproductie (alle druppels en hun omringende buitenste medium) door de gesedimenteerde druppels van Well #D opnieuw in het overlay-medium te suspenderen en ze over te brengen naar een 2 ml laagbindende DNA-buis met een deksel. Was Well #D met de resterende buitenste media van Well #A om de resterende druppels op te vangen.
- Wanneer de druppels in de verzamelbuisjes zijn gesedimenteerd (dit duurt ongeveer 1 minuut), controleer dan de druppelproductie door ze te onderzoeken in een helderveldmicroscoop. Vul hiervoor een pipetpunt van 10 μl met een monster: ca. 1/3 met druppels van het oppervlak van de druppelfase (witte fase) en ca. 2/3 met het overlappende buitenste medium om de punt te vullen. Laad het monster onmiddellijk op een glasplaatje met 8 kamers en onderzoek de druppels door middel van helderveldmicroscopie met een vergroting van 4x en 20x om de druppelbelasting met cellen te bevestigen.
OPMERKING: Het is belangrijk dat de druppels op deze manier in een groter volume van het omringende medium worden aangezogen.
- Incubatie
OPMERKING: De druppels kunnen nu worden geïncubeerd in 2 ml DNA-buisjes met een lage binding in een standaard bevochtigde 37 °C, 5% CO2-incubator. We raden het gebruik van deze buizen aan, omdat ze optimale oppervlakte-eigenschappen hebben voor het kweken van druppels.- Prik met een injectiespuitnaald (23G) voorzichtig en veilig het deksel van het vereiste aantal DNA-buisjes van 2 ml met een lage binding door. Dit zorgt voor vrije CO2/O 2-diffusie en voorkomt verdamping van media.
- Voeg 1 ml buitenmateriaal toe aan elke incubatiebuis. De druppels moeten worden geïncubeerd met ten minste 5x het volume buitenste media om een goede buffering te garanderen. Het volume van het toegevoegde buitenste medium kan worden verhoogd, afhankelijk van het metabolisme van de aangebrachte cellen.
- Resuspendeer de druppels die in de overlappende media worden gegenereerd en verdeel elke productie in drie van de voorbereide incubatiebuisjes (één voor elke tijdpuntmeting). De druppels zijn zwaar en sedimenteren snel, en daarom is het belangrijk om de voorraad tussen elke overdracht opnieuw te suspenderen.
OPMERKING: Het aantal incubatiebuisjes waarin de druppelproducties worden gesplitst, kan worden gevarieerd, maar we raden aan om één productie op te splitsen in niet meer dan 4 incubatiebuisjes om ervoor te zorgen dat elk monster voldoende gebeurtenissen bevat voor analyse. - Plaats de buizen rechtop in de broedmachine gedurende 2 uur, 4 uur of 6 uur incubatie na het genereren van druppels.
3. Stroomafwaartse analyse van druppels
- Microscopie
- Breng na incubatie een klein aantal druppels over op een microscoopglaasje zoals beschreven in stap 2.2.7 en analyseer ze met helderveld- en fluorescentiemicroscopie met behulp van een standaard fluorescentiemicroscoop met de juiste laser- en filterconfiguratie.
OPMERKING: De druppels kunnen worden gedetecteerd door middel van helderveldmicroscopie. De violet gekleurde T-cellen kunnen worden gedetecteerd met een DAPI-filter, de ver rood gekleurde JeKo-1-cellen met een APC-filter, het GzmB-FAM-signaal met een FITC-filter en het PI-signaal met een PE-filter. Het PI-signaal van het grootste belang kan moeilijk te visualiseren zijn met microscopie, aangezien vroege apoptotische cellen een lagere piekemissie hebben dan late apoptotische cellen. Zie figuur 4 voor representatieve gegevens.
- Breng na incubatie een klein aantal druppels over op een microscoopglaasje zoals beschreven in stap 2.2.7 en analyseer ze met helderveld- en fluorescentiemicroscopie met behulp van een standaard fluorescentiemicroscoop met de juiste laser- en filterconfiguratie.
- Flowcytometrie
- Na de incubatie wordt elk druppelmonster opnieuw in het overlay-medium gerusseerd en overgebracht naar FACS-buisjes van 5 ml. Analyseer de druppels met behulp van een standaard flowcytometer door de onderstaande algemene richtlijnen te volgen.
- Gebruik een flowcytometer met de juiste laser- en filterconfiguratie. Met het geselecteerde paneel van celkleuringen en -test is kleurcompensatie niet vereist op de flowcytometer die hier wordt gebruikt. Als er andere kleuren worden toegepast of als de configuratie van de toegepaste flowcytometer afwijkt, kan compensatie nodig zijn.
- Gebruik FSC-H als drempeltrigger om achtergrondgeluid van kleine olie-evenementen uit te sluiten.
- Druppels zijn zwaar en zullen zich op de bodem van de FACS-buizen nestelen. Zorg ervoor dat de SIP de druppels bereikt. De druppels moeten vóór acquisitie in ten minste 5x volume van de buitenste buffer tot de druppels worden gesuspendeerd.
- Droplet-gebeurtenissen worden met hoge snelheid verkregen. Registreer intensiteitshoogtesignalen (H) voor FSC en SSC en de onderzochte fluoroforen, aangezien intensiteitshoogtemetingen worden gebruikt bij het analyseren van druppels. Pas de winst aan om de juiste scheiding van positieve en negatieve gebeurtenissen te hebben.
LET OP: We gebruikten het FITC-kanaal om het GzmB-signaal te meten, het Pacific Blue-kanaal om de violet gekleurde T-cellen te detecteren, het APC-kanaal om de ver rood gekleurde JeKo-1-cellen te detecteren en het PE-kanaal om het PI-signaal te detecteren. - Leg voldoende gebeurtenissen vast voor downstreamanalyse. Hier registreerden we 4,5 - 8,3 x 10³ van de co-inkapselende druppels per timepoint.
- Spoel de flowcytometer door de SIP na elke set druppelopnames, met behulp van standaard reinigings- en spoeloplossingen. Reinig de flowcytometer grondig aan het einde van het experiment. Zie Figuur 4 en Figuur 5 voor representatieve gegevens.
- Na de incubatie wordt elk druppelmonster opnieuw in het overlay-medium gerusseerd en overgebracht naar FACS-buisjes van 5 ml. Analyseer de druppels met behulp van een standaard flowcytometer door de onderstaande algemene richtlijnen te volgen.
- Analyse van gegevens
- Bereken het percentage T-cellen dat GzmB afscheidt op basis van het percentage GzmB-positieve T-cel- en JeKo-1-celinkapselingen genormaliseerd naar de levensvatbaarheid van T-cellen bepaald in de druppelpopulaties met alleen T-cellen op het betreffende tijdstip, als volgt:
Druppels T cel+, Jeko-1+, GzmB+ / (Druppels T cel+, Jeko-1+ - Druppels dode T cel+, Jeko-1+)
waarbij Druppels dode T cel+, Jeko-1+ wordt geschat op basis van de dood in druppels met alleen T-cellen: Druppelsdode T cel+, Jeko-1+ = DruppelsT cel+, Jeko-1+x Druppels dode T cel+, Jeko-1- / DruppelsTcell+, Jeko-1-. - Bereken als volgt het percentage T-cellen dat hun doelcellen heeft gedood:
Percentage cytotoxische T-cellen = (Waargenomen dood - Achtergrond dood)/(100 - Achtergrond dood)
waarbij achtergrondsterfte de dood is die aanwezig is in (T-cel+, Jeko-1+) druppeltjes als gevolg van niet-dodinggerelateerde dood of dood die plaatsvond voorafgaand aan inkapseling. - Schat de achtergrondsterfte door celdood in (T-cel+, Jeko-1-) druppeltjes en (T-cel-, Jeko-1+) druppels:
Achtergrond sterfte = (1- (1- sterfteratio in druppeltjesTcell-, Jeko-1+) x (1- sterfteratio in druppeltjesT-cel+, Jeko-1-)) x 100
waarbij de sterfteratio direct wordt gemeten als het % PI-positieve druppel in respectievelijk druppeltjes met alleen T-cellen en druppeltjes met alleen JeKo-1-cellen. Alle berekeningen worden uitgevoerd met steekproeftijdspecifieke getallen.
- Bereken het percentage T-cellen dat GzmB afscheidt op basis van het percentage GzmB-positieve T-cel- en JeKo-1-celinkapselingen genormaliseerd naar de levensvatbaarheid van T-cellen bepaald in de druppelpopulaties met alleen T-cellen op het betreffende tijdstip, als volgt:
Resultaten
Na transductie werden de T-cellen geanalyseerd op CAR-expressie door middel van flowcytometrie met behulp van anti-CD3- en anti-NGFR-antilichamen. De CAR T-celpopulatie werd vervolgens verrijkt met anti-NGFR magnetische korrels, wat resulteerde in een zuiverheid van meer dan 98% voor beide donoren (Figuur 1A-B). De CD4/CD8-verhouding en het geheugenfenotype van gesorteerde CAR-cellen die werden gebruikt, werden ook gekwantificeerd, met behulp van een standaard gate-strategie waarbij gebruik werd gemaakt van CCR7- en CD45RA-antilichamen. Deze gegevens tonen aan dat de CD4/CD8-verhouding van de gebruikte CAR T-cellen 0,73 was en dat de cellen voornamelijk van een naïef-achtig geheugenfenotype waren (Figuur 1C-E).
CAR T-cellen en JeKo-1-cellen werden gekleurd met respectievelijk violette en verrode kleurstoffen en ingekapseld in DE50-druppeltjes samen met analysereagentia GzmB-substraat en PI (Figuur 2). Als alternatief kunnen CAR T-cellen ook worden gelabeld met behulp van antilichamen zoals anti-CD4 of anti-CD8 (Figuur 3), waardoor een meer gedetailleerde karakterisering van T-cellen mogelijk is. Elke T-celsuspensie (CAR T of NTD) werd gemengd met een JeKo-1-celsuspensie onmiddellijk vóór de inkapseling bij een effector: doelcelverhouding van 1:3 (0,5 x 10⁶ T-cellen en 1,5 x 10⁶ JeKo-1). Na inkapseling werd elke druppelproductie (CAR T-cellen + JeKo-1 en NTD + JeKo-1) verdeeld in drie incubatiebuisjes voor respectievelijk 2 uur, 4 uur en 6 uur incubatie. De cellen werden in de druppeltjes geïncubeerd bij 37 °C in 5% CO2 en vervolgens geanalyseerd door middel van microscopie en flowcytometrie op de aangegeven tijdstippen.
We voerden fluorescentiemicroscopie uit van druppeltjes met dubbele emulsie na 4 uur incubatie (Figuur 4). De intensiteit van het groene fluorescentiesignaal (FITC) illustreert het niveau van uitgescheiden GzmB-activiteit van CAR T-cellen of NTD's in de DE50-druppels. Figuur 4B toont fasecontrast- en fluorescentiemicroscopiebeelden van een enkele GzmB-positieve druppel met een CAR T-cel en een JeKo-1-doelwitcel in nauw contact.
Vervolgens werden DE50-druppeltjes geanalyseerd door middel van flowcytometrie om het percentage CAR T-cellen met vroege GzmB-secretie en cytotoxische celdodende activiteit te kwantificeren (Figuur 5). Pre-incubatiekleuring van JeKo-1-doelwitcellen met een verrode kleurstof en effector-T-cellen met een violette kleurstof vóór inkapseling vergemakkelijkte de identificatie van drie verschillende celbevattende druppelpopulaties, aangezien de cellen worden verdeeld in druppeltjes op basis van Poisson-verdeling. De geïdentificeerde druppelpopulaties zijn druppeltjes met alleen T-cellen, alleen JeKo-1-cellen en T-cellen en JeKo-1-cellen samen (Figuur 5A). Druppeltjes die T-cellen co-inkapselen met JeKo-1-cellen werden afgeschermd en geanalyseerd op signalen die duiden op GzmB-activiteit (Figuur 5B) en celdood, zoals aangegeven door PI (Figuur 5C).
De inkapseling van cellen in druppeltjes volgt de Poisson-verdeling en er worden vier verschillende druppelpopulaties verkregen (Figuur 6A). Figuur 6B toont het niveau van GzmB-positieve druppeltjes binnen alle druppelpopulaties na 6 uur incubatie van druppeltjes waaruit het percentage spontane GzmB-afscheidende T-cellen kan worden bepaald. Deze gegevens geven de hoge specificiteit van de methode aan, aangezien alleen CAR T-cellen GzmB afscheiden.
Ten slotte kwantificeerden we GzmB- en PI-niveaus op verschillende tijdstippen, na 2 uur, 4 uur en 6 uur co-incubatie. Ter referentie: de druppeltjes die alleen T-cellen en alleen JeKo-1-cellen bevatten, werden geanalyseerd om de achtergrondceldood in elke populatie te onderzoeken (Figuur 6C). De achtergrondceldood werd gebruikt om het percentage levende GzmB-secreterende en doelceldodende T-cellen in de populatie van effectorcellen te bepalen (Figuur 7), zoals beschreven in stap 3.3. CAR T-cellen van twee donoren vertoonden een tijdsafhankelijke toename van zowel door doelcellen geïnduceerde GzmB-secretie als celdodende activiteit. Bijna 36% van de levende CAR T-cellen van donor 1 en 31% van donor 2 hadden GzmB uitgescheiden na 6 uur co-inkapseling met de doelcel, een significante toename in vergelijking met NTD-controle-T-cellen (Figuur 7A). Dienovereenkomstig had ongeveer 21% van de levende donor 1 en 22% van de levende donor 2 CAR T-cellen doelwitcellen gedood, zoals aangegeven door een positief PI-signaal (Figuur 7B). Het percentage CAR T-cellen dat GzmB had uitgescheiden, overschreed het percentage gedode doelwitcellen op elk tijdstip, in overeenstemming met de verwachte opeenvolging van gebeurtenissen in GzmB-gemedieerde cytotoxiciteit. Alles bij elkaar tonen deze gegevens aan dat de hier gepresenteerde methode het mogelijk maakt om de heterogeniteit in individuele T-celcytotoxiciteit binnen een populatie cellen te karakteriseren, evenals vergelijkingen tussen verschillende populaties.
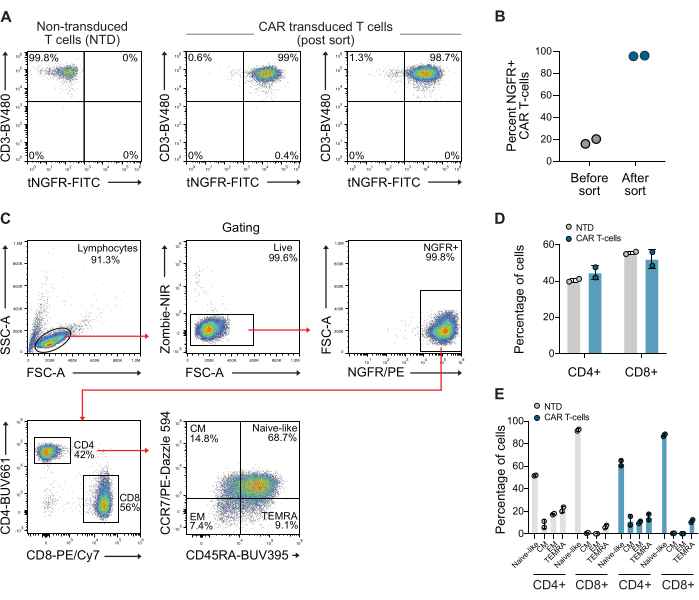
Figuur 1: Representatieve flowcytometriegrafieken na NGFR-sortering. (A) Na ongeveer 10 dagen expansie werden CAR T-cellen gesorteerd met behulp van NGFR-specifieke microbeads en magnetische sortering, wat resulteerde in een populatie van CAR T-cellen die >98% CAR T-cellen was. (B) Kwantificering van CAR T-cellen van twee donoren die in deze studie zijn gebruikt voor en na het sorteren. (C) Poortstrategie die wordt gebruikt voor het onderzoeken van de CD4/CD8-verhouding en het geheugenfenotype van T-cellen. (D) Kwantificering van CD4 en CD8 van gebruikte T-cellen. (E) Kwantificering van het geheugenfenotype van de gebruikte T-cellen. Afkorting: CM = centraal geheugen, EM = effectorgeheugen, NTD = niet-getransduceerd, TEMRA = terminaal gedifferentieerde effectorcellen. Klik hier om een grotere versie van deze figuur te bekijken.
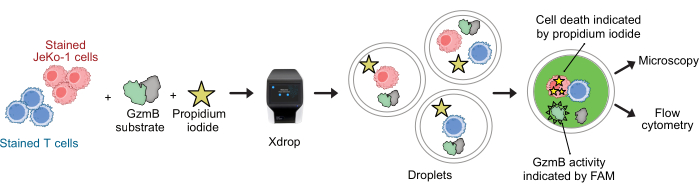
Figuur 2: Workflow voor de gecombineerde GzmB-secretie- en cytotoxiciteitstest met eencellige resolutie in druppeltjes. Vóór inkapseling in DE-druppeltjes worden de doel- en effectorcellen afzonderlijk gekleurd met behulp van violette en verrode celkleuringen. Met behulp van het microfluïdische apparaat en de inkapselingscartridge worden effectorcellen samen met doelcellen ingekapseld in druppeltjes samen met celmedium, PI en FAM-gelabeld GzmB-peptidesubstraat. De test en incubatie vinden plaats in de druppels. Uitgescheiden GzmB-activiteit wordt aangegeven door emissie van groene fluorescentie die optreedt nadat GzmB het substraat heeft gesplitst. Celdood wordt aangegeven door PI. Na incubatie worden DE50-druppels geanalyseerd door middel van microscopie en/of flowcytometrie. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: Analyse van met druppels ingekapselde PBMC's die vooraf zijn gelabeld met anti-CD3-, anti-CD4- en anti-CD8-antilichamen. (A) Microscopiebeelden van druppeltjes met ingekapselde PBMC's vooraf gelabeld met anti-CD3 (APC) en anti-CD4 (NIR) antilichamen. Scalebar = 100 μm. (B) As (A), maar in plaats daarvan met CD3 (FITC) en anti-CD8 (NIR) labeling. Schaalbalk = 100 μm. (C) Flowcytometrie-analyse van dezelfde druppels. Klik hier om een grotere versie van deze figuur te bekijken.
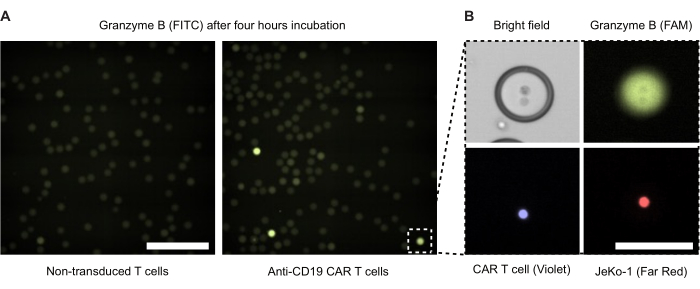
Figuur 4: Microscoopbeelden van druppels met effector- en doelcellen. De foto's werden gemaakt na een incubatie van 4 uur in een standaard 37 °C, 5% CO2 bevochtigde celincubator. (A) Druppels van een monster met ingekapselde NTD- en JeKo-1-cellen (links) of CAR T-cellen en JeKo-1-cellen (rechts) in beeld gebracht door fluorescentiemicroscopie met behulp van het FITC-kanaal om GzmB-positieve (groene) druppeltjes te detecteren. Scalebar = 500 μm. (B) Een enkele druppel afgebeeld door fasecontrast, FITC (GzmB), APC (JeKo-1-cel) en DAPI (CAR T-cel). Schaalbalk = 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
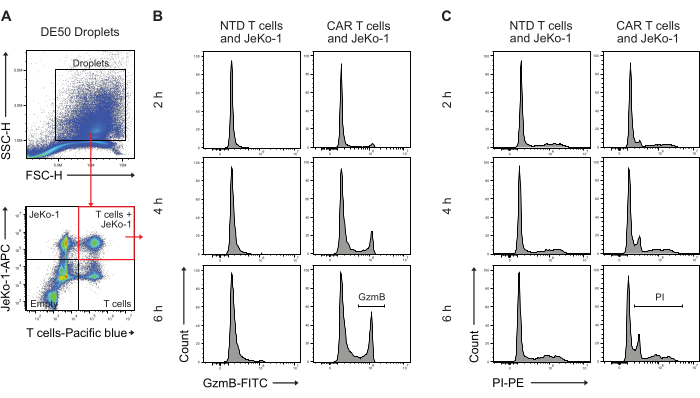
Figuur 5: Poortstrategie voor het analyseren van druppels door middel van flowcytometrie na incubatie. (A) Gating werd gedaan door voorwaartse en zijwaartse verstrooiing om druppeltjes te identificeren, gevolgd door het selecteren van de poort die de druppeltjes bevatte. De gebeurtenissen buiten de poort vertegenwoordigen oliedruppels die worden geproduceerd als bijproduct van de productie van dubbele emulsiedruppels. Daaropvolgende fluorescentieanalyse van druppeltjes in kanalen die overeenkomen met de aangebrachte celkleuringen identificeert vier druppelpopulaties: druppeltjes die zowel T-cellen als JeKo-1-cellen bevatten (rood vierkant); druppeltjes met alleen JeKo-1-cellen; druppeltjes met alleen T-cellen; en lege druppels. (B) Representatieve histogrammen voor GzmB-signaal in dubbel-positieve druppeltjes op tijdstippen en tussen NTD- en CAR T-cellen. (C) Representatieve histogrammen voor PI-signaal in dubbel-positieve druppels over tijdstippen en tussen NTD en CAR T-cellen. Alle druppelmetingen worden uitgevoerd als intensiteitshoogtemetingen (H). Klik hier om een grotere versie van deze figuur te bekijken.
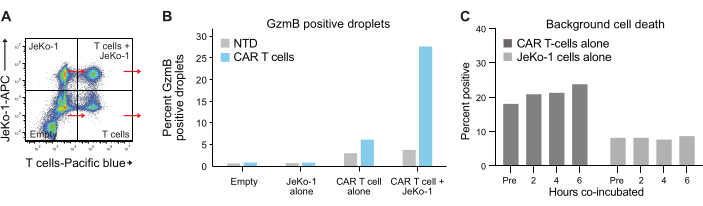
Figuur 6: Interne controle en referentiepopulaties. (A) Elk van de vier kwadranten uit Figuur 5A werd geselecteerd, en GzmB en PI werden in elk gemeten. Dit type kwantificering maakt het mogelijk om achtergrondsignalen te meten en af te trekken voordat een definitieve analyse van de werkzaamheid van T-cellen wordt uitgevoerd. (B) Grafiek met de frequentie van GzmB-positieve druppeltjes na incubatie van 6 uur voor elk van de vier druppelpopulaties, geïllustreerd met gegevens van de Donor 1 CAR T-steekproef. (C) Achtergrondceldood werd bepaald in populaties van alleen JeKo-1- en T-cel-controledruppeltjes op elk gemeten tijdstip, met gegevens van donor 1. De achtergrondceldood wordt gebruikt voor het berekenen van de frequentie van levende GzmB-secreterende en celdodende effectorcellen, zoals weergegeven in figuur 7 en uitgelegd in stap 3.3. Afkortingen: Pre = inkapseling. Klik hier om een grotere versie van deze figuur te bekijken.
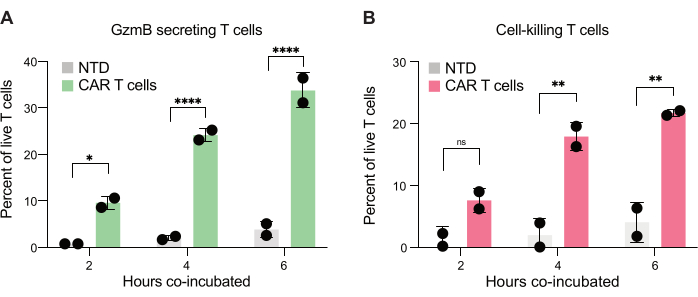
Figuur 7: Kwantificering van T-cellen die in staat zijn GzmB af te scheiden en JeKo-1-cellen te doden in dubbel-positieve druppeltjes. Dubbel positieve druppeltjes van twee donoren werden onderzocht na co-incubatie van 2 uur, 4 uur en 6 uur in druppels. (A) Frequentie van doelcel-tegenkomende T-cellen die GzmB afscheiden en vergelijking tussen NTD T-cellen en CAR T-cellen. (B) Frequentie van doelcel-tegenkomende T-cellen die de geco-ingekapselde doelwitcel doden. Afkortingen: GzmB = granzyme B, NTD = niet-getransduceerd, PI = propidiumjodide. * = P-waarde < 0,05, ** = P-waarde < 0,005, **** = P-waarde < 0,0001 door tweerichtings-ANOVA. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Hier presenteren we een methode voor het onderzoeken van het cytotoxische potentieel van T-cellen op eencellig niveau met behulp van een eenvoudig te gebruiken, in de handel verkrijgbaar microfluïdumapparaat om het cytotoxische potentieel van CD19-CD28-CD3z CAR T-cellen te evalueren bij co-inkapseling met de CD19-positieve mantelcellymfoomcellijn JeKo-1.
Er zijn verschillende cruciale stappen in dit protocol. Ten eerste raden we aan om stimulatiekorrels ten minste 48 uur voor het uitvoeren van tests van T-cellen te verwijderen om vals-positieve resultaten te voorkomen. Ten tweede kan de efficiëntie van T-celtransductie met constructies zoals CAR's of T-celreceptoren aanzienlijk variëren. Zonder een daaropvolgende zuiveringsstap van de getransduceerde T-cellen kunnen de resultaten een uitdaging zijn om te interpreteren. Hier werd een zuivere populatie van CAR T-cellen gebruikt en daarom kan een hoge mate van zekerheid worden verwacht bij het karakteriseren van CAR T-cellen als killers of non-killers op elk tijdstip. Als alternatief kan het labelen van CAR's met fluorescerend eiwit of genetische tag worden toegepast om cellen aan te geven die CAR-positief zijn en vervolgens worden afgeschermd bij het analyseren van druppeltjes. Als tagging wordt gebruikt, mogen de geselecteerde fluorescerende moleculen de fluorescerende emissies van een van de andere testfluoroforen niet verstoren. Het gebruik van GFP-tagging zou bijvoorbeeld interfereren met het FAM-gelabelde GzmB-substraat dat wordt toegepast in de experimenten die hier worden uitgevoerd en wordt daarom niet aanbevolen.
Een groot voordeel van het hier beschreven protocol is dat het genereren van druppels zelf wordt vereenvoudigd en geautomatiseerd. Om inkapseling van één cel te garanderen, is het echter belangrijk dat cellen grondig resuspenderen voordat de cartridge wordt geladen. Om deze reden wordt aanbevolen om in een redelijk tempo te werken bij de voorbereiding om de cartridge te laden. Een soortgelijke overweging is van toepassing bij het toevoegen van het GzmB-substraat, aangezien sommige cellen hoge afscheiders van GzmB zijn. De resuspensie van cellen voorkomt ook verstopping van kleine microfluïdische kanalen van cartridges. Een goede inkapseling van cellen kan eenvoudig worden gecontroleerd door middel van microscopie, zoals hierboven beschreven.
Omdat de druppel het celmedium inkapselt en cellulaire producten vasthoudt die door cellen worden uitgescheiden, kunnen andere cytokines, antilichamen en verbindingen worden geanalyseerd. We hebben inderdaad andere relevante door immuuncellen uitgescheiden moleculen getest, zoals IFN-γ en TNF-α, die aanpassingen van het huidige protocol vereisen. Voor cytokinedetectie kan een ander type testformaat worden toegepast dan we hier voor GzmB gebruiken, zoals het genereren van een ELISA-sandwich op het oppervlak van de effectorcel32. Bovendien kunnen celkleuringen en testkleuren worden gewijzigd, bijvoorbeeld carboxyfluoresceïnesuccinimidylester (CFSE), maar het is belangrijk om ervoor te zorgen dat er minimaal of geen doorbloeding is in verschillende kleurencombinaties, zoals zou worden gedaan bij standaard flowcytometrie.
Bovendien is dit protocol niet beperkt tot het analyseren van CAR T-cellen. Het kan ook worden uitgebreid om andere T-cel/doelwit-interacties of andere immuuncellen zoals CAR NK-cellen te bestuderen. Er kunnen ook meer geavanceerde experimenten worden overwogen, bijvoorbeeld het labelen van CD4 en CD8 T-cel subsets met extra fluoroforen om bredere functionele immunofenotypering uit te voeren. Hier laten we inderdaad zien dat CD4 en CD8 in de druppeltjes kunnen worden gedetecteerd, waardoor een verdere karakterisering van de effector-T-cellen en hun cytotoxische capaciteit mogelijk wordt.
Bij het optimaliseren van dit protocol hebben we er specifiek naar gestreefd om het te laten werken op standaard flowcytometrie-instrumenten. Hoewel druppelflowcytometrie niet ingewikkeld is, hebben we gemerkt dat olieophoping kan optreden als de flowcytometer niet goed wordt gespoeld met bepaalde tussenpozen of zoals hier aanbevolen na de analyse van monsters op elk tijdsinterval. Het beste spoelprotocol kan specifiek zijn voor elke individuele flowcytometer.
Een van de belangrijke voordelen van deze methode is de hoge doorvoercapaciteit, waardoor de door een enkele-cel effector-gemedieerde cytotoxiciteit tegen doelcellen kan worden gemonitord zonder dat er uitgebreide expertise of zeer gespecialiseerde apparatuur nodig is. De test kan eenvoudig worden uitgevoerd met behulp van bestaande hulpmiddelen, zoals flowcytometrie of microscopie. Dubbele emulsiedruppels kunnen ook worden gesorteerd met behulp van celsorteerders30,31, waardoor cellen met specifieke functionaliteiten kunnen worden geïsoleerd, bijv. CAR T-cellen met en zonder cytotoxisch potentieel, gevolgd door transcriptoomanalyse van één cel.
De technologie is niet zonder beperkingen. Hoewel sommige cellijnen cultuur in druppeltjes gedurende 24 uur en langer verdragen, kunnen primaire cellen na 24 uur een aanzienlijk lagere levensvatbaarheid hebben. Dit vertegenwoordigt een tijdsbeperking voor de tests in het algemeen, maar voor de huidige test kunnen merkbare GzmB- en celdodende activiteit binnen 4-6 uur worden waargenomen, waarschijnlijk omdat het kleine druppelcompartiment zorgt voor een snelle ontmoeting van de effector- en doelcellen. Evenzo zorgt het kleine druppelvolume voor een snelle opbouw van de concentratie tot detecteerbare niveaus van het uitgescheiden GzmB-gesplitste substraat. Een andere beperking van de technologie is het onvermogen om seriële doding door effectorcellen te detecteren bij gebruik van standaard flowcytometers. Dit zou echter mogelijk kunnen worden bereikt met beeldflowcytometers of beeldcytometrietechnologieën, die moeten worden onderzocht.
De adoptieve overdracht van CD19 CAR T-cellen heeft opmerkelijk succes geboekt bij de behandeling van patiënten met hematologische maligniteiten. Desondanks is er een grote variatie in respons en onvoorspelbare toxiciteit bij patiënten32, wat deels te wijten kan zijn aan de heterogeniteit binnen het CAR T-infusieproduct. Als gevolg hiervan is er een groeiende belangstelling voor het analyseren van de fenotypische samenstelling en het cytotoxische vermogen van individuele CAR T-cellen binnen een populatie. Dit zal vooral belangrijk zijn omdat CAR-therapie steeds vaker wordt getest bij auto-immuunziekten en bij andere vormen van kanker. Het microfluïdische apparaat en protocol dat hier wordt beschreven, bieden een robuuste en veelzijdige benadering voor het onderzoeken van de heterogeniteit van CAR T-cellen en andere celgebaseerde therapieën.
Openbaarmakingen
De auteurs verklaren de volgende tegenstrijdige belangen: M.B.B. heeft consulting-honoraria ontvangen van Janssen, Roche en Kite/Gilead, die geen verband houden met dit werk. D.L.P. en P.M. zijn medewerkers van Samplix.
Dankbetuigingen
De auteurs willen de leden en medewerkers van CITCO en Samplix bedanken voor de nuttige discussies en suggesties. M.B.B. wordt ondersteund door de Early-Career Clinician Scientists' fellowship van de Lundbeck Foundation (R381-2021-1278). Dit werk wordt ondersteund door een elite-onderzoeksbeurs van het Universitair Ziekenhuis van Odense. Bovendien werd dit onderzoek ondersteund door een subsidie van de European Innovation Council Project 190144395 aan Samplix ApS.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Reagents | |||
| Blocker BSA (BSA) | Thermo Scientific | 37525 | |
| CellTrace Far Red Cell Proliferation Kit (far red fluorescent dye) | Invitrogen | C34564 | |
| CellTrace Violet Cell Proliferation Kit (violet fluorescent dye) | Invitrogen | C34557 | |
| DE Stabilizing Solution (stabilizing solution) | Samplix | REDIVSTABSOL1500 | |
| DPBS (dPBS) | Gibco | 14190-094 | |
| Dulbecco’s PBS (dPBS) | Capricorn Scientific | PBS-1A | |
| Dynabeads Human T-Activator (CD3/CD28 activation beads) | Gibco | 11132D | |
| Fetal Bovine Serum (FBS) | Capricorn Scientific | FBS-HI-12A | |
| Lenti-X Concentrator (PEG-based reagent) | Takara Bio | 631232 | |
| MACSelect LNGFR Microbeads (anti-NGFR magnetic beads) | Miltenyi Biotec | 130-091-330 | |
| OptiPrep density gradient medium (gradient medium) | Stemcell | 7820 | |
| Penicillin-Streptomycin (P/S) | Capricorn Scientific | PS-B | |
| Propidium iodide (PI) | Invitrogen | BMS500PI | |
| Recombinant Human IL-2 (IL-2) | Peprotech | 200-02 | |
| RPMI-1640 with Stable Glutamine (RPMI-1640) | Capricorn Scientific | RPMI-STA | |
| RPMI-1640 without L-Glutamine and phenol red | Gibco | 32404-014 | |
| Xdrop DE oil I (oil) | Samplix | REOILDEC1900 | |
| Xdrop Granzyme B substrate (GzmB substrate) | Samplix | REGRB100 | |
| Zombie-NIR viability dye (viability dye) | BioLegend | 423106 | |
| Plasticware etc. | |||
| 8-chamber glass slide | Chemometec | 942-0003 | |
| Cell culture plate, 12 well | TH Geyer | 7696791 | |
| DNA LoBind tube, 2 mL (DNA tube) | Eppendorf | 30108078 | |
| Eppendorf tube, 1.5 mL (1.5 mL tube) | Eppendorf | 30108051 | |
| Falcon tube, 15 mL (15 mL tube) | TPP | 91015 | |
| Falcon tube, 5 mL (5 mL tube) | Falcon (VWR) | 734-0443 | |
| Green cell suspension flasks for cell incubations (T75 flask) | Sarstedt | 148.19.22 | |
| Green cell suspension plates for cell incubations (96 well plate) | Sarstedt | 148.32.20 | |
| LS Separation Columns (separation column) | Miltenyi Biotec | 130-042-401 | |
| Xdrop DE Gaskets (gaskets) | Samplix | #GADEA100 | |
| Xdrop DE50 Cartridge (encapsulation cartridge) | Samplix | #CADE50A100 | |
| Antibodies | |||
| anti-CCR7 PE-Dazzle 594 | BioLegend | 353236 | |
| anti-CD19 CAR FMC63 Idiotype Antibody, PE | Miltenyi Biotec | 130-127-342 | |
| anti-CD3 APC | Biolegend | 300439 | |
| anti-CD3 BV480 | BD Biosciences | 566105 | |
| anti-CD3 FITC | BD Biosciences | 345763 | |
| anti-CD4 BUV661 | BD Biosciences | 612962 | |
| anti-CD4 StarBright Violet 760 | Bio-Rad | MCA1267SBV760T | |
| anti-CD45RA BUV395 | BD Biosciences | 740298 | |
| anti-CD8 PE-Cy7 | BioLegend | 344712 | |
| anti-CD8 StarBright Violet | Bio-Rad | MCA1226SBV760 | |
| anti-NGFR FITC | BioLegend | 345106 | |
| anti-NGFR PE | BioLegend | 345106 | |
| Cells | |||
| JeKo-1 Mantle-cell lymphoma cell-line (JeKo-1) | ATCC | CRL-3006 | |
| Primary peripheral blood mononuclear cells (PBMCs) | |||
| Equipment | |||
| Countess 3 Automated Cell Counter | Thermo Fisher Scientific | A50298 | |
| DynaMag-2 Magnet | Invitrogen | 12321D | |
| NovoCyte Quanteon Flow Cytometer (flow cytometer) | Agilent | 2010011AA | |
| Xdrop (microfluidics device) | Samplix | IN00110-EU |
Referenties
- Pasqui, D. M., Latorraca, C. D. O. C., Pacheco, R. L., Riera, R. CAR-T cell therapy for patients with hematological malignancies. A systematic review. Eur J Haematol. 109 (6), 601-618 (2022).
- Krejcik, J., et al. Harnessing the immune system to fight multiple myeloma. Cancers. 13 (18), 4546(2021).
- Tokarew, N., Ogonek, J., Endres, S., von Bergwelt-Baildon, M., Kobold, S. Teaching an old dog new tricks: next-generation CAR T cells. British J Cancer. 120 (1), 26-37 (2019).
- Bogetofte Barnkob, M., Vitting-Seerup, K., Rønn Olsen, L. Target isoforms are an overlooked challenge and opportunity in chimeric antigen receptor cell therapy. Immunother Adv. 2 (1), ltac009(2022).
- Daei Sorkhabi, A., et al. The current landscape of CAR T-cell therapy for solid tumors: Mechanisms, research progress, challenges, and counterstrategies. Front Immunol. 14, 1113882(2023).
- Considerations for the Development of Chimeric Antigen Receptor (CAR) T Cell Products. , Center for Biologics Evaluation and Research. https://www.fda.gov/regulatory-information/search-fda-guidance-documents/considerations-development-chimeric-antigen-receptor-car-t-cell-products (2024).
- Roddie, C., O'Reilly, M., Dias Alves Pinto, J., Vispute, K., Lowdell, M. Manufacturing chimeric antigen receptor T cells: issues and challenges. Cytotherapy. 21 (3), 327-340 (2019).
- Wang, L., et al. Improvement of in vitro potency assays by a resting step for clinical-grade chimeric antigen receptor engineered T cells. Cytotherapy. 21 (5), 566-578 (2019).
- Burrows, S. R., Fernan, A., Argaet, V., Suhrbier, A. Bystander apoptosis induced by CD8+ cytotoxic T cell (CTL) clones: implications for CTL lytic mechanisms. Int Immunol. 5 (9), 1049-1058 (1993).
- Gattinoni, L., et al. Acquisition of full effector function in vitro paradoxically impairs the in vivo antitumor efficacy of adoptively transferred CD8+ T cells. J Clin Invest. 115 (6), 1616-1626 (2005).
- Chen, G. M., et al. Integrative bulk and single-cell profiling of premanufacture T-cell populations reveals factors mediating long-term persistence of CAR T-cell therapy. Cancer Dis. 11 (9), 2186-2199 (2021).
- Frazer, G. L., Gawden-Bone, C. M., Dieckmann, N. M. G., Asano, Y., Griffiths, G. M. Signal strength controls the rate of polarization within CTLs during killing. J Cell Biol. 220 (10), e202104093(2021).
- Hermans, I. F., et al. The VITAL assay: a versatile fluorometric technique for assessing CTL- and NKT-mediated cytotoxicity against multiple targets in vitro and in vivo. J Immunol Meth. 285 (1), 25-40 (2004).
- Zaritskaya, L., Shurin, M. R., Sayers, T. J., Malyguine, A. M. New flow cytometric assays for monitoring cell-mediated cytotoxicity. Expert Rev Vaccines. 9 (6), 601-616 (2010).
- Piccinini, C., et al. In vitro CAR-T cell killing: validation of the potency assay. Cancer Immunol Immunother CII. 73 (9), 168(2024).
- Martinez, E. M., et al. High-throughput flow cytometric method for the simultaneous measurement of CAR-T cell characterization and cytotoxicity against solid tumor cell lines. SLAS Disc Adv Life Sci. 23 (7), 603-612 (2018).
- Jedema, I., van der Werff, N. M., Barge, R. M. Y., Willemze, R., Falkenburg, J. H. F. New CFSE-based assay to determine susceptibility to lysis by cytotoxic T cells of leukemic precursor cells within a heterogeneous target cell population. Blood. 103 (7), 2677-2682 (2004).
- Liu, L., et al. Cellular and molecular imaging of CAR-T cell-based immunotherapy. Adv Drug Delivery Rev. 203, 115135(2023).
- Liadi, I., et al. Defining potency of CAR+ T cells: Fast and furious or slow and steady. Oncoimmunology. 8 (10), e1051298(2019).
- Xhangolli, I., et al. Single-cell analysis of CAR-T cell activation reveals a mixed TH1/TH2 response independent of differentiation. Genom Proteom Bioinfo. 17 (2), 129-139 (2019).
- Zhou, Y., et al. Evaluation of single-cell cytokine secretion and cell-cell interactions with a hierarchical loading microwell chip. Cell Rep. 31 (4), 107574(2020).
- LaBelle, C. A., Zhang, R. J., Hunsucker, S. A., Armistead, P. M., Allbritton, N. L. Microraft arrays for serial-killer CD19 chimeric antigen receptor T cells and single cell isolation. Cytometry J Int Soc Anal Cytol. 103 (3), 208-220 (2023).
- Hellmann, M. J., et al. Heterogeneously deacetylated chitosans possess an unexpected regular pattern favoring acetylation at every third position. Nat Comm. 15 (1), 6695(2024).
- Wong, K. U., et al. Assessment of chimeric antigen receptor T cytotoxicity by droplet microfluidics in vitro. Antibody Therapeut. 5 (2), 85-99 (2022).
- Antona, S., Platzman, I., Spatz, J. P. Droplet-based cytotoxicity assay: Implementation of time-efficient screening of antitumor activity of natural killer cells. ACS omega. 5 (38), 24674-24683 (2020).
- Subedi, N., et al. An automated real-time microfluidic platform to probe single NK cell heterogeneity and cytotoxicity on-chip. Sci Rep. 11 (1), 17084(2021).
- Zhang, Y., et al. Enhanced CRISPR/Cas12a-based quantitative detection of nucleic acids using double emulsion droplets. Biosens Bioelect. 257, 116339(2024).
- Kochenderfer, J. N., et al. Construction and preclinical evaluation of an anti-CD19 chimeric antigen receptor. J Immunother. 32 (7), 689-702 (2009).
- Michaels, Y. S., et al. Precise tuning of gene expression levels in mammalian cells. Nat Comm. 10 (1), 818(2019).
- Yuan, Y., et al. Droplet encapsulation improves accuracy of immune cell cytokine capture assays. Lab on a Chip. 20 (8), 1513-1520 (2020).
- Brower, K. K., et al. Double emulsion flow cytometry with high-throughput single droplet isolation and nucleic acid recovery. Lab on a Chip. 20 (12), 2062-2074 (2020).
- Kirouac, D. C., et al. Deconvolution of clinical variance in CAR-T cell pharmacology and response. Nat Biotechnol. 41 (11), 1606-1617 (2023).
Herprints en machtigingen
