Seriële tweefotontomografie (STPT) beeldvorming is een techniek om een weefselmassa in zijn driedimensionale vorm in beeld te brengen door tweefotonbeeldvorming te combineren met automatische faseregeling en microtoom slicing. Hier beschrijven we een protocol voor de implementatie ervan voor zijdeaapjes om hun structurele kenmerken beter te begrijpen.
Methodenartikel
Seriële twee-fotontomografie van het hele zijdeaapje brein voor neuroanatomische analyses
In dit artikel
Samenvatting
Samenvatting
Seriële tweefotontomografie (STPT) is een techniek om een weefselmassa in zijn driedimensionale vorm in beeld te brengen door tweefotonbeeldvorming te combineren met automatische faseregeling en microtoom slicing. We hebben deze techniek met succes geïmplementeerd voor het traceren van de axonale projecties in de hersenen van zijdeaapjes. Hier worden de gedetailleerde experimentele procedures beschreven die resulteerden in betrouwbare volumetrische beeldvorming van het hele brein van zijdeaapjes. Een belangrijk proces voor succesvolle beeldvorming was het verwijderen van hersenvliezen rond de hersenen, die het snijden verstoren. Een groot voordeel van deze methodiek is dat de gesneden secties gebruikt kunnen worden voor extra kleuring. In de oorspronkelijke opstelling worden de gesneden partjes door elkaar gegooid in het waterbad. Deze secties kunnen correct worden uitgelijnd in hun oorspronkelijke volgorde volgens de bloedvatpatronen in de cortex. Een voorbeeld van effectieve histologie is de visualisatie van de myelinestructuur door eenvoudige lichtreflectie, die kan worden gecombineerd met Nissl-kleuring om anatomische grenzen te definiëren. Deze secties kunnen ook worden gebruikt voor immunologische detectie van niet-fluorescerende anterograde en retrograde tracers, die kunnen worden geregistreerd in de STPT-gegevens voor gelaagdheid van meerdere gegevens.
Inleiding
In neuroanatomische studies worden onderzoekers geconfronteerd met de noodzaak om micrometerordestructuren (bijv. axonen en boutonen) te observeren in de context van het hele brein. Deze moeilijke taak werd meestal benaderd door de seriële secties visueel te inspecteren en te zoeken naar het interessegebied voor gedetailleerde beeldvorming, analyses en foto-opnamen. Met de technologische vooruitgang wordt het echter mogelijk om het hele brein met hoge resolutie in beeld te brengen voor analyse van het hele brein. In een baanbrekende studie van Oh et al.1 ontvingen honderden muizenhersenen tracerinjecties voor connectomische analyse, die werden verwerkt door middel van seriële twee-fotontomografie (STPT) beeldvormingstechniek2. Het kenmerk van deze studie was dat ze anterograde tracers selecteerden om "connectiviteit" te kwantificeren. Terwijl anterograde tracers zeer gedetailleerde ruimtelijke informatie over axonale verdeling bieden, hebben neuroanatomen voor de analyse vertrouwd op moeizame handmatige segmentatie. Door verschillende analytische procedures te automatiseren, waaronder deze segmentatiestap, slaagden ze erin om de "massaproductie" van kant-en-klare tracergegevens met hoge resolutie voor multifunctioneel gebruik te realiseren. De effectiviteit van hun aanpak is duidelijk, gezien een verscheidenheid aan onderzoeken die hun tracergegevens 3,4,5 en hun standaard hersenen6 gebruikten.
Historisch gezien heeft de neurale connectiviteit van niet-menselijke primatenhersenen de aandacht getrokken van veel neuroanatomen sinds de ontwikkeling van de degeneratiemethode in de jaren 1950, tot anterograde/retrograde stoftransportmethoden in de jaren 1970 tot de huidige virale strategie 7,8. Als zodanig bestaan er enorme stukken literatuur die neurale verbindingen van primaten onderzoeken. In het bijzonder hebben veel onderzoekers de complexe corticocorticale connectiviteit van het brein van de makaak onderzocht, en hun resultaten zijn samengesteld voor tabellering (bijv. CoCoMac9). Hoewel nuttig, hadden deze klassieke onderzoeken verschillende beperkingen. Ten eerste, omdat elke studie zich alleen richt op beperkte hersengebieden, wordt de verkregen informatie onvermijdelijk fragmentarisch. Ten tweede gebruikt elk onderzoek verschillende methoden en voorwaarden. Zo wordt de kwantitatieve evaluatie in verschillende onderzoeken ingewikkeld. Ten derde wordt de connectiviteit meestal weergegeven als een camera lucida van representatieve secties of als een semi-kwantitatieve tabel/grafiek voor door de auteur gedefinieerde hersengebieden. Met andere woorden, slechts zeer beperkte informatie uit een complexe hersenstructuur wordt geëxtraheerd voor presentatie in de gepubliceerde literatuur. Met de ontwikkeling van magnetische resonantie beeldvorming (MRI) -technieken werden onderzoeken van het hele brein met een lage resolutie prominent. Er is echter een grote kloof tussen de detailniveaus tussen wat we weten over neurale verbindingen bij muizen en die bij primaten.
Met een dergelijke achtergrond in het achterhoofd, zijn we begonnen met het uitvoeren van uitgebreide anterograde tracering van de gewone marmoset-hersenen10,11. Hoewel veel kleiner en gladder dan de hersenen van de makaken, vertoont de zijdeaapse tegenhanger duidelijke tekenen van primaten, zoals de aanwezigheid van gebied MT en de granulaire prefrontale gebieden, die geen van beide duidelijk zijn gedefinieerd bij knaagdieren12,13. Hier was het kleine formaat een groot voordeel, omdat zelfs het brein van zijdeaapjes tien keer zwaarder weegt dan het brein van de muis. Gelukkig konden we het hele marmoset-brein in beeld brengen met minimale updates van de originele versie van TissueCyte1000 (hierna een beeldvormingssysteem voor hele weefsels genoemd) besturingssoftware, de in de handel verkrijgbare microscoop voor STPT-beeldvorming2. Deze update was bedoeld om extra beweging van het podium mogelijk te maken voordat het werd gesneden. De huidige versie is nu voldoende voor het verwerken van de marmoset-hersenen. Dit artikel deelt een protocol om de marmoset-hersenen te behandelen voor STPT-beeldvorming. Het post-imaging-protocol dat het nut van deze methode verder vergroot, wordt ook meegeleverd.
Protocol
Alle experimentele procedures werden uitgevoerd volgens de National Institute of Health Guide for the Care and Use of Laboratory Animals (NIH-publicaties nr. 80-23), herzien in 1996, en de "Guiding Principles for the Care and Use of Animals in the Field of Physiological Science" van de Japanese Physiological Society, en werden goedgekeurd door het Experimental Animal Committee van RIKEN (W2020-2-009(2)).
1. Tracer-injectie
- Voer injecties van fluorescerende en niet-fluorescerende tracers uit in de hersenen van zijdeaapjes volgens eerder gerapporteerde procedures14.
- Wat betreft de combinatie met de STPT-methode, zorg ervoor dat de fluorescentie van de tracers sterk genoeg is om zonder verbetering te worden gedetecteerd. Gebruik een TET-Off-systeem met dubbele vector10 voor verbeterde expressie.
OPMERKING: Niet-fluorescerende tracers kunnen ook worden geïnjecteerd en gedetecteerd nadat STPT is uitgevoerd met behulp van de geproduceerde plakjes. Voorbeelden van niet-fluorescerende tracers zijn onder meer gebiotinyleerd dextranenamine (BDA), AAV die cre tot expressie brengt in AAV2 retro voor retrograde detectie van de invoercelkernen10, evenals op GFP gebaseerde smFP-tag AAV's (zie hieronder).
- Wat betreft de combinatie met de STPT-methode, zorg ervoor dat de fluorescentie van de tracers sterk genoeg is om zonder verbetering te worden gedetecteerd. Gebruik een TET-Off-systeem met dubbele vector10 voor verbeterde expressie.
- Perfusie fixeert en verkrijgt de marmoset-hersenen na 4 weken.
- Om de zijdeaapjes te verdoven, dient u medetomidine (0,04 mg/kg), midazolam (0,4 mg/kg) en butorfanol (0,4 mg/kg), MMB genaamd, intramusculair toe, gevolgd door intraperitoneale injectie van thiopental natrium (100 mg/kg).
- Nadat u hebt bevestigd dat de pijnreflex verloren is gegaan, snijdt u de borstholte open om het hart bloot te leggen en snijdt u het rechter atrium door om het bloed en het fixeermiddel naar buiten te laten.
- Snijd vervolgens de linkerventrikel door om de perfusienaald in te brengen voor het eerst spoelen van het bloed met de prefixoplossing (250 mM sucrose, 5 mM MgCl2 in 0,02 M fosfaatbuffer [PB, pH 7,4]) gedurende enkele minuten (~50-100 ml), gevolgd door fixatie met 4% paraformaldehyde/0,1 M fosfaatbuffer (PB; 2-3 keer het gewicht van het dier gedurende ~20 min).
- Een goede perfusie is cruciaal voor een goed resultaat. Wanneer u de perfusienaald inbrengt, beweegt u deze langs het septum naar de aorta om een goede doorstroming van het fixatief te garanderen. De punt van de naald wordt zichtbaar wanneer deze de aorta bereikt. Trek terug totdat de punt nauwelijks zichtbaar is, zodat deze de halsslagader niet omzeilt.
- Houd de hersenen gedurende 48 uur bij 4 °C in 4% paraformaldehyde/0,1 M PB en breng over naar 50 mM PB. Als het niet onmiddellijk wordt gebruikt, bewaar de hersenen dan in 0,75% glycine/0,1 M PB om autofluorescentie als gevolg van overmatige fixatie te voorkomen.
2. Voorbereiding van het monster (figuur 1)
- Incubeer de gefixeerde hersenen met collagenase (1 mg/ml in 3 mM CaCl2 in 10 ml tris gebufferde zoutoplossing [TBS]) bij 37 °C gedurende 1 uur.
OPMERKING: Verwarm de hersenen 5 minuten voor op 37 °C voor incubatie. - Wrijf voorzichtig met een wattenstaafje over het hersenoppervlak om de pia-materie en andere hersenvliezen af te pellen (Figuur 1A, Aanvullende video). Gebruik een fijne tang om de losgeraakte hersenvliezen af te pellen.
OPMERKING: Het is belangrijk om de hersenvliezen rond de middenhersenen te verwijderen, inclusief de superieure colliculus of die aan de bovenkant van de thalamus. Het is moeilijk om deze structuren bloot te leggen die diep van binnen verborgen zijn. Verwijder echter zoveel mogelijk hersenvliezen. Anders blijven ze vaak ongesneden, drijven ze omhoog en verstoren ze de beeldvorming en het snijden (Figuur 2A). - Wees extra voorzichtig wanneer de hersenen worden onderworpen aan ex vivo MRI voordat ze worden ingebed, waarbij de hersenen worden ondergedompeld in fluoroplossing15. De overgebleven fluor kan, als het aan elkaar is ingebed, tijdens de beeldvorming kleine luchtbelletjes onder het objectief vormen. Om dit te voorkomen, houdt u de hersenen 1 week in PB voordat u ze inbedt.
OPMERKING: Deze wachtstap is meestal niet nodig, maar is van cruciaal belang in combinatie met ex vivo MRI. - Bereid de NaBH4-buffer voor door 0,2 g NaBH4 op te lossen in 100 ml 50 mM boraatbuffer (pH 9,2) opgewarmd tot 40°C. Laat de dop los om het CO2 -gas eruit te laten. Bewaar de oplossing een nacht met de dop los. Wikkel de fles in aluminiumfolie om hem tot gebruik tegen licht te beschermen.
- Maak geoxideerde agarose door 2,25 g agarose en 0,21 g NaIO4 in 100 ml PB gedurende 2-3 uur te roeren. Filtreer de oplossing met vacuümzuiging en was deze met drie verversingen van de PB. Resuspendeer de agarose in 50 ml PB.
- Smelt de agarose volledig in een magnetron en laat afkoelen tot 60-65 °C.
- Plaats de hersenen in een op maat gemaakte kamer en veranker de hersenen in agarose. Zorg ervoor dat de agarose in de holte onder het corpus callosum wordt ingebracht (Figuur 1B).
OPMERKING: Verwarm de hersenen eerst voor op kamertemperatuur en vervolgens gedurende 5 minuten op 65 °C om de agarose op het hersenoppervlak te laten bezinken zonder te stollen. - Demonteer de kamer en dompel het agaroseblok een nacht bij 4 °C onder in de NaBH4-buffer.
- Verander de buffer meerdere keren gedurende 1-2 weken bij 4 °C in PB.
OPMERKING: De autofluorescentie van het weefsel wordt erg zwak als de bufferuitwisseling onvolledig is. - Maak een dia glazen podium door vier Neodymium magneten te bevestigen met epoxy instant mix.
- Monteer het agaroseblok op het podium met een sterke lijm (bijv. superlijm) (Figuur 1C).
3. Weefselverwerking
- Bedien het hele weefselbeeldvormingssysteem volgens de instructies van de fabrikant. Er wordt ook een gedetailleerd protocol gepubliceerd16. De huidige procedure wordt voornamelijk gebruikt voor TissueCyte1000, maar kan ook worden toegepast op andere modellen, zoals TissueCyte 1600FC.
- De werking verschilt enigszins tussen de modellen, maar volg de onderstaande punten die vaak belangrijk zijn.
- Het hele brein van zijdeaapjes kan coronaal worden verwerkt van de voorste naar de achterste uiteinden zonder enige verandering in de hardware. Zorg ervoor dat de bewegingslimieten van de fase niet worden overschreden bij het plaatsen van de hersenen.
- Stel de hoek van de messen nauwkeurig af om ervoor te zorgen dat de oppervlaktediepten aan beide uiteinden van het blad binnen 10 μm liggen. Vanwege dichte myelinisatie kan zelfs een diepteverschil van 10 μm leiden tot verschillende laserpenetraties door volwassen zijdeaapjes witte stof. Stel om dezelfde reden het beeldvormingsvlak in op ongeveer 25-35 μm van het oppervlak.
- Gebruik een keramisch mes (aanbevolen) om de hele hersenen met tussenpozen van 50 μm (~meer dan 650 plakjes) te snijden.
- De hersenvliezen blijven ongesneden en belemmeren het snijden als ze niet op de juiste manier worden verwijderd (Figuur 2). Sommige hersenvliezen (bijv. die rond de hippocampus of pulvinar) zijn moeilijk te verwijderen. Verwijder deze hersenvliezen handmatig met een fijne tang wanneer ze worden opgemerkt.
4. Aanvullende histologische technieken
- Sectie ophalen
- Herstel de weefselplakjes om verschillende histologische kleuringen uit te voeren. Lijn deze secties nauwkeurig uit in de volgorde van snijden. Volg de bloedvaten over corticale lagen voor uitlijning (Figuur 3).
- Snijd overtollig agarose van elke sectie af voor een betere hantering.
OPMERKING: Dit proces hoeft niet buitensporig te zijn. De agarose dient om weefselsegmenten op hun plaats te houden zonder de histologische verwerking te verstoren. - Beeldvorming met achtergrondverlichting
- Monteer de secties op een diaglas en droog ze af.
- Rehydrateer het gedeelte met PBS en plaats het dekglaasje voor beeldvorming.
- Observeer een myelinisatiepatroon zonder kleuring wanneer de sectie wordt afgebeeld door een fluorescentiemicroscoop (Figuur 4) in een helderveldmodus. Pas de belichtingstijd aan zodat de lichtreflectie zichtbaar kan zijn.
OPMERKING: Elke microscoop kan worden gebruikt als deze donkerveldverlichting kan gebruiken. - Verwijder het dekglaasje en ga verder met Nissl-kleuring of een andere kleuring. Een eventuele standaard kleuringsprocedure is voldoende.
- Gebruik deze methode om verschillende kleuringspatronen direct te vergelijken met de myelinisatiepatronen (Figuur 4).
- BDA-beeldvorming
- Zie tabel 1 voor een gedetailleerde procedure.
- Behandel de secties eerst met Dent's Solution (20% DMSO, 80% Methanol). Methanol in de oplossing van Dent verbetert de BDA-signalen in de axonen drastisch.
- Gebruik de tyramidesignaalamplificatiemethode (TSA) om het BDA-signaal te versterken dat fluorescerend moet worden gedetecteerd17.
OPMERKING: TSA-biotine-oplossing kan bij de verkoper worden gekocht, maar het interne reagens is veel goedkoper en effectiever. - Om de STPT-afbeelding te registreren, maakt u een afbeelding met tegenlicht nadat u de sectie met de montagemedia op een diaglas hebt gemonteerd.
- Spaghettimonster fluorescerend eiwit (smFP) kleuring
OPMERKING: De 'spaghettimonster' fluorescerende eiwitten (smFP's) zijn een familie van niet-fluorescerende GFP-varianten met meerdere epitooptags18. Ze geven uitstekende fluorescerende signalen bij immunodetectie en zijn geschikt als begeleidende tracers voor fluorescerende tracers. Zie Tabel 2 voor de AAV-constructen die beschikbaar zijn bij Addgene.- Volg de gedetailleerde procedure in tabel 1.
5. Gegevensverwerking na de beeldvorming
- Test van de gegevensintegriteit
OPMERKING: STPT genereert een groot aantal afbeeldingsbestanden. Wanneer de hersenen van een volwassen zijdeaapje met tussenpozen van 50 μm coronaal worden doorsneden, zijn er doorgaans meer dan 650 secties nodig om de hele hersenen te bedekken. De gegevens van elke sectie bestaan uit een reeks tegelafbeeldingen die zijn vastgelegd in drie kanalen. Deze afbeeldingsbestanden worden opgeslagen in een enkele map, samen met een metagegevensbestand dat de positie van elke tegel registreert. Om de totale hoeveelheid gegevens en verwerkingstijd te minimaliseren, wordt de beeldvorming uitgevoerd in blokken van runs, waarbij het aantal X- en Y-stappen voor het naast elkaar zetten geleidelijk verandert. Doorgaans vormen 20-30 blokken runs, elk bestaande uit de beeldvorming van 30-50 secties, de volledige dataset voor een enkel brein. Om deze gegevens te gebruiken, zijn verschillende beeldverwerkingsstappen vereist, waaronder het samenvoegen van de tegelafbeeldingen, segmentatie van fluorescerende signalen en registratie van de volumetrische gegevens op een standaardsjabloon.- Voer de stappen voor beeldverwerking afzonderlijk uit met behulp van verschillende softwaretools of via speciale pijplijnen die zijn afgestemd op de specifieke behoeften van de onderzoekers. Details van de beeldverwerking vallen buiten het bestek van dit artikel en zijn te vinden in andere publicaties 11,19.
- Ongeacht de gebruikte procedure, zorg ervoor dat de gegevens consistent zijn georganiseerd.
OPMERKING: Aangezien het hele beeldvormingsproces vele blokken runs omvat en meerdere dagen beslaat, is het niet ongebruikelijk dat een run halverwege wordt geannuleerd en opnieuw wordt gestart. In dergelijke gevallen kan de datastructuur verstoord raken, waardoor een goede uitvoering van de beeldverwerkingspijplijn wordt belemmerd. - Om het risico op verstoring van de gegevensstructuur te minimaliseren, voert u een Python-script uit om de integriteit van de gegevensstructuur (kn_pipeline_check_mosaic.py) die beschikbaar is op GitHub (github.com/watkarbey/STPT_depo) te controleren.
- Registratie van de bevlekte afbeelding op de STPT-afbeelding
OPMERKING: Niet-lineaire transformatie van de bevlekte afbeelding naar de STPT-afbeelding kan worden uitgevoerd met behulp van de bUnwarpJ-plug-in van ImageJ.- Pas de grootte van de afbeeldingen van de doel- (STPT) en de bronafbeeldingen (bevlekte) aan zodat ze ongeveer gelijk zijn.
- Binariseer elke afbeelding om de vormen van de secties te visualiseren.
- Voer bUnwarpJ uit. Vergeet niet om de optie Transformaties opslaan aan te vinken .
- Start bUnwarpJ opnieuw. Selecteer de originele afbeelding vóór binarisatie als de bronafbeelding. Klik vervolgens op Load Elastic Transformation en kies de opgeslagen transformatie.
Resultaten
In de typische opstelling die hier wordt gebruikt, kunnen de hele hersenen van een volwassen zijdeaapje worden afgebeeld (Figuur 5) met een resolutie van ~1,3 x 1,3 μm/pixel met een doorsnede-interval van 50 μm in ongeveer 1 week. Dit komt neer op ~650 coronale beelden in drie kanalen na het samenvoegen van het beeld. Met een 16x objectieflens (Nikon 16xW CFI75 LWD; NA = 0,80), is de beeldhoek van een enkel schot ongeveer 1 x 1 mm. Het beeld voor het gehele coronale oppervlak wordt verkregen door deze opnamen te naaien (Figuur 5A). De uitlijning in de Z-richting is uitstekend en een goed 3D-beeld wordt verkregen door simpelweg de coronale beeldgegevens te stapelen (Figuur 5B,E). Voor standaardisatie kan de STPT-sjabloon voor de zijdeaap hersenen11 worden gebruikt voor 3D-3D-registratie (Figuur 5F). Deze gegevenstransformatie is een van de belangrijkste aspecten van de neuroanatomie van het hele brein, waarbij een interessegebied een absolute ruimtecoördinaat krijgt toegewezen, onafhankelijk van anatomische annotatie. Zodra het monster van het brein is geregistreerd in de standaardruimte, kan men gemakkelijk de subregio's van belang eruit halen voor verdere analyse (Figuur 5F,G). In het bijzonder kunnen de corticale gebieden worden getransformeerd in een platte kaart met behulp van een vooraf bepaalde parameter (Figuur 5H).
De secties die tijdens de beeldvorming worden gegenereerd, kunnen voor verschillende histologische doeleinden worden gebruikt. Zoals te zien is in figuur 4A,B, biedt de beeldvorming met achtergrondverlichting zonder kleuring een patroon dat sterk lijkt op de authentieke myelinekleuring. Dit kan een uitstekend alternatief zijn voor myelinekleuring. Bovendien, als het beeld met tegenlicht wordt verkregen vóór de Nissl-kleuring, kan hetzelfde gedeelte worden gebruikt om de patronen van zowel myeline- als Nissl-kleuring te verkrijgen, waardoor nuttige informatie wordt verkregen om gebieden en lagen te identificeren (Figuur 5C-E). Deze secties kunnen ook worden gebruikt voor immunologische kleuring. In figuur 5J werd het gedeelte rond het injectiecentrum geneutraliseerd met NeuN-antilichaam om de transductie-efficiëntie van het AAV-virus te schatten. Het is ook een goede strategie om naast fluorescerende tracers ook niet-fluorescerende tracers te injecteren en deze histologisch te detecteren na het ophalen van de sectie. In onze vorige studie combineerden we anterograde groene tracers met retrograde "cre" -vector, die later werd gedetecteerd door anti-cre-antilichaam10. In een voorbeeld van figuur 6A-E werd BDA geïnjecteerd in de contralaterale zijde van de groene tracer (klaver) en fluorescerend gedetecteerd. Merk op dat de rode BDA-signalen kunnen worden geregistreerd in het TissueCyte-beeld om te worden gelokaliseerd in de hele hersencoördinaat. In een ander voorbeeld van Figuur 6F-I werd smFP-myc geïnjecteerd in het pariëtale gebied (Figuur 6G), terwijl de groene tracer in het frontale gebied werd geïnjecteerd. Op deze manier kunnen meerdere tracers in hetzelfde dier worden geïnjecteerd zonder de beeldvorming te verstoren. Een groot voordeel van het gebruik van de STPT-secties voor extra kleuring is dat de relatie tussen de fluorescerende en niet-fluorescerende tracers voor dezelfde hersenen kan worden bepaald. Als zodanig waren we in staat om de wederkerigheid van corticocorticale projecties te bepalen met hoge precisie10. Een ander voordeel is dat de 3D-coördinaten van de bevlekte secties kunnen worden teruggekoppeld naar de STPT-gegevens en vervolgens naar het standaardsjabloon. Het is dus misschien niet nodig om alle opgehaalde secties te gebruiken voor kleuring. Voor een betere interpretatie kunnen secties worden geselecteerd voor kleuring om meer context aan de STPT-gegevens toe te voegen.

Figuur 1: Monstervoorbereiding voor STPT. (A) Verwijdering van hersenvlies met behulp van wattenstaafjes. De hersenvliezen rond de hersenstam kunnen worden verwijderd met een tang met een fijne punt. De hersenvliezen rond de marmoset-hersenen worden handmatig verwijderd door met wattenstaafjes te wrijven. De foto toont de hersenvliezen die vanuit de laterale sulcus zijn afgepeld. (B) De acryldoos die wordt gebruikt voor het inbedden van agarose. De pinnen zijn beweegbaar en worden gebruikt om de hoek van de hersenen aan te passen om dicht bij de stereotactisch vaste positie20 te komen. (C) Een magnetische dia gemaakt van 76 mm x 52 mm diaglas en vier neodymiummagneten bevestigd met epoxylijm. Het agaroseblok wordt met superlijm aan de magnetische tafel bevestigd. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Het effect van hersenvliezen op beeldvorming. (A) Hersenvliezen die ongesneden blijven, drijven omhoog, zoals aangegeven door de witte pijl. In dit voorbeeld wordt een uitgebreid uitsteeksel van de hersenvliezen gezien omdat ze niet zijn verwijderd voordat agarose werd ingebed. Gewoonlijk blijven hersenvliezen alleen ongesneden voor verschillende moeilijke regio's. (B) Een voorbeeld van slecht snijden vanwege de aanwezigheid van hersenvliezen tussen het corpus callosum en het bovenste deel van de thalamus. In dit geval leidde slecht snijden tot de afwisseling van een diepe plak (329) en een relatief normale plak (330). #78-329 staat voor monster nr. 78 sectie nr. 329 in het Brain/MINDS-dataportaal (C) Nog een voorbeeld van slechte beeldvorming. In het ergste geval kan de pulvinarkern die door de rode pijl wordt weergegeven, volledig loskomen. Schaalbalken: 0,5 mm (bovenste paneel), 0,5 μm (onderste paneel). (D) Nog een voorbeeld van slechte beeldvorming. De hersenvliezen diep in de calcarine sulcus zijn moeilijk te verwijderen. De schaduwen die in de secties 469 en 470 te zien zijn, worden veroorzaakt door de zwevende hersenvliezen die onder het doel vielen. Schaalbalken: 0,5 mm (bovenste paneel), 0,5 μm (onderste paneel). Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: Uitlijning van weefselcoupes op volgorde. (A) Tot 50 marmoset kroonsneden kunnen correct worden uitgelijnd in volgorde in een plastic container (31 cm x 22,5 cm). Om de gedetailleerde structuren te visualiseren, wordt de container op zwart papier geplaatst en vanaf de zijkant belicht. Deze secties worden eerst grofweg uitgelijnd in volgorde en vervolgens nauwkeurig uitgelijnd. (B) De precieze uitlijning gebruikt het bloedvat als marker. De hersenschors bevat veel bloedvaten die verticaal over corticale lagen lopen. Ze worden geïdentificeerd als langwerpige gaten die systematisch van positie veranderen binnen de corticale lagen (witte pijlen). Met deze methode kunnen zelfs secties met intervallen van 50 μm nauwkeurig worden uitgelijnd. Deze bloedvatgaten kunnen ter bevestiging worden geïdentificeerd in de afbeeldingen van de SPTP-sectie. Schaalbalk: 5 mm (bovenste paneel), 1 mm (onderste paneel). Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Beeld met tegenlicht als vervanging voor de myelinekleuring. (A,B) Het identieke gedeelte werd gebruikt voor beeldvorming met tegenlicht en myelinekleuring. Eerst werd de sectie op het glas van de dia gemonteerd, gedroogd, gerehydrateerd met PBS, afgedekt en afgebeeld met een lichtmicroscoop (Materiaaltabel). Na het verwijderen van het dekglaasje werd hetzelfde gedeelte gebruikt voor myelinekleuring21 en afgebeeld met een fluorescentiemicroscoop. Het beeld met achtergrondverlichting werd geregistreerd in het myelinebeeld met behulp van de bUnwarpJ-plug-in van ImageJ. De groene vakken tonen de vergrote weergaven van elke afbeelding. Merk op dat deze afbeeldingen bijna identieke patronen vertonen, behalve dat de myelinekleuring vezelachtige structuren beter visualiseert. (C-E) Het identieke gedeelte werd gebruikt voor beeldvorming met tegenlicht en Nissl-kleuring. Het laagdrempelige masker voor de afbeelding met achtergrondverlichting werd eerst geregistreerd met het laagdrempelige masker voor de Nissl-afbeelding met behulp van de bUnwarpJ-plug-in en de originele afbeelding werd getransformeerd met behulp van dezelfde parameter. Merk op dat de bloedvaten (witte pijlpunten) goed op elkaar zijn afgestemd tussen de twee afbeeldingen. Omdat deze twee afbeeldingen voor dezelfde sectie zijn, is de matching bijna perfect en kan men de myeline- en Nissl-patronen direct vergelijken voor de identificatie van corticale lagen. Schaalbalken: 5 mm (panelen A-E). Klik hier om een grotere versie van deze figuur te bekijken.
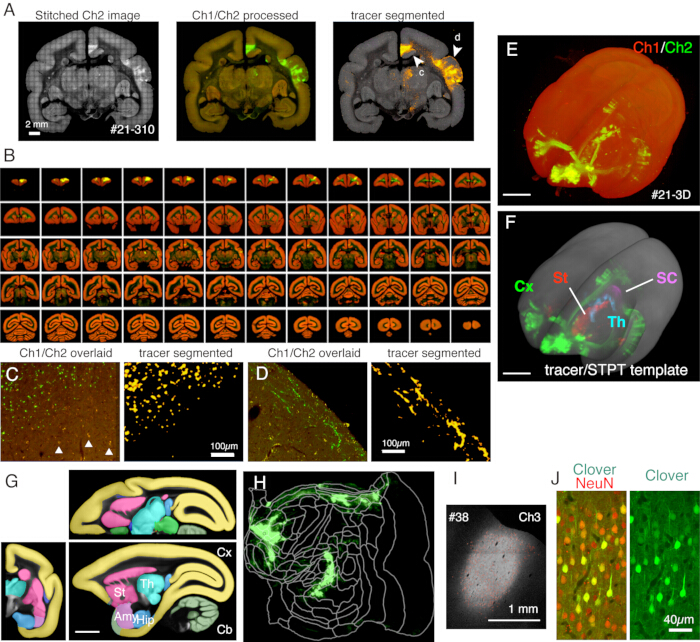
Figuur 5: Typisch resultaat van STPT-beeldvorming. (A) Een eenvoudige betegeling van Ch2 (groene) afbeeldingen van een voorbeeldsectie (sectie 310 van voorbeeld #21). Zonder achtergrondcorrectie zijn de randen voor elke tegel zichtbaar. In de middelste kolom werden de tegels gestikt met achtergrondcorrectie voor respectievelijk 1l (rood) en 2l (groen). Om de signalen van lipofuscine te verminderen (zie paneel C), werden de signalen van Ch1 van Ch2 afgetrokken en groen weergegeven. Om de lipofuscine-signalen van Ch1 te verminderen, werd het commando "Remove Outilers.." gebruikt voor het naaien door ImageJ. In de rechterkolom werden de tracersignalen gesegmenteerd door beeldverwerkingspijplijn11. De pijlpunten (c, d) geven de locaties aan waar de vergrote weergaven worden weergegeven in panelen C en D. Schaalbalk: 2 mm. (B) Overzicht van seriële secties voor monster #21. STPT genereerde 635 coronale beelden met hoge resolutie voor dit monster. (C) Een sterk vergrotende weergave weergegeven door pijlpunt c in paneel A. Dit is een eenvoudige overlay van 1e kanaal (rood) en 2e kanaal (groen) zonder verdere verwerking. De driehoeken vertonen lipofuscine-fluorescentiesignalen, die een wijdverbreid spectrum laten zien. Het tracersegmentatie-algoritme onderscheidt nauwkeurig de tracersignalen van de lipofuscine-achtergrond, ondanks een zeer vergelijkbare vorm (rechterpaneel). Schaal balk: 100 μm. (D) Nog een voorbeeld van een sterk vergrotend beeld. Merk op dat fijne axonvezels in laag 1 goed zichtbaar kunnen zijn. Schaal balk: 100 μm. (E) De 3D reconstructie van originele STPT beelden. De 635 coronale beelden met een lage resolutie, zoals weergegeven in paneel B, werden gebruikt als de tiff-stack voor 3D-visualisatie met behulp van fluorender22. Schaalbalk: 5 mm. (F) De 3D-reconstructie van de gesegmenteerde tracersignalen die zijn geregistreerd op de STPT-sjabloon (grijs). De tracersignalen in verschillende hersengebieden werden weergegeven door verschillende kleuren. Deze regio's zijn uitgesneden met behulp van de annotatie die wordt weergegeven in paneel G. Schaalbalk: 5 mm. (G) STPT-sjabloon bedekt met annotatie van verschillende hersengebieden. Schaalbalk: 5 mm. (H) Het corticale tracersignaal dat in paneel F wordt getoond, wordt weergegeven in de vorm van een flatmap. (I) Identificatie van de injectieplaats door de Ch3-fluorescentie, die minder gevoelig is voor de tracerfluorescentie en onverzadigd blijft. Schaalbalk: 1 mm. (J) Het kleuren van het gedeelte rond het injectiecentrum met NeuN-antilichaam toonde aan dat ongeveer 30% van de neuronen een sterke expressie van groene fluorescentie van klaver vertoont. Schaal balk: 40 μm. Afkortingen: Cx; schors, St; striatum, Th; thalamus, SC; superieure colliculus. Amy; amygdala, heup; hippocampus, Cb; kleine hersenen. Klik hier om een grotere versie van deze figuur te bekijken.
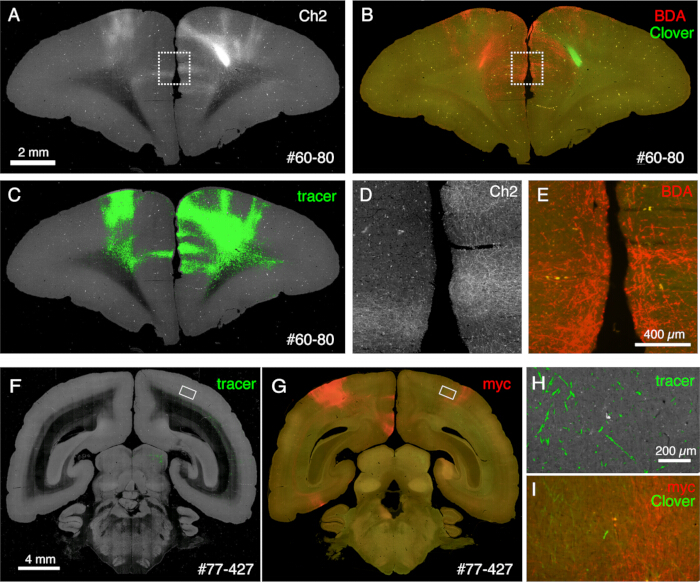
Figuur 6: Post-STPT histologie met meerdere niet-fluorescerende tracers. (A-C) Vergelijking van STPT-beeld met BDA-gekleurd beeld. In dit monster wordt BDA geïnjecteerd in de contralaterale zijde van de Clover-injectie. Panelen A en C tonen het Ch2-beeld en de tracersegmentatie van de STPT-gegevens. Paneel B toont de post-STPT-kleuring voor BDA. De fluorescentie van klaver wordt verminderd door de methanolbehandeling van de sectie. Schaalbalk: 2 mm. (D,E) De gestippelde vakjes in panelen A en B zijn vergroot. Schaalbalk: 100 μm. (F,G) Vergelijking van STPT-beeld met anti-myc-tag-antilichaamkleuring. In dit monster wordt klaver geïnjecteerd in de PFC, terwijl de AAV-smFP-myc in de contralaterale pariëtale cortex wordt geïnjecteerd. De witte rechthoeken zijn vergroot in de panelen H en I. Schaalbalk: 4 mm. (H) De segmentatie van de tracer wordt in het groen weergegeven. Schaalbalk: 200 μm. (I) De myc-kleuring wordt in rood weergegeven. De Clover-fluorescentie wordt in het groen weergegeven. Schaal balk: 200 μm. De groene seinen in panelen H en I zijn aanwezig in een vergelijkbare positie, maar niet identiek omdat STPT slechts ~10 μm optische doorsnede ophaalt. Klik hier om een grotere versie van deze figuur te bekijken.
| BDA fluorescerend kleuringsprotocol | |
| Agarose verwijderen | |
| TBS wassen | 10 minuten (2x) |
| 1% H2O2 in de oplossing van Dent | 10 minuten |
| TBS wassen | Kort |
| 0,5% TNB-blokkering | 1 uur |
| StAvHRP (1:4000) in TNB | 2 overnachtingen |
| TNT wassen | 10 minuten (3x) |
| TSA Biotine (1:4000) in 0,1 M boraat (pH8,5) + 0,003% H2O2 | 2 uur |
| TNT wassen | 10 minuten (3x) |
| Cy3-streptavidine (1:1000) in TNT | 3 uur |
| TNT wassen | 10 minuten (2x) |
| TBS wassen | Bewaar de sectie tot montage |
| Monteer het gedeelte op diaglas met behulp van een antifade montagemedium | |
| Anti-MYC fluorescerende kleuring protocol | |
| Agarose verwijderen | |
| TBS wassen | 10 minuten (2x) |
| blokkeren in IB | 1 uur |
| Anti-Myc (1:4000) in IB | 2 's nachts |
| TNT wassen | 10 minuten (3x) |
| Anti-muis Cy3 (1:1000) in TNT | 3 uur |
| TNT wassen | 10 minuten (2x) |
| TBS wassen | Bewaar de sectie tot montage |
| Monteer het gedeelte op diaglas met behulp van een antifade montagemedium | |
| Buffers/oplossingen | Compositie |
| 0,5% TNB | 0,5% TSA-blokkerend reagens in TS7.5 |
| De oplossing van Dent | 20% DMSO, 80% Methanol |
| Onderdompeling buffer (IB) | 10% FBS, 2% BSA 0,5% TritonX100 in TBS |
| TBS (Tris-gebufferde zoutoplossing) | 25 mM Tris, 137 mM NaCl, 2,7 mM KCl (pH 7,4) |
| TNT | 0.05 % Tween20 in TS7.5 |
| TS7.5 | 0,1 m TRIS-HCl, pH 7,5, 0,15 m NaCl |
Tabel 1: BDA fluorescerende kleuring en anti-myc fluorescerende kleuring protocol
| Plasmide voor AAV-tracer | Addgene nr. | Aanbevolen antilichaam | Voorgestelde verdunning | Verwacht resultaat |
| pAAV-EF1_Cre | 201198 | Millipore kloon 2D8 | 1:1000 | Goed voor cellen |
| pAAVCam1.3_smFP_Myc | 201205 | MBL M192 My3 (muis) | 1:4000 | Uitstekend |
| pAAVCam1.3_smFP_HA | 201206 | CST C29F4 (konijn) | 1:1000 | Goed voor cellen |
| pAAVCam1.3_smFP_FLAG | 201207 | MBL PM020B (konijn) | 1:1000 | OK |
| AAVTRE3_smFP_Myc | 201208 | |||
| AAVTRE3_smFP_HA | 201209 | |||
| AAVTRE3_smFP_FLAG | 201210 |
Tabel 2: Lijst van Addgene-plasmiden die beschikbaar zijn voor de productie van niet-fluorescerende tracers. Het cre-construct richt zich op de kern en is geschikt voor retrograde tracering omhuld door AAV2 retro. smFP_HA constructie is goed voor de detectie van cellichamen (en retrograde).
Aanvullende video: Microscoopweergave van het verwijderen van hersenvliezen. Klik hier om deze video te downloaden.
Discussie
In dit artikel werden de praktische oplossingen uitgelegd om marmoset-hersenen te hanteren voor verwerking van de hele hersenen, evenals aanvullende histologische technieken die het nut van de STPT-techniek vergroten. De kracht van "neuroanatomie van het hele brein" met behulp van STPT is dat je de 3D-coördinaten van elk interessegebied kunt verkrijgen, of het nu anatomisch geannoteerd is of niet. Door zeer nauwkeurige 3D-naar-3D-registratie is het mogelijk om deze coördinaten om te zetten in een standaardsjabloon voor de overlay van meerdere datasets. Op deze manier dient het standaardsjabloon als medium voor data-integratie. Dit was een essentieel aspect van ons prefrontale cortex (PFC) mapping-project10, waarbij gegevens van veel individuen werden geanalyseerd. Bovendien kan de informatie die aan het standaardsjabloon is toegewezen, worden vergeleken met verschillende gegevens die al in kaart zijn gebracht, of het nu gaat om Nissl, myelinepatronen, tracergegevens, MRI-gegevens (inclusief diffusie-MRI) of anatomische annotaties11. Belangrijk is dat het ook kan worden vergeleken met toekomstige gegevens die zullen worden verkregen door nog te verschijnen technologie. Er bestaan momenteel meerdere sjablonen voor de hersenen van zijdeaapjes, die zijn gebaseerd op Nissl-kleuring23, MRI 23,24,25,26,27,28 en STPT11. Maar ze kunnen worden getransformeerd naar elkaars coördinaten op basis van beeldcontrasten en vooraf berekende parameters11. Gegevensintegratie op de hele hersenschaal in verschillende onderzoeken draagt bij aan een beter begrip van het brein als systeem. De voorwaarde om deze strategie te laten werken, is betrouwbare gegevensverzameling in de hersenen. Hieronder worden kritieke stappen en mogelijke problemen in verband met het huidige protocol besproken.
Een van de meest kwetsbare processen van STPT-beeldvorming is het snijden van weefsel. Zoals hierboven vermeld, blijven de hersenvliezen vaak ongesneden en kunnen ze het snijden verstoren. Met name de pulvinarkern en de superieure colliculus zijn de twee meest aangetaste hersengebieden: afhankelijk van de grondigheid van het verwijderen van hersenvliezen en inbedding in agarose, kunnen ze tijdens het snijden van het weefselblok worden verwijderd. Deze diepe gebieden zijn van buitenaf moeilijk te benaderen en kunnen gemakkelijk breken tijdens het verwijderen van hersenvliezen. Een zorgvuldige maar grondige verwijdering van hersenvliezen is van cruciaal belang voor een succesvolle beeldvorming. Een ander punt van zorg is het terugdraaien van gesneden secties op het weefselblok, wat soms gebeurt wanneer de secties zelfs na het snijden vast blijven zitten. Het kan worden geminimaliseerd door het blok zo te vormen dat het mes helemaal aan het einde schuin snijdt.
Door diep in het weefselblok te beeldvorming, vermijdt STPT de hobbeligheid van het oppervlak. Terwijl de fluorescerende signalen vrij gemakkelijk door het corticale gebied kunnen gaan, zijn ze in de gemyeliniseerde gebieden sterk verminderd. Daarom moet de beelddiepte zorgvuldig worden bepaald om een evenwicht te vinden tussen de consistente beeldvorming over het gehele blokoppervlak en de helderheid van de signalen in het myelinerijke gebied, zoals de witte stof. In de opstelling die hier wordt gebruikt, streven we meestal naar 25-35 μm vanaf het oppervlak. Er moet ook rekening mee worden gehouden dat het snijvlak na lange uren opslag ongelijkmatig kan krimpen. Om het beeldvormingsgebied te minimaliseren, splitsen we de beeldvormingssessie op in 20-30 runs met verschillende fase-instellingen gedurende 5-6 dagen. We maken het interval tussen de runs minder dan 2 uur of bevestigen de diepte van het oppervlak en passen de hoogte van de etappe aan voor elke run.
In dit protocol werd het BDA-signaal versterkt door de TSA-methode. Deze methode is zeer effectief en kan anterograde getransporteerde BDA-signalen detecteren, zelfs bij een relatief lage resolutie (bijv. Figuur 6B). TSA-biotine is in de handel verkrijgbaar bij Akoya Biosciences, maar de zelfgemaakte oplossing vertoont een veel betere verbetering. Aan de andere kant vereist de verdunning van het antilichaam en de oplossing een zorgvuldige aanpassing om het optimale resultaat te verkrijgen. Voorbehandeling van de sectie met een methanoloplossing is van cruciaal belang. Zonder voorbehandeling worden de BDA-signalen nauwelijks gedetecteerd in de gemyeliniseerde axonen.
Wanneer een anterograde tracer wordt gebruikt, is het vaak moeilijk om de exacte injectieplaats te identificeren vanwege de verzadiging van de fluorescentiesignalen. In de opstelling van het hele weefselbeeldvormingssysteem dat in deze studie wordt gebruikt, gebruiken we het blauwe kanaal om de geïnfecteerde cellen te identificeren (Figuur 5I). Zelfs wanneer de rode en groene kanalen verzadigd zijn, is elk individueel geïnfecteerd neuron meestal detecteerbaar in het blauwe kanaal. Dit geldt ook voor de Allen Mouse Brain Connectivity Atlas1. Onderzoek van de cellen van oorsprong is belangrijk omdat de infectie soms alleen bepaalde lagen betreft. We kwamen dergelijke gedeeltelijke infecties vrij vaak tegen voor de Mouse Brain Connectivity Atlas, misschien vanwege het gebruik van de iontoforese-methode29. De laterale verspreiding van de virale tracers kan meer of minder variabel zijn, afhankelijk van de injecties. Deze variabiliteit kan mogelijk van invloed zijn op het resultaat van tracering en moet zorgvuldig worden genormaliseerd.
De succesvolle registratie van het verkregen 3D-beeld op het standaardsjabloon is een sleutelproces van de neuroanatomie van het hele brein. Registratie van de STPT-afbeelding in de STPT-sjabloon kan behoorlijk nauwkeurig zijn, en we hebben alleen afwijkingen van een paar voxels (50 μm isokubisch) waargenomen voor de randen met een hoog beeldcontrast10. Toch is er een limiet aan wat registratie kan doen. Vanwege het verwijderingsproces van de hersenvliezen hebben de STPT-monsters over het algemeen openingen tussen de hemisferen en tussen de cortex en de middenhersenen/achterhersenen, terwijl hersenweefsel dicht opeengepakt zit in de in vivo MRI-beelden. Dergelijke verschillen zijn moeilijk bij te zetten door registratie. De marmoset-cortex is meestal verstoken van sulci, maar de intrapariëtale sulcus is bij sommige individuen erg diep. Zo'n sulci gaat verloren (er vindt top-to-top fusie plaats) bij registratie. Hoewel registratie een krachtige techniek is, is het noodzakelijk om terug te gaan naar de onbewerkte gegevens voor bevestiging van het verkregen resultaat.
Het genereren van enorme beeldgegevens is zowel een kracht als een beperking van deze techniek. Hoewel het de volledigheid van de dataset verbetert, vereist het een zorgvuldig beheer van de verkregen gegevens en de ontwikkeling van een geautomatiseerde beeldverwerkingspijplijn voor efficiënte gegevensinterpretatie. In de toekomst kan de toepassing van generatieve kunstmatige intelligentie (AI) bij het bouwen van beeldverwerkingspijplijnen dit proces aanzienlijk vereenvoudigen. Systematische beeldvorming van de hele hersenen is ook uitgevoerd met behulp van op diascanners gebaseerde methoden21,30. In vergelijking met dergelijke methoden vereist STPT geen extra berekening voor 3D-reconstructie. In combinatie met optische doorsnede hebben we aangetoond dat STPT het potentieel heeft om zelfs axonsegmenten in secties31 te reconstrueren. Met de verdere combinatie van weefselopruimingstechnieken ontwikkelden Economo et al. een methode om het geheel van schaars gelabelde neuronen in beeld te brengen32,33. De nieuwste versies van TissueCyte bieden nu opties voor een extra laser om de excitatie van rode fluorescerende eiwitten te verbeteren of een sectie-opname-eenheid voor het automatische herstel van secties. Met deze vooruitgang zal de benadering van het hele brein efficiënter worden en een basis leggen voor een uitgebreid begrip van het brein van primaten, inclusief dat van mensen.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
We danken de technische staf in het Yamamori lab en de dierenfaciliteiten (RRD) hartelijk voor hun hulp. We danken het RIKEN CBS-Olympus Collaboration Center voor de technische assistentie bij het verkrijgen van confocale beelden. Dit werk werd ondersteund door het programma voor wetenschappelijk onderzoek naar innovatieve gebieden (subsidienummer 22123009) van MEXT, Japan, door Brain/MINDS en Brain/MINDS2.0 van AMED, Japan (JP15dm0207001, JP23wm0625001 en JP24wm0625218), en door JSPS KAKENHI-subsidienummer 24K09678 aan A.W.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Agarose type I | Sigma | A6013 | |
| All-in-one fluorescence microscope | Keyence | BZ-X series | Deze studie gebruikte BZ-X710 |
| anti-mouse Cy3 | Jackson Immuno Research Laboratories, Inc. | 115-165-003 | |
| anti-myc antibody | MBL | M192 | muis monoklonaal |
| Butorphanol | Meiji Animal Health | Vetorphale | |
| Ceramic blade | TissueVision | N/A | |
| Collagenase type I | Wako Chemical | #031-17601 | Gedeeld in 100 µL x 10 van 100 mg/mL in PBS |
| Cotton swab (HUBY-340) | HUBY | BB-013SP | micro katoenen watten |
| Custom-made chamber | N/A | N/A | De kamer bestaat uit vier zijplaten en één bodemplaat, allemaal gemaakt van 1 cm dikke acrylplaten, die veilig aan elkaar kunnen worden bevestigd met schroefveren. Een extra acrylplaat wordt in de kamer geplaatst, met daarin drie metalen palen om de marmosets in een omgekeerde positie te houden. |
| Cy3-Streptavidin | Jackson Immuno Research Laboratories, Inc. | 016-160-084 | |
| Dumont #5 forceps, Inox | N/A | N/A | |
| Epoxy instant mix | Locktite | N/A | |
| FIJI | NIH | https://imagej.net/software/fiji/downloads | |
| kn_pipeline_check_mosaic.py | N/A | N/A | github.com/watkarbey/STPT_depo; Dit is een controlescript voor TissueCyte-gegevens. |
| Medetomidine | Zenoaq | Domitor | |
| Midazolam | Sandoz | N/A | |
| NaBH4 | Sigma | #452882 | |
| NaIO4 | Sigma | S1878 | |
| Perfusion needle | Natsume Seisakusho Co., Ltd | KN-348, 20G-50 | |
| Slideglass (76 mm x 52 mm) | Matsunami | S9111 | |
| StAvHRP | Jackson Immuno Research Laboratories, Inc. | 016-030-084 | HRP-streptavidine (titratie moet zorgvuldig worden bepaald) |
| TissueCyte1000 | TissueVision | https://www.tissuevision.com/tissuecyte | |
| TSA blocking reagent | Kiko Tech | FP1012 | Zie TSA-biotine kit (Akoya Biosciences) |
| TSA-biotine | Huisgemaakt | N/A | Zie Okamoto et al (ref. 16) |
| VECTASHIELD HardSet Mounting Medium | Vector laboratories Inc | N/A | Antifade montagemedium |
Referenties
- Oh, S. W., Harris, J. A., Ng, L., Winslow, B., Cain, N., et al. A mesoscale connectome of the mouse brain. Nature. 508 (7495), 207-214 (2014).
- Ragan, T., et al. Serial two-photon tomography for automated ex vivo mouse brain imaging. Nat Methods. 9 (3), 255-258 (2012).
- Liang, Z., Arefin, T. M., Lee, C. H., Zhang, J. Using mesoscopic tract-tracing data to guide the estimation of fiber orientation distributions in the mouse brain from diffusion MRI. Neuroimage. 270, 119999(2023).
- Watakabe, A., Hirokawa, J. Cortical networks of the mouse brain elaborate within the gray matter. Brain Struct Funct. 223 (8), 3633-3652 (2018).
- Ypma, R. J. F., Bullmore, E. T. Statistical analysis of tract-tracing experiments demonstrates a dense, complex cortical network in the mouse. PLoS Comput Biol. 12 (9), e1005104(2016).
- Wang, Q., et al. The Allen mouse brain common coordinate framework: A 3D reference atlas. Cell. 181 (4), 936-953.e20 (2020).
- Köbbert, C., Apps, R., Bechmann, I., Lanciego, J. L., Mey, J., Thanos, S. Current concepts in neuroanatomical tracing. Prog Neurobiol. 62 (4), 327-351 (2000).
- Lanciego, J. L., Wouterlood, F. G. Neuroanatomical tract-tracing techniques that did go viral. Brain Struct Funct. 225 (4), 1193-1224 (2020).
- Bakker, R., Wachtler, T., Diesmann, M. CoCoMac 2.0 and the future of tract-tracing databases. Front Neuroinform. 6, (2012).
- Watakabe, A., et al. Local and long-distance organization of prefrontal cortex circuits in the marmoset brain. Neuron. 111 (14), 2258-2273.e10 (2023).
- Skibbe, H., et al. The Brain/MINDS marmoset connectivity resource: An open-access platform for cellular-level tracing and tractography in the primate brain. PLoS Biol. 21 (6), e3002158(2023).
- Mitchell, J. F., Leopold, D. A. The marmoset monkey as a model for visual neuroscience. Neurosci Res. 93, 20-46 (2015).
- Okano, H. Current status of and perspectives on the application of marmosets in neurobiology. Annu Rev Neurosci. 44, 27-48 (2021).
- Watakabe, A., et al. Comparative analyses of adeno-associated viral vector serotypes 1, 2, 5, 8 and 9 in marmoset, mouse and macaque cerebral cortex. Neurosci Res. 93, 144-157 (2015).
- Hata, J., et al. Multi-modal brain magnetic resonance imaging database covering marmosets with a wide age range. Sci Data. 10, 221(2023).
- Liwang, J. K., Bennett, H. C., Pi, H. -J., Kim, Y. Protocol for using serial two-photon tomography to map cell types and cerebrovasculature at single-cell resolution in the whole adult mouse brain. STAR Protoc. 4 (1), 102048(2023).
- Okamoto, S., et al. Exclusive labeling of direct and indirect pathway neurons in the mouse neostriatum by an adeno-associated virus vector with Cre/lox system. STAR Protoc. 2 (1), 100230(2021).
- Viswanathan, S., et al. High-performance probes for light and electron microscopy. Nat Methods. 12 (6), 568-576 (2015).
- Kuan, L., et al. Neuroinformatics of the Allen mouse brain connectivity atlas. Methods. 73, 4-17 (2015).
- Paxinos, G., Watson, C., Petrides, M., Rosa, M., Tokuno, H. The Marmoset Brain in Stereotaxic Coordinates. , Academic Press. London, Waltham, MA. (2012).
- Abe, H., et al. 3D reconstruction of brain section images for creating axonal projection maps in marmosets. J Neurosci Methods. 286, 102-113 (2017).
- Wan, Y., et al. FluoRender: Joint freehand segmentation and visualization for many-channel fluorescence data analysis. BMC Bioinformatics. 18 (1), 280(2017).
- Majka, P., et al. Towards a comprehensive atlas of cortical connections in a primate brain: Mapping tracer injection studies of the common marmoset into a reference digital template. J Comp Neurol. 524 (11), 2161-2181 (2016).
- Liu, C., Yen, C. C. -C., Szczupak, D., Tian, X., Glen, D., Silva, A. C. Marmoset brain mapping V3: Population multi-modal standard volumetric and surface-based templates. Neuroimage. 226, 117620(2021).
- Liu, C., et al. A digital 3D atlas of the marmoset brain based on multi-modal MRI. Neuroimage. 169, 106-116 (2018).
- Liu, C., et al. A resource for the detailed 3D mapping of white matter pathways in the marmoset brain. Nat Neurosci. 23 (2), 271-280 (2020).
- Woodward, A., et al. The Brain/MINDS 3D digital marmoset brain atlas. Sci Data. 5, 180009(2018).
- Saleem, K. S., Avram, A. V., Glen, D., Schram, V., Basser, P. J. The subcortical atlas of the marmoset ("SAM") monkey based on high-resolution MRI and histology. Cereb Cortex. 34 (4), bhae120(2024).
- Watakabe, A., Hirokawa, J. Cortical networks of the mouse brain elaborate within the gray matter. Brain Struct Funct. 223 (8), 3633-3652 (2018).
- Lin, M. K., et al. A high-throughput neurohistological pipeline for brain-wide mesoscale connectivity mapping of the common marmoset. eLife. 8, e40042(2019).
- Skibbe, H., et al. PAT-probabilistic axon tracking for densely labeled neurons in large 3-D micrographs. IEEE Trans Med Imaging. 38 (1), 69-78 (2019).
- Economo, M. N., et al. A platform for brain-wide imaging and reconstruction of individual neurons. eLife. 5, e10566(2016).
- Winnubst, J., et al. Reconstruction of 1,000 projection neurons reveals new cell types and organization of long-range connectivity in the mouse brain. Cell. 179 (1), 268-281.e13 (2019).
Herprints en machtigingen
