Driedimensionale neurale buisorganoïden (NTO's) afkomstig van embryonale stamcellen van muizen zijn waardevolle hulpmiddelen om het centrale zenuwstelsel tijdens de vroege ontwikkeling te bestuderen. Hier wordt een stapsgewijze demonstratie gepresenteerd van een geoptimaliseerd protocol voor het kweken van NTO's in vitro, met stabiele kweekcondities en probleemoplossingsstrategieën voor betrouwbare, reproduceerbare NTO-generatie.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Een robuust en reproduceerbaar protocol voor de generatie van neurale buisorganoïden uit enkele embryonale stamcellen van de muis
In dit artikel
Samenvatting
Samenvatting
De ontwikkeling van zoogdieren is een zeer complex proces, gekenmerkt door de noodzaak van precieze, concentratie- en tijdsafhankelijke signalering voor correcte patroonvorming en morfogenese. Ondanks aanzienlijke technologische vooruitgang en verzamelde kennis blijven tal van aspecten van de zoogdierontwikkeling ongrijpbaar. Bij het onderzoeken van het hele organisme wordt het lastig om de effecten van individuele paden of het mechanisme waarmee externe prikkels de interferentie van omliggende weefsels en factoren sturen, te ontwarren. Om deze complexiteit aan te pakken, zijn driedimensionale (3D) in vitro-modellen zoals organoïden naar voren gekomen als waardevolle hulpmiddelen. Organoïden, afgeleid van embryonale stamcellen (ESC's) of geïnduceerde pluripotente stamcellen (iPSC's), vertonen weefselachtige kenmerken die qua expressiepatronen en functionaliteit sterk lijken op hun in vivo tegenhangers. Belangrijk is dat ze toegankelijkheid bieden voor manipulatie en uitgebreide biologische studies binnen een gecontroleerde experimentele omgeving. Ondanks hun oorsprong in pluripotente culturen, vertonen organoïde systemen vaak heterogeniteit en aanzienlijke variabiliteit, waardoor hun nut beperkt wordt bij het bestuderen van complexe en ingewikkelde biologische vragen. Daarom is er een dringende behoefte aan gedetailleerde protocollen gericht op het harmoniseren van procedures die resulteren in hoogwaardige reproduceerbare gegevens, vermindering van het gebruikte materiaal, en die belangrijk zijn om ingewikkelde fenomenen te onderzoeken. In deze context wordt hier een geoptimaliseerd protocol gepresenteerd voor de kweek van neurale buisorganoïden (NTO's) in vitro . Door stabiele kweekcondities te creëren en uitgebreide probleemoplossingsstrategieën aan te bieden, maakt dit protocol de betrouwbare en reproduceerbare generatie van NTO's mogelijk, die dienen als een adequaat model om relevante wetenschappelijke vragen te bestuderen, waaronder de mechanismen van neurale inductie, patroonvorming en vroege ontwikkeling van het centrale zenuwstelsel.
Inleiding
De ontwikkeling van zoogdieren, beginnend bij een enkele totipotente stamcel, is een complex proces waarbij patroonvorming en morfogenese worden geïnduceerd 1,2. Deze ontwikkeling vereist streng gereguleerde cellulaire programma's om dynamische interacties tussen cellen en hun omgeving te beheren. Stamcellen hebben het intrinsieke vermogen om systemische en lokale signalen waar te nemen, te integreren en erop te reageren, waaronder morfogengradiënten3, mechanische grenzen4, cellulaire proliferatie en omgevingshervorming5. Externe ruimtelijk-temporele signalen sturen ook meercellige reacties aan, aanvankelijk in homogene weefsels, om de precieze vorming van complexe structuren te waarborgen. Stamcellen, gekenmerkt door hun zelfvernieuwing 6,7 en differentiatiemogelijkheden, spelen een cruciale rol in de embryonale ontwikkeling en het herstel van volwassen weefsels, met hoofdtypen zoals embryonale stamcellen (ESC's), volwassen stamcellen (ASC's) en geïnduceerde pluripotente stamcellen (iPSC's).
ESC's worden geëxtraheerd uit de binnenste celmassa (ICM) van een blastocyst en worden doorgaans gekweekt in een tweedimensionale (2D) omgeving op feedercellen of extracellulaire matrix, waarbij gebruik wordt gemaakt van specifieke kweekmedia om hun pluripotentiete behouden. In de afgelopen jaren is de behoefte aan realistischere celkweekcondities en technologieën drastisch toegenomen, waardoor driedimensionale (3D) cel- en weefselmodellen zijn ontwikkeld om fundamentele biomedische processen te bestuderen9. Vooral in de ontwikkelingsbiologie bieden deze 3D-modellen zoals organoïden een robuuste methode om weefselmorfogenese en organogenese ex vivo9 te modelleren. Organoïden ontstaan door zelforganisatie van prolifererende stamcellen die spontaan uitgroeien tot complexe 3D-structuren door symmetriebreking en patroonvorming. Dit proces is vergelijkbaar, hoewel niet identiek aan wat in vivo wordt waargenomen, en vindt meestal plaats zonder externe begeleiding maar wordt gedreven door interne dynamiek en interacties10. Omdat organoïden de structuur en functie van echte organen nauwkeurig nabootsen, kunnen ze een nauwkeurigere weergave van de zoogdierbiologie geven vergeleken met traditionele 2D-celculturen11. Daarnaast is een van de belangrijkste voordelen het ethische voordeel, aangezien organoïden de behoefte aan diermodellen verminderen, wat zorgen rondom dierproevenaanpakt 12,13. Bovendien bieden organoïden een platform voor high-throughput geneesmiddelscreening, waardoor de voorspelling van de effectiviteit en toxiciteit van geneesmiddelen verbetert. Er zijn echter ook verschillende uitdagingen verbonden aan het gebruik van organoïden. Hoewel ze realistischer zijn dan 2D-culturen, repliceren ze niet volledig de complexiteit en interacties van hele organen binnen een levend organisme14. Daarnaast kan er aanzienlijke variabiliteit zijn tussen organoïden, zelfs wanneer ze van hetzelfde type cellen afkomstig zijn, wat leidt tot inconsistenties in experimentele resultaten15. Daarom is het kweken van organoïden op een robuuste en reproduceerbare manier essentieel en vereist het geavanceerde technische vaardigheden, gespecialiseerde apparatuur en gedetailleerde protocollen.
Het zenuwstelsel is een complex netwerk dat verantwoordelijk is voor het coördineren van handelingen en het verwerken van zintuiglijke informatie door het verzenden en ontvangen van signalen door het hele lichaam, waardoor alle benodigde functies worden gecontroleerd en gecoördineerd, waaronder beweging, sensatie, denken en autonome functies zoals hartslag en spijsvertering. De voorloper van het centrale zenuwstelsel, bestaande uit de hersenen en het ruggenmerg, is de neurale buis. Het is cruciaal om te begrijpen hoe neurale structuren zich vormen en functioneren tijdens de vroege ontwikkeling van de neurale buis om inzicht te krijgen in diverse neurologische aandoeningen en ontwikkelingsafwijkingen. Neuro-ontwikkelingsstoornissen zijn moeilijk in vivo te bestuderen, vooral wanneer ze afkomstig zijn van menselijke proefpersonen vanwege ethische overwegingen. Neurale organoïden, zoals hersenorganoïden 16,17, hebben het begrip van de ontwikkeling van het zenuwstelsel en ziekten aanzienlijk vergroot door veelzijdige, toegankelijke modellen te bieden die menselijk hersenweefsel nauw nabootsen. Deze driedimensionale structuren, afgeleid van pluripotente stamcellen (PSC's), repliceren verschillende aspecten van hersenontwikkeling, waaronder de vorming van verschillende hersengebieden, cellulaire diversiteit en complexe neurale netwerken 16,18,19. Door onderzoekers in staat te stellen ontwikkelingsstadia in realtime te observeren en belangrijke regulerende mechanismen te bestuderen, bieden deze organoïden diepgaande inzichten in normale hersenontwikkeling. Hersenorganoïden maken ook het modelleren mogelijk van neurodevelopmentele19- en neurodegeneratieve ziekten20, zoals microcefalie16,21, Zikavirusinfectie22, autismespectrumstoornissen23 en andere, waarbij ziektemechanismen worden verduidelijkt en potentiële therapeutische doelwitten worden geïdentificeerd. Daarnaast dienen hersenorganoïden als waardevolle platforms voor drugstesten en -ontwikkeling, die de beoordeling van geneesmiddeleffectiviteit en toxiciteit in een menselijk hersen-achtige omgeving vergemakkelijken en personaliseerde geneeskundebenaderingen versnellen. Bovendien bieden ze een gecontroleerde omgeving om gen-omgeving interacties te bestuderen, wat het begrip van complexe ziekten die voortkomen uit de wisselwerking van genetische en omgevingsfactoren vergroot. Omdat neurale organoïden, net als hersenorganoïden, meestal worden gevormd uit aggregaten van cellen, vertonen ze vaak aanzienlijke cellulaire heterogeniteit en variabiliteit in experimentele uitkomsten, wat op zijn beurt de interpreteerbaarheid van de gegenereerde data beïnvloedt en een aanzienlijke uitdaging vormt voor onderzoekers17. Om deze reden zijn protocoloptimalisatie en nauwkeurige kwaliteitscontrolecriteria cruciaal voor het dempen van waardevolle gegevens die de in vivo toestand adequaat weergeven.
Meinhardt en collega's24 maakten een cruciale impact door eerst een clonaal neuraal organoïde protocol te rapporteren dat vroege neurale buisontwikkeling nabootst, gevormd uit enkele embryonale stamcellen (ESC's) en die de heterogeniteit tussen organoïden drastisch minimaliseert. Deze innovatie stelt onderzoekers in staat ontwikkelingsprocessen en -mechanismen, evenals neurale patronen, te bestuderen in een precieze en gedefinieerde omgeving met uitzonderlijke resolutie. Tot nu toe hebben veel laboratoria neurale organoïden ontwikkeld, meestal van muis- of menselijke oorsprong, die verschillende delen van de neurale buis en de ontwikkeling ervan nabootsen, zoals samengevat in25. Echter, op basis van beschikbare informatie is het protocol dat door Meinhardt et al.24 is vastgesteld de enige methode waarbij NTO's betrouwbaar uit één cel worden gevormd, zichzelf organiseren en efficiënt in dorsoventrale lotgevallen overgaan na een enkele, globale puls van retinoïnezuur (RA) zonder toevoeging van andere ventraliserende factoren zoals Sonic Hedgehog Agonist (SAG)26, of het gebruik van microfludiïdische kamers die ruimtelijke informatie leveren door gradiëntvorming. Het hier verstrekte protocol is aangepast van Meinhardt et al.24 zoals gegeven in Krammer et al.26. In dit protocol worden enkele muis ESC's in een celkweekmatrix geplaatst en blootgesteld aan gedefinieerde neurodifferentiatiecondities. Binnen twee dagen zetten deze cellen klonaal uit en epithelialiseren, waardoor een 3D-ronde tot ellipsoïde structuur ontstaat, met één lumen en apicaal-basaal gelaagde cellen eromheen. Op dag 2 versterkt een wereldwijd toegepaste 18-uurs puls van het signaalmolecuul RA de neurale differentiatie, posterioriseert de NTO's van het middenhersen- naar het achterhersenen/cervicale ruggenmergniveau, en induceert de vorming van één functionele vloerplaat op dag 6, die het NTO van ventral naar dorsaal patroon.
Het geoptimaliseerde protocol biedt verschillende belangrijke voordelen. Het maakt robuuste epithelialisatie mogelijk binnen de eerste drie dagen en genereert relatief kleine, bolvormige weefsels van ongeveer 200 μm in diameter, elk met één lumen. De organoïden ontstaan klonaal uit enkele cellen en worden in een serumvrij, chemisch gedefinieerd kweekmedium gehouden. Binnen zes dagen wordt geleidelijke neurale differentiatie bereikt met pluripotente culturen, wat resulteert in organoïden die op dag 6 een anterieure middenhersenidentiteit vertonen en dorsoventraal gepatroneerde achterhersen- of cervicale ruggenmergachtige structuren na een globale RA-puls26.
Verschillende aspecten zijn aangepast en verschillen van het oorspronkelijke protocol22,25 om reproduceerbaarheid en doorvoer te verbeteren. Deze omvatten aangepaste ESC-kweekcondities, een verminderd aantal inputcellen, een verbeterd differentiatiemedium en een aangepast differentiatieprotocol waarbij Noggan-suppletie tijdens dag 0-2 (al gebruikt in26) wordt weggelaten. Bovendien is de zaaidichtheid geoptimaliseerd voor gebruik in platen met 96 putten, waardoor een analyse met hoge doorvoer mogelijk is. Samen hebben deze verfijningen geleid tot een toename van 40% in de efficiëntie van NTO-vorming en -patroonvorming, van aanvankelijk ~40%24 tot nu ~80%26 in de bijgewerkte versie.
Hier (Figuur 1) wordt een gedetailleerde beschrijving gegeven van een geoptimaliseerd protocol dat een robuuste en reproduceerbare generatie van NTO's in celkweekmatrix mogelijk maakt. Het protocol omvat alle fasen van NTO-afhandeling, van het initiële zaaien van ESC's voor differentiatie-assays tot het daaropvolgende onderhoud, fixeren en analyseren. Het bevat ook richtlijnen voor kwaliteitscontrole door dagelijkse visuele beoordeling van de NTO-morfologie, evenals kritische karakterisering van organoïde-identiteit met behulp van antistofkleuring om correcte patronen en neurale differentiatie te verifiëren. Daarnaast worden uitgebreide probleemoplossingsmethoden aangeboden, waardoor een kritische beoordeling in elke stap van het protocol mogelijk is, wat noodzakelijk is om de reproduceerbaarheid en betrouwbaarheid van experimentele protocollen te waarborgen. Deze gedetailleerde instructies helpen om potentiële problemen te identificeren en op te lossen, fouten te minimaliseren en resultaten te optimaliseren. Dit is cruciaal om de integriteit van wetenschappelijke experimenten te behouden en andere wetenschappers in staat te stellen het werk succesvol te repliceren en uitgebreide conclusies te trekken uit de gegenereerde data, waardoor het vakgebied vooruit kan komen.
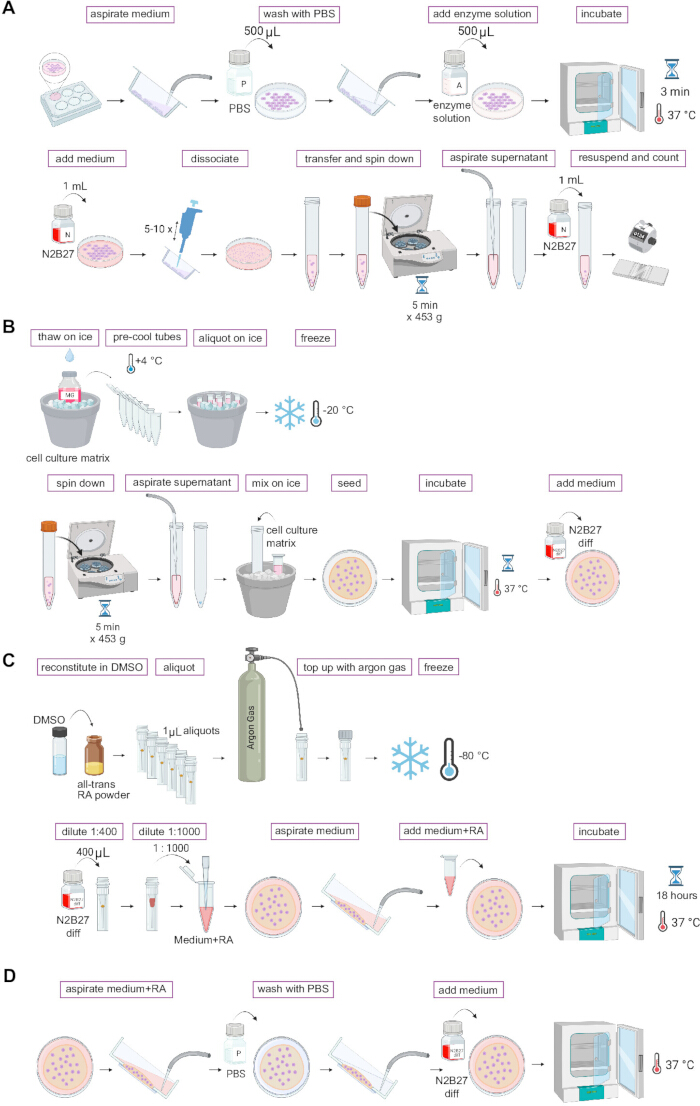
Figuur 1: Overzicht van het protocol. (A) Passaging van ESC's (zie stap 1.1). (B) Het aliquoteren van celkweekmatrix en het zaaien van enkele ESC's voor differentiatie in NTO's (zie stap 1.2). (C) Aliquotering van RA en RA-behandeling (zie stap 2). (D) RA-verwijdering en routine van dagelijkse vervanging van medium (zie stap 3). Deze figuur is gemaakt met BioRender.com. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
OPMERKING: Controleer dagelijks cellen en NTO's op kwaliteitsbeoordeling voordat verdere ingrepen (middelmatige vervanging, behandeling, fixatie, enz.) worden beoordeeld. Alle procedures die directe blootstelling van cellen aan lucht vereisen, moeten worden uitgevoerd in een bioveiligheidskast om steriliteit te waarborgen en besmetting van de kweek te voorkomen.
1. Onderhoud, doorgeven en zaaien van muis-ESC's voor NTO-differentiatie
- Passaging
- Bewaar ESC's op celkweekschalen of -putten van een 6-put plaat die voorbekleed is met 0,15% gelatine gedurende 30 minuten bij 37 °C.
- Geef ESC's elke 2-3 dagen, met dagelijkse medium vervanging vanaf dag 2.
- Verwarm alle reagentia (medium, PBS, enzymoplossing) vooraf tot minimaal 21 °C en maximaal 37 °C vóór gebruik.
- Controleer cellen onder fasecontrastmicroscoop (zie representatieve afbeeldingen, Figuur 2). Zorg ervoor dat kolonies een geschikte grootte en correcte morfologie hebben (Figuur 2A), terwijl je ook bevestigt dat ze aan de onderkant van het gerecht hechten.
OPMERKING: Gooi de kweek weg als meer dan 10% van de muis-ESC's gedifferentieerd is (Figuur 2B), en bereid een vers ontdooide kweek voor, die je minstens twee keer moet doorbrengen voordat je ESC's voor een differentiatie-assay plant. Ervaren onderzoekers kunnen beoordelen op visuele beoordeling (zie ook Mulas et al.28) of via antistofkleuring voor markerexpressie (bijv. OCT4, zie ook Ying et al.29). - Open het deksel van de kweekschaal/-bord, kantel het licht en aspireer voorzichtig het medium. Houd cellen zo kort mogelijk uit de broedmachine. Houd cellen zo kort mogelijk zonder medium om te voorkomen dat de cultuur uitdroogt.
- Was kolonies met 500 μL voorverwarmde PBS (voeg toe aan cellen in één put van een 6-put plaat), en aspireer onmiddellijk opnieuw.
OPMERKING: Deze stap is cruciaal omdat: i) overdracht van ESC-medium (2iLIF) moet worden vermeden vóór de differentiatietest (anders wordt de vorming van NTO belemmerd), ii) FBS of BSA in kweekmedium dissociatie kan stoppen. Dit geldt voor ESC's die in een ander ESC-medium zijn gekweekt, met FBS of BSA. - Voeg 500 μL voorverwarmde enzymoplossing toe en breng cellen terug in de incubator.
- Incubeer cellen op 37 °C gedurende 3 minuten met een timer.
- Na de incubatietijd haal je de plaat eruit en controleer je de cellen onder de fasecontrastmicroscoop.
OPMERKING: ESC's moeten losgelaten zijn van de kweekplaat; zo niet, tik dan stevig maar voorzichtig op de schaal/plaat (Figuur 2C). - Voeg 1 mL N2B27-medium toe (Tabel 1) door het direct op de cellen te pipetten.
OPMERKING: Bij het bereiden van medium (N2B27) wordt glutamine maximaal 5-10 minuten bewaard op 37 °C, en bij voorkeur op kamertemperatuur. ESC's moeten van het bord worden gewassen, zodat er 'lege' plekken in de kweekschaal achterblijven. - Gebruik een P1000-pipet en kantel de plaat lichtjes zodat alle kolonies die aan de kweekschaal blijven plakken kunnen worden afgespoeld.
- Om celklonten te dissociëren, kantel je de plaat lichtjes, plaats je de pipettip (P1000) in het midden van de schaal, druk je de punt tegen de onderkant van de schaal maar iets van de loodrechte as, en spoel je de cellen weg. Herhaal dit vijf tot tien keer om de celklonten te breken.
- Controleer of de cellen correct zijn gedissocieerd in enkele cellen onder de fasecontrastmicroscoop (Figuur 2D) en herhaal dit als er nog klonten zijn.
- Na volledige dissociatie wordt de celsuspensie overgebracht in een schone steriele 15 mL conische centrifugebuis, de lege put waarin cellen zijn gekweekt met 1 mL N2B27-medium gewassen en vervolgens naar dezelfde conische centrifugebuis met de celsuspensie gebracht.
- Spin cellen 5 minuten op 453 x g in een ultracentrifuge.
- Aspireer voorzichtig het supernatant.
- Susseb de cellen opnieuw in een geschikte hoeveelheid N2B27-medium (bijv. 1 mL) en tel cellen (zie Tabel 2 voor aanbevolen celaantallen voor differentiatietest in NTO's).
- Differentiatie van ESC's tot neurale buisorganoïden (NTO's)
- Aliquoterende celkweekmatrix
- Ontdooi de fles celkweekmatrix een nacht op ijs bij 4 °C (nooit op kamertemperatuur of met de hand ontdooien). Laat de celkweekmatrix niet langer dan nodig op 4 °C staan; aliquot en bevries zo snel mogelijk om de functionaliteit te behouden.
- In de bioveiligheidskast plaats je 1,5-2 mL microcentrifugebuizen op ijs om ze vooraf te koelen, terwijl je de celkweekmatrixfles op vers ijs bewaart.
- Meng de ontdooide celcultuurmatrix voorzichtig om bellen te voorkomen, want bellen kunnen loslaten van de put of schaal na jelle.
- Aliquot celkweekmatrix bij het gewenste volume (0,5-1 mL wordt aanbevolen) en bevriezen bij -20 °C tot verder gebruik. Vermijd het vervangen van de punt tussen de aliquots, want kamertemperatuurpunten kunnen ervoor zorgen dat de celcultuurmatrix binnenin stolt, wat leidt tot een aanzienlijk verlies. Laat in plaats daarvan de pipettoppen afkoelen tot 4 °C door ze voor gebruik in de koelkast te bewaren.
- Het zaaien van enkele cellen in een celcultuurmatrix
- Kwantificeer het aantal benodigde cellen (100 cellen/μL celkweekmatrix, zie Tabel 2).
- Breng het juiste celnummer (celsuspensie) over naar een schone conische centrifugebuis van 15 mL en vul deze aan met 1 mL N2B27.
- Spin cellen 5 minuten op 453 x g in de centrifuge.
- Aspireer het supernatant en plaats de conische centrifugebuis op ijs.
- Susselt de celpellet voorzichtig opnieuw op ijs in een geschikte hoeveelheid ontdooide en vloeibare celcultuurmatrix, terwijl je de vorming van bellen vermijdt.
- Breng de juiste hoeveelheid celcultuurmatrix-celsuspensie, in een dunne laag, uit op een glazen bodem of plastic bodemschaal die optimaal is voor beeldvorming (zie Tabel 2, Figuur 3A-C), zonder de wanden van multi-well platen aan te raken. Door de hoge oppervlaktespanning kan de druppel van de celcultuurmatrix van het midden van de put naar de wanden verplaatsen als ze eerder zijn aangeraakt, wat leidt tot een onvoldoende verdeling van cellen/NTO's.
OPMERKING: Als je multi-well platen gebruikt: teken eerst een cirkel van celkweekmatrix met een P20 (96-put plaat) of P200 pipettip voordat je deze 'vult' met de celkweekmatrix-celsuspensatie (Figuur 3B). - Plaats de multi-well plaat/schotel in de incubator op 37 °C zodat de celcultuurmatrix kan stollen. Schat 1 minuut per μL celkweekmatrix voor kleinere hoeveelheden en maximaal 15 minuten voor 40 μL of meer.
- Na de incubatietijd haal je het bord eruit en voeg je een passend volume medium toe (zie Tabel 2). ESC's in de celkweekmatrix mogen niet uitdrogen tijdens het zaaien voor differentiatietest in NTO's of bij het vervangen van het medium. Na jellificatie moet het medium zo snel mogelijk worden aangebracht. Jellificatie is doorgaans voltooid in 1 minuut bij 37 °C per 1 μL celkweekmatrix en maximaal 15 minuten voor 40-100 μL celkweekmatrix wanneer deze als een dunne laag wordt verspreid.
OPMERKING: Om uitdroging van ESC's in de celkweekmatrix te voorkomen, moet je maximaal 8 putten van een 96-put plaat behandelen met een multikanaals pipet of één 35 mm glazen bodem schaal/put van een andere multi-well plaat. Houd cellen zo kort mogelijk uit de broedmachine. - Controleer de zaaddichtheid en celverdeling binnen de celkweekmatrix onder de fasecontrastmicroscoop (Figuur 3C,D). De optimale zaaidichtheid wordt aanbevolen (Tabel 2 en Figuur 3). Voor bepaalde toepassingen, zoals vroege analyses, kan een zaaidichtheid tot tien keer hoger echter voordelig zijn.
OPMERKING: Meng zorgvuldig de celcultuurmatrix-celsuspensie door opnieuw te suspenderen met een P300- of P1000-pipetpunt voordat je zaait voor de differentiatietest om de variabiliteit in celaantallen tussen putten/schalen tegen te gaan. Deze stap wordt niet aanbevolen voordat je elke put hebt gezaaid om verlies van celkweekmatrix te voorkomen, omdat dit kan stollen en aan de pipetpunt kan blijven plakken.
- Aliquoterende celkweekmatrix
Tabel 1: Middelgrote componenten (N2B27 basis, 2iLIF, N2B27diff). Klik hier om deze tabel te downloaden.
Tabel 2: Informatie over celaantal per schotel, hoeveelheid celkweekmatrix, volume medium en jellificatietijd. Klik hier om deze tabel te downloaden.
2. RA-behandeling van NTO's om de neurale differentiatie te verbeteren en posteriorisatie en ventralisatie te induceren
- Aliquoterende retinoïnezuur (RA)
- Breng all-trans RA-poeder tot kamertemperatuur (bewaard bij -20 °C).
- Repasseer het poeder in een passend volume DMSO om een uiteindelijke concentratie van 100 mM te bereiken.
- Aliquot 1 μL van 100 mM RA in elk één 1,5 mL schroefbuisje.
- Voeg argongas toe totdat de buis 'vol' is.
OPMERKING: Omdat argongas zwaarder is dan zuurstof, zal het naar de bodem van de buis zakken om RA te bedekken en te behouden uit de lucht. Dit is te voelen aan de handen wanneer het lekt terwijl de tube vol is. - Sluit het flesje stevig. RA is zeer gevoelig voor licht en lucht.
- Bewaar aliquots in het donker bij -80 °C tot verder gebruik. Alternatief kan gereconstitueerde RA worden opgeslagen in 1,5 mL microcentrifugebuizen in vloeistof N2.
OPMERKING: Reconstrueerde en verdunde RA kan maximaal 2 dagen in de koelkast worden bewaard, wanneer deze met folie is afgedekt.
- RA-behandeling van NTO's gedurende 18 uur (Figuur 4A)
- Haal 1 μL van de aliquot met een concentratie van 100 mM uit -80 °C en bewaar het in het donker tot het op kamertemperatuur is ontdooid (bijvoorbeeld in de palm van de hand of in een buisrek in een bioveiligheidskast zonder lampen).
OPMERKING: Als RA-aliquots worden opgeslagen in vloeistof N2, open dan onmiddellijk het deksel van de microcentrifugebuis om een explosie van de buis te voorkomen, sluit dan opnieuw en ga door naar stap 2.2.2. - Na ontdooiing voeg je 400 μL voorverwarmd N2B27diff medium toe voor een concentratie van 250 μM met een P1000 pipet. Meng goed om homogeniteit te bereiken.
OPMERKING: Alternatief kan RA worden gereconstitueerd en verdund in puur DMSO in plaats van N2B27diff medium, hoewel dit de concentratie van DMSO in de kweek verhoogt. Bij het bereiden van medium (N2B27diff) wordt glutamine maximaal 5-10 minuten bewaard bij 37 °C, en bij voorkeur op kamertemperatuur. - Haal borden/schalen van teelt NTO's uit de couveuse en plaats ze in een steriele bioveiligheidskast.
- Bekijk de groeiende NTO's onder de fasecontrastmicroscoop. De morfologie van de NTO's is cruciaal om informatie te verkrijgen over de levensvatbaarheid van de kweek en de effectiviteit van het experiment (Figuur 4B-D).
- Verwijder het deksel van het bord/schaaltje en kantel het bord lichtjes opzij. Aspireer het medium voorzichtig, met een P200-pipet of een aspirator, zonder de celkweekmatrix te verstoren. Houd NTO's zo kort mogelijk zonder medium om te voorkomen dat de kweek en/of de celcultuurmix uitdrogen.
- Voeg een passend volume N2B27diff toe, aangevuld met 250 nM RA-oplossing (zie Tabel 2), dek af met het deksel en breng de NTO's terug in de broedmachine.
OPMERKING: Soms, vooral als de RA niet volledig is gemengd, kunnen er neerslagen ontstaan die moeilijker op te lossen zijn in normale N2B27diff. In dat geval laat je de aliquot weg en maak je nieuwe RA-aliquoten, omdat deze precipitates een onbekende en ongecontroleerde concentratie RA hebben.
- Haal 1 μL van de aliquot met een concentratie van 100 mM uit -80 °C en bewaar het in het donker tot het op kamertemperatuur is ontdooid (bijvoorbeeld in de palm van de hand of in een buisrek in een bioveiligheidskast zonder lampen).
3. Verwijdering van RA en routine van dagelijkse vervanging van NTO's
- Breng de kweekplaat van de broedmachine naar de steriele bioveiligheidskast.
- Verwijder het deksel en kantel het bord iets opzij.
- Aspireer voorzichtig N2B27diff met RA, met een P200-pipet of aspirator, zonder de celcultuurmatrix aan te raken.
- Voeg voorverwarmde PBS toe (gebruik genoeg volume om de druppel celkweekmatrix te bedekken of zoals beschreven in Tabel 2), kantel de plaat dan weer en verwijder hem voorzichtig om de overgebleven RA eruit te wassen.
- Voeg een passend volume N2B27diff toe (zoals vermeld in Tabel 2), door het medium langs de wand van de put/schotel te pipetten om schade aan de celkweekmatrixdruppel te voorkomen.
- Vervang het medium dagelijks volgens stappen 3.1-3.3, voeg dan voorzichtig verse voorverwarmde N2B27diff toe door het medium op de wand van de put/schotel te pipetteren voordat je de NTO's terug in de couveuse brengt. Direct en krachtig pipetteren of toevoegen van koud medium/PBS aan de celkweekmatrixdruppel kan leiden tot breuk en loslating van de plaat/schaal.
OPMERKING: Bij het verstoren van routes met kleine moleculen of recombinante eiwitten is het belangrijk het medium dagelijks te vervangen. Als medicijnen langer dan één dag worden aangebracht, moeten medicijnoplossingen dagelijks vers of ten minste om de twee dagen worden bereid om de stabiliteit van eiwitten en medicijnen en de aanhoudende aanwezigheid van de juiste concentraties te waarborgen.
4. Fixatie van NTO's
OPMERKING: NTO's zijn vastgelegd zoals beschreven door Krammer et al.26. Afhankelijk van het vervolgens te gebruiken antilichaam kan PFA uit verschillende bronnen (winkelgekocht, intern, enz.) nodig zijn.
- Ontdooi PFA aliquot bij 4 °C 's nachts.
- Breng PFA op kamertemperatuur voor gebruik.
- Als je een hogere voorraadconcentratie PFA gebruikt, verdun PFA dan tot 4% in N2B27diff medium of PBS in een chemische kap.
- Haal NTO's uit de broedmachine en doe ze over in een chemische kap.
- Open het deksel en voeg 4% PFA toe in een verhouding van 1:1 direct aan de NTO's om een uiteindelijke concentratie van 2% te bereiken (bijv. 100 μL van 4% PFA toegevoegd aan de 100 μL N2B27diff in de 96-well plaat).
- Doe het deksel er weer op en incubeer NTO's 30 minuten op kamertemperatuur. Stel een timer in, want langere fixatie kan de werking van bepaalde antistofbehandelingen verzwakken.
OPMERKING: PFA is giftig en mag niet worden ingeademd. Werk zorgvuldig en met voorzichtigheid onder de chemische motorkap. Sommige antistoffen vereisen het gebruik van een specifieke PFA of een kortere/geoptimaliseerde fixatietijd. - Na 30 minuten verwijder je het deksel en kantel je het bord lichtjes opzij, volg dan stappen 3.3-3.4.
- Voeg voorzichtig voorverwarmde PBS toe (gebruik genoeg volume om de druppel celcultuurmatrix te bedekken of zoals beschreven in Tabel 2), en breng 5 minuten uit bij kamertemperatuur. Herhaal deze stap drie keer om alle overgebleven PFA te verwijderen.
- Voeg na de laatste wasbeurt een passende hoeveelheid PBS toe (zie Tabel 2), sluit de plaat af met parafilm en bewaar op 4 °C tot verder gebruik.
5. Antilichaamkleuring van NTO's
- Antistofkleuring is een waardevol hulpmiddel om de juiste identiteit van de NTO's en het succes van de assay/het experiment te beoordelen. Antilichaamkleuring kan worden uitgevoerd zoals beschreven in Meinhardt et al.24 en Krammer et al.26.
OPMERKING: Als NTO's suboptimaal lijken (Figuur 4E-G) of geen correcte ruimtelijke markerexpressie tonen (Figuur 5 tot Figuur 7), gooi het materiaal dan weg omdat het niet aan de kwaliteitsnormen voldoet. - Houd de blok-/permeabilisatieoplossing (1x PBS met 1% BSA en 0,5% Triton-X) op 4 °C en pas je aan kamertemperatuur aan voordat je het gebruikt.
- Voor volledige 3D-reconstitutie en analyse houd je antilichamen (1en 2nd) minstens 1, maar bij voorkeur 2-3 nachten op 4 °C om een goede antilichaampenetratie te garanderen.
OPMERKING: Alexa Fluor anti-5612-nd antilichaam kan in de eerste drie dagen van de differentiatietest een sterker achtergrondsignaal geven in de celkweekmatrix.
6. Clearing van NTO's
- Maak je klaar voor het vrijmakenvan 26
- Voltooi het antistofkleuringsproces voordat je begint met het opruimen (zorg ervoor dat zowel de1e als de2e antistoffen geïncubeerd en grondig zijn uitgespoeld).
- Voeg propylgallaat toe aan de clearing-oplossing (2 mg propylgallaat per mL clearingoplossing) om fotobleaching van NTO's te minimaliseren.
OPMERKING: Voer de clearing 1-2 uur voor de beeldvorming uit om oxidatie te voorkomen (vloeistof verandert van lichtgeel/crème in donker felgeel of zelfs bruin) of kristallisatie van de clearingoplossing. Als kristallisatie plaatsvindt, los dan op door PBS aan de put toe te voegen.
- Oplossings-pH en mengmaatregelen
- Houd de juiste pH van de zuiveringsoplossing om snelle oxidatie of het oplossen van de celcultuurmatrix te voorkomen.
- Vermijd hevig schudden of hard mengen van de oplossing om luchtbellen te voorkomen.
7. Analyse van NTO's
- Voorbereiding van microscopie
- Na het voltooien van de antistofkleuring en het reinigen van het hele weefsel, gebruik een confocale microscoop met 10-40x objectieven voor beeldvorming.
- Visuele beoordeling
- Gebruik visuele beoordeling en handmatige kwantificatie om efficiënt te bepalen of NTO's een geschikte expressie van neurale markers en dorsoventrale organisatie vertonen.
- 3D-analysesoftware
- Voor 3D-analyse gebruik je software zoals CellProfiler28,29, Imaris (File Converter and Viewer) of een vergelijkbaar hulpmiddel om ruimtelijke markeringen en structurele details te beoordelen.
- Verificatie van NTO-identiteit
- Bevestig de juiste identiteit van NTO's door de temporele expressie van neurale markers en de ruimtelijke expressie van specifieke dorsoventrale patroonmarkers te evalueren. Deze stap is essentieel om ervoor te zorgen dat de differentiatietest succesvol is geweest voordat verder onderzoek wordt uitgevoerd.
- Karakteriseringsaspecten: Zie Figuur 4, evenals Figuur 6 en Figuur 7 om de volgende cruciale aspecten van het succes van de cultuur te verifiëren:
- Raadpleeg Figuur 4 en ZO-1 kleuring getoond in Meinhardt et al.24 om succesvolle epithelialisatie en lumenvorming te verifiëren.
- Succesvolle neurale differentiatie wordt gekenmerkt door de downregulatie van OCT4 en de upregulatie van SOX1, gevolgd door β3TUBULINE-expressie (gedetailleerd in24). Zie Figuur 6 en Figuur 7 om succesvolle neurale differentiatie te verifiëren.
- Dorsoventrale patronen worden bevestigd door de aanwezigheid van een ventrale FOXA2+/SHH+ vloerplaat en PAX3+-expressie aan de tegenoverliggende dorsale pool (gedetailleerde ventrale patronen in26). Zie Figuur 6 en Figuur 7 om succesvolle dorsoventrale patronen te verifiëren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
R1-muis ESC's werden gebruikt voor alle representatieve voorbeelden in de figuren die in dit manuscript worden gepresenteerd. Andere genoemde muis-ESC's kunnen milde verschillen vertonen in de timing van epithelialisatie, neurale differentiatie of patronenefficiëntie wanneer ze voor NTO's worden gezaaid, maar de resultaten zouden niet significant moeten afwijken van de hier getoonde gegevens.
Alleen ESC's van goede kwaliteit (Figuur 2A
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Hier worden verschillende optimaliserende aanpassingen en verbeteringen van het oorspronkelijke protocol voor het genereren van hoogwaardige NTO's gepresenteerd om standaardisatie tussen laboratoria te vergemakkelijken. Belangrijke aanpassingen zijn onder andere verschillende ESC-kweekcondities, verminderde invoercelaantallen, verbeterd differentiatiemedium, aangepast differentiatieprotocol en aanpassingen van zaaidichtheid voor high-throughput analyse met multi-well platen. Verschillend...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs geven geen belangenconflict aan.
Dankbetuigingen
We willen huidige en voormalige leden van het Tanaka-lab bedanken voor hun steun en discussies bij de ontwikkeling van dit protocol. Met name danken wij A. Pelzl voor het kritisch lezen van het manuscript, het geven van input en het helpen met schema's, en aan E. Chatzidaki voor het kritisch lezen van het manuscript, het redigeren en ondersteunen van schema's, evenals het verkrijgen van de PUD 25-financiering samen met Juergen A. Knoblich. Deze publicatie werd gefinancierd door het Oostenrijks Wetenschapsfonds (FWF): "Stand Alone publicatieproject nummer PUD 25". Daarnaast heeft dit project financiering ontvangen van de European Research Council (ERC) onder het Horizon 2020-onderzoeks- en innovatieprogramma van de Europese Unie (subsidieovereenkomst ERC AdG 742046), en van het Oostenrijks Wetenschapsfonds (FWF) [10.55776/ F7803-B] (Stamcelmodulatie). Voor Open Access hebben de auteurs een CC BY publieke auteursrechtlicentie toegepast op elke Author Accepted Manuscript (AAM) versie die voortkomt uit deze indiening.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 35 mm Dish | No. 1.5 Coverslip | 14 mm Glass Diameter | Uncoated | MatTek Corporation | Cat# P35G-1.5-14-C | |
| Accutase | Invitrogen | Cat# 00-4555-56 | |
| Albumine (BSA) Fractie V (pH 7,0) | Panreac AppliChem | Cat# A1391 | |
| All-Trans Retinoic Zuur | Merck | Cat# R2625 | |
| B-27 Supplement (50X), serumvrij | Gibco | Cat# 17504044 | |
| Basement Membrane Matrix (Matrigel) | Corning | Cat# BDL354234 | Proteïneconcentratie 10 mg/ml |
| CellCarrier-96 Ultra Microplates | PerkinElmer | Cat# 6055302 | |
| CellProfiler 4 | Stirling et al. 2021 | https://cellprofiler.org | |
| CHIR 99021 | Tocris | Cat# 4423 | |
| CUBIC-R+(N) | Matsumoto et al, 2019 | N/A | |
| Dimethylsulfoxide | Sigma Aldrich | Cat# D2650 | |
| DMEM/F-12, zonder glutamine | Gibco | Cat# 21331020 | |
| Dulbecco’s Fosfaat-gebufferd zout (DPBS, 1X) | Gibco | Cat# 14190144 | |
| Eppendorf Centrifuge 5810 R | Eppendorf | Cat# 5811000015 | |
| Eppendorf Microtube 3810X | Merck | Cat# EP0030125150 | |
| Falcon Conische Centrifugeerbuizen | Corning | Cat# 352095 | |
| Gelatine | Merck | Cat# G2500 | |
| L-Glutamine (200 mM) | Gibco | Cat# A2916801 | |
| HeracellVIOS 160i CO2 Incubator, 165 L | ThermoFisher Scientific | Cat# 51033557 | |
| Imaris | Oxford Instruments | https://imaris.oxinst.com | |
| Inverteerbare LED fasecontrastmicroscoop (CKX53) | Olympus | ||
| 2-Mercaptoethanol (50 mM) | Gibco | Cat# 31350010 | |
| Monoklonaal muis anti-OCT-3/4 | Santa Cruz Biotechnology | Cat# sc-5279; RRID:AB_628051 | Gebruik 1:200 |
| Monoklonaal muis anti-PAX3 | DSHB | Cat# PAX3-C; RRID:AB_528426 | Gebruik 1:100 |
| Monoklonaal konijn anti-SHH | Cell Signalling Technologies | Cat# 2207; RRID:AB_2188191 | Gebruik 1:300 |
| Monoklonaal konijn anti-bèta3-Tubuline | Cell Signalling Technologies | Cat# 5568; RRID:AB_10694505 | Gebruik 1:500 |
| Monoklonaal muis anti-ZO-1 | Invitrogen | Cat# 33-9100; RRID:AB_2533147 | Gebruik 1:200 |
| Muis LIF | Qkine | Cat# Qk018-1000 | |
| N-2 Supplement (100X) | Gibco | Cat# 17502048 | |
| Neurobasal Medium | Gibco | Cat# 21103049 | |
| Paraformaldehyde, reagentkwaliteit, kristallijn | Merck | Cat# P6148 | |
| PD 0325901 | Tocris | Cat# 4192 | |
| Penicilline-Streptomycine-oplossing | Gibco | Cat# 15140130 | |
| Phasecontrastmicroscoop | |||
| Polyklonaal geiten anti-FOXA2 | R&D | Cat# AF2400; RRID:AB_2294104 | Gebruik 1:400 |
| Polyklonaal geiten anti-SOX1 | R&D Systems | Cat# AF3369; RRID:AB_2239879 | Gebruik 1:200 |
| RNA-Seq gegevens met betrekking tot Figuur 6 | Ishihara et al., 2022 | GEO: GSE214368 | |
| SafeFAST Premium Microbiologische Veiligheidscabinet | Dasit group FASTER | Cat# F00025200000 | |
| Natrium Pyruvaat (100 mM) | Gibco | Cat# 11360070 | |
| Spinning disk confocale inverteerbare microscoop (IX3) | Olympus | ||
| Triton X-100 | Sigma Aldrich | Cat# 9036-19-5 |
Referenties
- Hiiragi, T., Solter, D. First cleavage plane of the mouse egg is not predetermined but defined by the topology of the two apposing pronuclei. Nature. 430 (6997), 360-364 (2004).
- Louvet-Vallée, S., Vinot, S., Maro, B. Mitotic spindles and cleavage planes are oriented randomly in the two-cell mouse embryo. Curr Biol. 15 (5), 464-469 (2005).
- Sagner, A., Briscoe, J. Morphogen interpretation: concentration, time, competence, and signaling dynamics. Wiley Interdiscip Rev Dev Biol. 6 (4), e271(2017).
- Anlaş, A. A., Nelson, C. M. Tissue mechanics regulates form, function, and dysfunction. Curr Opin Cell Biol. 54, 98-105 (2018).
- Haupt, A., Minc, N. How cells sense their own shape: mechanisms to probe cell geometry and their implications in cellular organization and function. J Cell Sci. 131 (6), jcs214015(2018).
- Lajtha, L. G. Stem cell concepts. Differentiation. 14 (1-3), 23-33 (1979).
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292 (5819), 154-156 (1981).
- Thomson, J. A., et al. Embryonic stem cell lines derived from human blastocysts. Science. 282 (5391), 1145-1147 (1998).
- Kretzschmar, K., Clevers, H. Organoids: modeling development and the stem cell niche in a dish. Dev Cell. 38 (6), 590-600 (2016).
- Zhao, Z., et al. Organoids. Nat Rev Methods Primers. 2 (1), 94(2022).
- Jensen, C., Teng, Y. Is it time to start transitioning from 2D to 3D cell culture. Front Mol Biosci. 7, 33(2020).
- Clevers, H. Modeling development and disease with organoids. Cell. 165 (7), 1586-1597 (2016).
- Park, G., Rim, Y. A., Sohn, Y., Nam, Y., Ju, J. H. Replacing animal testing with stem cell-organoids: advantages and limitations. Stem Cell Rev Rep. 20 (6), 1375-1386 (2024).
- Xu, Z., et al. Merits and challenges of iPSC-derived organoids for clinical applications. Front Cell Dev Biol. 11, 1188905(2023).
- Phipson, B., et al. Evaluation of variability in human kidney organoids. Nat Methods. 16 (1), 79-87 (2019).
- Lancaster, M. A., et al. Cerebral organoids model human brain development and microcephaly. Nature. 501 (7467), 373-379 (2013).
- Lancaster, M. A., Knoblich, J. A. Organogenesis in a dish: modeling development and disease using organoid technologies. Science. 345 (6194), 1247125(2014).
- Lancaster, M. A., et al. Guided self-organization and cortical plate formation in human brain organoids. Nat Biotechnol. 35 (7), 659-666 (2017).
- Eichmüller, O. L., et al. Amplification of human interneuron progenitors promotes brain tumors and neurological defects. Science. 375 (6579), eabf5546(2022).
- Reumann, D., et al. In vitro modeling of the human dopaminergic system using spatially arranged ventral midbrain-striatum-cortex assembloids. Nat Methods. 20 (12), 2034-2047 (2023).
- Esk, C., et al. A human tissue screen identifies a regulator of ER secretion as a brain-size determinant. Science. 370 (6519), 935-941 (2020).
- Krenn, V., et al. Organoid modeling of Zika and herpes simplex virus 1 infections reveals virus-specific responses leading to microcephaly. Cell Stem Cell. 28 (8), 1362-1379.e7 (2021).
- Li, C., et al. Single-cell brain organoid screening identifies developmental defects in autism. Nature. 621 (7978), 373-380 (2023).
- Meinhardt, A., et al. 3D reconstitution of the patterned neural tube from embryonic stem cells. Stem Cell Rep. 3 (6), 987-999 (2014).
- Wu, Y., Peng, S., Finnell, R. H., Zheng, Y. Organoids as a new model system to study neural tube defects. FASEB J. 35 (4), e21545(2021).
- Krammer, T., et al. Mouse neural tube organoids self-organize floorplate through BMP-mediated cluster competition. Dev Cell. 59 (15), 1940-1953.e10 (2024).
- Ishihara, K., Ranga, A., Lutolf, M. P., Tanaka, E. M., Meinhardt, A. Reconstitution of a patterned neural tube from single mouse embryonic stem cells. Organ Regen. 1597, 43-55 (2017).
- Mulas, C., et al. Defined conditions for propagation and manipulation of mouse embryonic stem cells. Development. 146 (6), dev173146(2019).
- Ying, Q. L., et al. The ground state of embryonic stem cell self-renewal. Nature. 453 (7194), 519-523 (2008).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biol. 7 (10), R100(2006).
- Stirling, D. R., et al. CellProfiler 4: improvements in speed, utility and usability. BMC Bioinformatics. 22 (1), 433(2021).
- Ishihara, K., et al. Topological morphogenesis of neuroepithelial organoids. Nat Phys. 19, 177-183 (2023).
- Nagy, A., Rossant, J., Nagy, R., Abramow-Newerly, W., Roder, J. C. Derivation of completely cell culture-derived mice from early-passage embryonic stem cells. Proc Natl Acad Sci U S A. 90 (18), 8424-8428 (1993).
- Ying, Q. L., Smith, A. G. Defined conditions for neural commitment and differentiation. Methods Enzymol. 365, 327-341 (2003).
- Ying, Q. L., Stavridis, M., Griffiths, D., Li, M., Smith, A. Conversion of embryonic stem cells into neuroectodermal precursors in adherent monoculture. Nat Biotechnol. 21 (2), 183-186 (2003).
- Robanus-Maandag, E., et al. p107 is a suppressor of retinoblastoma development in pRb-deficient mice. Genes Dev. 12 (11), 1599-1609 (1998).
- Smith, A. G., Hooper, M. L. Buffalo rat liver cells produce a diffusible activity which inhibits the differentiation of murine embryonal carcinoma and embryonic stem cells. Dev Biol. 121 (1), 1-9 (1987).
- Kuehn, M. R., Bradley, A., Robertson, E. J., Evans, M. J. A potential animal model for Lesch-Nyhan syndrome through introduction of HPRT mutations into mice. Nature. 326 (6110), 295-298 (1987).
- Doetschman, T., et al. Targeted correction of a mutant HPRT gene in mouse embryonic stem cells. Nature. 330 (6148), 576-578 (1987).
- Hooper, M., Hardy, K., Handyside, A., Hunter, S., Monk, M. HPRT-deficient (Lesch-Nyhan) mouse embryos derived from germline colonization by cultured cells. Nature. 326 (6110), 292-295 (1987).
- Ranga, A., et al. Neural tube morphogenesis in synthetic 3D microenvironments. Proc Natl Acad Sci U S A. 113 (44), (2016).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.