Hier rapporteren we een protocol dat een muismodel voor reumatoïde artritis (RA) tot stand brengt door adoptieve overdracht van CD4+ T-cellen van SKG-muizen, wat een snel en betrouwbaar experimenteel hulpmiddel biedt voor het onderzoeken van de immunologische mechanismen, pathologische progressie en ontwikkeling van nieuwe behandelingen voor RA.
Methodenartikel
Een adoptief overdrachtsmodel van reumatoïde artritis bij muizen
In dit artikel
Samenvatting
Samenvatting
Reumatoïde artritis (RA) is een chronische, systemische auto-immuun ontstekingsaandoening die kan leiden tot gewrichtsschade, misvormingen, invaliditeit en zelfs de dood. Vanwege de complexe etiologie en heterogene klinische presentatie blijven de huidige behandelingsstrategieën ontoereikend om ziekteprogressie effectief onder controle te houden, met name voor het bereiken van een vroege diagnose en het aanbieden van gepersonaliseerde therapieën. Daarom is het ontwikkelen van nieuwe therapeutische benaderingen cruciaal. Om dit te bereiken zijn betrouwbare diermodellen essentieel voor het onderzoeken van de pathogenese van RA. Momenteel worden verschillende diermodellen van RA gebruikt, waaronder het collageen-geïnduceerde artritismodel (CIA), het K/BxN-model en de SKG-muis. Hoewel deze modellen met succes de immuunmechanismen en klinische manifestaties van RA kunnen nabootsen, hebben ze elk opmerkelijke beperkingen.
In dit protocol beschrijven we het proces van het opzetten van een RA-muismodel door de adoptieve overdracht van CD4+ T-cellen van SKG-muizen. In vergelijking met conventionele modellen biedt dit model een kortere inwerktijd en een hogere incidentie (100%) bij C57BL/6-muizen. Het is relatief kosteneffectief, omvat eenvoudige procedures en repliceert op betrouwbare wijze T-cel-gemedieerde immuunresponsen, wat zorgt voor superieure experimentele controle en reproduceerbaarheid. We hebben een uitgebreide evaluatie van het model uitgevoerd, waarbij we het klinische fenotype, zoals gewrichtssymptomen, hebben beoordeeld. Door middel van klinische fenotypebeoordeling hebben we significante gewrichtszwelling en ontstekingsreacties waargenomen. Bovendien ontdekten we, met behulp van PCR-technologie om de expressieniveaus van belangrijke transcriptiefactoren te meten, dat dit model effectief T-celgemedieerde immuunresponsen en belangrijke pathologische kenmerken van RA simuleert. Met dit model kunnen onderzoekers de T-cel-gemedieerde immuunrespons en de belangrijkste pathologische kenmerken van RA beter simuleren, waardoor een betrouwbaar en effectief experimenteel hulpmiddel wordt geboden voor het bestuderen van immuunmechanismen en pathologische progressie en het ontwikkelen van nieuwe therapieën voor RA.
Inleiding
RA is een chronische, systemische auto-immuunziekte die ongeveer 1% van de wereldbevolking treft en een hoge morbiditeit en een zware sociaaleconomische last veroorzaakt 1,2. De ziekte wordt gekenmerkt door aanhoudende gewrichtsontsteking, afbraak van kraakbeen en boterosie, wat uiteindelijk leidt tot gewrichtsmisvormingen, handicaps en, in ernstige gevallen, vroegtijdig overlijden 3,4,5. De pathogenese van RA omvat het samenspel van genetische, omgevings- en immuunfactoren, met belangrijke kenmerken zoals abnormale activering van cellulaire immuniteit, overmatige afgifte van pro-inflammatoire cytokines en verstoring van immuuntolerantie 6,7. In dit proces bevorderen autoreactieve T-cellen, met name CD4+ T-cellen, als belangrijke aanjagers van immuunregulatie, direct de pathologische progressie van RA via meerdere mechanismen.
T-helpercellen (Th)1-cellen produceren interferon-gamma (IFN-γ), dat macrofagen en synoviale fibroblasten activeert, wat resulteert in het vrijkomen van tumornecrosefactor (TNF)-α en interleukine (IL)-6 en synovitis veroorzaakt. Th17-cellen scheiden IL-17 af, dat de activering van synoviale cellen en osteoclasten bevordert, waardoor de vernietiging van kraakbeen en boterosie worden verergerd 8,9. Bovendien versterken CD4+ T-cellen ontstekingsreacties door B-cellen te activeren via co-stimulerende signalen, waardoor de productie van anti-citrullinated eiwitantilichamen (ACPA) en reumafactoren (RF)10 wordt geïnduceerd. Ondertussen zijn defecten in de functie en een vermindering van het aantal Treg-cellen de belangrijkste redenen voor immuunonbalans bij RA, wat leidt tot ongecontroleerde ontsteking11,12. Vanwege de complexe etiologie en heterogene klinische presentatie is een vroege diagnose moeilijk en is de huidige behandeling van RA onbevredigend. Daarom is de ontwikkeling van nieuwe therapeutische benaderingen cruciaal. Betrouwbare diermodellen zijn van cruciaal belang voor het onderzoeken van de pathogenese van RA om een beter begrip te krijgen van de mogelijke mechanismen van RA en om nieuwe behandelingsstrategieën te verkennen.
Traditionele RA-modellen, zoals de CIA- en K/BxN-muismodellen 13,14,15, dragen bij aan het verbeteren van ons begrip van RA. Deze modellen vertonen echter aanzienlijke beperkingen. Het CIA-model in C57BL/6-muizen heeft bijvoorbeeld een laag slagingspercentage en een lange inductieperiode, wat het nut ervan in bepaalde experimentele omgevingen vermindert. Evenzo, hoewel het K/BxN-model waardevol is, is het kostbaar om vast te stellen en heeft het beperkingen bij het repliceren van de complexe pathologie van menselijke RA, met name de interacties tussen immuuncellen en cytokines.
Om deze beperkingen aan te pakken, ontwikkelden we een nieuw RA-muismodel door CD4+ T-cellen van SKG-muizen met een C57BL/6-achtergrond over te brengen naar immunocompetente C57BL/6-muizen, in combinatie met mannan-geïnduceerde immuunactivering. Dit model repliceert effectief de belangrijkste kenmerken van RA, waaronder T-cel-gemedieerde immuunresponsen en essentiële pathologische kenmerken zoals synoviale ontsteking en gewrichtserosie, terwijl het voordelen biedt op het gebied van reproduceerbaarheid, eenvoud en kosteneffectiviteit. We hebben een gedetailleerde methodologie geschetst voor het opstellen van dit model, dat de generatie van SKG-muizen op de C57BL/6-achtergrond, isolatie van CD4+ T-cellen uit SKG-muizen, hun adoptieve overdracht en de daaropvolgende inductie door mannan omvat. Daarnaast beschrijven we de klinische en histologische criteria die worden gebruikt om de ernst van artritis te evalueren, waardoor de betrouwbaarheid en reproduceerbaarheid ervan worden gegarandeerd. Door consequent T-cel-gemedieerde immuunresponsen en de fundamentele pathologische kenmerken van RA na te bootsen, dient dit model als een robuust en efficiënt experimenteel hulpmiddel voor het onderzoeken van de immuunmechanismen, ziekteprogressie en de ontwikkeling van nieuwe therapieën voor RA.
Protocol
Alle experimentele procedures in deze studie volgden strikt de richtlijnen die zijn uiteengezet door de "National Institutes of Health Guide for the Care and Use of Laboratory Animals", inclusief veehouderij, experimentele operaties en euthanasie, en werden goedgekeurd door de Animal Ethics Committee van het Tongji Medical College, Huazhong University of Science and Technology.
1. Dieren
- Generatie van SKG-muizen (C57BL/6 achtergrond)
- Strategie voor het bewerken van genen
- Ontwerp een specifiek gids-RNA (gRNA) gericht op het ZAP70-gen (gRNA-sequentie: 5'-CAGCCCAGGAGCGAATGCCCTGG-3') en voer genbewerking uit met het CRISPR/Cas9-systeem. Ontwerp een donor-DNA met de ZAP70(W163C)-mutatie om een nauwkeurige incorporatio-n van de mutatie te garanderen (hier, CAGGCCCCACAGGTGGAGAAGCTCATTG
CTACCACAGCCCACGAGCGAATGCCCGS
CTATCACAGCAGCCTGACTCGTGAGGAG
GCCGAGCGCAAACTCTATTCCGGCCA).
OPMERKING: Het gRNA stuurt het Cas9-eiwit naar de specifieke plaats van het ZAP70-gen voor nauwkeurig knippen. De onderstreepte base in de donor-DNA-sequentie geeft gemuteerde basen aan. Deze mutatie komt overeen met de W163C-mutatie (TGG→TGC) in het ZAP70-eiwit, dat zich in een kritisch functioneel domein bevindt.
- Ontwerp een specifiek gids-RNA (gRNA) gericht op het ZAP70-gen (gRNA-sequentie: 5'-CAGCCCAGGAGCGAATGCCCTGG-3') en voer genbewerking uit met het CRISPR/Cas9-systeem. Ontwerp een donor-DNA met de ZAP70(W163C)-mutatie om een nauwkeurige incorporatio-n van de mutatie te garanderen (hier, CAGGCCCCACAGGTGGAGAAGCTCATTG
- Injectiespuit
- Gebruik micro-injectie om Cas9-mRNA, gRNA en donor-DNA in bevruchte C57BL/6-muizeneieren te introduceren. Co-injecteer Cas9-eiwit en gRNA zodat ze het ZAP70-gen splitsen en de ZAP70(W163C)-mutatie invoegen via homologe recombinatie. Transplanteer de geïnjecteerde bevruchte eieren in pseudozwangere vrouwelijke muizen, wacht ongeveer 20 dagen en wijs de muizen aan die geboren zijn als de F0-generatie. Identificeer genotypen door middel van PCR-amplificatie en -sequencing (zie stap 1.1.5.3).
- Genotypering van muizen van de F0-generatie
- Voer PCR en sequencing uit op muizen van de F0-generatie om de verwerving van de ZAP70 (W163C)-mutatie te bevestigen (zie stap 1.1.5.3).
OPMERKING: Muizen van de F0-generatie zijn chimeer als gevolg van snelle embryonale splitsing. Ze kunnen een stabiele genetische overdracht missen. Implementeer seriematige veredeling om stabiele lijnen vast te stellen.
- Voer PCR en sequencing uit op muizen van de F0-generatie om de verwerving van de ZAP70 (W163C)-mutatie te bevestigen (zie stap 1.1.5.3).
- Acquisitie en genotypische identificatie van muizen van de F1-generatie
- Fok F0-positieve muizen met wildtype C57BL/6J-muizen om muizen van de F1-generatie te verkrijgen, en voer genotypering uit via PCR en sequencing om SKG-muizen te verkrijgen (C57BL/6-achtergrond; zie stap 1.1.5.4).
- Op PCR gebaseerde genotyperingsmethoden voor F0- en F1-generaties
- Snijd met een steriele schaar een stuk van 0,5 cm van de staart.
- Extraheer muizen-DNA met behulp van een genomische DNA-extractiekit voor dieren.
- Bereid voor F0 het volgende PCR-reactiesysteem voor: 13,2 μl ddH2O, 2 μl PCR-buffer, 2 μl 2,5 mM dNTP, 0,5 μl van elk van de voorwaartse (5'-GATGCCTAGGTGGGTGGGGCC-3') en omgekeerde (5'-ACTTGCCTACGCTACTGCTCTACA-3') primers (10 pmol/μl), 0,8 μl DNA-polymerase en 1 μl genomisch DNA (50-100 ng/μl) geëxtraheerd uit muizenstaarten, voor een eindreactievolume van 20 μl. Voer genamplificatie uit met behulp van het volgende PCR-programma: 94 °C gedurende 3 minuten; 98 °C gedurende 15 s, 58 °C gedurende 15 s en 68 °C gedurende 1 minuut gedurende 35 cycli; 68 °C gedurende 5 min; houden op 12 °C.
- Bereid voor F1 het volgende PCR-reactiesysteem voor: 14,9 μl ddH2O, 2 μl 10x Taq PCR-buffer, 1 μl 2,5 mM dNTP, 0,5 μl van elk van voorwaartse (5'-GATGCCTAGGTGTGGGGGGCC-3') en omgekeerde (5'-ACTTGCCTACGCTACTGCTCTACA-3') primers (10 pmol/μl), 0,1 μl Taq DNA-polymerase en 1 μl genomisch DNA (50-100 ng/μl) geëxtraheerd uit muizenstaarten, voor een eindreactievolume van 20 μl. Voer genamplificatie uit met behulp van het volgende PCR-programma: 94 °C gedurende 5 minuten; 94 °C gedurende 30 s, 58 °C gedurende 30 s, 72 °C gedurende 1 min, herhaald gedurende 35 cycli; 72 °C gedurende 5 min; houden op 12 °C.
- Voer elektroforese uit om producten van de verwachte grootte te bevestigen.
- Sequentie van de PCR-producten om zowel het genotype als de specifieke mutatie te verifiëren.
- Strategie voor het bewerken van genen
- Selectie van donor- en ontvangende muizen
- Selecteer SKG-muizen die 6-8 weken oud zijn (mannelijk of vrouwelijk) als donormuizen.
- Selecteer C57BL/6-muizen die 6-8 weken oud zijn (bij voorkeur vrouwelijk voor consistente experimentele resultaten) als ontvangende muizen.
- Hok C57BL/6 en SKG muizen (6-8 weken oud) onder SPF condities in individueel geventileerde kooien. Bied gratis toegang tot SPF-kwaliteit voer en steriel water op een licht/donker-cyclus van 12 uur. Acclimatiseer de muizen gedurende 1 week voordat ze met experimenten beginnen.
2. Isolatie en zuivering van CD4+ T-cellen uit SKG-muizen
- Euthanaseer de SKG-muizen onder een steriele laminaire stromingskap met behulp van CO2 -verstikking. Dompel de muizen 5 minuten onder in 75% alcohol om te desinfecteren. Zoek de milt in de buikholte en de lymfeklieren (lies- en knieholte) in de lies- en knieholte. Ontleed de milt en lymfeklieren zorgvuldig met behulp van een steriele tang en schaar en breng ze onmiddellijk over naar voorgekoelde PBS.
- Leg de milt en lymfeklieren in aparte petrischaaltjes. Druk de weefsels door een celzeef van 70 μm met behulp van de zuiger van een steriele spuit en voeg geleidelijk 10-12 ml voorgekoeld PBS toe om een uniforme celsuspensie te vormen. Leid de celsuspensie door dezelfde celzeef van 70 μm in een centrifugebuis van 15 ml en centrifugeer vervolgens gedurende 7 minuten bij 300 × g bij 4 °C. Gooi het bovenstaande weg en bewaar de celpellet.
- Voer trypanblauwe kleuring uit om de levensvatbaarheid van de cellen te beoordelen. Tel de cellen en bevestig dat de levensvatbaarheid ≥90% is.
- Pas de celconcentratie aan op 1 × 10⁸ cellen/ml met de buffer die in de CD4+ T-celisolatiekit zit.
- Breng 100 μL van de celsuspensie (10,7 cellen) over in een nieuw buisje. Voeg 10 μL Biotine-Antilichaam-Cocktail toe, meng grondig en incubeer 15 minuten op ijs.
- Resuspendeer de kralen door te vortexen op maximale snelheid. Voeg 10 μL van de Streptavidin kralensuspensie toe, meng goed en incubeer 15 minuten op ijs.
- Voeg 2,5 ml van de buffer toe die in de CD4+ T-celisolatiekit zit en plaats de buis 5 minuten in de magneet.
- Giet de vloeistof (doelcellen) voorzichtig uit de buis in een nieuwe steriele buis en centrifugeer vervolgens gedurende 5 minuten bij 4 °C 300 × g . Gooi het bovenstaande weg en bewaar de celpellet.
- Voeg een voldoende hoeveelheid steriele PBS-oplossing toe om de celconcentratie aan te passen tot 2 × 10⁶ cellen/ml en bewaar de suspensie op ijs voor later gebruik.
- Gebruik flowcytometrie om de zuiverheid van de gesorteerde cellen te beoordelen (aanvullende figuur S1). Bereken de celzuiverheid als: (aantal CD4+ T-cellen / totaal aantal cellen) × 100%. Controleer of de zuiverheid ≥90%16 is.
3. Adoptieve overdracht van CD4+ T-cellen
- Verdoof C57BL/6-muizen met 2%-3% isofluraan en bereik een diepte van anesthesie waarbij de muizen alle mobiliteit verliezen, maar een normale spontane ademhaling behouden.
- Reinig voorzichtig de binnenste canthus (ooghoek) van de muis met een steriel wattenstaafje om afscheidingen en haren te verwijderen, waardoor de ader bloot komt te liggen.
- Immobiliseer de muis met de hand. Zuig 200 μL CD4+ T-celsuspensie (2 × 10⁵-5 × 10⁵ cellen per muis) op in een spuit van 1 ml. Steek de naald in een hoek van 10-15° in de binnenste canthalader en zorg voor een nauwkeurige plaatsing. Injecteer de celsuspensie langzaam en gelijkmatig over 10-15 s.
- Nadat u de naald hebt teruggetrokken, drukt u voorzichtig 3-5 s op het binnenste canthalgebied met een steriel wattenstaafje om bloedingen te voorkomen.
- Plaats de muis in een rustige, droge en schone kooi om hem in de gaten te houden totdat hij weer volledig bij bewustzijn is, met een stabiele ademhaling en zonder abnormaal gedrag (zoals spiertrekkingen of plotselinge dood). Verplaats de muis naar een standaard behuizingskooi nadat u de stabiele postoperatieve status hebt bevestigd.
OPMERKING: Aangezien de binnenste canthale ader klein is, zijn een voorzichtige behandeling en een gecontroleerde infusiesnelheid van cruciaal belang om aderruptuur of celblokkade veroorzaakt door te hoge snelheid te voorkomen. - Noteer de details van de infusie en label het model en de controlegroep muizen (vier dieren per groep) om verwarring in volgende experimenten te voorkomen. Dien CD4+ T-cellen toe aan modelmuizen en laat controlemuizen onbehandeld. Zorg ervoor dat alle muizen ontvangende muizen zijn.
4. Stimulatie en inductie van mannan
- Voer mannaninductie uit op dag 4 (72 uur na CD4+ T-celinfusie). Pas dezelfde inductiecondities toe op alle experimentele en controlemuizen.
- Weeg het mannanpoeder af en los het op in steriel PBS tot een concentratie van 100 mg/ml.
- Houd de muis correct vast om zijn buik bloot te leggen. Desinfecteer de huid met 75% alcohol en identificeer de injectieplaats (~1 cm aan de zijkant van de middellijn van de buik).
- Meng de mannanoplossing grondig en zuig de juiste hoeveelheid (20-30 mg per muis) op in een spuit van 1 ml. Steek de naald in een hoek van 45° in de peritoneale holte en injecteer de oplossing langzaam om een gelijkmatige verdeling te garanderen. Trek de naald langzaam terug en druk voorzichtig enkele seconden op de injectieplaats met een steriel wattenstaafje om lekkage of infectie te voorkomen.
- Plaats de geïnjecteerde muis in een rustige en schone kooi en houd hem gedurende 5-10 minuten nauwlettend in de gaten om er zeker van te zijn dat er geen lekkage op de injectieplaats, opgezette buik of abnormale ademhaling is.
- Noteer de injectiegegevens voor elke muis in detail.
5. Afmetingen
- Observatie van klinisch fenotype
- Artritis symptoom scoren
- Voer elke 3 dagen na mannan-inductie gezamenlijke beoordelingen uit. Inspecteer alle gewrichten in de voor- en achterpoten, met speciale aandacht voor de knie-, enkel-, pols- en vinger-/teengewrichten. Scoor de ernst van de artritis aan de hand van standaardcriteria (tabel 1)17. Noteer en vergelijk de totale scores op elk tijdstip om de progressie van artritis te evalueren.
- Artritis symptoom scoren
- Registratie van weefselpathologische kenmerken
- Na een maand mannan-inductie euthanasie de muizen onder een steriele laminaire flowkap met behulp van CO2 -verstikking (volgens de richtlijnen van de ethische commissie), bevestig de muis op een schuimplaat en leg de achterpoten bloot. Snijd in de huid vanaf de enkel en pel omhoog om spieren en gewrichten bloot te leggen. Identificeer het enkelgewricht (tussen scheenbeen/kuitbeen en talus) en metatarsofalangeale gewrichten (tussen middenvoetsbeentjes en proximale vingerkootjes) en ontleed deze gewrichten voor histologische analyse en bereid paraffinesecties voor.
- Fixeer de uitgesneden weefsels gedurende 72 uur in 4% formaline en breng ze vervolgens over op 10% ethyleendiaminetetra-azijnzuur (EDTA, pH 7,4) gedurende 4 weken ontkalking om volledige ontkalking te garanderen.
- Was de tissues na het ontkalken met PBS om eventueel achtergebleven fixeermiddel te verwijderen en dehydrateer de tissues vervolgens door een graduele ethanolreeks (75%, 80%, 95%, 100%).
OPMERKING: Formaline kan de ogen, huid en luchtwegen irriteren. Het moet in een zuurkast worden behandeld. - Veranker het weefsel in paraffine met behulp van een paraffine-inbeddingsmachine. Gebruik een microtoom om het ingebedde weefsel in plakjes van 4 μm dik te snijden. Laat de secties drijven in een waterbad van 40 °C met gedestilleerd water.
- Breng de secties over en droog ze. Plaats de secties op glasplaatjes. Droog ze een nacht bij kamertemperatuur (RT). Bewaar de objectglaasjes bij RT om ze te kleuren.
- Hematoxyline en Eosine (H&E) kleuring
- Plaats de glaasjes gedurende 2 uur in een oven van 60 °C om de paraffine te verwijderen.
- Dompel de objectglaasjes bij kamertemperatuur elk 5 minuten onder in de volgende volgorde: xyleen → xyleen → 100% ethanol → 100% ethanol → 95% ethanol → 80% ethanol → 75% ethanol. Spoel 2 minuten af in gedestilleerd water.
- Kleur de objectglaasjes achtereenvolgens 5 minuten in een hematoxylineoplossing, spoel ze 2 minuten af in gedeïoniseerd water, behandel ze vervolgens 1 minuut met 0,1% ammoniak, spoel ze 3 x 2 minuten in gedeïoniseerd water, kleur ze 1 minuut met eosine en spoel ze ten slotte 2 minuten af in gedeïoniseerd water.
- Dompel de glaasjes elk 5 minuten onder in 80% ethanol → 95% ethanol → 100% ethanol → xyleen → xyleen.
- Droog de dia's op natuurlijke wijze aan de lucht en bevestig ze met neutrale hars.
- Safranin O-Fast Green kleuring
- Deparaffiniseer de paraffinesecties tot water en beits ze met behulp van een Van Gieson's vlekkenkit. Monteer de objectglaasjes na het kleuren met neutrale hars en maak beelden onder een microscoop (voorbereid in stap 5.2.5).
- Veranderingen in T-cellen en cytokinen
- Verwijder de milt van de muis met behulp van steriel chirurgisch gereedschap.
- Extraheer totaal RNA uit het miltweefsel met behulp van een RNA-extractiekit volgens de instructies van de fabrikant. Kwantificeer de RNA-concentratie en -zuiverheid met behulp van een spectrofotometer en zorg ervoor dat de A260/A280-verhouding tussen 1,8 en 2,0 ligt.
- Synthese van cDNA uit het geëxtraheerde RNA met behulp van een reverse transcriptiekit. Volg het protocol van de fabrikant voor de reactie-instelling en cyclusomstandigheden. Bewaar het cDNA bij -20 °C voor daaropvolgende qPCR-analyse.
- Voer qPCR uit: Meet relatieve mRNA-expressieniveaus van Tbx21, Gata3, Il-17 en Foxp3 in het miltweefsel werd gemeten met behulp van qPCR op basis van SYBR Green in reacties van 10 μL bevattende: 5 μL 2x SYBR Green mastermix, 0,2 μL elk van voorwaartse en achterwaartse primers (10 μM; sequenties in Tabel 2), 0,5-1 μL cDNA (50-100 ng/μL), en nucleasevrij water tot volume. Gebruik de volgende thermische cyclusomstandigheden: eerste denaturatie bij 95 °C gedurende 30 s, gevolgd door 40 cycli van 95 °C gedurende 10 s en 60 °C gedurende 30 s, met analyse van de smeltcurve (65-95 °C). Normaliseer de expressieniveaus naar Gapdh met behulp van de 2(-ΔΔCt) methode.
- Serumisolatie en cytometrische bead array (CBA) analyse
- Verzamel bloed van de muis met behulp van de orbitale bloedafname door middel van enucleatiemethode, breng het bloed over in een met anticoagulantia gecoate verzamelbuis en laat het 30 minuten op kamertemperatuur staan. Centrifugeer het gestold bloed gedurende 15 minuten bij 4 °C, 1.000 × g , verzamel voorzichtig het bovenstaande (serum) en bewaar het bij -80 °C tot analyse.
- Bepaal de expressieniveaus van IL-6, IL-10, IL-17, TNF-α en IFN-γ in het serum met behulp van een CBA-kit volgens de instructies van de fabrikant.
- Verwijder de milt van de muis met behulp van steriel chirurgisch gereedschap.
Resultaten
Klinische score van gewrichtszwelling en incidentie bij muizen
Figuur 1 toont de klinische score van gewrichtszwelling en de incidentie bij modelmuizen. De resultaten geven aan dat alle muizen in de modelgroep de ziekte ontwikkelden (n = 4), met een incidentie van 100%. De scores in de modelgroep stegen significant, vertoonden een korte verlichting in de tweede week en stegen vervolgens over een periode van 6 weken.
Manifestatie van gewrichtszwelling bij muizen
De gewrichten van muizen uit de modelgroep vertonen een significante verdikking en zwelling, waarbij ook merkbare zwelling en verdikking wordt waargenomen in de voor- en achterpoten (Figuur 2).
Pathologische resultaten van enkelgewrichten bij muizen
Pathologische resultaten geven aan dat in vergelijking met de controlegroep, de modelgroepmuizen een significante verdikking van het synovium in de enkelgewrichten, discontinuïteit in het bot en een duidelijke aggregatie van ontstekingscellen vertonen (Figuur 3, Figuur 4 en Figuur 5).
Serum T-cel-gerelateerde ontstekingsfactoren
Vergeleken met de controlegroep vertoonden de muizen van de modelgroep significante verhogingen van de serumspiegels van IL-10 (7,51 versus 2,15 pg/ml), TNF (78,83 versus 13,11 pg/ml), IL-17 (101,6 versus 12,64 pg/ml) en IFN-γ (5,15 versus 1,90 pg/ml) (p < 0,05). IL-6 nam ook significant toe in vergelijking met de controlegroep (15,59 versus 6,27 pg/ml) (p = 0,05, figuur 6).
Veranderingen in T-celsubsets Th1/2/17 en Tregs in de milt
De mRNA-expressieniveaus van Tbx21 (Th1), Gata3 (Th2), Il-17 (Th17) en Foxp3 (Tregs) werden gemeten om veranderingen in T-celsubsets in de milt te beoordelen. Deze genen coderen voor belangrijke transcriptiefactoren en cytokines die de differentiatie en functie van hun respectievelijke T-celsubsets bepalen. Vergeleken met de controlegroep vertoonden de muizen uit de modelgroep een significant verhoogde mRNA-expressie van Tbx21 (1,68 versus 0,61) en Il-17 (26,30 versus 0,75) in de milt (p < 0,05) ten opzichte van het referentiegen Gapdh.
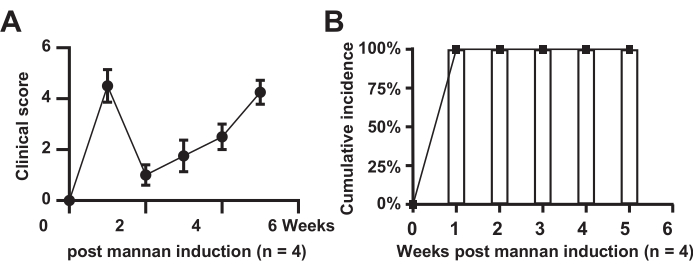
Figuur 1: Klinische score van gewrichtszwelling. (A) Modelgroep muizen; (B) Cumulatieve incidentie in de modelgroep muizen. Klik hier om een grotere versie van deze figuur te bekijken.
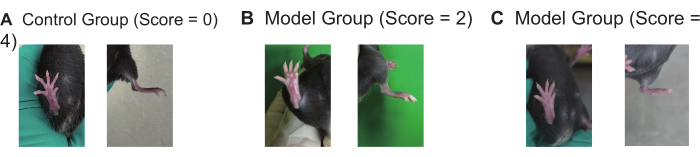
Figuur 2: Manifestaties van gewrichtszwelling bij controle- en modelmuizen (n = 4). (A-C) Representatieve beelden van zwellingsscores van poten en gewrichten (0,2,4) in de controle- en modelgroep van muizen. Klik hier om een grotere versie van deze figuur te bekijken.
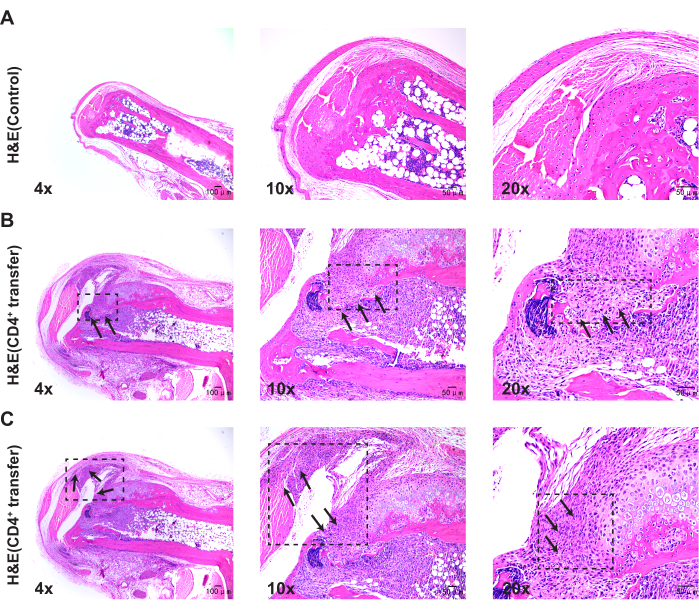
Figuur 3: Histologische veranderingen in de enkelgewrichten van controle- en modelgroepmuizen waargenomen met hematoxyline-eosinekleuring. (A) Controle enkelgewricht van muizen; (B) Discontinuïteit in het bot van het enkelgewricht van de modelgroep muis; (C) Synoviale proliferatie in de modelgroep muizenenkelgewricht. Schaalbalken = 50 μm (eerste kolom), 100 μm (tweede en derde kolom). De afbeeldingen in Fig. 3B en 3C zijn van dezelfde muis, die verschillende pathologische fenotypes vertonen. Klik hier om een grotere versie van deze figuur te bekijken.
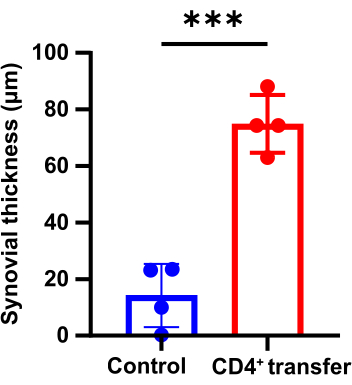
Figuur 4: Verschillen in synoviale dikte van de enkelgewrichten tussen de controlegroep en de modelgroep muizen (p < 0,05). Klik hier om een grotere versie van deze figuur te bekijken.
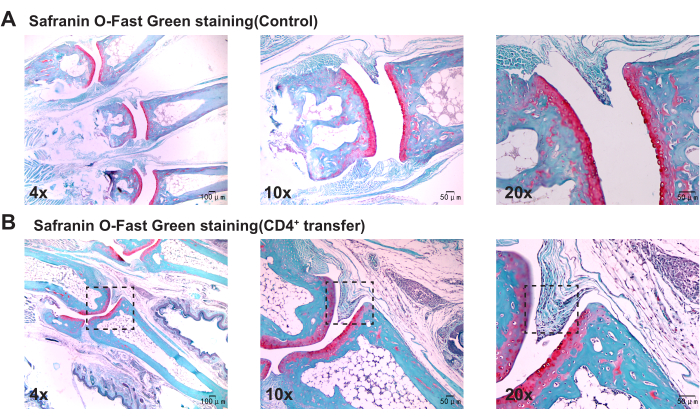
Figuur 5: Histologische veranderingen in de enkelgewrichten van controle- en modelgroepmuizen waargenomen met Safranin O-Fast Green-kleuring. (A) Enkelgewricht van de controlegroepmuis (B) Synoviale proliferatie in het enkelgewricht van de modelgroep muis. Schaalbalken = 50 μm (eerste kolom), 100 μm (tweede en derde kolom). Klik hier om een grotere versie van deze figuur te bekijken.
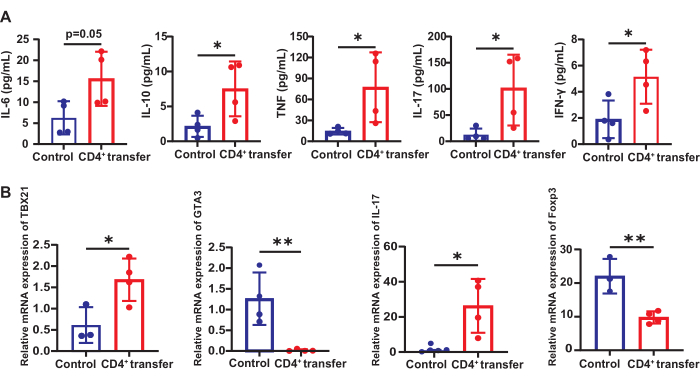
Figuur 6: Veranderingen in T-celgerelateerde ontstekingsfactoren en subsets in controle- en modelgroepmuizen. (A) Expressie van T-celgerelateerde ontstekingsfactoren in het serum van controle- en modelgroepmuizen en (B) de veranderingen in T-celsubsets Th1/2/17 en Tregs in de milt. *p < 0,05, **p < 0,01. Klik hier om een grotere versie van deze figuur te bekijken.
| Partituur | Zwelling (bereik 0-4) | Erytheem (bereik 0-2) |
| 0 | Geen | Geen |
| 1 | Elk cijfer | gering |
| 2 | Poot | Extreem |
| 3 | Pols/enkel | |
| 4 | Gehele ledemaat |
Tabel 1: Scorecriteria voor artritis. Om artritis te scoren, wordt elk ledemaat gescoord op basis van zwelling en erytheem, met een score van 0-6 toegewezen aan elk ledemaat. De scores voor alle vier de ledematen worden opgeteld om de totale artritisscore voor elke muis te genereren.
| Primer sequenties | |
| Oligo Naam | Sequentie 5' tot 3' |
| Tbx21-vooruit | AGCAAGGAGCGAATGTT |
| Tbx21-Achteruit | GGGTGGACATATAAGCGGTTC |
| Gata3-Vooruit | CTCGGCCATTCGTACATGGAA |
| Gata3-Omgekeerde | GGATACCTCTGCACCGTAGC |
| il-17a-vooruit | TTTAACTCCCTTGGCGCAAAA |
| il-17a-achteruit | CTTTCCCTCCGCATTGACAC |
| Foxp3-Vooruit | CCCTTGACCTCAAAACCAAG |
| Foxp3-Omgekeerd | GTGTGACTGCATGACTAACTAACTTTGA |
| Gapdh-Vooruit | GGTTGTCTCCTGCGACTTCA |
| Gapdh-Omgekeerde | TGGTCCAGGGTTTCTTACTCC |
Tabel 2: Lijst met inleidingsreeksen.
Aanvullende figuur S1: Poortstrategie voor het sorteren van CD4+ T-cellen door middel van flowcytometrie. Klik hier om dit bestand te downloaden.
Discussie
De ontwikkeling van RA is nauw verbonden met abnormale infiltratie van immuuncellen in het synoviale weefsel, waarbij de ontregelde activering van deze immuuncellen leidt tot de afgifte van verschillende pro-inflammatoire cytokines, die verder bijdragen aan de schade aan synoviale en gewrichtsstructuren18,19. Verschillende RA-diermodellen zijn uitgebreid beoordeeld, waaronder het CIA-model, het K/BxN-model en SKG-muizen 13,20,21. Hoewel deze modellen met succes de immuunmechanismen en klinische manifestaties van RA repliceren, hebben ze allemaal aanzienlijke beperkingen. Het CIA-model in C57BL/6-muizen heeft bijvoorbeeld een lager slagingspercentage, een langere aanvangsperiode en wordt aanzienlijk beïnvloed door omgevings- en experimentele omstandigheden, waardoor het in bepaalde experimentele omgevingen minder praktisch is. SKG-muizen vertegenwoordigen een RA-muismodel op basis van een ZAP-70-genmutatie, die een abrupte anomalie in de signalering van T-celreceptor (TCR) veroorzaakt en auto-immuunartritis induceert22. Dit model is echter duur en de reproduceerbaarheid van experimentele resultaten wordt gemakkelijk beïnvloed door de inductieomstandigheden. K/BxN is een model voor erfelijke artritis dat wordt geactiveerd door de coöperatieve activiteit van T- en B-cellen, die een uitgesproken immuunrespons vertoont23. Toch is het construeren van dit model kostbaar en is de specificiteit ervan beperkt, wat leidt tot een beperkte immuunrespons die het veelzijdige pathologische proces van menselijke RA niet volledig kan vatten. Daarom is het van groot belang om een diermodel te ontwikkelen dat de belangrijkste pathologische kenmerken van RA kan repliceren, aan verschillende experimentele vereisten kan voldoen en een hoge reproduceerbaarheid kan garanderen.
In deze studie presenteren we een methode voor het opzetten van een RA-model door de adoptieve overdracht van adaptieve CD4+ T-cellen van SKG-muizen. De constructie van dit model is gebaseerd op de selectie van CD4+ T-cellen van SKG-muizen met een C57/BL6-achtergrond en de inductie van mannan, een proces dat het succes van het model garandeert. Het is algemeen bekend dat SKG-muizen met een BALB/c-achtergrond drager zijn van een spontane ZAP70-genmutatie (W163C), die abnormale TCR-signaleringsselectie veroorzaakt, wat leidt tot zeer zelfreactieve T-cellen24. Dit resulteert in overmatige activering van T-cellen en het begin van synovitis en gewrichtsvernietiging, waardoor belangrijke pathologische processen van RA worden nagebootst, zoals synoviaal herstel en activering van immuuncellen25,26. De klinische kenmerken van SKG-muizen lijken sterk op die van menselijke RA-patiënten.
Om deze mutatie in de C57BL/6-achtergrond te introduceren, hebben we CRISPR/Cas9-technologie gebruikt om met succes een C57BL/6-achtergrond SKG-muismodel te genereren dat de ZAP70 (W163C)-mutatie draagt. CRISPR/Cas9 biedt een hoge precisie en efficiëntie, waardoor de gerichte introductie van de gewenste mutatie mogelijk is, terwijl een lage snelheid van off-target insertie of ongewenste genetische modificaties in verband met traditionele willekeurige inductiemethoden behouden blijft, waardoor de stabiliteit en uniciteit van het model worden gewaarborgd27,28. Wat nog belangrijker is, deze techniek verkort ook de tijd die nodig is voor modelbouw aanzienlijk, waardoor zowel de beheersbaarheid als de efficiëntie van de modelontwikkeling worden verbeterd. Met behulp van dit model kunnen we de T-cel-gemedieerde synovitis en gewrichtsvernietiging van RA nauwkeurig repliceren tegen een C57BL/6-achtergrond. Vergeleken met de BALB/C-achtergrond in traditionele SKG-muizen hebben modelmuizen met een C57BL/6-achtergrond een bredere toepasbaarheid in immunologisch onderzoek en kunnen ze gemakkelijker worden gecombineerd met andere transgene modellen (bijv. Rag1-/- of IL17-/-). Dit maakt ze geschikt voor het onderzoeken van de rol van de ZAP70-mutatie bij RA en andere auto-immuunziekten zoals systemische lupus erythematosus of multiple sclerose.
Op basis van de centrale rol29,30 van CD4+ T-cellen in RA-activering, hebben we ze geselecteerd als sleutelbemiddelaars. T-cellen zijn de primaire aanjagers van immuunresponsen bij RA en kunnen direct synoviale schade veroorzaken door Th1/Th17-effectorsubsets31 te activeren, afhankelijk van ontstekingsfactoren zoals IL-6, IL-17 en TNF-α32,33. Als cruciale mediatoren van immuunregulatie scheiden CD4+ T-cellen pro-inflammatoire cytokines af, waardoor de ontstekingscascade wordt geactiveerd en in stand gehouden, wat leidt tot synoviale proliferatie en gewrichtsschade, waardoor de pathologische progressie van RA direct wordt bevorderd. Ze spelen een belangrijke rol bij het helpen van B-cellen bij de productie van specifieke antilichamen (bijv. ACPA)34. Ondertussen is het typische histopathologische kenmerk van het RA-synovium de aggregatie van CD4+ T-cellen. Bepaalde klasse II major histocompatibility complex (MHC)-genen, vooral de "gedeelde epitopen" gerelateerd aan humaan leukocytenantigeen-DR-isotype (HLA-DR), worden beschouwd als nauw verbonden met de pathogenese van RA35. Bovendien heeft de strategie van het blokkeren van co-stimulatie van T-cellen met cytotoxisch T-lymfocyt-geassocieerd antigeen 4 (CTLA4)-Ig een significante klinische werkzaamheid aangetoond bij RA36. Bovendien dient mannan-inductie als een krachtige activator voor het model, waardoor de activering van aangeboren immuuncomponenten zoals dendritische cellen en macrofagen wordt bevorderd37. Deze stap vergemakkelijkt verder de activering van CD4+ T-cellen en immuunresponsen, waardoor de aanval van het immuunsysteem op eigen weefsels aanzienlijk wordt verhoogd, waardoor de pathologische kenmerken van immuunontregeling en synoviale schade bij RA worden gesimuleerd.
Na voltooiing van de modelinductie voerden we een systematische verificatie van de modelgroep uit met behulp van meerdere parameters, waaronder klinische score van gewrichtszwelling, pathologische validatie (observatie van synovitisweefselpathologie en kenmerken van gewrichtsvernietiging) en immunologische validatie (expressie van Th1/2/17 en Treg-cellen in serum en milt). De resultaten toonden aan dat ons model met succes T-cel-gemedieerde synovitis en gewrichtsvernietiging bij RA repliceerde, waarbij karakteristieke immuunactivering en synoviale pathologische veranderingen werden geïnduceerd die consistent zijn met de belangrijkste pathofysiologische mechanismen van RA, met een prevalentie van 100%. Het is opmerkelijk dat in ons model de klinische score voor gezwollen gewrichten van muizen piekt na 1 week, een duidelijke vermindering vertoont in de tweede week en vervolgens geleidelijk weer stijgt in latere stadia, wat niet helemaal in overeenstemming is met het typische ziekteverloop dat wordt waargenomen in conventionele diermodellen met artritis38. Dit kan zijn omdat, 1 week na inductie, het immuunsysteem in de modelmuizen zich in een intens geactiveerde beginfase bevindt door de injectie van mannan, wat resulteert in een piek van gewrichtsontsteking. In de tweede week leiden immuunregulatie en zelfherstelmechanismen tot een tijdelijke verlichting van klinische symptomen. Naarmate de ziekte vordert, neemt de immuuntolerantie geleidelijk af en wordt de immuunrespons opnieuw geïntensiveerd, wat zich manifesteert door een geleidelijke verslechtering van de aandoening in latere stadia.
Hoewel dit model relatief eenvoudig is in vergelijking met andere modellen, zijn er nog steeds een aantal belangrijke punten die tijdens het modelleringsproces moeten worden aangepakt. Ten eerste vormen de activiteit en zuiverheid van CD4+ T-cellen van SKG-muizen de basis voor het succes van het model. De zuiverheid van de cellen moet meer dan 90% bedragen om de consistentie en betrouwbaarheid van de experimentele resultaten te garanderen. Ten tweede moet de snelheid van injectie in de mediale canthale ader zorgvuldig worden gecontroleerd om aderruptuur door te snel injecteren of cellekkage door te langzaam injecteren te voorkomen. Bovendien is de selectie van de celdosis van cruciaal belang. Een te lage dosis kan leiden tot falen van het model, terwijl een te hoge dosis niet-specifieke ontstekingsreacties kan veroorzaken. Daarom moet tijdens het modelleringsproces de algehele toestand van de muizen nauwlettend worden gevolgd en moeten eventuele abnormale symptomen onmiddellijk worden geregistreerd om een vlot verloop van het experiment en de wetenschappelijke validiteit van de gegevens te garanderen.
In vergelijking met conventionele modellen heeft dit model een kortere vestigingsperiode, bereikt het een hogere incidentie bij C57BL/6-muizen en blijft het relatief kosteneffectief en eenvoudig te bedienen. Door de overdracht van autoreactieve CD4+ T-cellen nauwkeurig te reproduceren, worden T-celgemedieerde immuunresponsen gereproduceerd en worden de belangrijkste pathologische kenmerken van RA vastgelegd, zoals zwelling en schade aan gewrichten. Bovendien sluiten de klinische manifestaties goed aan bij die van menselijke RA, waardoor een meer authentieke weerspiegeling wordt geboden van de klinische en pathologische processen van RA. Bovendien verbetert de combinatie van mediale canthale aderinfusie en mannaninductie de controleerbaarheid en experimentele stabiliteit van het model, waardoor het zeer reproduceerbaar is en een uitstekende experimentele controle biedt. Natuurlijk heeft dit model nog steeds beperkingen. Het richt zich voornamelijk op T-celgestuurde immuunresponsen; de simulatie van de collaboratieve rol van B-cel-gemedieerde antilichaamresponsen en andere immuuncellen (zoals natural killer (NK) cellen en Treg-cellen) is onvoldoende, waardoor het een uitdaging is om de meercellige pathologische mechanismen van RA volledig weer te geven. Desalniettemin blijft dit RA-muismodel een stabiel en betrouwbaar diermodel, dat onderzoekers een beter platform biedt om T-cel-gemedieerde immuunresponsen en de belangrijkste pathologische kenmerken van RA te simuleren. Dit model stelt onderzoekers in staat om diep in te gaan op de immuunmechanismen en pathologische progressie van RA, en biedt belangrijk experimenteel bewijs en hulpmiddelen voor de ontwikkeling van nieuwe therapieën, met name bij het begrijpen van T-celgestuurde immuunontregeling en het identificeren van therapeutische doelen.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te onthullen.
Dankbetuigingen
Dit werk werd ondersteund door subsidies van de National Natural Science Foundation of China (82270903, 82401588 en 81974254) en de China Postdoctoral Science Foundation (2024M751019).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Agarose | Yeasen | 10208ES60 | Bereid agarose-gel voor gebruik in DNA-elektroforese-experimenten |
| Anhydrous ethanol | Shanghai HuShi Laboratory Instruments Co., Ltd. | 100009218 | Ontwaterings- en fixeermiddel |
| ZAP 70 primers | Tsingke | Primer gebruikt voor het detecteren van ZAP70-genexpressie, veel gebruikt in PCR-experimenten voor genotypering van muizen | |
| 0.5 M EDTA-oplossing (pH = 7.4) | Biosharp | R00521 | Wordt gebruikt voor decalcificatie om de kwaliteit van weefselsecties en kleuring voor calciumbevattende weefsels te garanderen, met behoud van de structurele integriteit van het weefsel |
| 1.5 mL enzymvrije ep-buisjes | LABSELECT | MCT-001-150-S | Gebaat voor een verscheidenheid aan experimenten zoals monsteropslag, centrifugale scheiding, etc |
| 2x Q3 SYBR qPCR Master Mix (Universal) | ToloBio | 22204 | Wordt gebruikt voor het uitvoeren van zeer specifieke en zeer gevoelige qPCR-reacties. |
| 2x Magic Green Taq SuperMix | TOLOBIO | 21502-04 | Bufferoplossing voor pre-elektroforese |
| 4% Formaldehyde (paraformaldehyde) oplossing | Biosharp | BL539A | Wordt gebruikt als fixeermiddel om weefselstructuur en cellulaire morfologie te behouden, waardoor stabiele en goed geconserveerde monsters worden verkregen voor volgende kleuringsstappen |
| Kit voor isolatie van totaal RNA uit dierlijk weefsel/cellen | Servicebio | MPC2409122 | Extractie van totaal RNA uit dierlijk weefsel/cellen |
| BD Cytometric Bead Array (CBA) Mouse Th1/Th2/Th17 Cytokine Kit | BD Biosciences | 560485 | Meet de expressie van Th1/2/17 cytokinen in muizenserum. |
| Celkweekschaal | LABSELECT | 12211 | Een container voor celvloeistof uit de milt en lymfeklieren |
| Dimethylbenzeen | China National Pharmaceutical Group Chemical Reagents Co., Ltd. | 10023418 | Gebruikt als ontparaffinerings- en clearingmiddel |
| Easyfive zespoors celtellingskamer | CytoEasy | N3EF110 | Gebaat voor celtelling |
| Verbeterde Safranine O-Fast Green kleuringsoplossing voor kraakbeen. | Solarbio | G1371 | Kleur kraakbeen en botweefsels om pathologische veranderingen in het gewrichtsgebied te observeren. |
| Glijplaatje | CITOTEST | 188105 | Basisondersteuning voor weefselsneden |
| Hematoxylline kleuringsoplossing | Servicebio | G1005-1 | Kleuren |
| Hematoxylline kleuringsoplossing | Servicebio | G1001 | Kleuren |
| Laagsnelheids gekoelde centrifuge | Cence | F14300021010004 | Wordt gebruikt voor centrifugeren en precipitatie |
| Mannaan | Sigma | m7504 | Activeerder voor het model. Los op in steriele PBS op 2 mg/mL, meng grondig en filter door een 0.22 μm membraan om eventuele deeltjes of mogelijke bronnen van besmetting te elimineren. |
| MojoSort Magneet | Biolengend | 480019 | Gebaat voor het isoleren en zuiveren van CD4+ T-cellen uit milt, lymfeklieren van muizen |
| MojoSort Mouse CD4 T Cell Isolation Kit | Biolengend | 480033 | Gebaat voor het isoleren en zuiveren van CD4+ T-cellen uit milt, lymfeklieren van muizen. Gebruik een negatieve selectiemethode die direct bindt aan het CD4-molecuul om CD4+ T-cellen te isoleren, waardoor de integriteit van oppervlakte-antigenen behouden blijft zonder de functionaliteit van het CD4-molecuul te beïnvloeden, waardoor het geschikt is voor CD4+ T-cellen infusie experimenten. |
| Nano-300 | ALLSHENG | AS-11020-00 | Accurate detectie van nucleïnezuren, eiwitten en cellulaire oplossingen |
| Neutraal harsmontagemiddel | Biosharp | BL704A | Fixeren en bewaren van gekleurde weefselsecties |
| Paraffine microtoom | KEDEE | KD-3389 | Gebaat voor paraffine-secties |
| Fosfaat-gebufferde zoutoplossing (PBS) | Pricella | WHB824P281 | Wordt gebruikt als bufferoplosmiddel of reinigingsmiddel, |
| Steriele celfilter (70 µm) | Biosharp | BS-70-CS | Verwijder grote onzuiverheden of geaggregeerde celclusters uit de celsuspensie om de monsterzuiverheid en celuniformiteit te garanderen |
| Steriele spuit (1 mL) | Lingyang Medical Apparatus | 20241020 | Injectie in de inner canthal ader |
| Tabeltop hoge snelheids microgekoelde centrifuge | SCILOGEX | S1010E | Gebaat voor centrifugeren en precipitatie |
| TEA-buffer (50x) | Yeasen | 60116ES76 | Stabiliseert pH, helpt bij het beschermen en bewaren van moleculen zoals DNA en RNA, gebruikt in elektroforese-experimenten |
| ToloScript All-in-one RT EasyMix voor qPCR | ToloBio | 22107 | Gebaat om RNA-sjablonen om te zetten in cDNA, vergemakkelijkt daardoor verdere genexpressieanalyse, qPCR en andere moleculaire biologie-experimenten. |
| Transefer Pipettes | BIOFIL | 240515-133-A | Gebaat voor het overbrengen van oplossingen |
| Trypan blauw kleuroplossing | Biosharp | 7009529 | Wordt veel gebruikt voor celviabiliteitstests, helpt bij het onderscheiden van levende cellen van dode cellen |
Referenties
- Global, regional, and national burden of rheumatoid arthritis, 1990-2020, and projections to 2050: A systematic analysis of the global burden of disease study. Lancet Rheumatol. 5 (10), e594-e610 (2021).
- Radu, A. F., Bungau, S. G. Management of rheumatoid arthritis: An overview. Cells. 10 (11), 2857(2021).
- Di Matteo, A., Bathon, J. M., Emery, P. Rheumatoid arthritis. Lancet. 402 (10416), 2019-2033 (2023).
- Bernard, L., et al. Management of patients with rheumatoid arthritis by telemedicine: Connected monitoring. A randomized controlled trial. Joint Bone Spine. 89 (5), 105368(2022).
- Jang, S., Kwon, E. J., Lee, J. J. Rheumatoid arthritis: Pathogenic roles of diverse immune cells. Int J Mol Sci. 23 (2), 905(2022).
- Daikh, D. I. Rheumatoid arthritis: Evolving recognition of a common disease. Best Pract Res Clin Rheumatol. 36 (1), 101740(2022).
- Bhamidipati, K., Wei, K. Precision medicine in rheumatoid arthritis. Best Pract Res Clin Rheumatol. 36 (1), 101742(2022).
- Meyer, A., Parmar, P. J., Shahrara, S. Significance of IL-7 and IL-7R in RA and autoimmunity. Autoimmun Rev. 21 (7), 103120(2022).
- Yu, X., et al. Synergistic induction of CCL5, CXCL9 and CXCL10 by IFN-γ and NLRS ligands on human fibroblast-like synoviocytes-a potential immunopathological mechanism for joint inflammation in rheumatoid arthritis. Int Immunopharmacol. 82, 106356(2020).
- Wu, X., et al. Single-cell sequencing of immune cells from anticitrullinated peptide antibody positive and negative rheumatoid arthritis. Nat Commun. 12 (1), 4977(2021).
- Wei, X., Niu, X. T follicular helper cells in autoimmune diseases. J Autoimmun. 134, 102976(2023).
- Mcelwee, M. K., Dileepan, T., Mahmud, S. A., Jenkins, M. K. The CD4+ T cell repertoire specific for citrullinated peptides shows evidence of immune tolerance. J Exp Med. 220 (12), e20230209(2023).
- Ahmed, S., et al. Dual inhibition of glycolysis and glutaminolysis for synergistic therapy of rheumatoid arthritis. Arthritis Res Ther. 25 (1), 176(2023).
- Wu, J., et al. Tnf antagonist sensitizes synovial fibroblasts to ferroptotic cell death in collagen-induced arthritis mouse models. Nat Commun. 13 (1), 676(2022).
- Huo, F., Hou, J., Zhu, Y., Feng, Z. ferroptosis inducer ike ameliorate pulmonary fibrosis in collagen-induced arthritis (CIA) mice via decreasing the expression of IL-6, CCL5 and CXCL9. Xi Bao Yu Fen Zi Mian Yi Xue Za Zhi. 40 (2), 114-120 (2024).
- Sun, H., et al. ID2 exacerbates the development of rheumatoid arthritis by increasing IFN-γ production in CD4+ T cells. Clin Transl Med. 15 (3), e70242(2025).
- Murayama, M. A., et al. CTRP6 is an endogenous complement regulator that can effectively treat induced arthritis. Nat Commun. 6, 8483(2015).
- Kadura, S., Raghu, G. Rheumatoid arthritis-interstitial lung disease: Manifestations and current concepts in pathogenesis and management. Eur Respir Rev. 30 (160), 210011(2021).
- Mueller, A. L., et al. Recent advances in understanding the pathogenesis of rheumatoid arthritis: New treatment strategies. Cells. 10 (11), 3017(2021).
- Sun, H., et al. Gut commensal parabacteroides distasonis alleviates inflammatory arthritis. Gut. 72 (9), 1664-1677 (2023).
- Li, Z. Y., Zhou, J. J., Luo, C. L., Zhang, L. M. Activation of tgr5 alleviates inflammation in rheumatoid arthritis peripheral blood mononuclear cells and in mice with collagen II-induced arthritis. Mol Med Rep. 20 (5), 4540-4550 (2019).
- Mccarthy, E. E., et al. Endogenous antigens shape the transcriptome and TCR repertoire in an autoimmune arthritis model. J Clin Invest. 135 (2), e174647(2024).
- Chen, J., et al. Annexin A1 attenuates cardiac diastolic dysfunction in mice with inflammatory arthritis. Proc Natl Acad Sci U S A. 118 (38), e2020385118(2021).
- Owada, T., et al. LAT1-specific inhibitor ameliorates severe autoimmune arthritis in skg mouse. Int Immunopharmacol. 109, 108817(2022).
- Zhang, A., et al. Nrf2 activation improves experimental rheumatoid arthritis. Free Radic Biol Med. 207, 279-295 (2023).
- Sakaguchi, N., et al. Altered thymic T-cell selection due to a mutation of the ZAP-70 gene causes autoimmune arthritis in mice. Nature. 426 (6965), 454-460 (2003).
- Van Hees, M., et al. New approaches to moderate CRISPR-Cas9 activity: Addressing issues of cellular uptake and endosomal escape. Mol Ther. 30 (1), 32-46 (2022).
- Tyumentseva, M., Tyumentsev, A., Akimkin, V. CRISPR/Cas9 landscape: Current state and future perspectives. Int J Mol Sci. 24 (22), 16077(2023).
- Wu, F., et al. B cells in rheumatoid arthritis: pathogenic mechanisms and treatment prospects. Front Immunol. 12, 750753(2021).
- Dunlap, G., et al. Clonal associations between lymphocyte subsets and functional states in rheumatoid arthritis synovium. Nat Commun. 15 (1), 4991(2024).
- Okamoto, K., Takayanagi, H. Effect of T cells on. Bone. 168, 116675(2023).
- Wang, X. Q., et al. Dopamine D2 receptor on CD4+ T cells is protective against inflammatory responses and signs in a mouse model of rheumatoid arthritis. Arthritis Res Ther. 25 (1), 87(2023).
- Wang, X. Q., Liu, Y., Cai, H. H., Peng, Y. P., Qiu, Y. H. Expression of tyrosine hydroxylase inCD4+ T cells contributes to alleviation of Th17/Treg imbalance in collagen-induced arthritis. Exp Biol Med (Maywood). 241 (18), 2094-2103 (2016).
- Anaparti, V., et al. Increased frequency of TIGIT+ CD4 T cell subset in autoantibody-positive first-degree relatives of patients with rheumatoid arthritis. Front Immunol. 13, 932627(2022).
- Lei, Y., et al. Synovial microenvironment-influenced mast cells promote the progression of rheumatoid arthritis. Nat Commun. 15 (1), 113(2024).
- Jinno, S., et al. Comparison of retention of biologics in Japanese patients with elderly-onset rheumatoid arthritis-the answer cohort study. Rheumatology (Oxford). 64 (2), 509-516 (2025).
- Hagert, C., et al. Rapid spread of mannan to the immune system, skin and joints within 6 hours after local exposure. Clin Exp Immunol. 196 (3), 383-391 (2019).
- Cheng, W. J., et al. Deer velvet antler extracts exert anti-inflammatory and anti-arthritic effects on human rheumatoid arthritis fibroblast-like synoviocytes and distinct mouse arthritis. Am J Chin Med. 50 (6), 1617-1643 (2022).
Herprints en machtigingen
