Cellijnen zijn nuttig bij studies naar intracellulaire organismen die niet buiten hun gastheercellen kunnen worden gekweekt. Hoewel met Wolbachia geïnfecteerde lijnen veel ontdekkingen mogelijk hebben gemaakt, kan de heterogeniteit binnen deze lijnen leiden tot variabele experimentele resultaten. We presenteren een protocol voor het genereren van eencellige klonen en continue culturen van met Wolbachia geïnfecteerde JW18-cellen.
Methodenartikel
Generatie van monoklonale culturen uit met Wolbachia geïnfecteerde Drosophila melanogaster JW18-cellijn
In dit artikel
Samenvatting
Samenvatting
Cellijnen zijn veelgebruikte modellen in biologisch onderzoek. Ze zijn vooral nuttig bij studies van intracellulaire bacteriën die niet efficiënt kunnen worden vermeerderd buiten gastheerorganismen. Wolbachia, een intracellulaire symbiont van veel ongewervelde dieren, induceert sterke reproductieve en antivirale effecten bij zijn insectengastheren. Met Wolbachia geïnfecteerde insectencellen worden veel gebruikt om Wolbachia-fenotypes te bestuderen. Deze cellijnen bestaan echter vaak uit gemengde populaties van cellen met mogelijk verschillende fenotypes en reacties op experimentele behandelingen. In het bijzonder is gemeld dat cellijnen met Wolbachia variabele groeisnelheden en variabele prevalentie van Wolbachia-infectie vertonen van de ene passage naar de andere. Om dit te verhelpen, hebben we monoklonale cellijnen gegenereerd uit de met Wolbachia geïnfecteerde Drosophila melanogaster-afgeleide JW18-cellijn. Deze klonale lijnen zijn op verschillende tijdstippen vastgesteld en vertonen verschillende Wolbachia-infectiestatussen . Deze variabiliteit suggereert dat elke behandeling die wordt toegepast op een ouderlijke JW18-populatie zou kunnen leiden tot de selectie van subpopulaties in plaats van het beïnvloeden van de fysiologie van de hele cultuur. Hier presenteren we een protocol voor het genereren van eencellige klonen en continue klonale culturen uit met Wolbachia geïnfecteerde insectencellen, waardoor meer gecontroleerde en reproduceerbare experimenten mogelijk worden.
Inleiding
Drosophila melanogaster-cellen worden veel gebruikt in genetische studies, ziekteonderzoek en als platform voor high-throughput screening van geneesmiddelen1. Ze zijn ook nuttig bij het bestuderen van een van de meest voorkomende intracellulaire microben ter wereld: Wolbachia. Wolbachia is een gramnegatieve obligate intracellulaire bacterie die voorkomt in 40-70% van de insectensoorten 2,3,4, waar het zich moederlijk verspreidt en reproductieve manipulaties induceert 5,6,7,8. Wolbachia kan geïnfecteerde gastheren ook voorzien van antivirale bescherming 9,10,11,12,13,14,15 die samen met reproductieve manipulaties wordt uitgebuit om de overdracht van arbovirussen van muggen op mensen te beheersen 16,17. In verschillende systemen is aangetoond dat Wolbachia apoptose18 onder controle houdt, essentiële voedingsstoffen levert19 en de gen- en eiwitexpressie verandert 20,21,22,23,24,25.
Cellijnen kwamen naar voren als een model om Wolbachia te bestuderen vanwege hun eenvoudige biologie, gemak en het vermogen om zich in grote hoeveelheden voort te planten. Cellijnen zijn nuttig gebleken bij het vooraf aanpassen van Wolbachia aan symbiose met nieuwe gastheren26 en het toestaan van Wolbachia om mutaties te accumuleren27,28. Ze werden gebruikt om te screenen op anti-Wolbachia-verbindingen, die nuttig kunnen zijn bij de behandeling van filariale ziekten29 en het bestuderen van de translatie-interactie tussen Wolbachia en de gastheer30. Hoewel cellijnen onmisbaar zijn in studies naar Wolbachia-symbioses 29,30,31, blijven de mechanismen die ten grondslag liggen aan de meeste Wolbachia-fenotypes onbekend. Dit suggereert dat het celkweekmodelsysteem nog voor verbetering vatbaar is.
Met Wolbachia geïnfecteerde insectencellijnen zijn afgeleid van insectenembryo's en -larven. Aa23, afgeleid van Aedes albopictus-embryo's, was de eerste stabiele Wolbachia-geïnfecteerde lijn32, die vervolgens werd gebruikt voor vele onderzoeken naar Wolbachia-symbiose 33,34,35. De JW18-cellijn was een van de eerste natuurlijk met Wolbachia geïnfecteerde lijnen die werden gegenereerd uit D. melanogaster29,36. Deze lijn, afgeleid van 1 uur tot 15 uur embryo's van wMel-geïnfecteerde vliegen, heeft ook gediend als een bron van Wolbachia voor andere Drosophila-cellijnen: 1182-4H en S2R+37. Omdat embryo's een hoog aandeel pluripotente cellen hebben, kunnen ze, door zich aan te passen aan groei in plastic, nieuwe eigenschappen krijgen, soms verschillend voor individuele cellijnen. Dit kan de heterogeniteit van celmorfologieën en Wolbachia-infectiefrequenties verklaren die op een bepaald moment en gedurende generaties in deze cellen zijn waargenomen29.
De cellulaire diversiteit binnen de JW18-cultuur geeft aanleiding tot bezorgdheid, aangezien studies naar muggencellijnen, zoals Aag2, hebben aangetoond dat monoklonale en ouderlijke cellijnen anders kunnen reageren op behandelingen als gevolg van variaties in celkenmerken38. Bijgevolg kan het toedienen van behandelingen aan een populatie met gemengde cellen misleidende resultaten opleveren. Om de respons van een homogene celpopulatie op een behandeling te bestuderen (niet selectie voor individuele celtypen), hebben we monoklonale culturen gegenereerd uit de ouderlijke JW18-cellijn. Er zijn geen eerdere pogingen gedaan om monoklonale culturen uit deze cellen te genereren. Het protocol omvat het isoleren van afzonderlijke cellen uit de ouderlijke JW18-cellijn, gevolgd door hun onderhoud en overplaatsing naar kolven om continue klonale culturen tot stand te brengen. We controleerden de Wolbachia-infectiestatus van individuele lijnen en toonden aan dat ze verschillen in dit belangrijke kenmerk. Homogene celculturen zijn van cruciaal belang om de nauwkeurigheid en reproduceerbaarheid van toekomstige experimenten te waarborgen.
Protocol
OPMERKING: Alle werkzaamheden met levende cellen en hun media moeten worden uitgevoerd in een biologische veiligheidskast om besmetting te voorkomen.
1. Voorbereiding van de media
- Bereid vers Culture Medium door Shield and Sang Insect medium aan te vullen met 10% foetaal runderserum (FBS).
- Gebruikte en geconditioneerde media
- Kweek JW18 cellen in een 25 cm2 kolf met verse Shield en Sang Insect medium aangevuld met 10% FBS bij 25 °C. Incubeer totdat de cellen samenvloeien (~1 week).
- Filter het 1 week oude gebruikte celkweekmedium dat wordt gebruikt om de cellen te laten groeien, om Wolbachia, celresten en andere verontreinigingen te verwijderen: gebruik een steriel filter van 5 μm en vervolgens een steriel filter van 0,2 μm dat op een spuit van 50 ml is gemonteerd.
- Bereid geconditioneerd medium voor door vers medium aan te vullen met 20% van het gebruikte medium. Bereid voldoende geconditioneerd medium voor een plaat met 96 putjes (~30 ml); meng met behulp van een serologische pipet 6 ml van het gefilterde medium met 24 ml vers Shield en Sang Insect medium aangevuld met 10% FBS.
2. Voorbereiding van de plaat met 96 putjes
- Bereiding van JW18-celsuspensie
- Schraap de cellen uit een samenvloeiende kolf van 1 week oud met behulp van een celschraper en suspendeer ze opnieuw met een serologische pipet.
- Tel de cellen met behulp van een Neubauer-kamer en verdun ze met geconditioneerd medium om een eindconcentratie van 2 x 10³ cellen/ml te bereiken.
- Geconditioneerd medium toevoegen aan de plaat
- Breng het voorbereide geconditioneerde medium over naar een reagensreservoir.
- Voeg met behulp van een meerkanaalspipet 100 μl geconditioneerd medium toe aan elk putje van de plaat met 96 putjes, behalve putje A1.
- Seriële verdunning van de celsuspensie
- Voeg 200 μL van de celsuspensie toe aan putje A1.
- Breng met behulp van een enkelkanaalspipet 100 μL over van putje A1 naar putje B1 en meng voorzichtig (vermijd luchtbellen) zoals in figuur 1A.
- Herhaal de seriële verdunning in kolom 1 en gooi de laatste 100 μl uit het laatste putje weg.
- Verdunning over de plaat
- Voeg 100 μL geconditioneerd medium toe aan elk putje in de eerste kolom, tot een totaal volume van 200 μL. Meng voorzichtig.
- Breng met behulp van de meerkanaalspipet 100 μl over van de eerste kolom naar de tweede. Meng voorzichtig.
- Herhaal dit proces voor alle kolommen (1-12) op de plaat (Figuur 1A).
- Gooi na de resuspensie 100 μl uit de laatste kolom weg. Op dit punt bevat elk putje 100 μL celsuspensie.
- Voeg nog eens 100 μL kweekmedium toe aan alle putjes, zodat het uiteindelijke volume in elk putje op 200 μL komt.
3. Identificatie van afzonderlijke cellen
- Dek de plaat af, sluit deze af met parafilm en label deze op de juiste manier.
- Bekijk de plaat onder een microscoop en controleer elk putje zorgvuldig op afzonderlijke cellen (Figuur 1B). Zorg ervoor dat u de putjes en de randen grondig scant om de aanwezigheid van slechts één cel te bevestigen.
OPMERKING: Dit is een van de meest kritieke stappen in het protocol. - Noteer het aantal afzonderlijke cellen op een plaatkaart met 96 putjes (op papier).
OPMERKING: De kans is groter dat afzonderlijke cellen worden aangetroffen in putjes aan de rechter- en onderkant van de plaat. - Zodra de afzonderlijke cellen zijn geïdentificeerd en gemarkeerd, bewaart u de plaat in een broedmachine bij 25 °C. Controleer de cellen elke 2 dagen.
4. Onderhoud en overdracht van cellen
- Cel monitoring
OPMERKING: JW18-cellen hebben doorgaans 3 dagen nodig om zich te delen van een enkele cel, en klonale populaties kunnen met verschillende snelheden groeien (Figuur 2).- Controleer de putjes elke 2-3 dagen op bacteriële besmetting en om ervoor te zorgen dat het medium niet is uitgedroogd. Als de putjes lijken uit te drogen, vul ze dan indien nodig bij met vers medium.
- Cel expansie
- Zodra cellen samenkomen in de plaat met 96 putjes, brengt u ze over naar een plaat met 24 putjes (Figuur 1D).
- Breng de cellen vervolgens over naar een plaat met 6 putjes en ten slotte naar een kolf (Figuur 1E, F).
OPMERKING: Deze stapsgewijze uitbreiding vergroot de kans op het tot stand brengen van een continue klonale cellijn.
- Bevriezing van cellen
- Zodra een klonale cultuur tot stand is gebracht, vriest u een deel van de cellen in voor toekomstig gebruik.
- Schraap de cellen met behulp van een celschraper uit de kolf en breng ze over in een centrifugebuis van 15 ml. Centrifugeer bij 250 x g gedurende 5 minuten bij 4 °C.
- Bereid een 2x invriesmedium voor (Shield and Sang Insect Medium aangevuld met 20% FBS en 10% DMSO).
- Gooi na het centrifugeren een deel van het bovenstaande weg, zodat de helft van het uiteindelijke gewenste volume overblijft. Voeg een gelijk volume van het 2x vriesmedium toe aan het resterende bovenstaande middel en suspendeer de pellet voorzichtig met behulp van een pipet.
- Verdeel 1 ml van de suspensie in elke cryovial van 1,5 ml en plaats de injectieflacons op ijs. Bewaar de injectieflacons een nacht bij -80 °C en breng ze de volgende dag over naar een tank met vloeibare stikstof voor langdurige opslag.
- Zodra een klonale cultuur tot stand is gebracht, vriest u een deel van de cellen in voor toekomstig gebruik.
5. PCR om de Wolbachia-status te bevestigen
- Extraheer DNA uit de monoklonale kweekmonsters met behulp van de fenol-chloroformmethode39.
- Breng 1 ml confluente geschraapte en geresuspendeerde cellen in medium in een microcentrifugebuisje van 1,5 ml en centrifugeer de cellen 5 minuten bij 290 x g bij 4 °C. Gooi het bovenstaande (celkweekmedium) weg en plaats de tube op ijs.
- Voeg 250 μL oplossing A toe, die bestaat uit 0,1 M Tris HCl (pH 9,0), 0,1 M EDTA en 1% SDS. Resuspendeer de cellen en incubeer gedurende 30 minuten bij 70 °C in een verwarmingsblok.
- Voeg na de incubatie 35 μL 8 M kaliumacetaat toe, schud de tube voorzichtig (vermijd vortexing) en incubeer nog 30 minuten op ijs.
- Centrifugeer gedurende 15 minuten bij 4 °C bij 13.000 tpm, breng het bovenstaande over in een nieuwe buis en voeg een gelijk volume fenol-chloroform toe. Schud goed en draai opnieuw, herhaal deze stap één keer.
- Breng het bovenstaande over in een nieuwe buis, voeg vervolgens 150 μL isopropanol toe, schud en draai gedurende 5 minuten op 10.000 tpm. Verwijder het bovenstaande voorzichtig, was de pellet met 1 ml 70% ethanol en centrifugeer met 13.000 tpm.
- Na 10 minuten drogen van de pellet bij kamertemperatuur, suspendeert u deze opnieuw in 100 μL TE-buffer. Kwantificeer het DNA en bewaar het bij -20 °C.
- Voer een conventionele PCR uit met het DNA dat is geëxtraheerd uit de monoklonale kweekmonsters om Wolbachia te detecteren met behulp van DreamTaq Green PCR-mastermix. Gebruik wsp 81F en wsp 691R primers40 voor Wolbachia en Drosophila rpl32 primers41 voor DNA-kwaliteitscontrole.
- Voeg 7,5 μL mastermix, 0,5 μL van elke primer bij 10 μM, 1 μL DNA verdund 1:50 en 5,5 μL water van moleculaire kwaliteit toe om 15 μL van het reactiemengsel te krijgen.
- Gebruik het volgende PCR-programma: 94 °C gedurende 4 min, 30 cycli x (94 °C gedurende 40 sec, 55 °C gedurende 40 sec, 72 °C gedurende 30 sec), 72 °C gedurende 10 min. Bewaar monsters na PCR bij 4 °C.
- Voer agarosegelelektroforese uit in een 2% agarosegel in TAE-buffer bij 90 V met de verkregen PCR-producten om de banden te visualiseren. Voeg een DNA-ladder toe om de banden voor wsp (632 bp) en rpl32 (194 bp) te identificeren.
6. FISH-kleuring om Wolbachia-infectie in cellijnen te visualiseren
- Voer fluorescerende in situ hybridisatie (FISH) uit zoals beschreven in het Stellaris FISH-protocol voor aanhangende cellen om Wolbachia te kleuren met Quasar 670-gelabelde 16s rRNA FISH-sondeset. Kleur de nucleïnezuren met Hoechst 33342.
OPMERKING: Deze sondeset is ontworpen op basis van de wMel 16S rDNA-sequentie en komt overeen met de sondeset gepubliceerd in Schneider et al.42 (zie aanvullende tabel S1).- Bereid reagentia (Fixatiebuffer, Hybridisatiebuffer, Wasbuffer A en B, gereconstitueerde custom probe set) volgens de instructies van de fabrikant43.
- Kweek hechtende cellen op 70% ethanol-gesteriliseerd 18 mm rond afdekglas in een kweekplaat met 24 putjes. Zodra de cellen de gewenste samenvloeiing hebben bereikt, aspireert u het groeimedium op en wast u het met 1 ml 1x PBS. Voeg 1 ml fixatiebuffer toe en incubeer gedurende 10 minuten bij kamertemperatuur. Was de cellen twee keer met 1 ml 1x PBS.
- Permeabiliseren door het dekglaasje met cellen onder te dompelen in 1 ml 70% ethanol en een nacht te incuberen bij 4 °C; Bewaar de monsters in ethanol bij deze temperatuur gedurende maximaal 1 week voordat ze worden gehybridiseerd. Zuig de ethanol op en voeg 1 ml wasbuffer A toe; Incubeer 2-5 minuten bij kamertemperatuur.
- Bereid een bevochtigde kamer voor door een met water verzadigd keukenpapier en een laag parafilm in een kweekschaal van 150 mm te plaatsen. Pipetteer 100 μL hybridisatiebuffer met 1 μL 12,5 μM sondevoorraad op de parafilm. Keer het dekglas voorzichtig om en plaats de cellen met de kant naar beneden op de druppel hybridisatiebuffer. Dek de kamer af en sluit deze af met parafilm en incubeer vervolgens in het donker bij 37 °C gedurende ten minste 4 uur (indien nodig tot 16 uur).
- Breng na de hybridisatie de glazen cellen van het deksel voorzichtig over naar een vers putje met 1 ml wasbuffer A en incubeer gedurende 30 minuten bij 37 °C. Zuig de buffer op en voeg 0,5 μL 20 mM Hoechst-bouillon toe aan 700 μL wasbuffer A; incubeer 30 minuten in het donker bij 37 °C.
- Verwijder de Hoechst-oplossing en voeg 1 ml wasbuffer B toe; Incubeer 2-5 minuten bij kamertemperatuur. Plaats ten slotte een kleine druppel (10 μL) montagemedium op een microscoopglaasje en monteer de glascellen van het deksel met de kant naar beneden op de druppel. Afvoer voorzichtig overtollig montagemedium weg en sluit de omtrek van het dekglas af met doorzichtige nagellak.
- Bewaar de objectglaasjes bij 4 °C en ga zo snel mogelijk over tot beeldvorming.
- Verwerk de afbeeldingen met behulp van ImageJ44. Splits kanalen en wijzig het kleurenpalet indien nodig.
Resultaten
We visualiseerden het proces van het tot stand brengen van monoklonale culturen met lichtmicroscopie vanaf de dag van het voorbereiden van de eencellige suspensie en plating (dag 0) tot het opzetten van continue cellijnen (dag 45 of 77, Figuur 2). De eerste tekenen van celdeling werden waargenomen op dag 3 (4 dagen na het uitplaten, aangezien het uitplateren op dag 0 werd uitgevoerd) toen er al vier cellen per putje waren (Figuur 2). Op dag 14 groeiden de klonen als een monolaag (JW18-B9, C7 en E5) of een bol (JW18-G4), die tijdens de passage werd verstoord. Op dag 28 waren de verschillen in de groei tussen de cellijnen het duidelijkst. De JW18-C7-cultuur was confluent op dag 45, terwijl de overige klonale culturen pas op dag 77 tot stand waren gekomen. We hebben ook de vier verschillende culturen 30 passages na de oprichting gevisualiseerd om verschillen in celmorfologieën vast te leggen (Figuur 3).
Om de Wolbachia-infectiestatus van de monoklonale culturen te bepalen, hebben we PCR (Figuur 4) en FISH (Figuur 5) uitgevoerd. We zagen dat op één na alle klonen (JW18-C7) een band voor het wsp-gen produceerden, wat wijst op een Wolbachia-infectie . FISH bevestigde de PCR-resultaten: klonen JW18-B9, JW18-E5 en JW18-G4 behielden Wolbachia-infectie , terwijl de kloon JW18-C7 geen Wolbachia had. Over het algemeen waren we in staat om uit een gemengde JW18-celpopulatie vier klonale culturen op te zetten, waarvan er drie de oorspronkelijke Wolbachia-infectie behielden. De ruwe gegevens zijn toegankelijk via Figshare: https://figshare.com/s/15fde47ca7338f31dda9.
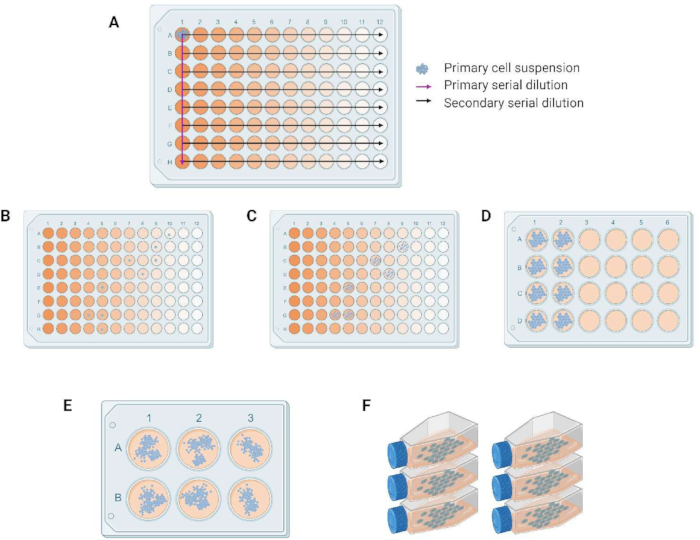
Figuur 1: Workflow voor het genereren van monoklonale cultuur. (A) Primaire en secundaire verdunningen in de plaat met 96 putjes. (B) Afzonderlijke cellen na seriële verdunning. (C-E) Progressie in vermenigvuldiging van cellen en overdracht van respectievelijk 96 putjes naar 24 en 6 putjes. (F) Ononderbroken culturen in 25 cm kweekkolven met2 cellen. Klik hier om een grotere versie van deze figuur te bekijken.
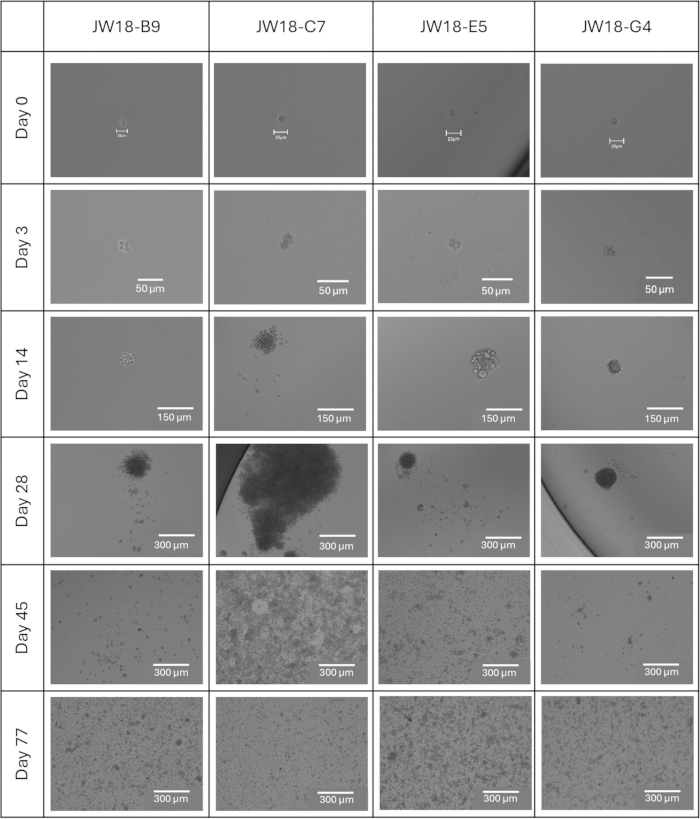
Figuur 2: Progressie van JW18 klonale lijnen van eencellige naar meercellige cultuur. Brightfield-beelden van klonale lijnen vanaf dag 0 (dag van plating) tot dag 77, toen alle lijnen met succes werden vastgesteld in een 25 cm 2-celkweekkolf. Schaalbalken = 25 μm (dag 0), 50 μm (dag 3), 150 μm (dag 14), 300 μm (dag 28, 45, 77). Klik hier om een grotere versie van deze figuur te bekijken.
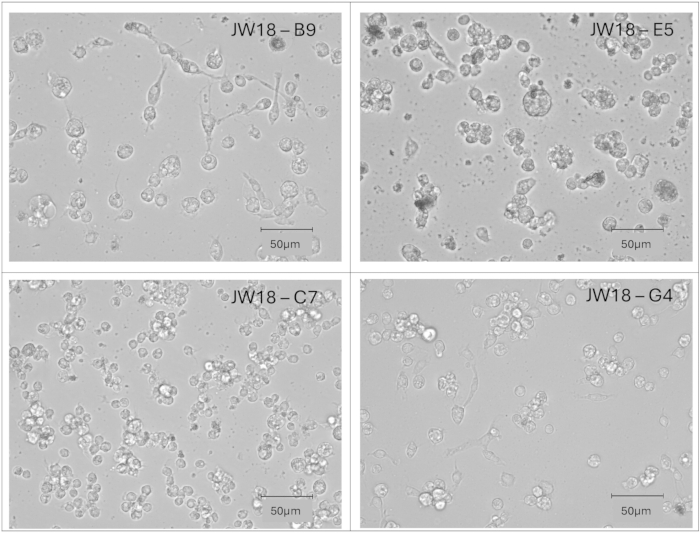
Figuur 3: Morfologie van individuele JW18 klonale lijnen. Brightfield-afbeeldingen van klonale lijnen die celmorfologieën tonen bij passage 30 na vestiging. Schaalbalken = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
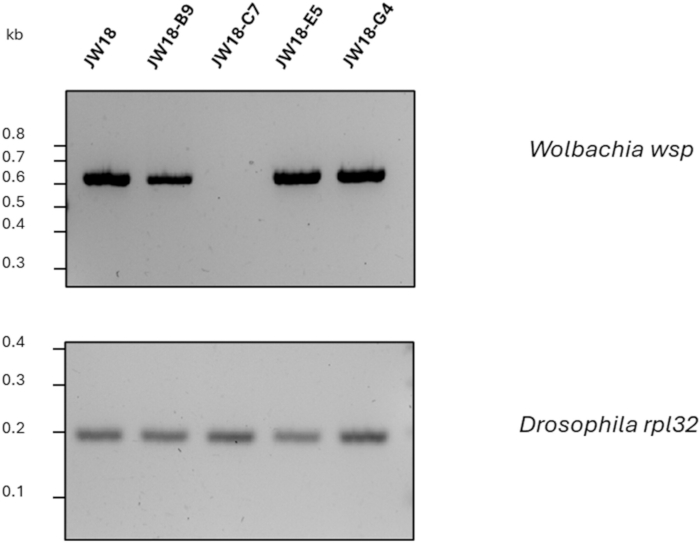
Figuur 4: Wolbachia-status van klonale culturen onderzocht door PCR. PCR voor Wolbachia in JW18 ouderlijke cellijn en klonale lijnen JW18-B9, JW18-C7, JW18-E5 en JW18-G4 bij passage 11 post instelling. De Wolbachiawsp-band bevestigt de aanwezigheid van Wolbachia, terwijl de Drosophilarpl32-band een PCR voor DNA-kwaliteitscontrole is. Klik hier om een grotere versie van deze figuur te bekijken.
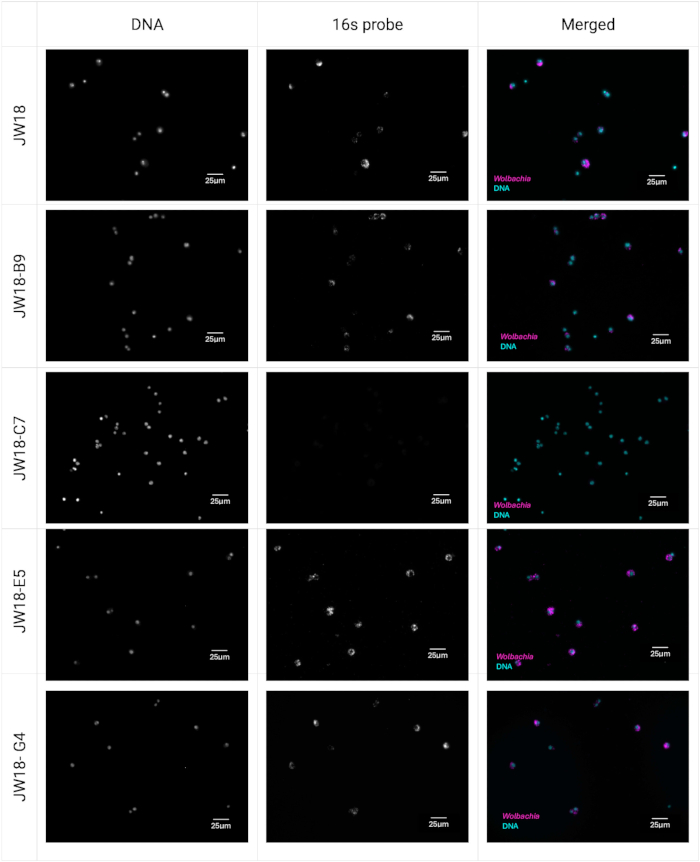
Figuur 5: Wolbachia-status van klonale culturen onderzocht door FISH. JW18 ouderlijke cellijn en klonen JW18-B9, JW18-C7, JW18-E5, JW18-G4 gevisualiseerd door FISH-kleuring bij passage 13 post. Wolbachia is gekleurd met Quasar 670-gelabeld 16s rRNA Stellaris FISH-sonde in magenta en nucleïnezuren zijn gekleurd met Hoechst 33342 in cyaan. Schaalbalken = 25 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende tabel S1: Oligonucleotide-sondes ontworpen tegen Wolbachia wMel 16S rDNA en hun vergelijking met de sondes gepubliceerd door Schneider et al.42. Klik hier om deze tabel te downloaden.
Discussie
Hier schetsen we een gestandaardiseerde methode voor het genereren van eencellige klonen uit de JW18 D.melanogaster-cellijn, die kan worden toegepast op andere Drosophila- en insectencellijnen. Het protocol omvat seriële verdunning van een bereide celsuspensie over een plaat met 96 putjes om individuele cellen te isoleren. Deze cellen worden vervolgens onder optimale omstandigheden geïncubeerd om continue culturen tot stand te brengen. Het protocol omvat ook de toevoeging van 20% geconditioneerde media om celoverleving en eencellige deling te bevorderen45,46.
Een cruciale stap in het protocol is het verifiëren van de aanwezigheid van een enkele cel in elke put na seriële verdunning. Deze stap vereist nauwgezette aandacht, omdat deze essentieel is voor het succes van het hele protocol. Om toekomstige bevestiging van de oorsprong van één cel te vergemakkelijken, wordt aanbevolen om beelden van de geselecteerde putten vanuit verschillende hoeken vast te leggen.
Een andere belangrijke stap is het overbrengen van cellen tussen kweekschalen. Om de succesvolle totstandbrenging van een continue cultuur te garanderen, mogen cellen pas worden overgebracht als ze samenvloeiing hebben bereikt. Als de celgroei langer dan twee weken stagneert, kan het verversen van de media de verdere groei bevorderen. Voortijdige overdracht van cellen vóór confluentie kan leiden tot celdood.
Hoewel dit protocol tijdrovender en arbeidsintensiever is dan andere veelgebruikte methoden, zoals Fluorescence-Activated Cell Sorting (FACS)38,46, biedt het verschillende voordelen. Deze omvatten kosteneffectiviteit, minimaal risico op celbeschadiging, geen vereiste voor fluorescerende markers, dure apparatuur en optimalisatietijd. Over het algemeen is dit protocol zeer geschikt voor het genereren van homogene insectencelpopulaties uit continue cellijnen.
Eigenschappen van de monoklonale culturen
Onze resultaten laten zien dat de monoklonale culturen verschillen in termen van snelheid van vestiging en Wolbachia-infectiestatus (Figuur 2, Figuur 4 en Figuur 5). De Wolbachia-vrije kloon JW18-C7 was de snelste die samenvloeiing bereikte in ons eencellige isolatieprotocol. Wolbachia kan altijd afwezig zijn geweest in deze cellijn, of het kan verloren zijn gegaan door het onvermogen om de delingssnelheid van de gastheercel bij te houden. Het kan ook verloren zijn gegaan door de aanvankelijke lage celdichtheid in ons kloonprotocol. Aangezien dit echter niet gebeurde voor de andere klonale cellijnen, achten we dit onwaarschijnlijk. De experimentele infectie van JW18-C7 met Wolbachia (naast andere, met tetracycline behandelde klonen) zou kunnen beantwoorden of deze lijn tolerant is voor de symbiont.
De cellulaire heterogeniteit is niet uniek voor de JW18-cellijn en is eerder gerapporteerd voor andere met Wolbachia geïnfecteerde cellijnen 32,47,48,49,50,51,52. Een eerdere poging tot verbetering betrof een overdracht van Wolbachia van D. simulans-eieren of Aa23-cellen naar een C7-10 A. albopictus-cellijn 53. C7-10 is vele jaren voorafgaand aan Wolbachia-overdrachten gekloond 54,55, en de overdrachten vormen niet de natuurlijke infectie die we van plan zijn te bestuderen.
Het verschil in Wolbachia-infectiestatus en het tijdstip van vestiging van een monoklonale cultuur (indicatief voor verschillen in celdelingssnelheid) voor individuele JW18-klonen kan ingrijpende implicaties hebben voor eerdere studies die de groeisnelheid van Wolbachia-titer en insectencellen koppelen als reactie op specifieke behandelingen. Veranderde celaantallen, symbiontendichtheden of veranderingen in genexpressie tijdens de behandeling kunnen het gevolg zijn van selectie op celtypen met specifieke eigenschappen in plaats van veranderingen in de toestand van alle cellen in een gemengde populatie. Het toedienen van behandelingen aan een gemengde celpopulatie met de variabiliteit in sleutelkenmerken kan dus vertekende, niet-reproduceerbare resultaten opleveren.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te onthullen.
Dankbetuigingen
We danken William Sullivan (University of California, Santa Cruz, VS), Laura Serbus (Florida International University, VS) en Luis Teixeira (Universidade Católica Portuguesa, Lissabon, Portugal) voor de JW18-cellijn en nuttige suggesties over hoe ermee te werken. We zijn Nidhi Krishna Shrivastava (Jagiellonian University, Krakau, Polen) dankbaar voor nuttige suggesties over het protocol. We danken Yuliya Chykunova (Jagiellonian University, Krakau, Polen) voor het proeflezen van het manuscript.
Figuur 1 is gemaakt met BioRender (Chrostek, E. (2024) https://BioRender.com/o69b306).
Dit werk wordt ondersteund door de ERC Starting Grant (Grant Agreement ID: 101040311) toegekend aan EC en een doctoraatsbeurs van de Doctoral School of Exact and Natural Sciences (Jagiellonian University) toegekend aan NF. De geuite standpunten en meningen zijn echter uitsluitend die van de auteurs en komen niet noodzakelijkerwijs overeen met die van de Europese Unie of het Uitvoerend Agentschap Europese Onderzoeksraad. Noch de Europese Unie, noch de subsidieverlenende autoriteit kan hiervoor verantwoordelijk worden gesteld.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.22 µm syringe fliter | TPP | 99722 | Steriele |
| 10x Phosphate Buffered Saline (PBS) | ThermoFisher Scientific | 70011044 | Steriele |
| 12 or 18 mm round coverglass | Elk merk | ||
| 15 mL Falcon tubes | Genoplast | 601052 | Steriele |
| 24-well plate | CytoOne | CC7682-7524 | Geschikt voor weefselkweek |
| 5 µm syringe filter | Whatman | 10462000 | Steriele |
| 6-well plate | CytoOne | CC7682-7506 | Geschikt voor weefselkweek |
| 96-well plate | CytoOne | CC7682-7596 | Geschikt voor weefselkweek |
| Agarose | ThermoFisher Scientific | J66501.30 | |
| Cell culture flask, 25 cm2 | Greiner Bio-one | 391-3103 | Steriele |
| Cell scrapers | Greiner Bio-one | 391-3010 | Steriele |
| Clear nail polish | Elk merk | ||
| CryoPure vials | Sarstedt | 72.379 | Steriele |
| DMSO, cell culture grade | Merck | D2650-100ML | Steriele |
| DreamTaq PCR Master Mix | ThermoFisher Scientific | K1081 | |
| EDTA | Merck | 324503-100GM | Steriele |
| Electrophoresis Power Supply | Merck | PS 251-2 | |
| Eppendorf Concentrator Plus | Merck | EP5305000509 | Een vacuümconcentrator van elk merk kan in plaats daarvan worden gebruikt. |
| Ethanol | Merck | 1009861000 | |
| EVOS M5000 Imaging System | ThermoFisher Scientific | AMF5000 | Een omgekeerd microscoop van elk merk kan worden gebruikt om de voortgang van de klonering te volgen. Een fluorescentiemicroscoop is vereist om FISH te visualiseren. |
| Fetal Bovine Serum | Merck | F9665 | Hitte-geïnactiveerd |
| Formaldehyde | ThermoFisher Scientific | 047377.9L | |
| Formamide | Merck | F7503-100ML | |
| Gel electrophoresis tanks | Cleaver Scientific | MSMIDI | |
| Gel Imager | BioRad | 12009077 | GelDoc Go Gel Imaging System |
| GeneRuler 100 bp DNA Ladder | ThermoFisher Scientific | SM0243 | |
| Heating Block | ThermoFisher Scientific | 88870005 | |
| Herasafe 2025 Class II Biological Safety Cabinet | ThermoFisher Scientific | 51033314 | Een biologische veiligheidscabinet van elk merk kan worden gebruikt zolang het een steriele omgeving binnenin handhaaft. |
| Hoechst 33342 Solution (20 mM) 5 mL | ThermoFisher Scientific | 62249 | Bewaar in het donker. |
| Hydrochloric acid | Merck | 258148-2.5L | |
| Integra Biosciences Corp PIPETBOY acu 2 Pipet Aid | Fisher Scientific | NC0085686 | Een serologische pipetcontrole van elk merk kan worden gebruikt. |
| Isopropanol | Merck | I9516-1L | |
| Laboratory freezer | Liebherr | LGUex 1500 MediLine | Elke vriezer die in staat is om een constante temperatuur te handhaven, is geschikt. |
| Liquid nitrogen tank | ThermoFisher Scientific | CY50985 | |
| Microscope slides | Merck | CLS294875X25-72EA | |
| Molecular grade water | |||
| Multichannel pipette | Eppendorf | 3125000036 | |
| Nanodrop | Peqlab | ND-1000 | |
| Neubauer Hemocytometer | Merck | BR717810-1EA | |
| Parafilm M Sealing Film | Merck | HS234526B-1EA | |
| Peltier-cooled incubator | Memmert | IPP55plus | Elke incubator die in staat is om een constante temperatuur van 25°C te handhaven, is geschikt. Er is geen CO2-regeling vereist voor de JW18-cellijn of zijn klonen. |
| Phenol/Chloroform/Isoamyl alcohol (25:24:1) | ThermoFisher Scientific | 327115000 | |
| Pipette set | Eppendorf | EP2231300008 | |
| Potassium acetate | Merck | P1190-500G | Steriele |
| Quasar 670-tagged 16s rRNA FISH probe set | Biosearch Technologies | Op maat gemaakt, de sequenties van de sondes zijn te vinden in Tabel 1. | |
| Refrigerated MicroCentrifuge | Labnet | C2500-R | |
| rpl32 primer forward 5'-CCGCTTCAAGGGACAGTATC-3' | Eurofins genomics | Op maat gemaakt op basis van de referentie die in het artikel wordt geciteerd | |
| rpl32 primer reverse 5'-CAATCTCCTTGCGCTTCTTG-3' | Eurofins genomics | Op maat gemaakt op basis van de referentie die in het artikel wordt geciteerd | |
| SDS | ThermoFisher Scientific | AM9823 | Steriele |
| Serological pipettes | Corning | 357771 | |
| Shields and Sang M3 Insect Medium | Merck | S8398 | Steriele |
| Stellaris RNA FISH Hybridization Buffer | Biosearch Technologies | SMF-HB1-10 | Steriele |
| Stellaris RNA FISH Wash Buffer A | Biosearch Technologies | SMF-WA1-60 | Steriele |
| Stellaris RNA FISH Wash Buffer B | Biosearch Technologies | SMF-WB1-20 | Steriele |
| Sterile Reagent Reservoirs | ThermoFisher Scientific | 8094 | Steriele |
| TAE buffer | Merck | 1061741000 | 1x |
Referenties
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
Herprints en machtigingen
