Constipatie is een veel voorkomend prodromaal kenmerk van de ziekte van Parkinson (PD), dat zich vaak jaren vóór de diagnose manifesteert. Deze studie valideerde een voorgestelde methode om constipatie te meten bij Drosophila melanogaster, en tekorten in verschillende vliegenmodellen van monogene PD werden bevestigd.
Methodenartikel
Darmtransitdefecten in Drosophila-modellen van monogene ziekte van Parkinson met behulp van een constipatietest
In dit artikel
Samenvatting
Samenvatting
De ziekte van Parkinson (PD) is een veel voorkomende neurodegeneratieve motorische stoornis en gaat vaak gepaard met verschillende niet-motorische symptomen. Bij de laatste treden gastro-intestinale problemen, waaronder constipatie, vaak op jaren vóór de manifestatie van voortbewegingsproblemen en voordat een diagnose van PD wordt gesteld. Een recente studie stelde een methode voor om constipatie te meten in een PD-vliegmodel dat wildtype humaan alfa-synucleïne tot expressie brengt. In deze studie hebben we de haalbaarheid van deze methode onderzocht en getest of andere genetische PD-modellen van vliegen ook leiden tot constipatie. Beschikbare vlieglijnen werden gebruikt om het constipatieniveau te meten in autosomaal dominante en recessieve PD-modellen, waaronder drie verschillende mutante menselijke alfa-synucleïne-expressie Drosophila-lijnen en Pink1- en Parkin-deficiënte vliegen. Deze vliegen en de bijbehorende controles werden een dag voor het experiment op blauwgekleurd voedsel geplaatst om blauwe fecale vlekken te veroorzaken. Op de dag van het experiment werden deze vliegen overgebracht op standaard maïsmeel. Het percentage blauwe fecale vlekken ten opzichte van het totale aantal fecale vlekken werd elke 90 minuten geregistreerd en berekend. De verschillende PD-modellen van vliegen vertonen een langzamere of onvolledige uitdrijving van blauwgekleurd voedsel in vergelijking met hun respectievelijke controlevliegen. Daarom werd een eerder voorgestelde methode om constipatie te meten gevalideerd en toegepast op verschillende vliegenmodellen van verschillende vormen van genetische PD.
Inleiding
De ziekte van Parkinson (PD) is een neurodegeneratieve aandoening die voornamelijk wordt gekenmerkt door motorische disfunctie, waaronder de belangrijkste diagnostische tekenen van bradykinesie, stijfheid en tremor. Hoewel PD vooral bekend staat om zijn motorische symptomen, komen niet-motorische symptomen vaak voor, waaronder depressie, pijn, slaapstoornissen en constipatie 1,2. Vaak verschijnen deze niet-motorische symptomen vroeg in het ziekteverloop en kunnen ze enkele jaren voorafgaan aan motorische symptomen3. Het herkennen van deze niet-motorische kenmerken in het beginstadium van de ziekte kan van cruciaal belang zijn bij de vroege diagnose van PD, waardoor mogelijk tijdiger ingrijpen en ziektebeheer mogelijk wordt.
Constipatie en veranderingen in de darmmotiliteit worden vaak gemeld als niet-motorische symptomen bij PD en zijn vaak aanwezig lang voor het begin van motorische symptomen 3,4. Bovendien nemen hun ernst en frequentie toe bij PD-progressie5. Desalniettemin blijft ons begrip van constipatiepatronen en -mechanismen beperkt. Daarom zou de vroege identificatie van constipatie in verband met PD kunnen helpen bij het diagnosticeren van PD in een stadium waarin therapeutische interventies effectiever kunnen zijn bij het vertragen van de ziekteprogressie. Ondanks het belang ervan blijft het begrip van de onderliggende mechanismen die constipatie bij PD veroorzaken beperkt, deels vanwege het gebrek aan geschikte experimentele modellen en ontwerp. Recente ontwikkelingen in het bestuderen van constipatie in Drosophila melanogaster met behulp van overexpressie van humaan wildtype alfa-synucleïne bieden een waardevol hulpmiddel voor het onderzoeken van de mechanismen die ten grondslag liggen aan dit vroege niet-motorische symptoom6.
SNCA, dat codeert voor alfa-synucleïne, is de eerste geïdentificeerde oorzaak van PD7. Zowel genvermenigvuldiging (duplicatie en drievoudiging) als puntmutaties in SNCA leiden tot autosomaal dominante overerving van PD8. Constipatie treft met name tot 90% van de patiënten met SNCA-mutaties 5. Bovendien zijn er verschillende andere genen geïdentificeerd die PD veroorzaken wanneer ze gemuteerd zijn, waaronder VPS35, dat ook autosomaal dominante vormen van PD8 veroorzaakt. Andere genen, zoals PINK1 en Parkin, veroorzaken autosomaal recessieve PD wanneer ze gemuteerdzijn 9. Niet-motorische symptomen komen ook voor bij deze andere genetische vormen van PD; De gerapporteerde gegevens zijn echter schaars en daarom een uitdaging om de onderliggende mechanismen te concluderen of te onderzoeken10,11.
Er zijn verschillende diermodellen gemaakt voor PD, waaronder in Drosophila melanogaster12. Hoewel Drosophila het SNCA-gen niet bevat, induceert overexpressie van wildtype en mutante vormen van het gen Parkinson-fenotypes, waaronder motorische symptomen13. Bovendien zijn PD-gekoppelde mutante vps35-, pink1- en parkinvliegen gevestigde modellen voor het bestuderen van het effect van de respectievelijke mutante genen in relatie tot PD12. Bovendien maakt het vermogen om constipatie te meten in verschillende Drosophila-modellen van PD, inclusief dominante en recessieve vormen, een meer diepgaande analyse van gastro-intestinale disfunctie mogelijk en dus een beter begrip van de routes die betrokken zijn bij PD-gerelateerde constipatie.
Hier werd de haalbaarheid van de recent voorgestelde methode om constipatie te meten beoordeeld en gevalideerd6 met behulp van verschillende genetische PD-modellen. Door de toepassing van deze methode uit te breiden naar andere genetische PD-modellen en aanpassingen te maken, bevestigen we de haalbaarheid van deze methode als een algemene test om constipatie of veranderde darmmotiliteit te meten en onderschrijven we de mogelijkheid om modificatorschermen uit te voeren om inzicht te krijgen in de moleculaire mechanismen die ten grondslag liggen aan PD's constipatie.
Protocol
In deze test werden tien dagen oude mannelijke vliegen gebruikt. Voor overexpressie van SNCA werd de alomtegenwoordige driver DaughterlessGal4 gebruikt.
Vliegen die in deze test worden gebruikt:
w1118;; SNCA p.A53T/DaGal4 en de besturing ervan w1118;; SNCA p.A53T
w1118;; SNCA p.A30P/DaGal4 en de besturing ervan w1118;; SNCA p.A30P
w1118;; SNCA p.V15A/DaGal4 en zijn besturing w1118;; SNCA p.V15A
w1118;; Vps35D650N/DaGal4 en zijn controle w1118;; vps35D650N
w roze1B9;; en hun controle w roze1RV;;
w1118;; parkD1/D21 en hun controle w1118;; parkRV
SNCA p.A53T, SNCA p.A30P, w*;; P(EP)park1, w*;; parkΔ21, Vps35,D650N en DaGal4 werden commercieel verkregen (zie Materiaaltabel). w pink1B9 null mutanten en controles (w pink1RV) werden vriendelijk ter beschikking gesteld door Jeehye Park en Jongkyeong Chung (Korea Advanced Institute of Science and Technology)14. SNCA p.V15A-vliegen werden eerder gemaakt15. De reagentia en de apparatuur die in dit onderzoek zijn gebruikt, staan vermeld in de materiaaltabel.
1. Bereiding van het blauwe voedsel
- Bereid verse standaard maïsmeel vliegmedium en houd het warm en vloeibaar.
OPMERKING: Een vooraf bereid vliegmedium kan worden gebruikt, maar het moet worden verwarmd om het medium vloeibaar te maken. Standaard maïsmeel bestaat uit 50 g maïsmeel, 7 g gist, 7 g agar, 13,5 g dextrose, 10 ml ethanol (100%), 1,1 g Methol-4-hydroxybenzoaat, 55 g melasse en 4,8 ml propionzuur voor 1 l vliegmedium. - Meng blauwe voedselkleurstof met gedestilleerd water in een verhouding van 1:1 (v/v).
- Voeg het blauwe voermengsel toe aan het standaard maïsmeelmedium om het te verzadigen met het blauwe voer en een uniforme blauwe kleur te verkrijgen.
OPMERKING: In dit onderzoek is een verhouding van 1:100 gebruikt. - Doseer het blauwe voedsel in grote voedselflesjes met behulp van een pasteurpipet zodat de bodem bedekt is en laat ze aan de lucht drogen om te stollen.
- Maak hetzelfde aantal voedselflesjes met standaard maïsmeelmedium.
- Dek de voedselflesjes tijdens het drogen af met een dunne papieren handdoek om ophoping van vocht en besmetting te voorkomen.
2. Voorbereiding van de test
- Plaats een nat Whatman-papier in lege voedselflesjes.
NOTITIE: Zorg ervoor dat het Whatman-papier week zodat het aan de bodem blijft plakken wanneer de vliegen worden overgebracht naar de injectieflacons met het blauwe medium. - Voeg 15-20 vliegen toe aan elke injectieflacon en laat ze 1 uur staan.
OPMERKING: Het verdoven van vliegen maakte het mogelijk om vliegen met het juiste genotype te selecteren. Vervolgens werden de vliegen met een borstel in een flesje geveegd en tien dagen gerijpt. De overdracht van de vliegen gebeurt door de vliegen voorzichtig van de ene injectieflacon naar de andere te draaien en stoppers te gebruiken om te voorkomen dat de vliegen ontsnappen. - Breng de vliegen over in de flesjes met het blauwe medium en laat ze een nacht in een broedmachine bij 25 °C staan.
3. Uitvoering van de constipatietest
- Breng de volgende ochtend de vliegen over naar de flesjes met standaard maïsmeelmedium en plaats ze 90 minuten terug in de broedmachine.
OPMERKING: Men kan controleren of de buiken van alle vliegen in de flesjes blauw zijn door ze onder een microscoop te leggen. - Tel na 90 minuten het aantal blauwe en kleurloze, ondoorzichtige stippen, markeer ze met een gekleurde stift, log ze en plaats de vliegen terug in de broedmachine (Figuur 1).
OPMERKING: Door de reeds getelde stippen te markeren, wordt herhaald tellen voorkomen. Bovendien werden de stippen op het voedsel of de plug van de injectieflacon genegeerd. - Herhaal stap 4.2 nog vier keer met dezelfde vliegen om een tijdsverloop van de fecale stippen te verkrijgen. Elke keer werd een markering met een andere kleur gebruikt om herhaald tellen van eerdere rondes te voorkomen.
4. Beoordeling
- Bereken de percentages blauwe stippen tot het totale aantal stippen (blauwe en ondoorzichtige stippen) voor elk tijdstip.
- Zet de gegevens uit in een grafiek met behulp van het percentage blauwe stippen over de verschillende tijdstippen, en via de 'area under curve'-analyse in GraphPad werd het gebied onder de curve berekend en uitgezet.
- Analyseer de gegevens in GraphPad Prism om een ongepaarde t-test uit te voeren met correctie16 van Welch.
OPMERKING: De correctie van Welch werd opgenomen omdat gelijke standaarddeviaties niet in alle populaties konden worden getest.
Resultaten
Er werden kleine aanpassingen gedaan aan een eerder gepresenteerde methode om constipatie bij vliegente meten 7 en om de darmfunctie te testen in verschillende genetische PD-gerelateerde vliegenmodellen. Nachtelijke incubatie van de vliegen op het blauwgekleurde medium resulteerde in vliegenbuiken die blauw leken (Figuur 2) en ontlasting die blauwe vlekken achterliet op de flacon met vliegenvoer (Figuur 2). Na verloop van tijd keerden de blauwe buiken terug naar de normale geelachtig gekleurde buiken (Figuur 2). Bovendien namen de blauwe fecale vlekken af en werden toenemende gele, ondoorzichtige vlekken waargenomen (Figuur 2). Deze overgang van blauwe naar gele vlekken geeft een idee van het niveau van darmmotiliteit of obstipatie. De overgang was voltooid bij controlevliegen na 7 uur en 30 minuten, terwijl bij PD-gerelateerde vliegen deze verwijdering van het blauwgekleurde medium in een langzamer tempo plaatsvond (Figuur 2).
Eerder werd vertraagde klaring van blauw medium beschreven bij vliegen van 10 dagen oud die wildtype alfa-synucleïne7 tot expressie brengen, wat wijst op een niveau van constipatie of vertraagde klaring als gevolg van veranderingen in de darmmotiliteit die aanwezig zijn bij deze vliegen in vergelijking met controlevliegen. Naast duplicaties of triplicaties van SNCA, zijn er verschillende pathogene missense-varianten geïdentificeerd in SNCA die verband houden met PD, en we hebben drie veel voorkomende pathogene missense-varianten getest in SNCA. Expressie van mutant alfa-synucleïne (p.A30P, p.A53T en p.V15A) resulteerde in een onvolledige klaring van blauw medium binnen 7 uur en 30 minuten, wat wijst op de aanwezigheid van constipatie bij deze vliegen in vergelijking met controlevliegen (Figuur 3).
Alfa-synucleïne is gekoppeld aan autosomaal dominante vormen van PD. Interessant is dat expressie van alfa-synucleïne de VPS35-eiwitniveaus verlaagt17. VPS35 is een subeenheid van de retromeer en veroorzaakt, wanneer gemuteerd, PD 9,18,19. Verhoogde constipatie werd waargenomen bij de mutante vps35-expressie vliegen, vergeleken met controlevliegen (Figuur 4).
Vliegen met een tekort aan Pink1 en Parkin vertonen een vertraagde klaring van het blauwe medium; na 7 uur en 30 minuten werden er echter geen blauwe fecale vlekken meer gedetecteerd bij deze gemuteerde vliegen (Figuur 5).
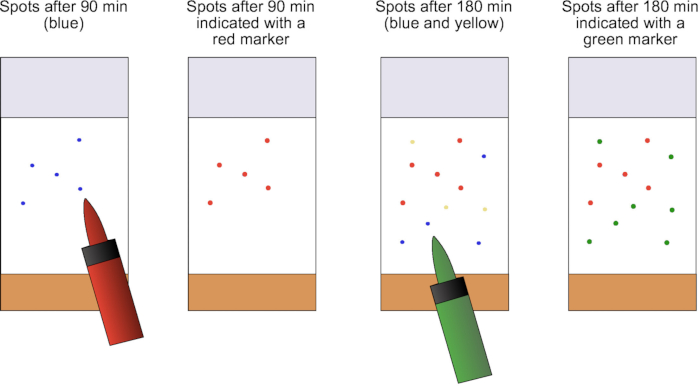
Figuur 1: Schematische weergave van het telproces met gekleurde markeringen. Na 90 minuten werden de fecale plekken geteld en aangegeven met een gekleurde stift om te voorkomen dat ze in de volgende ronde opnieuw werden geteld. Een andere kleur werd gebruikt om de extra fecale vlekken aan te geven tijdens de volgende telronde. Klik hier om een grotere versie van deze figuur te bekijken.
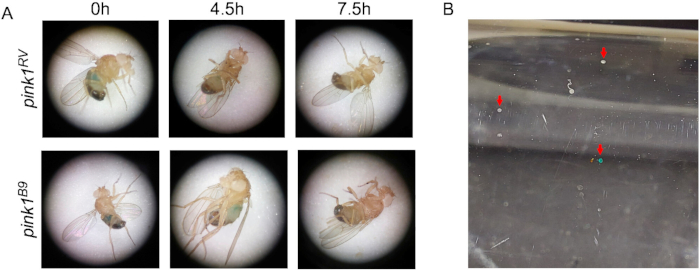
Figuur 2: Blauw medium resulteert in blauwe buik en blauwe fecale vlekken. (A) Afbeeldingen van de buiken van controlevliegen (roze1RV) en roze1-mutante vliegen op tijdstippen 0 uur, 4 uur 30 minuten en 7 uur 30 minuten tonen vervaging van de blauwe kleur. (B) Blauwe en gele, ondoorzichtige fecale vlekken op de injectieflacon met vliegenvoer zijn aangegeven met rode pijlen. Klik hier om een grotere versie van deze figuur te bekijken.
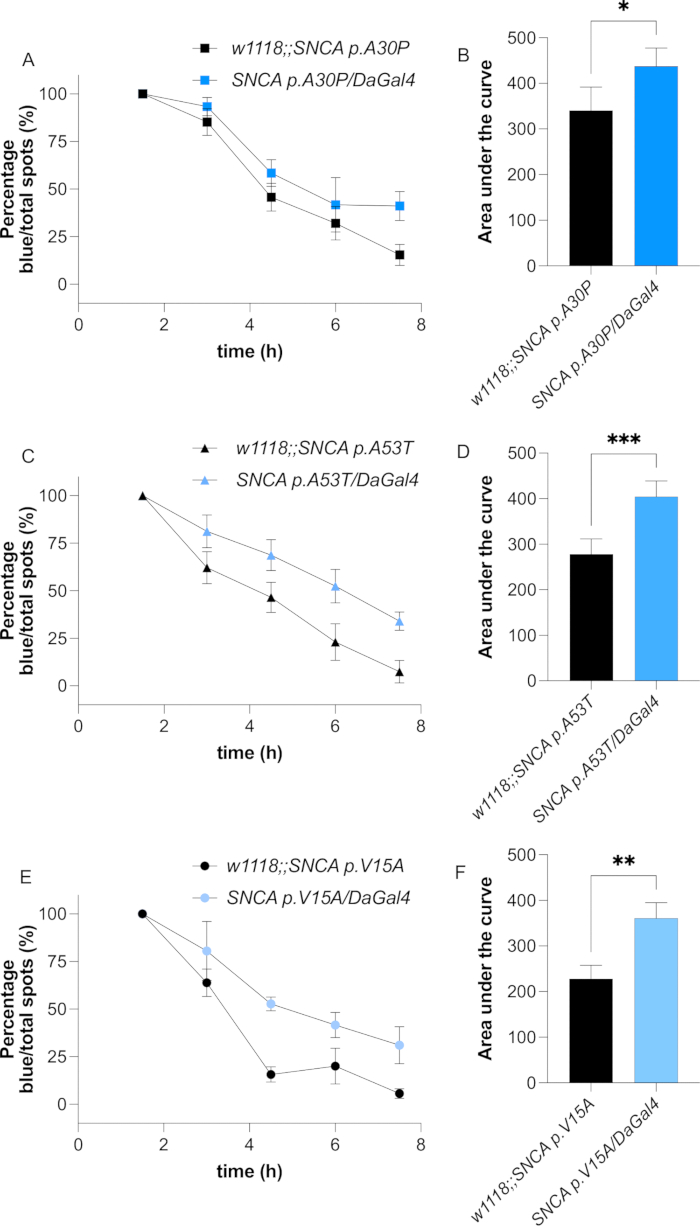
Figuur 3: Expressie van mutant alfa-synucleïne resulteert in constipatie. Percentage blauwe fecale vlekken in de loop van de tijd bij vliegen met overexpressie van SNCA p.A30P (A), SNCA p.A53T (C) en SNCA p.V15A (E), en hun respectievelijke controles. Het bijbehorende gebied onder de curve (B,D,F) wordt weergegeven. Gegevens zijn het gemiddelde en de standaarddeviatie. n ≥ 3 injectieflacons met 15-20 vliegen per injectieflacon. De T-test van Welch werd uitgevoerd; *: p < 0,05; **: p < 0,01; : p < 0,001. Klik hier om een grotere versie van deze figuur te bekijken.
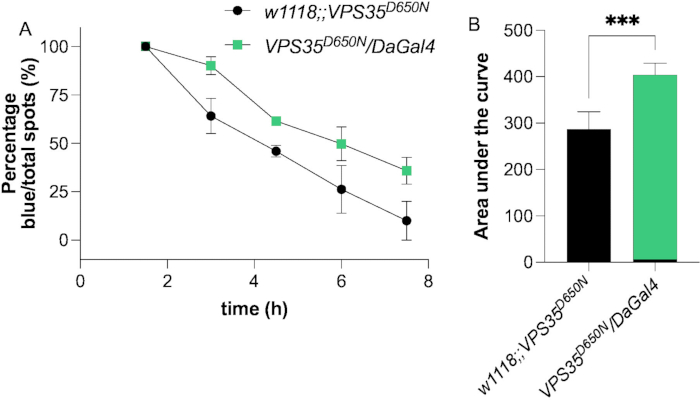
Figuur 4: Expressie van mutant vps35 resulteert in constipatie. (A) Percentage blauwe fecale vlekken in de loop van de tijd bij vliegen die de PD-gekoppelde mutant vps35D650N en de controle ervan tot overexpressie brengen. (B) Het gebied onder de curve wordt weergegeven. De gegevens zijn het gemiddelde en de standaarddeviatie. n = 3 injectieflacons met 15-20 vliegen per injectieflacon. De T-test van Welch werd uitgevoerd; : P < 0,001. Klik hier om een grotere versie van deze figuur te bekijken.
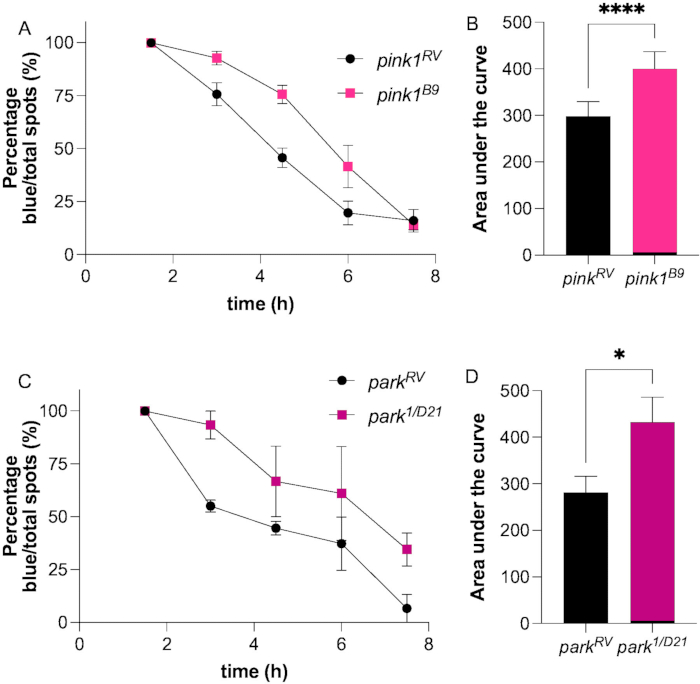
Figuur 5: Pink1- en Parkin-deficiëntie veroorzaken een vertraagde fecale klaring. Percentage blauwe fecale vlekken in de loop van de tijd bij Pink1- (A) en Parkin-deficiënte (C) en hun respectievelijke controlevliegen. Het bijbehorende gebied onder de curve (B,D) wordt weergegeven. Gegevens zijn het gemiddelde met de standaarddeviatie. n ≥ 3 injectieflacons met 15-20 vliegen per injectieflacon. De T-test van Welch werd uitgevoerd; *: p < 0,05; : P < 0,0001. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Onlangs werd een methode voorgesteld om constipatie bij Drosophila melanogaster te meten. Met de toepassing van deze methode werd constipatie of veranderde darmmotiliteit waargenomen bij vliegen die wildtype alfa-synucleïne7 tot expressie brachten. Deze methode werd gevalideerd met verschillende wijzigingen en constipatie in alle geteste genetische PD-modellen werd geïdentificeerd.
Ten opzichte van de oorspronkelijke beschrijving van de methode zijn verschillende wijzigingen doorgevoerd om de haalbaarheid en robuustheid te vergroten. Om veranderingen in de verzadiging van de blauwe medium te voorkomen, werd een batch blauwe medium bereid en verdeeld over het vereiste aantal voedselflesjes. Bovendien werden ze, voordat ze de vliegen aan het blauwe medium toevoegden, korte tijd verstoken van voedsel en hadden ze alleen toegang tot water. Deze stap is toegevoegd om de opname van het blauwe medium te stimuleren. Zonder deze extra stap vertoonden niet alle vliegen een helderblauwe buik, een cruciaal uitgangspunt voor het verkrijgen van representatieve resultaten. Ten slotte vertonen verschillende PD-vliegmodellen een niveau van knalgevoeligheid 13,14,20. Daarom werden de vliegen tijdens elke telstap niet overgebracht om elke invloed van deze gevoeligheid op de fecale output te voorkomen. Er werden echter verschillend gekleurde markeringen gebruikt om de vlekken aan te geven om dubbeltelling te voorkomen.
Net als in de oorspronkelijke beschrijving werd ook waargenomen dat vliegen 's middags minder vaak poepen. Desalniettemin, aangezien dit het geval is voor zowel controlevliegen als mutante vliegen, leidde dit niet tot afwijkingen in de registratie van de vlekken. Bovendien is het hebben van voldoende fecale vlekken om op elk tijdstip te tellen de sleutel tot het verkrijgen van robuuste resultaten. Daarom wordt een minimum van vijftien vliegen per injectieflacon aanbevolen7.
In het originele manuscript werd constipatie waargenomen bij vliegen van 10 dagen oud, maar niet bij vliegen van 1 dag oud. In deze test werd de constipatietest dus uitgevoerd bij vliegen van tien dagen oud, en constipatie of veranderde darmmotiliteit werd waargenomen in alle geteste PD-vliegmodellen. Eerdere voortbewegingsstudies toonden aan dat constipatie voorafgaat aan motorische disfunctie bij vliegen die alfa-synucleïne tot expressie brengen, waarbij vliegstoornissen pas duidelijk worden op de leeftijd van drie weken van16 jaar. Deze temporele opeenvolging van symptomen weerspiegelt de progressie die wordt waargenomen bij PD-patiënten, waarbij gastro-intestinale problemen zich vaak manifesteren vóór motorische stoornissen. In tegenstelling tot alfa-synucleïnemodellen vertonen roze1- of parkine-mutante vliegen al op de eerste dag na eclosie21 stoornissen. Daarom zou het onderzoeken of darmtransitdefecten zich op dit vroege tijdstip manifesteren, waardevolle inzichten opleveren in de progressie van niet-motorische symptomen in deze genetische modellen. Daarom moeten er meer diepgaande experimenten worden uitgevoerd om de onderliggende biologie verder te begrijpen.
De hier beschreven test vergemakkelijkt een kwantitatieve beoordeling van gastro-intestinale motiliteit en constipatiefenotypes, maar kan geen parameters zoals fecale consistentie, inhoud, kleur of morfologie evalueren. Eerder werd de fecale output gemeten, waarbij kleur en morfologie werden geëvalueerd met behulp van gevestigde methodologieën in Drosophila-modellen 22,23,24. Deze test vereist echter gespecialiseerde apparatuur (bijv. transparantiescanners) en speciale analytische software, waardoor verschillende technische en resource-overwegingen worden geïntroduceerd in vergelijking met het hier beschreven protocol. Desalniettemin toont deze test gastro-intestinale defecten bij vliegen met een tekort aan Pink122,23.
Gastro-intestinale disfuncties worden erkend als comorbide manifestaties bij meerdere neurologische en neurodegeneratieve aandoeningen, waaronder autismespectrumstoornis, de ziekte van Alzheimer en multiple sclerose 25,26,27,28, waarvoor Drosophila melanogaster dient als een handelbaar modelorganisme om de mechanistische onderbouwing te onderzoeken. Het methodologische kader dat is vastgesteld voor het bestuderen van darmmotiliteit en constipatie bij Drosophila kan worden geëxtrapoleerd naar deze ziekten.
Concluderend bevestigde deze studie een haalbare en robuuste methode die eerder werd gepresenteerd om constipatie bij vliegen te meten. Deze test toont aan dat constipatie aanwezig is in meerdere genetische Drosophila PD-modellen die bijzonder geschikt zijn om constipatie te bestuderen, omdat ze de mogelijkheid bieden om genetisch gedefinieerde risicovliegen te bestuderen voordat de manifestatie van motorische kenmerken verschijnt. Bovendien kunnen andere ziektemodellen in Drosophila die onregelmatigheden in de darmmotiliteit vertonen, hiermee worden beoordeeld, evenals screening van geneesmiddelen.
Openbaarmakingen
C. K heeft gediend als consultant voor Centogene, Takeda, Biogen en de Lundbeck Foundation, ontving sprekershonoraria van Bial en onderzoeksfinanciering van DFG, MJFF en ASAP.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Bacto Agar | Becton, Dickinson and company | 214010 | |
| Ceapran plugs | Greiner Bio-One | 330070 | |
| Cornmeal | Dr. Oetker GmbH | ||
| Dextrose | Sigma-Aldrich | D9434-1KG | |
| Drosophila container | Greiner Bio-One | 217101 | |
| Ethanol (100%) | J.T. Baker | BAK8025 2500 | |
| Filterpapier Cellulose, Whatman (Grade 3) | Sigma-Aldrich | WHA1003185 | |
| GraphPad Prism | GraphPad | ||
| Methyl-4-hydroxybenzoat | Sigma-Aldrich | H5501-100G | |
| Molasses | Rapunzel Naturkost GmbH | ||
| permanenet colored marker | Stadtler | 11-348 | |
| Propionic acid | Thermo Fisher Scientific Inc. | 149300010 | |
| Royal Blue Azul real icing colour | Wilton Lebensmittelfarben | ||
| Stereo microscope | Nikon | ||
| Yeast | Algist Bruggeman | 1278 | |
| Drosophila stocks | |||
| DaGal4 | Bloomington Stock Center | 95282 | |
| parkD1/D21 | Jeehye Park and Jongkyeong Chung | ||
| parkRV | Jeehye Park and Jongkyeong Chung | ||
| SNCA p.A53T | Bloomington Stock Center | 8148 | |
| SNCA p.A30P | Bloomington Stock Center | 8147 | |
| SNCA p.V15A | previously created in the laboratory | ||
| Vps35D650N | Bloomington Stock Center | 91646 | |
| w pink1B9 | Jeehye Park and Jongkyeong Chung | ||
| w pink1RV | Jeehye Park and Jongkyeong Chung | ||
| w1118 | Bloomington Stock Center | 3605 |
Referenties
- Fanciulli, A., et al. Diagnosis and treatment of autonomic failure, pain and sleep disturbances in Parkinson's disease: Guideline "Parkinson's disease" of the German Society of Neurology. J Neurol. 272 (1), 1-32 (2025).
- Kasten, M., Marras, C., Klein, C. Nonmotor signs in genetic forms of Parkinson's disease. Int Rev Neurobiol. 133, 129-178 (2017).
- Bloem, B. R., Okun, M. S., Klein, C. Parkinson's disease. Lancet. 397 (10291), 2284-2303 (2021).
- Higinbotham, A. S., Kilbane, C. W. The gastrointestinal tract and Parkinson's disease. Front Cell Infect Microbiol. 13, 1158986(2023).
- Yuan, X. Y., Chen, Y. S., Liu, Z. Relationship among Parkinson's disease, constipation, microbes, and microbiological therapy. World J Gastroenterol. 30 (3), 225-237 (2024).
- Sodders, M. J., Shen, M., Olsen, A. L. Measuring constipation in a Drosophila model of Parkinson's disease. J Vis Exp. (199), e65966(2023).
- Spillantini, M. G., et al. Alpha-synuclein in Lewy bodies. Nature. 388 (6645), 839-840 (1997).
- Trinh, J., et al. Genotype-phenotype relations for the Parkinson's disease genes SNCA, LRRK2, VPS35: MDSGene systematic review. Mov Disord. 33 (12), 1857-1870 (2018).
- Kasten, M., et al. Genotype-phenotype relations for the Parkinson's disease genes Parkin, PINK1, DJ1: MDSGene systematic review. Mov Disord. 33 (5), 733-741 (2018).
- Deutschländer, A., Ross, O. A., Wszolek, Z. K. VPS35-related Parkinson disease. GeneReviews. , https://www.ncbi.nlm.nih.gov/books/NBK447258/ (2023).
- Wasner, K., Grünewald, A., Klein, C. Parkin-linked Parkinson's disease: From clinical insights to pathogenic mechanisms and novel therapeutic approaches. Neurosci Res. 159, 34-39 (2020).
- Vos, M., Klein, C. The importance of Drosophila melanogaster research to uncover cellular pathways underlying Parkinson's disease. Cells. 10 (3), 579(2021).
- Feany, M. B., Bender, W. W. A Drosophila model of Parkinson's disease. Nature. 404 (6776), 394-398 (2000).
- Park, J., et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 441 (7097), 1157-1161 (2006).
- Diaw, S. H., et al. Characterization of the pathogenic α-synuclein variant V15A in Parkinson's disease. NPJ Parkinsons Dis. 9 (1), 148(2023).
- Ruxton, G. D. The unequal variance t-test is an underused alternative to Student's t-test and the Mann-Whitney U test. Behav Ecol. 17 (4), 688-690 (2006).
- Lin, G., et al. Phospholipase PLA2G6, a Parkinsonism-associated gene, affects Vps26 and Vps35, retromer function, and ceramide levels, similar to α-synuclein gain. Cell Metab. 28 (4), 605-618.e6 (2018).
- Mandik, F., Vos, M. Neurodegenerative disorders: Spotlight on sphingolipids. Int J Mol Sci. 5 (21), ijms222111998(2021).
- Vos, M., Klein, C., Hicks, A. A. Role of ceramides and sphingolipids in Parkinson's disease. J Mol Biol. 435 (12), 168000(2023).
- Clark, I. E., et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 441 (7097), 1162-1166 (2006).
- Vos, M., et al. Vitamin K2 is a mitochondrial electron carrier that rescues pink1 deficiency. Science. 336, 1306-1310 (2012).
- Fedele, G., et al. Suppression of intestinal dysfunction in a Drosophila model of Parkinson's disease is neuroprotective. Nat Aging. 2 (4), 317-331 (2022).
- Popovic, R., et al. Blocking dPerk in the intestine suppresses neurodegeneration in a Drosophila model of Parkinson's disease. Cell Death Dis. 14 (3), 1-9 (2023).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Heston, M. B., et al. Gut inflammation associated with age and Alzheimer's disease pathology: A human cohort study. Sci Rep. 13 (1), 1-12 (2023).
- Levinthal, D. J., et al. Adding to the burden: Gastrointestinal symptoms and syndromes in multiple sclerosis. Mult Scler Int. 2013, 319201(2013).
- Sorboni, S. G., et al. A comprehensive review on the role of the gut microbiome in human neurological disorders. Clin Microbiol Rev. 35 (1), e0033820(2022).
- Salim, S., et al. The gut-microbiota-brain axis in autism: What Drosophila models can offer. J Neurodev Disord. 13 (1), 37(2021).
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar