Dit artikel presenteert een co-cultuurmodel van boviene theca- en granulosacellen. Deze methode heeft het potentieel om te dienen als een betrouwbare basis voor analyses die gericht zijn op de studie van paracriene communicatie en substraattransport tussen de somatische cellen in de follikel.
Methodenartikel
Een gemodificeerd co-cultuursysteem voor het begrijpen van granulosa-theca-celinteracties in de rundereierstok
In dit artikel
Samenvatting
Samenvatting
Een betrouwbare co-cultuur van granulosa (GC's) en thecacellen (TC's) heeft het potentieel om een uitgebreider begrip van de interacties, signaalroutes en substraatuitwisseling tussen beide celcompartimenten in de ovariële follikel van runderen te vergemakkelijken. Door gebruik te maken van in de handel verkrijgbare celkweekinserts werd een reproduceerbaar co-cultuurmodel van boviene GC's en TC's opgesteld. Er werd waargenomen dat primaire theca- en granulosacellen aanzienlijk meer tijd nodig hebben om zich aan het insertmembraan te hechten in vergelijking met cellijnen. Aanvankelijk werden de TC's op het omgekeerde insert-membraan gezaaid, met een afgekapte buis die diende als inoculatiecontainer om mediumlekkage te voorkomen. Na een incubatietijd van 72 uur werd de insert omgekeerd, waardoor de GC's aan de andere kant van het membraan konden worden gekweekt. Deze co-cultuur werd vervolgens onderworpen aan een extra incubatie van 6 dagen bij 37 °C en 5% CO2, met media-uitwisseling om de dag. De expressie van markergenen duidde op celtype-specifieke patronen, waarbij CYP17A1 zeer overvloedig aanwezig waren in TC's en niet tot expressie kwamen in GC's. Omgekeerd vertoonden CYP19A1 hoge niveaus in GC's en slechts lage niveaus in TC's. De hormoonanalyse ondersteunde de aanwezigheid van een fysiologisch co-cultuursysteem, zoals blijkt uit de synthese van oestradiol. Dit aangepaste co-cultuurmodel ondersteunt reproduceerbare studies van paracriene signalering en substraattransport tussen de somatische cellen van de follikel.
Inleiding
Tijdens de folliculogenese veroorzaakt een toename van het luteïniserend hormoon (LH) een cascade van fysiologische veranderingen in de eierstok, wat uiteindelijk leidt tot het vrijkomen van een rijpe eicel tijdens de eisprong 1,2. Dit proces wordt strak gereguleerd door de folliculaire somatische cellen, die essentiële ondersteuning bieden voor de rijping van de eicellen en zorgen voor een goede ovulatiefunctie3. De follikel is samengesteld uit twee soorten steroïdogene somatische cellen, een binnenlaag van granulosacellen (GC's) en een buitenlaag van thecacellen (TC's). Hiervan ondergaan GC's de meest uitgesproken morfologische en functionele veranderingen na de LH-piek, wat hun cruciale rol benadrukt bij het orkestreren van de laatste stadia van folliculaire ontwikkeling4. Bijgevolg zijn GC's van groot belang bij de analyse van factoren die de folliculogenese, ovulatie en luteïnisatie kunnen beïnvloeden.
Een celkweekmodel van boviene GC's die een oestradiol-actieve status nabootsen, was eerder vastgesteld 5,6,7,8,9,10,11. Dit serumvrije kweekmodel maakt een betrouwbare analyse mogelijk van GC-fysiologie en mogelijke effectoranalyses in signaalroutes, genregulatie en hormoonsynthese 12,13,14. De follikelstructuur is echter veel complexer, zoals blijkt uit de 2-cel-2-gonadotropinehypothese15. Dit onderstreept de afhankelijkheid en onderlinge verbondenheid van de celtypen in de context van de steroïdesynthese die wordt gecompartimenteerd tussen de twee lagen.
Een aantal studies heeft TC-cultuurmodellen beschreven die vergelijkbaar zijn met eerder gevestigde GC-monocultuursystemen 16,17,18. Er werd echter een co-cultuursysteem van varkenstheca- en granulosacellen gerapporteerd, waarbij beide celpopulaties in één schaal worden gekweekt in een verhouding van 4:1 GC's tot TC's 19,20,21. In dit model kon worden aangetoond dat er een functioneel systeem en interactie is tussen granulosa- en thecacellen, waardoor een grotere hoeveelheid oestradiol in het co-cultuursysteem wordt onthuld dan in de monocultuur. Er moet echter worden opgemerkt dat dit model niet in staat is om de interactie en substraatuitwisseling tussen granulosa- en thecacellen adequaat te analyseren, aangezien beide celtypen anders kunnen worden beïnvloed. Daarom is de analyse op moleculaire niveaus van GC's en TC's onafhankelijk van elkaar bijna niet mogelijk zonder een uitgebreide sorteerprocedure, die zelf de celfysiologie zou kunnen beïnvloeden. Bovendien is het belangrijk om te bedenken dat dit model de situatie vóór de LH-piek mogelijk niet nauwkeurig repliceert, wanneer GC's en TC's worden gescheiden door een basaalmembraan3. Bij runderen werd een op membranen gebaseerd celkweeksysteem voorgesteld, waarbij beide celtypen aan weerszijden van een collageenmembraan worden gekweekt, waardoor de in vivo situatie nauwkeuriger wordt weerspiegeld 22,23,24,25,26.
Door het oorspronkelijke concept van een membraangebaseerd systeem aan te passen, was deze methode gericht op het opzetten van een co-cultuurmodel voor boviene GC's en TC's met celkweekinserts om toekomstige studies van paracriene signalering tussen beide celcompartimenten mogelijk te maken. De gepresenteerde methode maakt gebruik van in de handel verkrijgbare hangende celkweekinzetstukken in plaats van een op maat gemaakt membraansysteem, wat voordelen biedt zoals een hogere reproduceerbaarheid, gestandaardiseerde kwaliteit en verbeterde productstabiliteit. Deze aanpak zorgt voor consistentie tussen experimenten, waardoor het een waardevol hulpmiddel is voor onderzoekers die folliculaire celinteracties bestuderen. De kweekprocedure omvat een eerste zaaiing van 1,7-1,8 x 10⁵ thecacellen aan de onderkant van de insert, gevolgd door ongeveer 1,0 x 10⁵ granulosacellen op het bovenoppervlak na inversie en een pre-incubatie van 72 uur. Culturen worden bewaard in een bepaald medium onder standaardomstandigheden (37 °C, 5% CO2 ) waarbij het medium om de dag wordt uitgewisseld. Om paracriene uitwisseling tussen compartimenten mogelijk te maken, werden 0,4 μm celkweekinzetstukken van polyester, zoals polyethyleentereftalaat (PET), gebruikt (in de handel verkrijgbaar). Membranen van deze poriegrootte maken diffusie van oplosbare macromoleculen, zoals hormonen, groeifactoren en eiwitten, mogelijk, terwijl celmigratie wordt voorkomen27,28.
Door ruimtelijke scheiding mogelijk te maken met behoud van paracriene communicatie, biedt dit co-cultuursysteem een fysiologisch relevante omgeving voor het onderzoeken van granulosa-theca-celinteracties, signaalroutes en substraatuitwisseling. Het model is met name geschikt voor onderzoeken die gecontroleerde omstandigheden vereisen, zoals hormoonregulatie, genexpressieanalyse of het testen van geneesmiddelen. Onderzoekers die geïnteresseerd zijn in folliculaire dynamiek, reproductieve fysiologie of eierstokaandoeningen, kunnen deze methode van toepassing vinden op hun studies. Bovendien maakt het gebruik van gestandaardiseerde inserts een eenvoudige aanpassing aan verschillende experimentele behoeften mogelijk, waaronder wijzigingen in kweekduur, celtypen of behandelingsomstandigheden.
Protocol
Rundereierstokken werden verkregen van een lokaal commercieel slachthuis. In deze experimentele opstelling wordt de voorbereiding van de eierstokken binnen 2 uur na ontvangst uitgevoerd. Voor het inzamelen van bijproducten van het slachthuis is volgens de Duitse wet geen ethische goedkeuring vereist.
OPMERKING: De isolatie en cryopreservatie van boviene GC's is al beschreven en aangetoond in een eerder methoderapport6 en kan dienovereenkomstig worden uitgevoerd.
1. Voorbereiding van reagentia en opstelling voor ovariële follikeldissectie
- Bereid 1x PBS (pH 7,4) aangevuld met 100 IE penicilline, 0,1 mg/ml streptomycine en 0,5 μg/ml amfotericine voor het transport van de eierstokken. De oplossing kan maximaal 4 weken bij 4 °C worden bewaard.
- Bereid de digestieoplossing met 10x Hanks' zoutbuffer aangevuld met 25 mM HEPES, 100 IE penicilline, 0,1 mg/ml streptomycine en 0,5 μg/ml amfotericine. De digestieoplossing kan 2-3 weken bij 4 °C worden bewaard.
- Vul 1 ml digestieoplossing in buisjes van 1,5 ml voor elke geplande ontlede follikel en verwarm de oplossing voor tot 37 °C.
- Voeg 10 μL Collagenase NB8 toe om kort voor bereiding een concentratie van 0,1% van de digestieoplossing te verkrijgen.
- Bereid de volgende gerechten voor op bereidings-, isolatie- en wasprocedures.
- Glazen schalen met een minimale diameter van 3 cm om de eierstokken te plaatsen voor dissectie.
- Een 6-wells bord met 1 ml 1x PBS (aangevuld met antibiotica) om te wassen.
- Een gerecht met 12 putjes en ongeveer 10 μL digestieoplossing.
- Bereid voor cryo-conservering een vriesoplossing die bestaat uit 80% foetaal kalfsserum (FCS) en 20% DMSO.
OPMERKING: De uiteindelijke concentratie DMSO voor cryo-conservering zal 10% zijn.
2. Follikeldissectie met daaropvolgende vertering van runderthecacellen
- Voer zowel de celverteringsprocedures als het celkweekwerk uit onder een laminaire flowbank.
- Was de eierstokken 2-3x in 1x PBS (aangevuld met antibiotica, zie stap 1.1) om bloed en andere resten van het oppervlak te verwijderen. Plaats de eierstokken in een beker, vul deze met 1x PBS zodat de eierstokken bedekt zijn en gooi de oplossing daarna weg. Herhaal deze stap 3-4x totdat de eierstokken schoon zijn.
- Plaats een eierstok in een glazen schaal en selecteer follikels van 5-11 mm, gemeten met een liniaal, voor dissectie.
- Zuig de follikelvloeistof op met een spuit van 3 ml en een naald van 18 G door een geselecteerde follikel te doorboren. Gooi de follikelvloeistof weg.
- Knip de follikel open met een schaar, te beginnen bij het punt waar de naald tijdens het zuigen is ingebracht. Gebruik een verrekijker voor nauwkeurig snijden.
- Gebruik een pincet aan de snijkant van de follikel om de binnenste laag, de theca interna, vast te pakken.
- Probeer de theca interna van de binnenkant van de open follikelwand af te pellen.
OPMERKING: Afhankelijk van de leeftijd of het stadium van de follikel kan de thecacellaag gemakkelijker worden afgepeld, wat resulteert in een intacte thecalaag.
- Leg de thecacellaag in een schaaltje gevuld met 1x PBS (aangevuld met antibiotica, zie stap 1.1.) om de resterende granulosacellen te verwijderen.
- Schraap de granulosacellen voorzichtig van de binnenkant van het membraan met een scalpel. De cellen moeten gemakkelijk loskomen in grote clusters.
- Plaats de thecacellaag in een nieuwe schaal gevuld met 1x PBS om deze te wassen.
- Spoel het membraan voorzichtig af door de verse 1x PBS erin te draaien om eventuele losse cellen te verwijderen.
OPMERKING: Werk vanaf de volgende stap onder de laminaire stromingsbox.
- Breng de theca interna over in de bereide digestieoplossing van de plaat met 12 putjes (zie stap 1.2 en 1.3.3) en snijd deze met behulp van een scalpel in kleine stukjes, vermoedelijk 1-3 mm.
OPMERKING: Het wordt aanbevolen om thecacellen uit verschillende follikels onafhankelijk van elkaar te verteren om verstopping van weefsels van verschillende oorsprong te voorkomen. - Breng de thecafragmenten over in een voorbereide reactiebuis van 1,5 ml (zie stap 1.2.1 en 1.2.2). Incubeer de theca in een thermosschudbroedmachine bij 800 tpm bij 37 °C gedurende 45-50 minuten.
- Begin na 30 minuten schudden met het vortexen van de reactiebuizen gedurende 3-5 s en plaats ze terug in de schudbroedmachine.
- Herhaal deze stap 3-4x in de resterende incubatietijd.
- Na de incubatie worden de verteerde cellen opnieuw in suspensie gebracht met een pipet.
- Elimineer het onverteerde weefsel door filtratie met de 100 μm celzeef die op een buis van 50 ml wordt geplaatst, en ga onmiddellijk verder met het tellen en cryo-conserveren van de cellen om de spijsverteringsmedia te verwijderen.
3. Tellen en cryo-conservering van TC's
- Om het aantal levensvatbare cellen te tellen, bereidt u een buisje voor met 1,5 μL van een 0,25% trypanblauwe oplossing. Levende cellen blijven onbevlekt, terwijl dode cellen blauw lijken door de toegang van trypanblauw door gebroken celbarrières.
- Voeg 15 μL van de verteerde celsuspensie toe aan de trypanblauwe oplossing en meng voorzichtig.
- Breng 10 μl van het mengsel in beide kamers van een hemocytometer. Tel het aantal levende (= kleurloze) cellen in één groot vierkant per kamer.
- Bepaal het aantal levende cellen met het gemiddelde van beide kamervierkanten volgens de standaardrichtlijnen. Merk op dat het aandeel levende cellen kan verschillen tussen de eierstokken.
- Vries onverteerde delen van de thecacelsuspensie in (zie stap 2.9) voor een beoogde vergelijking als een niet-gekweekte controle en om een beoordeling uit te voeren van mogelijke kruisbesmetting met GC's (zoals weergegeven in figuur 2).
- Breng het onverteerde weefsel van elke ontlede theca interna dat in de 100 μm celzeef achterblijft (zie stap 2.10) over in een gelabeld buisje.
- Vries de buis in vloeibare stikstof in voordat u hem bij -80 °C bewaart.
- Voer cryo-conservering uit van de geïsoleerde thecacellen om een betere planning van celculturen mogelijk te maken, met bijzondere aandacht voor het benodigde aantal cellen.
- Centrifugeer de verteerde celsuspensie bij 500 x g gedurende 5 minuten bij kamertemperatuur (gemiddeld 20 °C). Gooi het bovenstaande weg.
- Los de celkorrel voorzichtig op in 1 ml 100% FCS. Voeg 1 ml vriesmedia (zie stap 1.4) toe aan de celoplossing. De uiteindelijke concentratie DMSO voor cryo-conservering is 10%. Breng het mengsel over in de gespecificeerde cryoflesjes van 2 ml.
- Plaats de injectieflacons in een koeler apparaat voor een gecontroleerde temperatuurdaling. In deze opstelling werd een specifieke vriescontainer gebruikt, die een vriessnelheid van -1 °C/min garandeert bij plaatsing gedurende ten minste 4 uur bij -80 °C. Daarna kunnen de flacons worden opgeslagen in opslagsystemen voor vloeibare stikstof.
4. Voorbereidingen voor celkweekwerk
- Snijd het deksel van een reactiebuis van 1,5 ml. Snijd vervolgens de reactiebuis ongeveer 1 cm van de opening af met behulp van een scalpel (bij voorkeur verwarmd) of een geschikte slangsnijder. Autoclaveer daarna de gesneden buizen en deksels. De deksels kunnen nodig zijn voor latere procedures van de celcultuur (zie stap 5.5).
NOTITIE: Zorg ervoor dat de slangen van 1.5 ml goed op het gekozen inzetstuk passen. - Zorg ervoor dat de inserts worden bedekt met 0,02% collageen R voor GC's en TC's aanhechting in de cultuur.
OPMERKING: Voer de procedure van het coaten uit onder een steriele laminaire stromingskap.- Gebruik gezuiverd water (geschikt voor celcultuur) om een 0,02% collageen R-oplossing te bereiden. Bereid 80 μL van deze oplossing voor elke benodigde celkweekinsert.
- Plaats het inzetstuk ondersteboven in een deksel van een bord met 24 putjes. Voeg voorzichtig 40 μL collageen R-oplossing toe aan het membraan van de insert en zorg ervoor dat deze op zijn plaats blijft. Laat de collageen R-oplossing 4-5 uur drogen onder de laminaire stromingskap.
- Draai het inzetstuk om en hang het in de putjes van de 24-puts plaat om de tweede kant weer te bedekken met 40 μL collageen R-oplossing. Laat de oplossing weer 4-5 uur drogen.
- Bestraal de inzetstukken gedurende 10-15 minuten met UV-licht om vervuiling te verminderen.
- De inserts moeten worden bewaard op de 24-wells plaat (bij voorkeur in de steriele transportzak) en in de koelkast bij 4 °C en kunnen tot 4 weken worden gebruikt.
- Bereid de media 8,10 als volgt voor:
OPMERKING: Voer de procedure voor mediavoorbereiding uit onder een steriele laminaire afzuigkap.- Vul het α-Minimial Essential Medium (α-MEM) aan met 2 mM L-glutamine, 0,084% natriumbicarbonaat, 0,1% BSA, 20 mM HEPES, 4 ng/ml natriumseleniet, 5 μg/ml transferrine, 10 ng/ml insuline en 1 mM niet-essentiële aminozuren.
OPMERKING: Om consistentie te garanderen, wordt aanbevolen om van tevoren voldoende medium voor het hele experiment voor te bereiden. Het bereide medium kan bij 4 °C worden bewaard. Gebruik voor de beschreven opstelling 750 μL per celkweekputje. - Voeg verder 100 IE penicilline, 0,1 mg/ml streptomycine en 0,5 μg/ml amfotericine toe aan de bereide media.
- Verwarm de media voor op 37 °C in een waterbad.
OPMERKING: Na het voorverwarmen van de media zijn de antibiotica ongeveer 48 uur stabiel. Gebruik daarom alleen de gewenste hoeveelheid media voor opwarming. - Vul bovendien de α-MEM aan met 20 ng/ml follikelstimulerend hormoon (FSH), 50 ng/ml R3 IGF-1 en 2 μM androstenedione voor een fysiologische celomgeving 7,8,10,11.
OPMERKING: Voeg deze componenten toe kort voor het begin van de cultuur- of media-uitwisseling. Om een gecompromitteerde activiteit te voorkomen, is het absoluut noodzakelijk om herhaalde vries-dooicycli van de FSH- en IGF-1-voorraadoplossingen te vermijden.
- Vul het α-Minimial Essential Medium (α-MEM) aan met 2 mM L-glutamine, 0,084% natriumbicarbonaat, 0,1% BSA, 20 mM HEPES, 4 ng/ml natriumseleniet, 5 μg/ml transferrine, 10 ng/ml insuline en 1 mM niet-essentiële aminozuren.
5. Co-cultuur van TC's en GC's
- Bereid de inoculatiekamer voor op het kweken van thecacellen (figuur 1A).
- Plaats het gecoate inzetstuk ondersteboven in een grotere plaat (bijv. een plaat met 12 putjes).
- Plaats de gesneden en geautoclaveerde buis op een omgekeerd inzetstuk (zie stap 4.1). Zorg ervoor dat de slang stevig op het inzetstuk zit om medialekkage te voorkomen.
- Ontdooi de cryo-gepreserveerde thecacellen snel in een waterbad van 37 °C gedurende 3-5 minuten en breng de celsuspensie direct na het ontdooien over in de voorverwarmde media.
- Centrifugeer de thecacelsuspensie bij 500 x g gedurende 3 minuten bij kamertemperatuur (gemiddeld 20 °C) en gooi het bovenstaande weg. Voeg de aangevulde α-MEM toe en suspendeer de cellen voorzichtig.
- Zaad 1,7-1,8 x 10⁵ cellen per insert in de inoculatiekamer in een eindvolume van 200 μL media. Voeg ten minste drie technische replica's per voorwaarde toe.
- Om het celkweekschaaltje met een deksel af te sluiten, kan het nodig zijn om de afstand tussen het schaaltje en het deksel te vergroten bij gebruik van de inoculatiekamer.
- Gebruik de gesneden en geautoclaveerde doppen van de reactiebuizen van 1,5 ml (zie stap 4.1) en plaats ze in elke hoek van de celkweekplaten. De doppen fungeren als steunen om het deksel van de plaat iets op te tillen, waardoor er voldoende ruimte is voor de inoculatiekamer terwijl de kweekschaal toch voldoende wordt afgedekt.
- Sluit de putplaat voorzichtig af en zorg ervoor dat deze stabiel blijft en het membraan of de kamer niet raakt.
- Breng de plaat voorzichtig over in een bevochtigde celkweekbroedmachine.
- Incubeer de thecacellen gedurende 3 dagen bij 37 °C met 5% CO2 om celhechting op het membraan mogelijk te maken.
- Draai het inzetstuk na 3 dagen cultuur om om te bereiden op het zaaien met GC's (Figuur 1B).
- Bereid een plaat met 24 putjes voor en vul deze met 500 μL media in elk van de gewenste putjes.
- Verwijder met een pipet alle media uit de inoculatiekamer. Verwijder de inoculatiekamer voorzichtig met een pincet uit het inzetstuk.
- Plaats het inzetstuk met de bijgevoegde thecacellen in de voorbereide plaat met 24 putjes en zorg ervoor dat de TC's naar beneden wijzen (zie afbeelding 1B voor meer details).
- Om granulosacellen te zaaien uit cryo-conservering, voert u stap 5.2 en 5.3 uit.
- Zaai ongeveer 1,0 x 10⁵ cellen per bijsluiter in een eindvolume van 250 μL media dat in de bijsluiter wordt geplaatst.
- Incubeer vervolgens de co-cultuur nog zes dagen bij 37 °C met 5% CO2 .
- Voer elke 48 uur na het zaaien van GC een mediawissel uit wanneer slechts tweederde van de kweekmedia is vervangen. Dit zou de stress van de procedure moeten verminderen en moeten helpen om zich aan te passen aan de nieuw toegevoegde media.
6. Latere analyse van gekweekte theca- en granulosacellen
- Voer een morfologische beoordeling uit van theca- en granulosacellen in de hele celcultuur met een fasecontrastmicroscoop om de hechting en verspreiding van beide celtypen te controleren (zie figuur 3).
- Verzamel voor de analyse van het steroïdhormoon de media en vries ze in bij -20 °C. Gebruik een geschikte methode om de concentraties van de gewenste steroïde hormonen te analyseren (in deze workflow werd oestradiol bijvoorbeeld geanalyseerd via RIA 5,29).
OPMERKING: Een steroïde hormoonanalyse helpt bij het evalueren van de fysiologische status van de cultuur7. - Om de genexpressie te analyseren, isoleert u eerst het RNA met een geschikte techniek (bijv. kitprocedures).
OPMERKING: Houd er rekening mee dat tijdens de isolatieprocedure beide celtypen onafhankelijk van elkaar worden voorbereid.- Dissocieer de cellen aan beide zijden van het membraan met een geschikt reagens (bijv. trypsine of accutase). Plaats het dissociatiemedium in zowel de insert (bijv. 200 μL accutase) als de putjes van de plaat (bijv. 500 μL accutase) zodat het membraan volledig wordt omgeven door het dissociatiemedium.
- Verzamel de granulosacellen uit de insert, terwijl de losgemaakte thecacellen uit de put kunnen worden verzameld. Breng elk celtype over in een tube van 1,5 ml.
- Centrifugeer de cellen gedurende 3 minuten bij 500 x g en gooi de supernatant weg.
- Lyse de cellen, voer RNA-isolatie uit en meet daarna de RNA-concentratie.
OPMERKING: Het protocol kan voor de meeste isolatieprocedures worden stopgezet na lysis van cellen, zodat monsters op korte termijn bij -20 °C kunnen worden bewaard. Voor een langere bewaring kunnen de gelyseerde cellen worden bewaard bij -80 °C. - Synthese vervolgens cDNA om de overvloed aan interessante transcripten te meten met qPCR. De cDNA-synthese maakt gebruik van 100 ng RNA met willekeurige hexamator- en oligo-dT-primers. Voor qPCR werden genspecifieke primers gebruikt zoals eerder beschreven 5,30. In het kort waren de cyclusomstandigheden als volgt: pre-incubatie bij 95 °C gedurende 5 min, 40 cycli denaturatie bij 95 °C gedurende 20 s, gloeien bij 60 °C gedurende 15 s, verlenging bij 72 °C gedurende 15 s en single-point fluorescentie-acquisitie gedurende 10 s. Een externe standaard van vijf verschillende concentraties (5x10-12- 5x10-16 g DNA/reactie) werd gecoamplificeerd. Voor normalisatie van de abundantie van transcripten werd het geometrisch gemiddelde van RPLP0 en TBP berekend.
- Om mogelijke kruisbesmetting te elimineren, evalueert u de zuiverheid van theca- en granulosacelpreparaten door de genexpressie van de celspecifieke markers CYP17A1 en CYP19A1 van de vers geïsoleerde celpreparaten van TC's en GC's te analyseren (Figuur 2).
OPMERKING: Een statistische evaluatie moet minimaal drie replicaten van verschillende celculturen omvatten. In deze experimentele opstelling werd een t-test of de eenrichtings-ANOVA uitgevoerd na controle op normaliteit en variantie.
Resultaten
Hoewel TC's en GC's werden geïsoleerd met behulp van gevestigde mechanische scheidingstechnieken op basis van folliculaire compartimentalisatie, werd de expressie van celtype-specifieke genen CYP17A1 en CYP19A1 geëvalueerd om het risico op kruisbesmetting te elimineren. CYP17A1 werd uitsluitend tot expressie gebracht in vers geïsoleerde TC's, terwijl CYP19A1 voornamelijk tot expressie kwam in vers geïsoleerde GC's (Figuur 2).
Het co-cultuursysteem maakt de compartimentalisering van rundertheca- en granulosacellen aan weerszijden van een membraaninzetstuk mogelijk, waardoor de in vivo ruimtelijke organisatie wordt nagebootst. Na drie dagen in cultuur vertoonden de TC's een afgeplatte en langwerpige morfologie terwijl ze zich over het oppervlak van het met collageen beklede insertmembraan verspreidden, wat wijst op een succesvolle hechting (Figuur 3A). Wanneer ze gedurende de gehele periode van 9 dagen alleen werden gekweekt, bleven TC's zich vermenigvuldigen en bereikten ze samenvloeiing op dag 9 (Figuur 3B). Daarentegen ontwikkelden GC's die gedurende 6 dagen alleen werden gekweekt op het met collageen beklede insertmembraan een fibroblastachtig fenotype, dat kenmerkend is voor GC's in vitro (Figuur 3C). Bovendien, zoals eerder beschreven, hadden GC's de neiging om clusters te vormen, een typisch kenmerk van deze cellen in cultuur 5,7,31,32. In het co-cultuursysteem werden geen duidelijke morfologische verschillen waargenomen in TC's of GC's in vergelijking met hun respectievelijke op tijd afgestemde monoculturen (Figuur 3D), wat aangeeft dat de op inserts gebaseerde omgeving normaal cellulair gedrag behoudt. Vanwege technische beperkingen blijft microscopische evaluatie van de co-cultuur echter een uitdaging, met name bij het onderscheiden en beoordelen van de TC-morfologie onafhankelijk van de andere cellen. Om deze beperkingen te overwinnen, wordt momenteel gewerkt aan een geoptimaliseerd protocol voor celfixatie in overeenstemming met het verkennen van alternatieve strategieën voor celidentificatie in afwezigheid van celspecifieke antilichamen voor immunokleuring.
De functionaliteit van het co-cultuursysteem werd beoordeeld door de hormoonproductie en de expressie van belangrijke markergenen voor TC's en GC'ste analyseren 33,34, wat de celtype-specifieke steroïdogene rollen bevestigde. Een vergelijking tussen de GC-monocultuur en het co-cultuurmodel onthulde vergelijkbare oestradiolspiegels (E2) die in vitro werden geproduceerd. Zoals verwacht produceerde de TC-monocultuur echter slechts verwaarloosbare hoeveelheden E2, in overeenstemming met de 2-cel-2-gonadotropinehypothese (Figuur 4A)15, die stelt dat thecacellen niet in staat zijn om E2 onafhankelijk te synthetiseren.
Om de fysiologische relevantie van de kweekomstandigheden verder te evalueren, werd de expressie van sleutelmarkergenen33 onderzocht. In overeenstemming met de 2-cel-2-gonadotrofinehypothese werd CYP19A1 voornamelijk tot expressie gebracht in GC's, terwijl CYP17A1 voornamelijk werd gedetecteerd in TC's, een patroon dat werd waargenomen in zowel mono- als co-cultuuromstandigheden (Figuur 4B,C). Met name de transcriptieovervloed aan CYP19A1 was hoger in GC's binnen het co-cultuursysteem in vergelijking met de GC-monocultuur, ondanks dat er geen waargenomen verschillen in oestradiolconcentraties waren.
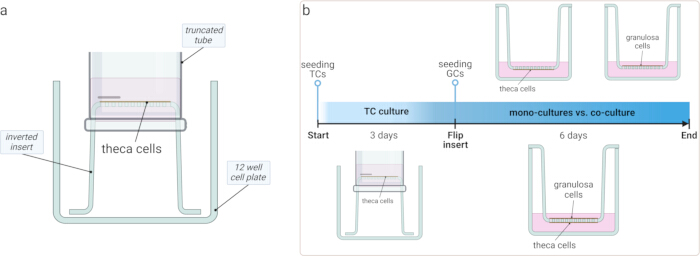
Figuur 1: Schematische weergave van de opstelling van de celcultuur. (A) Een diagram ter illustratie van de op maat gemaakte inoculatiekamer, die gebruik maakt van een afgekapt buisje op het omgekeerde inzetstuk om medialekkage gedurende de eerste kweekperiode te voorkomen. (B) Tijdlijn van de experimentele procedure: TC's werden gedurende drie dagen op het omgekeerde inzetstuk gekweekt om bevestiging mogelijk te maken. De insert werd omgedraaid en GC's werden aan de andere kant gezaaid, gevolgd door nog eens zes dagen cultuur. De studie vergeleek TC's en GC's die afzonderlijk werden gekweekt met het TC-GC-cocultuursysteem. Klik hier om een grotere versie van deze figuur te bekijken.
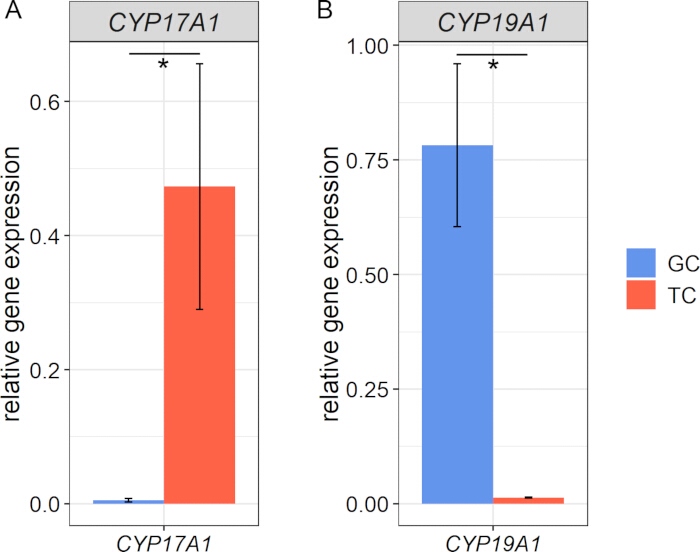
Figuur 2: Genexpressie van celtype-specifieke markers in vers geïsoleerde granulosa- en thecacellen. (A) CYP17A1 uitsluitend tot expressie kwam in TC's, terwijl (B) CYP19A1 voornamelijk werd gedetecteerd in GC's, wat de specificiteit en initiële zuiverheid van de geïsoleerde celpopulaties vóór de kweek bevestigt. Gegevens worden gepresenteerd als relatieve expressie genormaliseerd naar het geometrisch gemiddelde van de referentiegenen RPLP0 en TBP. Gemiddelden en standaardfout van gemiddelden worden weergegeven, gegevens zijn getest op normaliteit en variantie, sterretjes geven significante verschillen aan (n=3, t-toets). Klik hier om een grotere versie van deze figuur te bekijken.
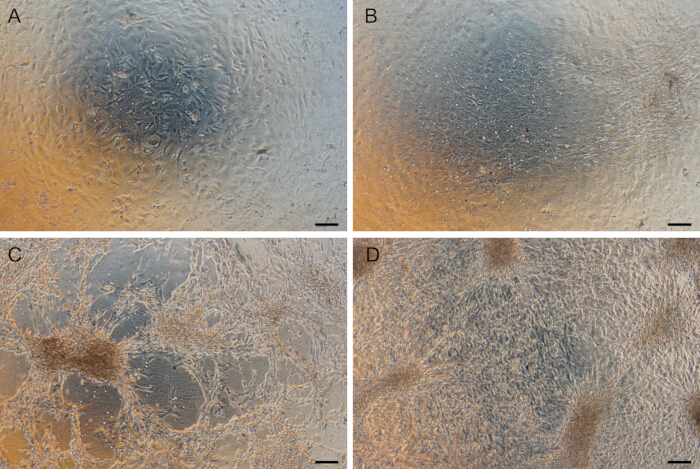
Figuur 3: Morfologie van theca- en granulosacellen in kweek. (A) TC's die gedurende 3 dagen waren gekweekt, werden aan het met collageen beklede insertmembraan bevestigd. (B) TC's groeiden uit tot samenvloeiing na de gehele periode van 9 dagen in de monocultuur. (C) GC's vertonen het typische fibroblastachtige fenotype na 6 dagen in cultuur. (D) Co-cultuur van TC's en GC's vertoont geen duidelijk morfologisch verschil in vergelijking met de respectieve op de tijd afgestemde monoculturen. Deze foto is gemaakt na 6 dagen GC-cultuur en 9 dagen TC-cultuur (op het eindpunt van het co-cultuurexperiment). Schaalbalken 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
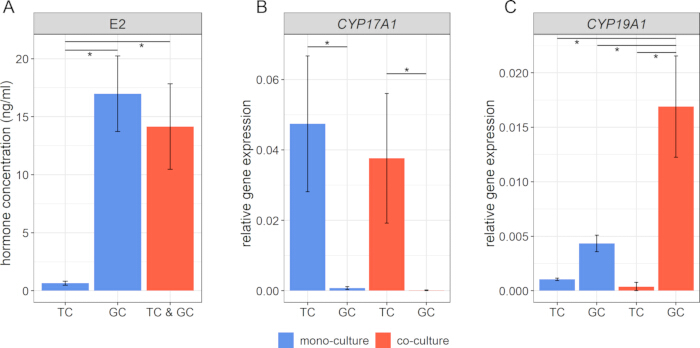
Figuur 4: Analyse van functionele markers in het co-cultuursysteem. (A) Hormoonconcentraties van oestradiol (E2) bevestigen de fysiologische functionaliteit van het celkweeksysteem. (B, C) Genexpressieanalyse van de TC-marker CYP17A1 en de GC-marker CYP19A1 de identiteit en functionele toestand van beide celpopulaties aan. Het geometrisch gemiddelde van de referentiegenen RPLP0 en TBP werd gebruikt om de relatieve expressie te berekenen. Gemiddelden en standaardfout van gemiddelden worden weergegeven, gegevens zijn getest op normaliteit en variantie, sterretjes geven significante verschillen aan (n=3, eenrichtings-ANOVA). Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De voorwaarde om dit co-cultuurmodel uit te voeren is een goed uitgevoerde isolatie van beide celtypen om kruisbesmetting te voorkomen. De zuiverheid van beide celpreparaten werd geëvalueerd door de genexpressie van de TC-specifieke marker CYP17A1 en de GC-specifieke marker CYP19A1. Zoals eerder aangetoond, vertoonde de techniek van GC- en TC-isolatie geen relevante kruisbesmetting30.
Dit co-cultuurmodel maakt de gelijktijdige kweek van theca- en granulosacellen aan weerszijden van een membraan mogelijk, waardoor hun ruimtelijke organisatie in de follikel wordt nagebootst en de fysiologische toestand van beide celpopulaties wordt ondersteund3. De validiteit van het model wordt versterkt door het hormoonproductieprofiel en de genexpressiepatronen die overeenkomen met de 2-cel-2-gonadotropinehypothese15. Zoals verwacht bevestigen de lage oestradiolspiegels in de TC-monocultuur dat thecacellen alleen niet in staat zijn om oestradiol te synthetiseren, wat de gevestigde kennis van folliculaire steroïdogeneseondersteunt 35. Ondanks de hogere expressie CYP19A1 in co-gekweekte GC's, bleven de oestradiolspiegels vergelijkbaar met de GC-monocultuur, wat wijst op de invloed van regulerende mechanismen zoals beschikbaarheid van substraat, feedbackremming of verschillen in enzymactiviteit. Verdere exploratie van de signaalroutes en onderliggende mechanismen is gerechtvaardigd, als onderwerp voor toekomstige studies. Niettemin is het opzetten van een functioneel co-cultuursysteem van runder-TC's en GC's absoluut noodzakelijk, zoals in deze studie wordt voorzien. De huidige studie richtte zich op de productie van oestradiol en mRNA-expressieniveaus van CYP17A1 en CYP19A1 als belangrijke indicatoren van de functionaliteit van het co-cultuurmodel. Beide vertegenwoordigen gevoelige markers van granulosa- en thecacelfunctie 4,8,36 en zijn direct afgestemd op de 2-cel-2-gonadotropinehypothese15. Hoewel het belang van eiwitexpressie werd erkend, verhinderde het gebrek aan betrouwbare antilichamen een nauwkeurige beoordeling ervan; Daarom viel een uitgebreide analyse van de eiwitniveaus buiten het bestek van dit eerste onderzoek.
Over het algemeen is dit model een doorontwikkeling van het traditionele 2D-cultuurmodel, dat gedeeltelijk de structuur van de ovariële follikel3 nabootst. De resultaten ondersteunen een fysiologische status van beide celcompartimenten, onthuld door de expressie van gevoelige markers voor GC- en TC-fysiologie.
Een voordeel ten opzichte van traditionele 2D-cultuurmodellen is het faciliteren van paracriene interacties tussen theca- en granulosacellen met behoud van hun ruimtelijke scheiding, waardoor de in vivo folliculaire structuur beter wordt nagebootst. Daarentegen missen co-cultuursystemen op het bord, waarbij TC's en GC's in één put worden gemengd, deze structurele organisatie. Studies die dergelijke systemen gebruiken, hebben gewoonlijk een GC:TC-verhouding van 4:1 19,20,21 toegepast, maar deze benadering weerspiegelt niet de compartimentering die in vivo is gevonden en is daarom mogelijk niet haalbaar voor het analyseren van substraatuitwisseling. Bovendien kunnen veranderingen op celniveau niet gemakkelijk worden gedetecteerd, wanneer dit GC-TC-mengsel op een complexe manier moet worden gesorteerd.
Driedimensionale co-cultuurmodellen voor granulosa- en thecacellen blijven schaars, maar vroege pogingen hebben veelbelovende resultaten opgeleverd. De groep van Kotsuji 22,23,24,37 beschreef eerder de interactie van granulosa- en thecacellen in kweek met behulp van een collageenmembraan als fysieke scheider. Dit systeem was echter gebaseerd op een op maat gemaakt collageenmembraan, waardoor reproduceerbaarheid en standaardisatie een uitdaging waren. Het gepresenteerde co-cultuurmodel profiteert daarentegen van in de handel verkrijgbare hangende cultuurinzetstukken, die de reproduceerbaarheid, standaardisatie en productkwaliteit verbeteren en zorgen voor een bredere toepasbaarheid in laboratoria. Hoewel het hierin gepresenteerde model resulteerde in een hogere oestradiolproductie dan de vorige modellen, is de vergelijking van deze modellen moeilijk, omdat het geen eenheid van celkweeksupplementen bevat, met name de gebruikte concentraties26 of het extra gebruik van IGF-1 22,23,24,37.
Een van de meest cruciale stappen in de procedure is het kweken van TC's in de inoculatiekamer. Het is essentieel om ervoor te zorgen dat de kamer stevig op het omgekeerde inzetstuk is geplaatst om medialekkage te voorkomen, die anders de TC-bevestiging en overleving in gevaar zou kunnen brengen. Daarom wordt geadviseerd om de inoculatiekamer met behulp van een pincet stevig op het omgekeerde inzetstuk te drukken en de plaatsing van de inoculatiekamer visueel te inspecteren. Bovendien vereist het verwijderen van de inoculatiekamer en het omdraaien van het inzetstuk na drie dagen technische precisie. Enige vaardigheidstraining kan nodig zijn om deze stap uit te voeren zonder de aangehechte cellen te verstoren en/of te beschadigen. Een andere belangrijke overweging is de zaaidichtheid van GC's. Een hogere celdichtheid die de optimale niveaus van 1,0 x 10⁵ cellen per insert overschrijdt, kan leiden tot differentiatie van GC's, wat mogelijk van invloed is op de steroïdogene output. Bovendien leverde de gepresenteerde cryo-conserveringsmethode na ontdooiing een levensvatbaarheid op van 80-90% voor beide celtypen.
Hoewel het beschreven model een fysiologisch en reproduceerbaar systeem biedt om granulosa- en thecacelinteracties te bestuderen, moet rekening worden gehouden met enkele beperkingen. De methode is ook aan te passen aan andere soorten; Soortspecifieke verschillen kunnen echter optimalisatie van celkweekparameters vereisen, zoals celdichtheden, timing of mediasamenstelling. De schaalbaarheid van dit model is beperkt tot de beschikbaarheid van de celkweekinserts, maar het zou voldoende kunnen zijn voor de meeste effectorstudies. Ten slotte is dit co-cultuurmodel een verdere stap in de richting van het nabootsen van de in vivo situatie van de follikel, maar mist het nog steeds de volledige complexiteit van de ovariële follikel.
Concluderend kan het gepresenteerde model eenvoudig worden aangepast om tegemoet te komen aan verschillende experimentele behoeften, zoals het verlengen van de kweekperiode, het aanpassen van celaantallen of -verhoudingen, of het opnemen van aanvullende factoren. Met verdere ontwikkeling vertegenwoordigt dit systeem een waardevol hulpmiddel voor het bestuderen van de folliculaire functie, steroïdogenese en celsignalering tussen beide celcompartimenten. Bovendien heeft het potentieel voor toepassingen in de reproductieve toxicologie, omdat het een gecontroleerd platform biedt om de impact van verschillende verbindingen op folliculaire cellen te beoordelen.
Openbaarmakingen
Alle auteurs verklaren dat zij geen belangenconflicten hebben.
Dankbetuigingen
We willen graag onze waardering uitspreken voor Veronica Schreiter, Maren Anders en Olivier Seidel voor hun uitstekende technische ondersteuning. Verder willen we graag het commerciële slachthuis "DEENSE KROON Teterower Fleisch GmbH" (Duitsland) erkennen, van wie we de eierstokken voor deze studie hebben verkregen.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10x Hank's Balanced Salt Solution HBSS (w Mg/Ca, Phenol Red) | Bio&Sell | BS.L201-10 | dissolve in ultrapure water; adjust pH to 7.4 of the digestion solution (HBSS and HEPES) and perform sterile filtration before use |
| 18 G needle, 40 mm, diameter 1.2 mm | Roth | 281T.1 | disposable needle, short cut |
| 3 ml syringe (Omnifix Luer) | Roth | LY22.1 | |
| accutase | Merck | A6964 | company branch: Sigma-Aldrich |
| amphotericin B (250 µg/ml) | Bio&Sell | BS.AB17.01050 | |
| androstenedione | Merck | 46033 | we use a stock solution of 10 mM, diluted in 100 % ethanol; company branch: Supelco |
| binocular Carl Zeiss Technival2 | Carl Zeiss Jena | not applicable | used together with incident light Schott KL 1600 LED |
| BSA (5%) | Merck | A3311 | company branch: Sigma-Aldrich |
| cell strainer (100 µm pore size) | Sarstedt | 83.3945.100 | fitting to 50 ml centrifugation tubes |
| collagen R (0.2 %) | Serva | 47254 | |
| Collagenase NB8 (10%) | Nordmark | S1745601 | |
| CoolCell LX cell freezing container | Merck | CLS432002 | product from Corning |
| cryo-preservation vials (2 ml) | TPP Faust | TPP89020 | |
| culture dish, 12-well, flat bottom | TPP Faust | TPP92112 | |
| culture dish, 24-well, flat bottom | TPP Faust | TPP92424 | |
| culture dish, 6-well, flat bottom | TPP Faust | TPP92006 | |
| DMSO | Roth | 4720.1 | |
| DPBS w/o Ca2+, Mg2+ | Bio&Sell | BS.L182-10 | dissolve in ultrapure water and autoclave before use |
| estradiol, 17b-[2,4,6,7-3H] | Hartmann Analytik | ART1555 | |
| fetal calf serum (FBS Superior stabil) | Bio&Sell | FBS.S0615 | |
| FSH (~7,000 IU/mg; from human pituitary) | Merck | F4021 | we prefer to use a stock solution of 2 µg/ml, diluted in 0.9 % NaCl; company branch: Sigma-Aldrich |
| hanging cell culture inserts (0.4 µm pore size) | cellQART | 9320412 | while ordering be aware of the different properties of inserts; we prefer a clear PET membrane for phase contrast microscopy |
| HEPES (1 M) | Roth | 9105.2 | adjust pH to 7.4 of the digestion solution (HBSS and HEPES) and perform sterile filtration before use |
| holo-transferrin (cattle) | Merck | T1283 | dissolve in sterile water; company branch: Sigma-Aldrich |
| innuPREP RNA Mini Kit 2.0 | IST innuscreen | 845-KS-2040250 | |
| insulin (10 mg/ml; from bovine pancreas) | Merck | I0516 | dissolve in 1x PBS; company branch: Sigma-Aldrich |
| L-Glutamin (200 mM) | Bio&Sell | BS.K0283 | |
| LR3-IGF-1 | Merck | I1146 | we use a stock solution of 200 µg/ml, dissolved in 10 mM HCl and 1x PBS with 1 mg/ml BSA; company branch: Sigma-Aldrich |
| NanoDrop 1000 Spectrophotometer | ThermoScientific | not applicable | RNA concentration measurement |
| NEA (100x) | Bio&Sell | BS.K0293 | |
| penicillin/streptomycin (10,000 IU/10 mg/ml) | Bio&Sell | BS.A2213 | |
| purified water, suitable for cell culture | Merck | W3500 | company branch: Sigma-Aldrich |
| SensiFAST cDNA Synthesis Kit | Bioline | BIO-65054 | supplied through distribution partner BioCat |
| sodium bicarbonate (7.5%) | Bio&Sell | BS.L1713 | |
| sodium selenite | Merck | S9133 | dissolve in sterile water; company branch: Sigma-Aldrich |
| thermoshaker TS-100C | Fischer Scientific | 12357627 | used together with HC18 block (Cat.-No. 12337627) |
| α-MEM | Bio&Sell | BS.F0915 |
Referenties
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
Herprints en machtigingen
