Stabiele in vitro amplificatie van de primordiale kiemcelachtige cellen (PGCLC's), een pluripotent van stamcellen afgeleid surrogaatmodel van de embryonale oerkiemcellen, heeft te maken gehad met technische uitdagingen. Dit protocol ondersteunt de langdurige expansie van PGCLC's in een in vitro toestand zonder serum- of feederlaagcellen.
Methodenartikel
Langdurige kweek van menselijke oerkiemcelachtige cellen
In dit artikel
Samenvatting
Samenvatting
Primordiale kiemcellen (PGC's) zijn gemeenschappelijke voorlopers van alle mannelijke en vrouwelijke kiembaancellen. PGC's ontstaan in peri-implantatie zoogdierembryo's en worden geslachtsspecifieke kiemcelprecursoren bij seksuele differentiatie van de gonadale anlage. Het in vitro model dat algemeen bekend staat als PGC-Like Cells (PGCLC's), gegenereerd uit menselijke pluripotente stamcellen, is een nuttig surrogaat van de menselijke embryonale PGC's en biedt een unieke kans om menselijke gametogenese in vitro te onderzoeken. Het hier gepresenteerde protocol ondersteunt in vitro expansie op lange termijn van menselijke PGCLC's. Vers geïsoleerde PGCLC's worden in eerste instantie op een STO-feederlaag gehouden en vervolgens in een feedervrije toestand geëxpandeerd op basaalmembraanextract. De langetermijnkweek-PGCLC's (LTC-PGCLC's) kunnen met fluorescentie-geactiveerde celsortering (FACS) worden verrijkt als CD38-positieve cellen en worden gemakkelijk geamplificeerd tot tientallen miljoenen cellen als pure, feedervrije en serumvrije monotone cultuur zonder duidelijke beperkingen zoals veroudering. Het is praktisch haalbaar om een zuivere populatie van meer dan 1 miljoen menselijke PGCLC's te verkrijgen uit een paar duizend vers geïsoleerde PGCLC's. De menselijke LTC-PGCLC-celcultuur is een nuttig en handig in vitro model om de biologie van menselijke kiemcellen en differentiatie in de stroomafwaartse kiembaancellen te bestuderen.
Inleiding
Primordiale kiemcellen (PGC's) zijn de vroegste voorlopers van alle kiembaancellen. Menselijke PGC's komen tevoorschijn uit posterieure epiblast - vermoedelijk niet-gecommitteerde vruchtwatervoorlopercellen - in het begin van de implantatie, gastrulerende embryo's na 2-3 weken zwangerschap 1,2,3,4,5,6,7. Voor de specificatie van zowel menselijke als muis-PGC's spelen de signaalroutes die worden geactiveerd door de botmorfogenetische eiwitten (BMP's) en WNT3 een cruciale rol 3,6. Terwijl de inductie van drie transcriptiefactoren, BLIMP1, PRDM14 en TFAP2C, noodzakelijk is voor de specificatie van PGC's van muizen, is in de humane PGC-specificatie de rol van PRDM14 verminderd. SOX17, dat overbodig is voor de PGC-specificatie van muizen, maar onmisbaar is voor de menselijke PGC-specificatie, wordt geïnduceerd door BMP-signalering op een manier die uitsluitend afhankelijk is van EOMES of zowel EOMES als TBXT 7,8,9. Menselijke PGC's migreren van de achterste epiblast naar de gonadale anlagen in de genitale richels door het dorsale mesenterium na 5-6 weken zwangerschap 10,11,12,13,14,15,16. De menselijke PGC-migratie kan worden aangedreven door chemotaxis, hoewel het wacht op experimentele bevestiging. Transcriptomische profielen van de migrerende menselijke PGC's zijn niet identiek aan die van muis-PGC's in hetzelfde stadium 17,18. Menselijke PGC's brengen DAZL bijvoorbeeld tot expressie nog voordat ze zich in de gonadale anlagen hebben gevestigd, terwijl PGC's van muizen DAZL pas tot expressie brengen na hun gonadale nederzetting9. Bij het initiëren van de geslachtsspecifieke differentiatie van de gonadale somatische cellen, ondergaan PGC's ook differentiatie naar prospermatogonia (ook bekend als gonocyten) of oogonia.
Aangezien de toegang tot menselijke embryonale PGC's buitengewoon uitdagend is vanwege technische en ethische barrières, wordt het gebruik van de PGC-achtige cellen (PGCLC's) afgeleid van pluripotente stamcellen steeds populairder3. PGCLC's van muizen lijken op de postmigratiefase van PGC's, gekenmerkt door geavanceerde wereldwijde genomische DNA (gDNA) demethylering, en ze zijn in staat om bevruchtingscompetent sperma en eicellen te genereren 19,20,21. Daarentegen lijken menselijke PGCLC's op eerdere stadia van embryonale PGC's met beperkte globale gDNA-demethylering 7,22,23,24. Er zijn steeds meer aanwijzingen dat menselijke PGCLC's, ondanks hun relatief onrijpe status, in staat zijn tot in vitro differentiatie naar meer gevorderde stadia van geslachtscellen die lijken op oogonia25,26 of prospermatogonia27.
Sinds Irie et al. in 2015 de eerste generatie PGCLC's uit menselijke pluripotente stamcellen publiceerden7, hebben een aantal laboratoria verschillende protocollen gepubliceerd voor de productie van PGCLC's bij de mens. De vroege, standaardprotocollen omvatten de vorming van pluripotente celaggregaten, die vaak embryoïde lichamen worden genoemd 7,22,24,26,28,29. Menselijke PGCLC's kunnen worden geproduceerd met behulp van verschillende op aggregatie gebaseerde protocollen die vergelijkbare transcriptomische profielen delen, die allemaal belangrijke PGC-markergenen zoals PRDM1, SOX17, TFAP2C, POU5F1 en NANOS3 sterk tot expressie brengen, terwijl expressie van de pluripotentiemarker SOX2 of PGC-marker in een laat stadium DDX4 gewoonlijk wordt onderdrukt24. Er zijn ook succesvolle pogingen gemeld om menselijke PGCLC's te produceren uit eenlaagse celculturen voor verbeterde schaalbaarheid en gemak30. Hoewel de opbrengst van PGCLC's relatief klein is, draagt de succesvolle productie van menselijke PGCLC's uit pluripotente stamcellen afgeleide in vitro modellen van de embryo's in het gastrulatiestadium aanzienlijk bij aan de opheldering van de mechanismen van kiembaanspecificatie en PGC-ontwikkeling in een vroeg stadium 31,32,33,34,35,36.
Hoewel de opbrengst en kwaliteit van menselijke PGCLC's die met behulp van verschillende celkweekmethoden zijn geproduceerd, zijn verbeterd, vormt de technische moeilijkheid bij de uitbreiding van de celkweek van menselijke PGCLC's een aanzienlijke hindernis voor de toepassing ervan voor experimenten die grote hoeveelheden homogene celpopulaties vereisen, zoals chemische of genetische screening, evenals de productie van geavanceerde stadia van kiembaancellen26. Gell et al. rapporteerden onderhoud van menselijke PGCLC's gedurende maximaal 21 dagen op STO-feeders in een op FR10 gebaseerd medium dat stamcelfactor (SCF) en 2,5% foetaal kalfsserum (FCS) bevat; PGCLC's hadden echter de neiging om af te wijken van de PGC-achtige identiteit naar andere soorten cellen die mogelijk niet relevant zijn voor de ontwikkeling van kiembaancellen37. Murase et al. elimineerden herhaaldelijk dergelijke ongewenste cellen uit de kweek door FACS bij elke passage en toonden aan dat menselijke PGCLC's in staat zijn om hun proliferatiepotentieel op lange termijn in vitro te behouden 38. Later rapporteerden Murase et al. succesvolle amplificatie van menselijke PGCLC's in een medium dat 2,5% FCS39 bevat, maar hun methode vereist de m220-5 feederlaagcellen, die spontaan ontstonden MMC-resistente subklonen van de m220 embryonale cellen van muizen die de membraangebonden vorm van muis SCF tot expressie brengen van een exogene vector40. Op dit moment zijn m220-5-cellen nog niet gedeponeerd in een openbaar toegankelijke repository. Het blijft dus een grote uitdaging om de menselijke PGCLC-cultuur in vitro uit te breiden naar een groot aantal homogene cellen, waarbij hun PGC-achtige kenmerken behouden blijven in een eenvoudige toestand die geen niet-standaard feedercelbron vereist en vrij is van reagentia van dierlijke oorsprong, waarvan de efficiëntie kan variëren tussen verschillende partijen.
Om de bovenstaande technische hindernis te overwinnen, is een methode ontwikkeld die langdurige in-vitro-expansie van menselijke PGCLC's als een homogene celpopulatie mogelijk maakt, waarbij de PGC-achtige kenmerken behouden blijven in een toestand die vrij is van serum- of feederlaagcellen41. Omdat menselijke PGCLC's telomerase tot expressie brengen, amplificeren deze cellen gedurende ten minste 150 dagen met een constante snelheid zonder tekenen van veroudering of afwijking van andere soorten cellen. De PGCLC's met langetermijncultuur (LTC-PGCLC's) behouden hun menselijke PGC-achtige transcriptomische kenmerken, hoewel hun globale gDNA bescheiden wordt gedemethyleerd bij herhaalde passages. LTC-PGCLS worden gemakkelijk omgezet in pluripotente embryonale kiemcelachtige cellen (EGCLC's), waardoor iPSC-achtig transcriptoom en gDNA-methyloom worden hersteld, hoewel de ingeprinte allelische beperking van H19-RNA-expressie verloren gaat. LTC-PGCLC's zijn ook in staat om te differentiëren tot cellen die DAZL tot expressie brengen en lijken op prospermatogonia in de xrTestis xenobiotische organoïdecultuur27. Het humane LTC-PGCLC-model vertegenwoordigt dus een nieuw type stabiel onderhouden, pluripotentie-relevante celcultuurbron die permanent de biologische kenmerken van PGCLC's behoudt en in vitro gemakkelijk kan worden uitgebreid als een stabiele cellijn.
Dit artikel beschrijft de methode om vers geïsoleerde, met FACS verrijkte zuivere populatie van menselijke PGCLC's aan te passen aan serumvrije, langdurige onderhoudscultuur door middel van tijdelijke ondersteuning door de standaard STO-feederlaagcellen en vervolgens in een feedervrije toestand op Basement Membrane Extract (BME). Deze methode ondersteunt de in vitro expansie van humane PGCLC's geproduceerd met behulp van het embryoïde lichaamsafhankelijke protocol, zoals eerder beschreven 24,41,42 of gerapporteerd door Sasaki et al 22, en de monolaagkweekmethode gerapporteerd door Overeem et al30. Wanneer toegepast op humane PGCLC's bereid zoals beschreven41, kan een initiële populatie van 10.000 cellen worden uitgebreid tot bijna 1 x 10⁹ cellen in 1,5 - 2 maanden met een populatieverdubbelingstijd van 4 - 4,5 dagen41. De toepasbaarheid van deze methode op menselijke PGCLC's die met andere methoden worden geproduceerd, wordt ook verwacht.
Protocol
1. Bereiding van celkweekmedia
- Bereid media voor zoals beschreven in Tabel 1, Tabel 2, Tabel 3 en Tabel 4. Bewaar aliquots van deze media bevroren.
- Bereid PGCLC Basal Medium zoals beschreven in Tabel 1. Maak 40 ml aliquots en bewaar bij -20 °C gedurende 6 maanden. Bereid STO-medium 1 voor zoals beschreven in tabel 2. Bewaar 50 ml aliquots in centrifugebuisjes van 50 ml bij 4 °C gedurende 1 maand.
- Bereid STO-medium 2 voor zoals beschreven in tabel 3. Direct gebruiken. Bereid met mitomycine-C behandelde STO-cellen (MMC-STO) opslagmedium voor zoals beschreven in tabel 4. Bewaar 10 ml aliquots bij -20 °C gedurende 6 maanden.
LET OP: Aangezien dimethylsulfoxide als gevaarlijk wordt beschouwd (brandbare vloeistof), moet het uit de buurt van hitte, vonken, open vuur of hete oppervlakken worden gehouden. Volg het lokale regelgevingsprotocol voor de verwijdering ervan.
2. Preparaat van met MMC behandelde STO-cellen
OPMERKING: MMC-behandeling van STO-cellen inactiveert hun proliferatieactiviteit zonder hun levensvatbaarheid aanzienlijk te schaden. De MMC-STO-cellen worden gebruikt als feederlaagcellen tijdens de eerste kweek van menselijke PGCLC's (stap 4) en als bron van het celvrije geconditioneerde medium (stap 3).
- Kweek STO-cellen in STO-medium 1 op de vier P15-schaaltjes tot bijna samenvloeiing. Verander STO medium 1 naar 23 ml/gerecht. Voeg 23 μl/schaaltje met een MMC-concentratie van 10 mg/ml rechtstreeks aan het medium toe tot een eindconcentratie van 10 μg/ml.
- Goed ronddraaien en 4 uur lang bij 37 °C in een CO2 -incubator incuberen.
LET OP: MMC is dodelijk als een grote hoeveelheid wordt ingeslikt en het is vermoedelijk kankerverwekkend. De behandeling en verwijdering van deze verbinding moet voldoen aan de lokale regelgevende protocollen. - Cellen met 20 ml/schaaltje Dulbecco's PBS (Ca/Mg-vrij) 2x wassen op kamertemperatuur.
- Dissocieer de cellen met 4 ml/schaaltje TrypLE Express in een CO2 -incubator gedurende 2 min. Suspendeer cellen in een eencellige suspensie door voorzichtig te pipetteren.
- Breng twee schaaltjes met celsuspensie (8 ml) over in een centrifugebuis van 50 ml met 30 ml ijskoud STO medium-1. Herhaal dit voor de andere twee gerechten om twee tubes van 38 ml celsuspensie te maken.
- Tel cellen in aanwezigheid van 0,2% trypanblauw voor evaluatie van de cellulaire levensvatbaarheid met behulp van een hemocytometer of geautomatiseerde celteller.
- Centrifugeer de cellen bij 300 x g gedurende 5 minuten bij 4 °C. Gooi supernatant weg. Resuspendeer celpellets in ijskoud bevroren celbewaarmedium tot 5 x 10⁶ cellen/ml.
- Bereid 1 ml aliquots van MMC-behandelde STO-cellen in de cryogene flesjes. Vries cellen langzaam in in een piepschuimdoos of een langzaam invriesapparaat en bewaar ze maximaal 12 maanden bij -80 °C.
3. Bereiding van STO-geconditioneerd medium (S-CM)
OPMERKING: Celvrij geconditioneerd medium van de MMC-STO-cellen (bereid in stap 2) ondersteunt de overleving en proliferatie van menselijke PGCLC's en onderdrukt hun afwijking naar cellen die PGC-achtige kenmerken verliezen.
- Dag 1: Ontdooi MMC-behandelde STO-cellen uit bevroren voorraden en inoculeer 5 x 10⁶ cellen in een met gelatine omhuld P10-schaaltje met 10 ml/schaaltje STO-medium 2. De typische grootte van een batch bestaat uit 4 tot 8 P10-gerechten. Incubeer de cellen een nacht bij 37 °C in een CO2 -incubator.
- Om de putjes met gelatine te bedekken, voegt u 1 ml/putje 0,1% gelatine toe en incubeert u dit minstens 20 minuten bij kamertemperatuur. Zuig de overtollige gelatineoplossing op en laat de putjes open in de bioveiligheidskast tot ze droog zijn. Bewaar met gelatine omhuld plasticgoed 2 weken bij kamertemperatuur of 3 maanden bij 4 °C.
- Ontdooi de aliquots van het basaal medium PGCLC een nacht bij 4 °C.
OPMERKING: Het wordt niet aanbevolen om dit medium sneller te ontdooien bij een hogere temperatuur. Bewaar PGCLC basaalmedium niet langer dan 1 week bij 4 °C. - Dag 2: Verwijder de STO-medium 2 en gooi deze weg. Was cellen met warme DPBS (~10 ml/schaal) gevolgd door een wasbeurt met warme PGCLC Basal Medium (2 ml/schaal). Voeg warme PGCLC Basal Medium (12 ml/schaaltje) toe en incubeer de cellen een nacht bij 37 °C in een CO2 -incubator.
- Dag 3: Verzamel al het geconditioneerde medium in een centrifugebuis van 50 ml. Herhaal PGCLC Basal Medium (12 ml/schaaltje) en incubatie om het geconditioneerde medium de volgende dag uit dezelfde STO-celcultuur te verzamelen. Centrifugeer het geconditioneerde medium dat bij 300 x g is verzameld gedurende 5 minuten bij 4 °C. Maak 10 ml aliquots van het bovenstaande (S-CM) in centrifugebuisjes van 15 ml. Neem niet de laatste 3 ml van het medium dat op de bodem van de buisjes van 50 ml achterblijft om besmetting van MMC-STO-cellen in S-CM te voorkomen. Bewaar de aliquots maximaal 6 maanden bij -80 °C.
- Dag 4: Oogst S-CM door stap 3.4 elke dag te herhalen totdat de MMC-STO monolaagcultuur verslechtert na 5-6 dagen cultuur in PGCLC Basal Medium. Stop met oogsten wanneer 25% of meer cellen zijn losgemaakt van de schaal.
4. Aanpassing van menselijke PGCLC's aan langetermijncultuur
- Kweek vers geïsoleerde menselijke PGCLC's op de MMC-STO-feederlaag. Bereid menselijke PGCLC's aan met behulp van een eerder gepubliceerde methode (Mitsunaga et al.24; Kobayashi et al.41). Er zijn ook gedetailleerde protocollen voor de inductie van PGCLC bij de mens gepubliceerd42,43.
- Na de initiële amplificatie gedurende maximaal 28 dagen, handhaaft PGCLC's als LTC-PGCLC's op de BME als een feedervrije cultuur. Gebruik tijdens deze twee stappen van de PGCLC-kweek het STO-geconditioneerde medium (S-CM, bereid in stap 3) met SCF-suppletie maar zonder opname van FCS. De ROCK-remmer is alleen direct na het passeren nodig.
OPMERKING: Als BME werd Matrigel van ESC-kwaliteit in ons lab gebruikt. Andere commerciële producten ondersteunden de uitbreiding van LTC-hPGCLC's op lange termijn niet. - Dag 1: Inoculeer MMC-behandelde STO-feederlaagcellen in met gelatine beklede platen met 6 putjes tot 8 x 10⁴ cellen/cm2 met 3 ml/putje STO-medium 2. Incubeer de toevoerlaag een nacht bij 37 °C in een CO2 -incubator.
- Dag 2: Gooi het STO-medium uit de cultuur en was de cellen met warme Dulbecco's MEM (serumvrij), 3 ml/putje. Voeg 3 ml/put S-CM vers aangevuld met 0,1 mM 2-Mercaptoethanol, 50 μg/ml ascorbinezuur, 100 ng/ml humaan recombinant SCF en 10 μM Y-27632 toe. Inoculeer 500 - 2.000 vers geïsoleerde menselijke PGCLC's op de STO-feederlaag in elk putje. Incubeer de cellen een nacht bij 37 °C in een CO2 -incubator.
OPMERKING: De aanwezigheid van serum, zelfs in lage concentraties, heeft de neiging om het ontstaan van ongewenste soorten cellen uit menselijke PGCLC'ste veroorzaken 41. De groei van humane PGCLC's is strikt afhankelijk van SCF41. Y-27632 ondersteunt de overleving van eencellige menselijke PGCLC's op het moment van inoculatie, maar is niet noodzakelijk tijdens de onderhoudscultuur. Voeg 2-Mercaptoethanol, ascorbinezuur, SCF en Y-27632 vers toe aan het medium. In een typisch experiment worden PGCLC's geënt in alle putjes van een plaat met 6 putjes. Als er een groter aantal PGCLC's beschikbaar is als uitgangsmateriaal, is een hogere dichtheid tot 10.000 PGCLC's per put acceptabel. - Dag 3: Vervang de helft van het medium (1,5 ml/putje) door warm S-CM vers aangevuld met 0,1 mM 2-mercaptoethanol, 50 μg/ml ascorbinezuur, 100 ng/ml humaan recombinant SCF maar zonder Y-27632. Verstoor PGCLC's niet, die door een sterke stroom van het medium van de toevoerlaag kunnen worden losgemaakt.
- Dag 5 - 28: Herhaal stap 4.5 om de dag. Aangezien PGCLC's zich doorgaans vermenigvuldigen met een verdubbelingstijd van de populatievan 4,5 dagen 41, ontstaan er kleine clusters van PGCLC's op dag 6-7 of later (Figuur 1A-D). Clusters zullen duidelijker worden op dag 14-15 (Figuur 1E,F). Als er ongewenste typen cellulaire clusters verschijnen met afwijkende morfologische kenmerken die afwijken van de juiste PGCLC's, gooi dan putjes met dergelijke clusters weg of probeer de afwijkende cellen te elimineren met behulp van de differentiële adhesietechniek die verderop in stap 4.9 wordt beschreven.
- Wanneer PGCLC's zich uitbreiden om clusters te vormen die meer dan 20% van het kweekgebied beslaan (~Dag 28), dissocieer dan cellen met behulp van de celloslatingsoplossing (CDS). Verwijder S-CM uit putjes van de PGCLC-cultuur en voeg voorverwarmde CDS toe in 1 ml/putje zonder cellen te wassen. Incubeer de cellen bij 37 °C in een CO2 -incubator gedurende 5 minuten totdat de PGCLC's loskomen van de putjes.
OPMERKING: Accutase wordt aanbevolen als CDS voor milde dissociatie. Verwarm CDS niet langer dan 5 minuten voor bij 37 °C. PGCLC-loslating kan worden vergemakkelijkt door voorzichtig te pipetteren, maar PGCLC's hoeven niet volledig te worden gedissocieerd tot een enkele celsuspensie. Kleine aggregaten van PGCLC's kunnen de levensvatbaarheid vergroten. Als ongewenste soorten cellen opkomen en snel groeien, pas dan de incubatietijd in CDS tijdens celloslating aan voor de selectieve verzameling van PGCLC's, die de neiging hebben om eerder los te komen dan feedercellen en de meeste soorten ongewenste cellen. Als de aanhoudende opkomst van ongewenste soorten cellen de expansie van PGCLC's verstoort, probeer dan de ongewenste cellen te verwijderen door hun snellere hechting aan met gelatine beklede putjes te gebruiken, zoals beschreven in stap 4.9. Aangezien de verrijking van PGCLC's door FACS de neiging heeft om een aanzienlijk deel van de levende PGCLC's te verliezen, moet de oppervlaktegrootte van de feederlaag dienovereenkomstig worden verkleind. - Om de celloslating door CDS te stoppen, verdunt u de celsuspensie met 10x volume warm PGCLC basaal medium en centrifugeert u bij 300 x g gedurende 5 minuten bij 4 °C. Merk op dat de enzymatische activiteit van sommige CDS, zoals Accutase, niet wordt onderdrukt door serum- of trypsineremmers. Gooi het bovenstaande weg en suspendeer de cellen in 3 ml warm S-CM, vers aangevuld met 0,1 mM 2-Mercaptoethanol, 50 μg/ml ascorbinezuur, 100 ng/ml humaan recombinant SCF en 10 μM Y-27632.
- Inoculeer de celsuspensie in putjes van 6-putjes platen bedekt met 0,1% gelatine en incubeer bij 37 °C in een CO2 -incubator gedurende 30 minuten om MMC-STO-cellen (en ongewenste soorten cellen) te verwijderen, die zich snel hechten aan de met gelatine beklede putjes.
OPMERKING: Het wordt aangemoedigd om cellen te inspecteren door middel van fasecontrastmicroscopie na 20 minuten incubatie en na 30 minuten om de hechting van de voedingscellen te evalueren. Het kan nodig zijn om de incubatietijd te verlengen tot maximaal 45 minuten. Het gebruik van FACS of MACS om feedercellen te elimineren is over het algemeen niet nodig, aangezien MMC-behandelde STO-cellen niet kunnen prolifereren en verslechteren in de S-CM. - Breng PGCLC's zonder afwijkende soorten cellen over naar met basaalmembraanmatrix beklede putten om te beginnen met feedervrije langdurige kweek van menselijke PGCLC's. Voor een enkel putje in een plaat met 6 putjes wordt inoculatie van 1 x 10⁵ levensvatbare PGCLC's aanbevolen.
OPMERKING: Het is meestal nodig om hPGCLC's van maximaal 6 putjes te verzamelen om 1 x 10⁵ levensvatbare (trypanblauwe kleuring negatieve) PGCLC's te verzamelen en deze in een enkel putje te zaaien om de inoculumceldichtheid te verhogen. Als het aantal geoogste PGCLC's niet 1 x 10⁵ bereikt, gebruik dan een kleinere put, zoals een plaat met 12 of 24 putjes om een relatief hoge PGCLC-dichtheid te verkrijgen. Tegen de tijd van de eerste subcultuur zijn de meeste MMC-STO-feederlaagcellen verslechterd en overleven ze de passaging-procedure niet. Een klein aantal levensvatbare MMC-STO-cellen wordt effectief verwijderd door de differentiële adhesietechniek. Zelfs als een paar MMC-STO-cellen besmet zijn in met BME beklede putjes, zullen ze tijdens meervoudige passages uit de cultuur verdwijnen. - Menselijke PGCLC's groeien als een sterk verspreide celpopulatie zonder significant teken van direct fysiek contact tussen individuele cellen (Figuur 1). Als er clusters van cellen ontstaan die nauwe intercellulaire interacties vertonen (Figuur 2A), passeer dan de cultuur met behulp van de techniek beschreven in stap 4.7. Een keer per week passeren (1:4) is meestal voldoende.
OPMERKING: FACS-verrijking van menselijke PGCLC's is doorgaans niet nodig. Als ongewenste afwijkende cellen echter niet effectief kunnen worden verwijderd na herhaalde differentiële adhesietechniek beschreven in stap 4.11, vergemakkelijken enkele cycli van FACS-verrijking van menselijke PGCLC's als CD38-positieve cellen 42,43 de vorming van een zuivere populatie van LTC-hPGCLC's. Voorbeelden van van PGCLC afgeleide afwijkende cellen die groeien op met BME beklede schalen zonder een feederlaag worden weergegeven in figuur 3. Het is belangrijk om een relatief hoge dichtheid van PGCLC-celcultuur te behouden om het risico op het induceren van ongewenste soorten cellen te verminderen.- Bereid BME-gecoate gerechten zoals eerder beschreven 42,43. Ontdooi de BME een nacht op ijs in een koelkast of een koude kamer. Ontdooi bevroren BME niet op kamertemperatuur en gebruik geen warmwaterbad.
- Aliquoot BME (~200 μl; het volume van een aliquoot wordt door de fabrikant voor elke batch bepaald en op het etiket van de injectieflacon vermeld) in steriele en voorgekoelde centrifugebuizen met een lage binding of cryopreservatiebuizen van cellen op ijs. Het is belangrijk om de BME tijdens het doseren ijskoud te houden om stolling te voorkomen. Bewaar de aliquots bij -80 °C.
- Verdun één aliquot BME met 25 ml ijskoude DMEM/F12 en verdeel over drie schaaltjes van 10 cm (~8 ml/schaaltje) of vier borden met 6 putjes (totaal 24 putjes, 1 ml per putje). Incubeer gerechten minimaal 1 uur op kamertemperatuur. Na het coaten kunnen gerechten worden afgesloten met transparante folie en maximaal 1 week bij kamertemperatuur worden bewaard.
- Zuig het medium direct voor gebruik van de vaat op. Het is niet nodig om de gecoate vaat te wassen.
- Behoud een relatief hoge dichtheid van LTC-PGCLC-cultuur op de BME om het ontstaan van ongewenste soorten cellen te onderdrukken. Passage PGCLC's wordt aanbevolen wanneer cellen een confluentie van meer dan 25% bereiken. De helft van het medium (1,5 ml/putje) moet worden vervangen door warm S-CM, vers aangevuld met 0,1 mM 2-mercaptoethanol, 50 μg/ml ascorbinezuur en 100 ng/ml humaan recombinant SCF.
OPMERKING: Het inoculeren van PGCLC's met een lagere dichtheid verhoogt het risico op het produceren van ongewenste cellen. Aangezien de populatieverdubbelingstijd van menselijke PGCLC's ongeveer 4,5 dagen41 is, is routinematig wekelijks passeren doorgaans voldoende om de langetermijncultuur in stand te houden. Opname van de ROCK-remmer (Y-27632) is alleen nodig na het passeren om de levensvatbaarheid van PGCLC te verbeteren. - Verstoor PGCLC's niet, die door een sterke stroom van het medium van de toevoerlaag kunnen worden losgemaakt.
OPMERKING: Omdat menselijke PGCLC's telomerase tot expressie brengen, vermenigvuldigen ze zich zonder duidelijke tekenen van veroudering, zoals verkorting van de telomeren of expressie van de senescentie-geassocieerde β-galactosidase41. - Wanneer menselijke PGCLC's een stabiele proliferatie bereikten zonder significante hoeveelheden ongewenste soorten cellen te genereren, moet u hun PGC-achtige kenmerken onderzoeken door expressieprofilering van markergenen.
OPMERKING: Analytische benaderingen die geschikt zijn voor karakterisering van elke afzonderlijke cel (zoals immunofluorescentie, FACS of enkelvoudige cel-RNA-seq) worden aangemoedigd om mogelijke besmetting van ongewenste celtypen te evalueren. Als de resultaten van dergelijke analyses de PGC-achtige aard van de PGCLC's ondersteunen, wordt de oprichting van een LTC-hPGCLC-cultuur bevestigd. - Bewaar LTC-PGCLC's ingevroren in een celvriesmedium (1 x 10⁶ cellen/ml per cryogene injectieflacon). Uitgaande van een totaal van 10.000 menselijke PGCLC's als uitgangsmateriaal, is de totale opbrengst van 1 x 10⁶ PGCLC's haalbaar in 6 weken. Plaats een papieren of plastic doos met de cryogene flesjes in een goed afsluitbare piepschuimdoos. Plaats de verzegelde doos een nacht in een vriezer van -80 °C om hem langzaam in te vriezen. Plaats de injectieflacons vervolgens in een vriezer van -80 °C of een tank met vloeibare stikstof.
- Volg de onderstaande stappen om de kweek te starten uit een flesje met ingevroren cellen.
- Ontdooi de cellen snel in een waterbad van 37 °C met handmatig schudden terwijl de bodem van de injectieflacon in water blijft. Wanneer >80% van de inhoud in de injectieflacon is ontdooid, droogt u de injectieflacon af met pluisvrije tissues of gelijkwaardig laboratoriumpapier en veegt u de dop af met een alcoholdoekje.
- Breng de cellen over naar een centrifugebuis van 15 ml met voorverwarmd (37 °C) PGCLC-basaal medium. Als er kleine bevroren cellen in de injectieflacon achterblijven, win deze dan terug met het PGCLC-basale medium door te pipetteren.
- Centrifugeer de cellen onmiddellijk bij 300 x g gedurende 5 minuten bij kamertemperatuur en verwijder het supernatant.
- Resuspendeer de celpellet met 9 ml voorverwarmd S-CM, vers aangevuld met 0,1 mM 2-Mercaptoethanol, 50 μg/ml ascorbinezuur, 100 ng/ml humaan recombinant SCF en 10 μM Y-27632. Suspendeer de cellen voorzichtig met behulp van 1.000 ml pipetpunten.
- Inoculeer 3 ml/putje in 3 putjes van de met BME beklede plaat om de kweek op gang te brengen. Schud de platen voorzichtig verticaal en horizontaal voor een gelijkmatige verdeling van de cellen. Vermijd cirkelvormige bewegingen van schudden, omdat een dergelijke beweging cellen naar het midden van de putjes zal verplaatsen. De levensvatbaarheid van cellen onmiddellijk na herstel uit een bevroren voorraad is doorgaans groter dan 80%.
Resultaten
Representatieve resultaten - PGCLC's vormen doorgaans zichtbare clusters op de MMC-STO-feederlaag binnen 2 weken na inoculatie (Figuur 1A-D). Het duurt ongeveer 3-4 weken voordat PGCLC's klaar zijn voor voedervrije teelt. Aangezien PGCLC's een sterke cytokinetische activiteit vertonen, is hun intercellulaire interactie zwak wanneer ze clusters vormen op de feederlaag (Figuur 1E,F). PGCLC's die uit de clusters komen, worden vaak waargenomen (Figuur 1F, rode pijlpunten). Zonder een feederlaag groeien LTC-PGCLC's als verspreide cellen met weinig tekenen van intercellulaire adhesie, zelfs als de celdichtheid hoog is (Figuur 3). Elke LTC-PGCLC behoudt de oorspronkelijke morfologie van de vers geïsoleerde menselijke PGCLC, met tekenen van actieve cytokinese. Wanneer cellen ontstaan die afwijken van de PGC-achtige morfologische kenmerken (Figuur 2), verbetert verrijking van PGCLC's door herhaalde differentiële adhesietechniek vaak de kweekkwaliteit. Als afwijkende cellen aanhouden, kan incidentele FACS-verrijking van PGCLC's als CD38-positieve cellen helpen.
Een eerdere publicatie heeft menselijke PGCLC's geïdentificeerd als PRDM1-positieve, TFAP2C-positieve, maar SOX2-negatieve cellen41. Ze brengen ook POU5F1 tot expressie, maar hun voorloper iPSC's brengen ook deze pluripotentiemarker41 tot expressie. Het wordt sterk aangemoedigd om de opbrengst en expressieprofielen van de expanderende humane PGCLC's op celniveau zo vroeg mogelijk te bevestigen met behulp van genetisch induceerbare markers, immunofluorescentie, FAC's of eencellig RNA-seq. Zonder dergelijke bevestigende analyses kunnen de opbrengst en kwaliteit van menselijke PGCLC's in aanwezigheid of afwezigheid van de feedercellen echter gemakkelijk worden geschat met behulp van de standaard fasecontrastmicroscopie, zoals weergegeven in Figuur 1, Figuur 2 en Figuur 3.
Tijdens de langetermijncultuur behouden LTC-PGCLC's een homogene celpopulatie met een actief prolifererende subpopulatie, zoals eerdere eencellige RNA-seq-gegevens aantoonden41. Het transcriptomische profiel van de oorspronkelijke PGCLC's blijft grotendeels behouden, behalve dat de expressie van de PGCLC-markers GATA2 en GATA3 in een vroeg stadium snel verloren gaat41. Het wereldwijde DNA-methylatieniveau in menselijke iPSC's is ongeveer 73% en daalt tot ongeveer 64% in de vers geproduceerde PGCLC's41. Het wereldwijde DNA-methylatieniveau daalt verder in LTC-PGCLC's tot ongeveer 54% na 12 weken van in vitro expansie41. De meeste transcriptomische en epigenetische kenmerken van menselijke LTC-PGCLC's zijn volledig omgekeerd aan die in de oorspronkelijke iPSC's wanneer ze worden omgezet in de pluripotente embryonale kiemcellen, behalve dat de allelspecifieke epigenetische markeringen in verschillende inprentingscontrolegebieden worden gewist in PGCLC's en nooit worden teruggedraaid41.
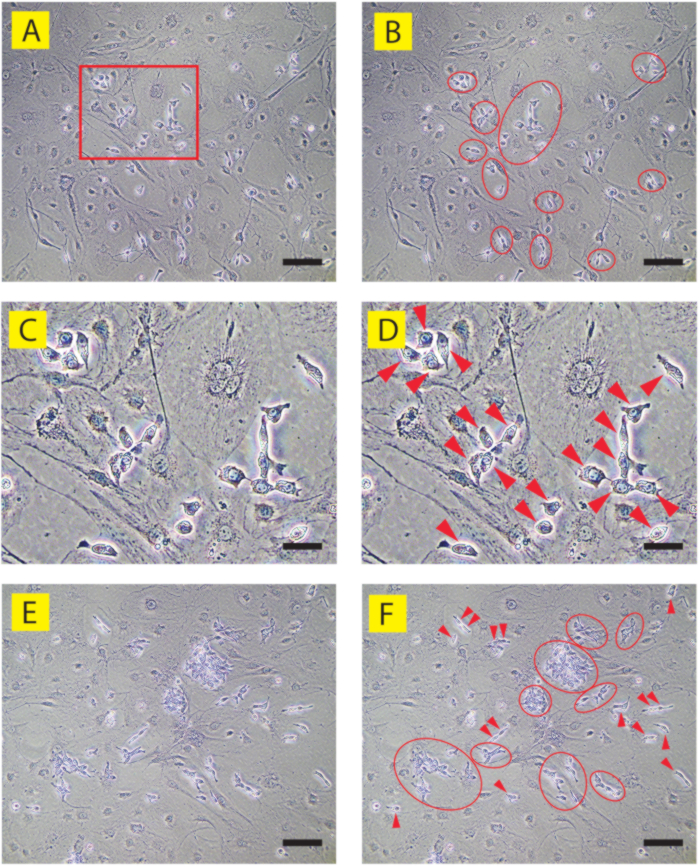
Figuur 1: Fasecontrastbeelden van correcte humane PGCLC's op de STO-feederlaag (humane iPSC-kloon 9A13). (A, C, E) zijn respectievelijk geannoteerd in (B, D, F). (A-D) Dag 6 cultuur. Een deel van (A) weergegeven in een rode rechthoek wordt vergroot in (C, D). De meeste PGCLC's worden waargenomen als verspreide cellen die vaak losse clusters (rode ovalen) vormen. Individuele PGCLC's (rode pijlpunten) vormen geen nauw contact met elkaar en worden onder fasecontrastmicroscopie gemakkelijk geïdentificeerd als cellen die uit de verslechterende, platte en wijd verspreide STO-feedercellen steken. (E, F) Dag 15 cultuur. Meerdere clusters van PGCLC's zijn gemakkelijk te identificeren (rode ovalen), terwijl het intercellulaire contact nog steeds los is. Sommige PGCLC's worden buiten de clusters gevonden, vaak als duplets (rode pijlpunten), die hun actieve proliferatie weerspiegelen terwijl ze willekeurig migreren op en tussen de sterk aangetaste feederlaag. Schaalbalken = 50 μm (A, B, E, F) of 15 μm (C, D). Klik hier om een grotere versie van deze figuur te bekijken.
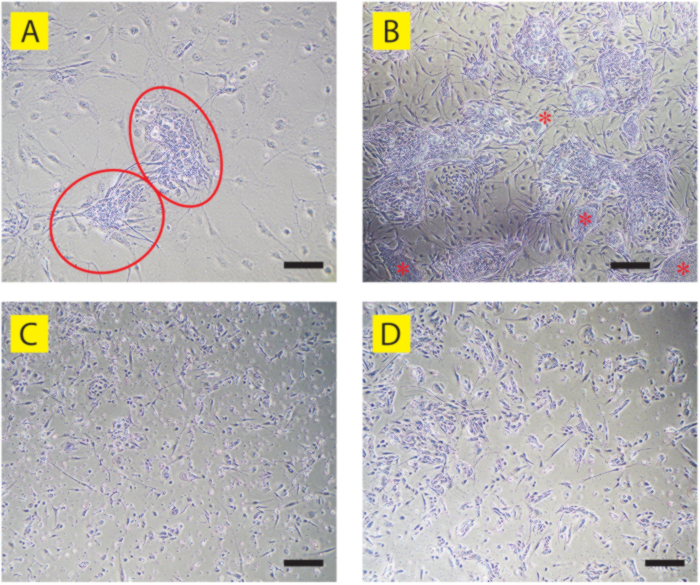
Figuur 2: Fasecontrastbeelden van menselijke PGCLC's die afwijken van de PGC-achtige kenmerken. (A) Twee afwijkende clusters van PGCLC's (rode ovalen) verschenen in de Dag 9-cultuur van 9A13 PGCLC's op de STO-feederlaag. Anders dan de juiste PGCLC-clusters (zie figuur 1A-D), vertonen cellen een sterk intercellulair contact dat de grenzen van elke individuele cel verdoezelt. (B) Dag 18 cultuur van menselijke PGCLC-cultuur getoond in (A). Er worden meerdere afwijkende PGCLC-clusters waargenomen, waarvan sommige dichte kolonies vertonen die lijken op de voorloper van menselijke iPSC's (rode sterretjes). Merk op dat de meeste fibroblastachtige langwerpige cellen die tussen de clusters worden gevonden, ook PGCLC-afgeleide afwijkende cellen zijn, terwijl de meeste STO-feedercellen verslechterd en losgeraakt zijn. (C) LTC-hPGCLC's (menselijke iPSC-kloon B6) die massale celdood en afwijkende morfologieën vertonen op BME-gecoate, feedervrije schotels. (D) LTC-hPGCLC's die grotendeels zijn afgeweken van cellen met afwijkende morfologieën op BME-gecoate, feedervrije schotels (menselijke iPSC-kloon T548). Vergelijk deze afwijkende LTC-hPGCLC's met de juiste LTC-hPGCLC's die worden weergegeven in Figuur 3B. Schaalbalken = 50 μm (A, B) of 100 μm (C, D). Klik hier om een grotere versie van deze figuur te bekijken.
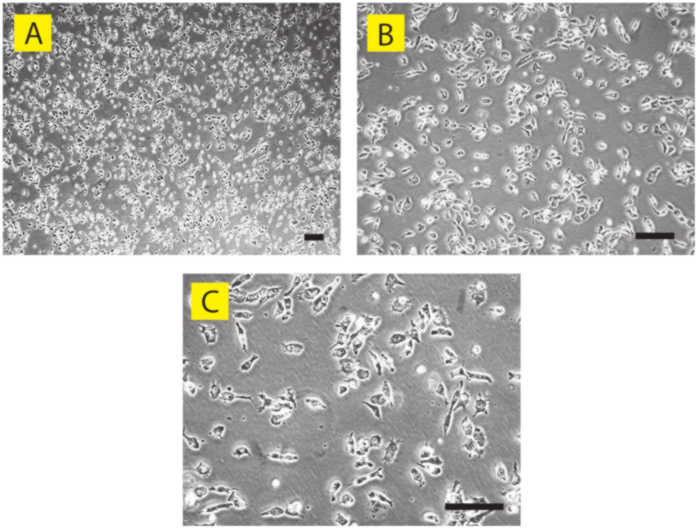
Figuur 3: Fasecontrastbeelden van correcte menselijke PGCLC's als feedervrije cultuur (menselijke iPSC-kloon A4). Dag 56 De feedervrije teelt van LTC-PGCLC's op BME-gecoate schotels wordt weergegeven in (A) lage, (B) middelste en (C) hoge vergrotingen. Hoewel de celdichtheid relatief hoog is, vormt elke individuele PGCLC geen nauwe intercellulaire contacten, behalve voor cellen die onlangs de celdeling hebben voltooid. Door de actieve cytokinese vertonen sommige PGCLC's een langwerpige morfologie, terwijl andere rond van vorm zijn. Schaalbalken = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
| PGCLC Basaal Medium | |
| Ingrediënten | Volume |
| MEM van Glasgow | 500 ml |
| Knock-out serum vervanging (KSR) | 75 ml |
| MEM NEAA (100X) | 6 ml |
| Natriumpyruvaat (100X) | 6 ml |
| Penicilline-Streptomycine (100X) | 6 ml |
Tabel 1: PGCLC basaal medium. Samenstelling van het PGCLC basaal medium (593 ml).
| STO middel 1 | |
| Ingrediënten | Deele |
| MEM van Dulbecco | 445 ml |
| Foetaal kalf serum | 50 ml |
| Penicilline-Streptomycine (100X) | 5 ml |
Tabel 2: STO medium 1. Samenstelling van het STO-medium 1 (500 ml).
| STO middel 2 | |
| Ingrediënten | Volume |
| MEM van Dulbecco | 47 ml |
| Foetaal kalf serum | 2,5 ml |
| Penicilline-Streptomycine (100X) | 0,5 ml |
| FGF2 (200 μg/ml) | 2,5 μL |
Tabel 3: STO medium 2. Samenstelling van het STO-medium 2, dat wordt aangevuld met FGF2 voor verhoogde groei van STO-cellen (50 ml).
| MMC-STO Opslagmedium | |
| Ingrediënten | Volume |
| MEM van Dulbecco | 42,5 ml |
| Foetaal kalf serum | 5 ml |
| Dimethylsulfoxide | 2,5 ml |
Tabel 4: MMC-STO opslagmedium. Samenstelling van het MMC-STO opslagmedium, dat wordt gebruikt voor het bereiden van diepgevroren voorraden MMC-behandelde STO-feedercellen (50 ml).
Discussie
De methode voor menselijk PGCLC-onderhoud die in dit artikel wordt beschreven, is relatief eenvoudig zonder dat er specifieke apparaten of niet-standaard materialen nodig zijn. Eerder gepubliceerde methoden voor het onderhoud van PGCLC bij de mens vereisen frequente FACS-sortering vanwege een significante afwijking van cellen van PGCLC-achtige status38. Deze methoden vereisen ook een niet-standaard feeder layer cellijn (m220-5), die niet direct beschikbaar is via openbaar en internationaal toegankelijke repositories39,40. De opname van FCS in hun media introduceert onzekerheid als gevolg van de afhankelijkheid van de prestaties van een specifieke partij van het serum. Daarentegen verkrijgt de momenteel gepresenteerde methode gemakkelijk vele miljoenen menselijke PGCLC's, die diepgevroren kunnen worden bewaard met behoud van een hoge levensvatbaarheid (> 90%), zonder dat serum of andere dierlijke reagentia nodig zijn. Het protocol vereist de standaard STO-feederlaagcellijn, die algemeen beschikbaar is in veel openbare repositories. De methode biedt een ongekend niveau van gemak om menselijke PGCLC's te hanteren alsof het conventionele cellijnen zijn. De onbeperkte aanvoer van menselijke PGCLC's die met deze methode wordt bereikt, zal het toepassingsgebied van menselijke PGCLC-toepassingen verbreden op gebieden zoals experimentele producties van menselijke kiemcellen en/of gameten, beoordelingen van menselijke kiemcelaandoeningen zoals onvruchtbaarheid (met inbegrip van pogingen tot in-vitrogametogenese) of kiemceltumoren, en toxicologische beoordelingen van prospectieve kiemceltoxische stoffen.
De methode sluit FCS in de S-CM uit om het ontstaan van ongewenste soorten cellen uit menselijke PGCLC's41 te minimaliseren. Verschillende iPSC-klonen hadden de neiging om ongewenste soorten cellen te produceren tijdens de feeder-afhankelijke fase of daarna, en sommigen van hen moesten twee of drie rondes FACS-zuivering van PGCLC's ondergaan. Zodra de LTC-PGCLC-cultuur echter is gevestigd met een samenvloeiing van meer dan 50%, wordt de noodzaak van FACS-zuivering doorgaans verminderd. De groei van humane PGCLC's in vitro is strikt afhankelijk van de aanwezigheid van SCF41. Als de groeisnelheid van LTC-PGCLC's afneemt, wordt aanbevolen om verschillende partijen of SCF-reagentia van fabrikanten te testen. Omdat menselijke PGCLC's telomerase tot expressie brengen, ervaren ze geen veroudering tijdens langdurige expansie in vitro41. Het is met succes gebruikt om LTC-PGCLC's vast te stellen die zijn afgeleid van mannelijke en vrouwelijke menselijke iPSC's met verschillende etnische achtergronden41. Voorbeelden van succesvolle toepassing van de momenteel gepresenteerde methode zijn mannelijke menselijke iPSC-klonen A4 en A5 (Kaukasische pasgeborene), PGP1 (blanke volwassene) en 9A13 (Japanse volwassene), en vrouwelijke iPSC-klonen ATCC-BXS0116 (Kaukasisch) en ATCC-BXS0115/ACS-1029 (Spaans). De algemene toepasbaarheid van deze methode en voorspellingsmarkers moet in toekomstige studies worden vastgesteld.
De noodzaak van incidentele FACS-zuivering van menselijke PGCLC's hangt af van de voorloper van de iPSC-kloon. Terwijl een paar iPSC-klonen nooit FACS-verrijking nodig hadden na de eerste isolatie van PGCLC's als CD38-positieve cellen, moesten sommige PGCLC's tot drie keer worden verrijkt als CD38-positieve cellen door FACS tijdens de feeder-afhankelijke fase. Met FACS verrijkte PGCLC's werden geënt in vers bereide MMC-STO-feeders. FACS-verrijking is doorgaans niet bij elke passage vereist zodra PGCLC's beginnen met stabiele amplificatie op de BME zonder de feeder.
Gedetailleerde gegevens over het aandeel cellen dat de PGC-achtige kenmerken behoudt versus cellen die afwijken van ongewenste celtypen voor de individuele iPSC-kloon bij elke passaging zijn momenteel niet beschikbaar. Over het algemeen is de LTC-hPGCLC-cultuur gestabiliseerd na 2-4 weken cultuur met herhaald passeren. Wanneer menselijke PGCLC's de neiging hebben om ongewenste soorten cellen te genereren, kan de differentiële adhesiemethode PGCLC's effectief verrijken, aangezien de meeste ongewenste cellen de neiging hebben om sterker aan de kweekschaal te hechten dan PGCLC's. Als herhaalde pogingen tot differentiële adhesie de PGCLC-verrijking niet helpen, elimineert FACS-verrijking van menselijke PGCLC's als CD38-positieve cellen vaak de ongewenste cellen, en daarna kan de zuivere LTC-hPGCLC worden gehandhaafd met behulp van alleen de differentiële adhesiemethode. Het opzetten van een langetermijncultuur van menselijke PGCLC's gegenereerd met behulp van de 2D-methode beschreven door Overeem et al. was soms een uitdaging. Dezelfde menselijke PGCLC's die apoptoseresistentie kregen door CRISPR-knock-out van pro-apoptotische genen, werden echter gemakkelijk uitgebreid naar LTC-hPGCLC's. Details van de compatibiliteit van deze methode met elke individuele menselijke iPSC's en PGCLC's moeten in toekomstige studies worden onderzocht.
Terwijl de met MMC behandelde STO-feederlaagcellen aanvankelijk de overleving en proliferatie van vers geïsoleerde menselijke PGCLC's ondersteunen, breiden snel prolifererende PGCLC's zich in vitro uit zonder een feederlaag, zolang ze worden ondersteund door het STO-geconditioneerde medium en de BME-coating van de schalen. Het unieke voordeel van de momenteel gepresenteerde methode ten opzichte van andere benaderingen is de mogelijkheid om LTC-hPGCLC's op te zetten als een feeder-vrije cultuur. De cellen van de MMC-STO-feederlaag vertonen na 5-6 dagen kweek de eerste tekenen van achteruitgang in het S-CM-medium. Tegen dag 6-7 (Figuur 1A-D) vertoont de feederlaag bescheiden schade, die duidelijker wordt op dag 14-15 (Figuur 1E,F). Bij afwezigheid van de feedercellen is het overlevingspercentage van vers geïsoleerde menselijke PGCLC's doorgaans laag, blijkbaar vanwege hun slechte efficiëntie bij het hechten aan de bodem van celkweekschalen. Er wordt gespeculeerd dat de extracellulaire matrixeiwitten die door de MMC-STO-cellen worden afgezet, de adhesie en overleving van PGCLC's vergemakkelijken, zelfs nadat de MMC-STO-cellen zijn verslechterd. Zodra het aantal menselijke PGCLC's op dag 14-15 voldoende groot wordt om zichtbare clusters te vormen, kan de extracellulaire matrix die door de PGCLC's zelf wordt afgezet, voldoende zijn om hun verdere overleving en proliferatie te ondersteunen. Ter ondersteuning van deze veronderstelling leidt inoculatie van vers geïsoleerde menselijke PGCLC's met een hoge dichtheid (bijv. 100.000 cellen in een putje van een plaat met 12 putjes) naar feedervrije, BME-gecoate putjes vaak tot een succesvolle uitbreiding van de LTC-hPGCLC-cultuur. Aan de andere kant is het gebruik van het MMC-STO-geconditioneerde medium absoluut vereist in de hele menselijke PGCLC-cultuur, wat het belang benadrukt van voortdurende conditionering door de MMC-STO-cellen.
Het is belangrijk om een relatief hoge dichtheid van LTC-PGCLC-cultuur op BME te behouden om het ontstaan van ongewenste soorten cellen te onderdrukken. Het wordt aanbevolen om PGCLC's te passeren met een samenvloeiing van meer dan 25%. Het inoculeren van PGCLC's met een lagere dichtheid verhoogt het risico op het produceren van ongewenste cellen. Aangezien de populatieverdubbelingstijd van menselijke PGCLC's ongeveer 4,5 dagen41 is, is routinematig wekelijks passeren doorgaans voldoende om de langetermijncultuur in stand te houden. Als een groot deel van de PGCLC's afwijkt van hun PGC-achtige eigenschappen, en als de differentiële adhesietechniek of FACS onvoldoende is om de ongewenste cellen te verwijderen, overweeg dan inoculatie van de MMC-STO-feederlaag op BME-gecoate putjes in plaats van gelatinecoating, en/of verlengde cultuur van MMC-STO-cellen tot 3 of 4 dagen vóór inoculatie van PGCLC's.
De morfologische en markerexpressie-kenmerken van de ongewenste celtypen variëren aanzienlijk, hoewel ze gemakkelijk kunnen worden geïdentificeerd onder de standaard fasecontrastmicroscopie (Figuur 2). Cellen met geaggregeerde groeikenmerken of afgeplat uiterlijk wijken af van PGC-achtige kenmerken. De expressie van de standaard PGC-markers zoals PRDM1 of TFAP2C is doorgaans verminderd in dergelijke ongewenste cellen, hoewel er momenteel geen duidelijke criteria beschikbaar zijn om de ongewenste celpopulatie te onderscheiden van de overtuigend PGC-achtige celpopulatie, wat kan worden bevestigd door immunofluorescentiekleuring, FACS of eencellig RNA-seq. Op dit moment is de identiteit of relevantie van de niet-PGC-celtypen die ontstaan tijdens de expansie van LTC-hPGCLC's onbekend.
Hoewel de in dit artikel gepresenteerde methode gebruik maakt van de STO-feederlaagcellen, kunnen de SNL 76/7-cellen ook worden gebruikt voor de productie van het geconditioneerde medium en de feederlaag. Sommige PGCLC-culturen waren in staat zich aan te passen aan de langetermijncultuur zonder de feeder-afhankelijke cultuur te doorlopen, vooral bij het initiëren van de cultuur met een grote inoculumgrootte (>100.000 cellen). Aan de andere kant kan het opzetten van een LTC-PGCLC-cultuur een uitdaging zijn wanneer de initiërende grootte kleiner is dan 10.000 cellen. Hoewel de belangrijkste componenten van het STO-geconditioneerde medium al eerder zijn beschreven, zijn er nog geen componenten geïdentificeerd die PGCLC-expansie op de lange termijn ondersteunen44.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te onthullen.
Dankbetuigingen
Dit werk werd ondersteund door NIH-subsidies R01ES035401, R21ES034468, R21HD110839, R21DA059789 en R21CA290650 aan TS. TS is ook een subaward ontvanger van een John Templeton Foundation grant 63299 (PI, John McCarrey, University of Texas, San Antonio). Een deel van de gepresenteerde studie werd ook ondersteund door het James Patrick Stowe Fund (PI, Philip Saylor, Massachusetts General Hospital).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 6-well cell culture plates | Corning | 3506 | |
| Accutase | Innovative Cell Technologies | AT104 | Bewaar bij -20 °C gedurende 6 maanden. |
| Cell culture-treated 10 cm plastic dishes (P10 dishes) | Corning | 353003 | |
| Cell culture-treated 15 cm plastic dishes (P15 dishes) | Corning | 353025 | |
| Cryogenic vial | Millipore-Sigma | CLS431417 | |
| CryoStor CS10 | STEMCELL Technologies | 7930 | Bewaar bij 4 °C. |
| Dimethyl Sulfoxide | Fisher Scientific | BP231-1 | Bewaar bij kamertemperatuur. Celcultuurkwaliteit. |
| Dulbecco;s Phosphate-Buffered Saline (Ca/Mg free) (DPBS) | Gibco | 14190144 | Bewaar bij kamertemperatuur. Celcultuurkwaliteit. |
| Dulbecco's Minimum Essential Medium (Dulbecco's MEM) | Corning | 10-013-CM | Bewaar bij 4 °C. nGebruik medium met 4,5 g/L glucose, 1X L-glutamine en 1X natriumpyruvaat. |
| Fetal Calf Serum | CPS Serum | FBS-500 | Bewaar bij -20 °C gedurende 12 maanden. |
| Gelatin | STEMCELL Technologies | 7903 | 0,1% in water. Sterile. |
| Glasgow's Miminum Essential Medium (Glasgow's MEM) | Gibco | 11710-035 | Bewaar bij 4 °C. |
| Human recombinant fibroblast growth factor 2 (FGF2) | PeproTech | 100-18B | Bewaar bij -80 °C gedurende 3 maanden. |
| Human recombinant stem cell factor (SCF) | PeproTech | 300-07 | Reconstitueer in water volgens de instructies van de fabrikant. Bewaar bij -80 °C gedurende 3 maanden. |
| Knockout Serum Replacementq | Gibco | 10828-028 | Bewaar bij -20 °C gedurende 6 maanden. |
| Matrigel (human embryonic stem cell qualified) | Corning | 354277 | |
| Minimum Essential Medium Non-essential amino acids (MEM NEAA) | Gibco | 11140-050 | Bewaar bij 4 °C. |
| Mitomycin-C (10 mM in water) | Millipore-Sigma | M5353 | Los Mitomycin-C (MMC) op in water en filter-steriel (0,22 mM poriegrootte). Bewaar 100 mL aliquoten bij -20 °C gedurende 6 maanden. Om bevroren MMC te ontdooien, ontdooi paarse kristallen in een heet waterbad (>60 °C) tot een donkerpaars oplossing. |
| Penicillin-Streptomycin (100X) | Gibco | 15140-122 | Bewaar bij 4 °C. |
| Plastic centrifuge tubes (15 mL) | Corning | 352196 | |
| Plastic centrifuge tubes (50 mL) | Corning | 352070 | |
| Sodium Pyruvate (100X) | Gibco | 11360-070 | Bewaar bij 4 °C. |
| STO mouse embryonic fibroblasts | ATCC | CRL-1503 | |
| Trypan blue (0.4%) | Fisher Scientific | T10282 | Bewaar bij kamertemperatuur. |
| TrypLE Express | Gibco | 12604-013 | Bewaar bij kamertemperatuur. |
| Y-27632 (10 mM in water) | Tocris | 1254 | Los Y-27362, een ROCK-remmer, op in water tot 10 mM en filter-steriel (0,22 mM poriegrootte). Bewaar 100 mL aliquoten bij -20 °C gedurende 6 maanden. |
Referenties
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar