Hier beschrijven we een eenvoudige en snelle procedure voor het detecteren van DNA van bijenpathogenen, zoals Lotmaria passim en Nosema ceranae, met behulp van een amplificatie-ready cellysis, recombinasepolymeraseamplificatie en CRISPR/Cas12a-assays.
Methodenartikel
On-site DNA-detectie van trypanosomatide parasieten en Nosema ceranae door middel van alkalische lysis gekoppeld aan RPA/CRISPR/Cas12a-systeem
In dit artikel
Erratum-melding
Important: There has been an erratum issued for this article. View Erratum Notice
Samenvatting
Samenvatting
Vroege detectie ter plaatse van microscopisch kleine pathogenen is essentieel voor het effectieve beheer en de gezondheid van honingbijenkolonies. Momenteel is de gouden standaard voor moleculaire detectie van bijenpathogenen qPCR of RT-qPCR. Hier presenteren we een snel, gevoelig en kosteneffectief alternatief voor in het veld inzetbare detectie van DNA-pathogenen. Deze methode combineert directe, amplificatie-ready cellyse van het achterlijf van werkbijen met recombinasepolymeraseamplificatie (RPA), CRISPR/Cas12a-gemedieerde trans-splitsing van reportersondes en detectie via laterale flow-assays. We hebben dit protocol met succes gevalideerd bij honingbijen die besmet zijn met Nosema ceranae en Lotmaria passim. Het beschreven protocol kan worden uitgevoerd met behulp van een eenvoudig warmteblok of bij kamertemperatuur en is mogelijk van toepassing op elke op DNA gebaseerde ziekteverwekker of darmmicrobiota van de honingbij. Het hele proces duurt ongeveer 180 minuten en bereikt een gevoeligheid die vergelijkbaar is met qPCR, waarbij slechts 96 parasitaire kopieën/μL worden gedetecteerd. Concluderend biedt deze aanpak een veelbelovend hulpmiddel voor een betrouwbare en snelle velddiagnose van honingbijinfecties zonder dat er complexe laboratoriumapparatuur nodig is, waardoor het ideaal is voor koloniebewaking ter plaatse.
Inleiding
Bijen zijn sleutelsoorten die betrokken zijn bij de bestuiving van planten en zijn essentieel voor de voortplanting van planten, de biodiversiteit en de voedselzekerheid1. Hun bestuivingsdiensten komen ten goede aan een breed scala aan gewassen met een hoge economische waarde, die jaarlijks naar schatting $ 235-577 miljard bijdragen aan de wereldwijde landbouw. De wereldwijde achteruitgang van de bijenpopulaties heeft echter ernstige zorgen gewekt vanwege de mogelijke gevolgen voor de ecologische stabiliteit en de productiviteit van gewassen, die hebben geleid tot een geschat verlies van $ 4.8-16.3 miljard in arme landen met een zware schuldenlast2. De massa van het verdwijnen van bijen omvat meerdere interacties tussen verschillende factoren: toepassing van pesticiden, verlies van leefgebied, klimaatverandering en infecties door ziekteverwekkers, waaronder virussen, bacteriën, schimmels en protisten.
Onder deze micro-organismen zijn Nosema spp., een microsporidische schimmel die de werking van de darm verstoort, en trypanosomatide parasieten - met name Lotmaria passim - wijd verspreid in honingbijenkolonies over de hele wereld3, 4. Recente bevindingen tonen aan dat L. passim-infecties , zelfs als ze asymptomatisch zijn, immuungerelateerde genen kunnen downreguleren en het energiemetabolisme bij honingbijen kunnen veranderen, waardoor hun veerkracht onder extra stress mogelijk in gevaar komt5. Evenzo verminderen Nosema spp.-infecties de levensduur van bijen, onderdrukken ze de immuunfunctie en verstoren ze de foerageerdynamiek van de kolonie, wat leidt tot een verminderde honingproductie en een verhoogde koloniesterfte. Bovendien kunnen co-infecties waarbij zowel Nosema spp. als trypanosomatiden betrokken zijn, synergetische effecten hebben, waardoor fysiologische stress verergert en de afweer van de gastheer wordt verzwakt. Deze bevindingen onderstrepen het belang van het gelijktijdig monitoren van meerdere ziekteverwekkers.
Het aanpakken van deze bedreigingen vereist de ontwikkeling van snelle en nauwkeurige diagnostische hulpmiddelen, die op hun beurt afhankelijk zijn van een beter begrip van de biologie, overdracht en overlevingsstrategieën van deze pathogenen6. De detectie van deze ziekteverwekkers door middel van traditionele methoden, waaronder lichtmicroscopie en moleculaire amplificatie, blijft betrouwbaar, maar stuit op bepaalde beperkingen. Voorbeelden van qPCR, RTqPCR (vereist cycli bij verschillende temperaturen) en isotherme methoden, zoals Loop Mediated Amplification (LAMP, werkt bij constante temperatuur), zijn ontwikkeld voor schimmel-, virale, bacteriële of protozoaire parasieten 6,7,8,9,10. De implementatie van deze methoden vereist echter gespecialiseerde apparatuur, samen met opgeleid personeel en goed uitgeruste laboratoriumfaciliteiten, wat hun bruikbaarheid voor veldtoepassingen en grootschalige monitoring beperkt. Om deze problemen aan te pakken, zijn nieuwe moleculaire technieken ontwikkeld - de amplificatie van DNA-doelen met recombinasepolymeraseamplificatie (RPA), samen met op CRISPR/Cas12a gebaseerde detectie - een snelle, specifieke en gevoelige benadering. De methode werkt isotherm en levert visuele resultaten op die het geschikt maken voor diagnostiek ter plaatse of op het zorgpunt, volgens Shao et al.11 en Xiao et al.12.
RPA is een eenvoudige en snelle DNA-amplificatiemethode die werkt bij een constante temperatuur, meestal tussen 37 °C en 42 °C. Het vertrouwt op recombinase-enzymen, enkelstrengs DNA-bindende eiwitten en een strengverdringend polymerase om DNA te amplificeren zonder dat thermische cycli nodig zijn. RPA is vooral geschikt voor testen ter plaatse en velddiagnostiek vanwege de snelheid, minimale apparatuurvereisten en compatibiliteit met ruwe monsters 11,12,13. Om de specificiteit te verbeteren, kan het RPA-product worden gedetecteerd met behulp van het Cas12a-endonuclease, dat ook binnen hetzelfde temperatuurbereik functioneert. Cas12a bindt aan een CRISPR-gids-RNA (gRNA), een kort RNA dat Cas12a naar de geamplificeerde doelsequentie leidt en bindt aan de complementaire sequentie in het DNA. Bij binding wordt Cas12a geactiveerd en vertoont het collaterale (trans) splitsingsactiviteit, specifiek tegen enkelstrengs DNA (ssDNA). Dit maakt het gebruik mogelijk van ssDNA-reportermoleculen die zijn gelabeld met fluoroforen of biotine, die fluorescentie- of visuele signalen kunnen genereren, inclusief uitlezingen van laterale flowstrips. Samen vormen RPA en CRISPR/Cas12a een krachtig moleculair diagnostisch platform dat snel en gevoelig is en geschikt is voor gebruik in omgevingen met beperkte of beperkte middelen12.
Om de bruikbaarheid van deze moleculaire diagnostische benadering verder te verbeteren, hebben we ook een vereenvoudigde amplificatie-ready cellyse (ARCL)-methode geïmplementeerd op basis van natriumhydroxide (NaOH)-lysis van bijenabdomens11,14, waardoor uitgebreide monstervoorbereiding en laboratoriumreagentia niet meer nodig zijn. Deze snelle nucleïnezuurextractietechniek, gecombineerd met de isotherme amplificatie en het CRISPR/Cas12a-detectiesysteem, maakt een echt in het veld inzetbare workflow mogelijk die zowel tijd als kosten aanzienlijk vermindert. Belangrijk is dat de test de kwaliteit, hoge gevoeligheid en specificiteit behoudt die vergelijkbaar zijn met qPCR, de huidige gouden standaard voor de detectie van ziekteverwekkers bij bijen.
Hier hebben we deze methodologie met succes toegepast voor de detectie van Nosema ceranae en L. passim in honingbijen (Figuur 1). We vergeleken deze methode met standaard qPCR-assays en valideerden de prestaties ervan met behulp van natuurlijk geïnfecteerde monsters. Onze bevindingen tonen aan dat deze aanpak een praktisch en betrouwbaar alternatief is voor veldgebaseerde monitoring van de gezondheid van honingbijen, met een sterk potentieel voor grootschalige surveillance en vroege interventie-inspanningen in de bijenteelt.
Protocol
Alle procedures werden uitgevoerd in overeenstemming met institutionele en nationale richtlijnen voor het werken met ongewervelde dieren en het gebruik van het laagste aantal bijen dat nodig is voor proof of concept. Honingbijen werden vervoerd in gespecialiseerde bijenkorfkasten met ventilatie en de juiste temperatuur en opgeslagen in het laboratorium bij -20 °C tot analyse.
1. HotSHOT alkalische cel lysis
- Voorbereiding van de oplossing
- HotSHOT Lysis buffer-voorbereiding van 100 ml
- Weeg 99.993 mg NaOH en 8.32 mg EDTA af, voeg 90 ml gedestilleerd water toe en meng. Stel de pH in op 12 en het volume op 100 ml; autoclaaf.
- 40 mM Tris-HCl, pH 5
- Voeg aan 484.544 mg Tris 90 ml gedeïoniseerd water toe, pas de pH aan op 5 met HCl en breng het volume op 100 ml.
- HotSHOT Lysis buffer-voorbereiding van 100 ml
- Protocol van Lysis
- Ontleed het achterlijf van de bij met behulp van een steriel scalpel en breng het ontlede weefsel over in een microcentrifugebuis van 1,5 ml.
OPMERKING: Voor de detectie van ziekteverwekkers werden alleen de buiken gebruikt en werden de overige lichaamsdelen weggegooid. - Voeg 400 μL HotSHOT-buffer toe, macereer het weefsel met een wegwerpstamper en homogeniseer het verder door vortexing.
OPMERKING: De stamper kan worden hergebruikt als hij wordt ontsmet door het materiaal een nacht te incuberen in een 0,1 N NaOH-oplossing, vervolgens te spoelen met dubbel gedeïoniseerd water, gevolgd door een autoclaafcyclus en vervolgens te drogen in een broedmachine. - Incubeer het homogenaat gedurende 10 minuten bij 95 °C om de cellen te lyseren. Plaats de buis na incubatie onmiddellijk op ijs om af te koelen.
- Om de reactie te neutraliseren, voegt u een gelijk volume (400 μL) van 40 mM Tris-HCl toe, wat resulteert in een uiteindelijke concentratie van 20 mM Tris-HCl in de oplossing.
OPMERKING: Deze lysisprocedure wordt geïllustreerd in figuur 2.
- Ontleed het achterlijf van de bij met behulp van een steriel scalpel en breng het ontlede weefsel over in een microcentrifugebuis van 1,5 ml.
2. Isotherme versterking door RPA
OPMERKING: Het ontwerp van de primers is gemaakt met behulp van de eprimer3-softwaretool (https://www.bioinformatics.nl/cgi-bin/emboss/eprimer3), hoewel ook andere tools voor het ontwerpen van primers kunnen worden gebruikt.
- Voorbereiding van werkende oplossingen
- RPA primer oplossingen
- Bereid voorraadoplossingen in een concentratie van 100 μM volgens de instructies van de fabrikant. Reconstitueer bijvoorbeeld 10,0 nmol gevriesdroogde primer in 100 μL diethylpyrocarbonaat (DEPC)-behandeld water en bewaar bij -20 °C. Bereid werkoplossingen voor in een concentratie van 10 μM door de voorraad 1:10 te verdunnen; meng 90 μL DEPC-behandeld water met 10 μL van de 100 μM stockoplossing in een tube van 0,2 ml. Bewaar deze oplossingen bij -20 °C.
- RPA primer oplossingen
- RPA-protocol
- Bereid de mastermix voor op basis van het aantal uit te voeren reacties. Neem zowel een negatieve controle op (waarbij ARCL wordt vervangen door met DEPC behandeld water) als een positieve controle met behulp van DNA van pathogenen (in dit voorbeeld DNA van celcultuur L. passim promastigoten en bijen die positief zijn voor Nosema spp. (sporen gedetecteerd door microscopie)) (Tabel 1).
OPMERKING: Bereid de RPA-mastermix altijd op ijs en gebruik filtertips om besmetting te voorkomen. - Breng een hoeveelheid van 46,5 μl van het mastermengsel over in elke buis van 0,2 ml.
- Voeg magnesiumacetaat (MgOAc) en sjabloon-DNA toe aan de doppen van de buisjes, volgens de in tabel 2 aangegeven hoeveelheden. Centrifugeer de buisjes kort om de inhoud te mengen en de RPA-reactie op gang te brengen.
OPMERKING: Voor een betere reproduceerbaarheid moeten alle componenten voor gebruik kort worden gevortex en gecentrifugeerd. In elke partij moeten positieve en negatieve controles worden opgenomen om de reactie te valideren. - Incubeer de monsters gedurende 40 minuten bij 39 °C voor de RPA-amplificatiereactie.
OPMERKING: Na incubatie kunnen RPA-reacties direct worden gebruikt voor stroomafwaartse detectie (bijv. op CRISPR/Cas12a gebaseerde assays), beschreven in sectie 3.
- Bereid de mastermix voor op basis van het aantal uit te voeren reacties. Neem zowel een negatieve controle op (waarbij ARCL wordt vervangen door met DEPC behandeld water) als een positieve controle met behulp van DNA van pathogenen (in dit voorbeeld DNA van celcultuur L. passim promastigoten en bijen die positief zijn voor Nosema spp. (sporen gedetecteerd door microscopie)) (Tabel 1).
3. Detectie van DNA van pathogenen door CRISPR/Cas12a
OPMERKING: Detectie na RPA kan op verschillende manieren worden uitgevoerd. In dit protocol zullen we de detectie door middel van fluorescentie (FAM-TTTTTTTT-MGB) en immunochromatografische strips (Biotine-TTTTTTTT-FITC) in detail beschrijven.
Voer alle procedures uit in een schone, DNA-vrije ruimte (bijv. speciale PCR-ruimte). Reinig werkbladen en pipetten met 0,5% bleekmiddel, gevolgd door 70% ethanol. Gebruik altijd filtertips en draag handschoenen. Behandel DNA of geamplificeerd materiaal in een andere ruimte dan de preparaatzone van het reagens. Ontdooi alle reagentia op ijs en houd koude omstandigheden tijdens de bereiding.
- Voorbereiding van werkende oplossingen
- crRNA
OPMERKING: Het ontwerpen van Nosema ceranae en Lotmaria passim crRNA werd uitgevoerd met behulp van de Eukaryotic Pathogen CRISPR-gids RNA/DNA Design Tool (EuPaGDT) http://grna.ctegd.uga.edu/. Voor een aangepast crRNA-ontwerp kan andere software worden gebruikt, zoals GPP sgRNA Designer (https://portals.broadinstitute.org/gpp/public/analysis-tools/sgrna-design) of CHOPCHOP (https://chopchop.cbu.uib.no/).- Om een 100 μM crRNA-stockoplossing te bereiden, reconstitueert u 10 nmol van elk gevriesdroogd crRNA met 100 μL DEPC-behandeld water en bewaart u het bij -20 °C. Om een werkoplossing van 1 μM te bereiden, voert u een verdunning van 1:100 uit door 1 μl van de 100 μM stockoplossing te mengen met 99 μl DEPC-behandeld water in een buis van 0.2 ml (Figuur 3).
OPMERKING: Beide oplossingen moeten worden bewaard bij -20 °C.
- Om een 100 μM crRNA-stockoplossing te bereiden, reconstitueert u 10 nmol van elk gevriesdroogd crRNA met 100 μL DEPC-behandeld water en bewaart u het bij -20 °C. Om een werkoplossing van 1 μM te bereiden, voert u een verdunning van 1:100 uit door 1 μl van de 100 μM stockoplossing te mengen met 99 μl DEPC-behandeld water in een buis van 0.2 ml (Figuur 3).
- Cas12a preparaat
OPMERKING: Cas12a kan worden geleverd in concentraties van 1 μM of 100 μM.- Indien geleverd bij 100 μM, verdun het dan voor gebruik tot een werkoplossing van 1 μM door 1 μL van het 100 μM Cas12a-enzym te mengen met 99 μL van het verdunningsmiddel dat in de kit wordt meegeleverd (verdunning 1:100, Figuur 3).
OPMERKING: De Cas12a-enzymconcentratie kan worden aangepast afhankelijk van het monstertype. Aangezien het enzym wordt opgeslagen in een verdunningsmiddel op basis van glycerol, is het belangrijk ervoor te zorgen dat het toegevoegde enzymvolume niet groter is dan 20% van het totale reactievolume om mogelijke remmende effecten te voorkomen.
- Indien geleverd bij 100 μM, verdun het dan voor gebruik tot een werkoplossing van 1 μM door 1 μL van het 100 μM Cas12a-enzym te mengen met 99 μL van het verdunningsmiddel dat in de kit wordt meegeleverd (verdunning 1:100, Figuur 3).
- Bereiding van FAM- en biotine-sondeoplossingen
OPMERKING: De FAM-sonde wordt geleverd in gelyofiliseerde vorm.- Om een stockoplossing van 100 μM te bereiden, suspendeert u de sonde opnieuw door 1 μL DEPC-behandeld water per 1 nmol sonde toe te voegen (bijv. voor 102 nmol, voeg 102 μL DEPC-behandeld water toe). Bewaar de stockoplossing bij -20 °C. Voor gebruik in de detectiemastermix verdunt u de voorraad 1:10 (90 μL DEPC-behandeld water met 10 μL 100 μM FAM) om een werkoplossing van 10 μM te verkrijgen (Figuur 3).
- crRNA
- CRISPR/Cas12a-detectieprotocol
- Detectie op basis van fluorescentie (FAM-sonde)
- Bereid in een microcentrifugebuis van 1,5 ml het reactiemengsel zoals beschreven in tabel 3, met uitzondering van de amplicons.
- Meng grondig met behulp van een vortex en verdeel het mengsel in PCR-buisjes.
- Voeg vervolgens 4 μL RPA-amplicon (beschreven in stap 2.2) toe aan elk buisje.
- Incubeer de reacties gedurende 120 minuten bij 37 °C in een thermocycler met fluorescentieaflezing, waarbij elke minuut de fluorescentie wordt geregistreerd.
- Optioneel: Aan het einde van de incubatie worden de reacties overgebracht naar buisjes van 0,2 ml en gevisualiseerd met behulp van een geldocumentatiesysteem voor beeldvorming.
- Detectie met behulp van een biotine-sonde in een laterale flowtest
- Voeg in een microcentrifugebuis van 1,5 ml de in tabel 4 getoonde componenten toe.
- Maak het mengsel zoals beschreven in punt 3.2.1, meng het mengsel en verdeel het over een PCR-plaat. Voeg ten slotte 4 μL amplicon toe aan de respectievelijke putjes.
- Incubeer gedurende 120 minuten in een thermocycler (zonder fluorescentiemeting) of thermisch blok bij 37 °C.
- Breng de monsters over in buisjes van 0,2 ml en voer de detectie uit met immunostrips. Voeg hiervoor 50 μL lopende buffer en 10 μL van het reactiemengsel toe aan elke buis en plaats de strip rechtstreeks in de buis. Incubeer gedurende 15 minuten bij kamertemperatuur en lees de resultaten af na 10 minuten onderdompeling, zoals geïllustreerd in figuur 3.
- Detectie op basis van fluorescentie (FAM-sonde)
Resultaten
Hier hebben we een snelle on-site methode beschreven met behulp van alkalische lysis van het achterlijf van werkbijen gekoppeld aan RPA-amplificatie en op CRISPR/Cas12a gebaseerde detectie door fluorescentie- en/of laterale stromingsbenaderingen. Het schema van de volledige workflow wordt weergegeven in figuur 3 en het schema van de HotSHOT-alkalische lysis van het achterlijf van werkbijen staat in figuur 4. Representatieve resultaten van de RPA/CRISPR/Cas12a-test worden weergegeven in figuur 5. Om L. passim en N. ceranae te detecteren, werd een thermocycler gebruikt om de relatieve fluorescentie-eenheden (RFU's) te kwantificeren met behulp van een FAM-gelabelde sonde (Figuur 4A). De RPA-reacties werden uitgevoerd met behulp van 10 ng DNA en de fluorescentiegegevens werden uitgezet in een grafiek (Figuur 4B). In de laatste fase van de test werden monsters in conische buisjes gefotografeerd met behulp van een gelbeeldvormingssysteem (Figuur 4C). Voor detectie met een biotine-gelabelde sonde werden de monsters geïncubeerd in een thermoblok (Figuur 4A); de detectievloeistof werd bereid volgens de instructies van de fabrikant en aangebracht op een zijstroomstrip (Figuur 4B, C). De methode resulteerde in een succesvolle detectie van beide ziekteverwekkers van honingbijen.
Om de efficiëntie van RPA-reacties te bepalen, vergeleken we deze methode met standaard qPCR met behulp van DNA gezuiverd uit honingbijen met behulp van de kit waarnaar wordt verwezen (zie de materiaaltabel). In totaal werden 32 bijenmonsters getest met primers gericht op het β-tubuline-gen van L. passim voor beide methoden en vervolgens gedetecteerd door CRISPR/Cas12a-transsplitsing van fluorescerende sondes. Als gevolg hiervan bleken met name 12 monsters positief te zijn door qPCR, terwijl RPA/CRISPR/Cas12a L. passim detecteerde in 16 monsters (Figuur 5A). Dit geeft aan dat de prestaties van RPA-reacties gevoeliger zijn dan PCR, de gouden standaard DNA-amplificatiemethode.
Evenzo hebben we de detectielimiet (LOD) bepaald voor qPCR en RPA gekoppeld aan CRISPR/Cas12a-detectie voor L. passim-DNA als het pathogeenmodel met behulp van seriële verdunningen van L. passim-DNA variërend van 66 ng tot 6 fg. qPCR detecteerde slechts 6 pg, wat overeenkomt met ongeveer 96 parasieten (Figuur 5B). Ter vergelijking: de LOD voor RPA kwam overeen met 96 parasieten (Figuur 5C, D).
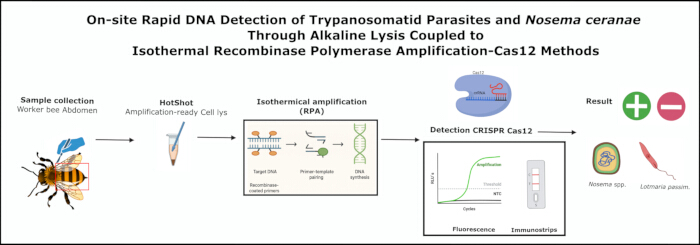
Figuur 1: Algemene workflow van de HotSHOT alkalische lysis gekoppeld aan RPA-amplificatie en Cas12-detectiemethoden in honingbijen. Afkortingen: RPA = recombinase polymerase amplificatie; CRISPR = geclusterde, regelmatig tussenliggende korte palindromische herhalingen; Cas = CRISPR-geassocieerd eiwit. Klik hier om een grotere versie van deze figuur te bekijken.
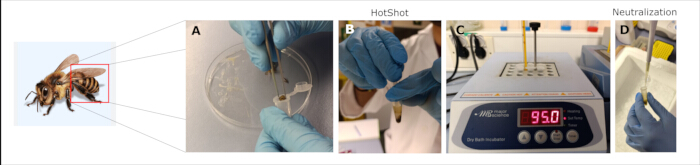
Figuur 2: Verwerking van amplificatie-ready cellyse met HotSHOT-buffer. (A) Snijd de buik van de honingbij met een scalpel en doe deze in een centrifugebuis; (B) maak met een stamper een maceratie met 400 μL HotShot; (C) incubeer op een thermoblok bij 95 °C gedurende 10 minuten; en (D) neutraliseren met 400 μL 40 mM Tris-HCl. Klik hier om een grotere versie van deze figuur te bekijken.
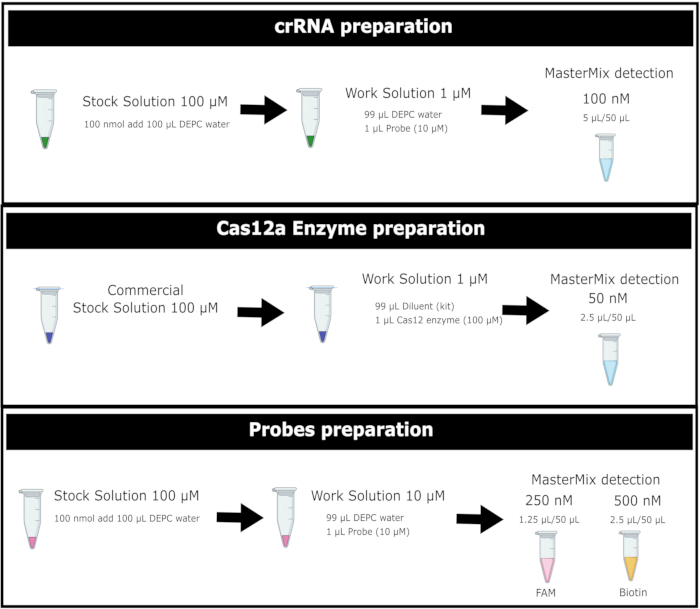
Figuur 3: Algemene workflow voor de bereiding van Cas12a-enzym en FAM- en biotine-gelabelde reportersondeoplossingen. Afkortingen: DEPC-water = Diethyl Pyrocarbonaat behandeld water; crRNA= RNA CRISPR; Cas12 = type CRISPR-geassocieerd eiwit. Klik hier om een grotere versie van deze figuur te bekijken.
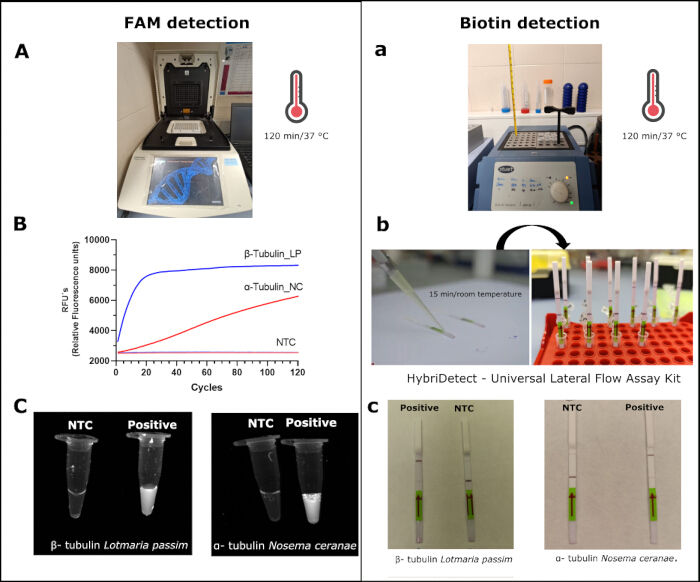
Figuur 4: Detectie van Lotmaria passim en Nosema ceranae. door de CRISPR/Cas12a-methode met FAM- en biotinesondes. Voor FAM-detectie worden (A) monsters geïncubeerd in een thermocycler; (B) de relatieve fluorescentie-eenheden (RFU's) van L. passim en N. ceranae; (C) visualisatie van dezelfde monsters onder een fotodocumentatiesysteem. Bij biotinetests: a) een monster dat wordt geïncubeerd in een thermoblok; b) monsters zijn toegevoegd in een immunostrip uit de kit (zie de materiaaltabel); c) de resultaten na de incubatie. Afkortingen: LP= Lotmaria passim; NC= Nosema ceranae; NTC= geen sjablooncontrole; RFU: relatieve fluorescentie-eenheden Klik hier om een grotere versie van deze figuur te bekijken.
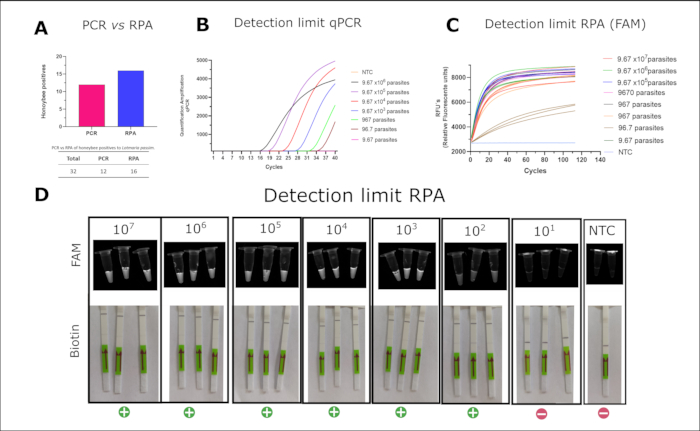
Figuur 5: Vergelijking tussen qPCR en RPA, en detectielimiet van Lotmaria passim. (A) Detectie van L. passim in honingbijmonsters met behulp van conventionele qPCR en RPA. (B) qPCR-detectielimiet van L. passim met behulp van SsoFast EvaGreen. (C) Detectielimiet van L. passim met behulp van CRISPR/Cas12a met een FAM-gelabelde sonde; (D) visualisatie van dezelfde CRISPR/Cas12a-detectie (vanaf C) onder een gelbeeldvormingssysteem (bovenste rij) en overeenkomstige laterale flowresultaten met behulp van CRISPR/Cas12a met een biotine-gelabelde sonde (onderste rij). Afkortingen: RPA = recombinase polymerase amplificatie; qPCR= kwantitatieve polymerasekettingreactie. Klik hier om een grotere versie van deze figuur te bekijken.
| Reagens | Uiteindelijke concentratie | 10 μL | 50 μL |
| 2x Reactie Buffer | 1x | 5 μL | 25 μL |
| dNTP's (10 mM) | 1,8 mM | 1,8 μL | 9 μL |
| 10x Basis E-Mix | 1x | 1 μL | 5 μL |
| Voorwaartse primer (10 μM) | 480 nM | 0,5 μL | 2,4 μL |
| Omgekeerde primer (10 μM) | 480 nM | 0,5 μL | 2,4 μL |
| 20x Kern Reactiemix | 1x | 0,5 μL | 2,5 μL |
| DEPC Water | -- | 0,7 μL | 3,7 μL |
Tabel 1: Mastermix-componenten voor RPA met eindvolumes van 10 μl en 50 μl, en bijbehorende werkconcentraties:
| Reagens | Uiteindelijke concentratie | 10 μL reactie | 50 μL reactie |
| 280 mM MgOAc | 1,8 mM | 0,5 μL | 2,5 μL |
| DNA | 10-0,1 ng | 1 μL | 2 μL |
Tabel 2: Hoeveelheid reagentia die per monster moeten worden toegevoegd bij een reactie van RPA
| Reagens | [voorraad] | [Definitief] | 1x (μL) |
| Cas12a-enzym | 1 μM | 50 nM | 2.5 |
| cRNA | 1 μM | 100 nM | 5 |
| FAM-sonde | 10 μM | 250 nM | 1.25 |
| NEB buffer 10x | 10x | 1x | 5 |
| RPA amplicon | - | - | 4 |
| Water | - | - | 32.25 |
| Totaal | 50 |
Tabel 3: Concentraties van reagentia om een mix van FAM-detectie te maken met de methode CRISPR/Cas 12a.
| Reagens | [voorraad] | [Definitief] | 1x (μL) |
| Cas12a-enzym | 1 μM | 50 nM | 2.5 |
| cRNA | 1 μM | 100 nM | 5 |
| Biotine-sonde | 10 μM | 500 nM | 2.5 |
| NEB buffer 10x | 10Toets | 1X | 5 |
| RPA amplicon | - | - | 4 |
| Water | - | - | 31 |
| Totaal | 50 |
Tabel 4: Concentraties van reagentia voor het maken van een mix van biotinedetectie met de CRISPR/Cas 12a-methode.
Discussie
In deze studie ontwikkelden en valideerden we een praktisch moleculair diagnostisch protocol voor het detecteren van ziekteverwekkers van honingbijen. De workflow integreert cellyse die klaar is voor versterking, isotherme amplificatie met behulp van RPA en zeer specifieke detectie via CRISPR/Cas12a. Onder de geëvalueerde chemische DNA-extractiemethoden biedt het HotSHOT alkalische lysisprotocol aanzienlijke voordelen op het gebied van kosten, snelheid en eenvoud. Het produceert op efficiënte wijze lysaten die klaar zijn voor versterking zonder dat er commerciële kits nodig zijn. Deze methode is betrouwbaar gebleken in verschillende toepassingen, waaronder de detectie van pathogenen bij honingbijen 14,15,16,17,18. De alkalische omstandigheden bij hoge temperatuur verstoren celmembranen en waterstofbruggen tussen DNA-strengen, waardoor enkelstrengs DNA vrijkomt dat geschikt is voor stroomafwaartse amplificatie. Hoewel mogelijke beperkingen de aanwezigheid van PCR-remmers of suboptimale neutralisatie zijn, is aangetoond dat alkalische lysis effectief werkt in diverse organismen zoals archaea19, bacteriën20 en schimmels14, en is compatibel met PCR-, qPCR- en isotherme methoden zoals LAMP21 en RPA12.
In onze handen vertoonde het RPA/CRISPR/Cas12a-systeem een sterke specificiteit en bevredigende gevoeligheid. Het gebruik van crRNA's gericht op geconserveerde regio's in elke ziekteverwekker maakte een nauwkeurige identificatie mogelijk zonder kruisreactiviteit met gastheer-DNA of niet-verwante micro-organismen. Eerdere toepassingen van dit systeem bij honingbijen hebben detectielimieten bereikt van ongeveer 6,5 × 10² en 6,2 × 101 kopieën/μL voor Deformed Wing Virus type A en B 8,12. Deze testen zijn echter niet geoptimaliseerd voor omstandigheden in het veld met snelle RNA- en/of DNA-extractie. In dit werk hebben we de methode specifiek aangepast voor DNA-pathogenen - N. ceranae en L. passim - waardoor veldcompatibele detectie mogelijk is.
Onze resultaten tonen aan dat RPA/CRISPR/Cas12a beter presteerde dan conventionele PCR bij het identificeren van positieve monsters (16 vs. 12), waarschijnlijk als gevolg van het verbeterde signaal met behulp van de CRISPR/Cas12a collaterale splitsingsactiviteit, die zelfs in ruwe lysaten effectief blijft. De verbetering van de gevoeligheid ten opzichte van op PCR gebaseerde methoden is eerder gemeld in verschillende pathogene modellen zoals Yersinia enterocolitica22, Diaporthe aspalathi23 of Vibrio vulnificus24. Bovendien onthulde kwantitatieve analyse een equivalente detectielimiet van RPA/CRISPR/Cas12a en qPCR onder laboratoriumomstandigheden (~96 parasietkopieën/μL). Dit impliceert een goede prestatie van de methode met een vergelijkbare specificiteit als TaqMan qPCR, dankzij de toegevoegde sequentieherkenning die door het crRNA wordt geboden. Bovendien vereist de test slechts minimale apparatuur, is deze niet afhankelijk van een thermocycler of fluorescentielezer en kan deze worden gevisualiseerd met behulp van laterale flowstrips zoals eerder ontwikkeld voor andere pathogenen25,26. Dit vereenvoudigt de interpretatie en maakt de test zeer toegankelijk voor veldtechnici en imkers.
Het huidige protocol levert robuuste resultaten op, maar verdere verbeteringen zijn mogelijk. Om de test aan te passen om andere op DNA gebaseerde bijenpathogenen aan te pakken, hoeven alleen RPA-primers en crRNA's opnieuw te worden ontworpen. Voor RNA-virussen kan het protocol worden uitgebreid met een reverse transcriptiestap (RT-RPA), zoals eerder is aangetoond voor verschillende virale infectieziekten 26,27,28, waaronder DWV-A en DWV-B in honingbijen15. Bovendien kan de totale analysetijd - momenteel ongeveer 180 minuten - waarschijnlijk worden verkort door protocoloptimalisatie om de timing van elke stap te verkorten. Een ander alternatief is eenpots RPA/CRISPR/Cas12a die alle RPA/CRISPR/Cas12a-reagentia in één reactie combineert. Deze alles-in-één methodologie is met succes toegepast voor de detectie van een breed scala aan virale en bacteriële pathogenen 25,26,29. Naast en ondanks het feit dat ssDNA-sondes zijn uitgebreid en gepopulariseerd voor Cas12a-detectie, hebben sommige onderzoeken de capaciteit van Cas12a van trans-splitsing dubbelstrengs DNA (dsDNA) -sondes gerapporteerd die nuttig kunnen zijn om te worden getest vanwege de stabiliteit van dsDNA30. Dit zou leiden tot een time-to-result van minder dan 30 minuten, waardoor de toepasbaarheid in het veld verder wordt verbeterd. Het lyofiliseren van RPA- en CRISPR-reagentia zou ook de stabiliteit van reagentia verbeteren en de noodzaak van een koelketen elimineren, waardoor de geschiktheid voor afgelegen omgevingen of omgevingen met weinig middelen toeneemt. De succesvolle prestaties van RPA/CRISPR/Cas12a met behulp van gelyofiliseerde reagentia zijn met succes vastgesteld voor de detectie van Actinobacillus pleuropneumonie31 en respiratoire infectieuze virussen28,32, waaronder SARS-Cov226.
Samenvattend presenteert deze studie een volledig in-field, kosteneffectief en draagbaar moleculair diagnostisch platform voor de detectie van honingbijpathogenen. Deze methodologie zou, zoals ze er nu uitziet, ongeveer 180 minuten duren, maar de totale timing kan nog worden verbeterd Hoewel we ons concentreerden op L. passim en Nosema spp. als proof-of-concept-doelen, is het systeem modulair en aanpasbaar aan een breed scala aan op DNA gebaseerde bijenpathogenen (d.w.z. Paenibacillus-larven of Melisococcus plutonious) en voor het monitoren van commensale symbionten die van belang zijn. Deze aanpak breidt de toegang tot moleculaire diagnostiek uit tot buiten de traditionele laboratoriumomgevingen en ondersteunt vroege interventiestrategieën in de bijenteelt. Meer in het algemeen tonen onze resultaten de levensvatbaarheid aan van op CRISPR gebaseerde technologieën in diagnostische toepassingen die klaar zijn voor het veld.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te onthullen.
Dankbetuigingen
Dit werk werd ondersteund door de subsidie "Nieuwe moleculaire instrumenten voor snelle monitoring van honingbijziekten in bijenstallen in de provincie Granada" (GOPG-GR-23-0002) in het kader van de oproep Hulp aan operationele groepen van de European Innovation Association (AEI) in landbouwproductiviteit en duurzaamheid van de Andalusische regering. We erkennen ook de steun van het Spaanse programma voor het genereren van kennis en wetenschappelijke en technologische versterking van het R+D+I-systeem, subsidie PID2021-126938OB-I00 gefinancierd door MCIN/AEI/10.13039/501100011033 en door "EFRO/EU". We hebben de hulp en middelen van de imkers van de Asociación de Pequeños Apicultores de Granada (APAG) en Cooperativas Agroalimentarias de Granada (FAECA) zeer gewaardeerd. De studie maakt deel uit van het proefschrift van D. Pedro García Olmedo. Doctoraatsprogramma in fundamentele en systeembiologie (Universiteit van Granada, UGR).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.2 mL DNAse- en RNAse-vrije Eppendorf buisjes | Axygen | MTC-02-C | |
| 1.5 mL DNAse- en RNAse-vrije Eppendorf buisjes | Axygen | MTC-150-C | |
| 10 μL lagedempering gefilterde tips | LabClinics | 5-063-P5-0 | |
| 100 μL lagedempering gefilterde tips | LabClinics | 5-120-P5-0 | |
| 1000 μL lagedempering gefilterde tips | LabClinics | 5-203-P4-0 | |
| BH-200 Series Stuart Dry Block Heater | Cole-Parmer | EW-36610-00 | |
| DEPC-behandeld water | Ambicon | AM9906 | |
| EDTA | Sigma-Aldrich | 798681 | |
| EnGen Lba Cas12a (Cpf1) | New England Biolabs | M0653T | |
| Sigma-Aldrich | Sigma-Aldrich | 64-17-5 | |
| HCl | Sigma-Aldrich | 7647-01-0 | |
| Microtube stampers | Fisherbrand | 12141364 | |
| Milenia GenLine HybriDetect | Milenia | MGHD 1 | |
| NaOH | Sigma-Aldrich | 221465 | |
| RPA kit TwistAmp Liquid Basic | TwistAmp | TALQBAS01 | |
| Scalpel messen | Swann-Morton | 201 | |
| Single kanaal Pipet PIPETMAN P1000L Micropipet Metal eject | Gilson | F144059M | |
| Single kanaal Pipet PIPETMAN P100L Micropipet Metal eject | Gilson | F144057M | |
| Single kanaal Pipet PIPETMAN P10L Micropipet Metal eject | Gilson | F144055M | |
| Natriumhypochloriet | |||
| Touch Real-Time PCR Detectiesysteem | BioRad | CFX96 | |
| Tris-HCl | Sigma-Aldrich | T1503 | |
| TwistAmp Liquid Basic | Twist | TALQBAS01 |
Referenties
- Goulson, D., Nicholls, E., Botías, C., Rotheray, E. L. Bee declines driven by combined stress from parasites, pesticides, and lack of flowers. Science. 347 (6229), 1255957(2015).
- Murphy, J. T., Breeze, T. D., Willcox, B., Kavanagh, S., Stout, J. C. Globalisation and pollinators: pollinator declines are an economic threat to global food systems. People and Nature. 4 (3), 773-785 (2022).
- Zattara, E. E., Aizen, M. A. Worldwide occurrence records suggest a global decline in bee species richness. One Earth. 4 (1), 114-123 (2021).
- Carreira de Paula, J., et al. Promastigote EPS secretion and haptomonad biofilm formation as evolutionary adaptations of trypanosomatid parasites for colonizing honeybee hosts. NPJ Biofilms Microbiomes. 10 (1), 27(2024).
- Requier, F., et al. First large-scale study reveals important losses of managed honeybee and stingless bee colonies inLatin America. Sci Rep. 14 (1), 10079(2024).
- Babin, A., Schurr, F., Rivière, M. P., Chauzat, M. P., Dubois, E. Specific detection and quantification of three microsporidia infecting bees, Nosema apis, Nosema ceranae, and Nosema bombi, using probe-based real-time PCR. Eur J Protistol. 86, 125935(2022).
- Cameron, T. C., Wiles, D., Beddoe, T. Current status of loop-mediated isothermal amplification technologies for the detection of honeybee pathogens. Front Vet Sci. 8, 659683(2021).
- Schurr, F., et al. Validation of quantitative real-time RT-PCR assays for the detection of six honeybee viruses. J Virol Methods. 270, 70-78 (2019).
- Xu, G., et al. Triplex real-time PCR for detection of Crithidia mellificae and Lotmaria passim in honeybees. Parasitol Res. 117 (2), 623-628 (2018).
- D'Alvise, P., Seeburger, V., Gihring, K., Kieboom, M., Hasselmann, M. Seasonal dynamics and co-occurrence patterns of honeybee pathogens revealed by high-throughput RT-qPCR analysis. Ecol Evol. 9 (18), 10241-10252 (2019).
- Shao, G., Zhu, X., Hua, R., Chen, Y., Yang, G. Development of a copro-RPA-CRISPR/Cas12a assay to detect Echinococcus granulosus nucleic acids isolated from canine feces using NaOH-based DNA extraction method. PLoS Negl Trop Dis. 18 (12), e0012753(2024).
- Xiao, Y., Fei, D., Li, M., Ma, Y., Ma, M. Establishment and application of CRISPR-Cas12a-based recombinase polymerase amplification and a lateral flow dipstick and fluorescence for the detection and distinction of deformed wing virus types A and B. Viruses. 15 (10), 2041(2023).
- Li, Z., et al. Cas-OPRAD: a one-pot RPA/PCR CRISPR/Cas12 assay for on-site Phytophthora root rot detection. Front Microbiol. 15, 1390422(2024).
- Osmundson, T. W., Eyre, C. A., Hayden, K. M., Dhillon, J., Garbelotto, M. M. Back to basics: an evaluation of NaOH and alternative rapid DNA extraction protocols for DNA barcoding, genotyping, and disease diagnostics from fungal and oomycete samples. Mol Ecol Resour. 13 (1), 66-74 (2013).
- Truett, G. E., et al. Preparation of PCR-quality mouse genomic DNA with hot sodium hydroxide and Tris (HotSHOT). BioTechniques. 29 (1), 52-54 (2000).
- Klintschar, M., Neuhuber, F. Evaluation of an alkaline lysis method for the extraction of DNA from whole blood and forensic stains for STR analysis. J Forensic Sci. 45 (3), 669-673 (2000).
- Galanis, A., et al. Bee foraging preferences, microbiota and pathogens revealed by direct shotgun metagenomics of honey. Mol Ecol Resour. 22 (7), 2506-2523 (2022).
- Xiang, Z., et al. A simple alkali lysis method for Plasmodium falciparum DNA extraction from filter paper blood samples. Mol Biochem Parasitol. , 254(2023).
- Shwani, A., Zuo, B., Alrubaye, A., Zhao, J., Rhoads, D. D. A simple, inexpensive alkaline method for bacterial DNA extraction from environmental samples for PCR surveillance and microbiome analyses. Appl Sci. 14 (1), 141(2024).
- Fowler, E. V., et al. Development of a cost-effective, morphology-preserving method for DNA isolation from bulk invertebrate trap catches: tephritid fruit flies as an exemplar. PLoS One. 18 (2), e0281759(2023).
- Yuan, J., et al. CRISPR-Cas12a-mediated hue-recognition lateral flow assay for point-of-need detection of Salmonella. Anal Chem. 96 (1), 220-228 (2024).
- Xiao, Y., et al. Ultra-sensitive and rapid detection of pathogenic Yersinia enterocolitica based on the CRISPR/Cas12a nucleic acid identification platform. Foods. 11 (14), 2160(2022).
- Dong, J., et al. Comparative evaluation of PCR-based, LAMP and RPA-CRISPR/Cas12a assays for the rapid detection of Diaporthe aspalathi. Int J Mol Sci. 25 (11), 5773(2024).
- Zhang, X., et al. CRISPR/Cas12a combined with recombinase polymerase amplification for rapid and sensitive detection of Vibrio vulnificus in one tube. Acta Biochim Biophys Sin. 55 (2), 322-326 (2023).
- Li, P. R., et al. An RPA-assisted CRISPR/Cas12a assay combining fluorescence and lateral flow strips for the rapid detection of enterotoxigenic Bacillus cereus. J Agric Food Chem. 72 (24), 14000-14010 (2024).
- Sun, Y., et al. One-tube SARS-CoV-2 detection platform based on RT-RPA and CRISPR/Cas12a. J Transl Med. 19 (1), 74(2021).
- Aman, R., et al. iSCAN-V2: a one-pot RT-RPA-CRISPR/Cas12b assay for point-of-care SARS-CoV-2 detection. Front Bioeng Biotechnol. 9, 800104(2022).
- Peng, R., Lu, Z., Liu, M., Hu, F. RT-RPA-assisted CRISPR/Cas12a for rapid and multiplex detection of respiratory infectious viruses based on centrifugal microfluidics. Sens Actuators B Chem. 399, 134838(2024).
- Liu, Y., et al. One-tube RPA-CRISPR Cas12a/Cas13a rapid detection of methicillin-resistant Staphylococcus aureus. Anal Chim Acta. 1278, 341757(2023).
- Nguyen, L. T., Smith, B. M., Jain, P. K. Enhancement of trans-cleavage activity of Cas12a with engineered crRNA enables amplified nucleic acid detection. Biochemistry. 59 (17), 1474-1481 (2020).
- Hao, J., et al. Application of a lyophilized CRISPR/Cas12a and RPA assay for rapid detection of Actinobacillus pleuropneumoniae. Microchem J. 206, 111443(2024).
- Lin, C., et al. A universal all-in-one RPA-Cas12a strategy with de novo autodesigner and its application in on-site ultrasensitive detection of DNA and RNA viruses. Biosens Bioelectron. 239, 115609(2023).
Herprints en machtigingen
Erratum
Formal Correction: Erratum: On-site DNA Detection of Trypanosomatid Parasites and Nosema ceranae Through Alkaline Lysis Coupled to RPA/CRISPR/Cas12a System
Posted by JoVE Editors on 8/14/2025. Citeable Link.
This corrects the article 10.3791/68874
