Deze studie optimaliseert een RNA-extractiemethode op basis van heet fenol voor Mycobacterium, wat resulteert in RNA van hoge kwaliteit dat geschikt is voor transcriptomische analyses. Bij vergelijking met TRIzol en RNeasy onder identieke omstandigheden leverde deze methode een hogere opbrengst, een vergelijkbare integriteit en een verbeterde kosteneffectiviteit, waardoor het een praktisch alternatief biedt voor grootschalige genexpressiestudies.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Geoptimaliseerde RNA-extractie op basis van heet fenol uit mycobacteriën: een robuuste aanpak voor betrouwbare genexpressieanalyse
In dit artikel
Samenvatting
Samenvatting
Mycobacterium tuberculosis (Mtb) blijft een grote wereldwijde bedreiging voor de volksgezondheid, wat de noodzaak benadrukt van betrouwbare transcriptomische studies om de biologie en de mechanismen van drugresistentie te begrijpen. Dergelijke analyses zijn afhankelijk van het verkrijgen van RNA met een hoge kwaliteit en een hoog rendement. Hoewel er verschillende methoden voor RNA-extractie beschikbaar zijn, vereisen veel daarvan dure reagentia, grote cultuurvolumes of gespecialiseerde apparatuur, wat hun geschiktheid voor grootschalige studies beperkt, in het bijzonder in omgevingen met beperkte middelen. Hier wordt een geoptimaliseerde RNA-extractiemethode op basis van heet fenol gepresenteerd, specifiek afgestemd op mycobacteriën. De methode maakt gebruik van een minimaal cultuurvolume en algemeen beschikbare reagentia om consistent hoogwaardig RNA op te brengen dat geschikt is voor high-throughput transcriptomische toepassingen. De RNA-kwantiteit en -integriteit werden beoordeeld via gelelektroforese en RNA-integriteitsanalyse (RIN), en de geschiktheid voor downstream toepassingen werd bevestigd met qPCR en Qubit 4. Om de prestaties van de geoptimaliseerde methode te benchmarken, werd een parallelle RNA-extractie uitgevoerd met TRIzol en RNeasy onder identieke experimentele omstandigheden, inclusief dezelfde Mycobacterium-soorten, cultuurvolume, groeifase (logaritmisch en stationair) en lysisecondities. Dit maakte een directe vergelijking mogelijk van rendement, kwaliteit, haalbaarheid en kosten. De geoptimaliseerde methode met heet fenol vertoonde een vergelijkbaar of verbeterd RNA-rendement en -kwaliteit, terwijl de kosten voor reagentia en de afhankelijkheid van gespecialiseerde apparatuur aanzienlijk werden verminderd. Vanwege de efficiëntie, reproduceerbaarheid en betaalbaarheid biedt dit protocol een praktisch alternatief voor grootschalige genexpressie- en transcriptomische studies bij Mtb en andere mycobacteriële soorten.
Inleiding
M. tuberculosis (Mtb), het veroorzakende agens van tuberculose (TB), blijft de belangrijkste doodsoorzaak door een enkel infectieus pathogeen, waarmee het HIV/AIDS overtreft. In 2024 was TB verantwoordelijk voor ongeveer 1,3 miljoen sterfgevallen wereldwijd1. Deze last wordt verergerd door de toenemende prevalentie van multidrug-resistente (MDR) en extensief drug-resistente (XDR) stammen. Daarom is er een dringende behoefte om de moleculaire basis van de pathogenese van TB te begrijpen en nieuwe therapeutische doelwitten te identificeren2.
Transcriptionele profilering van Mtb is een belangrijk instrument geworden voor het ontrafelen van functionele elementen die betrokken zijn bij gastheer-pathogeeninteracties3, adaptatie aan omgevingsstress4 en mechanismen die ten grondslag liggen aan drugresistentie5. Geavanceerde methodologieën zoals real-time PCR, microarrays en RNA-sequencing (RNA-seq) hebben het vermogen om het mycobacteriële transcriptoom te analyseren aanzienlijk verbeterd6. Het succes van deze methoden is echter sterk afhankelijk van de beschikbaarheid van RNA van hoge kwaliteit, wat op zijn beurt afhangt van een efficiënte cellyse tijdens de extractie. De complexe mycolyl-arabinogalactaan-peptidoglycaan celwand van Mtb maakt RNA-extractie bijzonder moeilijk7. Bestaande lysetechnieken, waaronder enzymatische hydrolyse8, sonicatie9 en bead-beating10, vereisen vaak kostbare apparatuur en grote cultuurvolumes, wat de praktische toepasbaarheid in veel BSL-3 laboratoria beperkt. Daarnaast maakt de langzame groeisnelheid van Mtb langere cultuurtijden noodzakelijk om voldoende biomassa te verkrijgen11.
Om deze beperkingen te overwinnen, is een geoptimaliseerde RNA-extractiemethode op basis van heet fenol ontwikkeld die snel en economisch is. Met gebruik van slechts 3 mL kweek in de mid-log fase levert de methode 45–60 µg hoogwaardig RNA op dat geschikt is voor downstream transcriptomische analyses. Cellyse wordt bereikt met een compacte handmatige weefselmaler en algemeen beschikbare reagentia, waardoor dure instrumenten overbodig zijn. Hoewel de heet-fenolmethode eerder is beschreven11,12, verbetert de geoptimaliseerde heet-fenolmethode het gebruiksgemak, de kostenefficiëntie en de RNA-opbrengst. De optimalisatie is uitgevoerd met M. smegmatis mc2155 (Msmeg) en succesvol gevalideerd met Mtb H37Rv.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
De gebruikte reagentia en apparatuur staan vermeld in de Tabel met Materialen.
1. Cultiveren van Mycobacterium
- Inoculeer 1 mL van de glycerolstock van Msmeg of Mtb in 10 mL Middlebrook 7H9-medium, aangevuld met 0,2% glycerol, 0,05% Tween 80 en 10% ADC bij 37 °C met schudden op 150 rpm totdat de OD 1–1,5 bereikt.
- Kweek de secundaire cultuur door 1% van de primaire cultuur toe te voegen aan 10 mL 7H9-medium tot de mid-logfase, OD600 nm = 0.6–0.7.
- Verdeel in aliquots van 3 mL en centrifugeer de culturen bij 2000 x g gedurende 5 min bij kamertemperatuur (23–25 °C).
- Bewaar de pellets bij -80 °C tot RNA-extractie.
WAARSCHUWING: Volg voor Mtb-culturen de juiste BSL3-richtlijnen en inactiveer het pellet door verhitting bij 95 ˚C gedurende 20–25 min.
OPMERKING: Figuur 1 toont het stroomschema van de basisstappen die worden gevolgd tijdens RNA-extractie via de hot-fenolmethode.
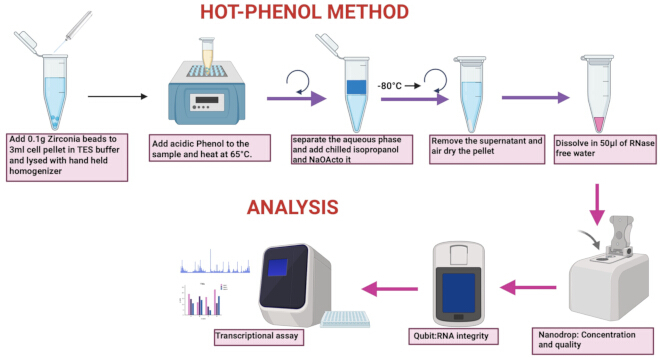
Figuur 1: Een schematische weergave van de heet-fenolmethode en analyse. Klik hier om een grotere versie van deze figuur te bekijken.
2. RNA-extractie
- Hot-fenolmethode (HP-methode)
- Voeg 200 µL TES-buffer (100 mM Tris-HCl, pH 8.0; 5 mM EDTA, pH 8.0; 0.1 M NaCl; % SDS; 1% β-mercaptoethanol) toe aan het celpellet en resuspendeer het pellet door middel van vortexen.
- Voeg ongeveer 0.1 g 0.1 mm silicakralen toe aan het monster. Gebruik een handmatige weefsel homogeniseerder gedurende 10–15 s totdat het pellet op ijs volledig is ontdooid. Herhaal deze stap voor nog 2 cycli, gevolgd door snap-freezing in vloeibare stikstof na elke herhaling.
- OF gebruik een high-speed tabletop bead ruptor gedurende 1 min bij de snelheidsinstelling 5 (5.0 m/s) bij kamertemperatuur. Herhaal deze stap gedurende 3 cycli en incubeer het monster op ijs om opwarming na elke cyclus te voorkomen.
OPMERKING: Herhaal de Mtb-cellyse gedurende 6–8 cycli (elke cyclus 1 min) met een handmatige weefsel homogeniseerder of een bead ruptor, en koel tussentijds op ijs na elke cyclus. Gebruik DEPC (diethylpyrocarbonaat) behandeld water voor de bereiding van alle buffers en reagentia die nodig zijn voor de RNA-extractie. - Voeg nogmaals 200 µL TES-buffer toe (voorverwarmd tot 65 °C) aan elk monster om het volume aan te vullen tot 400 µL. Voeg aan elk monster 200 µL zuur fenol toe (fenol geëquilibreerd met 100 mM citraatbuffer, pH 4.5) en 200 µL chloroform (meng het zure fenol en de chloroform in een gelijke verhouding voordat u het aan het monster toevoegt).
- Incubeer het monster bij 65 °C op een heat-block met schudden bij 900 rpm gedurende 30 min en centrifugeer bij 12000 x g gedurende 15 min bij kamertemperatuur. Zorg voor een goede fasescheiding na centrifugatie (er zal een heldere bovenste waterige fase zichtbaar zijn die RNA bevat, een duidelijke interfase van DNA, en een onderste organische fase die eiwitten en lipiden bevat).
- Verwijder de bovenste laag van de waterige fase en breng deze over in een nieuwe 1.5 mL microcentrifugebuis. Voeg opnieuw een gelijk volume zuur fenol: chloroform toe. Centrifugeer bij 12,000 x g gedurende 15 min bij kamertemperatuur. Zorg voor een goede fasescheiding.
- Breng de bovenste waterige laag over in een nieuwe 1.5 mL microcentrifugebuis, voeg vervolgens 30 µL 3 M natriumacetaatbuffer, pH 5.3, en 240 µL gekoelde isopropanol toe. Incubeer bij −80 °C gedurende 30 min tot 1 u.
OPMERKING: De microcentrifugebuis kan bij deze stap overnacht bij -80 °C bewaard worden. Sluit de microcentrifugebuis af met meerdere lagen parafilm om te voorkomen dat deze bij 65 °C tijdens de incubatie open gaat.
WAARSCHUWING: Fenol en chloroform zijn gevaarlijke chemicaliën; volg daarom de juiste persoonlijke beschermingsmiddelen (PBM), technische maatregelen zoals zuurkasten en specifieke procedures voor afvalverwerking. - Centrifugeer bij 12,000 x g gedurende 1 u bij kamertemperatuur. Controleer of er een pellet is gevormd en verwijder voorzichtig het supernatant zonder het pellet te verstoren.
- Resuspendeer het pellet in 1 mL 75% ethanol en centrifugeer bij 12,000 x g gedurende 1 min bij kamertemperatuur. Voer deze stap tweemaal uit en laat het pellet aan de lucht drogen.
- Resuspendeer het pellet in 50 µL nuclease-vrij water.
OPMERKING: Om RNA op te lossen, dient het 10–30 min bij kamertemperatuur te worden geïncubeerd in RNase-vrij water.
- TRIzol-methode
- Voeg 200 µL TRIzol-reagens toe aan het celpellet.
WAARSCHUWING: TRIzol is een gevaarlijke chemische stof; volg daarom de juiste persoonlijke beschermingsmiddelen (PBM), technische maatregelen zoals zuurkasten en specifieke procedures voor afvalverwerking. - Volg de methode voor cellyse zoals beschreven in stappen 2.1.2 - 2.1.3.
- Voeg nog 200 µL TRIzol-reagens toe, gevolgd door 200 µL chloroform, en vortex gedurende 1 min. Centrifugeer bij 13,400 x g gedurende 15 min bij 4 °C. Zorg voor een goede fasescheiding na centrifugatie.
- Breng de waterige fase voorzichtig over in een nieuwe 1.5 mL microcentrifugebuis.
- Precipiteer het RNA door 500 µL isopropanol toe te voegen aan de waterige fase en te incuberen bij −80 °C gedurende 30 min tot 1 u.
- Pellet het RNA door centrifugatie bij 15,000 x g gedurende 20 min bij 4 °C. Observeer het pellet zorgvuldig en verwijder het supernatant zonder het pellet te verstoren.
- Resuspendeer het pellet met 1 mL 75% ethanol en centrifugeer bij 13,400 x g gedurende 1 min bij 4 °C. Herhaal deze stap tweemaal, laat het pellet 30 min aan de lucht drogen bij kamertemperatuur en resuspendeer in 50 µL nuclease-vrij water.
- Voeg 200 µL TRIzol-reagens toe aan het celpellet.
- Methode met commercieel verkrijgbare RNA-extractiekit
- Resuspendeer het celpellet in 200 µL resuspensiebuffer (meegeleverd in de kit).
- Volg de methode voor cellyse zoals beschreven in stappen 2.1.2 - 2.1.3.
- Voer het daaropvolgende experiment uit volgens de instructies van de fabrikant.
3. DNase-behandeling, kwantificering en visualisatie
- Voeg om contaminatie met genomisch DNA te verwijderen 1 µL DNase I (10units) en 5 µL RDD-buffer (1x) toe aan elk RNA-monster en incubeer dit 30 min bij kamertemperatuur.
- Kwantificeer het RNA-monster spectrophotometrisch met een Nanodrop en bepaal de RNA-integriteit met een Qubit4. Een acceptabele RIN-waarde ligt tussen 7,5 - 10. Acceptabele waarden voor A260/A280 en A260/A230 liggen respectievelijk in het bereik 1,8–2,0 en 2,0–2,2.
- Visualiseer het RNA op een 1% agarosegel met gebruik van 1X RNA-laadkleurstof.
4. cDNA-synthese en kwantitatieve real-time PCR
- Stel een reactie van 20 µL op voor de cDNA-preparatie met behulp van de cDNA Reverse Transcription kit en 1 µg RNA, volgens de instructies van de fabrikant in een thermocycler.
- Stel een real-time PCR-reactie van 10 µL op met 50 ng cDNA, 0,4 µM van elke primer en SYBR volgens de instructies van de fabrikant. Voer de monsteranalyse uit in de Real-Time PCR Thermal cycler.
OPMERKING: De volgende primers werden gebruikt voor de qPCR-analyse:
Mtb sigA Fw 5' cctcaaacagatcggcaagg 3', Mtb sigA Rv 5' cagatccacatcatgtcgcg 3'
Mtb hsp70 Fw 5’ gctggtggacaagttcaagg 3', Mtb hsp70 Rv 5' ggtcagctgctcgtctaaga 3'
Mtb16srRNA Fw 5' gcgatacgggcagactagag 3', Mtb16srRNA Rv 5' aaggaaggaaacccacacct 3'
Ms. sigA Fw 5' gaagacaccgacctggaact 3', Ms.sigA ms Rv. 5' gactcttcctcgtcccacac 3'
Ms. sigH Fw 5' gaagggttcccgtacaagg 3', Ms sigH Rv. 5' tcatgacgtcacctcctcg 3'
Ms. sigE Fw 5' caccaccaaccttttcctcg 3', Ms. sigE Rv. 5' accctcgatgtcacacagg 3'
5. Statistische analyse
- Voer de Student's t-test uit met alle biologische replica's met behulp van Graph Pad Prism; P ≤ 0,05 werd beschouwd als statistisch significant. Foutbalken vertegenwoordigen de standaardfout van ten minste drie biologische replica's.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
RNA-kwaliteit en opbrengst
De kwaliteit en kwantiteit van het RNA werden beoordeeld via agarosegelelektroforese (Figuur 2). Voor alle extractiemethoden werden duidelijke, scherpe banden waargenomen die overeenkwamen met 23S en 16S rRNA, wat de succesvolle isolatie van totaal RNA bevestigt. De Hot Phenol- en TRIzol-methoden vertoonden drie duidelijke banden die 23S (~2900 bp), 16S (~1500 bp) en 5S rRNA (~120 bp) vertegenwoordigen, ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Om een eenvoudige en robuuste RNA-extractiemethode voor Mycobacterium te ontwikkelen, is de Hot Phenol-methode geoptimaliseerd. Vervolgens werd het geëxtraheerde RNA vergeleken met twee veelgebruikte benaderingen: TRIzol en een kolomgebaseerde kitmethode12,13. Deze technieken werden vergeleken op basis van RNA-opbrengst, zuiverheid, integriteit, kosten en verwerkingstijd om hun praktische bruikbaarheid voor downstream moleculaire toepassingen te beoordel...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Er waren geen belangenverstrengelingen tussen de auteurs. Alle auteurs hebben de indiening goedgekeurd.
Dankbetuigingen
Ik wil graag de steun erkennen van het Department of Biotechnology (DBT), de Indian Council of Medical Research (ICMR) en de Science and Engineering Research Board (SERB).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.1 mm silicakralen | MP Biomedicals | MP116911050 | |
| 2-propanol | Sigma | 278475 | |
| Bead Ruptor 4 | revvity | ||
| Chloroform | Sigma | 288306 | |
| Gekoelde centrifuge | ThermoScientific | 42541217 | |
| DNase I | qiagen | 79254 | |
| EDTA | sigma | E02SS | |
| HCl | SRL | 62889 | |
| Warmteblok | MIULAB | MU-E02-1049 | |
| High-Capacity cDNA Reverse Transcription kit | Thermo Fischer Scientific | 4368814 | |
| Motorgestuurde weefselmolen G10 | Coron | G22616008 | |
| NaCl | sigma | S5886 | |
| Nanofotometer N50 | IMPLEM | T51601 | |
| fenol geëquilibreerd met 0.1 M citraatbuffer, pH 4.5 | Sigma | P4682 | |
| PowerUP SYBR | Applied Biosystems | A25742 | |
| Qubit 4 fluorometer | Invitrogen | 2.32262E+12 | |
| Real-Time PCR thermocycler | Analytik Jena AG | 844-00503-2 | |
| RNA easy Kit | Qiagen | 74104 | |
| SDS | Sigma | S9888 | |
| Natriumacetaat | Sigma | S2889 | |
| thermocycler | Biorad | 621BR29739 | |
| TRI Reagent | Sigma | T9424 | |
| Tris-base | Himedia | MB029 | |
| β-mercaptoethanol | Sigma | 516732 |
Referenties
- Global tuberculosis report, 2024. , Available from: https://www.who.int/publications/b/74877 (2024).
- Lange, C., et al. Drug-resistant tuberculosis: An update on disease burden, diagnosis and treatment. Respirology. 23 (7), 656-673 (2018).
- Tailleux, L., et al. Probing host-pathogen cross-talk by transcriptional profiling of both Mycobacterium tuberculosis and infected human dendritic cells and macrophages. PLoS One. 3 (1), e1403(2008).
- Voskuil, M. I., et al. Inhibition of respiration by nitric oxide induces a Mycobacterium tuberculosis dormancy program. J Exp Med. 198 (5), 705-713 (2003).
- Zhang, Y., Yew, W. W. Mechanisms of drug resistance in Mycobacterium tuberculosis. Int J Tuberc Lung Dis. 13 (11), 1320-1330 (2009).
- Arnvig, K. B., Young, D. B. Identification of small RNAs in Mycobacterium tuberculosis. Mol Microbiol. 73 (3), 397-408 (2009).
- Brennan, P. J., Nikaido, H. The envelope of mycobacteria. Annu Rev Biochem. 64, 29-63 (1995).
- Belisle, J. T., Sonnenberg, M. G. Isolation of genomic DNA from mycobacteria. Methods Mol Biol. 101, 31-44 (1998).
- Manganelli, R., et al. Role of the extracytoplasmic-function sigma factor σH in Mycobacterium tuberculosis global gene expression. Mol Microbiol. 45 (2), 365-374 (2002).
- Rustad, T. R., et al. Global analysis of mRNA stability in Mycobacterium tuberculosis. Nucleic Acids Res. 41 (1), 509-517 (2013).
- Mangan, J. A., Sole, K. M., Mitchson, D. A., Butcher, P. D. An effective method of RNA extraction from bacteria refractory to disruption, including mycobacteria. Nucleic Acids Res. 25 (3), 675-676 (1997).
- Venkataraman, B., Gupta, N., Gupta, A. A robust and efficient method for the isolation of DNA-free, pure and intact RNA from Mycobacterium tuberculosis. J Microbiol Meth. 93 (3), 198-202 (2013).
- Hiebert, R. M., et al. RNA extraction and RNA-sequencing method for transcriptomic analysis of Mycobacterium tuberculosis. Biotechniques. 77 (1), 23-34 (2025).
- Kumar, K., Tharad, M., Ganapathy, S., et al. Phenylalanine-rich peptides potently bind ESAT6, a virulence determinant of Mycobacterium tuberculosis, and concurrently affect the pathogen's growth. PLoS One. 4, e7615(2009).
- Alli, A. O., et al. Optimization of RNA extraction in Mycobacterium tuberculosis for studying intracellular gene expression. Afr J Clin Exp Microbiol. 10 (2), 64-79 (2009).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
