Hier beschrijven we een in vitro protocol om hypoxie/reoxygenatieschade te modelleren in de sterk metabole proximale tububulaire epitheelcellen. Dit model is ontworpen om schade veroorzaakt door metabole stress te induceren, die kan worden gemeten door de expressie van proximale tubuli-schademarkers en de beoordeling van de mitochondriale ademhalingsfunctie.
Methodenartikel
Modellering van hypoxie/reoxygenatieschade in proximale tubulära epitheelcellen
In dit artikel
Samenvatting
Samenvatting
Niertransplantatie is goed voor ongeveer 60%-65% van alle getransplanteerde vaste organen. De meeste donornieren worden verkregen van overleden personen, wat langdurige koude conservering vereist, wat een bekende oorzaak is van slechte transplantatieresultaten. Ondanks de huidige conserveringsstrategieën blijft ischemie-reperfusieschade (IRI) een onvermijdelijk gevolg van tijdelijke bloedstroomonderbreking, wat leidt tot zuurstof- en voedingstekort. Binnen het nefron zijn proximale tubulaire epitheelcellen (PTEC's) van het S3-segment bijzonder vatbaar voor IRI vanwege hun hoge metabole vraag en afhankelijkheid van mitochondriale oxidatieve fosforylering. Op moleculair niveau verstoort IRI het mitochondriale metabolisme en vermindert het de ATP-productie, waardoor de energiebehoefte van proximale tububulaire epitheelcellen (PTEC's) wordt verminderd en apoptose en necrose wordt bevorderd. Om deze mechanismen te onderzoeken en potentiële therapeutische strategieën te evalueren, zijn robuuste en reproduceerbare in vitro-modellen van renale IRI essentieel die de metabole kwetsbaarheid van PTEC's nauwkeurig weergeven. Hier beschrijven we een protocol voor de inductie en beoordeling van hypoxie/reoxygenatie (H/R) letsel bij muis-geïmmortaliseerde PTEC's (IM-PTEC's). Het protocol bevat gedetailleerde informatie over de samenstelling van het medium en de kweekomstandigheden die nodig zijn om deze cellen te behouden, gevolgd door de inductie van H/R-schade via gecontroleerde hypoxie- en reoxygenatiefasen die sterk lijken op de ischemie en reperfusiegebeurtenissen in getransplanteerde nieren. Dit model biedt een waardevol platform voor het evalueren van de effecten van verschillende interventies op nierepitheelcellen die worden blootgesteld aan H/R-letsel. De impact van deze behandelingen kan worden beoordeeld door de analyse van de expressie van markers die geassocieerd zijn met PT-schade, evenals door de beoordeling van de mitochondriale ademhalingsfunctie. Samen bieden deze uitlezingen mechanistische inzichten in de effectiviteit van verbindingen en cellulaire herstelprocessen, wat de ontwikkeling van gerichte therapieën voor renale IRI ondersteunt.
Inleiding
Volgens het Global Observatory on Donation and Transplantation is niertransplantatie goed voor ongeveer 60%-65% van alle solide orgaantransplantaties wereldwijd, waarbij het aantal uitgevoerde procedures in 2023 bijna drie keer hoger is dan dat van levertransplantaties, waarbij de laatste het op één na meest voorkomende type is. Bij 61% van de niertransplantaties die dat jaar werden uitgevoerd, kwam het orgaan van overleden donoren1, wat een langere bewaarperiode vereist vergeleken met transplantaties van levende donoren, waarbij de wachttijd aanzienlijk korter is2. Tijdens deze conserveringsperiode worden de nieren meestal bewaard door statische koude opslag om het cellulaire metabolisme te vertragen, wat de zuurstof- en energievraag vermindert en daardoor ischemische schadebeperkt 3. Statische koude opslag biedt echter slechts gedeeltelijke bescherming, omdat het de cellulaire stofwisseling of zuurstofafgifte niet volledig kan ondersteunen, wat leidt tot progressieve metabole disfunctie tijdens behoud 4,5. Alternatief is ex vivo normothermische conservering een haalbare strategie geworden om het orgaan op bijna fysiologische temperatuur te houden, waardoor het cellulaire metabolisme en zuurstofvoorziening worden ondersteund, en daardoor ischemie-reperfusieschade (IRI)6 wordt verminderd.
Tijdens een niertransplantatie is acute nierbeschadiging (AKI) door IRI echter een onvermijdelijk gevolg. IRI ontstaat door het onderbreken van de bloedstroom door het orgaan, wat leidt tot een disbalans tussen de vraag en aanbod van zuurstof en voedingsstoffen7. Dit proces heeft directe invloed op de functie van de getransplanteerde nier en verhoogt het risico op acute afstoting en verminderde langetermijnfunctievan de transplantatie 8,9.
PTEC's – vooral overvloedig aanwezig in de nierschors – zijn bijzonder kwetsbaar voor IRI. Deze cellen vormen ongeveer 60%-70% van het buisepitel en zijn verantwoordelijk voor de reabsorptie van het grootste deel van het glomerulaire filtrat, waaronder water, ionen, glucose en aminozuren10. Hun hoge metabole activiteit wordt ondersteund door een uitgebreid mitochondriaal netwerk om te voldoen aan ATP-afhankelijke transportbehoeften11. Daardoor zijn ze extreem gevoelig voor metabole verstoringen, zoals zuurstoftekort en mitochondriale disfunctie, beide centrale kenmerken van IRI12.
Tijdens IRI verstoort het gebrek aan zuurstof de mitochondriale oxidatieve fosforylering, wat leidt tot ATP-uitputting en een verminderde herabsorptiefunctie13,14. Dit initieert een metabole overgang van vetzuuroxidatie (FAO) naar anaerobe glycolyse en activatie van de pentosefosfaatroute, die, hoewel tijdelijk beschermend, onvoldoende is om volledig te voldoen aan de energie- en redoxbehoeften van deze cellen15. Als de onderdrukking van FAO aanhoudt tijdens de herstelfase, volgen lipidenaccumulatie16 en lipotoxiciteit17, wat de cellen verder beschadigt en hun regeneratieve capaciteit18 aantast. Deze maladaptieve metabole toestand kan uiteindelijk tubulaire atrofie, interstitiële fibrose en progressie naar chronische nierziekteveroorzaken.
Deze metabole stoornis, veroorzaakt door defecte FAO, belemmert het vermogen om aan de hoge energiebehoefte van de niertubuluste voldoen. De resulterende ATP-uitputting en lipidenophoping bevorderen mitochondriale disfunctie en de vorming van reactieve zuurstofsoorten, die pro-inflammatoire signalering en leukocyteninfiltratie activeren 20,21,22. Aanhoudende ontsteking en oxidatieve schade destabiliseren de mitochondriale integriteit, versterken energieverlies en veroorzaken uiteindelijk apoptotische en necrotische celdood23,24. Tijdens deze acute letselfase worden specifieke biomarkers zoals Nierbeschadigingsmolecuul 1 (KIM-1) en Neutrofilele Gelatinase-geassocieerde lipocaline (NGAL) opgereguleerd, wat dient als gevoelige indicatoren van proximale buisschade en vroege AKI25.
Na een acute blessure bevorderen maladaptieve herstelmechanismen een overmatige extracellulaire matrixafzetting, een kenmerk van nierfibrose26. Onder de extracellulaire matrixcomponenten hoopt collageen, met name type I collageen (gecodeerd door het Col1a1-gen), zich op in de interstitiële ruimte, wat bijdraagt aan tububulaire atrofie en verlies van functioneel parenchym27. Deze fibrotische remodellering wordt grotendeels veroorzaakt door tubulaire senescentie en partiële epitheliale-naar-mesenchymale overgang (pEMT) in tububulaire epitheelcellen, wat uiteindelijk leidt tot een achteruitgang van de nierfunctie 28,29,30. Het ontstaan van renale pEMT en fibrose ondersteunt de progressie van AKI naar chronische nierziekte (CKD), wat culmineert in een onomkeerbaar verlies van nierfunctie en een verminderde overleving van transplantattransplantaties31,32.
In dit protocol beschrijven we een in vitro model van H/R-letsel met behulp van muis SV40-geïmmortaliseerde proximale tubulaire epitheelcellen (IM-PTEC's), onderworpen aan gecontroleerde H/R-condities. De meeste preklinische studies van renale IRI zijn traditioneel gebaseerd op diermodellen, die de complexe vasculaire en immuunresponsen van de nier reproduceren, maar hogere kosten, ethische bezwaren en aanzienlijk grotere biologische variabiliteit met zich meebrengen33,34. Deze beperkingen hebben de ontwikkeling van complementaire celgebaseerde systemen vertraagd die geldig zijn voor gedetailleerde mechanistische en hoge-doorvoerstudies. Deze experimentele opstelling maakt het mogelijk om zuurstoftekort en herstel te simuleren, waarbij belangrijke kenmerken van IRI die in getransplanteerde nieren worden waargenomen, nabootst. Het model dient als een waardevol hulpmiddel voor het bestuderen van de cellulaire en moleculaire mechanismen achter tububulaire beschadiging, biomarkerexpressie en fibrotische reacties in een gecontroleerde omgeving. Bovendien biedt het een relevant platform voor het screenen en evalueren van potentiële therapeutische strategieën gericht op het voorkomen of beperken van ischemische schade en het verbeteren van de resultaten na transplantatie.
Protocol
De cellen die in dit protocol werden gebruikt, werden niet geïsoleerd binnen de context van deze studie. Ze waren eerder geïsoleerd en beschikbaar gesteld door andere onderzoekers35. Daarom werden er geen nieuwe dierproeven uitgevoerd en was ethische goedkeuring niet vereist voor het huidige werk.
1. IM-PTEC cultuur
- Bereid L3-medium voor zoals beschreven in Tabel 1.
- Ontdooi een flesje IM-PTEC's. Kweek ongeveer 1 x 10⁶ cellen bij 33 °C in een bevochtigde broedmachine onder standaardomstandigheden (5% CO2, atmosferischzuurstof) tot 80% confluentie (meestal bereikt na 3 dagen).
OPMERKING: IM-PTEC's worden geïsoleerd uit Immorto-muizen. Voor een gedetailleerd protocol voor isolatie van IM-PTEC's, zie35. - Subcultuurcellen 2 keer per week met een ongeveer 1:10 splitverhouding. Voor het passeren verwijder je de hechtende monolaag met 0,05% trypsine-EDTA gedurende 2-3 minuten bij 33 °C, neutraliseer met het volledige groeimedium en zaai in verse kweekflessen.
| Bestanddeel | Hoeveelheid/Eindconcentratie van media |
| DMEM/F12 | 500 mL |
| Foetaal kalfserum (FCS) | 10% |
| Penicilline | 10.000 U/mL |
| Streptomycine | 10.000 μg/mL |
| L-glutamine | 0,02 μM |
| Insuline | 5 μg/mL |
| Transferrin | 5 μg/mL |
| Natriumseleniet | 5 μg/mL |
| Triiodothyronine | 40 pg/mL |
| Hydrocortison | 36 ng/mL |
| Epidermale groeifactor | 20 ng/mL |
| Interferon γ (IFN-γ) | 10 ng/mL |
Tabel 1: L3 medium compositie.
2. Restrictieve cultuur van IM-PTEC's
- Subcultuur zoals beschreven in stap 1.3 en de volledige celsuspensie van één T-25 kolf IM-PTEC's overbrengen naar een T-75 kolf met ongeveer 10 mL L3-medium zonder interferon-γ (IFN-γ). Kweek bij 37 °C onder standaardomstandigheden tot 80% confluentie (meestal bereikt na 3 dagen).
- Subcultuur zoals beschreven in stap 1.3 en de volledige celsuspensie van één T-75 kolf overbrengen naar twee T-175 kolven met ongeveer 20 mL L3-medium zonder IFN-γ. Kweek bij 37 °C onder standaardomstandigheden tot 80% confluentie (meestal bereikt na 3 dagen).
- Plat IM-PTEC's voor experimenten door cellen los te koppelen van confluente culturen met 0,05% trypsine-EDTA, ze opnieuw te suspenderen in een volledig medium en te zaaien met de gewenste dichtheid (ongeveer 1 x 10⁵). Gebruik 6-well-platen voor moleculaire markerexpressie-analyse, of 96-well celcultuurmicroplaten geschikt voor mitochondriale ademhalingsstudies.
OPMERKING: Voor andere experimenten gebruik een geschikt kweekformaat.- Bij het plateren van cellen in een 96-wells celcultuur microplaat voor mitochondriale ademhalingsstudies, laat je de vier holen in de hoeken leeg om ze als achtergrondcorrectie te gebruiken. Laat de microplaat 1 uur op kamertemperatuur staan voordat je hem in de broedmachine plaatst zodat de cellen kunnen stabiliseren.
3. Hypoxie/reoxygenatieprocedure (Figuur 1)
- Vernieuw IM-PTEC's door kweekmedia te verwijderen en nieuw L3-medium toe te voegen zonder IFN-γ (0,1 mL/put voor 96-well platen of 2 mL/well voor 6-well platen). Plaats cellen in een hypoxie-incubator op 1% O2, 5% CO2 en 37 °C gedurende 48 uur.
- Verwijder cellen uit de hypoxie-incubator en vernieuw ze met L3-medium zonder IFN-γ. Plaats cellen in een celkweekincubator onder standaardO2-omstandigheden en 5% CO2 bij 37 °C gedurende 24 uur.
OPMERKING: Hypoxische omstandigheden kunnen worden bereikt met een hypoxie-incubator of een modulaire hypoxiekamer die is aangesloten op een gecontroleerde gastoevoer.
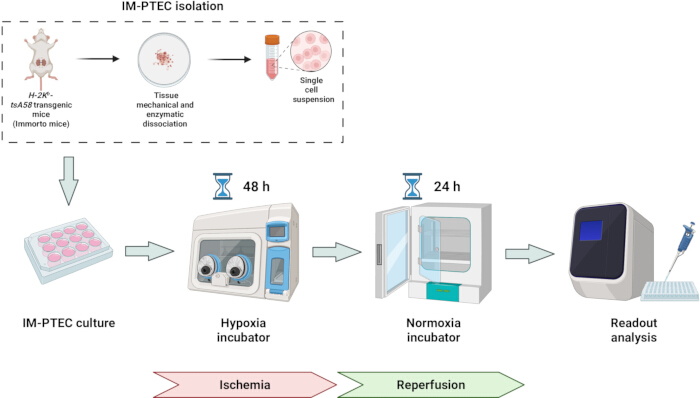
Figuur 1: Schematische weergave van het in vitro H/R-model in geïmmortaliseerde proximale tubulaire epitheelcellen (IM-PTEC's). IM-PTEC's afkomstig van H-2Kb-tsA58 transgene (Immorto) muizen werden onder normoxische omstandigheden gekweekt, blootgesteld aan hypoxie (1% O2, 48 uur), en vervolgens opnieuw geoxygeneerd (standaardO2-condities, 24 uur) voor uitleesanalyse. Klik hier om een grotere versie van deze figuur te bekijken.
4. Analyse van de expressie van moleculaire markers
- RNA-isolatie
- Voeg 800 μL RNA-isolatiereagens toe aan elke put van een 6-wellplaat. Incubeer 5 minuten op kamertemperatuur. Breng de monsters over in RNAse-vrije microcentrifugebuizen van 1,5 mL.
- Voeg 200 μL chloroform toe en meng goed gedurende 15 seconden door te pipetten. Incubeer op kamertemperatuur gedurende 2-3 minuten.
- Centrifugeer op 12.000 x g bij 4 °C gedurende 12 minuten. Breng de waterige bovenfase over naar een RNAse-vrije microcentrifugebuis van 1,5 mL.
- Voeg 500 μL isopropanol toe. Incubeer 10 minuten op kamertemperatuur. Centrifugeer op 12.000 x g bij 4 °C gedurende 10 minuten.
- Gooi het supernatant weg en was de pellet met 1 ml 70% ethanol. Centrifugeer op 5.000 x g bij 4 °C gedurende 5 minuten. Gooi het supernatant weg.
- Laat de pellet aan de lucht drogen. Los de pellet op in 12 μL RNAse-vrij water.
- Verwarm het monster 15 minuten op 56 °C. Meet de RNA-concentratie in een microvolume UV-Vis spectrofotometer.
OPMERKING: Houd de monsters altijd op ijs tussen de incubatiestappen om RNA-degradatie te voorkomen.
- Omgekeerde transcriptie
- Voeg op ijs de volgende reactiecomponenten toe aan een RNAse-vrije 0,2 mL microcentrifugebuis: 10 μL Master Mix (2x), 2 μL enzyme Mix, 1-5 μg RNA en tot 20 μL nucleasevrije H2O.
- Meng voorzichtig en incubeer bij 25 °C gedurende 10 minuten, gevolgd door incubatie bij 50-55 °C gedurende 10 minuten.
- Inactiveer de reactie door 5 minuten op 85 °C te verwarmen en op ijs te koelen. Verdun cDNA op 1:5 of 1:10.
- Real-time kwantitatieve PCR (RT-qPCR)
- Bereid primersets voor door ze te mengen bij een uiteindelijke concentratie van 10 μM (Tabel 2).
- Voor elk gen om te meten, bereid een Real-Time (RT) qPCR-mix voor met de volgende reagentia per put: 5 μL RT-qPCR Master Mix; 0,4 μL van 10 μM vooraanstaande primer, 0,4 μL van 10 μM omgekeerde primer, en 2,2 μL nucleasevrije H2O.
- Voeg 8 μL van het RT-qPCR-mengsel toe aan elke put van een 384-put PCR-plaat. Voeg 2 μL cDNA-monster toe aan elke put, zodat er een druppel op de rand van de put achterblijft.
- Na het toevoegen van alle monsters tik je zachtjes op de plaat totdat alle druppels in de holen vallen. Sluit de plaat stevig af met het membraan. Draai de 384-put PCR-plaat.
- Meet in een RT qPCR-systeem met het volgende programma: 98 °C voor 30 seconden, 40 cycli van 98 °C voor 10 seconden gevolgd door 60 °C voor 30 seconden, en een smeltcurve bij 95 °C.
| Gen | Primerreeksen |
| Kim-1 | F: 5' - TGGTTGCCTTCCGTGTCTCT |
| R: 5' - TCAGCTCGGGAATGCACAA | |
| Ngal | F: 5' - ATGTCACCTCCATCCTGGTCAG |
| R: 5' - GCCACTTGCACATTGTAGCTCTG | |
| Acta2 | F: 1,5 m - GCCATCTTTCATTGGGATGGA |
| R: 5' - CCCCTGACAGGACGTTGTTA | |
| Col1a1 | F: 5' - CCTCAGGGTATTGCTGGACAAC |
| R: 5' - CAGAAGGTTTTTTTTGCCAGG |
Tabel 2: Primersequenties gebruikt voor RT-qPCR.
5. Beoordeling van de mitochondriale ademhalingsfunctie
- De dag voor de assay
- Zet de zuurstofverbruikssnelheid (OCR)/extracellulaire verzuringssnelheid (ECAR) analyzer aan en laat deze minstens 5 uur opwarmen voor het experiment.
- Hydrateer een sensorcartridge bij 37 °C in een niet-CO2-incubator 's nachts.
- Dag van de assay
- Bereid assaymedium voor voor een 96-put celcultuur microplaat met 33,4 mL DMEM medium pH 7,4; 0,875 mL glucose 1 M (eindconcentratie 25 mM); 0,35 mL pyruvaat 100 mM (eindconcentratie 1 mM); en 0,35 mL glutamine 200 mM (eindconcentratie 2 mM).
- Bereid inhibitoroplossingen voor zoals in Tabel 3.
- Haal de in elkaar gezette Sensor Cartridge uit de incubator. Laad 25 μL van elke inhibitor in de bijbehorende poort met behulp van een multikanaals pipet en een laadgeleider.
- Verwijder het celkweekgroeimedium van de celcultuurmicroplaat. Voeg 175 μL voorverwarmd (37 °C) assaymedium toe aan elke put met behulp van een multikanaals pipet.
- Plaats de celcultuurmicroplaat in een 37 °C niet-CO2 incubator voor 45-60 minuten voorafgaand aan de test.
- Plaats de kalibratieplaat met de geladen sensorcartridge in de OCR/ECAR-analyzer voor kalibratie.
- Plaats de celcultuur-microplaat in het instrument voor meting.
- Na de run bewaar je de celcultuurmicroplaat voor kwantificering van het totale eiwit voor datanormalisatie.
| [Cartridge] (μM) | [Assay medium] (μM) | Port A | Port B | Port C | |
| Oligomycine | 12 | 1.5 | 8,4 μL | ||
| FCCP | 9 | 1 | 6,3 μL | ||
| Antimycine A | 25 | 2.5 | 17,5 μL | ||
| Rotenon | 12.5 | 1.25 | 8,75 μL | ||
| Assaymedium | 3,5 mL | 3,5 mL |
Tabel 3: Remmeroplossingen voor de beoordeling van mitochondriale ademhaling.
Resultaten
Eerst werd een tijdsvalidatie uitgevoerd om de optimale hypoxie/reoxygenatie (H/R) condities te bepalen om ischemische schade bij IM-PTEC's te reproduceren. Caspase-3 activatie, een kenmerk van renale ischemie-reperfusieschade zowel in vivo als in vitro, werd gebruikt als indicator van modelgetrouwheid36,37. We ontdekten dat 48 uur hypoxie gevolgd door 24 uur reoxygenatie de grootste toename in caspase-3 activiteit veroorzaakte. De levensvatbaarheid van de cellen, beoordeeld door de MTT-assay, bleef vergelijkbaar met die van normoxische controles onder deze omstandigheden, wat aangeeft dat hoewel apoptotische signalering werd geïnitieerd, cellen levensvatbaar bleven voor latere farmacologische tests (Aanvullende Figuur 1). Dit gevalideerde protocol werd vervolgens gebruikt om H/R-letsel op te wekken door gecontroleerde hypoxie/reoxygenatie van IM-PTEC's.
Na de ischemische insult werd RT-qPCR uitgevoerd om de expressie van verschillende markers van nierschade te bepalen (Figuur 2). RT-qPCR toonde aan dat, in de context van IRI, de expressie van Kim-1 38,39 en Ngal40,41, bekende markers van acute nierschade, significant verhoogd was. Bovendien waren de expressies van Acta242,43 en Col1a1 44,45,46, markers van renale pEMT/fibrose, ook verhoogd. Naast het feit dat het een nier-pEMT/fibrose-marker is, kan Col1a1-expressie ook worden gecorreleerd met CKD-ernst47. /p>
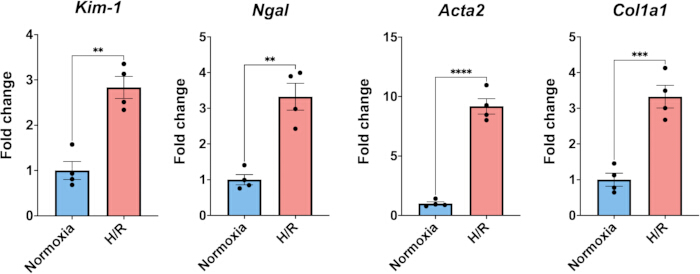
Figuur 2: Moleculaire expressie van nierbeschadigingsmarkers onder normoxie of hypoxie/reoxygenatie (H/R). Na H/R is de expressie van de moleculaire markers Kim-1, Ngal, Acta2 en Col1a1 significant verhoogd in IM-PTEC's. De gegevens worden gepresenteerd als gemiddelde ± standaardfout van het gemiddelde (SEM) van vier biologische replicaties per conditie. De statistische significantie werd beoordeeld met behulp van een ongepaarde tweezijdige Student's t-test. Significantieniveaus worden als volgt aangegeven: p < 0,05 (*), p < 0,01 (**), p < 0,001 (***), en p < 0,0001 (****). Klik hier om een grotere versie van deze figuur te bekijken.
Er werden ook mitochondriale ademhalingsstudies uitgevoerd om de mitochondriale ademhalingscapaciteit na H/R te bepalen (Figuur 3). Door de meting van de zuurstofverbruikssnelheid (OCR) bepaalden we dat na de ischemische uitdaging alle mitochondriale ademhalingsparameters (basale ademhaling, ATP-productie, protonlek, maximale ademhaling en reservecapaciteit) waren verlaagd, wat wijst op een belemmerd mitochondriaal metabolisme.
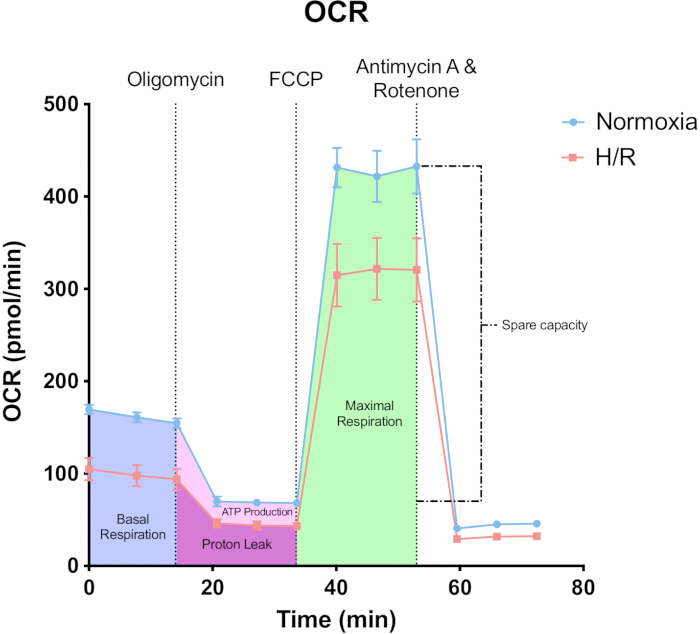
Figuur 3: OCR (zuurstofconsumptie) bij IM-PTEC's onder normoxische of hypoxische omstandigheden. Na hypoxie/reoxygenatie (H/R) tonen IM-PTEC's een verminderde mitochondriale ademhalingsfunctie. Mitochondriale ademhaling werd beoordeeld door sequentieel elektronentransportketenremmers toe te voegen: oligomycine, FCCP (carbonylcyanide-p-trifluoromethoxyfenylhydrazon), antimycine A en rotenon. De gegevens worden gepresenteerd als gemiddelde ± standaardfout van het gemiddelde (SEM) van vier biologische replicaties per conditie. Klik hier om een grotere versie van deze figuur te bekijken.
Deze resultaten bevestigen dat het H/R-protocol effectief moleculaire en metabole veranderingen induceert die consistent zijn met ischemisch nierletsel in IM-PTECs48,49. Dit protocol biedt daarom een nuttig kader om renale ischemie-reperfusie-achtige aandoeningen in vitro te reproduceren.
Aanvullende Figuur 1. Cellevensvatbaarheid en caspase-3-activiteit onder normoxie en hypoxie/reoxygenatie (H/R) condities. (A) Cellevensvatbaarheid. De levensvatbaarheid van de cel werd beoordeeld met een MTT-test na blootstelling aan normoxie of hypoxie/reoxygenatie (H/R). De resultaten worden uitgedrukt als relatieve levensvatbaarheid (%) genormaliseerd naar normoxische controles. (B) Gesplitste caspase-3. De activiteit van gespalten caspase-3 (nmol/min/mg-eiwit) werd gekwantificeerd in cellen die werden blootgesteld aan verschillende duurheden van normoxie (N), hypoxie (H) en reperfusie (R). De gegevens worden gepresenteerd als gemiddelde ± SEM, en elke stip vertegenwoordigt een individuele biologische replicatie. Klik hier om dit figuur te downloaden.
Discussie
De meeste preklinische gegevens over renale IRI-geïnduceerde AKI worden gegenereerd via in vivo modellen 50,51,52,53, vanwege het ontbreken van gevestigde in vitro modellen. Dit, samen met de beperkte beschikbaarheid van goed gekarakteriseerde muimale geïmmortaliseerde proximale tubulaire epitheelcellijnen, beperkt in vitro onderzoek, waardoor de ontwikkeling van dit protocol een waardevol voordeel is. Deze methode biedt een toegankelijker en reproduceerbaar platform om renale H/R-letselmechanismen onder gecontroleerde omstandigheden te bestuderen, terwijl ook de behoefte aan dierlijk gebruik wordt verminderd.
Bovendien maakt dit protocol voornamelijk gebruik van standaard laboratoriumapparatuur, waardoor de implementatie ervan mogelijk is zonder gespecialiseerde en dure instrumenten. De enige uitzondering is de eis voor een hypoxie-incubator, die doorgaans beschikbaar is in kankeronderzoekslaboratoria om hypoxische tumormicroomgevingenna te bootsen 54,55,56. Deze toegankelijkheid ondersteunt bredere adoptie en bevordert reproduceerbaarheid tussen verschillende laboratoria.
Een cruciale overweging in dit protocol is de juiste cultuur van IM-PTEC's. Cellen moeten worden gekweekt bij 33 °C en worden aangevuld met IFN-γ om downregulatie van SV40-activiteit te voorkomen. Voor experimentele procedures worden IM-PTEC's vervolgens 7 dagen voor de start van de experimenten overgeschakeld naar restrictieve omstandigheden. Een restrictieve kweek wordt bereikt door de temperatuur te verhogen tot 37 °C en interferon-gamma (IFN-γ) gedurende 1 week uit het medium te verwijderen, wat de expressie van SV40 met grote T-antigeenen vermindert – een viraal eiwit gecodeerd door Simian Virus 40, dat wordt gebruikt om de cellen35,57 te verevigen, waardoor cellen hun onsterfelijke status verliezen en een meer gedifferentieerd en fysiologisch relevant fenotype58 bevorderen. Opmerkelijk is dat IM-PTEC's na enkele dagen in kweek prominente cytoplasmatische vacuolen kunnen ontwikkelen; Als vacuolatie optreedt, moet hydroxycortison uit het kweekmedium worden weggelaten om deze verandering te voorkomen of terug te draaien.
Hoewel het gebruik van geïmmortaliseerde PTEC's het voordeel biedt van stabiliteit en onderhoudsgemak, kunnen onderzoekers ook overwegen primaire proximale tububulaire epitheelcellen te gebruiken om de fysiologische relevantie te vergroten. Echter, primaire PTEC's van muizen vertonen een grotere donor-tot-donor variabiliteitvan 59,60 en hebben een beperkte proliferatieve capaciteitvan 61,62, waardoor ze minder geschikt zijn voor high-throughput of langdurige experimenten. Hun gebruik kan geschikter zijn voor validatiestudies of bij het bestuderen van specifieke patiëntafgeleide responsen
Dit protocol biedt een waardevol platform om de moleculaire mechanismen achter H/R-schade te onderzoeken, potentiële therapeutische benaderingen te identificeren en te evalueren, en cellulaire reacties zoals ontsteking, oxidatieve stress en celsterfteroutes in een gecontroleerde omgevingte verkennen 63,64.
Toch is een belangrijke beperking van dit model dat het bepaalde kenmerken van ischemie die bij niertransplantatie zijn waargenomen, zoals onderkoeling en nutriëntentekort tijdens koudeopslag, niet reproduceert. Deze aandoeningen beïnvloeden de cellulaire stofwisseling en letselpatronen aanzienlijk, en hun afwezigheid kan de overdracht van bevindingen naar de klinische setting beperken65,66.
Samenvattend biedt dit in vitro H/R-model in IM-PTEC's een reproduceerbare, toegankelijke en ethisch gunstige benadering om nierischemie-reperfusieschade onder gecontroleerde omstandigheden te bestuderen. Hoewel het de complexiteit van in vivo ischemie niet volledig samenvat, is het een waardevol aanvullend hulpmiddel om cellulaire mechanismen te verduidelijken, therapeutische kandidaten te screenen en de afhankelijkheid van dierproeven in nieronderzoek te verminderen.
Openbaarmakingen
De auteurs verklaren dat zij geen belangenconflicten met dit werk hebben om te melden
Dankbetuigingen
Mariano Marin-Blazquez maakt deel uit van het "Programa de Doctorado en Ciencias de la Salud" van de Katholieke Universiteit van Murcia (UCAM). Het werk in de groep Ruben Rabadan-Ros en Ruben Zapata-Perez wordt ondersteund door een subsidie van het Ministerio de Ciencia, Innovación y Universidades - Proyectos de Generación de Conocimiento 2023 (PID2023-147560OA-I00). Ruben Rabadán-Ros wordt ondersteund door een subsidie van Fundación Séneca - Agencia de Ciencia y Tecnología de la Región de Murcia (22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Líderes en Investigación 2024). AT wordt financieel ondersteund door een NWO-FAPESP gezamenlijke subsidie over Healthy Ageing, uitgevoerd door Zonmw (nr. 457002002) en een Junior Talent Grant van Nierstichting.
De auteurs danken de Universidad de Murcia (UM) en de Universidad Católica de Murcia (UCAM) voor het bieden van toegang tot hun faciliteiten waar videobeelden werden opgenomen.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 384-well qPCR plate | Applied Biosystems | 4309849 | |
| Centrifuge | Ortoalresa | Biocen22R | |
| Chloroform | VWR | 0757-500ML | |
| DMEM/F12 | Gibco | 21331020 | |
| Epidermal Growth Factor | Sigma-Aldrich | E9644 | |
| Ethanol | PanReac AppliChem | 141086.1214 | |
| FCS | Biowest | S181B-500 | |
| Heating block | Eppendorf | ThermoMixer C | |
| Hydrocortisone | Sigma-Aldrich | H0135 | |
| Hypoxia Incubator | Memmert | ICO 50med | |
| IFN-γ | ProspecBIo | CYT-358 | |
| Incubator | Memmert | ICO 105 | |
| Isopropanol | VWR | 0918-1L | |
| ITSe | Gibco | 41400045 | |
| L-glutamine | Gibco | 25030081 | |
| Multichannel pipette | Eppendorf | 3125000052 | |
| Non-CO2 incubator | |||
| PCR Primers | Eurofins Genomics | ||
| Penicillin - Streptomycin | Gibco | 15140-122 | |
| qPCR Master Mix | NZYTech | MB22303 | |
| Real-Time qPCR System | Applied Biosystems | QuantStudio 5 | |
| Reverse transcription Master Mix | NZYTech | MB12502 | Bevat Enzyme Mix |
| RNAse-free water | HyClone | SH3053802 | |
| Seahorse XF Cell Mito Stress Test Kit | Agilent | 103015-100 | Bevat Oligomycin, FCCP, Antimycin A en Rotenone |
| Seahorse XF DMEM medium | Agilent | 103575-100 | |
| Seahorse XF Glucose | Agilent | 03577-100 | |
| Seahorse XF Glutamine | Agilent | 103579-100 | |
| Seahorse XF Pyruvate | Agilent | 103578-100 | |
| Seahorse XFe96 Analyzer | Agilent | S7800BR | |
| Seahorse XFe96 FluxPak | Agilent | 103792-100 | Bevat XFe96 Cell Culture Microplate en XFe96 Sensor Cartridge |
| Thermal cycler | BIO-RAD | T100 Thermal Cycler | |
| Triiodothyronine | Sigma-Aldrich | T5516 | |
| Trizol | Invitrogen | 15596026 | |
| UV-Vis spectrophotometer | DeNovix | DS-11 |
Referenties
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
Herprints en machtigingen
