Dit protocol beschrijft een kwantitatieve ontlastingstest bij jonge RAC1/CED-10 mutante Caenorhabditis elegans, waarmee een eenvoudig model wordt geboden om prodromale stadia van de ziekte van Parkinson te bestuderen. Het overwint beperkingen van andere diermodellen en faciliteert het testen van therapeutische strategieën gericht op vroege Parkinsoniaanse pathologie.
Methodenartikel
Beoordeling van gastro-intestinale motiliteit bij Caenorhabditis elegans RAC1/CED-10 mutanten als hulpmiddel om vroege Parkinson te bestuderen
In dit artikel
Samenvatting
Samenvatting
De ziekte van Parkinson (PD) is een van de meest voorkomende neurodegeneratieve aandoeningen en wordt vastgesteld op basis van motorische symptomen die optreden na aanzienlijk verlies van dopaminerge neuronen. Niet-motorische symptomen, zoals constipatie, komen het meest voor en verschijnen vaak eerder, wat wijst op het begin van de ziekte. Veel diermodellen worden gebruikt om neurodegeneratieve ziekten te bestuderen, maar de meeste richten zich op de latere stadia. Omdat het moeilijk is om het exacte begin van neurodegeneratie te bepalen, vertegenwoordigt geen enkel model volledig het volledige verloop van de ziekte. Zoogdiermodellen zijn vooral tijdrovend en duur vanwege hun lange levenscycli. Daarentegen maakt Caenorhabditis elegans (C. elegans), een transparante nematode van 1 mm met een korte levensduur en voortplantingscyclus (~3 weken en 3 dagen), snellere en kosteneffectieve experimenten mogelijk dankzij de snelle generatieomloop. Het defecatiemotorische programma bij C. elegans bestaat uit ritmische cycli die worden gereguleerd door een complex genetisch netwerk waarin Rho/rac GTPases deelnemen, en RAC1 (CED-10 bij C. elegans) behoort daarbij. We hebben aangetoond dat RAC1/CED-10-mutanten een verzwakte GABAerge morfologie en functie vertonen, wat resulteert in verstoorde ontlastingscycli. Hier presenteren we het experimentele protocol voor het meten van constipatie bij RAC1/CED-10 C. elegans in een vroeg stadium. Naast het dienen als voorspellende tool om vroege PD-symptomen vóór neurodegeneratie te onderzoeken, kan dit protocol ook worden gebruikt als een vroeg eindpunt om de effectiviteit van farmacologische interventie te beoordelen. Omdat deze veranderingen niet ziektespecifiek zijn, geloven wij dat dit model een waardevol hulpmiddel biedt om veranderingen te onderzoeken die vroeg optreden bij andere ziekten.
Inleiding
De ziekte van Parkinson (PD) is de op één na meest voorkomende neurodegeneratieve aandoening en een van de belangrijkste oorzaken van neurologische beperkingen 1,2. De pathologische kenmerken omvatten Lewy-lichamen en Lewy-neurieten, voornamelijk bestaande uit α-synucleïne, samen met neuronaal verlies in de substantia nigra en andere hersengebieden3.
Klinisch wordt PD geclassificeerd als een bewegingsstoornis, maar wordt het ook gekenmerkt door een breed spectrum aan niet-motorische symptomen. Motorische beperkingen ontstaan door dopaminerge neurondegeneratie in de substantia nigra en striatale dopaminedepletie. Echter, niet-motorische symptomen – zoals constipatie, angst en REM-slaapgedragsstoornis 4 – komen vaak jaren eerder naar voren, tijdens de prodromale fase, wanneer neurodegeneratie extranigrale structuren aantast (bijv. hersenstam, reuksysteem en autonome banen)5.
Een grote uitdaging in PD-onderzoek is de vertraagde klinische aanvang: motorische symptomen verschijnen meestal pas nadat 60%-80% van de dopaminerge neuronen3 keer zijn verloren, waarna therapeutische interventie minder effectief is. Vroege niet-motorische symptomen (bijvoorbeeld autonome disfunctie) kunnen dienen als biomarkers voor prodromale PD6, maar hun niet-specificiteit bemoeilijkt de definitieve diagnose. Gezien deze beperkingen zijn diermodellen essentieel voor het bestuderen van vroege PD-stadia, het standaardiseren van symptoomkarakterisering en het ontwikkelen van neuroprotectieve therapieën—die momenteel ontbreken—die neurodegeneratie kunnen vertragen of voorkomen.
RAC1/CED-10 C. elegans-mutanten herhalen belangrijke vroege en late PD-kenmerken6. We hebben eerder aangetoond dat RAC1-activiteit cruciaal is voor de overleving en functie van dopaminerge neuronen, en beschermt tegentoxiciteit door α-synucleïne 7. Bovendien vertonen RAC1/CED-10-mutanten fenotypische veranderingen die lijken op vroege PD, waaronder disregulatie van het lipidmetabolisme en GABAerge disfunctie, waarbij de laatste zich uitte in verstoorde ontlastingscycli6. Deze bevindingen vestigen RAC1/CED-10-mutanten als een hanteerbaar model voor het bestuderen van pre-degeneratieve PD-pathofysiologie.
Hier beschrijven we een geoptimaliseerde defecatietest voor RAC1/CED-10-mutanten, die intestinale dysmotiliteit kwantitatief vastlegt, waardoor systematisch onderzoek naar gastro-intestinale kenmerken tijdens de prodromale fase van PD mogelijk is.
Protocol
OPMERKING: Wildtype: N2 Bristol werd gebruikt. Model van vroege PD RAC1/CED-10: De stam BR3579 is genotypeed ced-10(n3246) en wordt hier RAC1/CED-10 genoemd. Het was een gulle gift van Dr. Ralf Baumeister (Albert-Ludwig Universiteit, Freiburg/Breisgau, Duitsland). Deze variant van ced-10(n3246) is een sterk allel. De mutatie ced-10(n3246) is een G-naar-A-overgang die resulteert in een verandering van glycine 60 van CED-10 naar arginine (G60R), wat resulteert in een niet-nul veranderde functie 8,9. De ernst van dit allel is sterker in vergelijking met andere ced-10 allelen10. Hermafrodieten werden gedurende het hele onderzoek gebruikt.
1. Wormonderhoud
- Giet 25 ml nematodegroeimedium (NGM) in 150 mm petrischalen en laat de agar stollen. Zaad elke plaat met 500 μL van een Escherichia coli OP50-cultuur, waarbij de suspensie gelijkmatig over het agaroppervlak wordt verspreid. Incubeer platen bij 30 °C 's nachts om bacteriegroei mogelijk te maken. Bereid borden 24 uur voor gebruik voor.
2. Het verkrijgen van wormen die gesynchroniseerd zijn in de 4e fase van larvale ontwikkeling (L4)
- Voer metingen uit van de darmmotiliteit met wormen die gesynchroniseerd zijn in het L4-larvale ontwikkelingsstadium. Om wormen in deze ontwikkelingsfase te verkrijgen, volgt u het hieronder beschreven bleekprotocol (aangepast van 11) met kleine aanpassingen gerelateerd aan het RAC1/CED-10 fenotype11.
- Voeg 10 zwangere volwassen dieren toe aan de NGM-platen met Escherichia coli OP50, bereid zoals in stap 1, om eieren te leggen en de wormen 3 dagen te laten groeien. Alternatief kunt u een stuk agar van een NGM-plaat met een gemengde populatie overbrengen naar een nieuwe NGM-plaat. In dit geval is de levenscycluscontrole niet zo nauwkeurig als bij het gebruik van 10 zwangere volwassenen. Na 80 uur werd een gemengde populatie van C elegans-hermafrodieten met zwangere volwassenen waargenomen bij wilde types. RAC1/CED-10 mutanten vertoonden 6 uur vertraagde ontwikkeling6, dus zwangere volwassenen verschenen na 86 uur.
OPMERKING: Zwangere volwassen dieren worden geïdentificeerd omdat ze eieren in zich hebben. - Wasplaten met 10 mL M9 om zwangere volwassenen te recupereren in 15 mL buisjes (gelabeld met het bijbehorende genotype).
- Pellet de wormen door 2 minuten te centrifugeren op 2000 x g (~1500 rpm op een standaard tafelcentrifuge) bij kamertemperatuur, verwijder het supernatant en voeg 10 mL verse M9-buffer toe.
OPMERKING: Hoewel het werkt bij kamertemperatuur, zagen we betere resultaten door te centrifugeren op 10 °C. - Voer stap 2.4 3 keer uit of totdat de buffer vrij is van bacteriën (transparant supernatant). De aanwezigheid van bacteriën kan worden afgeleid uit het feit dat het supernatant licht gelig en troebel lijkt.
- Voeg M9-buffer toe aan een totaal volume van 3,5 mL.
OPMERKING: Uit onze ervaring kan steriel gedestilleerd water – of zelfs kraanwater – in deze stap worden gebruikt zonder besmetting, omdat het daaropvolgende bleekproces alle microben elimineert. We raden echter M9-buffer of steriel water aan om reproduceerbaarheid in laboratoria te waarborgen. - Meng 0,5 mL 5M NaOH met 1 mL bleekmiddel om de bleekoplossing te bereiden. Maak deze oplossing vlak voor gebruik fris. Voeg 1,5 mL van het mengsel toe aan de centrifugebuis met wormen.
- Beweeg de buisjes krachtig tijdens het bleken terwijl je de vernietiging van volwassen weefsel onder een dissectiemicroscoop monitort. Stop de reactie zodra er alleen nog sporen van volwassen dieren zichtbaar zijn.
OPMERKING: De blekingsbehandeling lyseert volwassen wormen en larven, terwijl embryo's levensvatbaar blijven omdat hun eierschaal hen beschermt tegen bleekmiddel. Deze stap is cruciaal om overlevenden te krijgen. Een overmaat van tijd kan alle wormen doden. Het gebruik van een vortex wordt sterk aanbevolen, maar controleer daarna elke 3 minuten de vernietiging van de nagelriem. RAC1/CED-10 mutanten zijn gevoeliger voor bleekmiddel. Controleer elke 2 minuten de desintegratie van het volwassen weefsel en overschrijd nooit 8 minuten. - Stop de reactie door een M9-buffer toe te voegen om de buis te vullen (~15 mL). Centrifugeer snel (aangezien behandeling mogelijk nog actief is) gedurende 1 minuut op 2.000 x g en gooi supernatant weg.
- Was de pellet 3x door de buis te vullen met M9-buffer en te centrifugeren zoals hierboven beschreven. Na de laatste wasbeurt verwijder je voorzichtig het supernatant totdat er ongeveer 0,1 mL over is.
- Voeg deze eieren toe aan een nieuwe 15 mL buis en voeg M9 toe aan 5 mL. Broed op kamertemperatuur met zachte rotatie. Er moet een goede beluchting worden verzorgd.
OPMERKING: We behaalden goede synchronisatieresultaten met kraanwater in plaats van M9 in alle stappen behalve stap 2.9. - Na 24 uur stop je de rotatie en pellet je de wormen door te centrifugeren op 2.000 x g gedurende 1 minuut bij 10 °C.
- Plaat 30-50 μL met gepelleteerde wormen van de overeenkomstige genotypen in 150 cm NGM-platen bezaaid met OP50 en gelabeld met het bijbehorende genotype. Verschillende RAC1/CED-10 wormen leken dood te zijn, als een intrinsieke eigenschap van het RAC1/CED-10 genotype (persoonlijke observatie). Waarom, verdubbel het volume van deze mutanten en monitor ze de volgende dag.
OPMERKING: Het volume van de platwormen hangt af van de opbrengst van het bleekprotocol. Overschrijd nooit het aantal van 250 wormen per bord, want voedsel raakt sneller op en wormen kunnen verhongeren. Het verschil in ontwikkeltijd kan verstandig worden gebruikt om tijd te hebben om de eerste ontlastingscycli van wildtype- en vervolgens RAC1/CED-10-wormen te registreren (zie volgende sectie). - Controleer op wildtype-wormen in L4-stadium van larvale ontwikkeling na 34 uur broedtijd. Dezelfde ontwikkelingsfase voor RAC1/CED-10 wormen wordt bereikt in 40 uuren 6 uur. Onderscheid L4-wormen van L3 en jonge volwassenen door hun grootte (~650 μm) te meten en hun maanachtige vulvastructuur12 te controleren.
3. Het registreren van darmmotiliteit
- Was de platen met 3 mL M9 om L4-wormen terug te winnen in twee 1,5 mL centrifugebuizen.
- Centrifugeer op 2.000 x g gedurende 1 minuut (Figuur 1A), verwijder supernatant en voeg 1 mL verse M9-buffer toe. Herhaal stap 3 keer.
- Plaats deze gewassen wormen in een NGM-plaat zonder OP50 (Figuur 1B). Met deze was- en laatste opmaakstappen verwijder je overtollige bacteriën.
- Wormen worden individueel overgebracht naar 12-wellplaten met gezaadde 5 μL OP50-bacteriën (Figuur 1C). Laat wormen zich 1 uur aanpassen bij 20 °C.
OPMERKING: Deze borden werden bezaaid en laten drogen voordat er wormen werden toegevoegd. Het is beter om deze platen niet van tevoren voor te bereiden, omdat overgroei van bacteriën het visualiseren van de ontlastingscyclus moeilijk kan maken. - Plaats de platen met 12 putjes met wormen onder de microscoop, lokaliseer één worm en begin met het opnemen. Recordpocheercycli van 15 minuten (15 cycli; Figuur 1D). Gebruik een 5x objectief voor beeldvorming met een camera die een 12-bits resolutie en een framerate van 60 frames per seconde (fps) biedt. Voer video-opname uit met de Snipping Tool in Windows. Begin met opnemen zodra je de eerste ontlastingscyclus detecteert.
OPMERKING: Als de microscoop op een computer is aangesloten, kun je het scherm direct opnemen met de Snipping Tool. We raden sterk aan om een computerchronometer te hebben voor het monitoren van de ontlastingscyclus. Klik elke keer op de Ronde-knop aan het einde van de ontlastingscyclus.
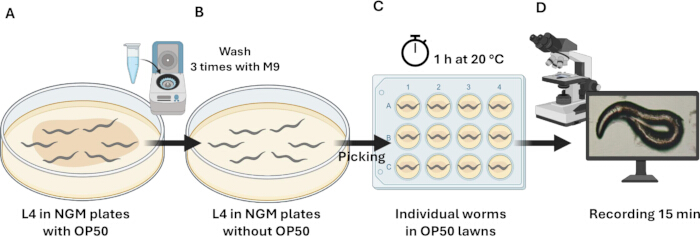
Figuur 1: Schematisch diagram van het experimentele protocol voor het meten van darmmotiliteit. (A) Gesynchroniseerde wormen in het L4-ontwikkelingsstadium. Deze wormen werden verzameld en drie keer gewassen met M9. (B) Gewassen wormen werden beplat in NGM-platen zonder OP50. (C) Wormen werden individueel geplukt in een 12-well plaat met OP50 en lieten ze 1 uur kruipen bij 20 °C. In deze periode passen de wormen zich aan aan het nieuwe medium en ontspannen ze van de stress van de overdracht. (D) Individuele wormen werden 15 minuten geregistreerd om de darmmotiliteit te analyseren. Klik hier om een grotere versie van deze figuur te bekijken.
4. Analyse van de ontlastingscyclus
OPMERKING: Bij C. elegans bestaat het defecatiemotorische programma uit ritmische cycli die worden georkestreerd door een complex genetisch netwerk. Dit programma bestaat uit drie opeenvolgende, onderscheiden spiercontracties, die elk gemakkelijk detecteerbaar zijn onder een dissectiemicroscoop. De eerste stap omvat de contractie van de achterste lichaamswandspieren (pBoc), gevolgd door de contractie van de voorste lichaamswandspieren (aBoc), en tenslotte de enterische spiercontracties (EMC), die resulteren in het uitstoten van de darminhoud (Exp)13 (Figuur 2).
- Voer experimenten uit bij 20 °C. Zodra alle video's zijn opgenomen, begin je met de data-analyse.
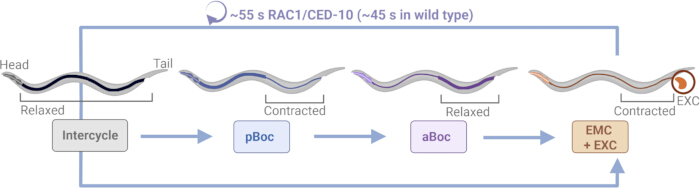
Figuur 2: Ontlastingscyclus bij C. elegans RAC1/CED-10 mutanten. Een diagrammatische weergave van de C. elegans-defecatiecyclus in RAC1/CED-10 mutante nematoden. pBoc duidt de samentrekking van de achterste lichaamswandspier aan; aBoc duidt de contractie van de voorste lichaamswandspier aan, en EMC + EXC komt overeen met het uitwerpen van darminhoud. Bij wildtype, ongestoorde voedersdieren wordt dit motorische programma elke 45 seconden gestart met zeer hoge regelmaatvan 18. Wormen zijn georiënteerd met de kop naar links en de staart naar rechts. Uitscheiding (EXC) is oranje gemarkeerd. Dit cijfer is aangepast van6. Klik hier om een grotere versie van deze figuur te bekijken.
5. Video-analyse
- Open één video met een videospelerprogramma.
OPMERKING: We gebruikten Windows Media Player Legacy v12. Andere videospelerprogramma's kunnen worden gebruikt. - Bereid het spreadsheetbestand voor. Open het bijgeleverde sjabloonbestand (Aanvullende Tabel 1). Voer de videobestandsnaam en wormgrootte (optioneel) in in de aangewezen velden en start vervolgens de videoweergave.
- Definieer en registreer de eerste uitscheiding. Definieer tijd nul als het moment waarop de opname begint wanneer wormen onder de microscoop worden geplaatst. Observeer het anusgebied van de worm en identificeer het eerste uitscheidingsmoment. Noteer de tijd (in s) voor dit evenement in de cel met het label Eerste Uitscheiding van de spreadsheet.
OPMERKING: De tijd van de eerste uitscheiding varieert tussen wormen (bijv. worm 1 = 5 s, worm 2 = 26 s, worm 3 = 34 s) omdat de timing van de laatste uitscheiding vóór opname onbekend is. - Record daaropvolgende uitscheidingsgebeurtenissen: Ga voort met afspelen en documenteer elke volgende uitscheiding achtereenvolgens (Uitscheiding 2, Uitscheiding 3, enz.) totdat er in totaal 16 uitscheidingen zijn geïntroduceerd.
- Bereken cyclusintervallen: Het sjabloon bepaalt automatisch het interval tussen opeenvolgende uitscheidingen (bijv. Uitscheiding 2 - Uitscheiding 1; Uitscheiding 3 - Uitscheiding 2; ...). Gebruik deze intervallen als de cycluslengte.
- Bepaal de totale cyclustijd: Zodra de 16 gebeurtenissen zijn geregistreerd, berekent het sjabloon de tijd die de worm nodig heeft om 15 cycli te voltooien. Deze waarde wordt weergegeven in de cel met het label Totale Tijd van de spreadsheet. Herhaal dit proces voor elke worm.
OPMERKING: Momenteel detecteert geen enkele geautomatiseerde software betrouwbaar ontlastingscycli in C. elegans. Hoewel platforms zoals WMicrotracker effectief zijn voor het kwantificeren van bewegingsparameters (snelheid, afgelegde afstand, wormnummer of lichaamsgrootte14,15), bieden ze niet de resolutie die nodig is om het anusgebied te monitoren en contractie- of uitscheidingsgebeurtenissen te identificeren. Daarom blijft handmatig scoren noodzakelijk, vergelijkbaar met de beperking die wordt waargenomen bij assays van faryngeale pompen16.
6. Metingen van cycluslengtes
- Score de cycluslengte als de tijd tussen twee opeenvolgende uitscheidingen. Bereken door de eindtijd van één cyclus af te trekken van de eindtijd van de volgende cyclus, zoals uitgelegd in Tabel 1 en Vergelijking 1.
Cycluslengte (n) (in seconden) = Tijduitscheiding (n+1) - Tijduitscheiding (n) Vergelijking 1
Cycluslengte (1st) = 66 s ((tijduitscheiding 2 = 71 s) - (tijduitscheiding 1 = 5 s)) - Voor elke dataset bereken je de gemiddelde periode van de defecatiecyclus, standaarddeviatie (SD) en standaardfout van het gemiddelde (SEM) met behulp van een statistische analysesoftware.
7. Ritmische of regelmatigheid van de ontlastingscyclus
- De variatiecoëfficiënt (CV) wordt gebruikt om de relatieve variabiliteit te beschrijven en legt uit hoe de gegevens zich vergeleken met het gemiddelde verspreiden. Het is eerder gebruikt als indicator voor de regelmaat van de ontlastingscyclus bij C. elegans6. Bereken de CV voor elke worm door Vergelijking 2 toe te passen.
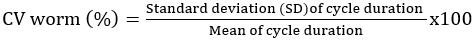 Vergelijking 2
- Voor elke C. elegans-rek bereken je het gemiddelde CV, standaarddeviatie (SD) en standaardfout van het gemiddelde (SEM) met behulp van een statistische analysesoftware.
8. Statistische analyse
- Voer experimenten uit in drie onafhankelijke replicata, met vijf wormen per conditie geanalyseerd. Evalueer de datanormaliteit met de Shapiro-Wilk-test (α=0,05), die wordt aanbevolen voor n < 50.
- Omdat de metingen van de cycluslengte geen normale verdeling volgden, werd de analyse uitgevoerd met de niet-parametrische Mann-Whitney-test, die goed geschikt is om verschillen in medianen met kleine steekproefgroottes te detecteren. Omgekeerd zijn CV (%) gegevens normaal verdeeld; analyseer ze met een ongepaarde t-test met Welch's correctie om rekening te houden met ongelijke varianties.
- Voer alle statistische analyses uit met behulp van statistische analysesoftware. Voor experimenten met meer dan twee stammen wordt een alternatieve test toegepast, zoals eenrichtings-ANOVA, met continue verificatie van de steekproefverdeling.
Resultaten
De beschreven video-gebaseerde assay werd toegepast in het C. elegans RAC1/CED-10 model van vroege PD om de darmmotiliteit kwantitatief te beoordelen. Gezien de ontwikkelingsvertraging van RAC1/CED-10 mutanten werden gesynchroniseerde populaties aangepast om stadium-matched vergelijkingen met wildtypecontroles te waarborgen. Individuele wormen werden geregistreerd in het L4-stadium en 15 opeenvolgende ontlastingscycli werden geanalyseerd om de cycluslengte en regelmaat te bepalen. Deze aanpak maakt nauwkeurige, hoogresolutie meting van de darmmotorische functie mogelijk en maakt het mogelijk om subtiele niet-motorische veranderingen te detecteren die geassocieerd zijn met vroege PD-fenotypes bij C. elegans.
Ontwikkelingsvertraging bij RAC1/CED-10 dieren voor gesynchroniseerde experimenten
Gezien de ontwikkelingsvertraging die is waargenomen bij de C. elegans RAC1/CED-10 mutant6, vereisen synchronisatie-experimenten die parallel worden uitgevoerd met wildtypedieren temporele aanpassing. Om deze vertraging te compenseren en stage-matching vergelijkingen tijdens video-opname te waarborgen, werden RAC1/CED-10-dieren 6 uur eerder op dezelfde dag op de plaat geplaatst dan wildtypecontroles.
RAC1/CED-10 wormen om veranderingen in de ontlasting die samenhangen met de ziekte van Parkinson te onderzoeken
Constipatie kan al twee decennia vóór de diagnose motorische PD worden opgemerkt, waardoor het een van de eerste herkenbare tekenen is die het begin van de ziekteaangeven. We hebben eerder aangetoond dat het RAC1/CED-10-model niet-motorische veranderingen vertoont in het L4-ontwikkelingsstadium, vóór het begin van neurodegeneratie6, en veranderde darmmotiliteit is een van deze aandoeningen. Zoals beschreven in het Protocol, werden individuele wormen geregistreerd in het L4-stadium. Figuur 3 toont een representatieve RAC1/CED-10 worm.
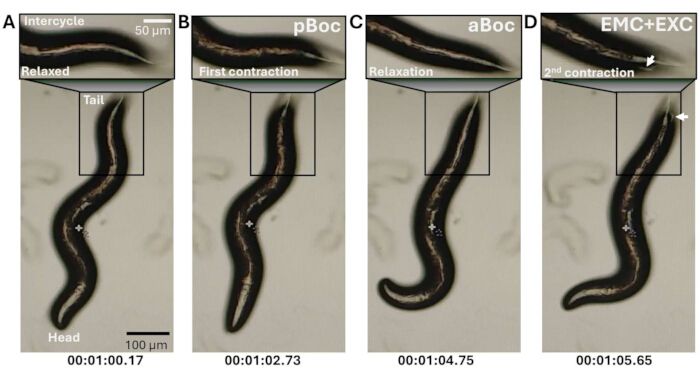
Figuur 3: C. elegans-ontlastingscyclus in beelden van RAC1/CED-10 mutante dieren. Ontlastingscyclus bij RAC1/CED-10 mutanten in beelden. Wormen zijn met het hoofd naar beneden gericht. Staartgebieden, gemarkeerd in horizontale vakken, tonen de volgorde van defecatie-motorische stappen zoals beschreven in6 en geschematiseerd in Figuur 2: (A) ontspannen voorste baan, (B) contractie van het achterste lichaam (pBoc), (C) contractie van het voorste lichaam (aBoc), en (D) enterische spiercontractie met uitdrijving (EMC+EXC). De duur van de cyclus wordt hieronder aangegeven. Pijlen markeren uitgestoten materiaal. Klik hier om een grotere versie van deze figuur te bekijken.
De twee parameters die worden gebruikt voor de analyse van darmmotiliteit zijn cycluslengte en cyclusregulariteit13. Eerst maten we 15 cycli van elke worm, weergegeven in Figuur 4.
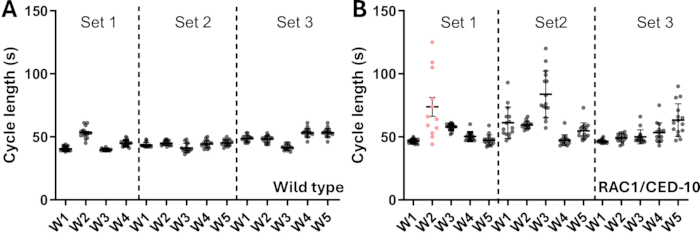
Figuur 4: Cyclusduur van wilde types (A) en RAC1/CED-10 individuen (B). Set 1, 2 en 3 geven onafhankelijke replicaties aan. Elke stip vertegenwoordigt één ontlastingscyclus, en er zijn 15 cycli per worm. Roze W2 in B werd weggegooid voor verdere analyse omdat het geen 15 cycli voltooide. W = worm. Er werd geen statistische analyse uitgevoerd in deze figuur. Klik hier om een grotere versie van deze figuur te bekijken.
Individuele wormen werden aangeduid met W (W1, W2, enz.) over de verschillende experimentele replicaten (Set = 1, 2, 3). Voor elke worm (W) werden 15 metingen genomen in 15 minuten. In de eerste reeks experimenten met wilde dieren (Figuur 4A, Set 1) werd één worm uitgesloten omdat het een jonge volwassene was in plaats van een L4. In het geval van RAC1/CED-10 werd één worm weggegooid omdat deze na verwerking van de gegevens niet 15 cycli binnen 15 minuten voltooide. Daarom raden we aan om de klokapplicatie te gebruiken om te weten hoeveel cycli er zijn voltooid, aangezien RAC1/CED-10 wormen vrij onregelmatig waren.
Op basis van deze individuele waarden werden het gemiddelde en de standaardafwijking van de cycluslengte voor wildtype-wormen en RAC1/CED-10 mutanten berekend (Tabel 1 en Figuur 5). Zoals eerder gepubliceerdin 6, vertonen RAC1/CED-10-wormen langere en minder regelmatige cycli dan wildtype-wormen. Wildtype-wormen vertonen kortere cycli (46 s ± 5 s) dan RAC1/CED-10 mutanten (55 s ± 12 s).
Tabel 1: Representatieve dataset van metingen van de uitscheidingscyclus voor individuele wormen. De tabel vat representatieve gegevens samen die van drie dieren zijn verzameld. Voor elke worm bevat de dataset de videobestandsidentificatie, lichaamsgrootte (μm), tijdstippen (in s) die overeenkomen met individuele uitscheidingsgebeurtenissen, de berekende cycluslengtes over 15 opeenvolgende cycli en de totale opnameduur. De cycluslengte werd verkregen door opeenvolgende uitscheidingstijdpunten af te trekken (bijvoorbeeld voor worm VID_154028 was de eerste cycluslengte 66 s, berekend als 71-5 s). De overige vermeldingen illustreren vergelijkbare metingen voor twee extra wormen en geven voorbeelden van typische variabiliteit binnen de dataset. Klik hier om deze tabel te downloaden.
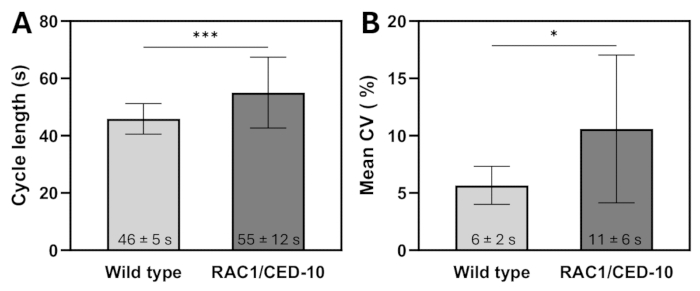
Figuur 5: Parameters van de ontlastingscyclus. (A) Lengte van de ontlastingscyclus en (B) Gemiddelde CV van wildtype- en RAC1/CED-10-wormen. De gegevens vertegenwoordigen het gemiddelde ± SD. N=3 n=5. Er werd een niet-parametrische Mann-Whitney-test toegepast op de lengte van de ontlastingscyclus. Ongepaarde t-test met Welch's correctie werd toegepast op gemiddelde CV-gegevens. p < 0,001 * p < 0,05. Zie stap 8 voor informatie over statistische analyse. Klik hier om een grotere versie van deze figuur te bekijken.
Cyclusregulariteit wordt berekend met behulp van de gemiddelde variatiecoëfficiënt (CV), die het gemiddelde is van de variatiecoëfficiënten voor elke worm in experiment18. Figuur 5B toont meer variabiliteit bij RAC1/CED-10 mutante dieren vergeleken met wildtype-dieren. De gemiddelde CV is 6% ± 2% bij wilde types, vergeleken met 11% ± 6% bij RAC1/CED-10 mutanten.
Aanvullende tabel 1: Sjabloon voor de berekening van de lengte van de ontlastingscyclus in Caenorhabditis elegans. Gebruikers moeten de naam van elk wormbestand in de eerste kolom invoeren en kunnen optioneel de lichaamslengte van de worm registreren. De tijd (in s) die overeenkomt met elk uitscheidingsmoment (Uitscheiding 1-16) wordt vervolgens achtereenvolgens ingevoerd zoals bepaald uit videoweergave. Het sjabloon berekent automatisch het interval tussen opeenvolgende uitscheidingen (Tijduitscheiding N - Tijduitscheiding N-1), wat de lengte van de ontlastingscyclus vertegenwoordigt. Zodra 16 uitscheidingsgebeurtenissen zijn ingevoerd, wordt de totale tijd die nodig is om vijftien volledige cycli te voltooien automatisch berekend en weergegeven in de Totale Tijd (mm:ss) cel. Klik hier om dit bestand te downloaden.
Discussie
C. elegans als krachtig model voor het bestuderen van prodromale PD
Hoewel de meeste modellen voor neurodegeneratieve ziekten zich richten op laatstadiapathologie19, blijft het bestuderen van het vroege begin van de ziekte technisch uitdagend. Traditionele zoogdiermodellen, zoals muizen, ratten of primaten, worden beperkt door lange levenscycli en hoge kosten. De microscopische nematode C. elegans overwint deze beperkingen met zijn levensduur van 3 weken, een voortplantingscyclus van 3 dagen en genetische tractie – waardoor het een ideaal systeem is voor efficiënte, grootschalige studies van neurodegeneratie6.
De C. elegans RAC1/CED-10 mutant biedt drie belangrijke voordelen voor het bestuderen van vroege PD-pathogenese. Ten eerste maakt de precieze temporele resolutie het mogelijk om neurodegeneratieve gebeurtenissen te volgen over goed gedefinieerde ontwikkelingsstadia6. Ten tweede biedt het model uitzonderlijke experimentele veelzijdigheid door genetische tractie, lage onderhoudsvereisten en compatibiliteitmet hoge doorvoersnelheid 6,7. Ten derde, omdat C. elegans geen endogeen α-synucleïnehomoloog heeft, ook in het RAC-1/CED-10 model, biedt het een waardevol voordeel. Onderzoekers kunnen preklinische PD-mechanismen onderzoeken zonder interferentie van α-synucleïne, wat meer gevorderde stadia6 markeert. Dit positioneert het model als een uitstekend hulpmiddel voor het bestuderen van de eerste pathogene gebeurtenissen en voor latere integratie van α-synucleine-expressie om geavanceerde pathogenese te onderzoeken. Ten slotte zorgt de evolutionaire conservatie van de homologie van CED-10 met menselijke RAC1 voor directe translationele relevantie 10,20.
Het hier beschreven C. elegans-model is goed geschikt voor farmacologische assays17,21. Omdat RAC-1/CED-10-mutanten ontwikkelingsachterstand vertonen, is blindheid niet mogelijk in de beginfase, omdat hun identiteit niet verborgen kan worden ten opzichte van het wilde type. Voor farmacologische screenings kan bias echter worden geminimaliseerd door een dubbelblind ontwerp te hanteren, waarbij de onderzoeker die de gegevens verzamelt en de persoon die deze analyseert niet op de hoogte blijven van alle experimentele variabelen.
Constipatie treft bijna alle PD-patiënten tijdens de prodromale fase, vaak voorafgaand aan motorische symptomen5. C. elegans biedt unieke voordelen bij het bestuderen van deze vroege gastro-intestinale stoornis. In tegenstelling tot zoogdiermodellen die invasieve interventies vereisen, maken de transparantie en eenvoud van de nematode niet-invasieve, realtime observatie mogelijk van zijn sterk gestereotypeerde defecatiemotorische programma – een kenmerk dat cruciaal is voor het kwantificeren van darmmotiliteitsdefecten. De korte levenscyclus en de precieze ritmische prestaties van C. elegans-ontlasting maken snelle en reproduceerbare analyse van functionele beperkingen mogelijk. Bij RAC1/CED-10-mutanten weerspiegelen afwijkingen in de timing van de ontlasting constipatie-achtige fenotypes die zijn waargenomen bij prodromale PD6. Deze bevindingen vormen een fundamenteel kader voor latere validatie bij complexe zoogdieren (bijv. muizen, primaten) en koppelen RAC1-signalering direct aan enterische disfunctie.
Naast zijn mechanistische relevantie biedt het RAC1/CED-10-model ook translationele bruikbaarheid. De ontlastingstest is eenvoudig, reproduceerbaar en schaalbaar, waardoor het geschikt is voor vroege drugsscreening. Verbindingen die de cyclustiming of regelmaat normaliseren, kunnen snel worden geprioriteerd voor test in zoogdiermodellen, wat een kosteneffectief filter biedt voor therapeutische kandidaten. Omdat gastro-intestinale disfunctie veel voorkomt bij verschillende neurodegeneratieve aandoeningen4, kan deze test ook worden toegepast buiten PD, en dient zowel als een ontdekkingsinstrument als een translationele brug naar preklinisch onderzoek.
Kritieke stappen in het protocol
We presenteren een verfijnde methodologie om darmdysmotiliteit te bestuderen bij RAC1/CED-10 mutanten, een belangrijk niet-motorisch fenotype dat relevant is voor prodromale PD. Hoewel gebaseerd op gevestigde defecatie-assays18,22, pakt dit protocol unieke uitdagingen aan die RAC1/CED-10-mutanten met zich meebrengen om robuuste en reproduceerbare resultaten te garanderen.
De belangrijkste aanpassingen voor RAC1/CED-10 mutanten zijn als volgt:
Synchronisatie-aanpassingen: RAC1/CED-10 mutanten vertonen verminderde vruchtbaarheid vergeleken met wildtype-stammen (persoonlijke observatie). Om de lagere nakomeloogopbrengst te compenseren, pas tijdens synchronisatie de volgende aanpassingen toe: Plate chunk-methode - gebruik een groter inoculum, ongeveer twee keer het volume van wildtypestammen, om rekening te houden met de verhoogde ontwikkelingsvariabiliteit. Zwangere volwassen methode - Overplaatsen van 15-20 volwassen exemplaren (in plaats van standaard 10) om een voldoende aantal embryo's te garanderen voor latere experimenten.
Bleekmiddelgevoeligheid: Embryo's van RAC1/CED-10 mutanten vertonen een verhoogde gevoeligheid voor hypochlorietbehandeling. Om schade te minimaliseren, verkort de blootstellingstijd aan bleekmiddel met 20%-30% vergeleken met wildtypeprotocollen en verifieer de integriteit van het embryo microscopisch na behandeling.
Overwegingen van ontwikkelingsvertraging: RAC1/CED-10-mutanten rijpen langzamer dan wildtype-wormen10. Om een goede synchronisatie voor opnames te bereiken, begin je met video-analyses met wildtype-wormen om een temporele referentie vast te stellen en registreer je mutanten op overeenkomende morfologische stadia (bijv. vulvalmorfologie) in plaats van op chronologische leeftijd.
Workflow-redenering: Het uitvoeren van initiële experimenten met wildtype C. elegans controleert omgevingsvariabiliteit en biedt een referentie voor normale ontlastingsritmes. Vanwege ontwikkelingsvertragingen bij RAC1/CED-10-10 mutanten moeten opnameschema's worden aangepast om prioriteit te geven aan stadium-gematchte (in plaats van strikt leeftijdsgebonden) vergelijkingen.
Stamspecifieke timingoverwegingen: Ontwikkelingsachterstanden bij mutanten vereisen flexibele experimentele planning, met nadruk op het afstemmen van ontwikkelingsstadia tussen genotypen in plaats van uitsluitend te vertrouwen op chronologische leeftijd.
Beperkingen van het nematodemodel
Hoewel C. elegans niet de anatomische complexiteit en padredundantie van zoogdiersystemen heeft – een beperking voor sommige translationele studies – is de eenvoud voordelig voor het onderzoeken van afzonderlijke biologische functies. De focus op darmmotiliteit benut deze kracht, omdat de gestroomlijnde fysiologie van de nematode een nauwkeurige analyse van specifieke functionele parameters mogelijk maakt. Hoewel complementaire zoogdierstudies noodzakelijk zijn voor therapeutische validatie, biedt C. elegans een uitzonderlijk platform voor het mechanistische onderzoek van geconserveerde biologische processen21,23.
Ons model mist ook endogene α-synucleïne, wat gunstig is voor het bestuderen van vroege, preklinische PD (de ziekte van Parkinson), een stadium waarin constipatie kan optreden als prodromaal symptoom3. De lengte van de ontlastingscyclus biedt een objectieve, hoge doorvoermaat, maar weerspiegelt slechts één aspect van gastro-intestinale disfunctie en is niet ziektespecifiek.
Hoewel deze test geen progressieve α-synucleïneaggregatie, complexe neurodegeneratie of leeftijdsgebonden systemische pathologie zoals gezien bij menselijke PD5 vastlegt, observeren we veranderde dopaminerge en GABAerge functies en verstoorde Rac1-signalering6, wat de mechanistische relevantie van dit model benadrukt. Daarom blijft het waardevol voor het dissecten van vroege PD-gerelateerde neuro-gastro-intestinale mechanismen en geconserveerde routes.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
A.M.J. erkent de Ph.D.-beurs (FPU18/05190) in het kader van de Ph.D. in Biotechnologie aan de Universitat Autònoma de Barcelona. AL en AMJ erkennen de financiering PID2021-122645OB-100 en PID2024-1576370B-100 door MCIN/AEI//10.13039/501100011033/FEDER "Una manera de hacer Europa"; het "Severo Ochoa"-programma voor Centra van Excellentie, in R&D CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446, en het Horizon Europe onderzoeks- en innovatieprogramma van de Europese Unie onder subsidieovereenkomst nr. 101057527 (NextGEM). EDC erkent steun van de APR-2024 subsidie (PMI24006), gefinancierd door de Fundació d'Estudis Superiors en Ciències de la Salut (FESS) en het Fundació Institut de Recerca i Innovació en Ciències de la Vida i la Salut de Catalunya (IRIS-CC).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 12 well Culture multiwell plates, treated, sterile | Labbox | CCPP-012-100 | |
| Agar | VWR | AAA10752-0E | Om NGM-platen te bereiden |
| Bactopeptone | VWR | 90000-264 | Om NGM-platen te bereiden |
| Bleach | Elke huishouden | Voor het bleekproces | |
| CaCl2 | Labkem | CACH-02P-1K0 | Om NGM-platen te bereiden |
| Centrifuge Sorvall ST8 | Sorvall | 15194923 | |
| Cholesterol | Sigma-Aldrich | C8667-25G | Om NGM-platen te bereiden |
| Clock | Windows | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| Ethanol | Panreac | 131086.1214 | Om NGM-platen te bereiden |
| Incubator 20 °C | Ecogen | CIR180 | |
| KH2PO4 | Sigma-Aldrich | P0662 | Om M9-buffer te bereiden |
| KPO4 | Sigma-Aldrich | P5655 + P3786 | KH2PO4 + K2HPO4; Om NGM-platen te bereiden |
| MgSO4 | Sigma-Aldrich | M7506 | Om NGM-platen te bereiden; Om M9-buffer te bereiden |
| Microscope | Olympus | Olympus BX51 | |
| Na2HPO4 | Sigma-Aldrich | S9763 | Om M9-buffer te bereiden |
| Na2HPO4 | Sigma Aldrich | 7558-79-4 | Om M9-buffer te bereiden |
| NaCl | Sigma-Aldrich | S5886 | Om NGM-platen te bereiden; Om M9-buffer te bereiden; LB |
| NaOH | Sigma-Aldrich | 567530 | Voor het bleekproces; LB |
| Snipping Tool in Windows | Windows | v 11.2504.42.0 | |
| Tryptone | CONDA | 1612 | LB |
| Yeast extract | CONDA | 1702 | LB |
Referenties
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
Herprints en machtigingen
