Dit artikel presenteert een protocol voor het cultiveren van mottenolfactorische receptorneuronen, waardoor langdurige overleving en differentiatie mogelijk zijn. Deze benadering biedt een alternatief voor zeer uitdagende in situ opnames door enzymatische en mechanische dissociatie te gebruiken met een hangkolomkweektechniek, waardoor functionele studies zoals patch-clamp opnames mogelijk worden.
Methodenartikel
Primaire culturen van mottenolfactorische receptorneuronen
In dit artikel
Samenvatting
Samenvatting
Insecten zijn sterk afhankelijk van hun reuk voor veel gedragingen die verband houden met paren, eten en sociale interacties. Ze hebben zeer gevoelige reukreceptorneuronen (ORN's) ontwikkeld. Hoewel in situ extracellulaire opnames vaak worden gebruikt om het responsprofiel, coderingseigenschappen en de fysiologie van deze cellen te analyseren, vereist een gedetailleerde analyse van hun signaaltransductiepaden patch-clamp opnames. Om het gebruik van deze elektrofysiologische techniek te vergemakkelijken en een goede controle van de samenstelling van intra- en extracellulaire ORN-oplossingen te bevorderen, beschrijft dit artikel een protocol voor het kweken van insecten-ORN's. Omdat insecten-ORN's nauw omhuld zijn door accessoirecellen, waardoor elke acute dissociatie van volwassen ORN's en directe toegang tot hun membranen wordt voorkomen, beschrijft dit protocol de dissectie van antennecellen uit motpoppen, vóór de differentiatie van ORN's. Ontwikkelende antennes worden enzymatisch en mechanisch gedissocieerd en vervolgens ondersteboven gekweekt met de 'hanging column technique' in een geconditioneerd medium dat de differentiatie en overleving van ORNs gedurende enkele weken ondersteunt. ORN's die met deze methode worden gekweekt, zijn geschikt voor functionele assays zoals patch-clamp opnames.
Inleiding
Insecten zijn sterk afhankelijk van reuk om hun omgeving te navigeren, voedselbronnen te vinden, partners te identificeren en roofdieren te vermijden 1,2. Hun reuksysteem is opmerkelijk efficiënt en fijn afgestemd, waardoor het mogelijk is een breed scala aan vluchtige chemische signalen met hoge gevoeligheid en specificiteit3 te detecteren. Geurstoffen worden voornamelijk gedetecteerd door reukreceptorneuronen (ORN's), die zich bevinden in sensilla op de antennes, de belangrijkste reukorganen, evenals op de maxillaire palpen, die dienen als secundaire olfactorische structuren bij Diptera zoals muggen en Drosophila4.
Om de moleculaire mechanismen achter olfactorische signaaltransductie te onderzoeken, is directe elektrofysiologische toegang tot individuele ORN's essentieel. Patch-clamp opname, een gouden standaardtechniek in de neurofysiologie, maakt gedetailleerde functionele karakterisering van de ionenkanalen, receptoren en signaalroutes mogelijk. In situ patch-clamp opnames van insecten-ORN's zijn mogelijk, maar technisch uitdagend vanwege de kleine grootte, dichte verpakking binnen accessoirecellen en cuticulaire inkapseling van deze neuronen. Deze moeilijkheden zijn overwonnen door geëxtrudeerde buitendendrieten van de reuzensaturnide mot Antheraea polyphemus5 te patchen of ORN's van semi-intacte of antenne-slice preparaat in Drosophila 6,7 te patchen. Hoewel in situ-opnames het opnemen van normaal gedifferentieerde neuronen mogelijk maken, brengen deze benaderingen aanzienlijke technische moeilijkheden met zich mee, wat de noodzaak onderstreept van alternatieve benaderingen die meer toegankelijke experimentele omstandigheden bieden.
Dit artikel beschrijft een robuust protocol voor het cultiveren van ORN's uit motantennes. Het protocol lijkt toepasbaar te zijn op een breed scala aan Lepidoptera, hoewel het nog niet op andere insectengroepen is getest. De methode maakt het mogelijk om ORNs in vitro te onderhouden en te laten groeien, waardoor directe toegang tot deze cellen wordt geboden voor patch-clamp studies 8,9,10, evenals farmacologische en beeldvormende studies. Dit kweeksysteem biedt een waardevol platform voor de functionele analyse van olfactorische transductiepaden en de betrokken moleculaire componenten, waarbij veel beperkingen van in situ-opnames worden omzeild.
Protocol
Ethische goedkeurings- en nalevingsverklaringen zijn niet vereist voor studies met insecten. Primaire culturen van insecten-ORNs werden beschreven op de tabaksbuidelmot Manduca sexta (Lepidoptera, Sphingidae)11, de honingbij Apis mellifera12 en de koolmotte Mamestra brassicae (Lepidoptera, Noctuidae)13. De beschreven protocollen vertonen enkele overeenkomsten (dissectie van het popstadium) en verschillen (kweekmedium, groeioppervlak). Het hier beschreven protocol is met succes zonder aanpassing gebruikt om ORNs van verschillende mottensoorten, M. brassicae, Spodoptera littoralis, Bombyx mori en Agrotis ipsilon, te kweken. Alle stappen die onder de laminaire stromingskap worden uitgevoerd (secties 2 tot 8 moeten aseptisch worden uitgevoerd).
1. Insecten
- Achterlatingslarven van S. littoralis (Lepidoptera: Noctuidae) op een kunstmatig dieet en houden ze op 22-24 °C, 60-70% relatieve luchtvochtigheid, en onder een licht-donker cyclus van 16:8 uur zoals eerder beschreven14.
- Scheid mannetjes en vrouwtjes in het popstadium. Na het uitkomen houd je volwassen mannetjes apart van de vrouwtjes in plastic dozen en geef je ze gratis toegang tot een oplossing van 20% sucrose.
- Verzamel dagelijks nieuwe poppen en houd ze op 22 °C. Onder deze omstandigheden duurt de pop 14-16 dagen. Voer experimenten uit met mannetjes of vrouwen.
2. Bereiding van het medium voor de geconditioneerde Genadecultuur
OPMERKING: Het Grace's-medium dat wordt gebruikt om ORNs te kweken, is geconditioneerd op een Manduca sexta-cellijn (MRRL-CH115; deze cellijn is op aanvraag beschikbaar). Subcultuur MRRL-CH1 cellen elke 3 weken (ongeveer 80% confluentie) bij 20 °C onder normale lucht. Laat de cellen niet meer dan 90% confluentie overschrijden, omdat dit leidt tot loslating van cellen en verhoogde celsterfte. Voer bij elke passage de volgende stappen uit.
- Maak voorzichtig hechtende cellen los van het onderoppervlak van een kolf met een pipet van 10 mL.
- Verspreid 1,5 ml celsuspensie in 4 kolfs en voeg 6,2 mL Grace's medium toe, aangevuld met 10% foetaal bovin serum (FBS) in elke kolf.
- Twee dagen na celpassaging, als er geen besmetting is in de laatst voorbereide flessen, verzamel dan het kweekmedium van de resterende 3 flessen van de vorige passage. Filter (0,2 μm) en bewaar het geconditioneerde Grace-medium bij 5 °C. Gebruik dit tot 6 maanden.
3. Bereiding van papain
OPMERKING: Papain moet worden opgeslagen in geconcentreerde aliquots (100 mL bij 10 mg/mL) en bij -80 °C om het verlies van enzymatische activiteit in de loop van de tijd te minimaliseren. Daarom moeten aliquots van papain-oplosmiddelen afzonderlijk worden voorbereid. Ethyleendiamintetraazijnzuur (EDTA) en L-cysteïne worden toegevoegd aan actieve papain16. Wanneer gemengd met papain, is hun uiteindelijke concentratie 0,5 mM EDTA, 1 mM Cystein en 1 mg/mL papain (~10 U/mL).
- Papain aliquots: Verdun papain (25 mg) in 2,5 mL steriele Hanks Balanced Salt Solution (HBSS) met 20% glycerol. Houd het in 100 μL aliquots bij -80 °C.
- Papain oplosmiddel aliquots: Pipette 27 mL mannitol en stel de osmotische druk aan op 380 mOsmol/L met mannitol. Voeg 5,6 mg EDTA en 5,3 mg L-Cystein toe. Stel de pH aan op 6,7. Steriliseer met 0,2 μm laag-bindende filters. Houd het in 900 μL aliquoten bij -20 °C.
4. Voorbereiding van cultuurmedia
OPMERKING: Alle media zijn steriel. Sterilisaties worden uitgevoerd met 0,2 μm steriele filters.
- 3+2 medium:
- Voeg 3 delen van Leibovitz' medium (16,4 mL), 2 delen van Grace's medium (11 mL) en 2% penicilline-streptomycine (0,6 mL) toe aan een 30 mL buis. Stel de osmotische druk aan op 370 mOsmol/L (ongeveer 150 mg mannitol) en de pH op 6,7 (NaOH 1 M).
- Uit de resulterende 28 mL 3+2 medium, filter en breng 5 mL over naar een 7 mL buis. Voeg een paar kristallen fenylthiourea (ongeveer 1-2 mg) toe aan de resterende 23 mL van het 3+2 medium en steriliseer vervolgens 1,5 mL en breng 1,5 mL over in een 7 mL buis (buis #1) en in 6 petrischalen die later werden gebruikt om poppen te dissectieren, en die hieronder 'dissectieschalen' worden genoemd.
OPMERKING: Phenylthiourea remt de oxidaseactiviteit 17,18,19, wat zou leiden tot zwart worden van antenneweefsels.
- Geconditioneerd 3+2 medium:
- Voeg 67 mg mannitol toe aan een 30 mL buis en 9 ml Leibovitz's medium en filter (0,2 μm). Voeg dan 2 delen van het geconditioneerde Grace-medium toe.
- Pas de hoeveelheid mannitol aan volgens de osmotische druk van het medium van Leibovitz en Grace, zodat de osmotische druk van het geconditioneerde 3+2 medium 370 ± 15 mOsmol/L is (buis #2).
- HBSS medium: Voeg 12 ml HBSS en 0,25 ml penicilline-streptomycine toe. Stel de osmotische druk aan op 370 mOsmol/L (ongeveer 216 mg mannitol), pH op 6,7 (HCl 1 M), en steriliseer (buis #3).
- HBSS-EGTA medium: Voeg 2 mg ethyleenglycol-bis (β-aminoethylether)-N,N,N′,N′-tetraazijnzuur (EGTA) en 2 ml van de eerder bereide HBSS-oplossing toe aan een buisje van 7 mL. Stel de pH in naar 6,7 (NaOH 1 M) en steriliseer (tube #4).
5. Dissectie van poppen (Figuur 1)
OPMERKING: Maak de pincetten periodiek schoon met 70% ethanol en absorberend papier en vlam ze daarna snel aan. Dissectie op een zwarte achtergrond vergemakkelijkt de visualisatie van de antenne.
- Spoel de poppen van 2,5 tot 3 dagen oud af onder kraanwater en daarna onder gedestilleerd water.
- Introduceer 20-25 poppen in een petrischaaltje onder de laminaire stroomkap.
- Onder de motorkap, vlam 2 bekers aan. Vul de ene met 70% ethanol en de andere met steriel (geautoclaved) gedestilleerd water.
- Neem 4 poppen met pincet en doop ze ongeveer 10 seconden in 70% ethanol en doop ze vervolgens in steriel gedestilleerd water en doe ze over op het deksel van een dissectie-petrischaal.
- Snijd de nagelriem rond elke antenne door met een vlammende pincet en breng het paar antennes over in een dissectieschotel gevuld met 3+2 medium (Figuur 1A,B).
- In het 3+2 medium verwijder je alle weefsels die de buizen bedekken waar de antenne zich ontwikkelt, zodat alleen de antenne en de popnagelhuid overblijven (Figuur 1C), en breng je vervolgens de antennes (Figuur 1D) over naar een nieuwe schotel gevuld met 3+2 medium.
OPMERKING: Figuur 1E-J toont de beelden van het dissectieproces. - Open de buis waar de antenne zich ontwikkelt met fijne pincetten en verwijder de antenne voorzichtig. Het verwijderen van elke antenne in één stuk maakt de volgende spoelingen (stappen 7.1-7.9) makkelijker, omdat ze gevoeliger zijn om naar de bodem van de buis te zakken.
- Met een steriele Pasteur-pipet, aspireer je wat medium uit de schaal en blaas het terug in de schaal om het binnenoppervlak van de pipet nat te maken. Dit helpt de neiging van de antennes om aan het glas in de pipet te plakken te verminderen. Vervolgens wordt de gedissectiede antennes met de pipet overgebracht naar de 7 mL buis gevuld met 1,5 mL 3+2 (buis #1).
- Herhaal stappen 5.4 -5.8 voor 20 poppen en verzamel 20 paar antennes in buis #1.
6. Bereiding van petrischalen
OPMERKING: Antennecellen worden gekweekt met behulp van de hangkolomtechniek20. Dit vereist het voorbereiden van petrischalen. Het kan van tevoren worden gedaan.
- Snijd stukjes glas (6-7 mm × 6-7 mm) van een glaasje. Bewaar ze in ethanol.
- Onder de motorkap vlam je de glazen stukken, doop je ze onmiddellijk in steriele (autoclavede) vaseline (bijv. vaseline) en plaats je ze in de petrischalen zoals te zien in Figuur 2A.
7. Dissociatie en platering van cellen
OPMERKING: Voor de hieronder beschreven mediavervangers is het belangrijk om zoveel mogelijk medium te verwijderen met een steriele Pasteur-pipet, zonder antenneweefsel weg te gooien. De arm van een koude-lichtbron helpt om de antennes die in het medium zweven duidelijker te visualiseren. Enzymatische dissociatie en mechanische trituratie worden sequentieel en niet gelijktijdig uitgevoerd om te voorkomen dat de antennecellen worden gecentrifugeerd om papain te verwijderen.
- Zet een papain aliquot en een papain oplosmiddel aliquot op kamertemperatuur.
- Vervang het 3+2 medium in buis #1 door de gedissecte antenne met 1 mL HBSS (uit buis #3) en wacht 10 minuten.
- Vervang het HBSS-medium door 1 ml HBSS-EGTA (uit buis #4) en wacht 5 minuten.
- Vervang het HBSS-EGTA medium door 1 ml HBSS en wacht 5 minuten.
- Vervang het HBSS-medium door 1 ml HBSS en wacht 5 minuten.
- Overbreng het papainoplosmiddel (900 μL) naar de papain aliquot (100 μL). Pas de pH van de resulterende papainverdunning aan (0,2-0,5 μL HCl 1M) als de kleur niet hetzelfde is als het geel van de 3+2-oplossing. Meet de pH niet, want dit zou de oplossing besmetten.
- Vervang het HBSS-medium door 1 ml van de vers verdunde papainoplossing en laat het 10-15 minuten incuberen. Voer enzymatische vertering uit bij kamertemperatuur.
- Vervang de papainoplossing door 1 mL HBSS + 50 μL FBS en wacht 5 minuten om de papainactiviteit te activeren.
- Spoel twee keer met 1 ml HBSS gedurende 5 minuten.
- Vervang HBSS medium door 1 mL 3+2 medium.
- Vuurpolijst de punt van een Pasteur-pipet met een bunsenbrander om de openingsdiameter te verkleinen tot 50-100 μm (kan met voldoende oefening met het oog worden beoordeeld).
- Dissocieer mechanisch de antennecellen door zachtjes het medium heen en weer te pipetteren met de vuurgepolijste Pasteur-pipet totdat er geen celcluster meer zichtbaar is. Het medium moet wazig lijken.
- Voeg 2 mL 3+2 medium toe en suspendeer de cellen in het medium opnieuw met een Pasteur-pipet om een homogene celdichtheid te garanderen.
- Splits de celsuspensie in 20 petrischalen (ongeveer 150 μL per schaal) (Figuur 2B).
- Laat de cellen 45 minuten tot rust komen.
- Vervang het 3+2 medium in elke schaal door 150 μL geconditioneerd 3+2 medium aangevuld met 5% FBS.
- Voeg een deklaag toe (Figuur 2C) en sluit schalen af met Parafilm.
- Keer schalen om (Figuur 2D) en bewaar ze tussen twee bevochtigde lagen absorberend weefsel bij 20 °C in een broedmachine.
8. Verandering van het cultuurmedium
OPMERKING: Vervang de helft van het kweekmedium elke 4-7 dagen.
- Controleer de borden om te kijken naar mogelijke besmetting. Dit resulteert meestal in een kleurverandering (van geel naar roodachtig).
- Open de borden en verwijder de dekfolies voorzichtig. Met een P100 micropipet verwijder je 75 μL medium en vervang je dit door 85 μL vers geconditioneerd 3+2 medium, aangevuld met 5% FBS.
- Leg dekfolies terug, sluit de schalen af met Parafilm en bewaar ze zoals voorheen tussen bevochtigde lagen absorberend weefsel bij 20 °C in een broedmachine.
Resultaten
Dit protocol maakt het mogelijk om insecten-ORNs 3-5 weken in cultuur in leven te houden. ORN's zijn gemakkelijk te herkennen aan hun morfologie, gekenmerkt door een klein rond of amandelvormig cellichaam en dunne uitsteeksels (neurieten), die na slechts één dag in cultuur duidelijk zichtbaar zijn (Figuur 3A) en zich over meerdere dagen blijven uitstrekken (Figuur 3B-D). Twee populaties neuronen kunnen worden onderscheiden op basis van de grootte van hun soma: 5-7 μm voor de meerderheid van de neuronen, en 10-12 μm voor de minderheid (Figuur 3D). Waarschijnlijk zijn kleine neuronen ORN's, terwijl grote neuronen mechanosensorische neuronen zijn. Neuronen zijn ofwel monopolair of bipolair en komen afzonderlijk voor, in kleine clusters, of binnen niet-gedissocieerde antenne-explants. De neuronale identiteit van deze cellen werd bevestigd door immunocytochemie met anti-HRP-antilichamen13 (Figuur 4), een goudstandaard hulpmiddel voor het labelen van neuronen in de insectenneurobiologie21. Na 2 weken vormen niet-neuronale cellen, hoogstwaarschijnlijk gliacellen, een continue laag op het oppervlak van de schaal waarop ORNs groeien en hun neurieten uitbreiden (Figuur 5A,B).
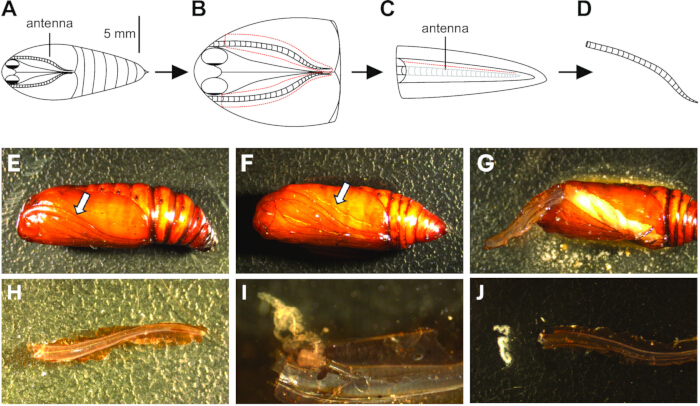
Figuur 1: Dissectie van poppen. (A) Buikzijde van een pop. (B) De cutica wordt rond beide antennes gesneden (rode gestreepte lijn), waarbij wordt gelet dat het niet te diep in de pop doordringt en het zich ontwikkelende volwassen weefsel doorboort. Elke antenne wordt voorzichtig verwijderd en overgebracht naar een schotel gevuld met 3+2 medium. (C) Alle niet-antenneweefsels die aan de pupalnagelhuid zijn blijven zitten, worden verwijderd en de antenne wordt overgebracht naar een nieuwe schotel met een schoon 3+2 medium. Het transparante membraan dat de zich ontwikkelende antenne bedekt, is zorgvuldig doorgesneden (rode stippellijn). (D) De antenne wordt voorzichtig verwijderd. (E) Afbeelding die het equivalent van A toont. De witte pijl wijst naar de antenne. (F) Afbeelding die het equivalent van B toont. De witte pijl wijst naar de incisie in de nagelriem. (G) De antenne wordt voorzichtig opgetild (H) en vervolgens verwijderd. (I) Na het splitsen van het membraan waarin het zich ontwikkelt, wordt de antenne van zijn distale uiteinde naar de basis (J) geduwd en vervolgens verwijderd. Klik hier om een grotere versie van deze figuur te bekijken.
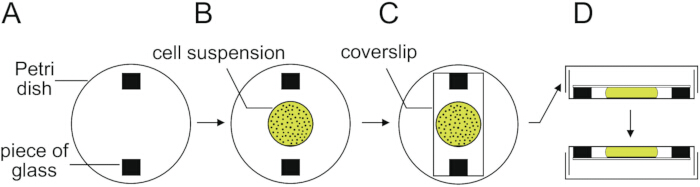
Figuur 2: De hangkolomtechniek die wordt gebruikt om antennecellen te kweken. (A) Twee stukken glas worden met steriele vaseline op de bodem van 35 mm schalen gelijmd. (B) De celsuspensie wordt voorzichtig in het midden van de schotel geplateerd en 45 minuten aan de schotel bevestigd. (C) Na het verwisselen van het kweekmedium wordt er voorzichtig een steriele deklaag op de stukken glas aangebracht, waardoor de celsuspensie op zijn plaats blijft. (D) De petrischaal wordt uiteindelijk gesloten met het deksel en verzegeld met een strook Parafilm. Klik hier om een grotere versie van deze figuur te bekijken.
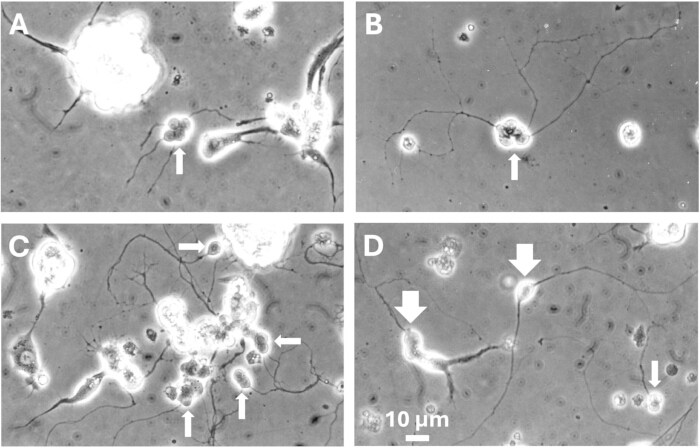
Figuur 3: Beelden van jonge culturen vanaf antennes van M. brassicae. (A) Na 1 dag beginnen neurieten te verlengen. (B) Na 2 dagen verschijnen neurieten meer uitgerekt. (C,D) Na 5 dagen wordt het neurietnetwerk dichter. ORN's (witte pijlen) zijn gemakkelijk te onderscheiden aan hun morfologie. Ze worden zowel alleen als in kleine groepjes gevonden. Grote celclusters, zoals die zichtbaar zijn in (C), zijn hoogstwaarschijnlijk niet-gedissocieerde antenne-explanten. Ze kunnen neuronen bevatten, zoals blijkt uit de neurieten die eruit voortkomen. Kleine neuronen worden aangeduid met kleine pijlen (A-D) en 2 grote neuronen met grote pijlen (D). De schaal (10 μm) is hetzelfde van A tot en met D. Klik hier om een grotere versie van deze figuur te bekijken.
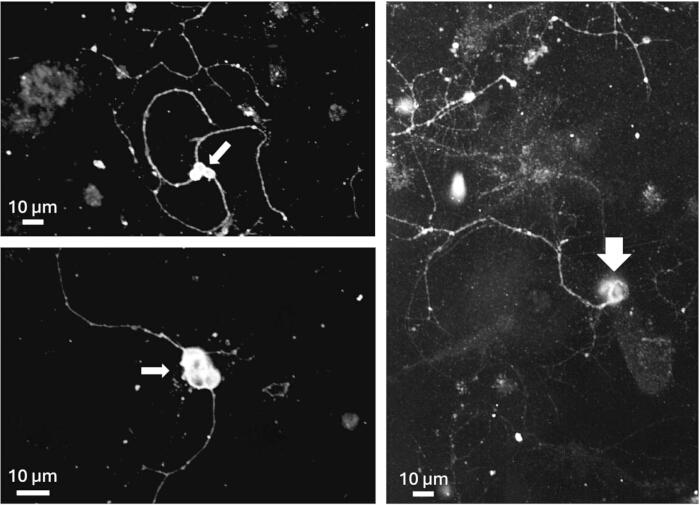
Figuur 4: Anti-HRP-kleuring op kleine (kleine pijl) en grote neuronen (grote pijl). Het experiment werd uitgevoerd op vijf dagen oude culturen. Schaalbalk: 10 μm. Voor het gedetailleerde protocol, zie13. Klik hier om een grotere versie van deze figuur te bekijken.
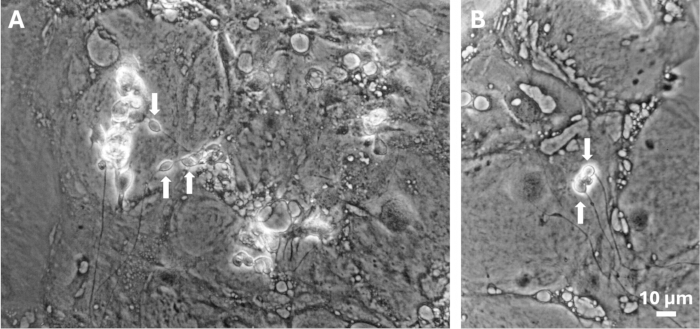
Figuur 5: Beelden van oude culturen van M. brassicae-antennes. (A,B) Na 2 weken kweek is het oppervlak van de schaal bedekt met een dichte laag niet-neuronale cellen. Witte pijlen geven ORNs aan. De schaal (10 μm) is hetzelfde in A en B. Klik hier om een grotere versie van deze figuur te bekijken.
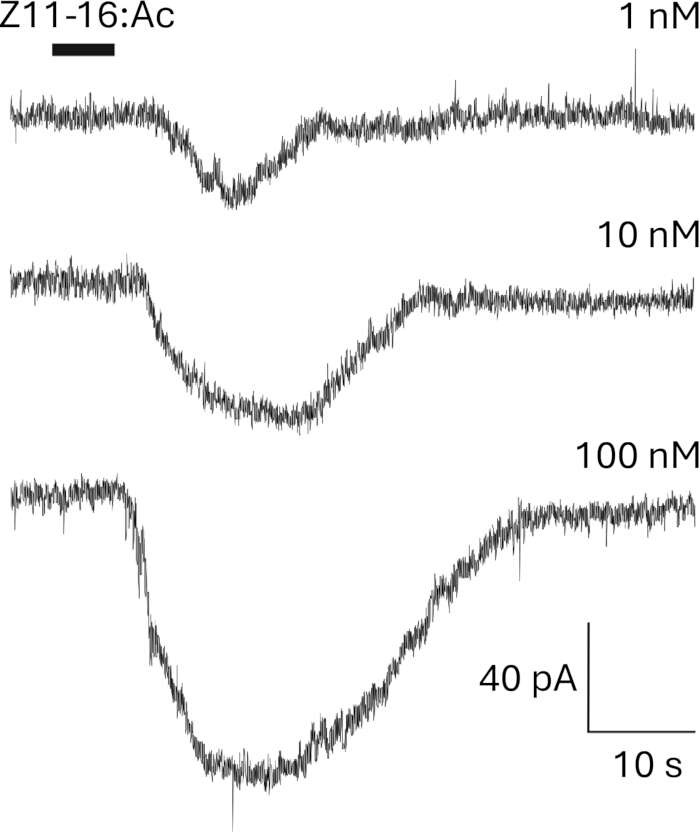
Figuur 6: Neuronen in cultuur gedurende minstens 2 weken reageren op geurprikkels. Reacties op Z11-16:Ac, de belangrijkste feromoonverbinding van M. brassicae, kunnen worden geregistreerd in de whole-cell configuratie van de patch-clamp techniek. Z11-16:Ac werd opgelost in dimethylsulfoxide (DMSO) met een uiteindelijke concentratie die niet hoger was dan 0,1%. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De belangrijkste stappen van het protocol zijn als volgt: (i) Het dissectieren van poppen in de juiste ontwikkelingsfase. Wanneer poppen te jong zijn, is er zeer weinig antenneweefsel en is het erg moeilijk om het te verzamelen omdat het los is en zich snel verspreidt. Wanneer poppen te oud zijn, zijn antennedissecties veel makkelijker, maar ORN's overleven niet in vitro. Bij de drie verschillende soorten waaruit we primaire kweken van ORNs hebben gemaakt, hebben we experimenteel vastgesteld dat het optimale stadium voor de dissectie van poppen slechts een halve dag duurt, tussen 2,5 en 3 dagen wanneer de poppen op 20 °C worden gehouden. (ii) Het mengen van de Grace's en Leibovitz' L-15 media. Het medium van Grace wordt vaak gebruikt ter ondersteuning van de groei van insectencellen, en het medium van Leibovitz ondersteunt de groei van neuronen. (iii) FBS verwijderen bij het plateren van cellen. Als aanvulling van het medium met FBS nodig is, moet het medium dat wordt gebruikt om petrischalen met de celsuspensie te zaaien vrij zijn van FBS, omdat de aanwezigheid ervan de celhechting en daarmee het celoverleven remt. (iv) Antennecellen met hoge dichtheid kweken. Dit is cruciaal voor het voortbestaan van ORN's. (v) Gebruik van de hangkolomtechniek. Het bevordert een betere celgroei en verlengt de levensduur van culturen aanzienlijk.
Een mogelijk probleemoplossing in het protocol is dat de incubatietijd met papain (10-15 min) moet worden aangepast volgens de papainbatch en de tijd die is verstreken sinds de 100 μL papain aliquots zijn voorbereid, omdat papain geleidelijk aan activiteit verliest, zelfs bij bewaarding bij -80 °C. Omdat het uiterlijk van de antennes tijdens de papain-incubatie niet merkbaar verandert, kan de incubatietijd niet worden beoordeeld door visuele inspectie.
De fundamentele vraag betreft de differentiatie van ORN's in vitro. Met het beschreven protocol kunnen ORN's 3-5 weken overleven. Aangezien antennes ongeveer 10 dagen voor het volwassen uitkomen worden verzameld, en dat ORN's volledig functioneel worden 1-2 dagen voor het verschijnen — gemeten aan de hand van EAG en individuele sensillum-opnames (persoonlijke observatie) — biedt deze overlevingsperiode theoretisch voldoende tijd voor hun in vitro differentiatie. ORN's bleken een grote diversiteit aan ionenkanalen uit te drukken: 8,9,10,14,22,23,24,25,26. Ze reageren op olfactorische prikkels op een dosisafhankelijke manier (Figuur 6), wat aangeeft dat ze ten minste gedeeltelijk hun normale differentiëringsproces in vitro volgen.
Insecten-ORN's worden omhuld door drie accessoirecellen27 die het sensillaire compartiment afbakenen en de ionische en eiwitsamenstelling van de sensillaire lymfe waarin de ORN-dendrieten zijn gebaad, reguleren. Deze accessoirecellen synthetiseren in het bijzonder olfactorische bindingseiwitten (OBP's). In een eerdere studie observeerden we een hoge expressie van OBP in culturen van 3-4 weken oud, wat suggereert dat accessoirecellen ook in vitro13 differentiëren. Een beperking van de kweek is dat de dendriet van gekweekte ORN's zich niet in de sensillaire lymfe bevindt, een medium met een hogere K+-concentratie en een lagere Na+-concentratie dan de hemolymfe28,29, wat een transepitheliaal potentiaal potentieel creëert tussen deze twee compartimenten30. Cellulaire kweek daarentegen biedt toegang tot accessoirecellen voor elektrofysiologische karakterisering, een benadering die, voor zover wij weten, nog niet eerder is toegepast.
Interessant genoeg suggereren voorlopige tests op S. littoralis dat het protocol ook geschikt is voor het kweken van mottenprobosciscellen. Vergelijkbare neuronen, die hoogstwaarschijnlijk gustatorische receptorneuronen zijn, werden waargenomen, zij het in kleine aantallen.
Primaire culturen bieden gemakkelijke toegang tot insecten-ORN's voor patch-clamp opname. Het grootste nadeel is dubbel: cellen moeten met een hoge dichtheid worden gekweekt, wat betekent dat veel antennes moeten worden ontleed; Dit zijn primaire culturen, wat betekent dat nieuwe culturen regelmatig moeten worden voorbereid. Het is echter de moeite waard, want ondanks hun kleine omvang is het opplakken van zulke neuronen relatief eenvoudig, mits de kweek van goede kwaliteit is.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De auteurs willen Monika Stengl bedanken voor het geschenk van de MRRL-CH1 cellijn.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10 mL spuiten | Avantor | N/A | |
| 2.5 mL spuiten | Avantor | N/A | |
| 21 mm x 26 mm dekglasjes | Avantor | WVR - 631-1335 | |
| 76 mm x 26 mm glazen plaatjes | Avantor | WVR - 631-9460 | Dikte: 1 mm ± 0.05 mm |
| Acrodisc Supor PF, 0.8/0.2 μm, 25 mm | Avantor | WVR - 514-4102 | Low binding spuitfilters |
| Autoclaaf | Geen specifiek merk | N/A | |
| Bunsenbrander | Geen specifiek merk | N/A | De brander moet via een pedaal te bedienen zijn |
| Corning Falcon Easy-Grip weefselkweekschalen 35 mm x 10 mm. Corning 353001 | Avantor | WVR - 734-0005 | Steriele petrischalen voor het kweken van cellen |
| D-Mannitol | Sigma-Aldrich | M9546 | Bewaar op kamertemperatuur |
| Dumont #5 Pincet | N/A | ||
| EGTA | Sigma-Aldrich | E4378 | Bewaar op kamertemperatuur |
| Falcon: 50 mL, 25 cm², plugafsluiting, weefsel cultuurbehandeld | Avantor | WVR - 734-0009 | Celkweekflacons |
| Fetal Bovine Serum | ThermoFisher Scientific | A3160801 | Bewaar bij -20 °C |
| Grace's Insect medium aangevuld met lactalbumine hydrolysaat en yeastolate (1x)-Gibco | ThermoFisher Scientific | 11605045 | Grace's Insect medium aangevuld. Bewaar bij 5 °C |
| HBSS zonder calcium en magnesium-Gibco | ThermoFisher Scientific | 14170138 | Hanks' Balanced Salt Solution (HBSS). Bewaar bij 5 °C |
| Individueel verpakte serologische pipetten, Falcon | Avantor | WVR - 734-0352 | Steriele wegwerp 10 mL pipetten |
| Individueel verpakte serologische pipetten, Falcon | Avantor | WVR - 734-0343 | Steriele wegwerp 25 mL pipetten |
| L15 medium- Gibco | ThermoFisher Scientific | 11415056 | Leibovitz's L-15 medium. Bewaar bij 5 °C |
| Laminaire weefselkweekkap | Geen specifiek merk | N/A | |
| N-Phenylthiourea | Sigma-Aldrich | P7629 | Bewaar op kamertemperatuur |
| Papaïne | Sigma-Aldrich | P5306 | Gelyofiliseerd poeder, aspergisch gevuld. Bewaar aliquoten bij -80 °C |
| Parafilm | Sigma-Aldrich | P7793 | |
| Pasteur pipetten met stop met watten - 150 mm | Geen specifiek merk | Autoklaveer zoals het is (met wattenstop) en bewaar in een sterilisatiedoos onder de kap | |
| Penicilline-streptomycine | Sigma-Aldrich | P4333 | Penicilline-streptomycine: 5000 UI/ml + 5000 μg/ml. Bewaar bij -20°C in 1 mL steriele aliquoten |
| pH-meter | Geen specifiek merk | ||
| Pipetbesturing | Avantor | WVR - 612-7179 | Een goedkope alternatief is het gebruik van handmatige pipette besturingen (bijv. Pipette Pump of Bel-Art Pipette Pumps) |
| Gekoelde incubator | PHC Europe | Model MIR-154-PE | Een CO2 concentratie aanpassingssysteem is niet nodig voor het reguleren van de pH van insect kweekmedia |
| Stereomicroscoop | Geen specifiek merk | 10x tot 64x vergroting voorzien van een koude lichtbron en flexibele lichtgeleiders | |
| Steriele petrischalen voor het dissekeren van poppen | Avantor | WVR - 391-0868 | Elke steriele schaal kan worden gebruikt |
| Steriline containers met schroefdop, 30 mL | Avantor | WVR - 215-0321 | 30 mL steriele buisjes |
| Steriline containers met schroefdop, 7 mL | Avantor | WVR - 215-0328 | 7 mL steriele buisjes |
| Vaseline | Sigma-Aldrich | Bewaar aspergisch op kamertemperatuur; Vaseline |
Referenties
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).