Dit protocol beschrijft het gebruik van een geminiaturiseerd Montal–Mueller planair lipide dubbellaagsysteem met geïntegreerde amplificatie voor het uitvoeren van stabiele single-channel opnames. De methode wordt gedemonstreerd door het reconstitueren van een gezuiverd synthetisch K2P-kanaal om de prestaties van het systeem te valideren.
Methodenartikel
Single-kanaal elektrofysiologie met behulp van een geminiaturiseerd Montal-Mueller planair lipide bilaagsysteem voor het registreren van een synthetisch K2P-kanaal
In dit artikel
Samenvatting
Samenvatting
De functionele reconstitutie van ionkanalen in planaire lipide dubbellagen biedt een strategie om kanaalactiviteit op single-molecule niveau te onderzoeken. Conventionele Montal–Mueller dubbellaagsystemen vereisen echter doorgaans omvangrijke experimentele opstellingen, handmatige assemblage van de kamer en relatief grote opnamevolumes, wat het verbruik van reagentia verhoogt en extra bronnen van elektrische ruis kan introduceren als gevolg van uitgebreide bedrading en externe headstages. Hier presenteren wij een geminiaturiseerd, gebruiksklaar dubbellaagplatform (BLMchipMM) geïntegreerd met een compacte versterker, waarmee stabiele single-channel opnames mogelijk zijn met een verminderd verbruik van reagentia en een vereenvoudigde bediening. Dit protocol beschrijft het gebruik van dit systeem voor het uitvoeren van single-channel elektrofysiologische metingen. Met behulp van dit systeem hebben wij een synthetisch K2P-kanaal (ancTREK1) gereconstitueerd en dit gebruikt als proof-of-principle testeiwit om de reconstitutie en single-channel opname te valideren. Single-channel opnames tonen een stroom-spanningsrelatie in Mg2+-vrije symmetrische K+-oplossingen, met conductantie-waarden die consistent zijn met die gerapporteerd voor TREK1-kanalen. De succesvolle reconstitutie van dit K2P-achtig kanaal demonstreert het nut van dit systeem voor single-channel analyse in kunstmatige membranen.
Inleiding
De reconstitutie van ionkanalen in kunstmatige lipide dubbellaagmembranen, ook wel bekend als black lipid membranes (BLM's), is een van de gevestigde technieken om elektrofysiologische karakterisering van ionkanalen op single-molecule niveau uit te voeren1. De voordelen van BLM's vloeien voort uit hun structuur. Indeed, een planaire lipide dubbellaag (PLB) wordt gecreëerd in een porie in een apolaire oppervlakte, waardoor twee vloeistofoplossingen van elkaar gescheiden worden. Door een biologisch membraan na te bootsen, maakt dit de registratie van ionkanaalactiviteit onder strikt gecontroleerde omstandigheden mogelijk, inclusief de lipidencompositie van het membraan en de concentraties van elektrolyten of chemische verbindingen, terwijl het membraan vanaf beide zijden toegankelijk blijft. Deze toegankelijkheid maakt het bovendien mogelijk om ionkanalen direct in te voegen, bijvoorbeeld vanuit een micellaire oplossing of via liposoom-gestuurde fusie2,3.
Het eerste beschreven kunstmatige membraansysteem werd gecreëerd met de schildertechniek4, waarbij een druppel lipiden opgelost in een niet-vluchtig organisch oplosmiddel met een penseel op een kleine opening wordt aangebracht. De toevoeging van een waterige oplossing aan beide zijden van de opening leidt vervolgens tot de spontane vorming van een lipide dubbellaag. Een aanzienlijk nadeel van deze methode is echter het behoud van sporen van het oplosmiddel, wat de eigenschappen van het membraan kan beïnvloeden. Om de hoeveelheid residu van het organische oplosmiddel in lipide dubbellagen te verminderen, werd de vouwmethode5 ontwikkeld, waarmee de vorming van "oplosmiddelvrije" BLM's mogelijk werd. Bij deze benadering wordt een lipide-oplossing in een vluchtig oplosmiddel op het wateroppervlak verspreid om twee monolagen te vormen; door het niveau van de waterige fase boven de opening geleidelijk te verhogen, vouwen deze lipide monolagen zich over de opening tot een dubbellaag. Hoewel de resulterende BLM als oplosmiddelvrij wordt gedefinieerd, vereist een succesvolle vorming van de dubbellaag echter een voorbehandeling van de opening met een dunne laag niet-vluchtig oplosmiddel. Het kernelement dat nodig is voor deze experimenten bestaat uit een meetkamer met twee waterige compartimenten (meestal aangeduid als cis en trans), gescheiden door een lipofiel septum met een kleine opening (50–250 µm in diameter) (Figuur 1). Zilver/zilverchloride (Ag/AgCl) elektroden worden in elk compartiment geplaatst. Wanneer ze in de elektrolytoplossing worden ondergedompeld, stellen deze elektroden de elektrochemische verbinding tussen de lipide dubbellaag en het meetapparaat vast. Dit laatste bestaat uit een voltage-clamp versterker, die een nauwkeurige controle van het transmembraanpotentiaal en gelijktijdige meting van de ionische stromen door ingebedde porievormende eiwitten mogelijk maakt.
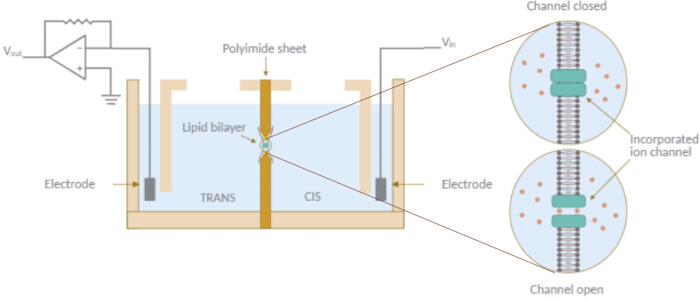
Figuur 1: Schema van de elektrofysiologische opstelling voor een planaire lipide dubbellaag (PLB). Een schema van de essentiële componenten die nodig zijn voor PLB-experimenten. De meetkamer bestaat uit twee waterige compartimenten (cis en trans), gescheiden door een lipofiel septum met een opening waarin een lipide dubbellaag wordt gevormd. Zilver/zilverchloride (Ag/AgCl) elektroden zijn ondergedompeld in de elektrolytoplossing in elk compartiment. Eén elektrode brengt spanningsstimuli toe (bijv. sinus-, vierkante of driehoekige golfvormen), terwijl de andere, die op massa wordt gehouden, is verbonden met een stroom-naar-spanningsomvormer die de ionenstroom omzet in een proportionaal spanningssignaal. Het signaal wordt versterkt, optioneel gefilterd, gedigitaliseerd en geregistreerd voor real-time monitoring en analyse. Klik hier om een grotere versie van deze figuur te bekijken.
Er zijn ook andere methoden ontwikkeld voor het vormen van BLM's. Een veelgebruikte aanpak bestaat hierbij uit het creëren van lipide dubbellagen die zijn gesuspendeerd aan de punt van een patch-clamp pipet. Zo maakt de tip-dip methode6 de vorming mogelijk van een gesuspendeerde, oplosmiddelvrije lipide dubbellaag op de opening van een glazen micropipet met een diameter van ~4 µm door de punt herhaaldelijk door een lipide monolayer aan het lucht-waterinterface te dopen, waarbij tijdens elke passage een enkele leaflet wordt gevangen. De patch-clamp techniek is ook gebruikt voor single-channel metingen in lipide dubbellagen. Bij de punch-out methode7 wordt bijvoorbeeld een glazen pipet met een diameter tussen 10 en 80 µm gebruikt om een groot membraan te patchen dat oorspronkelijk over een opening in een meetkamer is aangebracht. Als alternatief maakt de liposoom-patch methode gebruik van een vooraf gevormd nano- tot microformaat blaasje als oplosmiddelvrije BLM8,9. In het bijzonder zijn giant unilamellar vesicles breed ingezet voor single-channel registraties via verschillende patch-clamp configuraties, waaronder cell-attached en excised patch modi10,11.
Er zijn ook verschillende platforms ontwikkeld voor de parallelle en geautomatiseerde vorming van meerdere dubbellagen. Een van deze benaderingen is de droplet interface bilayer (DIB)-techniek12, waarbij waterige druppels worden geplaatst in een mengsel van lipiden en oplosmiddel. Bij deze methode assembleren lipidemonolagen spontaan rond de druppels, en de vorming van een dubbellaag vindt plaats wanneer twee druppels met elkaar in contact komen. In sommige opstellingen kunnen DIB's worden gevormd op hydrogels om de membraanstabiliteit te verbeteren13. Een alternatieve benadering op basis van DIB-vorming aan de punt van een glazen pipet is de contact bubble bilayer (CBB)-methode14, waarbij waterige bellen met behulp van twee micropipetten in een oliefase worden geïntroduceerd. Net als bij de DIB-benadering vormt zich spontaan een lipidendubbellaag wanneer twee met lipiden gecoate bellen in contact worden gebracht. Een ander platform wordt vertegenwoordigd door arrayed BLM-systemen, die bestaan uit arrays van goed gedefinieerde micro- tot nanometerschaal poriën gerangschikt in een rasterpatroon. In deze systemen kunnen gesuspendeerde lipidendubballagen worden gevormd, óf handmatig — met behulp van schilderto- of vouwtechnieken, of via liposoomvesikelruptuur15,16,17 — óf automatisch door sequentiële injectie van lipide- en bufferoplossingen wanneer deze gekoppeld zijn aan microfluïdische kanaalstructuren18,19.
Hoewel er veel methoden zijn ontwikkeld om oplosmiddelvrije BLM's te vormen, richten we ons in dit werk op de vouwmethode, geïmplementeerd binnen een geminiaturiseerd en geïntegreerd platform om het enkelkanaalgedrag van membraaneiwitten ingebed in een kunstmatige lipiden-dubbellaag te onderzoeken. De experimenten werden uitgevoerd met de Elements-opstelling, die uit twee componenten bestaat: de Elements Nanopore Reader (eNPR-versterker) en de BLMchipMM (Figuur 2A en Figuur 2B). De eerste is een compacte voltage-clamp-versterker met een lage ruis die de werkruimte vereenvoudigt door een complete en onafhankelijke eenheid te vormen, waardoor aanvullende externe apparaten overbodig worden. De BLMchipMM is een vooraf geassembleerd en geminiaturiseerd systeem dat is ontworpen voor de Montal–Mueller-techniek en dient als experimentele interface. Het bestaat uit een transparante polymethylmethacrylaat (PMMA) registratiekamer geïntegreerd met een printplaat (PCB), die twee sockets bevat die zijn ontworpen voor Ag/AgCl-draden die dienen als elektroden voor directe verbinding met de versterker. De kernstructuur van de kamer bestaat uit een polyimide septum dat is afgedicht tussen twee transparante PMMA-componenten. Het septum is 50 µm dik, behalve in een klein centraal gebied (3,78 mm2), waar de dikte is verminderd tot 25 µm om de vorming van de dubbellaag te vergemakkelijken. In het centrum van dit dunnere gebied is door middel van laserboren een taps toelopende opening gemaakt, wat de mechanische stabiliteit van de lipiden-dubbellaag verbetert20,21. Er zijn vier openingsdiameters beschikbaar (50, 75, 100 en 140 µm), waardoor de membraancapaciteit kan worden afgestemd (Tabel 1). Elk PMMA-component is voorzien van een C-vormige holte met een volume van 110 µL, waardoor er twee fluïdische compartimenten aan weerszijden van het polyimide septum ontstaan om de elektrolytoplossing vast te houden. In elk PMMA-blok zijn aan tegenovergestelde zijden twee schuine fluïdische kanalen geboord: één kanaal wordt gebruikt om de Ag/AgCl-elektrode in te brengen, terwijl het andere handmatige aanpassing van het bufferniveau in het reservoir via pipetteren mogelijk maakt.
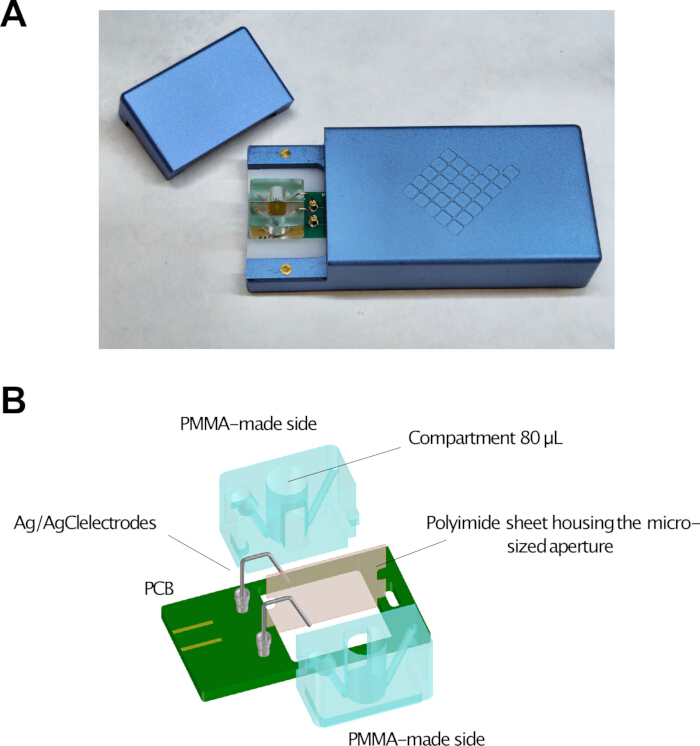
Figuur 2: Geïntegreerd Elements Nanopore Reader- en BLMchipMM-systeem. (A) Foto waarop de BLMchipMM is geplaatst in de speciale gleuf van de Elements Nanopore Reader (eNPR)-versterker. (B) Schematische weergave van de BLMchipMM-componenten, inclusief de registratiekamer van polymethylmethacrylaat (PMMA), het polyimide septum met de micro-opening en de printplaat (PCB) met sockets voor Ag/AgCl-elektroden en een gleuf voor de uitlijning van de kamer. Klik hier om een grotere versie van deze figuur te bekijken.
| Gatdiameter (µm) | 50 | 75 | 100 | 140 |
| Gatdikte (µm) | 25 | 25 | 25 | 25 |
| Typische membraancapaciteit (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
Tabel 1: Kenmerken van beschikbare BLMchipMM-apertuurformaten. Gatdiameter, septumdikte in het apertuurgebied en typische membraancapaciteitswaarden voor BLMchipMM-apparaten met aperturen van 50, 75, 100 en 140 µm. Membraancapaciteitswaarden worden weergegeven voor dubbellagen gevormd uit 1,2-diphytanoyl-sn-glycero-3-phosphocholine-lipiden.
Over het algemeen zijn opnamekamers die in laboratoria worden gebruikt ofwel zelfgebouwde eenheden of commercieel verkrijgbare apparaten. In het eerste geval omvat de constructie van het systeem het assembleren van diverse componenten en het ontwikkelen van een betrouwbare methode om de opening in het septum te maken, wat de toegankelijkheid voor veel laboratoria kan beperken. Zelfs wanneer commerciële apparaten worden gebruikt, vereisen deze vaak de handmatige integratie van meerdere componenten voorafgaand aan elk experiment. In tegenstelling hiertoe is de BLMchipMM vooraf geassembleerd en hoeft deze voor routinematige reinigingsprocedures tussen experimenten niet te worden gedemonteerd. Dezelfde eenheid kan worden gewassen en hergebruikt voor meerdere experimenten zonder de kwaliteit van de membraanvorming in gevaar te brengen, mits de gebruikte oplosmiddelen compatibel zijn met de materialen van het apparaat. Dit vermindert de gebruikersafhankelijke variabiliteit en minimaliseert het risico op lekken dat gepaard gaat met handmatige afdichtingselementen. Het gebruik van externe, vervangbare en reconsitioneerbare zilerdraad-elektroden verlengt de bruikbare levensduur van het systeem verder, vooral onder experimentele condities die het verbruik van de elektroden versnellen.
Bovendien hebben zelfgebouwde apparaten vaak grote compartimentvolumes, waardoor de hoeveelheid biologische en chemische componenten die nodig zijn voor experimenten toeneemt. In tegenstelling hiermee maakt de miniaturisering van de BLMchipMM het mogelijk om experimentele volumes te minimaliseren, waardoor het verbruik van reagentia, proteïnen en andere verbindingen aanzienlijk wordt verminderd. Dit is bijzonder voordelig bij het werken met membraneproteïnen die moeilijk te expresseren zijn of een lage opbrengst hebben, of wanneer de hoge kosten voor de synthese van testverbindingen de totale kosten van de experimenten verhogen. Belangrijk is dat de BLMchipMM de vorming van solvent-geminimaliseerde dubbellagen mogelijk maakt en asymmetrische membraanconfiguraties ondersteunt, waarbij elke leaflet kan bestaan uit verschillende lipidsoorten5,22, wat de studie van membraneproteïnefuncties onder gecontroleerde omstandigheden faciliteert.
Traditioneel worden stroommetingen uitgevoerd met versterkers die zijn ontworpen voor patch-clamp-experimenten, die vaak verbinding vereisen met een aparte digitalisator voor gegevensverwerving en aansturing via grafische interfaces. Deze systemen zijn niet alleen volumineus en duur, maar brengen vaak ook niet-intuïtieve configuratieprocedures met zich mee voor niet-experts. Bovendien is, vanwege de omvang van de opnamekamer en het ontwerp van standaardversterkers — die doorgaans geen ingebouwde afscherming hebben om de input van de headstage te beschermen tegen elektrostatische interferentie — het gebruik van een externe Faraday-kooi vaak noodzakelijk. De kwaliteit en aarding van een dergelijke kooi kunnen de ruisprestaties van het systeem aanzienlijk beïnvloeden. De BLMchipMM vereenvoudigt deze configuratie door de behoefte aan externe componenten te verminderen wanneer deze wordt gebruikt met een compacte geïntegreerde versterker. De digitalisering van het signaal vindt plaats binnen het apparaat, en de behuizing van het systeem biedt afscherming die de gevoeligheid voor omgevingsmatige elektromagnetische interferentie vermindert.
Om de toepasbaarheid van dit platform aan te tonen, is het K2P-achtige kanaal ancTREK1 gebruikt, een computationeel afgeleid ancestraal lid van de TREK-subfamilie (Aanvullende figuur 1), werd gebruikt als testeiwit om de succesvolle reconstitutie en single-channel recording te valideren. K2P kanalen vormen dimere kaliumlekkanalen die het rustmembraanpotentiaal en de cellulaire exciteerbaarheid reguleren, waarbij TREK-kanalen een goed gekarakteriseerde subfamilie vormen.
Protocol
Deze studie omvatte geen menselijke deelnemers, materialen van menselijke oorsprong of proefdieren. Bijgevolg was er geen ethische goedkeuring vereist in overeenstemming met de institutionele en nationale richtlijnen.
1. De elektrofysiologische opstelling voorbereiden
- Instrumentkalibratie
Hoewel formele kalibratie niet vereist is omdat het systeem fabrieksmatig is geconfigureerd, moet de juiste werking van het systeem worden geverifieerd voorafgaand aan de membraanvorming.- Meet de ingangsweerstand onder open-circuitcondities (d.w.z. zonder dat de BLMchipMM is ingebracht). De gemeten weerstand moet ≥1 TΩ zijn, wat de integriteit van de versterkeringang bevestigt.
- Verifieer de systeemrespons met behulp van een modelcel die een 1 GΩ weerstand bevat. De gemeten weerstand moet 1 GΩ zijn binnen ±30%, in overeenstemming met de tolerantie van de geïntegreerde weerstand.
- Meet de basisruis onder open-circuitcondities bij een constante spanning (0 mV). De RMS-ruis moet ≤300 fA zijn bij een bemonsteringssnelheid van 10 kHz en een bandbreedte van 5 kHz, wat een systeemprestatie met lage ruis bevestigt.
- Voorbereiden van de Ag/AgCl-elektroden
- Spoel bij eerste gebruik de zilverdraden met ethanol en dubbel gedestilleerd water.
- Gebruik bij eerder gebruikte draden schuurpapier met een zeer fijne korrel om de oude Ag/AgCl-laag van het draadoppervlak te verwijderen, totdat het oppervlak uniform helder zilverkleurig oogt met een schone metallische glans en geen zichtbare residuen vertoont. Spoel vervolgens met ethanol en dubbel gedestilleerd water.
- Chloreer het uiteinde van de zilverdraden door ze te weken in 1%–5% natriumhypochloriet (NaOCl) (Figuur 3A) totdat ze lichtgrijs worden, gewoonlijk gedurende 15–30 min. Controleer de gechloreerde draden in de loop van de tijd op degradatie tijdens het gebruik, wat zich manifesteert als een kleurverandering, een drift in de basisstroom, of beide.
OPMERKING: Chlorering kan worden uitgevoerd met gewone huishoudelijke bleek (1%–5% NaOCl).
WAARSCHUWING: Chloreer de draden niet over hun gehele lengte. Laat het uiteinde dat in de PCB-socket past ongechloreerd om een goede elektrische verbinding te garanderen.
WAARSCHUWING: De sockets op de PCB zijn ontworpen voor zilverdraden met een diameter van 0,5 mm. Andere diameters passen mogelijk niet goed of kunnen leiden tot onstabiele verbindingen.
- Assembleren van de BLMchipMM
- Steek het ongechloreerde uiteinde van de twee zilverdraden in de PCB-sockets. Gebruik indien nodig een pincet om ze correct te positioneren (Figuur 3B).
- Plaats de gechloreerde uiteinden van de draden in de vloeistofkanalen die in het PMMA-component zijn geboord (Figuur 3C).
- Draai de BLMchipMM voorzichtig en monteer deze op de PCB door de onderste tand van de PMMA-registratiekamer in de daarvoor bestemde sleuf te passen (Figuur 3D).
- Controleer de positie van de draden en zorg ervoor dat ze het einde van de vloeistofkanalen bereiken. Duw de draden indien nodig voorzichtig aan totdat de uiteinden zichtbaar zijn aan de bodem van de compartimenten (Figuur 3E).
WAARSCHUWING: Positioneer de draden zo dicht mogelijk bij het PMMA-component. Overmatige kromming kan contact met het deksel van de versterker veroorzaken, wat leidt tot kortsluiting en signaalverzadiging.
- Voorbereiden van lipiden en registratie-oplossing
- Bereid 100 µL van een 1% (v/v) hexadecaan-oplossing in 100% n-hexaan voor om de septumopening voor te behandelen. Bewaar deze oplossing bij −20°C gedurende maximaal een week.
- Resuspendeer 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) lipiden in 100% n-pentaan tot een eindconcentratie van 15 mg/mL. Bewaar deze oplossing bij −20°C gedurende maximaal 24 u.
- Bereid de elektrolytische registratie-oplossing bij kamertemperatuur (RT; 20°C–25°C) door 3 mL van een 1 M KCl-stoomoplossing te mengen met 150 µL van een 1 M 4-(2-hydroxyethyl)-1-piperazineethansulfonzuur-stoomoplossing (pH 7,4 ingesteld met KOH met behulp van een pH-meter). Voeg dubbel gedestilleerd water toe om het eindvolume op 15 mL te brengen. Bewaar de oplossing bij 4°C gedurende maximaal een week (Tabel 2).
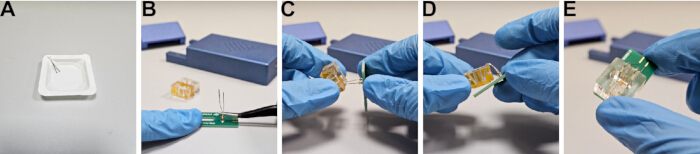
Figuur 3: Assemblage van het BLMchipMM-apparaat. (A) Chlorering van Ag-draden door weken in bleekmiddel. (B) Invoegen van Ag-draden in de PCB-voetjes. (C) Positioneren van de Ag-draden in de microfluïdische kanalen. (D) Plaatsen van de meetkamer op de PCB. (E) Verificatie van de juiste positionering van de elektroden binnen de fluïdische kanalen. Klik hier om een grotere versie van deze figuur te bekijken.
| Reagens | Eindconcentratie | Volume |
| Dubbelgedestilleerd water | — | Voeg toe tot 15 mL |
| Kaliumchloride (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7,4 (KOH) (1 M) | 10 mM | 150 µL |
Tabel 2: Elektrolytische registratie-oplossing. Samenstelling van de elektrolytische oplossing gebruikt voor PLB-registraties, inclusief reagensconcentraties en bereidingsvolumes. Het eindvolume wordt aangevuld tot 15 mL met dubbel gedestilleerd water. De registratie-oplossing moet vóór gebruik worden gefilterd met een 0,2 µm spuitfilter.
OPMERKING: Filtreer de opname-oplossing voor gebruik met een 0,2 µm spuitfilter. DPhPC-lipiden kunnen worden geleverd als droog poeder of opgelost in chloroform. Bewaar beide vormen bij −20°C in verzegelde glazen vials onder een inert gas om oxidatie te voorkomen. Laat droog poeder equilibreren tot RT voor het openen. Bereid verse oplossingen uit droog poeder en gebruik deze binnen 24 h. Indien chloroform-voorraden worden gebruikt, moet het oplosmiddel vóór resuspensie volledig onder stikstof worden verdampt, aangezien residueel chloroform het membraan kan destabiliseren.
2. Vorm de PLB via de Montal–Mueller-methode
De volgende stappen beschrijven de vorming van een kunstmatig membraan met behulp van de vouwmethode, ook wel bekend als de Montal–Mueller techniek5 (Figuur 4). Deze aanpak omvat de voorbehandeling van de septumopening met een dunne laag 1% (v/v) hexadecaan in n-hexaan, het aanbrengen van een lipidoplossing om monolagen te vormen op het lucht-watergrensvlak, en het vouwen van de monolagen over de opening terwijl het niveau van de elektrolytoplossing in de kamercompartimenten opeenvolgend wordt verhoogd.
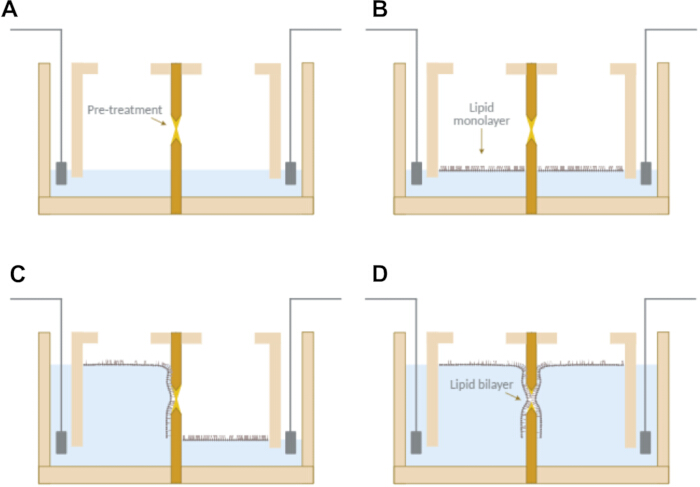
Figuur 4: Vorming van PLB's met de Montal–Mueller-methode. (A>) Voorbehandeling van de opening met 1% hexadecaan in n-hexaan en vullen van de compartimenten tot het niveau van de opening. (B>) Vorming van lipidemonolagen op het lucht-watergrensvlak. (C> en D>) Sequentiële verhoging van het bufferniveau in elk compartiment, wat leidt tot vouwing van de monolagen en vorming van een oplosmiddelvrije lipidendubbellaag over de opening. Klik hier om een grotere versie van deze figuur te bekijken.
- Vorm het membraan
- Behandel de opening van het septum voor met een 1% (v/v) hexadecaanoplossing in n-hexaan met behulp van een pipetpunt. Breng ongeveer 2 µL per zijde aan (Figuur 4A).
- Laat het oplosmiddel 5 min verdampen bij 23°C–25°C en 45%–50% relatieve vochtigheid.
- Plaats de geassembleerde BLMchipMM in de versterker.
- Verbind de versterker via een USB-kabel met de computer en open de acquisitiesoftware.
- Stel het stroombereik in op 2 nA en activeer de RC-schattingsmodule om de membraancapaciteit en -weerstand te bewaken.
OPMERKING: De instellingen voor de RC-schatting zijn standaard geconfigureerd, maar kunnen indien nodig worden aangepast. - Vul elk compartiment met 30 ± 2 µL registratie-oplossing tot aan de onderrand van de opening (Figuur 4A).
WAARSCHUWING: Zorg dat de registratie-oplossing het gebied rondom de opening niet bevochtigt. - Breng 2,5 ± 0,1 µL lipidoplossing druppelgewijs aan op het oppervlak van de waterfase in elk compartiment (Figuur 4B).
- Laat het oplosmiddel 2 min verdampen.
- Plaats een pipetpunt onder een hoek van ongeveer 90° onderin één compartiment en voeg 80 ± 2 µL registratie-oplossing toe. Herhaal dit voor het tweede compartiment (Figuur 4C en Figuur 4D).
OPMERKING: Verdampingstijden van het oplosmiddel hebben betrekking op condities van 23°C–25°C, stilstaande lucht en 45%–50% relatieve vochtigheid. - Sluit het deksel van de kooi van Faraday en bewaak het stroomsignaal. Membraanweerstandswaarden boven 200 GΩ duiden op een succesvolle vorming van de dubbellaag en een goede membraanintegriteit.
OPMERKING: Een succesvolle membraanvorming wordt aangegeven door een blokgolfstroomsignaal dat rond nul fluctueert, met een amplitude die proportioneel is aan de membraancapaciteit (Figuur 5A).
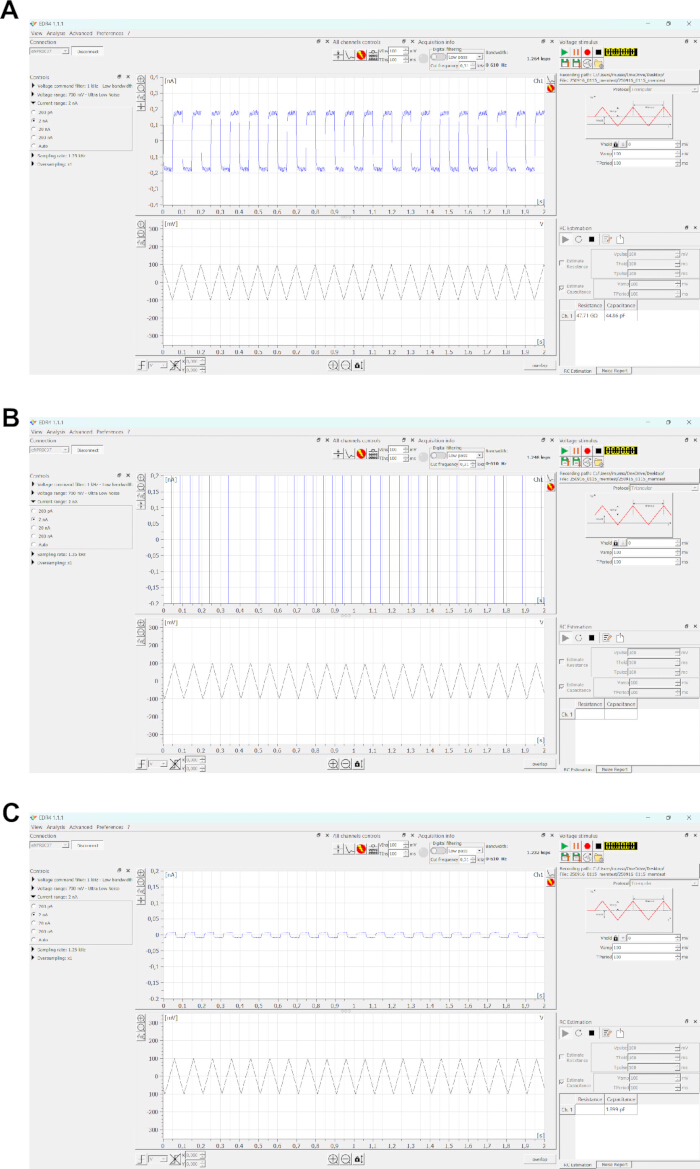
Figuur 5: Monitoring van membraanvorming via de interface van de acquisitiesoftware. (A) Representatief spoor dat een succesvolle membraanvorming laat zien. Een driehoekige spanningsgolfvorm (100 mV peak-to-peak, 10 Hz) produceert een blokgolfvormige capacitieve stroom die proportioneel is aan de membraancapaciteit (~45 pF). (B) Representatief spoor dat duidt op de afwezigheid van membraanvorming, gekenmerkt door verzadiging van het stroomsignaal. (C) Capacitief signaal dat overeenkomt met lekcapaciteit wanneer de bilaag niet is gevormd, zoals wanneer de opening is blootgesteld. Klik hier om een grotere versie van deze figuur te bekijken.
OPMERKING: Een signaal dat schakelt tussen de grenzen van het stroombereik duidt op een defect membraan (Afbeelding 5B).
OPMERKING: De RMS-ruis neemt toe met de membraancapaciteit en dus met de openinggrootte. Typische ruisbereiken gemeten onder constante spanningsomstandigheden (0 mV), bij een bemonsteringssnelheid van 5 kHz en een bandbreedte van 2.5 kHz, zijn: 0.48–2.00 pA (50 µm); 0.74–2.62 pA (75 µm); 1.00–3.52 pA (100 µm); en 1.59–5.27 pA (140 µm).
OPMERKING: Het verlagen en verhogen van het bufferniveau in één compartiment kan de membraanvorming bevorderen als de eerste pogingen mislukken.
OPMERKING: Breng indien nodig met een pipetpunt gedurende ~5 s een luchtbel over de opening aan om de vorming van de dubbellaag te vergemakkelijken.
OPMERKING: Het verlagen van het bufferniveau onder de opening of het aanbrengen van een luchtbel kan een signaal veroorzaken dat overeenkomt met strooikapaciëntie (Figuur 5C). Als de output lijkt op Figuur 5B, is de voorbehandeling mogelijk niet effectief geweest. Breng de voorbehandelingsoplossing en lipiden opnieuw aan, of reinig het apparaat en herhaal de procedure.
WAARSCHUWING: Voer de spanningsoffsetcompensatie alleen uit in afwezigheid van een membraan. Als er een membraan aanwezig is, laat dit dan eerst scheuren met de ZAP-functie voordat u de compensatie uitvoert.
OPMERKING: Experimenten kunnen op een standaard laboratoriumbank worden uitgevoerd; indien nodig kan echter een trillingsvrije tafel worden gebruikt.
3. Reinig de BLMchipMM
- Verwijder de registratiekamer van de PCB.
- Was beide compartimenten en vloeistofkanalen met 100% isopropylalcohol (IPA).
WAARSCHUWING: Overschrijd de blootstelling aan IPA niet met meer dan 1 min.
WAARSCHUWING: Gebruik geen aceton of 100% ethanol, aangezien deze oplosmiddelen het afdichtingsmateriaal van de kamer kunnen beschadigen.
OPMERKING: Controleer voor gebruik de compatibiliteit van eventuele aanvullende oplosmiddelen met PMMA. - Spoel grondig na met dubbel gedestilleerd water.
- Droog de registratiekamer volledig met een zachte stroom gecomprimeerde lucht totdat er geen zichtbare waterdruppels meer overblijven.
OPMERKING: Inspecteer de kamer onder een verlichte vergrootglas om er zeker van te zijn dat er geen residuele oliefilms aanwezig zijn. Herhaal indien nodig de reinigings- en droogprocedure.
OPMERKING: Zorg dat de kamer volledig schoon en droog is voordat u aan een nieuw experiment begint.
4. Expressie en zuivering van het synthetische ionkanaal (ancTREK1)
- Bereid het expressieconstruct voor
De volgende stappen beschrijven kloneringsstrategieën, heterologe expressie in Freestyle-293F-cellen en zuivering van het ancTREK1-eiwit.
Construeer de expressievector middels PCR-amplificatie, restrictie-enzymdigestie, ligatie en transformatie in chemisch competente Escherichia coli-cellen23,24. Express de ancTREK1-sequentie (Aanvullende figuur 1) met behulp van een mammaliaanse vector die een C-terminale GFP-tag en His₈-tag bevat, wat fluorescentiegebaseerde detectie mogelijk maakt25,26 en een tweestaps affiniteitszuivering middels nikkel–nitrilotriazijnzuur (Ni2⁺-NTA-hars)27,28,29, gevolgd door anti-GFP-nanobody-hars30,31,32. - Amplificeer ancTREK1-DNA via PCR
- Verdun de PCR-primers en het DNA-template tot eindconcentraties van 10 µM en ~20 ng/µL met steriel dubbelgedestilleerd water.
- Ontdooi alle reagentia op ijs.
- Bereid een PCR-reactie van 50 µL voor bestaande uit 10 µL 5× buffer, 2,5 µL van elke 10 µM primer, 2 µL DNA-template, 1 µL 10 mM dNTP's, 0,5 µL high-fidelity DNA-polymerase en vul aan tot het volume met steriel dubbelgedestilleerd water (Tabel 3). Meng voorzichtig en centrifugeer kort.
- Voer de PCR uit volgens de volgende condities: initiële denaturatie bij 98°C gedurende 3 min; 30 cycli van 98°C gedurende 30 s, 68°C gedurende 30 s en 72°C gedurende 30 s; finale extensie bij 72°C gedurende 3 min (Tabel 4).
- Laad het PCR-product op een 1% (w/v) agarosegel in 1× TAE-buffer bij 60 V gedurende 90 min en snijd de correcte band uit.
OPMERKING: Zuiver de PCR-producten met een gel-extractiemethode, meet de DNA-concentratie bij 260 nm en bewaar de gezuiverde PCR-producten indien nodig bij −20°C.
- Voer de restrictiedigestie uit
- Bereid digestiereacties voor bestaande uit 2 µg PCR-product en 2 µg plasmid-DNA in afzonderlijke buisjes. Voeg 5 µL 10× buffer, 0,5 µL EcoRI- en 0,5 µL NotI-restrictie-enzymen toe en vul aan tot 50 µL met dubbelgedestilleerd water (Tabel 5).
- Meng voorzichtig en incubeer bij 37°C gedurende 3 u.
- Inactiveer de enzymen door verhitting bij 65°C gedurende 20 min.
- Voeg 1 µL alkalische fosfatase toe aan de vectordigestie en incubeer bij 37°C gedurende 1 u.
- Laad de gedigereerde producten op een 1% agarosegel en extraheer de gewenste banden.
OPMERKING: Zuiver de DNA-fragmenten met geschikte zuiveringsmethoden en bewaar het gezuiverde DNA indien nodig bij −20°C.
- Voer ligatie en transformatie uit
- Bereid een ligatiereactie van 20 µL voor bestaande uit vector en insert (molair ratio 3:1), 2 µL 10× ligasebuffer en 1 µL ligase-enzym (Tabel 6).
- Incubeer bij kamertemperatuur gedurende 1 u.
- Ontdooi chemisch competente E. coli-cellen op ijs.
- Voeg 5 µL van het ligatiemengsel toe aan 50 µL cellen en incubeer op ijs gedurende 20 min.
- Voer een hitteschok uit bij 42°C gedurende 1 min, en plaats ze daarna 2 min terug op ijs.
- Voeg 450 µL LB-medium toe en incubeer bij 37°C onder schudden gedurende 1 u.
- Centrifugeer bij 3.000 × g gedurende 1 min en resuspendeer het pellet in 50 µL.
- Plateer op selectieve agar en incubeer overnacht bij 37°C.
OPMERKING: Bevestig de succesvolle klonering via sequencing.
- Transfecteer HEK293F-cellen
- Zaai 250 mL 293F-cellen uit bij 0,5 × 10⁶ cellen/mL in serumvrij suspensiemedium en incubeer bij 37°C met 6% CO₂.
- Bereid 250 µg DNA voor in een eindvolume van 3 mL medium met verminderd serum.
- Bereid 750 µg polyethylenimine (PEI) voor in water bij 1 mg/mL, stel de pH in op 6,9–7,1 met NaOH, filter de oplossing steriel en vul aan tot een eindvolume van 3 mL met medium met verminderd serum.
- Combineer de DNA- en PEI-oplossingen, meng voorzichtig en incubeer 10 min bij kamertemperatuur.
- Voeg het mengsel druppelsgewijs toe aan de cellen.
- Voeg na 4 u natriumbutyraat toe tot een eindconcentratie van 10 mM.
- Oogst de cellen na 48 u door centrifugatie bij 500 × g gedurende 15 min.
- Bewaar de celpellets bij −80°C.
- Solubiliseer membraaneiwitten
- Ontdooi celpellets van 100 mL HEK293-kweek op ijs.
- Resuspendeer het celpellet in lysisbuffer in een ratio van 1:10 (w/v) (Tabel 7).
Voeg detergent toe tot eindconcentraties van 1% n-dodecyl-β-D-maltoside (DDM) en 0,1% cholesterylhemisuccinaat (CHS). - Incubeer onder rotatie bij 4°C gedurende 2 u.
- Centrifugeer bij 100.000 × g gedurende 1 u bij 4°C.
- Verzamel het supernatant.
WAARSCHUWING: Voer alle stappen uit bij 4°C met vooraf gekoelde buffers.
- Voer IMAC-zuivering uit
- Pak 500 µL Ni2⁺-NTA-hars in een zwaartekrachtkolom.
- Equilibreer de hars met twee kolomvolumes (CV's) equilibratiebuffer (Tabel 8).
- Laad het monster en incubeer met voorzichtig mengen bij 10 rpm en 4°C gedurende 3 u.
- Plaats de kolom verticaal en verzamel de flowthrough via zwaartekrachtstroom.
- Was de hars met 10 CV's wasbuffer bestaande uit 30 mM imidazole.
- Elueer het eiwit met 10 CV's elutiebuffer bestaande uit 300 mM imidazole.
OPMERKING: Analyseer de fracties via SDS-PAGE (Figuur 6). Bewaar de flowthrough- en wasfracties voor analyse. Bewaar het eiwit indien nodig overnacht bij 4°C
- Voer anti-GFP-zuivering uit
- Pak 1 mL anti-GFP-hars in een zwaartekrachtkolom.
- Equilibreer de hars met 2 CV's Buffer 1 (Tabel 9). Laad het IMAC-eluaat en incubeer met voorzichtig mengen bij 10 rpm en 4°C gedurende 3 u.
- Plaats de kolom verticaal en verzamel de flowthrough via zwaartekrachtstroom.
- Was de hars sequentieel met 10 CV's Buffer 1, 10 CV's Buffer 2 en 10 CV's Buffer 1.
- Verdun HRV-3C-protease in 2 mL Buffer 1 bij een protease:eiwit-ratio van 1:50.
- Voeg Buffer 1 aangevuld met HRV-3C-protease toe aan de hars, meng voorzichtig en incubeer overnacht bij 4°C in een verticale statische positie.
- Verzamel het geknipte eiwit in de elutiefractie.
- Concentreer het monster met een centrifugale concentrator met een 50 kDa cutoff bij 3.000 × g en 4°C totdat een eindvolume van ongeveer 500 µL is bereikt.
OPMERKING: Analyseer de fracties via SDS-PAGE (Figuur 7). Resuspendeer het eiwit periodiek tijdens de concentratie om aggregatie te voorkomen. Bewaar het gezuiverde eiwit bij −80°C na flash-freezing. Uit 100 mL kweek kan ongeveer 60 µg eiwit worden verkregen.
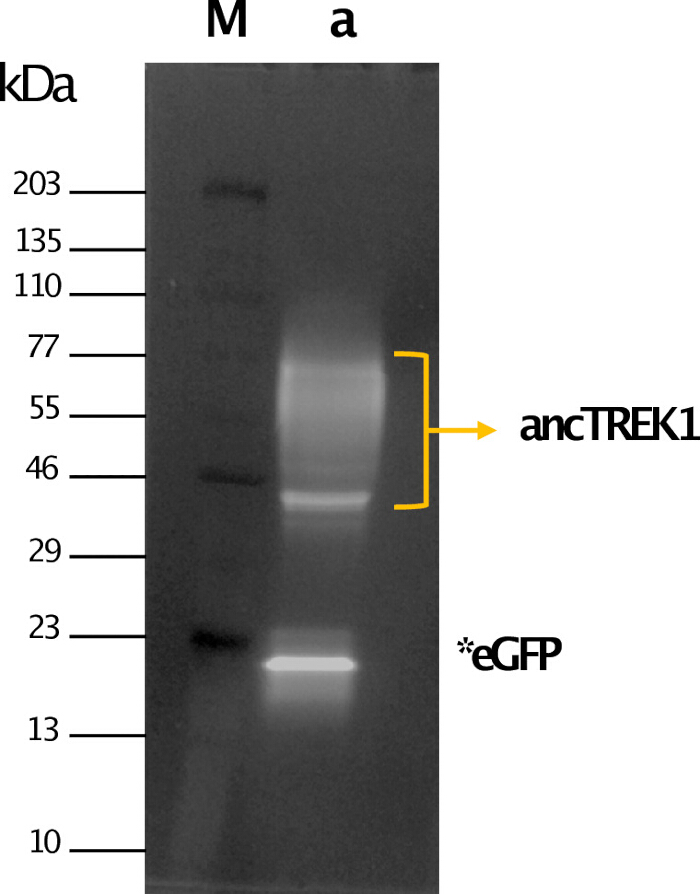
Figuur 6: Zuivering van ancTREK1 via geïmmobiliseerde metaal-ion affiniteitschromatografie (IMAC). Sodiumdodecylsulfaat-polyacrylamidegelelektroforese (SDS-PAGE) analyse van IMAC-elutiefracties met fluorescentiedetectie. Baan M: molecuulgewichtmarker. Baan a: IMAC-elutiefractie die GFP-getagd (green fluorescent protein) ancTREK1 vertoont (gele pijl). Vrij GFP resulterend uit autocleavage is aangegeven (*eGFP). Klik hier om een grotere versie van deze figuur te bekijken.
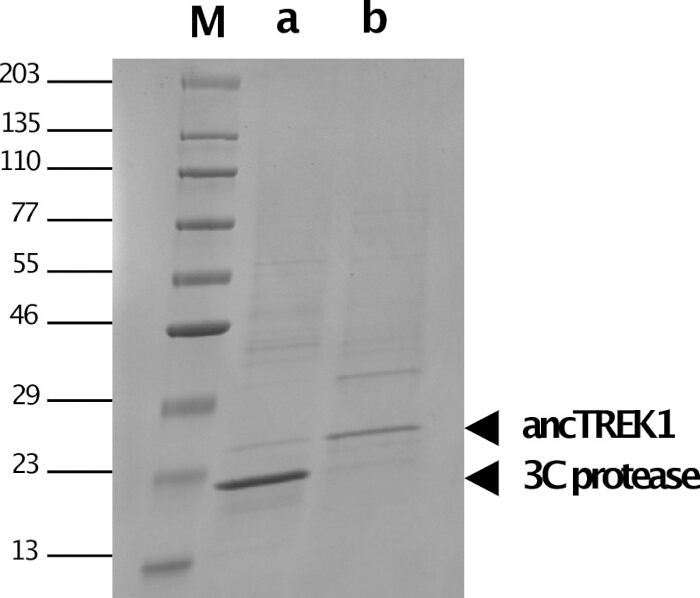
Figuur 7: zuivering van ancTREK1 door affiniteitschromatografie met anti-GFP nanobodies. SDS-PAGE-analyse van geëlueerde fracties gekleurd met Coomassie Blauw. Baan M: molecuulgewichtmarker. Baan a: anti-GFP elutiefractie waarin de aanwezigheid van 3C-protease zichtbaar is. Baan b: gezuiverde ancTREK1 na concentratie. Klik hier om een grotere versie van deze figuur te bekijken.
| Reagens | Volume voor 50 µL reactie | Eindconcentratie |
| Dubbelgedistilleerd water | Voeg toe aan 50 µL | — |
| 5× PhusionTM GC-buffer | 10 µL | 1× |
| dNTP's (elk 10 mM) | 1 µL | 200 µM elk |
| Forward primer (10 µM) | 2.5 µL | 0.5 µM |
| Reverse primer (10 µM) | 2.5 µL | 0.5 µM |
| Template-DNA (20 ng/µL) | 2 µL | 0,8 ng/µL |
| PhusionTM DNA-polymerase met hoge getrouwheid | 0.5 µL | 0,02 U/µL |
Tabel 3: Opzet van de polymerasekettingreactie (PCR) voor ancTREK1-amplificatie. Samenstelling van reagentia, volumes en eindconcentraties gebruikt voor PCR-amplificatie van de ancTREK1 DNA-sequentie met gebruik van een high-fidelity DNA-polymerasesysteem.
| Stap | Temperatuur | Tijd | Cycli |
| Initiële denaturatie | 98°C | 3 min | 1 |
| Denaturatie | 98°C | 30 s | 30 |
| Annealing | 68°C | 30 s | 30 |
| Extensie | 72°C | 30 s | 30 |
| Definitieve extensie | 72°C | 3 min | 1 |
| Vasthouden | 12°C | Vasthouden | — |
Tabel 4: PCR-cycluscondities voor ancTREK1-amplificatie. Thermische cyclusparameters gebruikt voor de amplificatie van de ancTREK1-DNA-sequentie, inclusief denaturatie-, annealing- en extensiestappen, alsof wel als de uiteindelijke extensiestap.
| Component | Insert-digestie (50 µL) | Vector-digestie en defosforylering (50 µL) |
| ddH₂O | Tot 50 µL | Tot 50 µL |
| 10× ANZA Red Buffer | 5 µL | 5 µL |
| DNA | ancTREK1 PCR-product (2 µg) | pEG BacMam C-term 3C eGFP His8 vector DNA (2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ Alkaline Phosphatase | — | 1 µL |
Tabel 5: Restrictie-enzymdigestie van insert en vector voor ancTREK1-klonering.Reactiecondities voor restrictiedigestie van het ancTREK1-PCRproduct en de expressievector met behulp van EcoRI- en NotI-enzymen. De vectordigestie omvat een aanvullende defosforyleringsstap met alkalische fosfatase om zelfligatie te voorkomen.
| Component | Hoeveelheid (20 µL reactie) |
| ddH2O₂O | Naar 20 µL |
| 10× T4 DNA-ligasebuffer | 2 µL |
| ancTREK1 insert-DNA (843 bp) | 10 ng |
| pEG BacMam C-term 3C eGFP His8 vector DNA (7673 bp) | 30 ng |
| T4 DNA-ligase | 1 µL |
Tabel 6: Condities voor vector-insert ligatie voor ancTREK1-klonering. Reactiemengsel voor ligatie van het ancTREK1-insert in de pEG BacMam expressievector bij een molaire ratio van 1:3 met gebruik van T4 DNA-ligase.
| Component | Eindconcentratie | Hoeveelheid (tot 5 mL) |
| dubbel gedestilleerd water₂O | — | Aan 5 mL |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl2₂ (100 mM) | 1 mM | 50 µL |
| PMSF-proteaseremmer (100 mM) | 1 mM | 50 µL |
| Leupeptine protease-remmer (1 mg/mL) | 1 µg/mL | 5 µL |
| Aprotinine protease-remmer (1 mg/mL) | 1 µg/mL | 5 µL |
| Pepstatine A protease-remmer (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-dodecyl-β-D-maltoside (DDM, 10%) | 1% | 500 µL |
| Cholesterylhemisuccinaat (CHS, 2%) | 0.10% | 250 µL |
Tabel 7: Samenstelling van lysisbuffer voor extractie van membraaneiwitten.Formulering van de lysisbuffer gebruikt voor solubilisatie van membraaneiwitten, inclusief zouten, bufferingsmiddelen, proteaseremmers, nuclease en detergentia. Let op: buffers moeten vers worden bereid vóór gebruik.
| Equilibratiebuffer (10 mL totaal volume) | ||
| Component | Eindconcentratie | Hoeveelheid |
| dubbel gedestilleerd water₂O | — | Aan 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesterylhemisuccinaat (CHS, 2%) | 0.01% | 50 µL |
| Wasbuffer (10 mL totaal volume) | ||
| Component | Eindconcentratie | Hoeveelheid |
| ddH2O₂O | — | Tot 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesterylhemisuccinaat (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 30 mM | 60 µL |
| Elutiebuffer (10 mL totaal volume) | ||
| Component | Eindconcentratie | Hoeveelheid |
| dubbel gedestilleerd water₂O | — | Aan 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesterylhemisuccinaat (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 300 mM | 600 µL |
Tabel 8: IMAC-buffercomposities voor zuivering van ancTREK1. Formuleringen van equilibratie-, was- en elutiebuffers gebruikt voor geimmobiliseerde metaal-ion affiniteitschromatografie-zuivering van ancTREK1. Opmerking: oplossingen kunnen tot zes maanden worden bewaard bij 4°C.
| Buffer 1 (10 mL totaal volume) | ||
| Component | Eindconcentratie | Hoeveelheid |
| dubbel gedestilleerd water₂O | — | Aan 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesterylhemisuccinaat (CHS, 2%) | 0.01% | 50 µL |
| Buffer 2 (10 mL totaalvolume) | ||
| Component | Eindconcentratie | Hoeveelheid |
| dubbelgedestilleerd water₂O | — | Aan 10 mL |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesterylhemisuccinaat (CHS, 2%) | 0.01% | 50 µL |
Tabel 9: Buffersamenstellingen voor affiniteitschromatografie met anti-GFP nanobodies. Formuleringen van buffers gebruikt voor de zuivering van ancTREK1 met behulp van affiniteitschromatografie met anti-GFP nanobodies. Opmerking: oplossingen kunnen tot zes maanden worden bewaard bij 4°C.
5. Registratie van ionkanaalactiviteit
- Beoordeel de membraankwaliteit
- Sluit het deksel van de kooi van Faraday.
- Pas een driehoekige spanningsgolfvorm toe (100 mV, 10 Hz) om de membraancapaciteit te bepalen.
- Pas spanningsstappen toe (stappen van ±20 mV tot ±200 mV) om de membraanweerstand te bepalen.
- Monitor de stroom- en ruiswaarden.
OPMERKING: Gebruik een bemonsteringssnelheid van 5 kHz en een laagdoorlaatfilter van 2,5 kHz, tenzij anders vereist.
- Registreer de ancTREK1-activiteit
- Verdun het ancTREK1-eiwit in de registratie-oplossing tot ~2 µg/mL.
OPMERKING: Voer tijdens het verdunnen indien nodig tussenliggende verdunningen uit in Buffer 1 om de detergentconcentratie boven de kritische micelconcentratie (CMC) te houden vóór de uiteindelijke verdunning in de registratie-oplossing. - Voeg 1 µL van de verdunde eiwitoplossing toe aan de cis-kamer nabij de opening van het septum.
OPMERKING: De membraanpotentiaal is gedefinieerd als Vcis − Vtrans. De oriëntatie van het kanaal is in deze studie niet direct bepaald; daarom worden registraties beschreven met betrekking tot de polariteit van de aangelegde spanning in plaats van aan een specifieke membraanzijde. - Pas spanningsstappen toe in stappen van ±20 mV tot ±120 mV.
- Monitor op kanaalinvoegingsgebeurtenissen.
OPMERKING: Kanaalinvoeging wordt aangegeven door discrete stroomovergangen tussen gesloten en open toestanden. Als er geen invoeging plaatsvindt, voeg dan meer eiwit toe of vorm het membraan opnieuw. Als er meerdere kanalen worden ingevoegd, breek dan het membraan en verlaag de eiwitconcentratie.
- Verdun het ancTREK1-eiwit in de registratie-oplossing tot ~2 µg/mL.
Resultaten
Stroom-spanningskenmerken (I–V) van PLB-membranen
De intrinsieke hydrofobe aard van dubbellaagmembranen maakt ze ondoordringbaar voor geladen soorten. De toepassing van een extern elektrisch veld kan echter de vorming van tijdelijke poriën van nanometergrootte induceren, waardoor de permeabiliteit en conductantie van het membraan worden beïnvloed33. Om de kwaliteit van kunstmatige dubbellagen gevormd uit 1,2-diphytanoyl-sn-glycero-3-phosphocholine lipiden te beoordelen, werden de membraancapacitantie, weerstand en I–V-karakteristieken geëvalueerd in afwezigheid van ingebouwde eiwitten. Er werd een reeks spanningsstappen toegepast variërend van ±20 tot ±200 mV (in stappen van ±20 mV), waarna de resulterende transmembraanstromen werden geregistreerd. Gegevens werden gesampled op 5 kHz en laagdoorgefilterd op 2,5 kHz.
Membraancapaciteit (Cm) en membraanweerstand (Rm) zijn sleutelparameters voor het evalueren van de kwaliteit van de dubbellaag. De PLB kan worden beschreven door een equivalent weerstands-condensatorcircuit (RC-circuit), waarin het membraan zich gedraagt als een condensator parallel aan een weerstand34. De capacitieve component weerspiegelt het vermogen van het membraan om lading op te slaan, terwijl de resistieve component de iondoorlaatbaarheid weerspiegelt. De toepassing van een driehoekige spanningsgolf genereert een vierkante capacitieve stroomrespons, die proportioneel is aan de membraancapaciteit volgens:
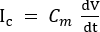 (1)
Hier is Cm de membraancapaciteit, V de aangelegde spanning en t de tijd. Na de membraanvorming kunnen de capaciteitswaarden in de loop van de tijd toenemen als gevolg van de progressieve uitdunning van de dubbellaag35. Beschouwd als een parallelplaatcondensator is de capaciteit gerelateerd aan het membraanoppervlak en de dikte volgens:
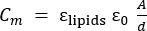 (2)
Hier is εlipids de diëlektrische constante van de lipidekern (~2), ε0 de permittiviteit van het vacuüm, A het membraanoppervlak en d de membraandikte36,37.
De membraanweerstand werd bepaald met behulp van de wet van Ohm33:
 (3)
Hierbij is V de aangelegde spanning en Rm de membraanweerstand. In afwezigheid van ionkanalen blijft de membraanstroom nabij 0 pA, wat overeenkomt met weerstandswaarden in het gigaohm-bereik (GΩ)33.
De I-V-relatie vertoonde lineair (ohms) gedrag tussen 0 en ±200 mV voor BLMchipMM-apparaten met een opening van 75 en 100 µm. Lineaire fitting van de data leverde membraanweerstandswaarden op van 847 ± 16 GΩ (n = 6) voor de opening van 75 µm (Figuur 8A, cirkels) and 980 ± 32 GΩ (n = 7) voor de opening van 100 µm (Figuur 8A, vierkantjes). De RMS-ruiswaarden, gemeten over segmenten van 3 s van het stroomspoor, waren 3,1 ± 2 pA (n = 7) voor de opening van 100 µm en 2,6 ± 0,1 pA (n = 6) voor de opening van 75 µm. De membraanstabiliteit werd beoordeeld door de weerstand te meten met intervallen van ongeveer 2 min over een totale duur van 1 h (Figuur 8B). Goed gevormde membranen bleven consistent stabiel gedurende meer dan 1 h, wat voldoende is voor de meeste elektrofysiologische experimenten. Membranen toleerden doorgaans aangelegde potentialen tot ±200 mV zonder tekenen van instabiliteit, terwijl breakdown optrad tussen ±220 en ±300 mV, afhankelijk van de individuele dubbellaag. Membranen werden als geschikt beschouwd voor proteïne-insertie wanneer de capaciteitswaarden variëerden van 40 tot 60 pF voor openingen van 75 µm en van 60 tot 90 pF voor openingen van 100 µm, met stroomwaarden van ≤0,5 pA bij 100 mV.
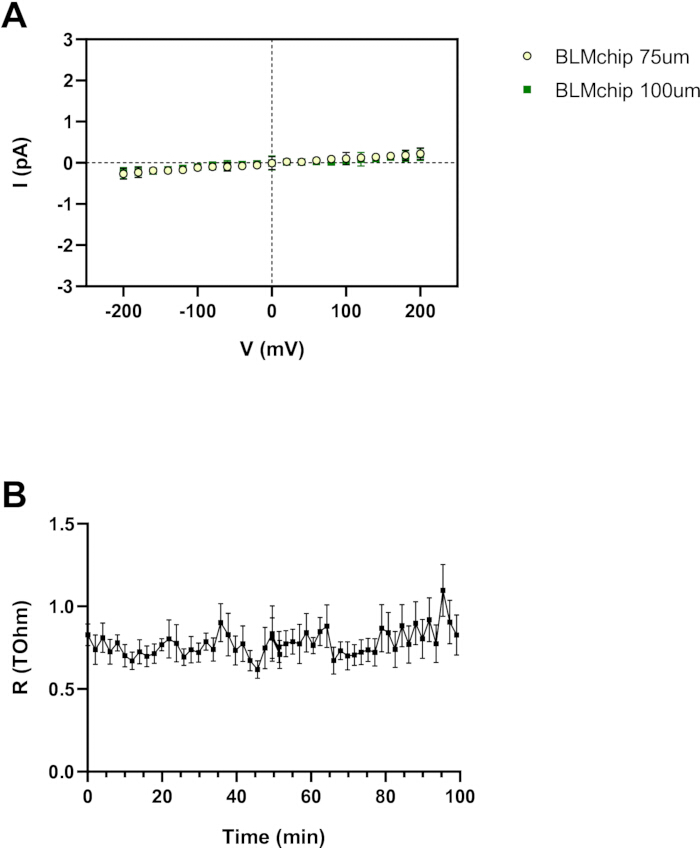
Figuur 8: Elektrische karakterisering van PLB's. (A) Stroom-spanningsrelaties (I–V) van dubbellagen gevormd op openingen van 75 µm en 100 µm, die een lineair (ohmisch) gedrag vertonen tussen ±200 mV. Lineaire regressie levert respectievelijk membraanweerstandswaarden op van 847 ± 16 GΩ (n = 6) en 980 ± 32 GΩ (n = 7). (B) Membraanstabiliteit beoordeeld door de weerstand gedurende 1 h te monitoren met intervallen van 2 min. Membranen blijven stabiel tot ±200 mV en scheuren bij spanningen tussen ±220 en ±300 mV. Gegevens worden weergegeven als gemiddelde ± standaardfout van het gemiddelde (SEM). Klik hier om een grotere versie van deze figuur te bekijken.
Initiële karakterisering van het single-channel gedrag van ancTREK1
Synthetisch ancTREK1 werd gezuiverd en gereconstitueerd in PLB's, en de single-channel activiteit werd gemonitord met voltage-stap protocollen variërend van −120 tot 120 mV in stappen van 20 mV. Single-channel opnames (Figuur 9A en Figuur 9B) onthulden het karakteristieke flikkergedrag van K2P kanalen38. Bij 80 mV was de gemiddelde stroomamplitude 13,02 ± 0,78 pA (n = 5), terwijl bij −80 mV de stroomamplitude toenam tot −18,72 ± 0,25 pA (n = 5) (Figuur 9C). De resulterende I–V-relatie toonde meetbare single-channel stromen bij zowel positieve als negatieve potentialen onder Mg2+-vrije symmetrische 200 mM kaliumomstandigheden (Figuur 9D). Omdat de stroomamplituden werden geschat op basis van all-point histogrammen van opnames verkregen bij 5 kHz en laagdoorlaatgefilterd bij 2,5 kHz, wordt deze I–V-relatie gepresenteerd als een beschrijvend bewijs van het principe in plaats van als een uitputtende biofysische karakterisering.
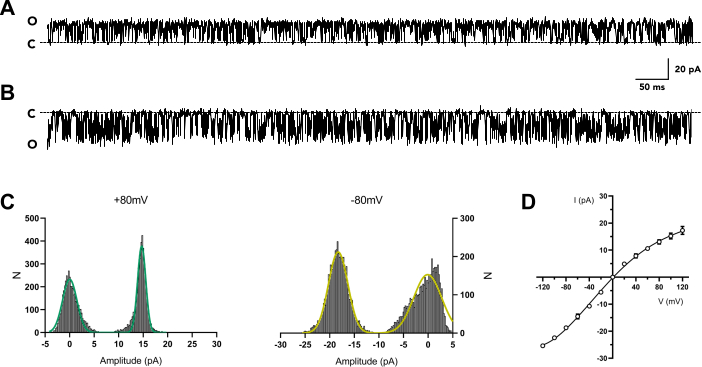
Figuur 9: Single-channel activiteit van synthetische ancTREK1. (A en B) Representatieve single-channel stroomregistraties opgenomen bij respectievelijk 80 mV en −80 mV. Gestippelde lijnen geven het niveau van het gesloten kanaal aan. (C) All-point amplitudehistogrammen voor positieve (links) en negatieve (rechts) potentialen. (D) I–V relatie van ancTREK1 onder symmetrische 200 mM kalium (K+) condities zonder tweewaardige kationen. De curve is gefit met een vierde-orde polynoom, en conductantie-waarden zijn afgeleid van de helling bij ±80 mV. Klik hier om een grotere versie van deze figuur te bekijken.
Hoewel ancTREK1 vergeleken met mammale TREK1-kanalen uitgebreide N- en C-terminale regio's mist, bleef het functioneel actief na reconstitutie. In tegenstelling tot mammalie TREK1, dat hoge- en lage-conductiemodi vertoont (respectievelijk 132 ± 5 pS en 41 ± 5 pS bij positieve potentialen)39, vertoonde ancTREK1 alleen de modus met grote conductie. De single-channel conductie bij positieve potentialen was 112,8 ± 10,8 pS (80 mV, n = 5), wat consistent is met gerapporteerde waarden voor TREK-kanalen (85–130 pS onder symmetrische kaliumcondities)38,39,40,41. Bij negatieve potentialen steeg de conductie tot 205,6 ± 2,05 pS (−80 mV, n = 5), in overeenstemming met eerder gerapporteerd TREK1-gedrag39. Opmerkelijk is dat ancTREK1 een hogere genormaliseerde openkans (NPo) vertoonde in vergelijking met TREK1-metingen verkregen met excised patch-configuraties42. De NPo–voltage-relatie toonde een toegenomen kanaalactiviteit bij positieve potentialen, waarbij een waarde van 0,78 ± 0,02 (n = 5) werd bereikt bij 80 mV. In contrast hiermee nam de NPo af bij negatieve potentialen, met waarden van 0,53 ± 0,04 bij −80 mV en 0,28 ± 0,03 bij −120 mV (Figuur 10).
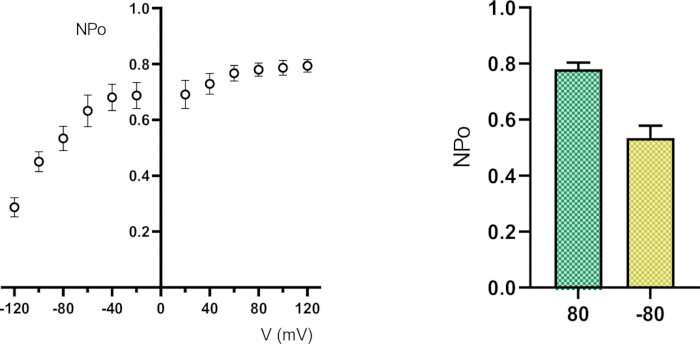
Figuur 10: Voltage-afhankelijkheidsanalyse van de single-channel activiteit van ancTREK1. Genormaliseerde openkans (NPo) als functie van het membraanpotentieel (links) en vergelijking van NPo bij 80 mV en −80 mV (rechts), waarbij een toegenomen kanaalopening bij positieve potentialen zichtbaar is. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur 1. Aminozuursequentie van het synthetische ancestrale tweeporiedomaine kalium (K2P)kanaal (ancTREK1). De volledige aminozuursequentie van ancTREK1 die werd gebruikt voor elektrofysiologische registraties. De sequentie is gereconstrueerd door middel van ancestrale sequentie-inferentie uit een gecureerde dataset van TREK/TRAAK-familieleden, inclusief orthologe sequenties verzameld uit UniProt- en NCBI-databases, gefilterd op geconserveerde poriemotieven, uitgelijnd en geanalyseerd met maximum-likelihood fylogenetica.Klik hier om dit bestand te downloaden.
Discussie
In deze studie hebben we de PLB-techniek gebruikt om de elektrofysiologische eigenschappen van een synthetisch K2P-kanaal op single-molecule niveau te evalueren. Van de verschillende planaire lipidemodellen die in de wetenschappelijke literatuur worden beschreven, hebben we uns gericht op de vorming van BLM's, die over een opening met een diameter tussen 50 en 140 µm worden aangebracht, geboord in een verticaal apolair oppervlak dat twee waterige compartimenten scheidt. Deze configuratie maakt simulatie van de celmembraanomgeving mogelijk, terwijl er controle behouden blijft over experimentele parameters, waaronder de preparatie van het lipidemembraan en de elektrolytensamenstelling (bijv. ionsterkte en pH)3. We hebben BLM's gerecreëerd met behulp van de Montal–Mueller (vouwings)methode5, waarbij het membraan spontaan assembleert wanneer twee lipidemonolagen, die eerder zijn verspreid op de lucht-waterinterface van de twee waterige oplossingen, zich over de opening verenigen door het waterniveau te verhogen.
Het hier gepresenteerde protocol voor membraanvorming is zeer intuïtief; desalniemeer beïnvloeden verschillende kritieke stappen het experimentele succes sterk. Om een goede elektrische verbinding tussen de BLMchipMM en de versterker te garanderen, is het essentieel om chlorering van de Ag/AgCl-draaduiteinden die in de PCB-sockets worden geplaatst, te vermijden. Tijdens de assemblage van de BLMchipMM kan een onjuiste positionering van de draden leiden tot contact met de behuizing van de versterker, wat resulteert in kortsluitingen en signaalverzadiging. De procedure voor de voorbehandeling van de opening is een andere kritieke factor: overmatige kracht bij het aanbrengen van de voorbehandelingsoplossing kan het polyimide septum beschadigen, terwijl onjuist gebruik van de elektrolytoplossing — in het bijzonder het weken van het gebied rond de opening — de membraanvorming kan belemmeren. Bovendien is een zorgvuldige reiniging van de registratiekamer van de BLMchipMM essentieel voor de reproduceerbaarheid. Het gebruik van 100% isopropylalcohol, gevolgd door grondig spoelen en volledig drogen, zorgt ervoor dat residuen volgende experimenten niet verstoren.
Verschillende modificaties van het protocol zijn mogelijk. Hoewel chlorering door weken in bleekmiddel een praktische en veelgebruikte aanpak is, kunnen alternatieve methoden zoals galvaniseren ook worden toegepast43. Op dezelfde manier zijn variaties in de voorbehandeling en lipidepreparatie haalbaar. Standaard voorbehandelingsoplossingen bestaan doorgaans uit langketenalkanen opgelost in vluchtige koolwaterstofoplosmiddelen36; hoewel een 1% hexadecaanoloplossing in n-hexaan algemeen wordt gebruikt, kunnen andere oplosmiddelen geschikt zijn. De lipidensamenstelling kan ook worden aangepast afhankelijk van de experimentele vereisten. Hoewel DPhPC-lipiden een optimale membraanstabiliteit bieden, kunnen alternatieve lipidemengsels, inclusief natuurlijke of synthetische samenstellingen, worden gebruikt36. Een belangrijk voordeel van verticale lipide-dubbellagen gevormd via de vouwmethode is de mogelijkheid om asymmetrische membranen te genereren, waarbij elke laag uit verschillende lipidesoorten bestaat5,22, een kenmerk waarvan bekend is dat het de functie van membraaneiwitten beïnvloedt.
Het oplossen van problemen bij de membraanvorming omvat over het algemeen aanpassingen van de niveaus van de waterfase. Als de membraanvorming aanvankelijk niet plaatsvindt, kan het herhaaldelijk verlagen en verhogen van het bufferniveau in één compartiment de assemblage van de dubbellaag faciliteren. Indien dit niet succesvol is, kan het aanbrengen van een luchtbel over de opening de redistributie van lipiden en de membraanvorming bevorderen. Aanhoudende mislukking duidt doorgaans op problemen met betrekking tot de voorbehandeling of contaminatie, in welk geval het reinigen van de opnamekamer en het opnieuw starten van het experiment wordt aanbevolen.
De kerncomponenten van deze opstelling bestaan uit de eNPR 100 kHz compacte versterker en de BLMchipMM. De versterker is een compact, ruisarm voltage-clamp systeem dat de noodzaak voor extra externe apparatuur, waaronder externe Faraday-kooien, wegneemt, aangezien de behuizing van de versterker zelf effectieve elektromagnetische afscherming biedt. De BLMchipMM is een vooraf geassembleerde, geminiaturiseerde registratiekamer die is geïntegreerd met een printplaat (PCB) voor directe verbinding met de versterker. Deze bestaat uit twee C-vormige compartimenten die gescheiden worden door een polyimideseptum met een taps toelopende, lasergeboorde opening waar het kunstmatige membraan wordt gevormd. De gereduceerde afmetingen van het systeem, met compartimentvolumes van ongeveer 110 µL, verminderen het reagensverbruik aanzienlijk en verlagen de intrinsieke capaciteit, waardoor de signaalkwaliteit wordt verbeterd. Bovendien kan het apparaat meerdere malen worden hergebruikt zonder demontage mits de juiste reinigingsprocedures worden gevolgd, wat de variabiliteit vermindert en de experimentele reproduceerbaarheid verhoogt.
Ondanks deze voordelen moeten enkele beperkingen in overweging worden genomen. De huidige opstelling bevat geen geïntegreerde modules voor temperatuur-, druk- of perfusiecontrole. Er is gemeld dat intrinsieke membraanspanning mechanosensitieve kanalen zoals TREK1 beïnvloedt44,45,46; echter bevat de huidige opstelling geen gecontroleerde manipulatie van de membraanspanning, en er worden hier geen mechanistische conclusies getrokken. Over het algemeen biedt dit platform een robuust en toegankelijk systeem voor het registreren van ionkanaalactiviteit in kunstmatige membranen. In deze studie hebben we het synthetische K2P-kanaal ancTREK1 onderzocht, een computationeel afgeleid ancestraal kanaal van de TREK-subfamilie. De geregistreerde gegevens tonen aan dat gezuiverd ancTREK1, gereconstitueerd in PLB's, een single-channel gedrag vertoont dat consistent is met de gerapporteerde TREK1-achtige conductantie-eigenschappen. Onder Mg2+-vrije symmetrische 200 mM kaliumcondities vertoont het kanaal de meetbare I–V relatie, met amplitudewaarden van ongeveer 13 pA bij 80 mV en −19 pA bij −80 mV. Daarnaast vertoont ancTREK1 de karakteristieke modus van hoge conductantie die wordt waargenomen in TREK1-kanalen, met een hogere conductantie bij negatieve potentialen (~205,6 pS) vergeleken met positieve potentialen (~112,8 pS). Opvallend is dat ancTREK1 een verhoogde NPo vertoont bij positieve potentialen (0,78 bij 80 mV) en een verlaagde NPo bij negatieve potentialen (0,53 bij −80 mV en 0,28 bij −120 mV), wat verschilt van waarnemingen in excised patch-configuraties42. Deze bevindingen ondersteunen het gebruik van dit systeem voor proof-of-principle single-channel registratie van gereconstitueerde membraaneiwitten.
Openbaarmakingen
F.T. en A.P. zijn respectievelijk de CEO en een werknemer van Elements S.r.l. Alle andere auteurs verklaren geen concurrerende belangen te hebben.
Dankbetuigingen
Wij danken Sofia Diletta Guzzeloni voor de hulp bij de celtransfectieprocedure. Wij zijn dankbaar aan de medewerkers van Elements, Dr. Leon Juarez en Dr. Michelangelo Paci. Dit werk werd ondersteund door het Department of Molecular Medicine van de Universiteit van Pavia, Italië, onder het initiatief Dipartimenti di Eccellenza (2023–2027), door de Cariplo Foundation (#2019-1809) en door het PNRR Research Programme CN00000013 “National Centre for HPC, Big Data and Quantum Computing” aan M.L.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1,2-diphytanoyl-sn-glycero-3-fosfocholine (DPhPC) | Avanti Polar Lipids | 850356P | Vorming van kunstmatige lipide dubbellagen |
| 2-propanol (≥99.5%) | Honeywell | 24137-5L | Reinigen van BLMchipMM-apparaat |
| Agarose | Fisher BioReagents | BP160-500 | Bereiding van agarosegels |
| Horizontaal agarosegelelektroforesesysteem | BTLabSystems | BT102 | Scheiding van DNA-fragmenten |
| Ampicilline | Fisher BioReagents | BP1760-25 | Selectie van getransformeerde bacteriën |
| Anti-GFP nanobody Sepharose-hars (zelfgemaakt) | — | — | Affiniteitszuivering van GFP-getagde eiwitten |
| Anza Alkalische Fosfatase | Invitrogen | IVGN2208 | Vector-defosforylering |
| Anza EcoRI | Invitrogen | IVGN0116 | Restrictiedigestie |
| Anza NotI | Invitrogen | IVGN0014 | Restrictie-digestie |
| Anza Rode Buffer (10×) | Invitrogen | IVGN2008 | Restrictie-digestiebuffer |
| Aprotinine protease-remmer | Fisher Scientific | 15996008 | Preventie van proteïnedegradatie |
| Benchtopcentrifuge | Eppendorf | EP5420000164 | Celpelletvorming en monstervoorbereiding |
| BLMchipMM | Elements s.r.l. | — | Vorming van planaire lipide dubbellagen |
| Cholesterylhemisuccinaat (CHS) | Anatrace | CH210 | Stabilisatie van membraaneiwitten |
| Coomassie Brilliant Blue | Sigma-Aldrich | 1125530025 | Eiwitkleuring |
| Gewone huishoudbleek | — | — | Chlorering van Ag-draden |
| DNase I | Sigma-Aldrich | 11284932001 | Reductie van de viscositeit van het lysaat |
| Dubbel gedestilleerd water | — | — | Bereiding van buffers en oplossingen |
| Ethanol (zuiver, 99,9%) | Girelli Alcool s.r.l. | — | Reiniging van Ag/AgCl-draden |
| Ethidiumbromide | Sigma-Aldrich | 1116080030 | DNA-kleuring |
| Zeer fijn schuurpapier | — | — | Verwijdering van de Ag/AgCl-coating van draden |
| eNPR 100 kHz versterker | Elements s.r.l. | — | Elektrofysiologische registraties |
| Gel-Out kit voor DNA-extractie uit agarose | A&Biotechnologie | 023-250 | DNA-zuivering |
| GeneRuler 1 kb DNA-ladder | Thermo Fisher Scientific | SM0311 | DNA-grootte referentie |
| Vrije stijl™ 293-F | Thermo Fisher Scientific | R79007 | Expressie van het ancTREK1-eiwit |
| HEPES (≥99.5%) | Sigma-Aldrich | H3375-500G | Bufferingsmiddel |
| Hexadecaan (≥99%) | Sigma-Aldrich | H6703-100ML | Voorbehandeling van de apertuur |
| Hexaan (≥99%) | Sigma-Aldrich | 139386-100ML | Lipide-oplosmiddel |
| Zelfgemaakt 5× DNA-laadkleurstof | — | — | Voorbereiding van DNA-monsters |
| Zelfgemaakt 6× Laemmli SDS-buffer (reducerend) | — | — | Voorbereiding van eiwitmonsters |
| Zelfgemaakte ontkleurolossing | — | — | Ontkleuren van SDS-PAGE-gels |
| Zelfgemaakte HRV-3C protease | — | — | Splitsing van fusie-eiwitten |
| Zelfgemaakte SDS-PAGE-runbuffer (10×) | — | — | SDS-PAGE-elektroforesebuffer |
| Imidazol | Alfa Aesar | A10221 | Elutie van His-getagde eiwitten |
| In-batch zuiveringskolommen | — | — | Workflows voor eiwitzuivering |
| Innova44 schudincubator | New Brunswick Innova | M1282 | Celcultuurgroei |
| KCl | Honeywell | 31248-1KG | Bereiding van elektrolyt en buffer |
| LB-bouillon (Lennox) | Condalab | 1231 | Bacteriële kweek |
| Leupeptine protease-remmer | Thermo Scientific | 78435 | Voorkomen van proteïnedegradatie |
| Magnesiumchloride-hexahydraat | Acros Organics | 447700010 | Buffercomponent |
| Nanodrop-spectrofotometer | DeNovix | DS-11 | DNA- en proteïnekwantificering |
| n-Dodecyl-β-D-maltoside (DDM) | NeoBiotech | NB-19-0056-25G | Solubilisatie van membraaneiwitten |
| Ni Sepharose High Performance Resin | Cytiva | 17526801 | IMAC-zuivering |
| Notebook (computer) | — | — | Instrumentbeheersing en gegevensverwerving |
| Optima LE-80K ultracentrifuge | Beckman | 365668 | Isolatie van membraanfracties |
| Pentaan (≥99%) | Sigma-Aldrich | 236705-100ML | Lipidoplosmiddel |
| Pepstatin A-proteaseremmer | Thermo Scientific | 78436 | Preventie van proteïnedegradatie |
| Phusion GC Buffer (5x)×) | Thermo Fisher Scientific | F519 | PCR-buffer |
| Phusion High-Fidelity DNA-polymerase | Thermo Fisher Scientific | F530S | PCR-amplificatie |
| PMSF-proteaseremmer | Thermo Scientific | 36978 | Eiwitbescherming tijdens lysis |
| Polyethylenimine (PEI) | Klinische wetenschappen | 24765-100 | Transfectiereagens |
| ProteinEle gegoten Tris-Glycine gel (4–20%) | TransGen Biotech | DG101-01-V2 | Eiwitscheiding |
| SDS-PAGE-gelelektroforesesysteem | Bio-Rad | 1658002FC | Proteïne-elektroforese |
| Natriumbutyraat | Fisher Scientific | A11079 | Versterker van eiwitexpressie |
| T4 DNA-ligase | Thermo Fisher Scientific | EL0011 | DNA-ligatie |
| T4 DNA-ligasebuffer (10×) | Thermo Fisher Scientific | B69 | Ligatiebuffer |
| Thermocycler (Mastercycler Nexus) | Eppendorf | 6331000025 | PCR-amplificatie |
| Tris-base | Sigma-Aldrich | T1503-1KG | Bufferbereiding |
| Tryptone-soja-agar met lecithine en polysorbaat 80 | HiMedia | M449-5KG | Bacteriële uitplating |
| Twee Ag-draden | Elements s.r.l. | — | Elektroden voor elektrofysiologie |
| Ultra-spin concentrator (50 kDa cutoff) | Merck Amicon | UFC8050 | Proteïneconcentratie |
| pEG BacMam-expressievector | Addgene | 160687 | Proteïne-expressie |
| USB-kabel | — | — | Verbinding tussen versterker en computer |
Referenties
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar