Dit protocol beschrijft de essentiële stappen voor de kweek van primaire T-cellen, waaronder hun isolatie, activatie, expansie en tijdelijke transfectie door mRNA-elektroporatie. Daarnaast worden een workflow en antilichaampanel voorgesteld voor flowcytometrische analyse van fenotype, activatiemarkers, levensvatbaarheid en chimere antigeenreceptor (CAR)-expressie.
Methodenartikel
Isolatie, cultivatie en tijdelijke transfectie van primaire menselijke T-cellen om chimerische antigeenreceptoren (CAR) T-cellen te genereren
In dit artikel
Samenvatting
Samenvatting
Om de effectiviteit en potentie van chimerische antigeenreceptor (CAR) T-cellen te beoordelen, is het essentieel om primaire menselijke T-cellen te isoleren, te activeren, uit te breiden, te karakteriseren en genetisch te modificeren. In vergelijking met gewone T-cellijnen kunnen primaire cellen een realistischer modelsysteem bieden, omdat ze zeer variabel zijn, in staat zijn tot T-cel-gemedieerde doding en kunnen differentiëren. Hier bieden we een stapsgewijs protocol voor alle essentiële stappen voor de kweek van primaire T-cellen, inclusief hun isolatie uit bloedproducten, activatie, in vitro-uitbreiding en tijdelijke transfectie. We beschrijven verschillen in expansiekinetiek en differentiatie van primaire T-cellen bij activatie met twee verschillende reagentia en bieden een antilichaampaneel voor flowcytometrische analyse van het fenotype en de activatietoestand van de T-cel. We bieden gedetailleerde instructies voor elektroporatie van menselijke T-cellen met mRNA dat codeert voor een CAR en het beoordelen van de kinetiek van CAR-expressie over de tijd. Dit protocol geeft aanbevelingen over ideale tijdspunten voor downstream potentie- en effectiviteitstests van CAR T-cellen en de invloed van verschillende hoeveelheden mRNA op signaalintensiteit. Gezien het tijdelijke karakter van deze methode biedt het een snelle en gemakkelijk te implementeren mogelijkheid om veel CAR-constructies parallel te testen en te vergelijken.
Inleiding
Primaire menselijke T-cellen vormen een fysiologisch relevant en veelzijdig model voor het bestuderen van T-celbiologie en voor de ontwikkeling en evaluatie van celtherapieën, waaronder CAR-engineering. In tegenstelling tot geïmmortaliseerde cellijnen weerspiegelen T-cellen afkomstig van gezonde donoren nauw de functionele diversiteit, activatietoestanden, fenotypische diversiteit en signaaldynamiek van T-cellen in vivo, wat een nauwkeurigere weergave van immuunresponsen en therapeutische prestatiesbiedt 1,2. Bovendien werd gerapporteerd dat de meest gebruikte Jurkat T-cellijn, die afkomstig is van lymfoblastische leukemie, genomische instabiliteit vertoonde bij langdurige kweek, een veelvoorkomend fenomeen bij cellijnen. 3 Hoewel T-cellijnen, inclusief reportercellijnen4, waardevolle hulpmiddelen kunnen zijn voor vroege screening en een snelle uitlezing mogelijk maken, weerspiegelt het gebruik van primaire T-cellen van patiënten de uiteindelijke toepassing nauwer. De beperkte beschikbaarheid en suboptimale kwaliteit van patiëntafgeleide T-cellen beperken echter vaak hun toepasbaarheid, vooral in de vroege stadia van preklinische productontwikkeling 5,6,7. Het gebruik van cellen van gezonde donoren minimaliseert de variabiliteit die door ziektegerelateerde immuunveranderingen en eerdere behandelingen wordt veroorzaakt en maakt een reproduceerbare beoordeling van T-celfunctie, activatie en transgenexpressie over meerdere donoren mogelijk.
Aangezien primaire T-cellen beschikbaar zijn, zijn protocollen voor isolatie, activatie en uitbreiding van primaire T-cellen essentiële voorwaarden voor hun genetische manipulatie en functionele assays. Veelvoorkomende activatiestrategieën maken gebruik van magnetische kralen die zijn gecoat met antilichamen, polymere reagentia met T-celagonisten, of oplosbare antilichaamformuleringen. Gewoonlijk bootsen activatiereagentia fysiologische T-celreceptor (TCR) activatie na via het CD3-complex en co-stimulerende signalering via CD28, wat lijkt op een sterkere activatie dan uitsluitend via CD38. Activatie met CD3/28-kralen maakt een nauwkeurige controle van de activatiesterkte en de korrel-tot-cel-verhouding mogelijk. Na een initiële stimulatiefase kunnen kralen worden verwijderd of in de kweek worden bewaard voor continue activatie. T-cellen zetten doorgaans drie tot vier weken snel uit voordat de celgroei vertraagt. TransAct daarentegen bevat een colloïdale polymeermatrix, en kan overtollige reagens eenvoudig worden verwijderd door centrifugatie en uitwisseling van het supernatant. Daarom biedt het een alternatief dat homogene activatie in cultuur mogelijk maakt en lijkt op T-celactivatie met een lagere stimulus vergeleken met CD3/28-kralen. Proliferatie wordt echter ongeveer twee weken geïnduceerd en is herstimulatie nodig voor langere expansieperiodes. Na de initiële activatie van T-cellen met een activeringsreagens worden T-cellen in vitro gekweekt en geëxplodeerd gedurende één tot vier weken voordat ze voor experimenten kunnen worden gebruikt. Opmerkelijk is dat het type activeringsreagens, de keuze van cytokines9, 10, 11 en de uitbreidingsperiode het absolute aantal T-cellen, het fenotype en de activatietoestand beïnvloeden. Typisch moeten optimale omstandigheden zoals reagentiaconcentratie, kweekdichtheid, cytokinesuppletie en expansietijd aanvankelijk worden getest en empirisch bepaald om robuuste proliferatie te bereiken zonder activatie-geïnduceerde celdood of T-celuitputting te veroorzaken. Hier geven we een vergelijking naast elkaar van twee verschillende activatieprotocollen en hun effect op de differentiatie en activatieprofiel van primaire menselijke T-cellen ter ondersteuning van beslissingen over de keuze van activeringsreagens en timing van experimenten.
Daarnaast stellen wij een flowcytometrisch panel voor, nuttig voor het analyseren van fenotypische samenstelling en activatiestatus van T-cellen, ter ondersteuning van experimentele planning. Voor genetische modificatie van primaire T-cellen vormt tijdelijke transfectie met elektroporatie van boodschapperribonucleïnezuur (mRNA) een veilig, efficiënt en flexibel alternatief voor virale transductie12. Hoewel lentivirale vectoren stabiele en langdurige expressie van transgenen mogelijk maken, vereisen ze complexe bioveiligheidsmaatregelen, integreren ze in het gastheergenoom en kunnen ze leiden tot variabele expressie afhankelijk van de integratieplaats. Daarnaast is de productie van lentivirale supernatanten, gevolgd door T-celtransductie en selectie van getransduceerde cellen, tijdrovend. Daarentegen maakt mRNA-elektroporatie snelle en tijdelijke expressie van doelgenen mogelijk zonder genomische integratie of virale componenten, waardoor de regulatorische last wordt verminderd en snelle en iteratieve tests van constructen mogelijk is. Dit is vooral voordelig voor vroege ontwikkelingsfasen, waarin meerdere CAR-kandidaten worden gescreend en geëvalueerd. In recente publicaties wordt transfectie met mRNA onderzocht als therapeutisch platform 13,14,15. Wij stellen voor dat transiënte transfectie met mRNA16 een eenvoudige aanpak is, vooral voor laboratoria zonder de mogelijkheid om lentiviraal werk uit te voeren in een biosafety level 2 (BSL-2) omgeving. Een zij-aan-zij vergelijking van verschillende activatieregimenten vóór lentivirale transductie is elders beschikbaar.17.
Dit protocol beschrijft de isolatie, activatie, cultivatie, expansie en tijdelijke transfectie van primaire menselijke T-cellen met behulp van anti-CD3/28-kralen of TransAct voor activatie en mRNA-elektroporatie voor tijdelijke CAR-expressie. De beschreven workflow maakt reproduceerbare generatie van functionele CAR T-cellen mogelijk, geschikt voor latere toepassingen zoals cytotoxiciteitstests, fenotypische karakterisering of in vitro modellering van adoptieve T-celtherapieën.
Protocol
Dit protocol volgt de ethische richtlijnen van de Medische Universiteit van Wenen. De ethische voorstellen werden goedgekeurd door de ethische commissie van de Medische Universiteit van Wenen (1087/2025 en 1198/2025).
1. Isolatie van primaire T-cellen uit bloedproducten
OPMERKING: Het uitgangsmateriaal kan volbloed, afereseproducten of leukocytenreductiekamers zijn. Houd het monster op 4 °C tot verwerking en begin de isolatie zo vroeg mogelijk, maar uiterlijk binnen 24 uur na het afnemen van het monster. Er zijn verschillende isolatiestrategieën beschikbaar voor T-celisolatie, waaronder negatieve en positieve selectie. Secties 1.1 en 1.2 introduceren twee verschillende protocollen om opties te bieden voor T-celisolatie. Het hanteren van bloedproducten moet plaatsvinden in een biologische veiligheidskast, waarbij het monster tijdens de verwerking op kamertemperatuur (RT) wordt gehouden.
- Isolatie van T-cellen door negatieve selectie met behulp van dichtheidsgradiëntcentrifugatie
- Volgens de instructies van de kit voeg je de vereiste hoeveelheid van de antistofcocktail per mL monster toe. Incubeer gedurende de gegeven tijd bij RT. Voor de voorgestelde menselijke T-celverrijkingskit: Gebruik 50 μL antistofcocktail per mL monster en incubeer 20 minuten bij RT (bijv. voeg voor 5 mL monster 250 μL antilichaamcocktail toe).
OPMERKING: Voor deze specifieke kit moet er een minimale hoeveelheid rode bloedcellen (RBC's) aanwezig zijn voor succesvolle T-celisolatie (de aanbevolen minimale verhouding is 100 rode bloedcellen per nucleaire cel). Dit is meestal het geval wanneer volbloed- of leukocytenreductiekamers als uitgangsmateriaal worden gebruikt. Voor het gebruik van een afereseproduct is deze isolatiestrategie mogelijk niet succesvol omdat de RBC-ratio doorgaans te laag is. Daarom wordt voorafgaande isolatie van perifere mononucleaire bloedcellen (PBMC's) gevolgd door een T-cel isolatiestap zoals beschreven in sectie 1.2 aanbevolen. - Bereid dichtheidsmedium (Ficoll, Pancoll of iets dergelijks) voor in een geschikte buis. Voor monstervolumes onder de 3 mL gebruik je 3 mL dichtheidsmedium (in een 15 mL centrifugatiebuis). Voor monstervolumes van 4 mL en meer gebruik je 15 mL dichtheidsmedium (in een 50 mL centrifugatiebuis).
- Aan het einde van de incubatietijd verdun je het monster met een gelijke hoeveelheid fosfaatgebakken zoutoplossing (PBS) met 2% foetaal rundereserum (FBS) en meng door te pipetten. Dit komt overeen met een verdunning van 1:2 (bijvoorbeeld 3 ml monster verdund met 3 ml PBS en 2% FBS). Laag het verdund monster zorgvuldig bovenop het dichtheidsmedium met behulp van een serologische pipet en pipethulp, waarbij de pipetsnelheid op een minimum is gezet.
- Houd de buis onder een hoek van 45° om het oppervlak van het dichtheidsmedium te vergroten en de lagen te ondersteunen.
- Centrifugeer het monster op 1.200 x g, RT, gedurende 20 minuten. Zet de rem van de centrifuge uit of zet hem op een minimum. Na centrifugatie moet er een witte laag zichtbaar zijn tussen het grensvlak van het dichtheidsmedium en het plasma. Deze witte, troebele ring bevat de gewenste T-cellen.
- Oogst de T-cellen door de laag zorgvuldig te verzamelen met een steriele transferpipet of een 2 mL serologische pipet, en ze over te brengen naar een verse buis. Verstoor de lagen zo min mogelijk om te voorkomen dat het dichtheidsmedium of plasma wordt overgedragen.
- Ga verder met sectie 1.3.
- Volgens de instructies van de kit voeg je de vereiste hoeveelheid van de antistofcocktail per mL monster toe. Incubeer gedurende de gegeven tijd bij RT. Voor de voorgestelde menselijke T-celverrijkingskit: Gebruik 50 μL antistofcocktail per mL monster en incubeer 20 minuten bij RT (bijv. voeg voor 5 mL monster 250 μL antilichaamcocktail toe).
- Isolatie van T-cellen door positieve selectie met behulp van een zwaartekrachtstroomkit
- Voer een dichtheidsgradiëntisolatiestap uit om PBMC's uit het monster te halen: bereid dichtheidsmedium voor volgens sectie 1.1.2. Verdun het monster met een gelijke hoeveelheid PBS met 2% FBS. Dit komt overeen met een verdunning van 1:2 (bijvoorbeeld 3 mL monster verdund met 3 mL PBS + 2% FBS).
- Laag het verdund monster zorgvuldig bovenop het dichtheidsmedium met behulp van een serologische pipet en pipethulp, waarbij de pipetsnelheid op een minimum is gezet. Houd de buis onder een hoek van 45° om het oppervlak van het dichtheidsmedium te vergroten en de lagen te ondersteunen.
- Centrifugeer op 400 x g, RT, gedurende 30 minuten met de rem uitgeschakeld of op een minimum gezet. Na centrifugatie moet een witte laag zichtbaar zijn op het grensvlak van het dichtheidsmedium en het plasma. Deze witte bewolkte ring bevat de PBMC's, omdat hun dichtheid lager is dan die van RBC's.
- Oogst PBMC's door zorgvuldig de witte, troebele laag te verzamelen en over te brengen naar een verse buis. Gebruik voor deze stap een steriele transferpipet of een 2 mL serologische pipet en verstoor de lagen zo min mogelijk.
- Was de verzamelde cellen: Voeg 20 mL PBS toe met 2% FBS. Tel de cellen en bereken het totale celaantal. Centrifugeer op 300 x g, 4 °C, gedurende 10 minuten, met de rem aangezet. Vanaf nu houd je de cellen op ijs en werk je met gekoelde reagentia.
- Pipette het supernatant eraf. De volgende berekeningen worden gebruikt voor maximaal 1 x 10 à7 cellen en kunnen dienovereenkomstig worden opgeschaald. Sussion de celpellet opnieuw in 80 μL PBS met 0,5% runderserumalbumine (BSA) en 2 mM ethyleendiamintetraazijnzuur (EDTA).
- Meng 10 μL CD4-microkorrels met 10 μL CD8-microkorrels. Voeg het kralenmengsel toe aan de opnieuw gesuspendeerde PBMC's. Meng goed en laat het 15 minuten incuberen op 4 °C.
- Plaats ondertussen de zwaartekrachtstroomkolom in het magnetisch veld van een geschikt scheidingsapparaat. Bereid de kolom voor door deze af te spoelen met 3 ml PBS met BSA en EDTA.
- Na de incubatiestap spoel je cellen door 2 ml PBS toe te voegen met BSA en EDTA. Centrifugeer op 300 x g, 4 °C, gedurende 10 minuten. Gooi supernatant weg en suspendeer cellen tot 10⁸ opnieuw in 500 μL PBS met BSA en EDTA.
- Breng de celsuspensie aan op de kolom. De gelabelde cellen worden in de kolom vastgehouden door het magnetische scheidingsapparaat. De doorstroming bevat ongelabelde cellen (CD4 en CD8 dubbel-negatieve PBMC's) en kan indien gewenst worden verzameld. Was de kolom 3x door hem te spoelen met 3 x 3 ml PBS met BSA en EDTA. Voeg een nieuwe buffer toe zodra de kolom leeg is.
- Om gelabelde cellen te elueren, verwijder je de zwaartekrachtstroomkolom van de magnetische scheider en plaats je de uitlaat boven een verse verzamelbuis. Pipetteer 5 ml PBS met BSA en EDTA op de kolom en duw vervolgens de zuiger stevig in de kolom om de cellen te elueren. Ga verder met sectie 1.3.
OPMERKING: Magnetische antilichaamkits zijn verkrijgbaar als pan T-celkits en voor specifieke T-cel subsets en kunnen zowel positieve als negatieve selectiekits zijn. In elk geval worden gelabelde cellen behouden door het magnetische scheidingsapparaat. Voor positieve selectie worden T-cellen (of hun subsets) gelabeld met magnetische kralen via hun cognate antilichaam. Voor negatieve selectie worden alle cellen die niet tot de gespecificeerde T-celpopulatie behoren gelabeld met magnetische kralen. T-cellen worden daarom gevonden in de doorstroom.
- Bevriezing van geïsoleerde T-cellen
- Was T-cellen met 20 ml PBS met 2% FBS. Centrifugeer op 300 x g, RT, gedurende 10 minuten. De rem kan weer worden ingeschakeld. Gooi het supernatant weg.
- Susselt cellen opnieuw in 5-10 mL PBS met 2% FBS. Om cellen direct voor kweek te gebruiken, ga je door met sectie 2.4. Om cellen te bevriezen, ga je verder met het volgende gedeelte.
OPMERKING: Invriezen van cellen is niet nodig als de geïsoleerde T-cellen direct worden gebruikt voor activatie en kweek. - Tel de resuspendeerde cellen en centrifugeer op 300 x g, 4 °C, gedurende 10 minuten. Bereken ondertussen het aantal cellen dat bevroren moet worden. Eén T-cel aliquot zou 5-20 x 106 cellen moeten bevatten. Bereid het vereiste aantal gelabelde cryo-buisjes voor evenals het vriesmedium (zie Tabel 1).
- Na centrifugatie gooi je het supernatant weg en pipetteer je de resterende vloeistof weg. Werk voortaan snel.
- Suspendeer de celpellet opnieuw in 1 mL voorgekoeld vriesmedium per aliquot (bijvoorbeeld, als vijf aliquots zijn bereid, de pellet opnieuw ophangen in 5 mL vriesmedium). Aliquot 1 mL cel suspensie in elk cryo-buisje. Bevries de cryo-buisjes onmiddellijk bij -80 °C.
OPMERKING: Invriezen in een gecontroleerd tempo wordt aanbevolen. Om dit te bereiken, gebruik je geschikte vriescontainers. Breng de cellen over in vloeibare stikstof na het invriezen bij -80 °C (bijvoorbeeld de volgende dag of binnen twee weken).
| Component | Eindconcentratie |
| Dimethylsulfoxide | 10% (v/v) |
| Foetaal Bovin Serum | 45% (v/v) |
| RPMI 1640 met fenolrood | 45% (v/v) |
Tabel 1: Samenstelling van het vriesmedium. Het vriesmedium wordt gebruikt om de celintegriteit en levensvatbaarheid tijdens het bevriezen en bewaren te behouden.
2. Ontdooiing, activatie en expansie van primaire T-cellen
- Voer alle stappen uit onder steriele werkomstandigheden met behulp van een biologische veiligheidskast.
- Prewarm Roswell Park Memorial Institute (RPMI) 1640 medium zonder toevoegingen bij 37 °C en doe 20 mL over in een centrifugebuis. Ontdooi een aliquot van bevroren T-cellen door de buis snel aan warm water te onderwerpen. Stop met ontdooien wanneer er nog een klein ijspelletje zichtbaar is in het cryo-flesje.
- Voeg onmiddellijk 1 mL voorverwarmde RPMI toe aan de celsuspensie en breng het voorzichtig over in de centrifugebuis. Spoel het cryo-buisje af met 1 ml RPMI. Vermijd extra ophangingsstappen, die de cellen aan schuifspanning zouden blootstellen.
- Centrifugeer cellen op 300 x g, RT, gedurende 5 minuten. Gooi het supernatant weg. Sussief de celpellet opnieuw in een volledig T-celmedium. Volledig T-celmedium bestaat uit RPMI 1640 met 10% FBS, 1% penicilline/streptomycine, 5 ng/mL Interleukine 7 (IL-7) en 10 ng/mL Interleukine 15 (IL-15) (zie Tabel 2).
- Tel de opnieuw opgehangen cellen. Zaadcellen in een volledig T-celmedium met een dichtheid van 1 x 10⁶ cellen /mL in een geschikte putplaat. Voeg de benodigde hoeveelheid activeringsreagens toe, zoals aangegeven in de betreffende handleiding. Om bijvoorbeeld 1 x 10⁶ cellen te activeren, zaad je cellen in 1 mL volledig T-celmedium in een 24-wells plaat. Voeg ofwel 25 μL CD3/28-kralen toe of 10 μL TransAct-reagens.
OPMERKING: Als cellen niet dicht genoeg zijn (d.w.z. het celaantal onder de 1 x 10⁶ cellen/mL), centrifugeer opnieuw onder dezelfde omstandigheden als voorheen. Suspendeer de pellet opnieuw in de juiste hoeveelheid volledig T-celmedium om een dichtheid van 1 x 10⁶ cellen /mL te bereiken. - Incubeer cellen bij 37 °C in een couveuse met een omgeving van 5%CO2 gedurende maximaal drie weken. Tel cellen elke 2-3 dagen en pas de dichtheid aan naar 0,3-0,5 x 10⁶ cellen /mL door vers volledig T-celmedium toe te voegen. De celdichtheid mag niet meer dan 1,5 x 10⁶ cellen /mL, aangezien primaire T-cellen mogelijk niet terugkeren naar de exponentiële groeifase als ze tot hoge dichtheden worden gekweekt.
OPMERKING: Vooral in de eerste dagen na activatie kunnen macroscopische celclusters zichtbaar zijn (zie Figuur 2D). Dit wordt verwacht, omdat cellen zich clusteren rond het activeringsreagens wanneer proliferatie wordt geïnitieerd. Over het algemeen zijn cellen ongeveer een week na activatie weer inzetklaar. De timing hangt echter af van de experimentele opstelling en het vereiste aantal cellen. Het wordt aanbevolen om T-cellen altijd binnen hetzelfde bereik te gebruiken na activatie voor biologische replicaten (d.w.z. 9-12 dagen na activatie).
| Component | Eindconcentratie |
| Foetaal Bovin Serum | 10% (v/v) |
| Interleukine 15 (IL-15) | 10 ng/mL |
| Interleukine 7 (IL-7) | 5 ng/mL |
| Penicilline/Streptomycine 10.000 U/mL | 1% (v/v) |
| RPMI 1640 met fenolrood | NA |
Tabel 2: Samenstelling van het volledige T-celmedium. Medium dat wordt gebruikt voor de kweek van primaire menselijke T-cellen na activatie.
3. Kleuring voor fenotype- en activatiemarkers
- Tel T-cellen. Gebruik 0,1 x 10 van6 cellen per kleuringsreactie. Bereken het benodigde volume celsuspensie en breng het over in een geschikte buis met een ronde bodem van polystyreen.
OPMERKING: Het aantal gekleurde cellen kan indien nodig worden teruggebracht tot minimaal 50.000 cellen. Het kleuren van meer cellen dan het vereiste aantal is mogelijk, zolang de antilichamen in een overschot van molaren zijn, zoals eerder beschreven18,19. - Was cellen één keer door direct 1 mL kleuringsbuffer toe te voegen, bestaande uit PBS met 0,5% FBS. Centrifugeer op 300 x g, 4 °C, gedurende 5 minuten. Vanaf nu houd je cellen op ijs en werk je met gekoelde reagentia.
- Bereid ondertussen één antilichaam-mastermix voor voor alle buizen zoals beschreven in Tabel 3. Verdun de antilichamen tot de uiteindelijke concentratie in kleuringsbuffer. De kleuring wordt uitgevoerd in een volume van 50 μL per buis. Mix bijvoorbeeld goed door vortexen.
OPMERKING: Dit protocol kan worden gecombineerd met andere kleuringsexperimenten, zoals de kleuring voor CAR-expressie zoals beschreven in sectie 6. Een levend/dood kleurverf kan worden toegevoegd om het gaten van levende cellen te bevorderen. In dit geval moeten de emissiespectra dienovereenkomstig worden gekozen om overlap met de andere gebruikte fluoroforen te voorkomen. - Na centrifugatie gooi je het supernatant weg en pipetteer je de resterende vloeistof weg. Suspendeer elke pellet opnieuw in 50 μL van de antistof-mastermix.
- Incubeer de buizen op 4 °C in het donker gedurende minstens 30 minuten. Deze broedstap kan tot enkele uren worden verlengd.
- Was cellen door 1 ml kleuringsbuffer direct aan de kleuringsreactie toe te voegen. Centrifugeer op 300 x g, 4 °C, gedurende 5 minuten en gooi het supernatant weg. Herhaal dit gedeelte onder dezelfde voorwaarden. Na de tweede wasbeurt gooi je het supernatant weg, waarbij je een kleine hoeveelheid residuele buffer in de buizen achterlaat om te voorkomen dat de cellen drogen.
- Houd de gekleurde cellen gepelleteerd en op ijs tot de meting. Suss de pellet opnieuw in 100 μL kleuringsbuffer vlak voor de meting.
OPMERKING: Dit protocol is geoptimaliseerd voor kleuring uitgevoerd in 5 mL rondbodembuizen. Kleuring in 96-wellplaten is ook mogelijk met een enigszins aangepast protocol. Omdat platen een lager werkvolume hebben, worden twee wasstappen van 200 μL aanbevolen vóór het kleuren. Als er meer dan 50 μL celsuspensie per put wordt gezaaid, verwijder pelletcellen en gooi het supernatant weg voordat je doorgaat met de wasstappen. Kleuring wordt ook uitgevoerd in 50 μL per put. Na het kleuren voert u drie in plaats van twee wasstappen uit met een 200 μL kleurbuffer. Centrifugatie wordt uitgevoerd met dezelfde instellingen als hierboven beschreven.
| Laserkleur | Laser λ (nm) | Emissiefilter | Filterbereik (nm) | Fluorescerende kleurstof | Antigeen | Laatste verdunning | Markertype |
| Violet | 405 | 450/45 | 427.5–472.5 | VioBlue | CD45 | 1:100 | Panleukocyt |
| Violet | 405 | 525/40 | 505–545 | VioGreen | CD69 | 1:50 | Activering |
| Violet | 405 | 610/20 | 600–620 | Vio Bright V600 | CD45RA | 1:100 | Fenotype |
| Blauw | 488 | 525/40 | 500–545 | FITC | CD8 | 1:100 | Fenotype |
| Blauw | 488 | 690/50 | 665–715 | PerCP–Vio 700 | CD154 | 1:50 | Activering |
| Geel/groen | 561 | 585/42 | 564–606 | PE | CD134 | 1:50 | Activering |
| Geel/groen | 561 | 675/30 | 660–690 | PE–Vio 670 | CD3 | 1:100 | Pan T-cel |
| Geel/groen | 561 | 780/60 | 750–810 | PE–Vio 770 | CD25 | 1:50 | Activering |
| Rood | 638 | 660/20 | 650–670 | APC | CD137 | 1:50 | Activering |
| Rood | 638 | 712/25 | 699.5–724.5 | Vio Bright R720 | CD62L | 1:100 | Fenotype |
| Rood | 638 | 780/60 | 750–810 | APC–Vio 770 | CD4 | 1:100 | Fenotype |
Tabel 3: Overzicht van het antistofpanel en voorgestelde fluoroforen voor analyse van primaire T-celexpressie van fenotype en activatiemarkers. Een flowcytometer met ten minste 4 lasers en de bijbehorende filteropstelling is nodig om dit experiment uit te voeren. Als de apparaatopstelling verschilt, moeten fluoroforen dienovereenkomstig worden aangepast.
4. In vitro transcriptie van CAR-coderend DNA om mRNA te genereren
- Ontwerp een geschikt DNA-sjabloon voor in vitro transcriptie (IVT) in mRNA. Voeg een T7-promotor voor de T7-RNA-polymerase, een Kozak-sequentie, een startcodon, een signaalpeptidesequentie, de gewenste CAR-sequentie en een stopcodon toe (Figuur 1).
OPMERKING: De Kozak-sequentie is een herkenningsmotief dat cruciaal is voor het initiëren van eiwittranslatie door de correcte assemblage van een startcodon door het ribosoom te ondersteunen. Het signaalpeptide is nodig voor de correcte verwerking van de CAR in de Golgi en opname in het plasmamembraan. Om CAR-expressie te detecteren, is het nuttig om een tag op het extracellulaire deel van de CAR toe te voegen (bijvoorbeeld een DYKDDDDK-tag of een MAP-tag). Sommige CAR's kunnen ook worden gedetecteerd met behulp van hun oplosbare, cognate antigeen geconjugeerd met een fluorofor, of antilichamen tegen andere veelvoorkomende structuren, zoals het scFv-linkerdomein (bijvoorbeeld anti-G4S-linkerantilichaam of anti-Whitlow-linkerantilichaam). - Versterk DNA door polymerasekettingreactie (PCR) met primers die het CAR-construct flankeren, inclusief de T7-promotor. Voor de IVT is 1 μg van het CAR-DNA nodig. Controleer de juiste lengte van het PCR-product door analytische agarosegelelektroforese uit te voeren. Zuiver het PCR-product door kolomzuivering met een PCR- en DNA-reinigingskit voordat je overgaat naar IVT. DNA kan worden opgeslagen bij -20 °C.
OPMERKING: Het kan voordelig zijn om 5-10 willekeurige nucleotiden in de primergebieden vóór en na het transcript toe te voegen om een betere binding van de polymerase te bereiken. Omdat een grote hoeveelheid DNA nodig is voor de IVT, kan het volume van de PCR-reactie dienovereenkomstig worden opgeschaald. - Gebruik een IVT-kit met een poly (A) tailingstap om polyadenyleerd mRNA te genereren. Voer IVT uit in een biologische veiligheidskast en maak oppervlakken grondig schoon met desinfectiemiddel. Volg de instructies van de kit om de IVT uit te voeren.
OPMERKING: Het verlengen van de transcriptiestap tot enkele uren kan de mRNA-opbrengst verhogen. De duur van de polyadenyleringsstap moet constant blijven over de monsters, omdat dit direct invloed heeft op de lengte van de poly (A) staart. Dit kan op zijn beurt de stabiliteit en expressie-efficiëntie van mRNA in vivobeïnvloeden. - Zuiver mRNA met een kolomgebaseerde RNA-cleanup kit en bepaal de concentratie van gezuiverd mRNA met een geschikt apparaat.
OPMERKING: Er zijn verschillende manieren om de kwaliteit van getranscribeerd mRNA te beoordelen, waaronder analytische gelelektroforese voor en na de poly (A) tailingstap en op absorptieratio-gebaseerde methoden voor het bepalen van de mRNA-concentratie. De aanbevolen A260/230-verhouding is 2,0-2,2; Waarden onder 1,8 duiden op besmetting en mogelijk slechte prestaties in expressietesten. Het belang van mRNA-modificaties en zuivering vóór elektroporatie wordt elders beschreven, 21,22,23. - Aliquot 3-5 μg gezuiverd mRNA (de uiteindelijke hoeveelheid mRNA die in experimenten voor één elektroporatie zal worden gebruikt) en opslag aliquots bij -80 °C. Vermijd herhaalde vries-dooicycli.

Figuur 1: Schematische weergave van de DNA-sjablooncomponenten die nodig zijn voor de generatie van een mRNA voor T-celtransfectie. Het sjabloon-DNA voor IVT moet een T7-promotor bevatten, de Kozak-sequentie, een startcodon gevolgd door een signaalpeptide om secretie van het eiwit naar de extracellulaire ruimte mogelijk te maken, de gewenste CAR-sequentie en een stopcodon. Afkortingen; mRNA = boodschapperribonucleïnezuur; DNA = deoxyribonucleïnezuur; CAR = chimere antigeenreceptor; IVT = in vitro transcriptie. Klik hier om een grotere versie van deze figuur te bekijken.
5. Tijdelijke transfectie van primaire T-cellen door mRNA-elektroporatie
- Verdun T-cellen één dag voor de transfectie tot een dichtheid van 0,3 x 10⁶ cellen /mL in een volledig T-celmedium (zie Tabel 2). De cellen moeten op de dag van transfectie in de exponentiële groeifase zitten (d.w.z. bij een dichtheid onder 1 x 10⁶ cellen/mL) voor een efficiënte CAR-expressie.
- Op de dag van de transfectie verwarm je alle benodigde media vooraf op 37 °C.
- Tel de T-cellen en bereken het benodigde volume. Gebruik 1-5 x 10à 6 cellen per CAR-mRNA.
OPMERKING: Het wordt aangeraden altijd een "MOCK"-transfectie op te nemen (d.w.z. T-cellen die de transfectieprocedure ondergaan, maar zonder mRNA toe te voegen). Deze cellen kunnen ook worden gebruikt als negatieve controles voor kleuring en experimenten. Houd het celaantal constant binnen een experiment. - Breng het benodigde volume T-cel suspensie over in een conische centrifugebuis. Centrifugeer op 300 x g, RT, voor 5 minuten. Gooi het supernatant weg. Alle centrifugatiestappen in de volgende secties worden onder deze omstandigheden herhaald.
OPMERKING: Als het vereiste volume de capaciteit van een enkele conische centrifugebuis overschrijdt, kan deze in gelijke delen worden gesplitst over twee of meer buizen. In dit geval wordt alle pellets opnieuw opgehangen in een totaal volume van 20 mL RPMI-medium en tijdens de eerste wasstap (sectie 5.6) gebundeld. - Bereid volledig T-celmedium voor in een geschikte putplaat voor het herstel van de T-cellen na de elektroporatie.
OPMERKING: Gebruik deze overwegingen voor de berekening: De cellen moeten na elektroporatie worden gezaaid met een dichtheid van ongeveer 0,5-1,0 x 10⁶ cellen/mL. Ongeveer een derde tot de helft van de cellen sterft af tijdens of na elektroporatie. Als bijvoorbeeld 2 x 10⁶ cellen per elektroporatie worden gebruikt, wordt verwacht dat er minimaal 1 x 10⁶ cellen overblijven. Om de vereiste celdichtheid te bereiken, gebruik je 2,0 mL volledig T-celmedium (in een plaat met 12 putten). Verwarm de plaat met het T-celmedium voor op 37 °C totdat elektroporatie is uitgevoerd. - Voer de eerste wasstap uit met 20 mL RPMI met fenolrood en zonder supplementen. Pipetteer RPMI bovenop de cellen, centrifugeer op 300 x g, RT, gedurende 5 minuten, en gooi supernatant weg.
- Voer de tweede wasstap uit met 20 ml RPMI zonder fenolrood en zonder supplementen zoals hierboven beschreven.
OPMERKING: Als T-cellen van meerdere donoren worden gebruikt voor elektroporatie, kunnen de cellen parallel worden voorbereid tot sectie 5.8. Gebruik slechts één T-celbatch voor de laatste wasstap (sectie 5.8). Laat de andere cellen pelleten zonder het supernatant weg te gooien en ga verder met de laatste wasstap wanneer de eerste ronde elektroporatie is voltooid. - Voer de derde wasstap uit met 20 mL gereduceerd serummedium zoals hierboven beschreven.
- Tijdens de laatste centrifugatiestap verzamel je alle benodigde mRNA-aliquoten uit de vriezer en bewaar je ze op ijs. Label de elektroporatiecuvetten en de plaat met het voorverwarmde medium.
- Stel de voorwaarden in op het elektroporatieapparaat. Hier wordt een Gene Pulser Xcell totaalsysteem gebruikt. De protocolinstellingen voor primaire T-cellen moeten zijn:
Vierkante Golf Protocol: Spanning: 500 V, aantal pulsen: 1, Pulslengte: 5 ms, Pulsinterval: 0, Cuvette diameter: 4 mm
OPMERKING: Dit protocol is geoptimaliseerd voor primaire T-cellen. Andere celtypen kunnen aanpassing van de instellingen vereisen, vooral de pulslengte. - Gooi supernatant grondig weg door de resterende vloeistof af te pipetteren zonder de pellet te verstoren. Suspensie de celpellet in 100 μL gereduceerd serummedium per elektroporatie (bijvoorbeeld, als er vijf elektroporaties worden uitgevoerd, hersuspendeer je de pellet in een totaal volume van 500 μL).
- Gebruik 100 μL van de T-celsuspensie en 3-5 μg van het mRNA per elektroporatie. Bereid maar één elektroporatie tegelijk voor. Voeg de T-cel-suspensie toe aan de mRNA-bevattende buis en meng voorzichtig. Vermijd pipetten op en neer. Werk voortaan snel.
OPMERKING: Het volume van het toegevoegde mRNA mag niet meer dan 10 μL bedragen. De hoeveelheid mRNA kan indien nodig worden aangepast. Bij het vergelijken van CAR's of experimenten wordt altijd hetzelfde aantal cellen en mRNA gebruikt voor elke elektroporatie. Dit is belangrijk, omdat de hoeveelheid mRNA direct gekoppeld is aan het expressieniveau van CAR (zie Figuur 5). - Breng de mRNA/T-celmix over naar een elektroporatiecuvet. Zorg ervoor dat de vering de onderkant van de cuvette bedekt. Pipetteer niet op en neer.
- Breng de cuvette met het mRNA/T-celmengsel snel over naar het elektroporatieapparaat en voer elektroporatie uit met de instellingen zoals voorbereid in sectie 5.11.
- Na elektroporatie wordt de T-cellen zorgvuldig teruggewonnen in voorverwarmd volledig T-celmedium door 100 μL medium van de putplaat aan de cuvette toe te voegen en vervolgens de cellen terug te brengen naar de plaat. Spoel de cuvette af met 100 μL medium.
OPMERKING: Cellen zijn gevoelig voor schuifspanning na elektroporatie. Vermijd herhaalde ophangingsstappen. - Herhaal secties 5.12 tot 5.15 voor alle mRNA-constructies.
- Incubeer getransfecteerde T-cellen bij 37 °C met 5%CO2. Als er een andere T-celbatch wordt bereid, ga dan nu door met sectie 5.8 met deze batch.
- Voer het betreffende experiment binnen 24 uur uit.
OPMERKING: CAR-expressie is al 3-6 uur na elektroporatie detecteerbaar. Piekexpressieniveaus en kinetiek kunnen afhangen van het mRNA-construct en moeten worden getest in voorlopige experimenten. Gedetailleerde protocollen die mogelijke downstream potentietests beschrijven, zoals de analyse van CAR T-celcytotoxiciteit of cytokinesecretieniveaus bij co-kweek met tumordoelcellen, zijn elders beschikbaar 23,24,25,26,27.
6. Analyse van CAR-expressie na elektroporatie
- 6-24 uur na elektroporatie, opnieuw suspenderen en T-cellen tellen. Gebruik 50.000-100.000 cellen per kleuringsreactie. Breng het benodigde volume celsuspensatie over naar een geschikte buis met een ronde bodem van polystyreen. De volgende secties kunnen buiten een biologische veiligheidskast worden uitgevoerd.
- Was cellen door 1 ml kleuringsmiddel toe te voegen, bestaande uit PBS met 0,5% FBS. Centrifugeer op 300 x g, 4 °C, gedurende 5 minuten. Vanaf nu houd je cellen op ijs en werk je met gekoelde reagentia.
- Bereid een meestermix voor met alle antistoffen die in het kleurpaneel zijn gebruikt. Voeg een antilichaam toe dat CAR-detectie mogelijk maakt (bijvoorbeeld via een geïntegreerde peptide-tag zoals een DYKDDDDK-tag). Verdun de antilichamen zoals aanbevolen in een uiteindelijk kleuringsvolume van 50 μL (bijvoorbeeld, om een verdunning van 1:50 te verkrijgen, wordt 1 μL antilichaam toegevoegd aan 49 μL buffer per buis).
OPMERKING: Kleuring voor CAR-expressie kan uitsluitend worden uitgevoerd met een CAR-detectieantilichaam of gecombineerd met fenotypische en activatiemarkerkleuring. Het antilichaam, evenals de geconjugeerde fluorofor, kunnen worden aangepast. Bij het uitwisselen van antilichamen en/of fluoroforen, moet men rekening houden met de respectievelijke excitatie- en emissiespectra. APC is compatibel met de voorgestelde 7-aminoactinomycine D (7-AAD) kleurstof voor gelijktijdige levensvatbaarheidskleuring. - Na centrifugatie wordt het supernatant grondig weggegooid door de resterende vloeistof af te pipetteren zonder de celpellet te verstoren. Suspendeer elke pellet opnieuw in 50 μL van het bereide antistofmengsel.
- Incubeer de buizen op 4 °C in het donker gedurende minstens 30 minuten. Deze broedstap kan tot enkele uren worden verlengd.
- Was de cellen door 1 ml kleuringsbuffer direct aan de buis toe te voegen. Centrifugeer op 300 x g, 4 °C, gedurende 5 minuten en gooi het supernatant grondig af door de restvloeistof af te pipetteren. Sussen de celpellets opnieuw in 100 μL kleuringsbuffer per buis.
- Voeg voordat je met de meting begint 2 μL 7-AAD oplossing toe aan de buizen en meng goed. Incubeer 10 minuten bij RT in het donker. Ga onmiddellijk meten.
OPMERKING: Incubeer cellen niet langer dan 15 minuten met 7-AAD, omdat dit de resultaten kan beïnvloeden. Om homogene incubatietijden te bereiken, overweeg 7-AAD toe te voegen, hetzij achtereenvolgens of in batches. Dit protocol is geoptimaliseerd voor kleuring uitgevoerd in 5 mL buizen met ronde bodem. Kleuring in 96-wellplaten kan ook worden uitgevoerd met een licht aangepast protocol. Omdat platen een lager werkvolume hebben (maximaal 250 μL), worden twee wasstappen met 200 μL buffer vóór het kleuren aanbevolen. Als er meer dan 50 μL cellen per put worden gezaaid, pellet dan de cellen en verwijder het supernatant voordat je doorgaat met de wasstappen. Kleuring wordt ook uitgevoerd in 50 μL per put. Na de incubatie voert u twee washes uit met een kleuringsbuffer van 200 μL. Centrifugatie wordt uitgevoerd met dezelfde instellingen als hierboven beschreven.
Resultaten
Activatie en uitbreiding van primaire menselijke T-cellen
Primaire T-cellen werden ontdooid en geactiveerd op dag 0 met CD3/28-kralen of TransAct, 23 dagen vergroot en elke 2-3 dagen geteld (Figuur 2A). Op teldagen werden de celdichtheden aangepast naar 0,3-0,5 x 10⁶ cellen/mL. Op dagen 0/2/5/9/14/20 werden T-cellen gebruikt voor flowcytometrische analyse om het fenotype en de expressie van activatiemarkers te beoordelen. Binnen de eerste week na activatie vermeerderden en breidden T-cellen zich snel uit met beide activeringsreagentia (Figuur 2B), met een iets lagere plooiexpansie in de daaropvolgende dagen voor T-cellen die door TransAct werden geactiveerd (Figuur 2C). Opmerkelijk is dat activatie van T-cellen ook zichtbaar was bij microscopische analyse, waarbij T-celclusters zich vormden rond de activeringsreagentia (Figuur 2D).
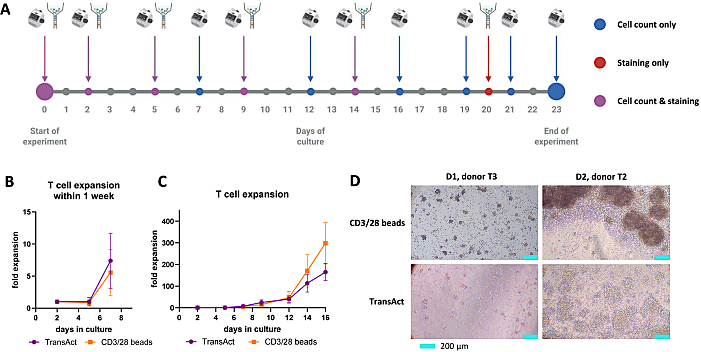
Figuur 2: Activatie en expansie van primaire T-cellen met behulp van twee verschillende activeringsreagentia. (A) Schematische weergave van de experimentele tijdlijn. Cellen werden op dag 0 geactiveerd met CD3/28-kralen of TransAct en 23 dagen gekweekt. Blauwe stippen geven dagen aan waarop de cellen zijn geteld, rode stippen dagen waarop de cellen zijn geanalyseerd met flowcytometrie, en paarse stippen dagen waarop beide analyses zijn uitgevoerd. (B) en (C) Uitbreiding van primaire T-cellen tijdens (B) de eerste week of (C) binnen 16 dagen na kweek. De waarden geven het gemiddelde ± standaarddeviatie weer van 4 (CD3/28 kralen) of 3 (TransAct) verschillende gezonde T-celdonoren. (D) Vertegenwoordigende microscopische beelden van geactiveerde T-cellen met zichtbare celclustering op dag 1 en 2 na activatie. Beelden werden gemaakt met een omgekeerde microscoop. De liniaal komt overeen met 200 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Kleuring van T-celfenotype en activatiemarkers
Voor flowcytometrische analyse werd de volgende gatingstrategie toegepast (Figuur 3): Een eerste gate (FSC-Height vs. SSC-Height) werd toegepast om celresten en -kralen te verwijderen, gevolgd door gating voor individuele cellen (FSC-Breedte vs. SSC-Area). Het percentage CD3+- cellen zou tussen de 98-100% moeten liggen. Verder sub-gating leverde het percentage CD4+ (helper) T-cellen en CD8+ (cytotoxische) T-cellen op, die verder werden gegated voor verschillende fenotypische T-celsubsets met behulp van de markers CD45RA en CD62L. CD3+ T-cellen werden daarnaast geanalyseerd op de expressie van activatiemarkers (CD25/CD69/CD134/CD137/CD154).
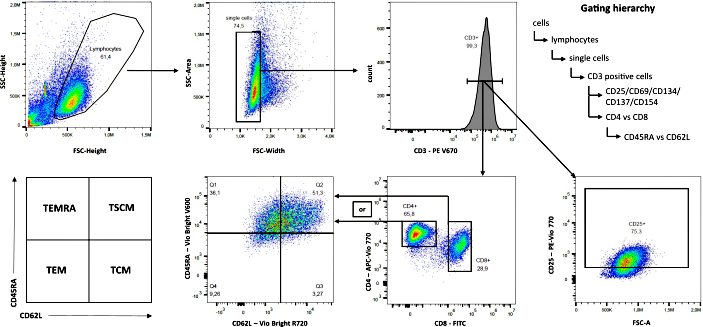
Figuur 3: Gate-strategie voor flowcytometrische analyse. Representative dot plots van één T-celdonor geactiveerd met CD3/28-kralen op dag 5 worden getoond (n = 4). Afkortingen; TEMRA = T-effectorgeheugencellen die CD45RA opnieuw uitdrukken; TSCM = stamcelachtige geheugen T-cellen; TEM = effectorgeheugen T-cellen; TCM = centrale geheugen T-cellen. Klik hier om een grotere versie van deze figuur te bekijken.
Na activatie met CD3/28-kralen nam het percentage CD4+ T-cellen ten opzichte van CD8+ T-cellen in de loop van de tijd af, met 74,3% (± 7,4%) CD4+ T-cellen op dag 5, wat daalde tot 14,6% (± 3,4%) op dag 20 na activatie. CD8+ T-cellen stegen van 20,7% (± 6,4%) op dag 5 naar 82,4% (± 3,1%) op dag 20 (Figuur 4A). Vergelijkbare trends werden vastgesteld na activatie met TransAct, met iets lagere percentages CD8+ T-cellen op dag 20 (72,5% ± 0,7%). Daarom kwam de iets langzamere T-celexpansie die na activatie met TransAct werd waargenomen overeen met een lager percentage CD8+ en een hoger percentage CD4+- cellen tijdens de expansieperiode. De verschillen in fenotypische samenstelling van T-cellen waren vergelijkbaar met beide activeringsreagentia (Figuur 4B). De frequenties van T-effectorgeheugencellen die CD45RA (TEMRA) herexpresseren waren echter over het algemeen hoger voor CD8+- cellen dan voor CD4+- cellen. Tegelijkertijd vertoonden CD4+ T-cellen hogere percentages centrale geheugen T-cellen (TCM) en stamcelachtige geheugen T-cellen (TSCM) (Figuur 4B).
CD134 was de enige activatiemarker die al was opgereguleerd na het ontdooien van T-cellen, met 37,6% (± 4,1%) CD134+ T-cellen geactiveerd met CD3/28-kralen en 36,1% (±4,4%) CD134+ T-cellen voor TransAct-geactiveerde T-cellen (Figuur 4C). In beide activatiestrategieën waren CD25, CD69 en CD134 op dag 2 sterk geupreguleerd. Voor CD3/28-kralen bereikte CD69 en CD134 hun piek op dag 2, terwijl CD25 piekte op dag 5. Vergelijkbare resultaten werden gezien voor TransAct-geactiveerde T-cellen. CD134 en CD154 werden alleen op dag 14 opgewaardeerd voor zowel CD3/28-kralen als TransAct-geactiveerde cellen. Over het algemeen waren de waargenomen trends zeer vergelijkbaar tussen de twee activeringsreagentia. De expressie van CD69 op dag 14 was echter iets hoger in CD3/28-geactiveerde T-cellen dan in TransAct-tegenhangers (97,1% ± 0,9% tegenover 86,5% ± 5,1%). Dit komt overeen met de langdurige hoge expansiesnelheid die wordt waargenomen bij CD3/28 bead-geactiveerde cellen. Samenvattend bevat het voorgestelde activatiemarkerpanel markers die zowel op vroege als latere tijdstippen na activatie worden opgereguleerd, met wisselende gevoeligheid tussen de verschillende activatiemarkers, maar over het algemeen vergelijkbare trends voor beide activeringsreagentia.
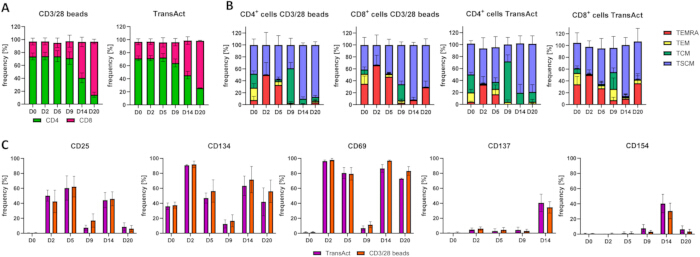
Figuur 4: Analyse van het fenotype van T-cel en de expressie van de activatiemarker met verschillende activeringsreagentia gedurende een kweekperiode van 20 dagen. (A) Percentages CD4+/CD8+ T-cellen tijdens de kweek na activatie met CD3/28-kralen (links) of TransAct (rechts). (B) Differentiatie van T-cellen na activatie met CD3/28-kralen (twee linker panelen) of TransAct (twee rechter panelen), elk voor CD4+ of CD8+ cellen. Het fenotype werd beoordeeld met behulp van de markers CD45RA en CD62L. TEMRA: CD45RA+ CD62L-, TEM: CD45RA- CD62L-, TCM: CD45RA-CD62L+, TSCM: CD45RA+ CD62L+. (C) Expressie van activatiemarkers na activatie met CD3/28-kralen of TransAct en tijdens de expansieperiode. Frequenties [%] van de ouderpopulatie CD3+ T-cellen worden getoond (gemiddelde ± standaarddeviatie van 4 [CD3/28 kralen] of 3 [TransAct] verschillende gezonde T-celdonoren). Afkortingen; TEMRA = T-effectorgeheugencellen die CD45RA opnieuw uitdrukken; TSCM = stamcelachtige geheugen T-cellen; TEM = effectorgeheugen T-cellen; TCM = centrale geheugen T-cellen. Klik hier om een grotere versie van deze figuur te bekijken.
Transiënte transfectie van primaire T-cellen en analyse van CAR-expressie
Primaire T-cellen werden op dag 7 na activatie met mRNA getransfecteerd door elektroporatie met CD3/28-kralen of TransAct. Als sjabloon werd mRNA gebruikt dat codeert voor een tweede generatie CAR gericht op chondroïtinesulfaatproteoglycan 4 (CSPG4) met een CD28 co-stimulerend en een CD3ζ signaaldomein. Er werd een DYKDDDDK-tag (vlag-tag) toegevoegd om flowcytometrische detectie mogelijk te maken. De levensvatbaarheid van T-cellen en de expressie van CAR werden beoordeeld 3, 6, 24 en 48 uur na elektroporatie. De kleuring werd uitgevoerd zoals beschreven in protocolsectie 6.
Hoewel de levensvatbaarheid van zowel CD3/28 kraal- als TransAct-geactiveerde T-cellen 3 uur na elektroporatie laag was, varieerde de levensvatbaarheid van getransfecteerde CAR T-cellen over het algemeen van 51-85% en verschilde niet significant tussen de twee activatiestrategieën (Figuur 5A). De CAR was al op dit vroege punt na elektroporatie detecteerbaar. Hoewel het percentage CAR+- cellen geleidelijk afnam in de loop van de tijd, was de hoogste frequentie van CAR+- cellen binnen 24 uur na elektroporatie detecteerbaar (Figuur 5B, linker paneel). Opmerkelijk is dat de signaalintensiteit binnen de eerste 6 uur na elektroporatie stabiel was en daarna geleidelijk afnam (Figuur 5B, rechter paneel). CAR-expressie was na 48 uur vrijwel afwezig, wat de tijdelijke aard van celmanipulatie en het belang van het kiezen van een vroeg tijdsvenster voor downstream assays aantoont. Representatieve dot plots voor CAR-expressie van één donor zijn weergegeven in Figuur 5C. Voor beide activeringsreagentia verschilde de CD4/CD8-verhouding niet tussen CAR- en MOCK-getransfecteerde cellen (Figuur 5D). In overeenstemming met onze eerdere resultaten vertoonden T-cellen die geactiveerd werden met CD3/28-kralen een iets hogere frequentie van CD8+ T-cellen dan cellen geactiveerd met TransAct. Voor de fenotypische analyse wordt één representatieve donor getoond vanwege grote donorafhankelijke variaties (Figuur 5E). Hoewel zowel het activeringsreagens als de CD4/CD8-toestand het fenotype van de T-cel beïnvloeden, veroorzaakt CAR-expressie geen verandering in fenotype vergeleken met MOCK-getransfecteerde cellen.
Om de invloed van mRNA-concentratie op expressieniveaus te beoordelen, werden primaire T-cellen getransfecteerd met mRNA dat codeert voor een mutante versie van GFP (muGFP) met 0,1, 0,3, 1, 3 of 6 μg mRNA. Het GFP-signaal werd 24 uur na elektroporatie gemeten met flowcytometrie. Zoals verwacht leidden al zo kleine hoeveelheden mRNA als 0,1 μg tot een detecteerbaar GFP-signaal, met een geleidelijke toename van de signaalintensiteit en toenemende mRNA-hoeveelheden. In onze experimenten was 1 μg mRNA al verzadigd, en grotere hoeveelheden (3 en 6 μg mRNA) leidden niet tot een verhoogd GFP-signaal (Figuur 5F). Dit benadrukt de mogelijkheid om verschillende hoeveelheden mRNA te gebruiken om expressieniveaus te titreren, wat gunstig kan zijn voor het testen van de invloed van verschillende CAR- of zelfs target antigeenexpressieniveaus28.
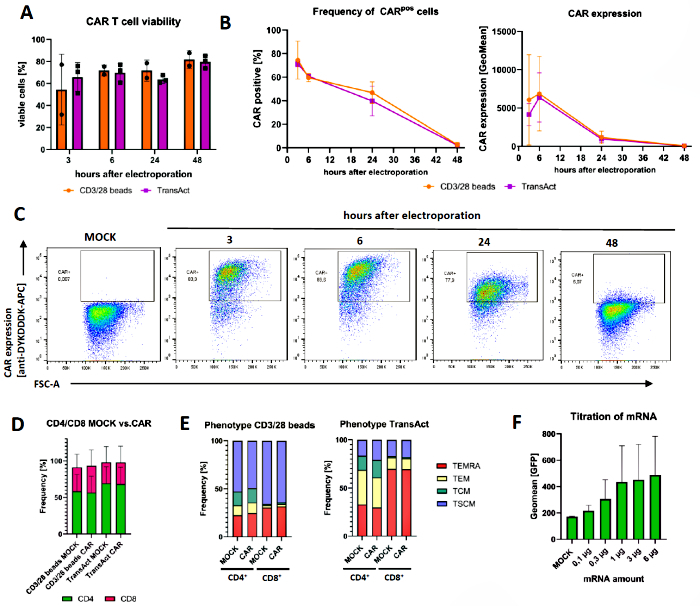
Figuur 5: Expressiekinetiek van CAR's en fenotypeanalyse van getransfecteerde CAR T-cellen. (A) Levensvatbaarheid van CAR T-cellen na elektroporatie met CAR-coderend mRNA. 2 μL 7-AAD in 100 μL kleuringsbuffer werd gebruikt om de levensvatbaarheid na 10 minuten incubatie te beoordelen. n = 2-3 individuele donoren (B) Kleuring voor CAR-expressie met een anti-DYKDDDDK-antilichaam (geconjugeerd met APC, 1:50 definitieve verdunning). Na het gaten op levensvatbare cellen werd ofwel het percentage CAR-positieve cellen in relatie tot MOCK-getransfecteerde controles (linker paneel) of de geometrische mediane fluorescentieintensiteit (GeoMean, rechter paneel) van de gehele populatie geanalyseerd. Getoond zijn gemiddelden van n = 3 individuele donoren ± S.D. (C) Representatieve dot plots van één donor uit (B) die de kinetiek van CAR-expressie over tijd aantonen. (D) Analyse van CD4+/CD8+ T-cellen en vergelijking van MOCK-getransfecteerd met CAR-getransfecteerde T-cellen en twee verschillende activatiestrategieën 24 uur na elektroporatie. Getoond worden gemiddelden van n = 3 individuele donoren ± S.D. (E) Fenotypische analyse van MOCK-getransfecteerde en CAR-getransfecteerde T-cellen, getoond in (B) 24 uur na elektroporatie. Getoond is één representatieve donor van n = 3. (F) Analyse van muGFP-expressie 24 uur na elektroporatie met verschillende hoeveelheden mRNA. Gating voor levende cellen werd uitgevoerd voordat het GeoGemiddelde voor GFP werd gekwantificeerd. Getoond worden gemiddelden van n = 3 donoren ± S.D. Afkortingen; CAR = chimere antigeenreceptor; mRNA = boodschapperribonucleïnezuur; 7-AAD = 7-aminoactinomycine; RT = kamertemperatuur; muGFP = mutant groen fluorescerende eiwit; S.D. = standaarddeviatie. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Isolatie en kweek van primaire menselijke T-cellen vormen de basis voor in vitro- en in vivo-studies. Het is goed vastgesteld dat bij activatie en in vitro-expansie T-cellen differentiëren tot een effector-achtig fenotype, en dat de keuze van cytokinesupplementen sterk invloed heeft op die differentiatie-lotgevallen9. CAR T-cellen gekweekt met IL-7 en IL-15 toonden verbeterde persistentie en betere anti-tumoractiviteit in muismodellen vergeleken met T-cellen die met IL-229 werden gegroeid. Daarom is de keuze van zowel activeringsreagentia als cytokinesupplementen belangrijk om T-cellen met het gewenste fenotype te verkrijgen. We vergeleken twee activeringsreagentia (CD3/28-kralen en TransAct), die de kinetiek, opbrengst en de CD4/CD8-verhouding verschillend beïnvloeden, over een expansieperiode van drie weken. Over het algemeen toonden T-cellen zich uit na activatie van CD3/28-pareltjes een hoger percentage CD8+ en lagere frequenties van CD4+-cellen dan na activatie van TransAct. Aangezien CD8⁺ T-cellen zich preferentieel differentiëren naar een effector-achtig TEMRA-fenotype, is reagentenselectie een belangrijke variabele die aansluit bij de doelen van het experiment. Naast fenotypische oppervlaktemarkers levert de upregulatie van activatiemarkers informatie op over de T-celtoestand en effectorfuncties. Zowel CD25 als CD69 zijn gevoelige activatiemarkers en worden doorgaans op vroege tijdstippen na activatie opgewaardeerd. Ze worden vaak gebruikt om activatie van T-cellen te beoordelen, maar ook van andere celtypen, zoals natuurlijke killer (NK) cellen 30,31,32. Daarentegen vertoonden de activatiemarkers CD137 en CD154 een lagere expressie in geëxploymeerde T-cellen, wat hun potentieel benadrukt om specifieke upregulatie in CAR T-cellen te beoordelen bij co-kweek met doelcellen. Opmerkelijk is dat bij het toepassen van het activatiemarkerpaneel om de activatieactiviteit van T-cellen te beoordelen bij co-kweek met doelcellen (d.w.z. tumorcellen), een zorgvuldige keuze van activatiemarkers vereist is om hoge achtergrondexpressie van deze markers op T-cellen te voorkomen, zelfs bij afwezigheid van doelcellen.
Bij het werken met primaire T-cellen moet men zich ervan bewust zijn dat hun uitbreidings- en differentiatieprofielen sterk afhankelijk zijn van donoren. Echter, opslag van het initiële monster bij 4 °C vóór de isolatie van de T-cel en een korte verwerkingstijd verbeteren de opbrengst en de kwaliteit van de geïsoleerde cellen. De levensvatbaarheid van cellen wordt beïnvloed door de duur van de bevriezings- en ontdooiprocessen, aangezien het vriesmedium cryoprotectiva bevat zoals dimethylsulfoxide (DMSO). Hoewel DMSO cruciaal is voor het behouden van cellulaire structuren bij het invriezen, is het toxisch voor cellen bij kamertemperatuur. Daarom is snelle behandeling en verdunning van DMSO na ontdooien vereist. Bij het elektroporeren van T-cellen zijn de cellen het meest gevoelig na de elektrische puls, die bedoeld is om de celwand doorlaatbaar te maken voor mRNA. Het zorgvuldig behandelen van de cellen door extra schuifstress te vermijden en te werken met voorverwarmde oplossingen kan het herstel en de levensvatbaarheid van de cellen aanzienlijk vergroten. Het kan voordelig zijn om een positief controle-mRNA toe te voegen, zoals een CAR met bekende expressie of een reportereiwit zoals GFP, bij het testen van een nieuw CAR-construct. Verder wordt aanbevolen om ten minste MOCK-getransfecteerde cellen (d.w.z. cellen die zonder mRNA zijn geëporeerd) als negatieve controle op te nemen. Voor functionele assays kan mRNA dat codeert voor een CAR gericht op een ander doel worden gebruikt om CAR-specifieke activatie te beoordelen.
Aangezien expressiekinetiek kan afhangen van de mRNA-sequentie, is het individueel beoordelen van de kinetica een waardevol hulpmiddel om het ideale tijdstip te kiezen voor de geleiding van downstream assays. Deze transfectiemethode is voornamelijk bedoeld als een snelle, eenvoudige manier om meerdere CAR-constructies parallel te screenen. Door de korte periode waarin de CAR op het oppervlak van de T-cel tot expressie komt, kunnen langdurige assays niet worden uitgevoerd. Echter, op basis van voorlopige transfectie-experimenten kan men het beste CAR-ontwerp bepalen om door te gaan naar virale transductie, indien gewenst.
Ten slotte kunnen antilichamen of hun geconjugeerde fluoroforen worden uitgewisseld om in de experimentele opstelling te passen. Het is echter cruciaal om de respectievelijke excitatie- en emissiespectra van de fluoroforen te overwegen om de resultaten betrouwbaar te interpreteren. Bovendien kan in voorlopige experimenten enkele kleuring met één antilichaam tegelijk worden uitgevoerd om een correcte compensatie van een meerkleurig paneel te waarborgen. Hoewel we geen spectrale compensatie voor het voorgestelde antistofpaneel vereisten, kan het nodig zijn om een compensatiematrix op te zetten wanneer het paneel wordt vervangen.
Het gepresenteerde IVT- en elektroporatieprotocol biedt een eenvoudig en flexibel alternatief voor virale transductie voor het introduceren van CAR-constructies in primaire menselijke T-cellen. Omdat het volledig afhankelijk is van RNA-gebaseerde levering, kan het worden uitgevoerd in laboratoria zonder toegang tot BSL-2-infrastructuur, wat de drempel voor CAR T-celonderzoek aanzienlijk verlaagt. Hoewel virale transductie zeer efficiënt is en voornamelijk wordt gebruikt in het CAR-veld, gaat het gepaard met veiligheidszorgen met betrekking tot genomische integratie, een mogelijke oorzaak van secundaire maligniteiten, evenals arbeids- en kostenintensieve productie33,34. Bovendien maakt het tijdelijke karakter van CAR-expressie deze benadering bijzonder geschikt voor snelle, parallelle screening van meerdere CAR-ontwerpen35, waardoor onderzoekers constructprestaties op een hoge doorvoermethode kunnen vergelijken. Het nadeel van deze methode is de beperkte tijd van de CAR-expressie, die meestal piekt rond 6-12 uur na elektroporatievan 22,24,35,36. Bij tijdelijke transfectie kunnen langdurige kweek, zoals herhaalde stimulatietests, niet worden uitgevoerd vanwege CAR-downregulatie. We raden echter aan om de meest veelbelovende CAR-constructie(s) met mRNA-elektroporatie te identificeren voordat we overstappen op stabiele expressiesystemen met een beperkt aantal kandidaten.
Elektroporatie van mRNA in primaire cellen is een veelzijdige technologie om eiwitten zoals antigenen tot expressie te brengen in verschillende celtypen, waaronder PBMC's, T-cellen, B-cellen, NK-cellen en dendritische cellen37. Opmerkelijk is dat een andere mogelijkheid voor tijdelijke CAR-afgifte lipide nanodeeltjes (LNP's)36,38 zijn, die de afgifte van CAR-coderende mRNA of DNA in T-cellen zonder virale vectoren mogelijk maken en integratievrije CAR-expressie mogelijk maken. Daarentegen bereikt het Sleeping Beauty transposonsysteem 39,40,41 stabiele integratie zonder de vereisten van virale componenten. De meest geschikte keuze voor T-celtransfectie of transductie hangt af van de beoogde toepassing en overwegingen voor schaalbaarheid en productie. mRNA-gebaseerde CAR T-cellen zijn met succes gebruikt in preklinische en klinische studies tegen diverse organismen, waaronder hematologische en solide maligniteiten en auto-immuunziekten 42,43,44. Tijdelijk tot expressie gedrukte CAR's bieden voordelen ten opzichte van stabiel gedrukte CAR's, omdat de beperkte oppervlakte-expressie bijwerkingen kan voorkomen of verminderen25.
Samenvattend biedt deze workflow een eenvoudig, stapsgewijs protocol voor de isolatie, activatie, cultivatie, analyse en transfectie van primaire T-cellen om CAR T-cellen te genereren. Het is eenvoudig te implementeren, vereist geen BSL-2 laboratoriumfaciliteiten en kan gemakkelijk worden geïntegreerd in laboratoria die zijn uitgerust met standaard moleculaire biologie en celkweekfaciliteiten.
Openbaarmakingen
De auteurs geven geen belangenconflict aan.
Dankbetuigingen
Dit werk werd ondersteund door het Oostenrijks Wetenschapsfonds (FWF Project ESP 465-B). Wij erkennen de kernfaciliteiten van de medische universiteit, de Flow Cytometrie-eenheid. We danken alle vrijwillige gezonde donoren voor hun deelname en monsterdonatie, en het verpleegkundige team voor hun steun.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1.5 mL Microcentrifuge Tubes, High Performance | VWR | 525-1164 | |
| 12-well plates, flat bottom, TC-treated | VWR | 734-2324 | |
| 24-well plates, flat bottom, TC-treated | VWR | 734-2325 | |
| 6-well plates, flat bottom, TC-treated | VWR | 734-2323 | |
| 7-AAD staining solution | Miltenyi Biotec | 130-111-568 | |
| Anti-Flag DYKDDDDK Antibody, APC, REAfinity | Miltenyi Biotec | 130-119-584 | |
| BD FACSCanto II Clinical Flow Cytometry System | BD Biosciences | FACSCanto II | |
| Bovine Serum Albumin | Merck | A4503-10G | Voor zwaartekrachtafscheiding |
| CD134 (OX40) Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-126-048 | Conjugaat: PE |
| CD137 (4-1BB) Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-110-764 | Conjugaat: APC |
| CD154 (CD40L) Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-114-142 | Conjugaat: PerCP-VIO 700 |
| CD25 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-114-541 | Conjugaat: PE-Vio 770 |
| CD3 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-132-352 | Conjugaat: PE-Vio 670 |
| CD4 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-113-223 | Conjugaat: APC-Vio 770 |
| CD4 MicroBeads, human | Miltenyi Biotec | 130-045-101 | Voor zwaartekrachtafscheiding |
| CD45 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-110-775 | Conjugaat: VioBlue |
| CD45RA Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-132-270 | Conjugaat: Vio Bright V600 |
| CD62L Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-127-499 | Conjugaat: Vio Bright R720 |
| CD69 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-112-800 | Conjugaat: VioGreen |
| CD8 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-110-677 | Conjugaat: FITC |
| CD8 MicroBeads, human | Miltenyi Biotec | 130-045-201 | Voor zwaartekrachtafscheiding |
| Cellstar 96 Well Suspension Culture Plate, U-bottom | Greiner Bio-one | 650 185 | |
| Centrifuge 5810 R | Eppendorf | 5811000015 | |
| CO2 incubator ICO150 | Memmert | ICO150 | |
| CoolNat Ice Machine | Ziegra Eismaschinen GmbH | ZBE 30-10 | |
| Corning CoolCell Freezer Container | Corning | CLS432000 | |
| Counting chamber, Bürker-Türk pattern, BLAUBRAND | Brand | 719520 | |
| CryoPure tubes, 2 mL, QuickSeal screw cap | Sarstedt | 72,380 | |
| CytoFLEX LX Flow Cytometer | Beckmann Coulter | C11185 | |
| Deoxynucleotide (dNTP) Solution Mix | New England Biolabs | N0447S | |
| Dimethyl sulfoxide (DMSO) Cell culture grade | AppliChem | A3672 | |
| DPBS, no calcium, no magnesium | Gibco | 14190-144 | |
| Dynabeads Human T-Activator CD3/CD28 | Gibco | 11131D | |
| Electroporation Cuvettes with 4 mm gap size, yellow cap | VWR | 732-1137 | |
| Eppendorf Research plus pipette, 0.1–2.5 µL | Eppendorf | 3123000012 | |
| Eppendorf Research plus pipette, 100–1000 µL | Eppendorf | 3123000063 | |
| Eppendorf Research plus pipette, 2–20 µL | Eppendorf | 3123000039 | |
| Eppendorf Research plus pipette, 20–200 µL | Eppendorf | 3123000055 | |
| Ethylenediaminetetraacetic acid (EDTA) | Merck | E6758-100G | Voor zwaartekrachtafscheiding |
| Falcon 15 mL PP Centrifuge Tube, Conical Bottom | Corning | 352196 | |
| Falcon 5 mL Round Bottom Polystyrene Test Tube | Corning | 352008 | |
| Falcon 50 mL PP Centrifuge Tube, Conical Bottom | Corning | 325098 | |
| Fetal Bovine Serum, Value FBS | Gibco | A52567-01 | |
| Ficoll PM 400 | Sigma-Aldrich | F4375-10G | Voor dichtheidsgradiëntafscheiding |
| Fisherbrand Sterile Graduated Transfer Pipets | Fisher Scientific | 13469108 | |
| Gene Pulser Xcell Total System | BioRad | 1652660 | met PC Module en CE Module |
| HiScribe T7 ARCA mRNA Kit (met tailing) | New England Biolabs | E2060S | |
| Human IL-15, research grade | Miltenyi Biotec | 130-093-955 | |
| Human IL-7, research grade | Miltenyi Biotec | 130-095-367 | |
| Integra Biosciences Corp PIPETBOY acu 2 pipet aid | Fisher Scientific | NC0085685 | |
| LE Agarose | Biozym | 840004 | |
| LS Columns | Miltenyi Biotec | 130-042-401 | Voor zwaartekrachtafscheiding |
| Microplate, 96 well, PS, V-bottom, clear, non-binding | Greiner Bio-one | 651901 | |
| Monarch RNA Cleanup Kit (50 μg) | New England Biolabs | T2040S |
Referenties
- Bartelt, R. R., Cruz-Orcutt, N., Collins, M., Houtman, J. C. Comparison of T cell receptor-induced proximal signaling and downstream functions in immortalized and primary T cells. PLoS One. 4 (5), e5430(2009).
- Smeets, R. L., et al. Molecular pathway profiling of T lymphocyte signal transduction pathways; Th1 and Th2 genomic fingerprints are defined by TCR and CD28-mediated signaling. BMC Immunol. 13 (12), (2012).
- Wilson, A., et al. Jurkat T-cell lines exhibit marked genomic instability affecting karyotype, mutational profile, gene expression, immunophenotype and function. Sci Rep. 15 (1), 22426(2025).
- Dobersberger, M., et al. An engineering strategy to target activated EGFR with CAR T cells. Cell Rep Methods. 4 (4), 100728(2024).
- Van Bruggen, J. A. C., et al. Chronic lymphocytic leukemia cells impair mitochondrial fitness in CD8+ T cells and impede CAR T-cell efficacy. Blood. 134 (1), 44-58 (2019).
- Hoffmann, J. M., et al. Differences in expansion potential of naive chimeric antigen receptor T cells from healthy donors and untreated chronic lymphocytic leukemia patients. Front Immunol. 8 (1956), (2017).
- Zhang, D. K. Y., et al. Enhancing CAR-T cell functionality in a patient-specific manner. Nat Commun. 14 (1), 506(2023).
- Li, Y., Kurlander, R. J. Comparison of anti-CD3 and anti-CD28-coated beads with soluble anti-CD3 for expanding human T cells: differing impact on CD8 T cell phenotype and responsiveness to restimulation. J Transl Med. 8 (104), (2010).
- Xu, X. J., et al. Multiparameter comparative analysis reveals differential impacts of various cytokines on CART cell phenotype and function ex vivo and in vivo. Oncotarget. 7 (50), 82354-82368 (2016).
- Cornish, G. H., Sinclair, L. V., Cantrell, D. A. Differential regulation of T-cell growth by IL-2 and IL-15. Blood. 108 (2), 600-608 (2006).
- Zhou, J., et al. Chimeric antigen receptor T (CAR-T) cells expanded with IL-7/IL-15 mediate superior antitumor effects. Protein Cell. 10 (10), 764-769 (2019).
- Foster, J. B., Barrett, D. M., Kariko, K. The emerging role of in vitro-transcribed mRNA in adoptive T cell immunotherapy. Mol Ther. 27 (4), 747-756 (2019).
- Becker, S. A., et al. Enhancing the effectiveness of gammadelta T cells by mRNA transfection of chimeric antigen receptors or bispecific T cell engagers. Mol Ther Oncolytics. 29, 145-157 (2023).
- Wiesinger, M., et al. Clinical-scale production of CAR-T cells for the treatment of melanoma patients by mRNA transfection of a CSPG4-specific CAR under full GMP compliance. Cancers (Basel). 11 (8), 1198(2019).
- Wu, J., Wu, W., Zhou, B., Li, B. Chimeric antigen receptor therapy meets mRNA technology. Trends Biotechnol. 42 (2), 228-240 (2024).
- Sahin, U., Kariko, K., Tureci, O. mRNA-based therapeutics--developing a new class of drugs. Nat Rev Drug Discov. 13 (10), 759-780 (2014).
- Underwood, S., et al. T cell activators exhibit distinct downstream effects on chimeric antigen receptor T cell phenotype and function. Immunohorizons. 8 (6), 404-414 (2024).
- Zajc, C. U., Teufl, M., Traxlmayr, M. W. Affinity and stability analysis of yeast displayed proteins. Methods Mol Biol. 2491, 155-173 (2022).
- Seigner, J., et al. Solving the mystery of the FMC63-CD19 affinity. Sci Rep. 13 (1), 23024(2023).
- Jalkanen, A. L., Coleman, S. J., Wilusz, J. Determinants and implications of mRNA poly(A) tail size--does this protein make my tail look big. Semin Cell Dev Biol. 34, 24-32 (2014).
- Foster, J. B., et al. Purification of mRNA encoding a chimeric antigen receptor is critical for the generation of a robust T-Cell response. Hum Gene Ther. 30 (2), 168-178 (2019).
- Kitte, R., et al. Optimal chimeric antigen receptor (CAR)-mRNA for transient CAR T cell generation. Int J Mol Sci. 26 (3), 965(2025).
- Kiesgen, S., Messinger, J. C., Chintala, N. K., Tano, Z., Adusumilli, P. S. Comparative analysis of assays to measure CAR T-cell-mediated cytotoxicity. Nat Protoc. 16 (3), 1331-1342 (2021).
- Hu, L., et al. A nonviral approach to generate transient chimeric antigen receptor T cells using mRNA for cancer immunotherapy. J Vis Exp. (216), e67548(2025).
- Foster, J. B., et al. Transient mRNA CAR T cells targeting GD2 provide dose-adjusted efficacy against diffuse midline glioma and high grade glioma models. Neuro Oncol. 27 (10), 2684-2696 (2025).
- Usheva, Z. I., Petersen, D. L., Barington, T., Mouritzen, P., Barnkob, M. B. Droplet-based cytotoxicity assay to assess chimeric antigen receptor T cells at the single-cell level. J Vis Exp. (217), e67657(2025).
- Subham, S., et al. Rapid in vitro cytotoxicity evaluation of Jurkat expressing chimeric antigen receptor using fluorescent imaging. J Vis Exp. (200), e65560(2023).
- Zhao, Y., et al. High-efficiency transfection of primary human and mouse T lymphocytes using RNA electroporation. Mol Ther. 13 (1), 151-159 (2006).
- Xu, Y., et al. Closely related T-memory stem cells correlate with in vivo expansion of CAR.CD19-T cells and are preserved by IL-7 and IL-15. Blood. 123 (24), 3750-3759 (2014).
- Clausen, J., et al. Functional significance of the activation-associated receptors CD25 and CD69 on human NK-cells and NK-like T-cells. Immunobiology. 207 (2), 85-93 (2003).
- Poloni, C., et al. T-cell activation-induced marker assays in health and disease. Immunol Cell Biol. 101 (6), 491-503 (2023).
- Rotta, G., et al. Protocol for flow cytometry immunophenotyping of human antigen-specific T cells by activation-induced marker and Th1 cytokine detection. STAR Protoc. 6 (1), 103343(2025).
- Elsallab, M., et al. Second primary malignancies after commercial CAR T-cell therapy: analysis of the FDA adverse events reporting system. Blood. 143 (20), 2099-2105 (2024).
- Verdun, N., Marks, P. Secondary cancers after chimeric antigen receptor T-cell therapy. N Engl J Med. 390 (7), 584-586 (2024).
- Krug, C., et al. Stability and activity of MCSP-specific chimeric antigen receptors (CARs) depend on the scFv antigen-binding domain and the protein backbone. Cancer Immunol Immunother. 64 (12), 1623-1635 (2015).
- Kitte, R., et al. Lipid nanoparticles outperform electroporation in mRNA-based CAR T cell engineering. Mol Ther Methods Clin Dev. 31, 101139(2023).
- Sauerer, T., et al. Electroporation of mRNA as a universal technology platform to transfect a variety of primary cells with antigens and functional proteins. Methods Mol Biol. 2786, 219-235 (2024).
- Bimbo, J. F., et al. T cell-specific non-viral DNA delivery and in vivo CAR-T generation using targeted lipid nanoparticles. J Immunother Cancer. 13 (7), (2025).
- Hudecek, M., et al. Going non-viral: the Sleeping Beauty transposon system breaks on through to the clinical side. Crit Rev Biochem Mol Biol. 52 (4), 355-380 (2017).
- Prommersberger, S., et al. Minicircles for CAR T cell production by sleeping beauty transposition: a technological overview. Methods Mol Biol. 2521, 25-39 (2022).
- Aronovich, E. L., McIvor, R. S., Hackett, P. B. The Sleeping Beauty transposon system: a non-viral vector for gene therapy. Hum Mol Genet. 20 (R1), R14-R20 (2011).
- Soundara Rajan, T., Gugliandolo, A., Bramanti, P., Mazzon, E. In vitro-Transcribed mRNA chimeric antigen receptor T cell (IVT mRNA CAR T) therapy in hematologic and solid tumor management: A preclinical update. Int J Mol Sci. 21 (18), (2020).
- Granit, V., et al. Safety and clinical activity of autologous RNA chimeric antigen receptor T-cell therapy in myasthenia gravis (MG-001): a prospective, multicentre, open-label, non-randomised phase 1b/2a study. Lancet Neurol. 22 (7), 578-590 (2023).
- Dagher, O. K., et al. Preclinical efficacy of multi-targeting mRNA-based CAR T cell therapy in resection models of glioblastoma. Mol Ther Nucleic Acids. 36 (3), 102676(2025).
Herprints en machtigingen
