Dit protocol beschrijft een methode voor het produceren en evalueren van de antimicrobiële activiteit en cytotoxiciteit van het kationische peptide Mel4 en het peptide-nabootser RK758. Door chemische synthese, recombinante expressie en gestandaardiseerde functionele assays te integreren, biedt het een gestroomlijnde workflow voor de productie en het testen van peptiden en kleinmolecuul-imitaties.
Methodenartikel
Productie en testen van antimicrobiële peptiden en hun nabootsers
In dit artikel
Samenvatting
Samenvatting
Antimicrobiële peptiden (AMP's) en hun synthetische nabootsers komen naar voren als veelbelovende alternatieven voor conventionele antibiotica, vooral als reactie op de groeiende dreiging van antimicrobiële resistentie. Natuurlijk voorkomende AMP's zijn essentiële componenten van het aangeboren immuunsysteem en vertonen een breed spectrum tegen diverse microbiële pathogenen, terwijl hun synthetische nabootsen, waaronder peptidomimetica en polymeer-gebaseerde analogen, zijn ontworpen om de stabiliteit te verbeteren, toxiciteit te verminderen en de farmacokinetiek te verbeteren. Deze studie heeft als doel de productie, karakterisering en biologische evaluatie van AMPs en kleinmolecuulpeptide-imitatoren aan te tonen. AMP's worden gegenereerd met behulp van recombinante expressiesystemen of de synthese van vaste fase peptiden, waardoor nauwkeurige controle over aminozuursequenties en structurele eigenschappen mogelijk is. Kleine moleculepeptide-mimics worden gesynthetiseerd met chemische strategieën, waaronder een anthraniliczuur (2-aminobenzoëzuur) steiger om de structurele stabiliteit en farmacologische prestaties te verbeteren. Na synthese worden verbindingen gezuiverd en chemisch gekarakteriseerd voordat biologische tests plaatsvinden. Antimicrobiële activiteit wordt geëvalueerd met behulp van in vitro minimale inhibitorische concentratie (MIC) assays, en cytotoxiciteit wordt beoordeeld aan zoogdiercellijnen om selectiviteit te bepalen. Representatieve resultaten tonen aan dat zowel AMP's als hun mimics krachtige activiteit vertonen tegen Klebsiella pneumoniae en Escherichia coli, wat hun breedspectrum antibacteriële potentieel benadrukt. Al met al biedt dit protocol een uitgebreid en reproduceerbaar kader voor de ontwikkeling en systematische evaluatie van antimicrobiële peptiden en hun nabootsers als next-generation anti-infectiemiddelen.
Inleiding
Antimicrobiële resistentie (AMR) is uitgegroeid tot een grote wereldwijde gezondheidsbedreiging1. Volgens de Wereldgezondheidsorganisatie (WHO) was AMR direct verantwoordelijk voor ongeveer 1,27 miljoen sterfgevallen in 2019 en droeg het bij aan naar schatting 4,95 miljoen sterfgevallen wereldwijd2. Het overmatig gebruik en misbruik van bestaande antibiotica heeft de opkomst van multi-medicijnresistente pathogenen benadrukt, waardoor er beperkte behandelingsmogelijkheden zijn tegen microben zoals bacteriën, schimmels, virussen en protozoa 2,3. Deze AMR-crisis heeft de zoektocht naar alternatieve antimicrobiële strategieën gestart die effectief, stabiel en minder gevoelig zijn voor resistentieontwikkeling. Tot de meest veelbelovende kandidaten behoren AMPs en hun synthetische mimics4.
AMP's zijn van nature voorkomende moleculen die een essentiële rol spelen in het aangeboren immuunsysteem van mensen, dieren en planten5. Ze vertonen doorgaans breedspectrum-antimicrobiële activiteit via mechanismen zoals membraanverstooring, interferentie met microbiële stofwisseling en modulatie van immuunresponsen6. Zo heeft het humane cathelicidinepeptide LL-37 krachtige activiteit aangetoond tegen bacteriën, schimmels en virussen7. Ondanks hun veelbelovende potentieel4 wordt het grootschalige therapeutische gebruik van natuurlijke AMP's vaak beperkt door hun lage natuurlijke overvloed. Daarnaast kan het verkrijgen van hun actieve vormen uit natuurlijke bronnen een uitdaging zijn, aangezien veel peptiden specifieke posttranslationele modificaties vereisen om functioneel actiefte worden.
Om de beperkingen van natuurlijke AMP's aan te pakken, hebben onderzoekers synthetische analogen en peptide-mimics ontwikkeld. De mimics kunnen kleine, rationeel ontworpen moleculen zijn die de antimicrobiële effectiviteit van natuurlijke AMP's behouden en tegelijkertijd verbeterde stabiliteit, selectiviteit en farmacokinetischeprestaties bieden.
Recente ontwikkelingen in peptidechemie en moleculaire biologie hebben de efficiënte productie van AMP's mogelijk gemaakt via methoden zoals vaste-fase peptidesynthese (SPPS), vloeistoffase peptidesynthese (LPPS) en recombinante expressiesystemen, wat precieze controle biedt over belangrijke structurele parameters zoals sequentiesamenstelling, ladingsverdeling en amfipathiciteit10. Recombinante expressiesystemen zijn geschikt voor grootschalige productie en voor langere of complexere polypeptiden. Eenmaal geoptimaliseerd bieden recombinante methoden—doorgaans gebruikmakend van fermentatie- of bioreactorsystemen—een kosteneffectieve en schaalbare aanpak voor de industriële productie van therapeutische peptiden11.
Dit artikel toont complementaire benaderingen voor de productie en evaluatie van AMP's en hun mimics. Hoewel vaste-fase chemische synthese veel wordt gebruikt voor peptidegeneratie, kan het inefficiënt en kostbaar worden voor langere sequenties of sterk kationische peptiden vanwege aggregatie, lage opbrengsten en zuiveringsuitdagingen12. Daarentegen blijft chemische synthese zeer voordelig voor het genereren van korte peptide-mimics met precieze structurele aanpassingen en niet-natuurlijke residuen13. Recombinante expressiesystemen maken daarentegen kosteneffectieve en schaalbare biosynthetische productie van langere of structureel complexe peptiden in microbiële gastheren mogelijk, waarmee lengte- en opbrengstbeperkingen die gepaard gaan met puur synthetische benaderingenworden overwonnen. Door chemische en biologische productiestrategieën te integreren, biedt dit gecombineerde kader meer flexibiliteit, schaalbaarheid en translationeel potentieel dan beide methoden op zich, waardoor het bijzonder geschikt is voor mechanistisch onderzoek en therapeutische ontwikkeling.
Na de productie wordt de biologische evaluatie van deze verbindingen uitgevoerd via twee belangrijke assays. De antimicrobiële activiteitstest meet het remmende potentieel van elk peptide of mimic tegen representatieve micro-organismen, wat inzicht geeft in hun spectrum en potentie. De toxiciteitstest beoordeelt cytocompatibiliteit met behulp van zoogdiercellijnen om veiligheid en selectiviteit te waarborgen. Door deze experimentele stapontwerp, synthese en functionele tests te integreren, biedt dit protocol een uitgebreid kader voor het karakteriseren van de effectiviteit en veiligheid van AMP's en hun synthetische analogen. Samen vormen deze methodologieën een systematische aanpak voor het ontwikkelen en valideren van nieuwe antimicrobiële middelen om de groeiende wereldwijde uitdaging van AMR aan te pakken.
Protocol
1. Synthese van de anthranilamide-peptide-mimic RK758
- RK758 wordt intern gesynthetiseerd uit de belangrijkste organische bouwstenen N-benzylcarbamaat-beschermde L-tryptofaan en 5-bromo isatoïsch anhydride. Er zijn verschillende synthetische benaderingen gerapporteerd; De hieronder gerapporteerde aanpak heeft echter goede schaalbaarheid en algehele opbrengst aangetoond, wat een verbetering is ten opzichte van de eerder gepubliceerde synthetische protocollen14,15.
- Methode 1: Synthese van benzyl(S)-(1-((2-((tert-butoxycarbonyl)amino)ethyl)amino)-3-(1H-indol-3-yl)-1-oxopropan-2-yl) carbamaat (2):
- In een 250 mL enkelhals kolf, uitgerust met een magnetische roerstang, weeg je Cbz-L-tryptofaan (10,0 g, 29,6 mmol) op en los het op in 30 mL DMF en 80 mL DCM.
WAARSCHUWING: DMF wordt verdacht van het veroorzaken van aangeboren afwijkingen; Vermijd het hanteren als je zwanger bent, en kun in een rookkap. - Voeg HOBt (4,08 g, 29,6 mmol), N-Boc-ethylenediamine (4,66 mL, 29,6 mmol) en diisopropylethylamine (8,31 mL, 59,0 mmol) toe en roer 15 minuten.
- Voeg EDC hydrochloridezout toe (11,3 g, 59 mmol). Roer 20 uur op kamertemperatuur.
VOORZICHTIG: Carbodiimiden, zoals EDC, staan erom bekend sensibiliserend te worden voor anafylactische reacties bij herhaalde blootstelling; Zorg ervoor dat de juiste handschoenen worden gedragen. - Controleer TLC met 1:1 (v/v) DCM/Ethylacetate om te zien of alle Cbz-L-Trp is ingenomen.
- Na voltooiing van de reactie gebruik je een roterende verdamper om de reactie te concentreren en dichloromethaan uit het mengsel te verwijderen.
- Solveer de slib in ongeveer 300-400 mL ethylacetaat
OPMERKING: Stap 1.1.1.6 levert een slurry op in dimethylformamide. Gebruik genoeg ethylacetaat om de suspensie op te lossen. - Giet de oplossing in een 500 mL scheidingstrechter samen met 50 mL water. Schud de scheidingstrechter.
VOORZICHTIG: Omdat hier een groot volume vluchtig oplosmiddel wordt gebruikt, is het essentieel om de scheidingstrechter af en toe te ventileren. - Laat de waterige laag draineren, waarbij de organische ethylacetaatlaag behouden blijft.
- Herhaal stap 1.1.1.7-1.1.1.8 met 50 mL water, 50 mL verzadigd waterig natriumbicarbonaat en 50 mL verzadigd waterig natriumchloride.
- Breng de behouden organische laag over in een conische kolf van 1 L. Droog de organische stoffen door watervrij natriumsulfaat toe te voegen en de fles te draaien tot er een vrij stromend poeder ontstaat.
- Filter het mengsel in een 1 L ronde kolf en concentreer het vervolgens tot het droog is op een roterende verdamper (40 °C waterbad met 180 mbar vacuüm).
- Voeg 50 ml diethylether en een magnetische roerbalk toe, en roer de slurry 45-60 minuten.
OPMERKING: Het kan effectief zijn om vaste stoffen van de wand van de kolf te schrapen met een metalen spatel. - Filter de slib om de neergeslagen vaste stoffen op te vangen. Was de filtercake nog twee keer met 50 ml diathyleether. Droog de vaste stoffen onder zuiging om verbinding 2 als beige poeder met 87% opbrengst te verkrijgen.
- In een 250 mL enkelhals kolf, uitgerust met een magnetische roerstang, weeg je Cbz-L-tryptofaan (10,0 g, 29,6 mmol) op en los het op in 30 mL DMF en 80 mL DCM.
- Methode 2: Synthese van tert-butyl (S)-(2-(2-amino-3-(1H-indol-3-yl) propanamido) ethyl) carbamaat (3)
- In een 250 mL tweehals rondbodemfles met een rubberen septum en glazen stop, los product 2 (10,8 g, 22,3 mmol) op in 100 mL methanol met behulp van magnetisch roeren
OPMERKING: Vet de glazen stop niet in, want dit kan tot besmetting leiden. - Voeg tijdens het roeren 10% palladium toe op koolstof (1,07 g) door de opening met de glazen stop. Met een Schlenk-manifold laat je stikstofgas minstens 30 minuten door het mengsel bubbelen.
OPMERKING: Elk inert gas mag worden gebruikt, zoals argon; huis N2 is echter in dit geval voldoende. - Vervang de glazen stop door een 2-weg geslepen glasverbinding, waarbij één lijn is aangesloten op een waterstofballon en de andere op een vacuüm. Plak PTFE-tape rond de verbinding om een luchtdichte afdichting te creëren.
- Open de kolf om te vacuümeren totdat de methanol net begint te koken, en open dan snel de kolf naar de waterstofballon. Herhaal nog twee keer.
- Monitor de reactie met dunne-laag chromatografie (waarbij 1:1 ethylacetaat/dichloormethaan als eluent wordt gebruikt) door kleine aliquots van het reactiemengsel via het rubberseptum met een spuit te extraheren en te filteren via een 40 μm PTFE-membraanfilter.
- Op het Schlenk-spruitstuk schakel het vacuüm over op stikstof. Verwijder het rubberen septum uit de kolf en laat de stikstof ongeveer 5 minuten de resterende waterstof wegspoelen.
VOORZICHTIG: Palladium op koolstof kan spontaan ontbranden in de lucht wanneer waterstof erop wordt geadsorbeerd. Het is belangrijk om de reactie onder een inert gasdeken te behandelen. - Bereid een bed diatomeeënaarde voor door een slurry van diatomeeënaarde te vormen in ethylacetaat en de slurry over te brengen naar een medium porositeitsglasfritteerde filtertrechter bevestigd aan een 500 mL ronde kolf, en trek een lichte vacuüm totdat het oplosmiddel net boven het niveau van diatomeeënaarde ligt
OPMERKING: De kolom diatomeeënaarde moet minstens 2–4 cm hoog zijn wanneer deze in de trechter wordt geladen.
VOORZICHTIG: Diatomeënaarde/kristallijn silica is zeer kankerverwekkend en staat erom bekend mesothelioom te veroorzaken door blootstelling aan de luchtwegen. Het moet altijd worden gedragen in een dampkap of met een passend ademhalingsmasker. - Met een pipet of anderszins breng je de reactieslurry over op de bovenkant van de celietkolom, waarbij je erop let dat de bovenste laag celite niet wordt verstoord. Herhaal dit totdat er nog maar een kleine hoeveelheid reactieslurry (<2 mL) in de kolf over is
OPMERKING: Nadat er voldoende oplosmiddelhoogte boven het bed is, kan de inhoud van de kolf in de filtertrechter worden gegoten. - Trek af en toe een lichte vacuüm op de trechter/kolf totdat de oplosmiddelkop net boven het bed zit, was de inhoud van de kolf met kleine hoeveelheden ethylacetaat, en herhaal dit 3–4 keer
OPMERKING: De laag palladium/koolstof bovenop de celiet mag nooit aan lucht worden blootgesteld. - Blijf het kussentje wassen totdat alle producten zijn doorgefilterd; dit kan worden gecontroleerd door wat van het gefilterde oplosmiddel op een klein stukje TLC-plaat te druppelen en onder UV-licht te visualiseren.
- Verwijder alle oplosmiddelen van een roterende verdamper. Voeg een minimale hoeveelheid dichloormethaan (5 mL) toe aan het residu en precipiteer het product door diethylether toe te voegen (50 mL).
- Filter het mengsel en behoud het neerslag dat intermediair 3 levert in kwantitatieve opbrengst.
- In een 250 mL tweehals rondbodemfles met een rubberen septum en glazen stop, los product 2 (10,8 g, 22,3 mmol) op in 100 mL methanol met behulp van magnetisch roeren
- Methode 3: Synthese van tert-butyl (S)-(2-(2-(2-amino-5-bromobenzamido)-3-(1H-indol-3-yl)propanamido)ethyl) carbamaat (4)
- In een 250 mL oven gedroogde, enkelhals rondbodem kolf weeg je product 3 (5,00 g, 14,5 mmol) en 5-bromoisatoïsch anhydride (5) (3,50 g, 14,5 mmol) af. Voeg 50 mL watervrij acetonitril toe.
OPMERKING: Anhydrus acetonitril werd verkregen uit een zuiveringssysteem voor oplosmiddelen door het oplosmiddel door een kolom geactiveerde alumina te laten percoleren. - Vervang de kolf met een watergekoelde refluxcondensor en een droogbuis gevuld met watervrij calciumchloride en sluit de verbindingen af met PTFE-tape.
- Verhit het mengsel tot reflux (b.p. acetonitril = 82 °C), oliebadtemperatuur = 100 °C. Roer 18 uur bij reflux of totdat de TLC drie uur aangeeft. Na voltooiing concentreer je het reactiemengsel tot het onder vacuüm droog wordt.
- Voeg aan de vaste stoffen 30 mL acetonitril en 50 mL diethylether toe en filter het mengsel, waarbij het vaste product behouden blijft. Verzamel het vaste product om de titel compound 4 in 78% opbrengst te geven.
- In een 250 mL oven gedroogde, enkelhals rondbodem kolf weeg je product 3 (5,00 g, 14,5 mmol) en 5-bromoisatoïsch anhydride (5) (3,50 g, 14,5 mmol) af. Voeg 50 mL watervrij acetonitril toe.
- Methode 4: Synthese van tert-butyl (S)-(2-(2-(2-(2-(2-naphthamido)-5-bromobenzamido)-3-(1H-indol-3-yl)propanamido)ethyl) carbamaat (6)
- In een 50 mL oven gedroogde, enkelhals rondbodem kolf los 2-nafthoylchloride (572 mg, 3,0 mmol) op in 10 mL dichloormethaan. Vervang de kolf met een rubberen septum. Deze fles wordt hierna aangeduid als "kolf A".
OPMERKING: Naftholchloride van een commerciële leverancier werd gebruikt in de studie, maar heeft vergelijkbare resultaten behaald met het genereren van 2-nafthoïnezuur met oxalylchloride volgens14). - In een aparte ovengedroogde 100 mL enkelhals rondbodem kolf weeg je product 4 (544 mg, 1,0 mmol). Deze fles wordt hierna aangeduid als "Fles B".
- Vervang Flask B met een rubberen septum en sluit aan op een Schlenk-spruitstuk met een spuitnaald en een Luer-adapter. Spoel kolf B onder vacuüm en vul het opnieuw bij met stikstof, herhaal dit twee keer.
- Voeg 20 mL watervrij dichloormethan toe via een spuit aan Kolf B. Voeg triethylamine (455 μL, 3,24 mmol) toe via een spuit aan Kolf B. Laat het 10 minuten afkoelen boven een ijsbad.
- Trek de inhoud van fles A op in een spuit van passende grootte. Voeg de oplossing van de spuit toe aan kolf B druppelgewijs met roeren.
OPMERKING: De productie van triethylaminehydrochloride kan worden gezien als witte dampen boven het oplosmiddel. Haal het uit het ijsbad nadat je de zuurchloride-oplossing hebt toegevoegd. - Roer het mengsel totdat de hele verbinding 4 is verbruikt op basis van TLC-analyse. Concentreer het mengsel tot bijna droogte op een roterende verdamper (600 mbar, 40 °C).
- Verdeel het mengsel tussen water (30 mL) en ethylacetaat (70 mL). Verwerk lagen door te schudden in een scheidingstrechter en de waterige laag weg te gooien.
- Was het organische mengsel met verzadigde waterige oplossingen van NaHCO3 (30 mL) en NaCl. Droog de organische laag door watervrij Na2SO4 toe te voegen totdat er bij het mengen een vrij stromend poeder wordt waargenomen.
- Concentreer tot de droogte op een roterende verdamper (170 mbar, 40 °C). Tritureer de ruwe vaste stoffen met acetonitril (15 mL) en diethylether (15 mL) om de titelverbinding als een gebroken witte vaste stof in 70% opbrengst te verkrijgen.
- In een 50 mL oven gedroogde, enkelhals rondbodem kolf los 2-nafthoylchloride (572 mg, 3,0 mmol) op in 10 mL dichloormethaan. Vervang de kolf met een rubberen septum. Deze fles wordt hierna aangeduid als "kolf A".
- Methode 5: Synthese van (S)-N-(2-((1-((2-aminoethyl)amino)-3-(1H-indol-3-yl)-1-oxopropaan-2-yl)carbamoyl)-4-bromofenyl)-2-naftamid (7)
- Behandel een suspensie van intermediair 6 (1,5 g, 2,15 mmol) in dichloormethaan (0,2 M eindconcentratie) met 1,2-ethanedithiol (20% volume ten opzichte van het volume DCM).
VOORZICHTIG: 1,2-ethanedithiol heeft een onaangename geur die misselijkheid kan veroorzaken, zelfs bij lage concentraties, Hanteer in een rookkap. - Koel het mengsel af in een ijsbad en behandel het vervolgens met trifluorazijnzuur (hetzelfde volume als DCM). Roer het mengsel 2 uur op 0 °C.
- Na voltooiing concentreer je het reactiemengsel door te spoelen met stikstofgas
OPMERKING: Uitlaatgassen kunnen door een bleekfilter worden gepompt om de geurafgifte te beperken. - Tritureer de ruwe vaste stoffen met diethylether (10 mL) en filter om de vaste stoffen op te vangen. Was de filtercake twee keer met diethylether (elk 10 ml), en laat de vaste stoffen onder zuiging drogen.
- Behandel een suspensie van intermediair 6 (1,5 g, 2,15 mmol) in dichloormethaan (0,2 M eindconcentratie) met 1,2-ethanedithiol (20% volume ten opzichte van het volume DCM).
- Methode 6: Synthese van tert-butyl (S,Z)-(3-((1H-indol-3-yl)methyl)-1-(2-(2-(2-nafthamido)-5-bromofhenyl)-1,4-dioxo-9-(fenylimino)-2,5,8,10-tetraazadodecan-12-yl) carbamaat (9)
- Laad een enkelhals rondbodemkolf met tussentijds 7 (1,0 g, 1,4 mmol), thioureumderivaat 8 (415 mg, 1,4 mmol) en triethylamine (1,01 mL, 4,2 mmol) in N, N-dimethylformamide (5 mL).
- Koel de reactie af tot -5 °C in een zoutijsbad en voeg kwik(II)chloride toe (760 mg, 2,8 mmol) en roer het 16 uur.
VOORZICHTIG: Kwik(II)chloride is dodelijk door orale, huid- en ademhalingsblootstelling. Het is ook zeer giftig voor waterleven. Draag chemisch bestendige handschoenen, oogbescherming en lichaamsbescherming. Vermijd daarnaast aerosoliseren van oplossingen met kwik(II)chloride en behandel deze in een dampkap. Zorg ervoor dat afval uit dit proces wordt gescheiden van andere organische afvalstromen en zorg ervoor dat er geen kwikafval in de afvoeren terechtkomt. - Na voltooiing verdun je het mengsel met 2-propanol en filter je door een bed van celite, waarbij het filtraat wordt opgevangen.
- Concentreer het filtraat tot droogte op een roterende verdamper en onderwerp het residu aan flashkolomchromatografie op silica met 3:97 methanol/dichloromethaan als eluent.
- Analyseer de verzamelde fracties met TLC en verzamel vervolgens pure fracties om de titelverbinding te kunnen betalen.
- Methode 7: Synthese van RK758
- De methode om tussentijdig 8 te deprotecteren om RK758 te vormen is identiek aan stap 1.1.5.
- Los het resulterende product opnieuw op in 5 mL 1:1 (v/v) acetonitril/ultrazuiver water, en breng het over in een schroefdop, borosilicaatglazen flesje. Vries de oplossing in een bad met vloeibare stikstof en vriesdroog vervolgens om het product te verkrijgen.
OPMERKING: Het is belangrijk om ervoor te zorgen dat het flesje van borosilicaat is om barsten bij het bevriezen te voorkomen.
VOORZICHTIG: Blootstelling aan vloeibare stikstof kan bevriezing of huidbeschadiging veroorzaken. Zorg ervoor dat er geschikte handschoenen en oogbescherming worden gedragen.
- Methode 1: Synthese van benzyl(S)-(1-((2-((tert-butoxycarbonyl)amino)ethyl)amino)-3-(1H-indol-3-yl)-1-oxopropan-2-yl) carbamaat (2):
2. Recombinante productie en zuivering van het sterk cationische antimicrobiële peptide Mel4 (KNKRKRRRRRRGGRR)
- Geoptimaliseerd protocol voor productie
- Gensynthese
- Ontwerp en synthetiseer de gencassette met de volgende componenten: HIS (6x/7x histidinetag voor recombinante peptide-isolatie), Ketosteroïde Isomerase (KSI) tag voor de vorming van het inclusielichaam (IB), en Tobacco Etch Virus (TEV) Cleavage site (ENLYFQ↓G, S, A, M, C, H), voor duurzame, chemische vrije excisie van de KSI en His-tag uit het eiwitmotief.
- Selecteer het aminozuur direct na de snede (G, S, A, M, C, H) zodat het de activiteit van de AMP niet beïnvloedt.
OPMERKING: Glycine biedt de hoogste efficiëntie van TEV-splijting. Een enkel aminozuur dat aan het N- of C-uiteinde is geplaatst, kan de fysisch-chemische eigenschappen van de AMP's beïnvloeden, en vandaar hun activiteit. - Synthetiseer de synthetische gensequentie, inclusief flankerende gebieden, met 5' XbaI en 3' XhoI restrictieplaatsen. De aminozuursequentie is weergegeven in Tabel 1 en schematisch weergegeven in Figuur 1.
- Klonen
- Digestie van de pET-vector met compatibele restrictie-enzymen.
OPMERKING: In dit geval werd het p15TVL-plasmide (een pET15b-afgeleide, Ampr, T7-promotor) verteerd met XbaI, XhoI en ScaI (om het ongewenste fragment te splijten). - Om herligaties van verteerde fragmenten te voorkomen, behandel je 10 minuten met kalfsdarm-alkalische fosfatase bij 37 °C. Verteer het synthetische His-KSI-Mel4-gen met XbaI en XhoI in een 20 μL-reactie.
- Zuiver de fragmenten van alle restrictie-enzymen met behulp van de QIAquick PCR Purification Kit. Alternatief voert u gelelektroforese uit en snijdt u de band die bij het gewenste vectorfragment hoort eruit, waarna het fragment uit de gel wordt gehaald met een gelextractiekit.
OPMERKING: Zorg ervoor dat gezuiverde fragmenten worden gekwantificeerd met een spectrofotometrische methode (NanoDrop) om ligatie te optimaliseren.
- Digestie van de pET-vector met compatibele restrictie-enzymen.
- Ligatie en transformatie
- Ligateer het verteerde synthetische gen dat in de pET-vector wordt ingebracht. Zorg ervoor dat de verhouding tussen de insert en de vector equimolair is.
- Incubeer het mengsel een nacht met T4 Ligase bij 16 °C. Transformeer in een chemisch of elektrocompetente DH5α met respectievelijk warmteschok- of elektroporatiemethoden.
- Meng voorzichtig chemisch competente DH5-α cellen met plasmide-DNA en broede op ijs om DNA-hechting mogelijk te maken. Daarna worden de cellen 30 seconden bij 42 °C met een hitteshock geactiveerd om de opname van DNA te bevorderen, en daarna snel afkoelen op ijs.
- Na herstel in antibioticavrij 450 μL LB bouillonmedium bij 37 °C gedurende een uur, wordt de cellen op selectieve agar met het juiste antibioticum gepantserd.
OPMERKING: Getransformeerde kolonies verschijnen meestal na een nachtelijke broedperiode. Voor elektrocompetente DH5α-cellen mengt u een klein volume gezuiverd, zoutvrij plasmide-DNA (meestal 1–2 μL van 10–100 ng in ~50 μL cellen) met cellen in een gekoelde elektroporatiecuvet. - Na een korte koeling geef je een enkele puls (gebruikelijke instellingen: 1,8 kV voor een 0,2 cm gap-cuvette met een tijdconstante van ~5 ms; stel je aan voor je apparaat/cuvette), waarbij je zorgt voor vonken door ontzout DNA en ijskoude reagentia te gebruiken.
- Voeg onmiddellijk ~450 μL voorverwarmde LB toe, herstel bij 37 °C met een uur schudden, en plaats dan op selectief agar.
- Kweektransformanten 's nachts in LB-bouillon voor plasmide-isolatie met behulp van een plasmide-zuiveringsset. Verifieer het uiteindelijke plasmideconstruct met PCR met behulp van de primers in Tabel 1 en bevestig de sequentie met Sanger-sequencing.
- Transformeer het geverifieerde plasmide in de expressiehost (chemisch of elektrocompetent), E. coli BL21(DE3), zoals hierboven.
- Gensynthese
- Geoptimaliseerde productie van expressie- en inclusielichaam (IB)
- Inoculeer 10 mL LB-bouillon (100 μg/mL ampicilline) en kweek deze 's nachts bij 37 °C. Gebruik dit om 100 ml te inoculeren, en vervolgens een 1 L productiecultuur.
- Verdun in LB tot optische dichtheid (OD600) van de cultuur op tijd 0 = 0,1. Gebruik LB-medium aangevuld met 1% glucose en 100 μg/mL ampicilline.
- Incubeer bij 37 °C en monitor OD om logfase te bereiken (OD600 0,5–0,6). Induceer met een lage concentratie isopropyl β-D-1-thiogalactopyranoside IPTG, meestal 0,1 mM.
Houd de temperatuur 16–24 uur aan op 37 °C om de vorming van inclusielichamen te verbeteren. - Blijf incuberen gedurende 16 tot 24 uur. Oogst cellen door centrifugatie (5.000 x g, 4 °C) gedurende 10 minuten en bewaar pellets bij -80 °C.
- Cellyse en eiwitfractionering
- Ontdooi celpellets op ijs en susseert opnieuw in Bugbuster-reagens om chemische lysie te starten. Centrifugeer het lysaat op 4.000 x g gedurende 20 minuten bij 4 °C. Verzamel het supernatant als oplosbare eiwitfractie.
- Was de resterende pellet en suspendeer hem opnieuw in 10% (v/v) Bugbuster in MilliQ-water. Onderwerp de suspensie aan sonicatie om de onoplosbare eiwitfractie (inclusielichamen) volledig terug te winnen.
- Behandel monsters met 100 μL SDS-PAGE monsterbuffer die 5% β-mercaptoethanol bevat. Incubeer het mengsel 5 minuten bij 95 °C om volledige eiwitdenaturatie te garanderen.
- SDS-PAGE elektroforese
- Laad de gedenatureerde lysaten op dubbele 15% SDS-PAGE gels voor standaard elektroforetische scheiding.
- Was één gel 1 uur lang met water. Beits 's nachts met GelCode Blue Stain Reagent. Ontkleur de volgende dag met water totdat de banden duidelijk zichtbaar zijn.
- Visualiseer en documenteer (Figuur 2A) de gekleurde gel om de totale eiwitprofielen (TCP) en fractieverdeling te beoordelen met behulp van het Biorad Gel Doc-instrument met Image Lab.
- Westerse blotting (immunodetectie)
- Evenwicht de ongekleurde gel, een nitrocellulosemembraan, filterpapier en sponzen in transferbuffer (20 mM Tris-HCl pH 7,4, 150 mM NaCl, 0,1% Tween 20). Zet de overdrachtssandwich in elkaar en voer de overdracht uit bij 100 V gedurende 1 uur bij omgevingstemperatuur.
- Incubeer het membraan in een blokkerende buffer (5% magere melk in TBST) gedurende 1 uur op kamertemperatuur om niet-specifieke binding te voorkomen.
- Incubeer het membraan met het primaire antilichaam van de muis anti-HisTag (verdund 1:1.000 in blokkerende buffer) 's nachts bij 4 °C met zachte schudding.
- Was het membraan drie keer met TBST gedurende 5 minuten per dag. Incubeer het membraan met HRP-geconjugeerde anti-muis IgG (verdund 1:5.000 in blokkeringsbuffer) gedurende 1 uur bij kamertemperatuur.
- Voer een laatste ronde van drie TBST-wasbeurten uit. Breng het Enhanced Chemiluminescence (ECL) substraat 1 minuut toe op het membraan en visualiseer met een chemiluminescentiebeeldapparaat of door belichting aan röntgenfilm. Documenteer de afbeelding (zoals te zien in Figuur 2B).
- IB-isolatie en affiniteitszuivering
- Suspendeer de celpellet opnieuw in een lysisbuffer (100 mM Tris· Cl, pH 7,0, 5 mM EDTA, 5 mM DTT (770 mg/liter), 5 mM benzamidine· HCl (780 mg/liter)) en voert mechanische lysatie uit (bijv. French press/Sonicatie). Centrifuge (20.000 x g, 4 °C gedurende 20 minuten) om de onoplosbare KSI-Mel4 IB-pellet te isoleren.
- Was de pellet grondig met wash buffer (100 mM Tris· Cl, pH 7, 5 mM EDTA, 5 mM DTT, 2 M ureum, 2% (met v) Triton X-100). Oplos de pellet in niet meer dan 2 miljoen ureum.
OPMERKING: De concentratie ureum die wordt gebruikt om IB te solvubiliseren, moet binnen het werkbereik van de TEV-protease liggen. - Kwantificeer de geïsoleerde IB met de BCA-kit volgens de instructies van de fabrikant.
- Meng Pierce Reagens B en Reagens A in een volume-tot-volume verhouding van 1:50. Bereken het totale benodigde volume op basis van het aantal standaarden en monsters dat in drievoud moet worden uitgevoerd.
- Met Bovine Serum Albumine (BSA) als referentie bereid je een reeks verdunningen voor om een standaardcurve te creëren variërend van 3.000 μg/mL tot 200 μg/mL.
- Met een plaat met 96 putten pipetteer je 25 μL van elke BSA-standaard en monster (inclusief gezuiverd supernatant en geresuspendeerd neerslag) in de putten.
- Voeg 200 μL van het voorbereide BCA-werkreagens toe aan elke put met een standaard of monster. Meng de plaat kort en beheun het 1 tot 2 uur op 37 °C om de kleurontwikkeling mogelijk te maken.
- Na de incubatie meet je de absorptie van de plaat bij 562 nm met een spectrofotometer. Plot de absorptie van de BSA-standaarden tegen hun bekende concentraties om een lineaire of kwadratische standaardcurve te genereren.
- Bepaal de eiwitconcentratie van de His-KSI-Mel4 of recombinante Mel4-monsters door hun absorptiewaarden te vergelijken met de gegenereerde standaardcurve. De concentraties voor en na TEV-splitsing zijn weergegeven in Figuur 3.
- Enzymatische splitsing en verwijdering van het label
- Splijtingsreactie: His-tag TEV Protease (aanbevolen molaire verhouding 1:50 tot 1:100 Protease: Fusion Protein). Incubeer 16 uur bij 4 °C voor maximale efficiëntie.
- Tagverwijdering en immobiliseerde metaalaffiniteitschromatografie (IMAC) zuivering:
- Breng het splijtingsreactiemengsel over een verse nikkel-nitrilotriazijnzuur (Ni-NTA) kolom. Equilibreer Ni-NTA-hars met de bindingsbuffer (Lysis Buffer).
- Laad het splijtingsreactie-mengsel. De His-gelabelde componenten (KSI-fragment en TEV-protease) binden aan de hars.
- Verzamel de doorstroom, die het niet-getagde recombinante Mel4-peptide bevat met resterende G-, S-, A-, M-, C- en H-aminozuren van de TEV-splijtingsplaats.
- Zorg ervoor dat dit extra aminozuur de activiteit van AMP niet beïnvloedt door de MIC-test uit te voeren met chemisch gesynthetiseerde Mel4 als controle.
- Eluteer het gebonden KSI-fragment en TEV-protease met behulp van een eluatiebuffergradiënt (500 mM Imidazol, 500 mM NaCl, 20 mM natriumfosfaatbuffer, pH 8).
- Voer een BCA-test uit zoals beschreven in Stap 2.6.3.
3. Antimicrobiële activiteit
- Mediavoorbereiding
- Bereid media [Mueller Hinton Broth, cation-adjusted (CAMHB), Trypticase Soy Broth (TSB), D/E neutralizing bouillh en Trypticase Soy agar (TSA)] volgens de instructies van de fabrikant. Maak ook 1 × fosfaatgeborrelde zoutoplossing (PBS) van 10 × geconcentreerde PBS. Daarna autocaaf deze bij 121 °C bij 15 lbs/in2.
- Peptidevoorraadvoorbereiding
- Los AMP op en bootst na in steriel water bij een hoge concentratie, bijvoorbeeld 20 mM of minstens 2 mg/mL. Als het peptide onoplosbaar is, gebruik dan steriel water met een eindconcentratie van 0,01% azijnzuur16. Als adsorptie op plastic oppervlakken wordt verwacht, vul dan de standaardoplossing aan met 0,2% (w/v) BSA, omdat het werkt als een blokkerend middel17.
OPMERKING: Dimethylsulfoxide (DMSO) wordt ook aanbevolen voor het oplossen van peptiden of nabootsers die onoplosbaar zijn in water. Bereid een geconcentreerde bouillonoplossing, zoals 20 mM of 2 mg/mL. - Filtersteriliseer de peptidekolf met een 0,22 μm spuitfilter onder aseptische omstandigheden.
- Maak aliquots van de AMP-voorraad en bewaar bij -20 °C (of volgens de stabiliteit van de AMP). Bereid een identieke oplosmiddelcontrole voor.
- Los AMP op en bootst na in steriel water bij een hoge concentratie, bijvoorbeeld 20 mM of minstens 2 mg/mL. Als het peptide onoplosbaar is, gebruik dan steriel water met een eindconcentratie van 0,01% azijnzuur16. Als adsorptie op plastic oppervlakken wordt verwacht, vul dan de standaardoplossing aan met 0,2% (w/v) BSA, omdat het werkt als een blokkerend middel17.
- Bacteriële inoculumvoorbereiding
- Streep het bacteriële isolaat om getest te worden over een voedingsrijk medium zoals TSA om pure, goed geïsoleerde kolonies te verkrijgen.
- Incubeer de plaat aeroob bij 36 ± 1 °C gedurende 18-24 uur.
- Selecteer drie tot vijf morfologisch vergelijkbare, goed geïsoleerde kolonies van de kweekplaat met behulp van een steriele inoculatielus. Breng ze over in een steriele buis met 5–10 mL TSB of CAMHB. Om een uniforme suspensie te bereiken, wrijf je voorzichtig met bacteriële kolonies tegen de binnenwand van de gekantelde buis om een homogene suspensie te verkrijgen.
- Incubeer de bouilloncultuur op 36 ± 1 °C terwijl je schudt op 180 rpm gedurende 18 tot 24 uur.
- Centrifugeer de nachtkweek op 3.000 x g gedurende 10 minuten op 25 °C en was de bacteriële pellet drie keer met steriele 1 × PBS.
- In een steriele container doseer je 2 mL 1 × PBS, voeg dan 50–100 μL gewassen bacteriële suspensie toe en laat het vortexen gedurende 5–10 seconden om uniformiteit te bereiken.
- Meet de optische dichtheid bij 600 nm (OD600) met een spectrofotometer. Kort gezegd: voeg 200 μL van de bacteriële suspensie toe aan een 96-wellplaat met hetzelfde volume van 1× PBS als een blank, en meet de OD600 om een equivalent van 0,1 te verkrijgen, wat overeenkomt met ongeveer 1–2 × 10⁸CFU /mL (verifieer met het aantal levensvatbare platen op TSA).
- Verdunn de aangepaste ophanging met 1:100 in CAMHB om een eindinoculum van 106 CFU/mL te verkrijgen.
- Plaatopstelling
- Label een steriele, platbodemplaat met 96 bronnen met de bacteriële stam, AMP-naam, datum en initialen van de wetenschapper. Markeer op de plaat de locaties voor test-, blank- en controleputten op het deksel.
- Doseer 200 μL AMP-oplossing (hoogste concentratie) in de eerste kolom van de plaat. Voeg aan de overige putten, van kolom 2 tot 12, 100 μL CAMHB toe.
- Met een multikanaalpipet, voer je tweevoudige seriële verdunningen van de AMP uit van kolom 1 tot kolom 10, waarbij 100 μL uit de tiende kolom wordt verwijderd.
- Voeg 100 μL van het voorbereide bacteriële inoculum (106 CFU /mL) toe aan elke put behalve de steriliteitscontrole (blank). Dit levert een uiteindelijke bacteriële concentratie op van ongeveer 5 × 10à 5 CFU/mL in de testputten. Voeg 100 μL CAMHB toe aan de blank wells om het uiteindelijke volume op 200 μL te brengen. Bereid driedubbele putten voor voor elke concentratie.
OPMERKING: Voor AMP's die neerslaan wanneer ze verdund worden in CAMHB, kan toevoeging van azijnzuur met 0,1–0,2% BSA het probleem oplossen; Optimalisatie kan empirisch testenvereisen 16. In dergelijke gevallen zijn oplosmiddelcontroleputten opgenomen (met CAMHB plus azijnzuur en/of BSA). - Voer evenzo MIC uit voor AMP-mimic (RK758) en een vergelijkend antibioticum (bijv. colistine).
- Bedek de plaat met het deksel, sluit het af met huishoudfolie om verdamping te voorkomen en incubeer bij 36 ± 1 °C gedurende 18–24 uur.
- Neem een referentiestam van E. coli op (bijv. mcr-1-bevattende E. coli NCTC 13846) parallel en verwerk op vergelijkbare wijze als de peptide- of peptide-imitator.
- Na de incubatie neem je de microfoon op.
- Bepaling van MIC
- Meet de OD600 van elke put met een microplaatlezer. Bereken de procentuele afname van groei ten opzichte van de onbehandelde groeicontrole. De MIC wordt gedefinieerd als de laagste concentratie van de AMP, wat resulteert in een vermindering van minstens 90% van OD600 vergeleken met degroeicontrole-18.
- Bepaal MIC-waarden uit ten minste drie onafhankelijke experimenten uitgevoerd in drievoud exemplaar. Rapporteer de resultaten als gemiddelde ± standaarddeviatie om reproduceerbaarheid te waarborgen.
OPMERKING: De MIC voor de controlestam, E. coli NCTC 13846, zou binnen één tweevoudige verdunning van de verwachte MIC van colistine moeten liggen. Bevestig dat oplosmiddelcontroles met DMSO, azijnzuur en BSA op zichzelf geen remmende activiteit hadden.
- Bepaling van de minimale bactericide concentratie (MBC)
- Vanuit de putten boven en boven de MIC, evenals één concentratie eronder, wordt 100 μL van de bacteriële suspensie overgebracht naar 900 μL D/E-bouillon om seriële verdunningen te bereiden.
- Plaat 20 μL van elke verdunde suspensie op TSA in drievoud om levensvatbare bacteriële tellingen te bepalen.
- Na een nachtelijke incubatie bij 36 ± 1 °C gedurende 24 uur, telt u de kolonies, vermenigvuldig met de respectievelijke verdunningsfactor en vergelijk je de levensvatbare tellingen met die uit de groeicontroleput, die op dezelfde manier worden verwerkt.
- De MBC wordt gedefinieerd als de laagste concentratie van het antimicrobiële middel dat resulteert in een 99,9% (≥ 3 log10) vermindering van het levensvatbare bacteriële aantal vergeleken met het initiële inoculum na 24 uur incubatie (groeicontrole) onder standaardomstandigheden19.
- Verslaggeving
- Rapporteer MIC en MBC in μg/mL en μM.
- Converteer μg/mL naar μM met μM = μg/mL × 1.000/ molmolgewicht (g/mol)
- Verwijdering van besmettelijk afval
- Gooi alle materialen die in contact zijn geweest met levende bacteriële culturen, waaronder 96-well microtiterplaten, pipettoppen en Falcon-buizen, weg in aangewezen biohazard afvalzakken.
- Autoclave het verzamelde biohazard afval bij 121 °C gedurende 15–20 minuten onder druk van 15 psi om volledige sterilisatie vóór verwijdering te garanderen, in overeenstemming met de institutionele bioveiligheidsrichtlijnen.
4. Cytotoxiciteit
- Celtelling en zaaien voor toxiciteitstest
- Houd cellen, zoals muisfibroblast L929-cellen, in een 75 cm2 kolf in Dulbecco's minimum essentiële medium (DMEM) met 10% foetaal rundserum (FBS) en 1% antibiotica (streptomycinesulfaat en penicilline G) op 37 °C met 5%CO2.
- Was de cellen met 1x PBS en trypsiniseer met 0,25% trypsine-EDTA. Tel de cellen door 50 μL celsuspensie te mengen met 50 μL 0,4% trypan blauw en laad 10 μL in een hemocytometer.
- Tel levensvatbare (ongekleurde) en dode (blauwe) cellen in vier hoekvakjes en bereken het totale celaantal met behulp van: Totale cellen = (gemiddelde aantal levende cellen × 104 × 2 [verdunningsfactor]).
- Bereken levensvatbaarheid (%) = (levend / [leven + dood]) × 100.
- Pas de eindcelconcentratie aan op 5 × 10⁴ cellen/mL (overeenkomend met 5.000 cellen/put in 100 μL met behulp van het DMEM-medium).
- Zaad 100 μL celsuspensie in elke put van een steriele 96-put plaat. Incubeer 24 uur bij 37 °C met 5%CO2 om de hechting te waarborgen.
- Bereiding van Mel4- en RK758-testoplossingen
- Bereid werkoplossingen van Mel4/RK758 voor in gewone DMEM (zonder FBS en antibiotica) bij de uiteindelijke doelconcentraties (1.000, 500, 250, 125, 62,5, 31,25, 15,6, 7,8 en 3,9 μM) met behulp van de voorraadoplossing die is bereid zoals beschreven in stap 3.2.
- Verwijder kweekmedium uit elke put. Voeg 100 μL van de overeenkomstige 1× Mel4/RK758 werkoplossing direct toe aan de putten.
- Voeg 100 μL DMEM toe aan de aangewezen negatieve controle (NC) putten.
- Voeg 100 μL DMSO toe in positieve controle (PC) aangewezen putten (naast DMSO wordt cytotoxisch middel zoals Triton X-100 aanbevolen als positieve controle).
- Voeg 100 μL van 1 x PBS toe als een blanco regelaar.
OPMERKING: Voer alle behandelingen en controles driemaal uit. Behandel DMSO met handschoenen en oogbescherming; Vermijd huidcontact en voer oplosmiddelafval af volgens institutionele procedures.
- 3-(4,5-dimethylthiazol-2-yl)-2,5-difenyltetrazoliumbromide (MTT) assay
- Na 24 uur blootstelling aan Mel4/RK758, aspireer je het testmedium voorzichtig zonder de cellen te verstoren.
OPMERKING: De behandelduur met antimicrobiële verbindingen kan variëren afhankelijk van het specifieke experimentele ontwerp. - Bereid een MTT-werkoplossing voor door de 5 mg/mL voorraadoplossing 1:9 te verdunnen met gewone DMEM (eindconcentratie 0,5 mg/mL).
- Voeg 100 μL van de MTT-werkoplossing toe aan elke put. Bedek de plaat met aluminiumfolie om het licht te beschermen en incubeer 2 uur bij 37 °C totdat paarse formazankristallen vormen.
OPMERKING: MTT is lichtgevoelig en giftig. Behandel handschoenen en voer afval af volgens de institutionele bioveiligheidsprocedures. Doe het licht altijd uit tijdens het verwerken met het MTT-reagens.
- Na 24 uur blootstelling aan Mel4/RK758, aspireer je het testmedium voorzichtig zonder de cellen te verstoren.
- Meting van Formazan-oplossing en absorptie
- Verwijder voorzichtig de MTT-oplossing uit elke put. Voeg 100 μL DMSO toe aan elke put om de formazankristallen op te lossen.
- Plaats het bord 5 minuten op een shaker om volledige oplossing te garanderen. Meet de absorptie bij 570 nm met een microplaatlezer.
- Data-analyse en bepaling van 50% cytotoxische concentratie (IC50 of CC50)
- Trek de blanco absorptiewaarden (PBS) af van alle metingen en gebruik de gecorrigeerde blanco voor berekening.
- Bereken de levensvatbaarheid van cellen (%) met de vergelijking: levensvatbaarheid (%) = (Eenbehandeld/ EenNC (cel)) × 100.
- Bereken de IC50 of CC50 met behulp van GraphPad Prism-software.
OPMERKING: Herhaal experimenten in drievoudig gebruik en rapporteer gegevens als gemiddelde ± standaarddeviatie.
Resultaten
Synthese van RK758
Analytische gegevens tot en met gemiddeld 7 werden eerdergepubliceerd 14. De analytische gegevens voor RK758 en tussentijdse 8–9 zijn als volgt:
tert-butyl (2-(3-fenylthioureido)ethyl)carbamaat (8):
Het product 8 werd verkregen als een gebroken witte vaste stof (1,89 g, 87%); m.p. 167,4–168,3 °C; 1H NMR (300 MHz, DMSO-d 6) δ 9,58 (s, 1H), 7,71 (s, 1H), 7,44–7,29 (m, 4H), 7,11 (t, J = 12,0 Hz, 1H), 6,88 (br s, 1H), 3,55-3,53 (m, 2H), 3,13 (q, J = 4,0 Hz, 2H), 1,59 (s, 9H); 13C NMR (75 MHz, DMSO-d6) δ 180,9, 156,3, 139,5, 129,1, 124,7, 123,7, 78,2, 44,3, 28,7; HRMS (ESI+): m/z berekend voor C14H21N3O2SNa+ [M + Na]+: 318,1247, gevonden: 318,1252.
tert-butyl (S,Z)-(3-((1H-indol-3-yl)methyl)-1-(2-(2-(2-nafthamido)-5-bromofenyl)- 1,4-dioxo-9-(fenylimino)-2,5,8,10-tetraazadodecan-12-yl)carbamaat (9):
Product 9 werd verkregen als een witte vaste stof (0,253 g, 62%); m.p. 173,4–174,9 °C; 1H NMR (400 MHz, DMSO-d 6) δ 12,23 (s, 1H), 10,86 (s, 1H), 9,61 (s, 1H), 9,27 (d, J = 8,0 Hz, 1H), 8,57-8,54 (m, 2H), 8,44 (s, 1H), 8,11 (d, J = 4,0 Hz, 1H), 8,06-8,03 (m, 3H), 7,84 (dd, J = 4,0, 12,0 Hz, 1H), 7,78 (d, J = 12,0 Hz, 2H), 7,69–7,60 (m, 2H), 7,36 (t, J = 8,0 Hz, 2H), 7,27-7,23 (m, 5H), 7,01-6,97 (m, 3H), 4,82-4,78 (m, 1H), 3,14-3,13 (m, 10H), 1,32 (s, 9H); 13C NMR (100 MHz, DMSO-d 6) δ 172.3, 167.8, 165.1, 156.3, 154.4, 138.9, 136.5, 135.4, 134.9, 132.6, 131.7, 129.9, 129.1, 128.7, 128.4, 128.2, 127.6, 127.6, 126.4, 124.8, 124.1, 123.6, 122.8, 121.4, 118.9, 118.7, 115.1, 111.8, 110.9, 78.4, 55.2, 42.3, 41.9, 39.4, 38.3, 29.5, 28.6, 27.9; HRMS (ESI+): m/z berekend voor C45H47BrN8O5 [M + H]+: 859,2926, gevonden: 859,2925.
(S,E)-N-(2-((1-((2-(3-(2-aminoethyl)-2-fenylguanidino)ethyl)-3-(1H-indol- 3-yl)-1-oxopropaan-2-yl)carbamoyl)-4-bromofenyl)-2-naftamide (RK758) (10):
RK758 werd verkregen als een gebroken wit vaste stof (0,039 g, 75%); m.p. 240,0–240,9 °C; 1H NMR (400 MHz, MeOD-d 4): δ 8,39 (s, 1H), 8,27 (d, J = 12,0 Hz, 1H), 7,98–7,95 (m, 3H), 7,88 (d, J = 8,0 Hz, 1H), 7,79 (d, J = 4,0 Hz, 1H), 7,71-7,60 (m, 4H), 7,40 (t, J = 8,0 Hz, 1H), 7,30-7,20 (m, 4H), 7,16 (s, 1H), 7,05-6,97 (m, 2H), 4,88-4,86 (m, 1H), 3,33-3,32 (m, 3H), 3.27-3.24 (m, 5H); 13C NMR (100 MHz, MeOD-d 4): δ 174,3, 168,5, 166,4, 154,6, 137,1, 136,7, 135,1, 134,7, 131,4, 132,6, 131,3, 130,8, 129,8, 128,9, 127,97, 127,8, 127,9, 127,6, 127,5, 127,2, 126,8, 125,6, 123,5, 123,24, 123,2, 118,6, 117,8, 116,1, 111,1, 109,6; HRMS (ESI+): m/z berekend voor C40H39BrN8O3 [M + H]+: 759,2401, gevonden: 759,2407.
De synthese van RK758 werd uitgevoerd met een totale opbrengst van 17% uit Cbz-L-Tryptofaan in 7 stappen (Figuur 4). Het totale rendement van dit proces was 44% voor key intermediate 7 en 19% voor RK758. De 1H NMR-gegevens geven een hoge zuiverheid van de uiteindelijke verbinding aan zonder grote detecteerbare onzuiverheden.
Kolonie PCR-screening bevestigde succesvolle invoeging van de Mel4- en His-KSI-Mel4-cassettes in geselecteerde transformanten (Figuur 5A). PCR-analyse van miniprep-geïsoleerde plasmiden bevestigde de verwachte amplicongrootte verder, wat correcte constructassemblage vóór transformatie naar BL21(DE3) voor expressie ondersteunde (Figuur 5B).
Recombinante productie en zuivering van sterk cationisch antimicrobiëel peptide Mel4
Hoewel Mel4 commercieel werd verkregen van AusPep Peptide Company met een minimale zuiverheid van 90%, werd het gesynthetiseerd door SPPS, en werd ook een recombinante benadering toegepast om Mel4 biologisch te produceren. Aan het einde van het protocol bevestigde Western blot-analyse van het Total Cell Protein (TCP) uit de gelyseerde celpellet de expressie van het recombinante HIS-KSI-Mel4 fusie-eiwit. De eiwitmonsters werden gescheiden door SDS-PAGE en gevisualiseerd met behulp van een eiwitladder als molecuulgewichtreferentie. Een duidelijke band die overeenkomt met het verwachte molecuulgewicht van het HIS-KSI-Mel4 fusie-eiwit werd waargenomen, wat de succesvolle expressie van het doeleiwit in de gastheercellen bevestigde (Figuur 5B).
Uit de eiwitsequentie van het geselecteerde motief werd de theoretische aminozuursamenstelling berekend en vergeleken met de experimentele aminozuuranalyseresultaten verkregen van het gezuiverde HIS-KSI-TEV-Mel4 IB-peptide. De vergelijking toonde een goede correlatie aan tussen de voorspelde en experimenteel bepaalde aminozuurverhoudingen, waarmee de nauwkeurigheid van de tot expressie uitgedrukte peptidesequentie en de succesvolle isolatie ervan in de inclusielichaamsfractie werd bevestigd (Tabel 2).
Asparagine wordt omgezet in asparaginezuur en glutamine in glutaminezuur. De aminozuuranalysemethode is ongevoelig voor cysteïne en tryptofaan en deze worden niet met deze methode geanalyseerd. Deze overweging moet worden meegenomen bij de analyse van de resultaten.
Antibacteriële activiteit van Mel4 en RK758
De minimale remmende concentraties (MIC's) van RK758, Mel4 en colistine werden geëvalueerd op twee gramnegatieve bacteriële stammen, K. pneumoniae JIE 2709 en E. coli NCTC 13846 (Tabel 3). RK758 vertoonde een MIC van 16 μg/mL (21 μM) tegen zowel K. pneumoniae als E. coli. Ter vergelijking: Mel4 toonde MIC's van 62,5 μg/mL (26,6 μM) voor K. pneumoniae en 125 μg/mL (53,2 μM) voor E. coli, wat wijst op een lagere potentie dan RK758. Colistine werd gebruikt als vergelijkend antibioticum, waarbij de laagste MIC van 1 μg/mL (0,87 μM) voor K. pneumoniae werd aangetoond, terwijl de colistine-resistente E. coli referentiestam een MIC van 8 μg/mL (6,9 μM) vertoonde.
Cytotoxiciteitseffect van Mel4 en RK758
Het cytotoxische potentieel van Mel4 en RK758 werd beoordeeld in L929-muisfibroblastcellen (ATCC CCL-1) met behulp van de MTT-test na 24 uur blootstelling aan seriële concentraties. Beide verbindingen vertoonden typische sigmoïdale dosis-responscurves, geanalyseerd door niet-lineaire regressie met het "inhibitor vs. genormaliseerde respons - variabele helling" model in GraphPad Prism (versie 9.5.1), waarmee concentratieafhankelijke remming van cellevensvatbaarheid werd bevestigd. RK758 vertoonde een CC50-waarde van 172,6 μM, terwijl Mel4 een iets hogere cytotoxische potentie vertoonde met een CC50 van 147,5 μM, wat ongeveer 1,17 keer zoveel cytotoxiciteit vertegenwoordigt dan RK758 (Figuur 6 en Figuur 7).
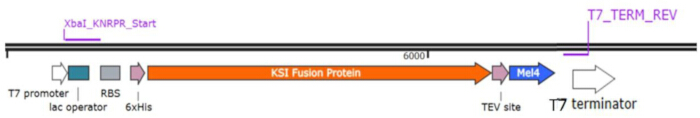
Figuur 1: Een schematische weergave van de expressiecassette van p15TV-L-His-KSI-Mel4. Schematische kaart van het p15TV-L expressieconstruct toont de T7-promotor, ribosoombindingsplaats (RBS), 6× Zijn zuiveringstag, ketosteroïde isomerase (KSI) fusiepartner, TEV-protease-splitsingsplaats en de Mel4-peptidesequentie gevolgd door de T7-transcriptieterminator. Klik hier om een grotere versie van deze figuur te bekijken.
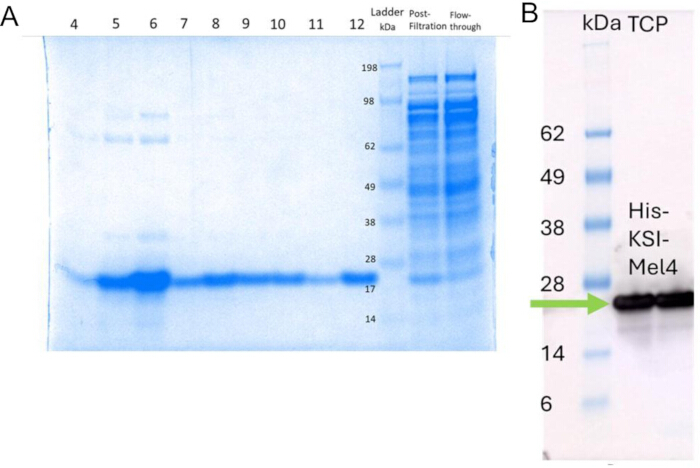
Figuur 2: SDS-PAGE en western blot-analyse van recombinante eiwitexpressie. (A) SDS-PAGE van inclusielichamen en totale celeiwitten na filtratie en doorstroming van ruwe cellysaat. (B) Westerse blot van totaal celproteïne. Groene pijl geeft de positie aan van het eiwit van belang bij het verwachte molecuulgewicht. Klik hier om een grotere versie van deze figuur te bekijken.
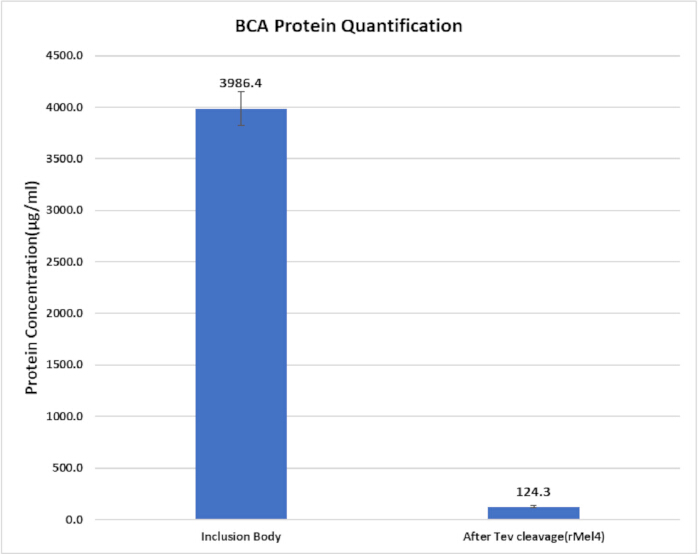
Figuur 3: Kwantificering van recombinant eiwit vóór en na TEV-splitsing. Staafgrafiek die eiwitconcentraties toont bepaald door BCA-assay voor de geïsoleerde inclusie-lichaamsfractie en de gesplitste recombinante Mel4 verkregen na TEV-proteasebehandeling. Foutbalken geven experimentele variatie tussen metingen aan. Klik hier om een grotere versie van deze figuur te bekijken.
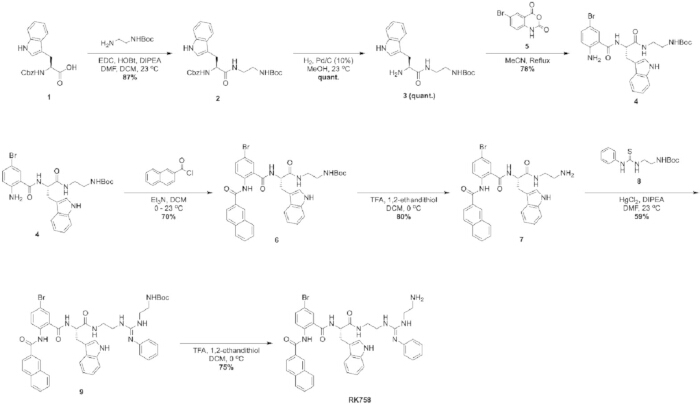
Figuur 4: Algemene synthetische benadering om RK758 te verkrijgen. Reactieschema dat de zevenstappenchemische synthese van RK758 beschrijft, beginnend met Cbz-L-tryptofaan, inclusief intermediaire vorming, functionele groeptransformaties en uiteindelijke deprotectie om de peptide-mimic te verkrijgen. Klik hier om een grotere versie van deze figuur te bekijken.
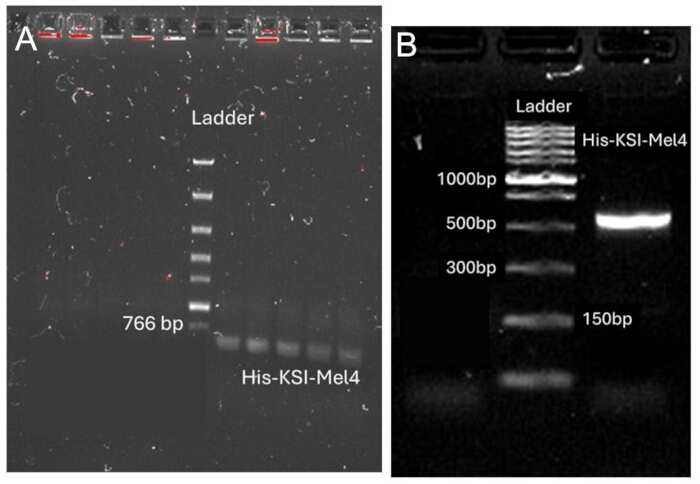
Figuur 5: Agarosegelelektroforese van recombinante plasmiden. (A) Kolonie PCR van transformanten voor His-Mel4 en His-KSI-Mel4. (B) PCR-bevestiging van plasmiden na miniprep. Klik hier om een grotere versie van deze figuur te bekijken.
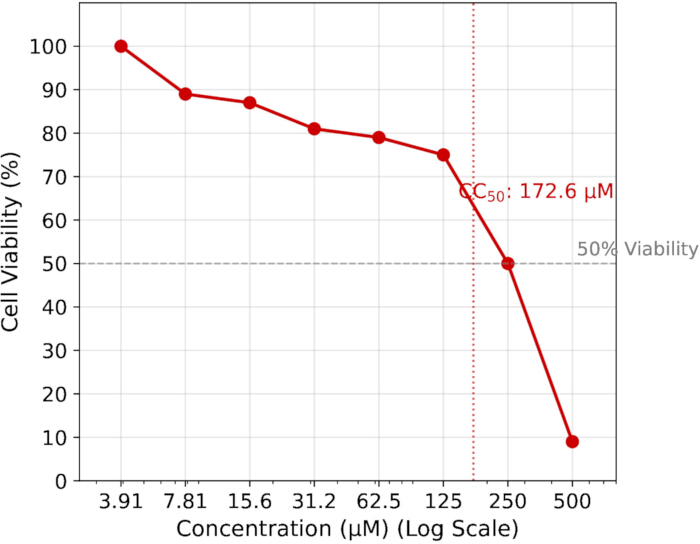
Figuur 6. Cytotoxiciteit van RK758 tegen L929 fibroblastcellen. Dosis-responscurve toont het effect van RK758 op cellevensvatbaarheid bij toenemende concentraties. CC50-waarden werden berekend door niet-lineaire regressie met behulp van het "inhibitor vs. normalized response - variable slope"-model in GraphPad Prism, waarmee concentratieafhankelijke remming van cellevensvatbaarheid werd bevestigd. Data vertegenwoordigt het gemiddelde ± SD van drie onafhankelijke biologische replicaten. Klik hier om een grotere versie van deze figuur te bekijken.
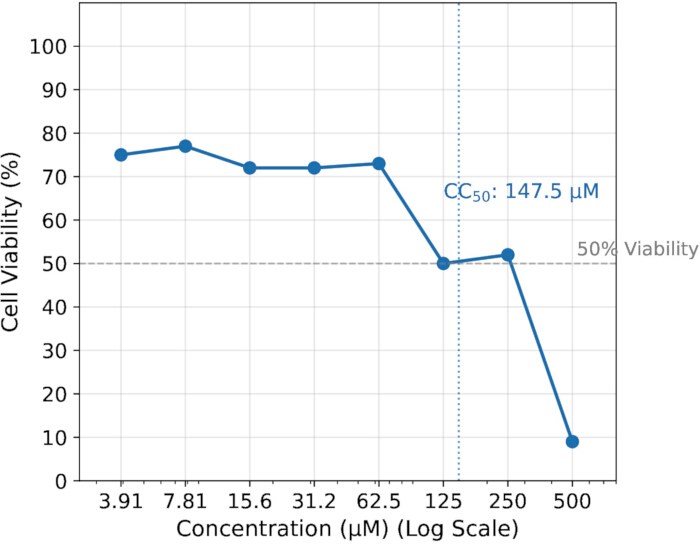
Figuur 7: Cytotoxiciteit van Mel4 tegen L929-cellen. Dosis-responscurve toont het concentratieafhankelijke effect van Mel4 op cellevensvatbaarheid. CC50-waarden werden berekend door niet-lineaire regressie met behulp van het "inhibitor vs. normalized response - variable slope"-model in GraphPad Prism, waarmee concentratieafhankelijke remming van cellevensvatbaarheid werd bevestigd. Data vertegenwoordigt het gemiddelde ± SD van drie onafhankelijke biologische replicaten. Klik hier om een grotere versie van deze figuur te bekijken.
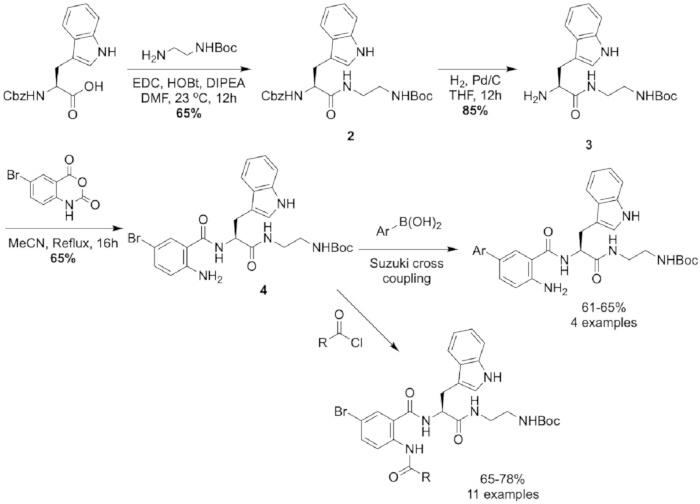
Figuur 8: Aangepaste synthetische strategie beginnend met Cbz-L-tryptofaan. Alternatieve synthetische route die de bereiding van anthranilamide tussenproducten illustreert met behulp van Cbz-L-tryptofaan en daaropvolgende functionalisatiestappen om structurele diversificatie mogelijk te maken. Klik hier om een grotere versie van deze figuur te bekijken.
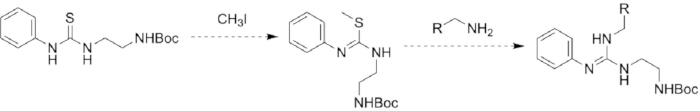
Figuur 9: Alkylering van thiourea gevolgd door nucleofiele substitutie met een amine-substraat. Voorgestelde reactieroute waarbij alkylatie van de thioureazwavel gevolgd wordt door nucleofiele substitutie met een aminesubstraat om guanidinehoudende producten te genereren. Klik hier om een grotere versie van deze figuur te bekijken.
| Sectie | Naam/Kenmerk | Reeks | |||
| Primers | XbaI_KNRPR_Start | 5'-TAGGGGAATTGTGAGCGGATAACAATTCCCCTCTAGAAATAATT-3' | |||
| T7_TERM_REV | 5'-CCAAGGGGTTATGCTAGTTATTGCTCA-3' | ||||
| Gencassette | His-KSI-Mel4 aminozuursequentie | MDHHHHHHMIDETQRKATVLEYFERVNAKDLDGVVKLF ATDAVVADPVGAPPVAGEEALRAYFQRVLHEFDTHDVPGV PSGAQDGQSVALPLKATINNPQDPTGGVRLDVNLVSVFTIG EDGLISEMRAYWGLTDIAPAGASSGRENLYFQGKNKRKRRR RRRGGRRRR | |||
| DNA-sequentie | 5'-TAACAATTCCCCTCTAGAAATAATTTTTTAACTTTAAGAAGGA GATATACCATGGATCACCACCACCACCATCACCACATGATTGACGAGAC GCAACGTAAAAGCGACGGTGTTAGAGTATTTTGAACGGGTGAATGCAA AAGACTTGGATGGCGTGGTTAAACTCTTTGCGACGGACGCCGTTGT AGCCGACCCTGTTGGTGCACCACCAGTGGCTGGTGAGGAGGCACTC CGTGCCTACTTCCAGCGCGTCTTGCATGAATTTGACACCCATGATGTCC CGGGCGTTCCATCTGGTGCTCAGGATGGCCAATCAGTCGCACTCCCAC TTAAAAGCAACCATCAACAATCCTCAAGATCCAACAACAGGCGGGGTCCGCC TTGATGTGAACTTAGTGAGCGTATTCACGATTGGCGAAGACGGGTTAAT CTCCGAGATGCGTGCGTGGGGGGGTTGACTGATGATGATGCTCCGGCAGGT GCAAGCAGTGGTCGGGAGAACTTGTACTTCCAAGGTAAAGAACAAGCGTA AGAGACGCCGGCGCCGCCGGGGGGAGGAGAGGTCGTCCTAATCGAAC TCGAGATCCGGCT-3' | ||||
Tabel 1: Primersequenties gebruikt voor PCR-verificatie en volledige gencassettesequentie van het uiteindelijke plasmideconstruct.
| Aminozuur | Berekend | Getest |
| Histidine | 4.70% | 4.70% |
| Serine | 3.60% | 3.40% |
| Arginine | 10.70% | 9.20% |
| Glycine | 9.50% | 11% |
| Asparaginazuur | 11.30% | 11.50% |
| Glutaminezuur | 8.90% | 8.90% |
| Threonine | 4.70% | 4.60% |
| Alanine | 9.50% | 9.70% |
| Proline | 5.30% | 5.30% |
| Lysine | 4.10% | 4.50% |
| Tyrosine | 2.40% | 2.20% |
| Methionine | 1.80% | 1.90% |
| Isoleucine | 3.00% | 3.20% |
| Leucine | 7.10% | 7.40% |
| Fenyalanine | 3.60% | 3.60% |
| Valine | 9.50% | 8.90% |
| Tryptofaan | 0.60% | - |
Tabel 2: Analyse van aminozuursamenstellingen.
| Bacteriële stammen | MIC μg/mL (μM) | ||
| RK758 | Mel4 | Colistin | |
| K. pneumoniae JIE 2709 | 16 (21) | 62.5 (26.6) | 1 (0.87) |
| E. coli NCTC 13846 | 16 (21) | 125 (53.2) | 8 (6.9) |
Tabel 3: MIC van RK758, Mel4 en colistine tegen gramnegatieve bacteriën.
Discussie
Het hier beschreven protocol biedt een uitgebreid kader voor de productie en functionele evaluatie van de kationische AMP Mel4 (die kan worden aangepast voor gebruik met andere AMP's) en de peptide-nabootser RK758. Deze workflow combineert meerstapschemische synthese of recombinante expressie in E. coli met antimicrobiële en cytotoxiciteitstests. De integratie van deze benaderingen biedt een veelzijdig platform voor systematisch AMP-onderzoek, waardoor directe vergelijkingen mogelijk zijn tussen chemisch gesynthetiseerde en biologisch geproduceerde peptiden. Verschillende stappen in dit protocol zijn bijzonder cruciaal voor succesvolle peptideproductie en -activiteitsbeoordeling.
RK758 is een synthetische peptide-nabootser gebaseerd op een anthranilamide-steiger. Tijdens de compoundscreeningfase voor de ontdekking van nieuwe AMP-nabootsers is het moeilijk om in silicoscreening een compoundbibliotheek te plannen. Daarom is het belangrijk om deze mimics te baseren op een steiger die diversiteit in de bibliotheek van verbindingen mogelijk maakt. Het anthranilamide-steiger werd om deze reden gekozen. Een bijkomend voordeel van een op anthranilamide gebaseerde steiger is dat het metaboliet RK758, 5-Bromoanthranilic acid, antimicrobiële eigenschappen heeft getoond.
Eerdere werken die de structuur en antibacteriële werking van RK758 en analogen optimaliseerden, gebruikten verschillende synthetische procedures. De oorspronkelijke structuuroptimalisatiestudie onderzocht het effect van verschillende kationische groepen en substituenten op de antropische fenylgroep. Daarom begon de synthese met het ringopenen van isatoïsche anhydridederivaten met L-tryptofaanmethylester. Het product kon vervolgens worden aangepast zoals aangetoond door Kuppusamy et al.15. Een vervolgonderzoek onderzocht de structuur en locatie van de hydrofobe groep. De vervolgstudie toonde aan dat het door bromo gesubstitueerde steiger verschillende hydrofobe groepen op de naphthylpositie tolereerde en dat intermediair 4 vatbaar was voor Suzuki-kruiskoppeling bij de bromopositie, zoals weergegeven in Figuur 8.
Het huidige werk heeft enkele problemen van de eerdere benaderingen aangepakt. In de benadering zoals weergegeven in Figuur 4, ondanks de synthese van tussentijdse 11 die zuivering rapporteert via trituratie met diethylether, hebben pogingen om dit resultaat te repliceren inmiddels geholpen aan gummy, onzuivere mengsels die chromatografische zuivering vereisen. Daarnaast vereiste intermediate 6 ook chromatografische zuivering met deze methode. Over het geheel genomen behaalde het oorspronkelijke werk een intermediair opbrengst van 7 in 21% in zes stappen uit L-tryptofaan methylesterhydrochloride. De tweede benadering15, hoewel lager gerend (14% van Cbz-L-tryptofaan), leverde tussenproducten op die gemakkelijker in minder stappen te hanteren waren.
Deze studie stelde vast dat het koppelen van Cbz-L-Trp aan N-Boc-ethylenediamine optimalisatie vereiste om te garanderen dat er geen rest-DMF in het product achterbleef, zoals werd waargenomen tijdens de eerste studies om deze reactie op te schalen. Het gebruik van een gemengd oplosmiddelsysteem met een 3:8 (v/v) verhouding van DMF tot DCM verminderde de hoeveelheid DMF, waardoor verwijdering tijdens de voorbereiding eenvoudiger werd; Het vervangen van gechloreerde oplosmiddelen kan echter zorgen oproepen over de milieueffect. Deze aanpassing verbeterde ook het opbrengst tot 87%, wat waarschijnlijk wordt toegeschreven aan het ureumbijproduct van EDC dat neerslaat in het DCM-mengsel en als drijvende kracht voor de reactie fungeert. De hydrogenering werd ook als een bottleneck geïdentificeerd, aangezien deze reacties doorgaans >90% opleveren. Deze studie toonde aan dat het vervangen van THF door methanol 3 kwantitatieve opbrengst opleverde, vergeleken met 85% in eerder onderzoek, en de reactietijd werd verminderd tot 4 uur. Dit kan ook worden toegeschreven aan het gebruik van een zuiverder uitgangsmateriaal, aangezien de oorspronkelijke studie waarschijnlijk restanten van DMF bevatte, wat de palladiumkatalysator zou kunnen hebben vergiftigd. Over het algemeen is de opbrengst naar intermediate 7 in 5 stappen gestegen tot 48% ten opzichte van Cbz-L-Tryptofaan. In eerdere experimenten (hierboven besproken) was de totale opbrengst 21%, met 14% voor vervolgreacties, terwijl in deze studie een totale opbrengst van 48% werd behaald voor verbinding 7, wat de diversiteit aan analogen aantoont die kunnen worden gesynthetiseerd uit passend gesubstitueerde isatoïsche anhydridederivaten.
Het sterk gedeactiveerde amine in anthranilamide 4 (zie Figuur 8) vereist drie equivalenten zuurchloride voor een efficiënte reactie. Wanneer alleen stoichiometrische hoeveelheden worden gebruikt, treedt onvolledige omzetting van 4 naar 6 op, wat de zuivering bemoeilijkt vanwege de vergelijkbare chromatografische en oplosbaarheidskenmerken van tussenproducten 4 en 6. De auteurs erkennen dat dit een beperking van het steiger is en werken aan een nieuwe methodologie om het benodigde overtollige zuurchloride te verminderen.
De voorlaatste reactie om thiourea 8 aan amine 7 te verbinden vereist kwikchloride (II), dat zeer giftig en zeer schadelijk voor het milieu is, waardoor deze methode voor grootschalige synthese mogelijk wordt uitgesloten. Deze benadering werd gebruikt in het huidige werk, aangezien de door kwik (II) gemedieerde hechting van thioureas bij kamertemperatuur plaatsvindt. Een alternatieve methode met thiourea 8 houdt in dat het zwavelatoom alkyliseert, gevolgd door nucleofiele substitutie met een aminesubstraat, zoals weergegeven in Figuur 9. Dit type reactie is gerapporteerd, maar in veel gevallen vereist het verhoogde temperaturen en basische omstandigheden die kunnen leiden tot de vorming van zijproducten met de substraten20,21. Alternatief is een fotokatalytische benadering gerapporteerd door Saetan et al.20 met een vergelijkbaar gemethyleerd thioureumsubstraat. Ze melden dat deze reactie plaatsvindt bij omgevingstemperatuur onder bestraling met licht van een witte LED. Er werd gemeld dat deze reactie plaatsvindt met verschillende primaire en secundaire aminen, wat resulteert in producten van meer dan 80%. Voor de laatste reactie levert trituratie met diethylether gevolgd door vriesdroog een product op dat doorgaans geen verdere zuivering vereist (>95% zuiver door 1H NMR in MeOD-d4). De primaire onzuiverheid is residu, met een hoog kookpunt 1,2-ethanedithiol, die gemakkelijk te detecteren is aan zijn kenmerkende koolachtige geur. Recombinante expressie van Mel4 vereist inductie bij een optimale optische dichtheid (OD600, 0,5–0,6) en zorgvuldig handhaven van de inductietemperatuur om de vorming van het inclusielichaam te maximaliseren terwijl de levensvatbaarheid van bacteriënbehouden blijft.
Antimicrobiële en cytotoxiciteitsassays omvatten ook stappen die essentieel zijn voor het verkrijgen van nauwkeurige, reproduceerbare resultaten. Nauwkeurige inoculumvoorbereiding en seriële verdunning van peptiden zijn vereist, aangezien kleine variaties in bacteriële dichtheid of de patibiliteit van peptiden de gemeten MIC- en MBC-waarden16 aanzienlijk kunnen veranderen. Bij MTT-cytotoxiciteitstests zijn nauwkeurige celtelling, uniforme zaaiing en volledige formazan-oplossing cruciaal om betrouwbare metabole metingen te verkrijgen23.
Verschillende aanpassingen aan het protocol kunnen veelvoorkomende uitdagingen aanpakken. Peptiden met beperkte waterige oplosbaarheid kunnen worden opgelost in 0,01% azijnzuur16 , terwijl peptiden of mimics ook opgelost kunnen worden in DMSO24 of aangevuld kunnen worden met 0,1–0,2% BSA17 om adsorptie aan plastic oppervlakken tijdens MIC-bepaling te voorkomen. Recombinante inclusielichamen kunnen worden opgelost en opnieuw gevouwen door de concentraties van guanidiniumchloride of ureum aan te passen, gevolgd door stapsgewijze dialyse. Voor MTT-assays kan zacht schudden en volledige DMSO-oplossing de variatie in absorptiemetingen verminderen.
Het belang van dit protocol ligt in de integratie van complementaire productie- en evaluatiestrategieën, wat voordelen biedt ten opzichte van standaard single-method benaderingen. Veel studies richten zich op één methode voor de productie van peptiden of nabootsingen, maar geen enkele benadering is ideaal voor alle verbindingen; Het kiezen van de juiste methode op basis van peptide-eigenschappen zorgt voor optimale opbrengst en functionaliteit. Zo maakt chemische synthese een nauwkeurige opname van niet-natuurlijke aminozuren en peptide-mimics4 mogelijk, wat lastig kan zijn in recombinante systemen. Omgekeerd biedt recombinante expressie kosteneffectieve productie van sterk kationische peptiden25 die tijdens chemische synthese kunnen aggregeren. Door beide methoden te combineren met gestandaardiseerde functionele assays, maakt het protocol een rigoureuze karakterisering van AMP-activiteit en cytotoxiciteit mogelijk, waarmee het de reikwijdte van standaard MIC-assays alleenovertreft 26.
In vergelijking met traditionele zelfstandige benaderingen is dit protocol breed toepasbaar voor antimicrobiële peptideonderzoek en de ontwikkeling van therapeutische methoden. Het kan worden aangepast om structuur-activiteitsrelaties te onderzoeken, de potentie van peptiden te optimaliseren en toxiciteit te beoordelen. Bovendien kunnen de methoden high-throughput screening van peptidebibliotheken, studie van bacteriële resistentiemechanismen en evaluatie van combinatietherapieën met conventionele antibiotica ondersteunen. Naast antibacteriële toepassingen kan deze workflow ook worden toegepast op antivirale of antischimmelpeptide-tests, oppervlaktecoatings voor infectiepreventie en biomedische toepassingen zoals biofilmverstoring of immunomodulatie.
Samenvattend biedt dit protocol een veelzijdige en reproduceerbare workflow voor de productie, zuivering en functionele evaluatie van AMP's en peptide-mimics. Door kritische methodologische overwegingen aan te pakken, strategieën voor probleemoplossing te bieden en diverse toepassingen mogelijk te maken, legt het een solide basis voor antimicrobiële en biomedische onderzoeken.
Openbaarmakingen
De auteurs hoeven geen belangenconflicten aan te geven.
Dankbetuigingen
De auteurs willen graag het Mark Wainwright Analytical Centre and Recombinant Product Facility (RPF) aan de University of New South Wales erkennen. In het bijzonder de Bioanalytische Massaspectrometriefaciliteit voor HRMS-analyse en de NMR-faciliteit voor toegang tot NMR-instrumenten.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1,2-ethanedithiol | Oakwood | M03555 | |
| 100X Antibiotics | Sigma Aldrich | A5955-20ML | |
| 1-Ethyl-3-(3-dimethylaminopropyl)carbodiimide Hydrochloride | Combi Blocks | SS-7536 | Verder gerefereerd als EDC |
| 2-Naphthoyl chloride | Combi Blocks | OR-0173 | |
| Acetic acid | Ajax Finechem | R18401O | |
| Acetonitrile | VWR | 20060.35 | |
| Alkaline phosphatase | New England Biolabs | M0525S | |
| Bovine serum albumin (BSA) | Sigma Aldrich | A1933 | |
| Cation-adjusted Mueller-Hinton Broth (CAMHB) | Becton, Dickinson and Company | 212322 | |
| Cbz-L-Trp | Combi Blocks | QB-6691 | |
| Colistin | Sigma Aldrich | C4461 | |
| Dey-Engley (D/E) Neutralising Broth | Oxoid | R453042 | |
| Diatomaceous earth (Celite 545) | Sigma Aldrich | 102693 | 0.02-0.1 mm deeltjesgrootte |
| Dichloromethane (DCM) | VWR | 23366.327 | |
| Diethyl ether | Chem-Supply | EA036 | |
| Dimethyl Sulfoxide (DMSO) | Chem-Supply Pty Ltd | LCS-CHEM-0098 | |
| Dithiothreitol(DTT) | Thermo Scientific | J15397.03 | |
| DMEM culture medium | Thermo Fisher Scientific | UCS-BIO-0058 | |
| E. coli BL21(DE3) host | Sigma Aldrich | 70235-M | |
| Electroporator | Thermo Scientific | NEON1SK | |
| Ethyl acetate | Chem-Supply | EA011-2.5L-P | |
| Ethylenediaminetetraacetic acid (EDTA) | Thermo Scientific | 118432500 | |
| Fetal Bovine Serum (FBS) | Sigma Aldrich | 12003C-500ML | |
| His-tagged TEV Protease | Sigma Aldrich | T4455 | |
| Hydroxybenzotriazole Hydrate | Chem-Implex | 24755 | |
| Imidazole | Thermo Scientific | 288-32-4 | |
| Isopropyl β-D-1-thiogalactopyranoside (IPTG) | Sigma Aldrich | I6758 | |
| Luria-Bertani Broth (LB), | Thermo Scientific | 12795027 | |
| Lysis Buffer | Thermo Scientific | 89822 | |
| Mercury (II) Chloride | Sigma Aldrich | 215465 | |
| Methanol (HPLC Grage) | VWR | A452-4K | |
| MTT reagent | Sigma Aldrich | M2128-100MG | |
| N,N-Diisopropylethylamine (DIPEA) | Sigma Aldrich | 3440 | |
| N,N-Dimethyl formamide (DMF) | Chem-Supply | RP1051 | |
| NanoDrop | Thermo Scientific | ND-ONE | |
| N-Boc-ethylenediamine | Combi blocks | AM-1613 | |
| NTA Affinity Resin Column | Sigma Aldrich | 70666 | |
| Palladium on carbon | Sigma Aldrich | 205699 | 10% w/w Pd |
| Plasmid Purification kit | QIAGEN | 27104 | |
| Polypropylene microtiter tubes | SARSTEDT | 72.690.008 | |
| Silica Gel for flash column chromatography | Silicycle | R12030B | Silica Gel 60, 230-400 mesh |
| Silica gel Thin layer chromatography plate | Merk | 1055540001 | 0.2 mm laagdikte op aluminium achterkant met 254 nm fluorescente indicator |
| Sodium phosphate, 0.2M buffer soln | Thermo Scientific | J63816.AP | |
| Sterile flat-bottomed 96-well polypropylene microtiter plate with lid | Corning | 3599 | |
| T4 DNA Ligase | New England Biolabs | M0202S | |
| Triethylamine (Et3N) | Chem-Supply | TR02151000 | |
| Trifluoroacetic acid (TFA) | Sigma Aldrich | T6508 | |
| Tris-HCL | Thermo Scientific | J62848.AK | |
| Triton X-100 | Thermo Scientific | A16046.AE | |
| Trypan blue | MP BIOMEDICALS AUSTRALIA PTY LTD | ||
| Trypsin-EDTA (0.25%) | Sigma Aldrich | T4049-500ML | |
| Trypticase soya agar | Becton, Dickinson and Company | 211043 | |
| Urea | Thermo Scientific | 29700 | |
| Vector (T7 promoter) | - | high-copy number plasmid naar keuze |
Referenties
- Naghavi, M., et al. Global burden of bacterial antimicrobial resistance 1990–2021: a systematic analysis with forecasts to 2050. Lancet. 404 (10459), 1199-1226 (2024).
- Antimicrobial resistance. , World Health Organization. Available at: https://www.who.int/news-room/fact-sheets/detail/antimicrobial-resistance (2023).
- Puri, B., Vaishya, R., Vaish, A. Antimicrobial resistance: Current challenges and future directions. Med. J. Armed Forces India. 81 (3), 247-258 (2025).
- Zhang, T., Jin, Q., Ji, J. Antimicrobial peptides and their mimetics: promising candidates of next-generation therapeutic agents combating multidrug-resistant bacteria. Adv. Biol. 9 (4), 2400461(2025).
- Pasupuleti, M., Schmidtchen, A., Malmsten, M. Antimicrobial peptides: key components of the innate immune system. Crit. Rev. Biotechnol. 32 (2), 143-171 (2012).
- Oliveira Júnior, N. G., et al. Antimicrobial peptides: structure, functions and translational applications. Nat. Rev. Microbiol. , (2025).
- Keshri, A. K., et al. LL-37, the master antimicrobial peptide, its multifaceted role from combating infections to cancer immunity. Int. J. Antimicrob. Agents. 65 (1), 107398(2025).
- Alzain, M., et al. Antimicrobial peptides: mechanisms, applications, and therapeutic potential. Infect. Drug Resist. , 4385-4426 (2025).
- Kuppusamy, R., Willcox, M., Black, D. S., Kumar, N. Short cationic peptidomimetic antimicrobials. Antibiotics. 8 (2), (2019).
- Xu, J. Peptides chemistry, manufacturing, and controls. Peptide Science: Chemical Ligation, Lead Generation, and Therapeutic Advances. , 471-508 (2025).
- Wang, Q., et al. Expression and purification of antimicrobial peptide buforin IIb in Escherichia coli. Biotechnol. Lett. 33 (11), 2121-2126 (2011).
- Cai, Z., et al. Peptide synthesis: a review of classical and emerging methods. Biofabrication. 18 (1), 012001(2026).
- Gentilucci, L., De Marco, R., Cerisoli, L. Chemical modifications designed to improve peptide stability: incorporation of non-natural amino acids, pseudo-peptide bonds, and cyclization. Curr. Pharm pseudo-peptide. Des. 16 (28), 3185-3203 (2010).
- Kuppusamy, R., et al. Tuning the anthranilamide peptidomimetic design to selectively target planktonic bacteria and biofilm. Antibiotics. 12 (3), 585(2023).
- Kuppusamy, R., et al. Guanidine functionalized anthranilamides as effective antibacterials with biofilm disruption activity. Org. Biomol. Chem. 16 (32), 5871-5888 (2018).
- Wiegand, I., Hilpert, K., Hancock, R. E. Agar and broth dilution methods to determine the minimal inhibitory concentration (MIC) of antimicrobial substances. Nat. Protoc. 3 (2), 163-175 (2008).
- Ji, S., et al. Adsorption and morphology analysis of bovine serum albumin on a micropillar-enhanced quartz crystal microbalance. J. Phys. Chem. B. 128 (41), 10247-10257 (2024).
- Yasir, M., Dutta, D., Willcox, M. D. Activity of antimicrobial peptides and ciprofloxacin against Pseudomonas aeruginosa biofilms. Molecules. 25 (17), (2020).
- Methods for the determination of susceptibility of bacteria to antimicrobial agents. terminology. Clin. Microbiol. Infect. 4 (5), 291-296 (1998).
- Saetan, T., Sukwattanasinitt, M., Wacharasindhu, S. A mild photocatalytic synthesis of guanidine from thiourea under visible light. Org. Lett. 22 (20), 7864-7869 (2020).
- Woodring, J. L., et al. Disrupting the conserved salt bridge in the trimerization of influenza A nucleoprotein. J. Med. Chem. 63 (1), 205-215 (2019).
- Terpe, K. Overview of bacterial expression systems for heterologous protein production: from molecular and biochemical fundamentals to commercial systems. Appl. Microbiol. Biotechnol. 72 (2), 211-222 (2006).
- Berridge, M. V., Herst, P. M., Tan, A. S. Tetrazolium dyes as tools in cell biology: new insights into their cellular reduction. Biotechnol. Annu. Rev. 11, 127-152 (2005).
- Deni, W. H., Gao, T., Wu, J. Protocol for reconstituting peptides/peptidomimetics from DMSO to aqueous buffers for circular dichroism analyses. STAR Protoc. 5 (1), 102850(2024).
- Lou, M., et al. Microbial production systems and optimization strategies of antimicrobial peptides: a review. World J. Microbiol. Biotechnol. 41 (2), 66(2025).
- Hancock, R. E., Sahl, H. G. Antimicrobial and host-defense peptides as new anti-infective therapeutic strategies. Nat. Biotechnol. 24 (12), 1551-1557 (2006).
Herprints en machtigingen
