Deze studie identificeerde gedeelde genen, biologische routes, immuunassociaties en potentiële therapeutische doelwitten achter type 2 diabetes mellitus en atherosclerotische cardiovasculaire ziekten via geïntegreerde bio-informatica en experimentele validatie.
Onderzoeksartikel
Veelvoorkomende moleculaire mechanismen en kandidaat-geneesmiddeldoelen bij type 2 diabetes mellitus en atherosclerotische hart- en vaatziekten
In dit artikel
Samenvatting
Samenvatting
Deze studie onderzocht de mechanismen die ten grondslag liggen aan de comorbiditeit tussen type 2 diabetes mellitus (T2DM) en atherosclerotische hart- en vaatziekte (ASCVD), terwijl potentiële therapeutische doelwitten werden geïdentificeerd. Veelvoorkomende differentieel tot expressie gebrachte genen (C-DEG's) tussen T2DM en ASCVD werden geëxtraheerd uit de GSE78721 en GSE12288 datasets. Gene Ontology (GO) en Kyoto Encyclopedia of Genes and Genomes (KEGG) routeverrijkingsanalyses, het bouwen van eiwit-eiwitinteractie (PPI) netwerken, hubgenidentificatie en analyse van de Drug-Gene Interaction Database (DGIdb) werden uitgevoerd. De associatie tussen hub C-DEG's en immuuninfiltrerende cellen werd geanalyseerd met behulp van de CIBERSORT-methode. De expressieniveaus van hub C-DEG's werden gekwantificeerd via qRT-PCR en Western blot-analyses. In totaal werden 32 C-DEG's geïdentificeerd, bestaande uit 20 upregulated en 12 downregulated genen. C-DEG's waren voornamelijk verrijkt in belangrijke routes, waaronder virale myocarditis, aritmagogene rechterventrikelcardiomyopathie, hypertrofische cardiomyopathie en gedilateerde cardiomyopathie. PPI-analyse toonde 29 knooppunten en 39 randen aan, wat leidde tot de identificatie van acht hub C-DEG's (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C en CS) in beide datasets. Bovendien toonden hub C-DEG's (TOP3A, SLPI, NCF4, PRF1 en PLAU) significante correlaties aan met immuuninfiltrerende celniveaus. Geneesmiddelen die specifiek gericht zijn op deze hub C-DEG's bieden veelbelovende kandidaten voor de behandeling van T2DM en ASCVD. Daarnaast werd de expressie van hub C-DEG's op zowel mRNA- als eiwitniveau gevalideerd bij patiënten met T2DM en ASCVD. Een geïntegreerde bio-informatische analyse maakte het mogelijk om kandidaten voor therapeutische doelen, mechanismen en medicijnen voor T2DM en ASCVD te screenen, en bood nieuwe inzichten in moleculaire therapieën voor deze aandoeningen.
Inleiding
Diabetes mellitus (DM) is een chronische ziekte met een complexe etiologie die wordt beïnvloed door verschillende genetische en omgevingsfactoren, en treft momenteel naar schatting 463 miljoen mensen wereldwijd, naar verwachting stijgend tot 700 miljoen in 2045 1,2. Type 2 diabetes mellitus (T2DM) is een multifactoriële aandoening die wordt gekenmerkt door insulineresistentie en een relatief insulinetekort als gevolg van bètacelfalen, wat leidt tot hyperglykemie en dyslipidemie, en goed is voor 90% van de DM-gevallen 3,4,5. Insulineresistentie dient als een belangrijke voorloper van talrijke cardiovasculaire metabole afwijkingen die samen de ontwikkeling van atherosclerotische hart- en vaatziekten (ASCVD) bevorderen en de prognose ervan kunnen beïnvloeden 6,7. Coronaire hartziekte (CAD) ontstaat voornamelijk door de progressieve ophoping van atherosclerotisch materiaal, wat resulteert in luminale vernauwing en obstructie van de bloedtoevoer8. Atherosclerose wordt veroorzaakt door meerdere factoren, waaronder hypercholesterolemie en diabetes 9,10. De aanzienlijke menselijke en financiële lasten die gepaard gaan met T2DM en CAD, samen met uitdagingen in het langetermijnbeheer, onderstrepen de dringende noodzaak van effectieve preventieve strategieën.
Patiënten met CAD en gelijktijdige T2DM lopen een aanzienlijk hoger risico op hartgebeurtenissen11. Hart- en vaatziekten (CVD) zijn een veelvoorkomende complicatie van T2DM en vormen de belangrijkste doodsoorzaak onder T2DM-patiënten, waarbij ongeveer 32,2% wordt getroffen door CVD12. De LoDoCo2-substudie bevestigt dat gelijktijdige T2DM correleert met een verhoogd risico op grote nadelige cardiovasculaire gebeurtenissen in chronische CAD-populaties13. Personen met T2DM lopen een verhoogd risico op ASCVD14,15, en degenen met chronische CAD die ook diabetes hebben, lopen een significant groter risico op latere cardiovasculaire gebeurtenissen16, wat een kritieke onvervulde behoefte aan innovatieve behandelingsopties benadrukt.
Een groeiend aantal onderzoeksgroepen screent op nieuwe differentieel expressieve genen (DEGs) in T2DM en ASCVD door uitgebreide analyses van transcriptomische gegevens uit diverse databases. De inspanningen zijn gericht op het verduidelijken van het verband tussen deze ziekten en het identificeren van effectieve biologische functies. Recente bio-informatica studies hebben T2DM onderzocht in relatie tot andere aandoeningen; zo identificeerden Song et al. gedeelde DEG's tussen T2DM en artrose17, voorspelden Castillo-Velázquez et al. de relatie tussen de ziekte van Alzheimer en DM18, en werden belangrijke genen en routes in T2DM en polycysteus ovariumsyndroom herkend via bio-informatica analyse19. De moleculaire mechanismen die T2DM en ASCVD verbinden zijn echter nog slecht begrepen, wat het belang benadrukt van het identificeren van nieuwe potentiële therapeutische doelen om de progressie van beide aandoeningen te behandelen.
Deze studie heeft als doel om systematisch gedeelde moleculaire routes en potentiële therapeutische doelen tussen T2DM en ASCVD te identificeren door een geïntegreerde bio-informatica-analyse uit te voeren van transcriptomische gegevens uit de GSE78721 (T2DM) en GSE12288 (ASCVD) datasets. Deze datasets zijn gekozen vanwege het leveren van gematchte patiënten- en controlemonsters voor elke ziekte, waarbij vergelijkbare microarray-platforms worden gebruikt om robuuste vergelijkende analyses mogelijk te maken. De huidige aanpak omvatte het identificeren van veelvoorkomende DEG's (C-DEGs), het uitvoeren van functionele verrijking en eiwitinteractie-analyses, het evalueren van associaties met immuuninfiltratie en het voorspellen van interagerende geneesmiddelen. Daarnaast werd voorlopige experimentele validatie uitgevoerd. Dit werk biedt nieuwe inzichten en kandidatendoelstellingen om de comorbiditeit van T2DM en ASCVD te begrijpen.
Protocol
Dit studieprotocol werd beoordeeld en goedgekeurd door de Institutionele Beoordelingsraad van de Ningxia Medische Universiteit voor ethiek (Internal Review Board Referentienummer: Ethiek [2023]-YCSKT-002) en voldeed aan de principes uiteengezet in de Verklaring van Helsinki. Schriftelijke toestemming werd verkregen van alle patiënten die bij het onderzoek betrokken waren voorafgaand aan hun deelname.
Bronnen van expressiegegevens voor T2DM en ASCVD
Genexpressiegegevens voor T2DM en ASCVD werden verkregen uit respectievelijk de GSE78721- en GSE12288-datasets, afkomstig uit de GEO-database. Beide datasets maakten gebruik van microarraygegevens van de [PrimeView] Affymetrix Human Gene Expression Array en de [HG-U133A] Affymetrix Human Genome U133A Array platforms. De GSE78721-dataset bevatte expressiegegevens van 68 T2DM-patiënten en 62 normale steekproeven (details in Aanvullende Tabel 1), terwijl de GSE12288-dataset expressiegegevens bestond uit 110 ASCVD-monsters en 112 normale controles (details in Aanvullende Tabel 2). Genprobes werden omgezet naar hun bijbehorende gensymbolen op basis van platformannotatie-informatie.
Identificatie van differentieel tot expressie gebrachte genen in T2DM en ASCVD
Na het downloaden van de gegevens uit de GEO-database werden ruwe expressiematrices voor T2DM en ASCVD gecorrigeerd en genormaliseerd met behulp van het softwarepakket "limma" om DEK's te identificeren. Voor DEG-screening werd een drempel van P < 0,05 toegepast. Differentiële expressieresultaten werden gevisualiseerd met behulp van de 'heatmap' en 'ggplot2' R-pakketten om respectievelijk een heatmap en een vulkaangrafiek te genereren. C-DEG's tussen T2DM en ASCVD werden geïdentificeerd via een Venn-diagram.
Functieanalyse van de Genontologie (GO) en de Kyoto Encyclopedia of Genes and Genomes (KEGG) routeverrijkingsanalyses van C-DEG's
Biologische functies en routes werden bepaald via GO- en KEGG-routeverrijkingsanalyses. De R-pakketorganisatie. Hs.eg.db werd gebruikt om C-DEG-namen om te zetten naar gen-ID's, en GO-verrijkingsanalyse werd uitgevoerd met de R-pakketten clusterProfiler, enrichplot, ggplot2 en GOplot om veelvoorkomende biologische functies van de C-DEG's te verkennen. Vervolgens werd KEGG-analyse uitgevoerd om gedeelde significante routes te identificeren die betrokken zijn bij de moleculaire mechanismen die ten grondslag liggen aan de comorbiditeit van T2DM en ASCVD. De verrijkingsresultaten van GO en KEGG werden weergegeven in staafdiagrammen die gentellingen, functionele beschrijvingen en P-waarden illustreren, met statistische significantie gedefinieerd als P < 0,05.
Analyse van eiwit-eiwitinteractie (PPI) netwerken van C-DEG's
C-DEG's en hubgenen werden in deze studie gedefinieerd als gedeelde genen. Om functionele associaties tussen deze gedeelde genen te beoordelen, werd een PPI-netwerk opgebouwd met behulp van de STRING-database (https://string-db.org). De analyse begon met het selecteren van "Meerdere eiwitten" onder de functie "ZOEKEN" en het invoeren van de C-DEG-namen, terwijl de soort werd gespecificeerd als "Homo sapiens." Basisparameters voor de C-DEG's werden geconfigureerd om het PPI-reguleringsnetwerk weer te geven. De visualisatie van het PPI-netwerk werd uitgevoerd met behulp van Cytoscape-software (versie 3.9.1) (https://apps.cytoscape.org/), die een grafische weergave bood van de interacties tussen de C-DEG's. Hub C-DEG's werden binnen het PPI-netwerk geïdentificeerd met behulp van de CytoHubba-plugin in Cytoscape, gebaseerd op het Degree ranking-algoritme.
Analyse van immuuncelinfiltratie
Om de verschillen in immuuncelinfiltratie tussen de T2DM-groep en de normale controlegroep te onderzoeken, werd de CIBERSORT-methode gebruikt om de overvloed van verschillende immuuninfiltrerende celtypen te beoordelen. Het Wilcoxon-testalgoritme werd vervolgens toegepast om de verhoudingen van deze infiltrerende immuuncellen tussen T2DM- en controlemonsters te vergelijken, wat de evaluatie van waargenomen verschillen vergemakkelijkte. De visualisatie van de gegevens werd bereikt via vioolplotten. Om de correlatie tussen C-DEG's en immuuninfiltrerende cellen te valideren, werden R-pakketten zoals limma, scales, tidyverse en ggplot2 gebruikt om Spearman-correlatiecoëfficiënten te berekenen. Deze stap kwantificeerde de relatie tussen C-DEG-expressie en infiltratieniveaus van immuuncellen, waarbij de resultaten werden weergegeven als heatmaps. Een P-waarde van minder dan 0,05 werd als statistisch significant beschouwd.
Interactieanalyse van hub C-DEG's met potentiële gerichte geneesmiddelen
De Drug-Gene Interactie Database (DGIdb) biedt een uitgebreide catalogus van geneesmiddel-geninteracties en genetische profielen van goedgekeurde en potentiële therapeutische middelen. In deze studie werd de lijst met hub C-DEG's ingevoerd in de database om interactie-informatie tussen de hub C-DEG's en hun potentiële doelgeneesmiddelen op te halen, die vervolgens werd gevisualiseerd met behulp van Cytoscape-software.
Experimentele validatie van kerngenen door klinische monsters
Om de kerngenen experimenteel te valideren, werden perifere bloedmonsters verzameld van klinische proefpersonen. De studiecohort bestond uit een experimentele groep en een controlegroep. De experimentele groep bestond uit 15 patiënten die de diagnose T2DM en ASCVD hadden gekregen, wat een comorbide aandoening vertegenwoordigt. De controlegroep bestond uit 10 gezonde vrijwilligers op leeftijd en geslacht zonder een voorgeschiedenis van diabetes, hart- en vaatziekten of andere grote systemische aandoeningen. Alle patiënten in de experimentele groep werden definitief gediagnosticeerd volgens vastgestelde klinische richtlijnen voor T2DM en ASCVD.
Kwantitatieve real-time polymerasekettingreactie (qRT-PCR)
Totaal RNA werd geïsoleerd met behulp van TRIzol-reagens, en eerste-streng cDNA werd gesynthetiseerd met een Reverse Transcription System Kit. Het cDNA werd vervolgens verdund voor qRT-PCR met behulp van SYBR-green PCR Master Mix, waarbij GAPDH als interne controle diende. Relatieve vouwveranderingen in expressie werden berekend met de 2−ΔΔCt-methode . De primers die voor de analyse werden gebruikt waren als volgt: TUBA1C-vooruit: 5′-GACCTCGTGTTGGACCGAAT-3′ en achteruit: 5′-CGAGGTGAACCCAGAACCAG-3′; NCF4-voor: 5′-CTAAGTTTCAAAGCTGGAGATGTG-3′ en achteruit: 5′-GAATTCCTGAAAGGGCTCCTG-3′; PRF1-voor: 5′-CCCAGTGGACACACAAAGGTT-3′ en achteruit: 5′-TCGTTGCGGATGCTACGAG-3′; SLPI-vooruit: 5′-CCCTTCCTGGTGCTGCTT-3′ en achteruit: 5′-CCTCCTTGTGTGTTTTTGGGG-3′; HSP90B1 voor: 5′-CCGAAGAAGAACCTGAAGAG-3′ en achteruit: 5′-CATCTGTTCCCACATCCATT-3′; PLAU-voor: 5′-GGGGAGATGAAGTTTGAGGTGG-3′ en achteruit: 5′-GCAATGTGTGGTGGTGAGC-3′; GAPDH-voor: 5′-CAGGGCTGCTTTTAACTCTGG-3′ en achteruit: 5′-GGGTGGAATCATATTGGAACA-3′.
Western blot assay
Het totale eiwit werd geïsoleerd, verdund in de laadbuffer en gescheiden door 10% SDS-PAGE, gevolgd door overdracht naar PVDF-membranen. De membranen werden geblokkeerd en onderzocht met specifieke primaire antilichamen, waaronder anti-TUBA1C (1:1000, ab222849), anti-HSP90B1 (1:1000, ab238126), anti-NCF4 (1:1000, 14648-1-AP), anti-PRF1 (1:1000, ab256453), anti-SLPI (1:1000, ab46763), anti-PLAU (1:1000, 17968-1-AP) en anti-GAPDH (1:5000, 10494-1-AP). Secundaire antilichamen geconjugeerd met mierikswortelperoxidase (HRP) (1:2000, ab6721) werden toegepast en banden werden zichtbaar gemaakt met behulp van een versterkt chemiluminescente (ECL) substraat.
Statistische analyse
Statistische analyse werd uitgevoerd met GraphPad Prism Software, waarbij de gegevens werden weergegeven als gemiddelde ± SD. Verschillen tussen groepen werden beoordeeld met behulp van de Student's t-test, en een P-waarde van minder dan 0,05 werd als statistisch significant beschouwd.
Resultaten
Identificatie van DEG's
Twee datasets, GSE78721 en GSE12288, werden in deze studie gebruikt voor bio-informatica-analyse. In GSE78721 werden in totaal 2.266 DEG's geïdentificeerd tussen T2DM-patiënten en normale monsters, bestaande uit 1.209 upreguliere en 1.057 downgereguleerde genen (Figuur 1A). In GSE12288 werden 924 DEG's geverifieerd tussen ASCVD-patiënten en controlegroepen, waaronder 403 genen die overexpressief waren en 521 genen die werden verlaagd (Figuur 1C). De top 50 DEG's die in beide datasets zijn geïdentificeerd, worden weergegeven in heatmaps in Figuur 1B,D. Door deze twee datasets te kruisen, werden 32 C-DEG's geïdentificeerd, bestaande uit 20 opgereguleerde en 12 neergereguleerde genen (Figuur 2A,B).
GO- en KEGG-verrijking van de C-DEG's
Om de biologische functies en belangrijke routes die geassocieerd zijn met de 32 C-DEGs te verduidelijken, werden GO- en KEGG-analyses uitgevoerd. De top tien termen gerelateerd aan biologisch proces (BP), cellulaire component (CC) en moleculaire functie (MF) onder de C-DEG's worden weergegeven in Figuur 3A. De BP-functies omvatten voornamelijk regulatie van plasminogeenactivatie, regulatie van fibrinolyse, positieve regulatie van cardiocytendifferentiatie, negatieve regulatie van eiwitbinding en cardioblastdifferentiatie. De functies van de CC hebben betrekking op het serine-type endopeptidasecomplex, eiwitcomplexen die betrokken zijn bij cel-matrixadhesie, gecondenseerd chromosoom, specifiek granulemembraan en PML-lichaam. De MF omvat structurele bestanddelen van het cytoskelet, superoxide-genererende NADPH oxidase-activatoractivatie, intramoleculaire transferaseactiviteit (fosfotransferases), serine-type exopeptidase-activiteit en IgG-binding (Figuur 3A). Wat betreft KEGG-analyse waren de C-DEG's voornamelijk betrokken bij kritieke routes, waaronder virale myocarditis, aritmogene rechterventrikel cardiomyopathie, complement- en stollingscascades, prostaatkanker, hypertrofische cardiomyopathie, gedilateerde cardiomyopathie, apoptose, fagosoom en eiwitverwerking in het endoplasmatisch reticulum (Figuur 3B).
Constructie van PPI-netwerken en hubgen-screening
Van de 32 C-DEG's vertoonden drie genen geen bekende interacties met andere C-DEG's in de STRING-database en werden daarom uitgesloten van de PPI-netwerkconstructie. Het STRING-platform werd gebruikt voor PPI-analyse van de resterende 29 C-DEG's, waarbij een netwerk van 29 knooppunten en 39 randen werd onthuld, dat werd gevisualiseerd met Cytoscape (Figuur 4A). Vervolgens werden acht hub C-DEG's (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C en CS) geïdentificeerd op basis van hun connectiviteitsgraad (Figuur 4B).
Verschillen in immuuncelinfiltratie en hun correlatie met hub C-DEG's
Deze analyse richtte zich uitsluitend op de T2DM-dataset (GSE78721) om voorlopig veranderingen in de immuunmicro-omgeving te onderzoeken in de context van T2DM en hun relatie met hubgenen. Vioolgrafieken werden gebruikt om de relatie tussen de T2DM-dataset en de infiltratieniveaus van 22 immuunceltypen te visualiseren (Figuur 5A; details in Aanvullende Tabel 3). De infiltratieanalyse van immuuncellen toonde een hoger aandeel geactiveerde dendritische cellen in de T2DM-groep vergeleken met de controlegroep (P = 0,049), terwijl het aandeel rustende dendritische cellen significant lager was in de T2DM-groep (P = 0,023). Bovendien werd de relatie tussen de expressieniveaus van de acht hub C-DEG's en de infiltratieniveaus van de 22 verschillende immuunceltypen gevisualiseerd met behulp van een heatmap (Figuur 5B). Opmerkelijk is dat TOP3A-expressie een sterke positieve correlatie vertoonde met het infiltratieniveau van regulerende T-cellen (Tregs) (P < 0,001), terwijl SLPI-expressie sterk positief gecorreleerd was met gamma-delta T-celinfiltratie (P < 0,001). Omgekeerd vertoonde NCF4-expressie een sterke negatieve correlatie met het infiltratieniveau van geactiveerde NK-cellen (P < 0,001), was PRF1-expressie sterk negatief gecorreleerd met het infiltratieniveau van M2-macrofagen (P < 0,001), en was de expressie van PLAU sterk negatief gerelateerd aan het infiltratieniveau van naïeve B-cellen (P < 0,001).
Kandidaat geneesmiddelendoelnetwerk voor hub C-DEG's
Van de acht geïdentificeerde hub C-DEGs werden CS en TOP3A niet vermeld als bekende geneesmiddeldoelen in de DGIdb-database en werden ze daarom uitgesloten van de daaropvolgende kandidaat-geneesmiddel-doelgroep netwerkanalyse. Om geneesmiddelen met potentiële therapeutische rollen in T2DM en ASCVD te identificeren, werden de resterende zes hub C-DEG's ingediend in de DGIdb-database (details in aanvullende tabel 4). Vervolgens werd Cytoscape ingezet om een kandidaat-geneesmiddel-doelnetwerk op te bouwen dat de verbanden tussen hub C-DEG's en kandidaat-gerichte geneesmiddelen illustreert (Figuur 6). Dit netwerk bestond uit zes hub C-DEG's, 136 moleculaire geneesmiddelen en 137 randen. Specifiek werden 82, 5, 5, 4, 1 en 42 kandidaat-doelgeneesmiddelen geïdentificeerd voor respectievelijk TUBA1C, NCF4, PRF1, SLPI, HSP90B1 en PLAU, waarbij de meerderheid werd geclassificeerd als antineoplastische middelen, ontstekingsremmende middelen en antitrombotische middelen.
Validatie van hub C-DEGs-expressie
Vanwege het ontbreken van CS en TOP3A als kandidaat-geneesmiddeldoelwitten in de DGIdb-database en hun biologische functies minder direct gerelateerd aan therapeutische strategieën in de context van T2DM- en ASCVD-onderzoek, richtte de studie zich op de overige zes hub-C-DEG's (HSP90B1, PLAU, SLPI, NCF4, PRF1 en TUBA1C) voor experimentele validatie. Om de rollen van deze hub C-DEGs verder te onderzoeken, werden qRT-PCR en western blot-assays uitgevoerd om de expressieniveaus van kerngenen over verschillende groepen te beoordelen (Figuur 7 en Figuur 8). De expressieniveaus van TUBA1C, NCF4, SLPI, HSP90B1 en PLAU waren significant geupreguleerd bij patiënten met T2DM en ASCVD vergeleken met corresponderende gezonde controlegroepen, terwijl de PRF1-expressie werd gedownreguleerd. Deze bevindingen suggereren dat deze kerngenen een belangrijke rol kunnen spelen in de progressie van patiënten met T2DM en ASCVD.
BESCHIKBAARHEID GEGEVENS:De genexpressiedatasets GSE78721 en GSE12288 gebruikt voor bio-informatische analyse in deze studie zijn beschikbaar in de openbare NCBI GEO-database. De ruwe gegevens uit het experimentele validatiegedeelte dat in deze studie wordt gegenereerd, worden verstrekt in Aanvullend Bestand 1.
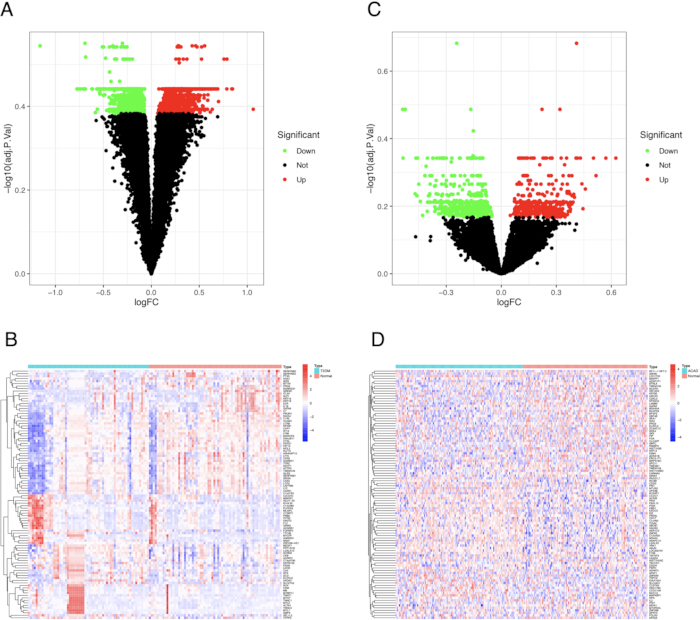
Figuur 1: Identificatie van DEG's in de datasets GSE78721 en GSE12288. (A,C) De vulkaangrafieken van DEG's in respectievelijk GSE78721 en GSE12288. |logFC|≥ 0,5 en P < 0,05 werden vastgesteld als screeningsdrempel; De upreguliere genen werden als rood gemarkeerd, en de downgereguleerde genen als groen. (B,D) Heatmaps van de top 50 DEG's in respectievelijk GSE78721 en GSE12288. Klik hier om een grotere versie van deze figuur te bekijken.
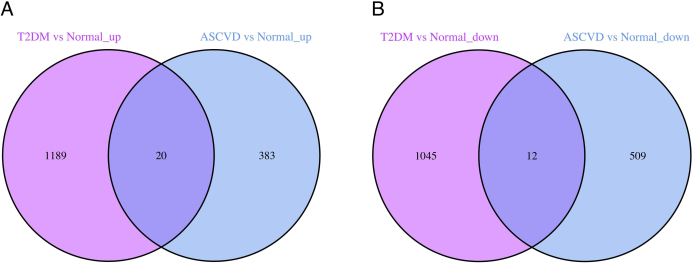
Figuur 2: Venn-diagram van C-DEG's uit twee datasets. (A) Venn-diagram van opgereguleerde C-DEG's van T2DM en ASCVD in GSE78721 en GSE12288 datasets. (B) Venn-diagram van gedownreguleerde C-DEG's van T2DM en ASCVD in GSE78721 en GSE12288 datasets. Klik hier om een grotere versie van deze figuur te bekijken.
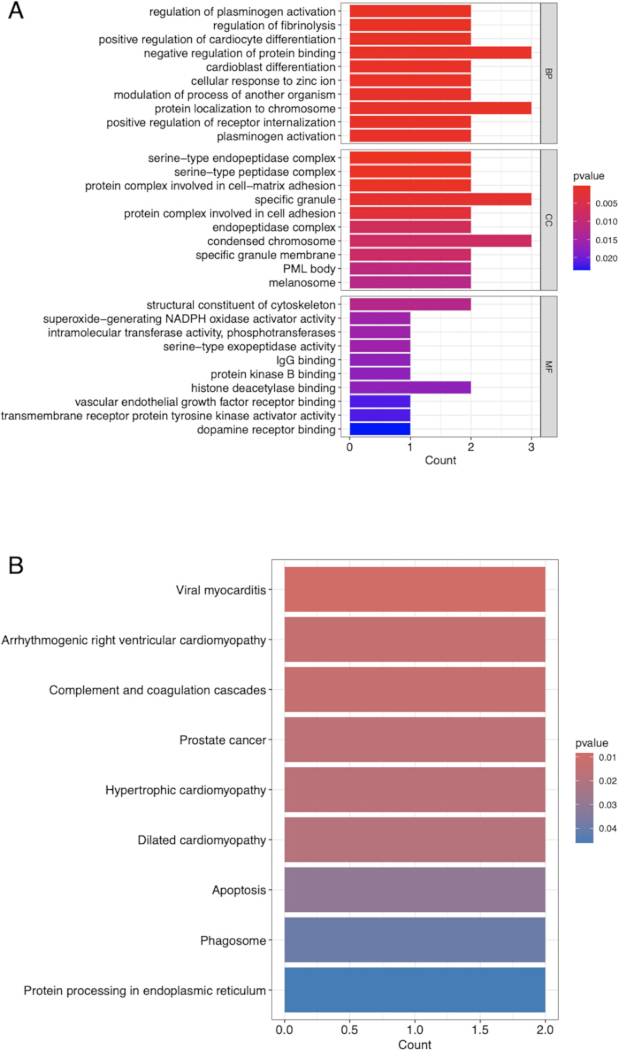
Figuur 3: Analyse van functionele en padverrijking van C-DEG's. Staafdiagrammen van GO (A) en KEGG (B) verrijkingsanalyses. Verticale coördinaten geven de beschrijving aan van verschillende GO-items of KEGG-paden, en horizontale coördinaten geven het aantal verrijkte C-DEGs aan. Klik hier om een grotere versie van deze figuur te bekijken.
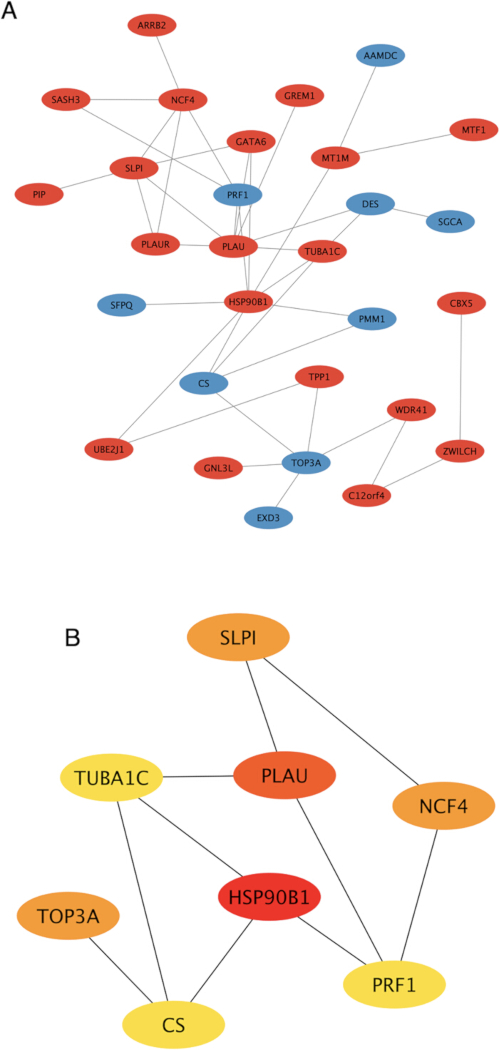
Figuur 4: PPI-netwerk- en hubgenscreening van C-DEG's. (A) Het PPI-netwerk van C-DEG's. Rood en blauw vertegenwoordigen respectievelijk de upreguleerde en downgereguleerde C-DEG's. (B) Acht hubgenen werden geïdentificeerd onder de C-DEG's. Knooppunten vertegenwoordigen een C-DEG, en randen vertegenwoordigen de interactie tussen C-DEG's. Klik hier om een grotere versie van deze figuur te bekijken.
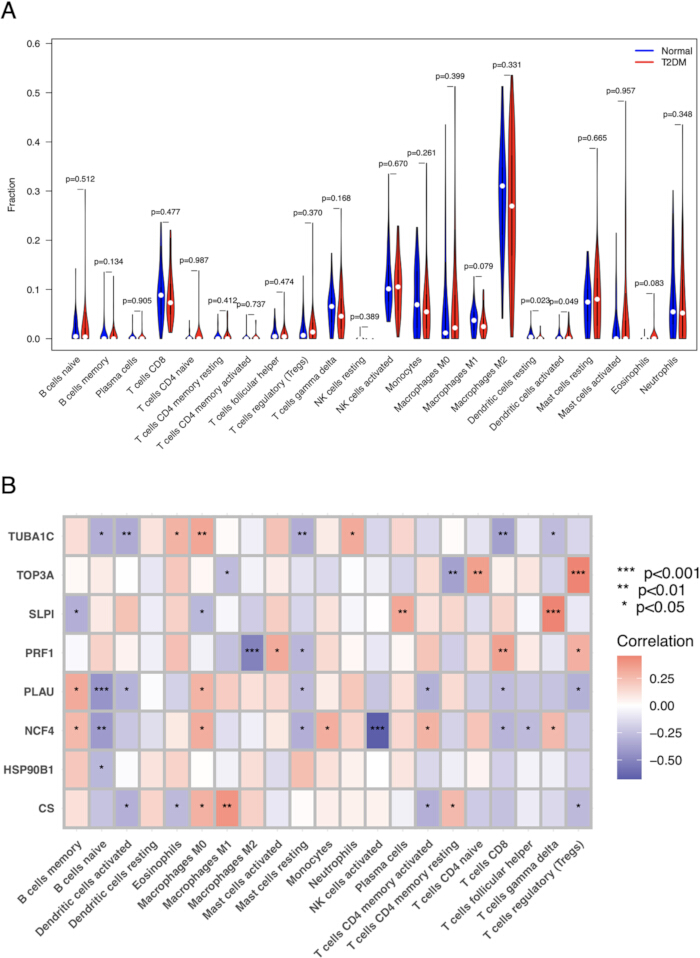
Figuur 5: Analyse van immuuncelinfiltratie. (A) Verschillen in de infiltratie van 22 immuunceltypen tussen de T2DM-groep en de controlegroep. Horizontale as: subtypen immuuncellen; Verticale as: relatieve infiltratieniveau van immuuncellen. (B) Correlatie-warmtekaart van de expressie van 8 hub C-DEG's en de infiltratieniveaus van 22 immuunceltypen. Rode vierkanten: positieve correlatie; Blauwe vierkanten: negatieve correlatie. Donkerdere kleuren duiden op sterkere correlaties. Klik hier om een grotere versie van deze figuur te bekijken.
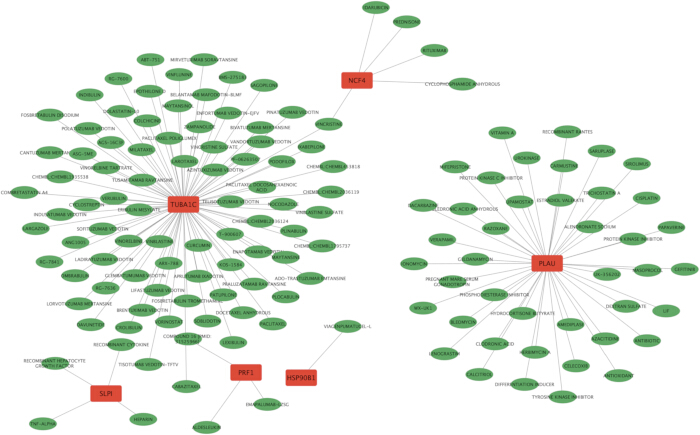
Figuur 6: Kandidaat geneesmiddel-doelnetwerk voor zes hub C-DEG's. Rode knooppunten vertegenwoordigen hub C-DEG's, groene knooppunten geven kandidaatgerichte geneesmiddelen voor en de randen ertussen vertegenwoordigen interactieparen. Klik hier om een grotere versie van deze figuur te bekijken.
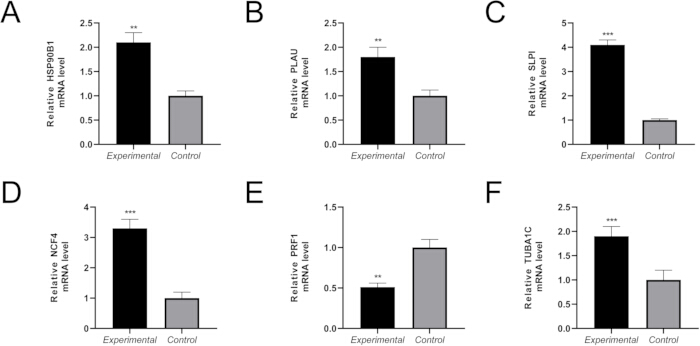
Figuur 7: Validatie van kerngenexpressie bij patiënten met T2DM en ASCVD door qRT-PCR. De mRNA-expressieniveaus van HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) en TUBA1C (F) werden gedetecteerd door qRT-PCR. Klik hier om een grotere versie van deze figuur te bekijken.
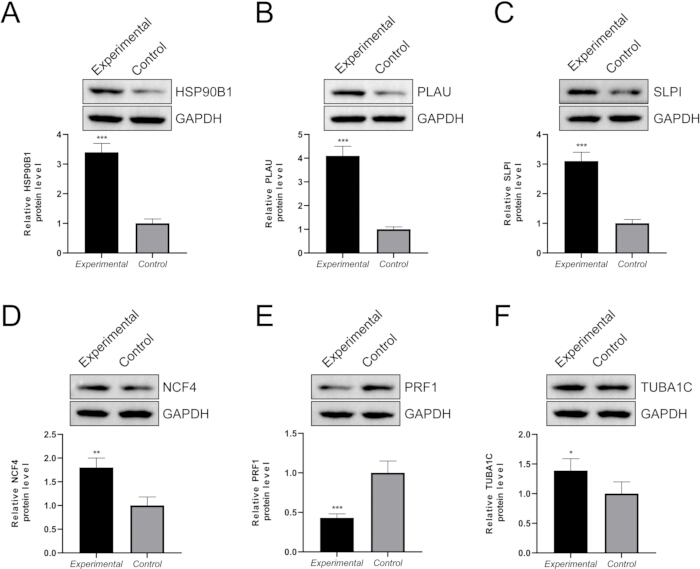
Figuur 8: Validatie van kerngenexpressie bij patiënten met T2DM en ASCVD door Western blot. De eiwitexpressieniveaus van HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) en TUBA1C (F) werden gedetecteerd door Western blot-assays. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende Tabel 1. Genexpressiematrix voor de GSE78721 dataset, gebruikt voor de T2DM-transcriptomische analyse in deze studie. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 2. Genexpressiematrix voor de GSE12288 dataset, gebruikt voor de ASCVD-transcriptomische analyse in deze studie. Klik hier om dit bestand te downloaden.
Aanvullende tabel 3: Analyse van immuuncelinfiltratie in de GSE78721 dataset. Klik hier om dit bestand te downloaden.
Aanvullende tabel 4: Kandidaat-geneesmiddel-doelinteracties voor hub-gemeenschappelijke differentieel expressieve genen. Klik hier om dit bestand te downloaden.
Aanvullend Bestand 1: De ruwe gegevens van het experimentele validatiegedeelte dat in deze studie is gegenereerd. Klik hier om dit bestand te downloaden.
Discussie
T2DM en ASCVD zijn complexe ziekten, met opkomend bewijs dat wijst op een significant verband tussen de twee. Insulineresistentie dient als een cruciale voorloper van verschillende cardiovasculaire metabole afwijkingen, waaronder T2DM, die samen bijdragen aan de ontwikkeling van ASCVD en de prognose kunnen beïnvloeden 6,7. Daarnaast is DM een drijvende factor in de progressie van atherosclerose20. Mensen met T2DM lopen een verhoogd risico op CAD21, maar er blijven vragen hangen over de onderliggende mechanismen van comorbiditeit. Deze studie heeft als doel de relatie en mechanismen die deze twee ziekten verbinden te onderzoeken, naast het identificeren van potentiële biomarkers via bio-informatische analyse en experimentele validatie.
In deze studie werden in totaal 32 C-DEG's geïdentificeerd tussen T2DM en ASCVD, bestaande uit 20 upregulatieve en 12 downgereguleerde genen. GO- en KEGG-verrijkingsanalyses toonden aan dat deze C-DEG's voornamelijk verrijkt waren in kritieke metabole routes die nauw verwant zijn aan zowel CAD als T2DM 22,23. Acht hub C-DEG's (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C en CS) werden gescreend over beide omstandigheden. Opmerkelijk is dat hub C-DEG's (TOP3A, SLPI, NCF4, PRF1 en PLAU) significant geassocieerd waren met de infiltratieniveaus van immuuncellen. HSP90B1 is betrokken bij kankerprogressie24 en kan ook associaties hebben met T2DM25. Er is aangetoond dat PLAU een rol speelt bij het voorkomen van voortijdige vasculaire veroudering die samenhangt met T2DM26 en is cruciaal voor de progressie van atherosclerotische plaque, waarbij het inzicht biedt in vroege waarschuwingsbiomarkers en mechanismen verduidelijkt ten grondslag aan CAD-progressie27. De expressie van SLPI neemt toe bij progressieve metabole disfunctie28 en is geïdentificeerd als een C-DEG geassocieerd met verminderde glucosetolerantie en T2DM29. NCF4 heeft verbanden gelegd met CAD30 en draagt bij aan de regulatie van NADPH oxidase-activiteit en inflammasoomactivatie31. Vanwege de sleutelrol van PRF1 in immuunmonitoring en regulatie32, heeft het diagnostisch potentieel, waarbij het onderscheid maakt tussen myocardinfarct en stabiel CAD33. Bovendien fungeert PRF1 als een cruciale immuunregulerende speler bij obesitasgerelateerde insulineresistentie34. TUBA1C is ook in verband gebracht met kankers en wordt in verband gebracht met immuuninfiltratie binnen de tumormicro-omgeving35. Het is geïdentificeerd als een vatbaarheidsgen voor coronaire hartziekte36. De relatie tussen ASCVD en T2DM is echter nog onderbelicht.
KEGG-analyse toonde de betrokkenheid van deze kandidaatgenen aan in routes zoals "Complement- en Coagulation Cascades" en "Eiwitverwerking in Endoplasmatisch Reticulum." Experimentele validatie van sleutelgenen binnen deze routes, specifiek PLAU (een serineprotease betrokken bij fibrinolyse en stolling) en HSP90B1 (een endoplasmatisch reticulum chaperon), bevestigde hun disregulatie in ons T2DM-model. Deze bevindingen plaatsen ons onderzoek binnen een specifiek moleculair kader, wat suggereert dat onevenwichtigheden in de stressrespons van het endoplasmatisch reticulum en de trombolytische routes integraal kunnen zijn voor diabetische pathologie, en verder reiken dan de algemeen erkende ontstekingsprocessen.
Uitgebreid onderzoek heeft disfunctionele immuunresponsen gedocumenteerd bij diabetische patiënten37. Abnormale activatie van immuuncellen speelt een cruciale rol in de progressie van T2DM38,39. Immuno-infiltratieanalyse toonde een significante verandering in het dendritische celcompartiment in T2DM, gekenmerkt door een verhoogd aandeel geactiveerde dendritische cellen en een lager aandeel rustende dendritische cellen (Figuur 5A). Dit wijst op een staat van verbeterde antigeenpresentatie en immuunactivatie in T2DM, wat mogelijk bijdraagt aan chronische ontstekingsschade in doelweefsels. Bovendien suggereren sterke correlaties tussen specifieke hubgenen (bijv. NCF4 met geactiveerde NK-cellen, PRF1 met M2-macrofagen) (Figuur 5B) mechanistische verbanden tussen genexpressie in metabole weefsels en de lokale samenstelling van immuunmicro-omgevingen, waarmee nieuwe doelwitten voor immunomodulerende interventies worden geïdentificeerd.
Daarnaast werd een geneesmiddel-doelnetwerk analyse uitgevoerd om potentiële therapeutische doelwitten, onderliggende mechanismen en medicijnen voor T2DM en ASCVD te voorspellen. Dit kandidaat-geneesmiddel-doelnetwerk omvatte zes hub C-DEGs, 136 moleculaire geneesmiddelen en 137 randen. De analyse leverde respectievelijk 82, 5, 5, 3, 4, 1 en 42 kandidaat-doelgeneesmiddelen op voor TUBA1C, NCF4, PRF1, SLPI, HSP90B1 en PLAU. De meerderheid van deze medicijnen wordt geclassificeerd als antineoplastische middelen, ontstekingsremmende middelen en antitrombotica. Opmerkelijk is dat sommige geneesmiddelen, waaronder Rituximab, Prednison, antioxidanten, Verapamil, antibiotica, Colchicine en Heparine, therapeutische functies hebben aangetoond in zowel T2DM 15,40,41,42,43,44,45,46 als CAD 15,47,48,49,50, 51,52,53,54,55, wat hun potentiële therapeutische effecten aangeeft bij patiënten met T2DM en CAD. Bovendien zijn verschillende geneesmiddelen zoals Alendronaatnatrium, Calcitriol, Celecoxib, Masoprocol, Mifepriston en Curcumine aangetoond therapeutische functies te vertonen, specifiek in T2DM 56,57,58,59,60,61,62,63, wat ook gunstig kan zijn voor ASCVD. Validatie van de expressie van deze hub C-DEG's in T2DM en ASCVD werd ook uitgevoerd.
Deze studie kent verschillende beperkingen. Ten eerste waren de klinische steekproefgroottes binnen het validatie-experiment onvoldoende en moesten ze worden uitgebreid. Ten tweede is verder experimenteel onderzoek noodzakelijk om waardevolle inzichten te bieden in de relatie tussen T2DM en ASCVD. Toekomstig werk zal bestaan uit het valideren van de resultaten met grotere klinische cohorten en het uitvoeren van meer uitgebreide experimentele studies om de moleculaire mechanismen en pathologische routes die deze twee ziekten verbinden te verduidelijken. In het gedeelte over experimentele validatie werden monsters van T2DM- en ASCVD-patiënten samengevoegd in één "experimentele groep" ter vergelijking met gezonde controlegroepen. Hoewel dit ontwerp de validatie van algehele expressieveranderingen in de geïdentificeerde kern-C-DEG's in de comorbide conditie mogelijk maakte, maakt het geen onderscheid of deze expressieveranderingen specifiek zijn voor T2DM, ASCVD, of gedeeld worden door beide. Vervolgstudies moeten verschillende groepen T2DM-patiënten, ASCVD-patiënten en personen met T2DM comorbid met ASCVD vergelijken om de specifieke rollen van deze genen in individuele ziekten nauwkeuriger te kunnen afbakenen ten opzichte van de comorbide toestand. Bovendien werd de immuuncelinfiltratie-analyse uitsluitend uitgevoerd op de T2DM-dataset (GSE78721) en niet parallel uitgevoerd voor de ASCVD-dataset (GSE12288). De gerapporteerde correlaties tussen hub C-DEG's en immuuncelinfiltratieniveaus (bijv. TOP3A met Tregs, SLPI met gamma delta T-cellen) weerspiegelen dus alleen hun potentiële immunomodulerende rol binnen de pathologische context van T2DM. Een andere beperking is het ontbreken van functionele validatie voor de voorspelde interacties tussen geneesmiddel en doelwit. Toekomstige onderzoeken moeten moleculaire dockingsimulaties bevatten om de bindingsaffiniteit te beoordelen, samen met in vivo-experimenten met diermodellen om de therapeutische effectiviteit van deze kandidaatgeneesmiddelen te evalueren.
Concluderend identificeerde deze geïntegreerde bio-informatica-analyse, aangevuld met voorlopige experimentele validatie, verschillende gedeelde hubgenen en -routes tussen T2DM en ASCVD en stelt potentiële geneesmiddelkandidaten voor die zich richten op deze genen. Deze bevindingen bieden nieuwe hypothesen en kandidaatdoelen voor verdere mechanistische en therapeutische verkenning van de complexe wisselwerking tussen T2DM en ASCVD.
Openbaarmakingen
De auteurs verklaren geen concurrerende belangen.
Dankbetuigingen
De auteurs erkennen dankbaar de financiële steun die wordt geboden door het Ningxia Natural Science Foundation Program (Subsidienummer 2023AAC03498) en het Yinchuan Science and Technology Innovation Project (Subsidienummer 2024SF005). De auteurs bedanken ook alle deelnemers en onderzoekers wier bijdragen deze studie mogelijk maakten.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
Referenties
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.