Deze review beschrijft de darm-lever immunometabole as bij steatotische leverziekte geassocieerd met metabole disfunctie en het ontstekings-fibrotische fenotype (MASH), van barrièrefalen tot inflammasoomactivatie, en evalueert multi-target natuurlijke producten en biomarker-stratificatiestrategieën voor precieze interventie.
Reviewartikel
Modulatie van de darm–lever-as in de traditionele Chinese geneeskunde: van barrièreverstoring tot activatie van inflammasoom bij MASLD/MASH
In dit artikel
Samenvatting
Samenvatting
Metabole disfunctie-geassocieerde steatotische leverziekte (MASLD) en het ontstekings-fibrotische fenotype (MASH) vertonen een uitgesproken immunometabole koppeling. Deze review synthetiseert bewijs langs de darm–leveras, van het uitfalen van de epitheliale tight-junction en darmvaatbarrière (GVB) tot TLR4–MyD88/TRIF–NF-κB-amplificatie en activatie van NLRP3-inflammasoomen, en schetst de logica van het darmafgeleide blootstellingsspectrum—lipopolysaccharide (LPS), endogene ethanol, galzuren (BA's), kortketenvetzuren (SCFA's) en trimethylamine N-oxide (TMAO). Wij positioneren BA-FXR/TGR5, SCFAs-GPR41/43 en AMPK/Nrf2 als upstream/downstream modulatoren die ontstekingsdrempels resetten en stadiumafhankelijke verdovendheid bieden. Op basis van knoop-naar-pad-mapping vatten we mechanismen en translationele signalen samen voor berberine (BBR), Qushihuayu (QSHY), Da-Chai-Hu Decoction (DCHD) en polysacchariden (bijv. Astragalus, Ganoderma), met nadruk op farmacokinetische en blootstellingsbeperkingen die "darm-eerst" acties ondersteunen. We stellen een minimale begeleidende biomarkerset voor—LBP/sCD14, BA-profielen met FGF19–C4-dynamiek, en IL-1β/GSDMD-N—gekoppeld aan hiërarchische beeldvormingspoorten (≥30% relatieve MRI-PDFF-afname; MRE/ELF) om het typen van responsen en go/no-go beslissingen te ondersteunen. Tot slot benadrukken we kritieke hiaten (directe menselijke GVB-uitlezingen; longitudinale multi-omics die worden overbrugd naar klinische uitkomsten) en schetsen we een biomarker-gedreven multi-arm multi-fase (MAMS) route voor adaptieve, gestratificeerde ontwikkeling van multi-target traditionele geneeskunde-interventies in MASLD/MASH.
Inleiding
Metabole disfunctie-geassocieerde steatotische leverziekte (MASLD) en het ontstekings-fibrotische fenotype ervan, MASH, worden steeds vaker niet meer gezien als geïsoleerde metabole aandoeningen, maar als systemische aandoeningen veroorzaakt door ontregelde immunometabole koppeling. Convergerend bewijs plaatst de darm-leveras in het centrum van de evolutie van de ziekte: wanneer de integriteit van de darmbarrière losser wordt, bereiken luminale pathogene-geassocieerde moleculaire patronen en metabole signalen gemakkelijker toegang tot de portale circulatie, waardoor intrahepatische aangeboren immuunresponsen worden gestart en versterkt1. Mechanistisch omvat barrièredysfunctie het herbouwen van de epitheliale tight-junction en het verstoren van de darmvaatbarrière (GVB), waarbij samen de portale levering van microbe- en dieetafgeleide signalen wordt verhoogd die de activatiedrempel van leverimmuniteit verlagen.
Onder het epitheel functioneert de darmvaatbarrière (GVB) als een tweede controlepost met selectiviteitsprincipes die analoog zijn aan de bloed-hersenbarrière. Experimentele en translationele gegevens geven aan dat GVB-destabilisatie kan voorafgaan aan openlijke steatohepatitis, en dat barrièrestabilisatie mechanistisch gekoppeld is aan een verminderde portale ontstekingsbelasting.
Circulerend endotoxine (lipopolysaccharide, LPS) vertoont de meest consistente positieve associatie met progressie van MASLD naar MASH en gevorderde fibrose, waarmee een populatieniveau verband wordt verankerd tussen darmafgeleide moleculaire belasting en leverletsel1. Een "autobrewing"-route is ook causaal: Klebsiella pneumoniae met een hoog alcoholgehalte associeert met MASLD, en experimentele kolonisatie induceert levervette leververschijnselen zonder exogeen ethanol2. Extra darmafgeleide metabolieten (bijv. galzuren, SCFA's en TMAO) vormen de immunometabole toon van de gastheer en kunnen bijdragen aan interindividuele heterogeniteit in ziekteverloop en behandelingsrespons.
Op receptor- en padniveaus worden portale inputs in de sinusvorm waargenomen door TLR4/MD-2, dat via MyD88/TRIF→IKK signaleert om NF-κB te activeren, waardoor TNF-α, IL-1β en CCL2 worden opgereguleerd en leukocyteninfiltratie en parenchymale beschadiging3 worden aangestuurd. TLR4 verlaagt verder de TGF-β pseudoreceptor BAMBI in leverstellate cellen, waardoor fibrogene signalering sensibiliseert en monocyten worden gerekruteerd via de CCL2/CCR2-as, waardoor ontsteking wordt overbrugd naar fibrose 4,5. Stroomafwaarts vereist het NLRP3-inflammasoom NF-κB-gemedieerde priming (signaal 1) samen met activatiesignalen van mitochondriale ROS, ATP–P2X7, of cholesterolkristallen (signaal 2) om caspase-1 te activeren, IL-1β/IL-18 vrij te geven en pyroptose uit te voeren; farmacologische remming (bijv. MCC950) is effectief in verschillende modellen, maar het histologisch voordeel is niet uniform in vetrijke/cholesterolrijke contexten, wat aangeeft dat "drugability" wordt beperkt door de samenstelling en timingvan DAMP 6,7,8. Parallel moduleren BA–FXR/TGR5, SCFA–GPR41/43 en AMPK/Nrf2-routes de wervelkolom op meerdere niveaus, waardoor ontstekingsdrempels worden gereset en fase-afhankelijke responsiviteit 9,10,11 worden toegekend.
Dit kader definieert actiebare knooppunten voor interventie met meerdere doelen. Berberine (BBR) is een voorbeeld van een strategie met lage systemische blootstelling die bacteriële BSH remt, de BA-pool herstructureert en de ILEALE FXR–FGF15-as activeert om intrahepatische immunometabole metingen "op afstand" te herkalibreren12,13; het ionische complex BUDCA/HTD1801 verminderde MRI-PDFF in een fase 2 gerandomiseerde, gecontroleerde studie (RCT)14. Formules, zoals Qushihuayu (QSHY), hebben gecoördineerde microbioom–metabolietresponsen laten zien met verbeteringen in leverenzymen en fibrose-surrogaten in multicenter randomisatie15. Da-Chai-Hu Decoctie (DCHD) en polysacchariden (bijv. Astragalus, Ganoderma) zijn gekoppeld aan stabilisatie van de GVB en aan mucosale immuniteit/inflammasoomplasticiteit, respectievelijk 16,17,18. Het bewijslandschap voor traditionele Chinese geneeskunde (TCM) in MASLD/MASH blijft echter onevenwichtig en beslaat een klein aantal gerandomiseerde onderzoeken met heterogene eindpunten en variabele rapportagekwaliteit, naast een grotere hoeveelheid preklinisch en hypothesegenererend werk.
Een centraal doel van deze review is dan ook het bieden van een gestructureerde, kritische synthese van TCM-bewijs, waarbij robuuste menselijke data worden gescheiden van preklinische inferentie, en het onderzoek, het risico op bias, effectgroottes, veiligheidssignalen en de duurzaamheid van de respons evalueren. We benadrukken verder praktische translationele beperkingen die bijzonder relevant zijn voor TCM-interventies, waaronder productstandaardisatie, batch-tot-batch consistentie en Q-marker kaders, evenals regelgevende overwegingen die bewijsdrempels voor ontwikkeling en klinische adoptie bepalen.
Tegen deze achtergrond volgt de recensie drie lijnen. Eerst traceren we het continuüm van epitheel/GVB-falen tot activatie van TLR4–NF-κB en NLRP3, waarbij we belangrijk bewijs integreren op menselijk, dierlijk en cellulair niveau. Ten tweede synthetiseren we systeemfarmacologie en representatieve klinische/translationele data over TCM-afgeleide en andere natuurlijke agentia die gericht zijn op de barrière-receptor–inflammasoom-wervelkolom en de immunometabole crosstalk, met expliciete afstemming van farmacokinetiek, blootstelling en mechanisme. Ten derde beschrijven we meetbare biomarkers en responstypeschema's die met deze routes worden gecombineerd om de interpreteerbaarheid en externe reproduceerbaarheid in heterogene MASLD/MASH-cohorten te verbeteren. Door mechanismen te koppelen aan interventie en aan kwantificeerbare metingen, wordt de darm-lever immuunas omgezet in een testbaar translationeel kader dat toekomstige gestratificeerde therapieën kan informeren (Figuur 1). Recente syntheses positioneren microbiome-gecentreerde strategieën verder als een belangrijke translationele as in MASLD/MASH, die zich uitstrekt van dieetgebaseerde modulatie, pre/pro/synbiotica, fecale microbiotatransplantatie en opkomende benaderingen zoals gemodificeerde bacteriën en bacteriofagen, wat de klinische relevantie van darmgerichte interventies versterkt19.
Review en perspectief
De darm–leveras: van barrièrefalen tot activatie van het inflammasoom
Epitheliale barrière-disbalans en toegenomen paracellulaire lekkage
De intestinale epitheelbarrière wordt in stand gehouden door een luminale MUC2-gebaseerde slijmlaag samen met apicale tight-junction (TJ) complexen; ZO-1, occludin en meerdere claudinen definiëren paracellulaire selectiviteit en beperken daarmee directe ontmoetingen tussen luminale microbe-geassocieerde moleculaire patronen en epitheliale aangeboren immuunreceptoren. In metabolisch ontstoken toestanden activeert tumornecrose factor-α (TNF-α) een NF-κB-afhankelijk programma dat myosine light-chain kinase (MLCK) upreguleert, occludin-endocytose en perijunctionale actomyosine-reorganisatie aandrijft om een "lek"-pad te creëren—een effect dat zowel in vivo als in vitro modellen20,21 is aangetoond.
Deze mechanistische waarnemingen komen overeen met klinische fenotypes. Menselijke studies tonen consequent een verhoogde darmpermeabiliteit aan bij MASLD die correleert met steatose en ontstekingsernst. In fysiologische studies gekoppeld aan biopten vertonen patiënten met niet-alcoholische leververvetting (nu binnen het MASLD-kader) een verhoogde 51Cr-EDTA-permeabiliteit samen met TJ-afwijkingen en bacteriële overgroei in de dunne darm, waarbij permeabiliteit positief correleert met steatose en ontstekingsactiviteit. Een daaropvolgende systematische review van dual-suikerpermeabiliteitstests bevestigde significant hogere dunne darmpermeabiliteit bij MASLD versus gezonde controles, waarmee epitheliale barrièreschade werd geconsolideerd als een reproduceerbaar kenmerk op populatieniveau. In deze context krijgen luminale PAMP's en metabole signalen gemakkelijker toegang tot de portale circulatie, waardoor upstream inputs worden geleverd die lever-TLR4–NF-κB-signalering aanwakkeren en de activatie van NLRP3-inflammasoom autoriseren.
Darmmicrobiota–barrièrekoppeling in homeostase en MASLD/MASH
Bij fysiologische omstandigheden draagt de darmmicrobiota bij aan het behoud van barrières door gecoördineerde effecten op slijm, strakke verbindingen en mucosale immuniteit. De structuur van de commensale gemeenschap beïnvloedt de eigenschappen van de slijmbarrière, terwijl epitheliale–microbiële interacties de hervorming van tight-junctions en trans-epitheliale permeabiliteit vormen, waardoor microbiële producttranslocatie onder homeostasewordt beperkt 22,23,24. SCFA's die worden geproduceerd door microbiële fermentatie fungeren als signaalmetabolieten die epitheliale barrièreprogramma's kunnen ondersteunen en inflammatoire transcriptieresponsen kunnen bufferen, wat functionele veerkracht biedt tegen barrièreverstoring23,25.
Bij MASLD/MASH kunnen dysbiose en veranderde microbiële functionele output deze stabiliserende programma's aantasten en barrièredysfunctie versterken. Veranderde permeabiliteit en translocatie van microbiële producten verhogen de portaalblootstelling en verlagen de drempel voor hepatische aangeboren immuunactivatie, waardoor een feed-forward as ontstaat van dysbiose naar barrièrefalen en inflammatoire amplificatie23. Een mechanistisch directe illustratie is endogene ethanolproductie door Klebsiella pneumoniae met een hoog alcoholniveau, die vette leverfenotypes kan aansturen zonder exogene alcohol, en een specifieke microbiële functie koppelt aan metabole schade aan de gastheer en de vatbaarheid voor inflammatoire downstream2.
Deze subsectie consolideert de koppeling "microbiota → barrièretoon → portaalblootstelling" om een expliciet instappunt te bieden voor het interpreteren van darmproximale TCM-interventies die barrièreherstel of microbiota-remodellering claimen.
Verstoring van de darmvaatbarrière en vroege blootstelling aan de portal
Onder het epitheel bevindt zich de darmvaatbarrière (GVB) gevormd door submucosale capillaire endotheelcellen en hun junctionale complexen; Functioneel analoog aan de bloed-hersenbarrière, beperkt het de translocatie van bacteriën en macromoleculen over de darmwand naar de portale circulatie26. Experimentele steatohepatitismodellen tonen aan dat GVB-verstoring voorafgaat aan leverontsteking, terwijl farmacologische versterking van endotheliale FXR–β-catenine-signalering de portale ontstekingsbelastingvermindert 27.
Samen operationaliseren deze bevindingen een gelaagd interceptiemodel—"epitheliale barrière → GVB → portaalblootstelling"—en nomineren ze de GVB als een hanteerbare vroege pathologische knoop in MASLD/MASH28. Mechanistisch weerspiegelt GVB-integriteit overpraat tussen Wnt/β-catenine- en FXR-paden; upregulatie van plasmalemmale vesikel-geassocieerd eiwit (PLVAP/PV-1) markeert fenestrale opening en correleert met lekkage26,27. Gecombineerde epitheliale en vasculaire barrière-compromittering verhoogt de effectieve portaallevering van ontstekingssignalen, waardoor de drempel voor intrahepatische sensing en amplificatie daalt27.
Flux van darmafgeleide moleculen en het landschap van leversinusblootstelling
Op populatieniveau is circulerend endotoxine (LPS) het meest consistent geassocieerde moleculaire signaal met MASLD-progressie. Een recente meta-analyse toont hogere LPS-niveaus bij MASLD dan bij controles, wat correleert met het ziektestadium en ontstekingsuitslagen, en ondersteunt daarmee een "barrièrefalen → endotoxemie → leverontsteking"-keten van bewijs1. Endogene ethanol vormt een tweede belangrijke input: Klebsiella pneumoniae met hoog alcoholgehalte wordt verrijkt in een Chinese MASLD-cohort, en orale kolonisatie is voldoende om leververvetting te induceren zonder exogeen ethanol, waardoor een oorzakelijk verband wordt vastgesteld tussen een specifieke stam, zijn metaboliet en leverbeschadiging2. Andere darmafgeleide metabolieten (bijv. galzuren en SCFA's) moduleren ontstekingsdrempels, maar worden hier behandeld als contextuele regulatoren in plaats van primaire blootstellingsfactoren 29,30,31.
Activatie en effectorprogramma's van de hepatische TLR4–MyD88/TRIF–NF-κB cascade
Zodra portale inputs de hepatische sinuscoïden bereiken, detecteren TLR4/MD-2-complexen op Kupffer-cellen, hepatocyten en leversinusoidale endotheelcellen LPS en lipidenliganden, rekruteren MyD88- of TRIF-adapters om het IKK-complex te activeren en stimuleren ze NF-κB nucleaire translocatie, waardoor TNF-α, IL-1β en CCL2 worden geïnduceerd en culminerend in monocyt–macrofagen infiltratie en parenchymale letsel 3,32.
TLR4-signalering versterkt ook letsel via chemotactische en fibrogene assen. De CCL2/CCR2-route reduceert van het beenmerg afgeleide monocyten naar de lever, en farmacologische of genetische CCR2-blokkade vermindert de infiltratie van Ly6C⁺-monocyten en vermindert ontsteking en fibrose in dieetmodellen4. In hepatische stellate cellen verlaagt TLR4 de TGF-β pseudoreceptor BAMBI, waardoor cellen sensibiliseren voor TGF-β en aangeboren immuunactivatie worden gekoppeld aan fibrogene programmering via routes5. Daarom wordt bij het evalueren van TCM-interventies bewijs voor verzwakking van de TLR4–NF-κB–CCL2-as (en downstream fibrogene sensitisatie) als mechanistisch hoger behandeld dan geïsoleerde veranderingen in algemene ontstekingsmarkers.
Dual-signaalactivatie van het NLRP3-inflammasoom en pyroptose
TLR–NF-κB-signalering levert de primingstap (signaal 1) voor NLRP3 en pro-IL-1β/IL-18, terwijl mitochondriale ROS, ATP–P2X7-activatie en vrij of kristallijn cholesterol fungeren als activatiesignalen (signaal 2) die het NLRP3–ASC–caspase-1 complex samenstellen, waardoor rijpe IL-1β/IL-18 en gasdermin-D (GSDMD) porievorming ontstaat om pyroptose uit te voeren en de inflammatorie-fibrotische progressie te stimuleren33. Over MASH-modellen en menselijke weefsels heen volgt NLRP3-hyperactivatie de ontstekings- en fibrotische ernst, en vormen cholesterolkristallen een belangrijke DAMP en bron van signaal 2 bij steatohepatitis 6,34.
Ziektestadium en modelcontext zijn cruciale kwalificaties. In hoog-vet, hoog-cholesterol (HFHC) situaties slaagde ofwel Nlrp3-deficiëntie of MCC950-behandeling er niet in de histologische eindpunten te verbeteren, wat aangeeft dat de samenstelling van DAMP en het doseringsvenster de drogbaarheid van het inflammasoom bepalen; binnen de natuurlijke geschiedenis van MASLD/MASH kan NLRP3 daarom het beste worden gezien als een sleutelversterker in plaats van een universele snelheidsbeperkende stap, met directe implicaties voor gestratificeerde en combinatieinterventies 8,35. Deze fase-afhankelijkheid motiveert expliciete scheiding van (i) preklinische inflammasoomgerichte claims van (ii) menselijk bewijs dat inflammasoom-uitlezingen (bijv. IL-1β/IL-18, GSDMD-N) koppelt aan klinisch relevante eindpunten.
Modulatieve crosstalk-paden
BA–FXR/TGR5, SCFA–GPR41/43 en AMPK/Nrf2-routes moduleren ontstekingsdrempels over deze cascade. In plaats van deze routes in detail uit te breiden, behouden we ze als modulerende lagen die de stadiafhankelijke duggability van de barrière–TLR4–NLRP3 wervelkolom 9,27 beïnvloeden.
Wanneer epitheliale en vasculaire verdediging achtereenvolgens falen, versterken darmafgeleide moleculen de aangeboren immuunsignalering intrahepatisch, wat culmineert in door inflammasoom veroorzaakte pyroptose en fibrotische progressie 6,27,36. Deze gestroomlijnde mechanistische steiger vormt het anker waartegen TCM-interventies worden geëvalueerd in de volgende secties (zie Tabel 1).
| Asknooppunt (anatomisch niveau) | Kernmechanistische gebeurtenis | Bijdrage aan activatie en ontsteking van inflammasoomen | Vertaalde uitlezingen | Representatieve studies |
| Ecologie van darmmicrobiota | Dysbiose verandert microbiële producten (endotoxinebelasting, ethanolproductie, galzuurtransformatie, SCFA-output) | Verhoogt de portale ontstekingsbelasting en verlaagt de drempel voor de aangeboren immuunactivatie van de hepatische | Ontlastingsmicrobioom (16S/metagenomica); ontlastingsmetaboloom; circulerende LBP/sCD14 | Yuan et al., 20192; Tilg et al., 201637 |
| Slijmlaag en epitheliale dichte verbindingen | TNF–NF-κB–MLCK–afhankelijke TJ-remodellering; occludin-endocytose; Claudin-2 porievorming | Verbeterde paracellulaire permeabiliteit vergemakkelijkt PAMP-translocatie (signaal 1-priming) | ZO-1/occludin-expressie; dubbele suikerpermeabiliteitstests; 51Cr-EDTA; LBP/sCD14 | Ye et al., 2006,38; Marchiando et al., 201021 |
| Darmvaatbarrière (GVB) | Endotheliale lekkage via Wnt/β-catenine en FXR-afhankelijke paden; PLVAP/PV-1 upregulatie | Versterkt de portaallevering van microbiële en metabole ontstekingssignalen | PLVAP-kleuring; gepaarde portale/inflammatoire markers; exposure-linked imaging indices | Mouries et al., 201927 |
| Portale moleculaire blootstelling | Verhoging van circulerende endotoxines; endogene ethanol; gewijzigde BA/SCFA-omgeving | Versterkt de TLR4-priming; moduleert de inflammasoom-permissiviteit | LPS (methode-afhankelijk); LBP; sCD14; BA-profiel; SCFA-kwantificatie | Farhadi et al., 2008,39; Yuan et al., 20192 |
| Hepatische TLR4-signalering | TLR4–MyD88/TRIF–NF-κB activatie; BAMBI downregulatie; CCL2-inductie | Signaal 1 priming van NLRP3; chemotaxis; stellate celsensitisatie voor TGF-β | Hepatische TLR4/NF-κB-doelen; CCL2; α-SMA; Collageentranscripties | Seki et al., 20075; Sharifnia et al., 20153 |
| NLRP3-inflammasoomactivatie | NF-κB priming (signaal 1) + DAMP-triggers (ROS, ATP–P2X7, cholesterolkristallen) (signaal 2) | Caspase-1 activatie; IL-1β/IL-18 release; Pyroptotische amplificatie | IL-1β; IL-18; Caspase-1 activiteit; GSDMD-splijting | Wree et al., 201440; Mridha et al., 20177 |
| Metabolisch-immuun kruispraatknopen | BA–FXR/TGR5; SCFA–GPR41/43; AMPK/NRF2-paden | Reset ontstekingsdrempels en stadiumafhankelijke drogatie | FGF19–C4; BA-handtekeningen; SCFA-niveaus; AMPK/NRF2-doelen | Neuschwander-Tetri et al., 20159; Kimura et al., 201325 |
Tabel 1: Mechanistische controlepunten die barrièrefalen koppelen aan de activatie van leverinflammasoom in MASLD/MASH.
Systeemfarmacologie en moleculaire mechanismen van TCM-interventies
Een systeemfarmacologieframework met multi-omics validatie
Het gebruik van systeem-/netwerkfarmacologie als hypothesegenerator—waarbij "verbinding–doel-pathway" relaties worden geprojecteerd op de pathobiologie van MASLD/MASH en vervolgens de lus wordt afgesloten met multi-omics en cross-scale experimenten—biedt een hanteerbare route naar reproduceerbare mechanistische claims41.
In deze review wordt systeemfarmacologie echter expliciet behandeld als hypothesegenererend in plaats van bevestigend. Netwerk-afgeleide inferenties worden als translationeel verankerd beschouwd wanneer ze zijn afgestemd op (i) menselijke klinische gegevens, (ii) dosis-blootstellingsplausibiliteit, (iii) anatomisch consistente plaats-van-werking, en (iv) reproduceerbare route-uitlezingen.
Alleen al database-gestuurde screening en verrijking zijn gevoelig voor opgeblazen vals-positieve percentages; Voorgestelde netwerken moeten daarom worden getest op dosis-blootstellingsbeperkingen, locatie- en tijdsindicatie, en klinische koppeling voordat ze worden ontwikkeld als verklarende modellen42.
Deze workflow ondersteunt berberine (BBR) al op paradigma-niveau. Oraal toegediende BBR remt microbieel galzouthydrolase (BSH), verhoogt het luminaal geconjugeerde galzuur zoals taurocholizuur (TCA), activeert de ILEALE FXR–FGF15-as en verlaagt leverlipidenopnameprogramma's (bijvoorbeeld Cd36), waardoor de leverlipidenverwerking wordt verbeterd en de benedenstroomse darm–lever ontstekingsbelastingwordt verminderd 12,13. In geïntegreerde dier-omics-studies sluit de afgeleide BSH→TCA→FXR/FGF15-cascade zich aan bij hepatische transcriptieresponsen, wat wijst op een intestinale actielocus in plaats van effectiviteit veroorzaakt door hoge systemische blootstelling 12,43,44.
Bewijs op formuleniveau komt naar voren. In een dubbelblinde gerandomiseerde studie verbeterde Qushihuayu (QSHY) leverenzymen en surrogaatfibrose-indices, vergezeld van gecoördineerde verschuivingen in het darmmicrobioom en metabolietprofiel, wat de haalbaarheid ondersteunde van een validatietriade15,45 voor "netwerk→multi-omics→klinische eindpunten". Echter, binnen TCM-interventies in MASLD/MASH blijft het aantal voldoende powered RCT's beperkt, zijn de eindpunten vaak surrogaat-gebaseerd, en varieert rapportage van allocation concealment/blinding en gelijktijdige therapie, waardoor gestructureerde beoordeling van de bewijssterkte noodzakelijk is.
Beoordeling van bewijs en dimensies van het risico van vooringenomenheid. Om heterogeniteit aan te pakken en een gestructureerde synthese mogelijk te maken, classificeren we het bewijs in vier niveaus: Level 1, gerandomiseerde gecontroleerde onderzoeken met vooraf gespecificeerde eindpunten; Niveau 2, gecontroleerde niet-gerandomiseerde of observatiegerichte menselijke studies; Niveau 3, diermodellen; en niveau 4, in vitro, computationele of netwerkgebaseerde inferentie46,47. Risico-op-bias-dimensies die worden beschouwd zijn onder andere randomisatie en verberging van toewijzing, blinding, eindpunthiërarchie en multipliciteit, follow-upduur, preregistratie, uitval, trouw en controle over achtergrondtherapie. Naast alleen het studietype wordt de bewijskracht in deze review geïnterpreteerd als een samenstelling van (i) hiërarchie van het onderzoeksontwerp, (ii) interne validiteit en risico-op-bias domeinen, (iii) consistentie tussen onafhankelijke studies, (iv) afstemming tussen mechanistische knoopbetrokkenheid en klinische eindpunten, en (v) farmacokinetische plausibiliteit van doelblootstelling. Mechanistische coherentie zonder uitlijning van menselijke eindpunten wordt als hypothese-genererend beschouwd, terwijl klinische signalen zonder padconcordantie voorzichtig worden geïnterpreteerd als potentieel niet-specifieke effecten. Deze integratieve beoordeling wordt toegepast op alle hieronder besproken TCM-interventies.
Interventiemapping langs de darm-lever immuunwervelkolom
Op het barrièreniveau vertoont vroege MASLD/MASH verstoring van het darmepitheel en de darmvaatbarrière (GVB), waardoor de portale belasting van PAMPs verhoogd wordt. FXR-agonisme stabiliseert GVB via endotheliale Wnt/β-catenine-signalering, waardoor de blootstelling aan de leverafgeleide stroming en ontstekingsactivatie afneemt—een as die is gevalideerd in dieetmodellenMASH 27,48. Binnen interventies in de traditionele Chinese geneeskunde (TCM) verhogen polysacchariden de expressie van ZO-1/occludine, verminderen ze de permeabiliteit en verminderen ze de portaal-endotoxine-instroom, waarmee ze een upstream "de-exposure" strategie vormen49. De meeste barrière-beschermende claims blijven niveau 3-bewijs, tenzij ondersteund door menselijke permeabiliteitsmetingen of portaal-/blootstellingsproxies in combinatie met klinische eindpunten.
De TLR4–MyD88–NF-κB-module fungeert als initiatieve versterker voor hepatische proinflammatoire en chemotactische programma's. In hepatische stellate cellen verlaagt TLR4-signaaltransductie de TGF-β pseudoreceptor BAMBI, waardoor cellen sensibiliseren voor TGF-β en de overgang van ontsteking naar fibrose 5,50 mogelijk worden. In overeenstemming met het targeten van deze knoop onderdrukken astragalus polysacchariden (APS) TLR4 en phospho-NF-κB in zowel darm als lever en lagere downstream TNF-α/IL-6 outputs, wat wijst op gekoppelde inhibitie langs het "barrière→TLR4" continuüm49. Voor translationele inferentie worden pathway-consistente uitlezingen (bijv. TLR4–NF-κB–CCL2-asverzwakking met fibrose-surrogaaten) zwaarder gewogen dan geïsoleerde veranderingen in algemene ontstekingsmarkers 51,52,53.
Als tweede hit-platform vereist het NLRP3-inflammasoom NF-κB-afhankelijke priming (NLRP3 en pro-IL-1β upregulatie) samen met activatiesignalen van lipotoxiciteit, ROS of cholesterolkristallen. In klinische monsters en meerdere muis-MASH-modellen vermindert de remming of blokkade van de activatie van NLRP3 leverontsteking en fibrose, hoewel de effectgroottes variëren tussen diëten en metabole contexten—wat de samenstelling en timing van DAMP als bepalende factoren voor drugability 7,40 impliceert. In TCM-georiënteerde studies vermindert APS de NLRP3-signalering en de rijping/afgifte van IL-1β/IL-18, wat neerkomt op dubbele beperking van priming en activatie; Ganoderma-afgeleide polysacchariden herstructureren de microbiota en verminderen laaggradige endotoxemie, waardoor indirect de neiging om NLRP349,54 te triggeren wordt verlaagd. Deze bevindingen zijn voornamelijk bewijs van niveau 3; De koppeling aan menselijke fibrose-eindpunten of beeldvormende metingen blijft schaars en moet met voorzichtigheid worden geïnterpreteerd. Op het niveau van padkruisspraak stemmen BA–FXR/TGR5 en SCFA–GPR41/43 gezamenlijk immunometabole koppeling af; SCFA's schakelen hun receptoren in om energie en immuunhomeostase te stabiliseren, waardoor leverkwetsbaarheid25 wordt gemoduleerd. Door deze knopen te integreren, werden barrière-uitlezingen (ZO-1/occludin, permeabiliteit, LBP/EAA), pro-inflammatoire outputs (TNF-α, IL-6 en bijbehorende chemotaxie-assen), inflammasoomuitgangen (IL-1β/IL-18, caspase-1/GSDMD) en nucleaire/metabole uitlezingen (BA-profielen met FXR/TGR5-doelen; SCFA's met GPR41/43) kunnen co-geregistreerd worden over multi-omics-lagen om de externe validiteit van mechanistische inferentie 25,27,49 te versterken. In deze review wordt dergelijke co-registratie gebruikt om mechanistische coherentie te beoordelen, maar de uitlijning van menselijke eindpunten blijft de primaire bepalende factor voor bewijssterkte.
Farmacokinetische en blootstellingsbeperkingen op mechanistische inferentie
Bij ratten is de absolute orale biobeschikbaarheid van berberine (BBR) ~0,36%–0,68%, beperkt door de intestinale first-pass clearance en P-gp efflux; Weefselverdeling toont een hoge hepatische verdeling ondanks lage plasmaniveaus 55,56,57. Deze kenmerken definiëren BBR als een lokale darm–lever-asmodulator waarvan de luminale belichting voldoende is om de BSH→BA→FXR/FGF15 cascade55,57 te activeren. Formuleringsstrategieën die de systemische blootstelling aanzienlijk verhogen, kunnen de hoofdplaats van actie en het veiligheidsvenster verschuiven; Mechanistische claims moeten daarom portale en systemische concentraties rapporteren naast exposure–response-relaties57.
Lage systemische blootstelling sluit BBR niet uit om de input van portale PAMP via een lokale microbiota–galzuur–nucleaire-receptor-as te verminderen en de activatie-neiging van lever-TLR4/NLRP3 te verlagen—bevindingen die herhaaldelijk worden ondersteund door multi-omics en segmentspecifieke experimenten 12,13,58. Daarentegen blijven polysacchariden/oligosacchariden grotendeels luminaal na orale toediening, met effectiviteit die wordt aangedreven door barrièreherstel en microbiële fermentatieproducten (SCFA's). Hun effectiviteit hangt af van de luminale bereikbare dosis, fermentatiekinetiek en de temporele vensters van secundaire galzuren en SCFA's; dienovereenkomstig leveren tijdreeks-BA/SCFA-metabolomics gekoppeld aan barrière-eiwitten en permeabiliteitsmetrieken passende uitlezingen voor attributie 25,59,60. Het niet integreren van farmacokinetische plausibiliteit (luminale blootstelling, fermentatiekinetiek, temporele metabolietvensters) is een terugkerende zwakte in mechanistische attributie in TCM-studies en draagt bij aan beperkte reproduceerbaarheid.
Bewijshiërarchie, companion biomarkers en kwaliteitscontrole
Translationele signalen zijn op meerdere niveaus naar voren gekomen. In een fase 2 gerandomiseerde gecontroleerde studie van het berberine–ursodeoxycholaat ionencomplex (HTD1801/BUDCA) NAM MRI-PDFF significant af naast verbeteringen in metabole parameters, in overeenstemming met de populatieniveau-vertaalbaarheid van BA–FXR-gekoppelde immunometabole modulatie14,61. Op formuleniveau toonde een dubbelblinde multicenter RCT van Qushihuayu (QSHY) overeenkomstige verschuivingen in het darmmicrobioom en metabolietprofielen aan, samen met verbeteringen in leverenzymen en FIB-4, wat benadrukt hoe companion biomarkers de causale interpretatie van klinische uitlezingen versterken15. Waar beschikbaar, worden Level 1-eindpunten (beeldvormingsgebaseerde vet- of fibrose-surrogaat) geprioriteerd boven biochemische uitkomsten.
Neutrale en negatieve bevindingen moeten worden opgenomen om selectieve rapportage te beperken. In subsets van MASLD heeft berberine de controle voor leverenzymen of lipiden niet overtroffen, waarbij heterogeniteit aannemelijk wordt bepaald door het basismetabole fenotype, permeabiliteitsstatus, gelijktijdige medicatie en dosis/blootstellingsverschillen—wat pleit voor vooraf gespecificeerde responstypering en biomarker-gedreven stratificatie in toekomstige onderzoeken62. Een bijgewerkte klinische meta-analyse uit 2024 rapporteert algemene verbeteringen in leverenzymen, lipiden en insulinegevoeligheid met berberine, maar benadrukt de heterogeniteit van studies en de noodzaak van hoogwaardige RCT's om populatiegrenzen te definiëren63. Tussen interventies heen bemoeilijken variabiliteit in studieontwerp, keuze van surrogaat-eindpunten, follow-upduur en achtergrondtherapie de cross-trial vergelijkbaarheid. De effectgroottes zijn vaak bescheiden en de rapportage van risico-van-bias domeinen is inconsistent.
Voor reproduceerbaarheid zijn kwaliteitsmarkers (Q-markers) en end-to-end kwaliteitscontrole—waarbij materiaalbasis en in vivo blootstelling aan farmacodynamische uitlezingen worden gekoppeld—voorgesteld als fundamentele elementen voor het standaardiseren van TCM-onderzoeken; In combinatie met vooruitgang in systeem-/netwerkfarmacologie en multi-omics-validatie kan dit kader de externe reproduceerbaarheid en klinischevertaalbaarheid verbeteren. Standaardisatie, batch-tot-batch consistentie en regelgevende afstemming zijn cruciale factoren voor schaalbaarheid en cross-study vergelijkbaarheid en worden hier behandeld als integrale onderdelen van translationele geloofwaardigheid in plaats van als aanvullende overwegingen. Gezamenlijk ondersteunt het huidige bewijs de biologische plausibiliteit voor meerdere TCM-interventies langs de barrière–TLR4–NLRP3 wervelkolom. Echter, slechts een subset (bijv. berberine-gebaseerde formuleringen en geselecteerde formuleproeven) voldoet aan Level 1-criteria met beeldvormingsondersteunde menselijke eindpunten, en zelfs deze worden beperkt door bescheiden effectgroottes en heterogeniteit. De meerderheid van de claims op pathway-niveau—met name die over inflammasoommodulatie of GVB-stabilisatie—worden voornamelijk ondersteund door Level 3 preklinische data en moeten worden beschouwd als mechanistisch coherent maar klinisch voorlopig.
Representatieve interventies: Translationeel bewijs langs de barrière–TLR4–NLRP3-as
Berberine herstelt de werking van de darmbarrière en vermindert de NLRP3-inflammasoom-signaaloverdracht
Oraal toegediende berberine vertoont een lage systemische blootstelling met een hoge luminale beschikbaarheid: bij knaagdieren is de absolute orale biobeschikbaarheid ~0,36%–0,68%, beperkt door intestinale first-pass clearance en P-glycoproteïne efflux55,57. De darmmicrobiota kan BBR terugbrengen tot dihydroberberine, een beter opneembare vorm, wat overeenkomt met een "darm-eerst, lever-tweede-de-le" blootstellingstraject64. Deze farmacokinetische en biotransformatiekenmerken positioneren BBR om upstream darm–leverprocessen te moduleren die de afterstream leverinflammatoire transductie vormen.
Op het barrière-interface vermindert BBR de door endotoxine/pro-inflammatoire cytokinen veroorzaakte verkeerde lokalisatie van ZO-1/occludin/claudins en vermindert het paracellulair lekkage, deels door remming van de NF-κB–MLCK-as; dit verlaagt indirect de portaal LPS-belasting en de leversinusblootstellingmet 65. BBR onderdrukt ook de NF-κB-activiteit in de macrofagen van het colonslijmvlies en lamina propria, waardoor TNF-α en IL-6 afneemt en de TLR4–MyD88–NF-κB cascade66,67 verder wordt gedempt. Deze barrière- en TLR4-as-effecten worden voornamelijk ondersteund door niveau 3 (dierlijk) bewijs, met beperkte directe permeabiliteitskwantificatie bij menselijke MASLD-cohorten.
Bij de inflammasoomknoop beperkt BBR de activatie van NLRP3 en pyroptose in voedings-/lipotoxische stressmodellen, deels door de ROS–TXNIP-as te downmoduleren die priming- en activatiesignalen integreert, waardoor caspase-1 activatie en IL-1β/IL-18 release68 worden verminderd. Hoewel mechanistisch coherent, blijven deze inflammasome bevindingen grotendeels preklinisch en vereisen ze validatie tegen menselijke fibrose of beeldvormingseindpunten.
BBR werkt verder via de galzuur (BA) endocriene as: inhibitie van microbieel galzouthydrolase (BSH) verhoogt luminaal geconjugeerde BA's, met name taurocholiczuur, activeert de ileale FXR–FGF15-route en verlaagt leverlipidenopnameprogramma's zoals Cd36—waardoor metabole herprogrammering wordt gekoppeld aan een verminderde inflammasoomgevoeligheid12. Dit BA–FXR-mechanisme biedt biologische plausibiliteit voor cross-scale effecten, maar bewijst op zichzelf geen klinische effectiviteit.
In klinische studies toonde een fase 2 RCT van het berberine–ursodeoxycholaat ionencomplex (BUDCA/HTD1801) significante verminderingen van MRI-PDFF met gelijktijdige metabole voordelen ten opzichte van placebo, wat overeenkomt met cross-scale vertaalbaarheid van de darm–BA–FXR-as naar hepatische lipotoxische/inflammatoire uitlezingen14. Recente meta-analyses tonen over het algemeen matige effectgroottes voor ALT/AST en hepatische steatose, terwijl ze heterogeniteit tussen RCT's in dosis, formulering en inschrijvingsprofielen noteren—waarmee de noodzaak van companion biomarkers en responstypestratificatie63,69 wordt benadrukt. Overwegingen rond het risico van bias zijn onder andere variabele blinding, beperkte follow-upduur en afhankelijkheid van surrogaateindpunten. Veiligheidsgegevens zijn over het algemeen gunstig, maar langdurige levertoxiciteitssurveillance en geneesmiddel-geneesmiddelinteractieprofiel (bijv. CYP/P-gp modulatie) blijven onvolledig gekarakteriseerd.
Voor translationeel ontwerp bieden permeabiliteitsindices, LBP en MRI-PDFF rationele companion-markers. Toekomstige onderzoeken zouden baat hebben bij vooraf gespecificeerde responstypering en rapportage over effectgrootte, gestratificeerd op basis permeabiliteit of inflammasoomactivatiestatus. Al met al is berberine een van de weinige TCM-afgeleide interventies die worden ondersteund door Level 1 beeldvormingsgebaseerd bewijs, zij het met matige effectgroottes, heterogeniteit tussen formuleringen en beperkte histologische bevestiging. Mechanistische claims buiten galzuur/FXR-modulatie—met name inflammasoomonderdrukking—blijven grotendeels preklinisch en moeten als translationeel aannemelijk worden beschouwd, maar nog niet klinisch vastgesteld.
Qushihuayu (QSHY): Multicenter klinisch en multi-omics bewijs langs de barrière–galzuur–TLR4-as
In preklinische studies herstellen QSHY en de voorloperformule QHD de colonische tight junctions en beperken LPS-translocatie; colonische fosfoproteomische profilering wijst op MAPK-signalering als een upstream regelaar, in overeenstemming met de sequentie "barrièrereparatie → verminderde portaal PAMP-belasting → gedempte hepatische TLR-signalering". Op hepatocellulair niveau activeert QHD AMPK, versterkt CPT-1A-afhankelijke β-oxidatie en vermindert daarmee lipotoxische aandrijving en secundaire ontstekingsinputsmet 71,72. Multi-omics-analyses tonen verder een gelijktijdige remodellering van de darmmicrobiota en serumlipide/metabolietprofielen, wat aangeeft dat de interventie meerdere knooppunten van de darm-lever metabole interface73 overspant. Gezamenlijk vormen deze bevindingen voornamelijk niveau 3 mechanistisch bewijs dat biologische plausibiliteit ondersteunt, maar ze definiëren niet de omvang of duurzaamheid van het klinische effect bij mensen.
Klinisch gezien vond een multicenter, dubbelblinde, dubbel-dummy RCT (n=246) in 2024 met VCTE-LFC en ALT als co-primaire eindpunten QSHY superieur aan de controle voor ALT, AST en FIB-4, waarbij microbioom- en metabolietsignaturen de klinische respons volgen—waarbij "microbiota–metabolieten" verschuivingen werden gekoppeld aan transaminase- en elastografie-uitlezingen15, maar de interpretatie wordt beperkt door de afhankelijkheid van surrogaat-eindpunten, de duur van 24 weken, en mogelijke restverstoring door leefstijlco-interventies. De effecten op verschillende secundaire beeldvormingseindpunten waren beperkt, en heterogeniteit tussen proefpersonen (inclusief basisdoorlaatbaarheid en ontstekingsstatus) verwaterde waarschijnlijk het signaal, wat permeabiliteit/ontstekingsgebaseerde stratificatie in latere onderzoeken ondersteunde. Waar mogelijk is het rapporteren van toewijzingsverberging, naleving en protocolafwijkingen cruciaal om het risico op bias voor de waargenomen effectgroottes in context te plaatsen.
Twee translationele prioriteiten volgen. Ten eerste, companion-biomarkers en vooraf bepaalde strata: patiënten met een verhoogd basisniveau LBP, abnormale secundaire fecale galzuurverhoudingen of een hoger IL-1β hebben theoretisch meer kans op gecoördineerde inhibitie langs de barrière–BA–TLR4-as15. Ten tweede, kwaliteit en blootstellingstraceerbaarheid: gebruik vingerafdrukgebaseerde Q-markers (representatieve flavonoïden/fenolzuren) en koppel deze aan in vivo blootstelling en farmacodynamische effecten. Gezien het formule-gebaseerde karakter van QSHY zijn batch-tot-batch consistentie en transparante karakterisering van actieve fracties voorwaarden voor kruisstudie-vergelijkbaarheid en regelgevingskwaliteitontwikkeling 74,75. Combinatiestrategieën zijn anatomisch en mechanistisch complementair — resmetirom richt zich voornamelijk op hepatocellulaire lipidenbehandeling/fibrose-eindpunten, terwijl GLP-1 receptoragonisten werken op gewichts- en insulineresistentie — waardoor co-ontwikkeling met QSHY een rationeel pad is naar bredere responsdekking76,77. Dergelijke combinaties moeten worden geëvalueerd met vooraf gespecificeerde veiligheidsmonitoring en interactiebewuste achtergrondtherapiedocumentatie, vooral waar gelijktijdige metabole medicatie gebruikelijk is in MASLD/MASH-cohorten. Samenvattend wordt QSHY ondersteund door niveau 1-bewijs voor biochemische en elastografie-gebaseerde uitkomsten, maar de effectgrootte en duurzaamheid moeten nog worden bevestigd in langere, beeldvormingsgerichte of histologiegerichte onderzoeken. De meeste mechanistische node-mappingclaims blijven niveau 3, en de vooruitgang van regelgeving zal afhangen van standaardisatie en replicatie over onafhankelijke cohorten.
Da-Chai-Hu Decoctie (DCHD): Het behouden van de darmvaatbarrière en het herafstemmen van PPARα/AMPK–NF-κB kruisspraak
DCHD verbetert lipiden, insulineresistentie en leverhistologie in HFD-MASLD-modellen, vergezeld van remodellering van de darmmicrobiota en het serummetaboloom, wat consistent is met gecoördineerde actie bij de upstream barrière en intrahepatische immunometabole klieren16,78. Bij de "tweede barrière", de darmvaatbarrière (GVB), behoudt DCHD de endotheelintegriteit onder nutriëntenoverbelasting in darm-leverinteractiemodellen, verlaagt de portale flux van pathogene moleculen en vermindert levertranslocatiegebeurtenissen, wat de plasticiteit van PLVAP/PV-1 en endotheelverbindingen benadrukt; hoewel afgeleid in een darm-levermetastasecontext, bieden deze bevindingen niveau 3 mechanistische ondersteuning voor GVB-stabilisatie en motiveren ze testen in MASLD-relevante omgevingen met permeabiliteit/endotoxine-gekoppelde eindpunten. Bij het leversignaalknooppunt zijn de effecten van DCHD uitgelijnd met modulatie bij het PPARα/AMPK–NF-κB-kruispunt, wat de invloed op systeemniveau op immunometabole koppeling79 aangeeft. Over het algemeen blijft het huidige bewijs voor DCHD overwegend preklinisch en hypothese-genererend, met beperkte Level 1–2 menselijke data die direct verbonden is met pathway-concordante uitkomsten.
Wat betreft bewijskracht suggereert een systematische review uit 2024 het algehele voordeel van DCHD op transamineses, lipiden en sommige beeldvormingsmetingen, terwijl beperkingen worden benadrukt door studiekwaliteit en heterogeniteit van eindpunten; beschikbare klinische studies zijn heterogeen van ontwerp, vertrouwen vaak op surrogaat-eindpunten en bieden beperkte gelaagde uitkomstrapportage (MRI-PDFF/ELF/MRE), wat de inferentie over effectgrootte en duurzaamheidbeperkt 80. Risico-op-bias zorgen zijn onder andere variabele blinding/allokatieverberging, controle over achtergrondtherapie en onvolledige rapportage van therapietrouw en uitval, wat de cross-trial vergelijkbaarheid bemoeilijkt. Een volgende translationele stap is een mechanisme-verrijkte RCT die GVB- en epitheelbarrière-eindpunten dual-target – bijvoorbeeld fecale/serumpermeabiliteit – endotoxinemarkers plus PDFF/ELF – en prospectief deelnemers verrijkt met een hoge portale PAMP-lading, om de kans te vergroten op het detecteren van pathway-concordant klinisch voordeel80. Gezien de kans op gelijktijdige metabole medicatie (bijv. statines, metformine) in MASLD/MASH-cohorten, moeten interactiebewuste documentatie en vooraf gespecificeerde veiligheidsmonitoring worden opgenomen in het ontwerp van de onderzoeken. Gezamenlijk berust DCHD momenteel voornamelijk op niveau 3 mechanistische data en heterogene klinische signalen. De positionering als GVB-modulerende interventie is biologisch coherent, maar blijft klinisch voorlopig in afwachting van pathway-concordant menselijke eindpuntvalidatie.
Polysacchariden uit de Traditionele Chinese Geneeskunde (Astragalus, Ganoderma): Versterking van de mucosale immuniteit en gecoördineerde onderdrukking van TLR4–NF-κB–NLRP3
TCM-polysacchariden zijn overwegend licht blootgesteld en daardoor goed gepositioneerd om te werken op mucosale immuun-barrièreprogramma's en microbiota-metaboliet-kruisspraak. Astragalus polysaccharides (APS) herstructureren galzuurhomeostase en koppeling tussen microbiota en BA in HFD-MASLD modellen, verbeteren leversteatose en ontstekingsuitslagen en wijzen op activiteit over de "barrière–BA–lever" brug18,81. Ganodermapolysacchariden verhogen secretorie IgA, herstellen gobletcellen en tight junctions, en verhogen TLR2/4/6-transcripten in immunosuppressie-instellingen, wat consistent is met upstream "ruisreductie" van mucosale immuniteit–barrière–TLR toon82. Binnen de lever onderdrukken Ganoderma polysacchariden het NLRP3-inflammasoom en verlagen ze de output IL-1β/IL-18, wat de onderbreking van het pyroptose–fibrose-relais17 ondersteunt. Een recente synthese catalogueerde multidimensionale mechanismen waarbij polysacchariden MASLD verbeteren via de darm–lever-as en stelde standaarden voor voor Q-markerdefinitie en exposure–effect mapping83. Gezamenlijk zijn deze gegevens voornamelijk niveau 3 (preklinisch) bewijs; robuuste Level 1–2 humanstudies met beeldvormings- of fibrose-gecentreerde eindpunten blijven beperkt.
Verschillende beperkingen verdienen verduidelijking. De meeste polysaccharidestudies blijven preklinisch of in een vroege fase; De heterogeniteit van productie en moleculaire gewichtsverdelingen variëren sterk, en in vivo haalbare concentraties met batch-tot-batch consistentie zijn terugkerende knelpunten. Deze heterogeniteit bemoeilijkt reproduceerbaarheid, omdat "polysacharide" vaak een mengsel aanduidt met variabele moleculaire gewichtspectra, zuiverheid en bioactiviteit tussen preparaten. Neutrale bevindingen over beeldvorming of ontstekingseindpunten komen voor en worden aannemelijk gedreven door formuleringsverschillen, suboptimale duur en gelijktijdige medicatie. Daarom moeten negatieve of neutrale resultaten worden gerapporteerd en opgenomen om publicatiebias en overschatting van de effectiviteit te verminderen. Voor klinische translatie biedt een barrière-dominant responsschema—verhoogde permeabiliteit, hoge LBP en lage sIgA bij baseline—gecombineerd met gelaagde eindpunten (sIgA/microbiota/SCFA's → LBP/16S rDNA → MRI-PDFF/ELF) een controleerbare attribuleerketen, terwijl polysaccharide vingerafdrukken en moleculair gewichtsspectra kunnen dienen als Q-markerprimitieven die zijn afgestemd op blootstelling en farmacodynamisch effect84,85. Daarnaast kan chemische/structurele karakterisering (bijv. monosaccharidesamenstelling, glycosidkoppelingsprofilering en moleculaire gewichtsverdeling) de traceerbaarheid en standaardisatie van regelgevingsniveau versterken voorbij de grove "polysaccharide-inhoud" met86,87. Combinatiestrategieën met resmetirom- of GLP-1-receptoragonisten zijn mechanistisch complementair, waarbij de eerste de nadruk legt op hepatocellulaire lipidenverwerking en fibrose-uitlezingen en de tweede op gewichts- en insulineresistentie 74,88,89. Dergelijke combinaties moeten worden geëvalueerd met vooraf gespecificeerde veiligheidsmonitoring en zorgvuldige documentatie van achtergrondtherapieën, vooral bij populaties die meerdere metabole middelen ontvangen.
Over vier interventieklassen zijn de ankerknopen langs de barrière–TLR4–NLRP3-wervelkolom verschillend maar convergent in bewijsstroom – van farmacokinetiek en plaatsvervanging via multi-omics uitlezingen tot populatie-eindpunten. Berberine werkt via hoge darmblootstelling en BA–FXR-signalering; QSHY levert gecoördineerde controle over de barrière-galzuur-TLR4-as; DCHD vestigt een dubbele verdediging bij de GVB en de epitheliale barrière met immunometabole herafstemming; Polysacchariden verlagen stroomopwaarts ruis over mucosale immuniteit–barrière–inflammasoomcircuits. Het verhogen van mechanistische markers (permeabiliteit/LBP, sIgA, BA-profielen, IL-1β/IL-18) samen met gelaagde beeldeindpunten (MRI-PDFF en ELF/MRE waar mogelijk) naar vooraf bepaalde stratifiers kan de interpreteerbaarheid verbeteren en heterogeniteit verminderen; Het inbedden hiervan binnen Q-marker-gedreven kwaliteitscontrole en exposure–effect-koppeling is essentieel voor reproduceerbaarheid en vertaalbaarheid van regelgevingsniveau. Toekomstige onderzoeken moeten hiërarchische eindpunten vastleggen die barrière-/GVB-indices koppelen aan MRI-PDFF/ELF/MRE en a priori "high permeability–inflammation" subgroepen verrijken om het signaal-naar-uitkomstpad te verscherpen. Hoewel polysacchariden een dwingende immunomodulerende coherentie vertonen over barrière- en inflammasoomklieren, blijft de huidige bewijsbasis grotendeels preklinisch. Klinische validatie met gestandaardiseerde preparaten, reproduceerbare Q-markers en gelaagde beeldvormingseindpunten is noodzakelijk voordat er definitieve conclusies over de werkzaamheid kunnen worden getrokken.
Tussen interventies is de bewijskracht ongelijk. Berberine-gebaseerde formuleringen hebben momenteel de sterkste door menselijke beeldvorming ondersteunde data, terwijl QSHY opkomende multicenter RCT-ondersteuning vooral voor surrogaateindpunten laat zien. DCHD en polysacchariden blijven mechanistisch coherent, maar worden voornamelijk ondersteund door preklinisch of heterogeen klinisch bewijs. Deze asymmetrie onderstreept het belang van gestructureerde beoordeling, replicatie en gestandaardiseerde formuleringen voordat brede translationele claims worden gedaan (zie Tabel 2).
| Interventieklasse | Primaire knoop(en) op de wervelkolom | Belangrijke mechanistische claims | Gerapporteerde translationele uitlezingen in originele studies | Status van menselijk bewijs | Bewijsniveau | Representatieve studies |
| Berberine / berberine-gebaseerde formulering (HTD1801/BUDCA) | Barrier/BA–FXR; downstream TLR4/NLRP3 (voornamelijk preklinisch) | Microbiële BSH-remming → ↑tauro-geconjugeerde BA (bijv. TCA) → ILEALE FXR–FGF15 activatie → ↓hepatische Cd36; Barrière/TLR4-as demping en inflammasoombeperking voorgesteld | Beeldvorming: MRI-PDFF; Biochemisch: ALT/AST, metabole parameters; Mechanistisch: ileale FXR/FGF15-doelen, BA-profielen | Fase 2 placebogecontroleerde RCT met MRI-PDFF-reductie (plus metabole uitkomsten) | Niveau 1–2 voor beeldvormings-/biochemische eindpunten; Niveau 3 voor inflammasoomclaims | Harrison, et.al, 202114; Zon, et.al, 201712; Nejati, et.al, 202262; Nie, et.al, 202463 |
| Qushihuayu (QSHY) / voorloper QHD | Barrière; BA/AMPK-gerelateerde metabole afstemming; TLR4-as (mechanistisch) | TJ-restauratie en verminderde LPS-translocatie; MAPK-gerelateerde upstream regulatie (preklinisch); AMPK/CPT-1A-gekoppelde FAO en metabole herprogrammering; Microbiota–lipidoom-remodellering | Mens: ALT/AST, FIB-4; VCTE-LFC (co-primair met ALT); microbioom/metaboliethandtekeningen die de respons volgen; Preklinisch: AMPK/CPT-1A/FAO-uitslagen; Microbioom + lipidomics verschuivingen | Multicenter dubbelblinde, dubbel-dummy RCT met co-primaire eindpunten (VCTE-LFC + ALT), secundaire fibrose-surrogaten | Niveau 1 voor surrogaat klinische eindpunten + omics-associatie; Niveau 3 voor mechanistische knooppunten | Liu, et.al, 202415; Feng, et.al, 201371; Zon, et.al, 202272 |
| Da-Chai-Hu Aftrek (DCHD) | GVB; stroomopwaarts barrière; PPAR/AMPK–NF-κB overspraak (preklinisch) | Behoudt de integriteit van GVB (PLVAP/PV-1-gekoppeld) onder hypervoeding; vermindert portaalflux/translocatie-gebeurtenissen; verbetert het metabole en inflammatoire fenotype in NAFLD-modellen | Preklinisch: histologie, lipiden/IR-metingen; darmmicrobiota + serummetabolomics; GVB-integriteitsmarkers (PLVAP/PV-1) | Klinisch bewijs voornamelijk uit heterogene studies, samengevat in een systematische review; Beperkte beeldvormingsniveau-eindpunten | Voornamelijk niveau 3; Heterogeen klinische signalen | Cui, et.al, 202016; Wang, et.al, 202378; Mou, et.al, 202480 |
| TCM-polysacchariden (Astragalus, Ganoderma) | Mucosale immuniteit/barrière; TLR4–NF-κB; NLRP3 (voornamelijk preklinisch) | Barrièreversterking (TJ-eiwitten), mucosale immuunmodulatie (sIgA); verminderde endotoxemie; inflammasome vasthouding gemeld; microbiota/BA-koppeling in NAFLD-modellen | Preklinisch: TJ-eiwitten (ZO-1/occludin), sIgA, cytokines; samenstelling van darmmicrobiota; BA-homeostase (inclusief BA-pathwaygerichte metingen); Lever: inflammasoommarkers (IL-1β/IL-18/NLRP3 in blessuremodellen) | Robuuste humane beeldvorming-/fibrose-gecentreerde onderzoeken beperkt tot de beperking; Bewijs voornamelijk mechanistisch/preklinisch | Voornamelijk niveau 3 | Zheng, et.al, 202418; Ying, et.al, 202082; Zhong, et.al, 202249 |
Tabel 2: Representatieve interventies gekoppeld aan de barrière–TLR4–NLRP3-as en gerapporteerde translationele uitlezingen.
Biomarkers en responstypering zijn verankerd in de darm-lever immuunspin
Minimale biomarkerpanel- en drempeldefinities
Het operationaliseren van de "barrière–TLR4–NLRP3" wervelkolom vereist een minimaal, in vivo herhaalbaar panel dat de beeldvorming en klinische eindpunten volgt. Voor darmafgeleide moleculaire belasting geven systematische review en meta-analyse aan dat circulerende lipopolysaccharide stijgt over het spectrum van MASLD tot MASH en geavanceerde fibrose, wat het gebruik ervan ondersteunt voor stratificatie en als proximale exposure-uitleg 1,90,91. Omdat LPS-kwantificatie methodologisch heterogeen is, gebruiken studies vaak LPS-bindend eiwit en oplosbare CD14 (sCD14) als surrogaten; beide correleren met LPS-activiteit maar missen specificiteit en zijn gevoelig voor postprandiale fluctuaties, en pleiten voor gepaarde nuchtere basislijn en gestandaardiseerde postprandiale steekproeven met expliciete rapportage van timing en interpretatieve kanttekeningen 1,92. Bovendien verandert structurele diversiteit in lipide A de TLR4-triggerdrempels, dus kruisvergelijkingen zouden LPS-bron- en assayformaat moeten specificeren om "dezelfde naam, ander molecuul"-bias93 te voorkomen.
Daarom moet biomarkerselectie in TCM-gerichte klinische onderzoeken prioriteit geven aan assay-reproduceerbaarheid en cross-cohort-vergelijkbaarheid boven theoretische volledigheid, en moet methodologische transparantie alle blootstellingsuitslagen begeleiden.
Galzuurprofilering biedt een venster op BA–FXR/TGR5-dysregulatie. In MASH zijn de totale BA-totalen en specifieke soorten (bijv. choliczuur, chenodeoxycholic acid) vaak verhoogd en associëren ze met het fibrosestadium en insulineresistentie, wat een "BA–FXR-dominant" subtype94 ondersteunt. In plasma weerspiegelt 7α-hydroxy-4-cholesten-3-one (C4) de BA-synthese en volgt het doorgaans omgekeerd de ileale FXR–FGF19-feedback; uitlezingen die FGF19 integreren met C4 helpen de dynamische FXR-status te bepalen en kunnen worden gebruikt om de responsiviteit op BA–FXR–gerichte interventieste meten. Voor korteketenvetzuren (SCFA's) zijn associaties met steatose en fibrose directioneel afhankelijk van dieet en ecologie; het combineren van fecale of plasma SCFA's met metagenomische functionele capaciteit (SCFA biosynthetische routes) en receptoruitlezingen (GPR41/43) verbetert de externe validiteitmet 98.
Omdat BA- en SCFA-metingen gevoelig zijn voor voedingsinname, microbioomecologie en variabiliteit in LC-MS-platforms, zijn vooraf gespecificeerde bemonsteringsprotocollen en analysepijplijnen essentieel als deze markers als begeleidende biomarkers in TCM-onderzoeken moeten dienen.
Directe metingen van "doorlaatbaarheid" blijven onvastgesteld. Humaan zonulin komt overeen met pre-haptoglobine-2, maar veelgebruikte ELISA's missen specificiteit en kunnen kruisreageren met properdin of andere leden van de "zonulinefamilie", wat onstabiele resultaten oplevert tussen cohorten; Zoulin wordt het beste als verkennend behandeld en kruisgevalideerd met functionele permeabiliteitstesten of barrièretranscriptiesignaturen om vals-positieve guidance 99.100 te minimaliseren. Moleculair bewijs van bacteriële translocatie (circulerend of hepatisch 16S rDNA) heeft van nature een lage biomassa en is gevoelig voor reagens- en batchbesmetting; Strenge negatieve controles en decontaminatiepijplijnen zijn verplicht, en causale interpretatie moet voorzichtig zijn, zelfs wanneer verschillen zijn gerapporteerd in metabolisch/obese leverweefsel101.
Drempelbeeldvorming en fibrose-uitlezingen bieden gestandaardiseerde "go/no-go" poorten. Een relatieve vermindering van ≥30% in MRI-PDFF correleert met de histologische respons (NAS-verbetering/MASH-resolutie) en is geschikt voor tussentijdse besluitvorming van 4–12 weken en steekproefgrootteplanning 102.103. Drempels voor verhoogde leverfibrose (ELF) van 9,8 en 11,3 ondersteunen langetermijnrisicostratificatie en surveillancetriggers. Magnetische resonantie-elastografie (MRE) leverstijfheid rond 3,3 kPa, gecombineerd met FIB-4 ≥ 1,6 als MEFIB-regel, verrijkt ≥F2-fibrose met groot vertrouwen tussen cohorten, waardoor snelle identificatie van risicogroepen mogelijk is en inschrijving104 wordt geleid. Voor TCM-ontwikkeling biedt het koppelen van proximale immuunmarkers (bijv. LBP, IL-1β) met gelaagde beelddrempelwaarden een hiërarchisch kader dat de afhankelijkheid van biochemische surrogaten alleen vermindert.
Responstypering verankerd in de immuunspin
Met de sequentie "epithelium/GVB → LPS–TLR4–NF-κB → NLRP3" als organiserende steiger, kan MASLD/MASH operationeel worden opgedeeld in drie interventie-matchbare subtypes. Een barrière-dominant fenotype wordt gekenmerkt door verhoogd vasten of gestandaardiseerde postprandiale LBP/sCD14, een verschuiving naar hogere primaire en secundaire galzuurverhoudingen en een mucosale immuunonbalans. Beeldvorming toont doorgaans een hoge MRI-PDFF met MRE/ELF nog steeds in lage tot intermediate risicobereiken, waarbij eerstelijnsstrategieën worden bevoordeeld die de epitheel- en GVB-integriteit versterken, de microbiota herstructureren en het galzuurreservoir normaliseren; vroege respons wordt het best beoordeeld aan de hand van gekoppelde dalingen van LBP/sCD14 samen met een PDFF-reductievan 1,92.
Dit subtype is bijzonder relevant voor TCM-strategieën die de nadruk leggen op barrièrestabilisatie en microbiota-remodellering (bijvoorbeeld polysacchariden of QSHY-achtige formules), en biedt een rationele basis voor verrijking in barrièregerichte onderzoeken. Een inflammasoom-dominant fenotype vertoont verhoogde IL-1β in bloed of lever, positieve NLRP3- en pyroptose (GSDMD-N) signaturen op transcript-/eiwitniveau, en een gelijktijdige verslechtering van fibrose-uitslagen. Menselijke weefsels en diermodellen tonen aan dat GSDMD-N toeneemt met ziekteactiviteit en fibrose, en dat selectieve NLRP3-remming leverontsteking en fibrose vermindert terwijl het beperkte effecten op steatose uitoefent—wat een mismatchrisico benadrukt waarbij vetverlies niet gelijkstaat aan inflammatorie/fibrotische verbetering. In dit subtype kan het combineren van NLRP3–caspase-1–IL-1β blokkade met AMPK/Nrf2-geleide metabole herprogrammering de kans op responsverhogen met 7,36.
In TCM-contexten sluit dit fenotype mechanistisch aan bij agentia die naar verluidt inflammasoomsignalering moduleren (bijv. BBR, APS) en benadrukt het het risico dat "vet-alleen" eindpunten er niet in slagen om padconcordant voordeel te vangen. Een BA–FXR-gedysreguleerd fenotype wordt aangegeven door abnormale fecale/plasma BA-samenstelling en verstoorde FGF19/C4-dynamiek, wat wijst op een niet-fysiologische toestand van het darm–lever BA–FXR/TGR5-circuit. Naast barrière-/microbiotamaatregelen verdient dit subtype een expliciete beoordeling van de responsiviteit en veiligheidsmarges van FXR/TGR5; effectiviteit moet worden beoordeeld aan de hand van fysiologische heruitlijning van BA-profielen, samen met overeenkomstige verbeteringen in PDFF en MRE94,95. Voor TCM-interventies die galzuurpools of FXR-activiteit beïnvloeden, biedt dit subtype een biologisch coherente verrijkingsstrategie, mits veiligheidsmarges en off-target galzuureffecten worden gemonitord.
Gestratificeerde uitlijning en longitudinale follow-up
Om mechanismen → biomarkers → uitkomsten op individueel niveau te vertalen, wordt een kader met drie tijdspunten aanbevolen: baseline → tussentijds (4–12 weken) → uitkomst (≥24–48 weken). De basislijn moet het minimale panel omvatten (LBP/sCD14, BA-profilering en—waar informatief—SCFA's en rigoureus gedesinfecteerd 16S rDNA), beeldvorming met MRI-PDFF/MRE, en risicoclassificatie (bijv. MEFIB), met vooraf gespecificeerde gemeenschappelijke en subtype-specifieke secundaire eindpunten afgeleid van het drie-klassenschema105. Tussendoor functioneert MRI-PDFF als een go/no-go signaal: een relatieve vermindering van ≥30% binnen 4–12 weken, vergezeld van synchrone dalingen van LBP/sCD14, geeft aan dat de barrièrearm effectief is ingeschakeld. Als PDFF afneemt maar IL-1β/GSDMD-N of ELF/MRE niet verbeteren, suggereert het patroon een inflammasoom-dominante mismatch en zou het additatie of overstap naar NLRP3–caspase-1–gerichte strategieën102,103 moeten triggeren.
Het uitkomstvenster geeft prioriteit aan MRE/ELF en klinische eindpunten over ≥24–48 weken om fibrosedynamiek vast te leggen; ELF-drempels van 9,8/11,3 en een MRE-poort rond 3,3 kPa—gecombineerd met FIB-4 ≥1,6 in de MEFIB-regel—ondersteunen risico-herstratificatie en gebeurtenisbeoordeling104. Ter ondersteuning van de haalbaarheid van multi-omics–verankerde risicostratificatie, identificeerde een recente fecale microbiome–metaboloomstudie bij cirrose complicatie-afhankelijke microbiële en metabole signaturen met goede diagnostische prestaties en correlaties met klinische markers, waarmee werd aangetoond hoe darm-afgeleide omics gekoppeld kunnen worden aan klinisch betekenisvolle uitkomsten78. Voor intrinsiek laag-biomassa assays moeten negatieve controles en ontsmettingspijpleidingen worden bekendgemaakt; Zonulin moet verkennend blijven en worden gekruist met functionele permeabiliteitstests of epitheliale barrière-signaturen om vals-positieve richtlijnen101 te voorkomen.
Binnen dit kader vormen het minimale biomarkerpaneel en gelaagde beelddrempels de basis voor een coherent systeem voor responstypering en follow-up. De barrière-dominante, inflammasoom-dominante en BA–FXR-gedysreguleerde klassen zijn toepasbaar op uitvoerbare strategieën—epitheel/GVB-bescherming met microbiota–BA-remodeling; NLRP3–caspase-1 remming met metabole herstemming; en respectievelijk FXR/TGR5-modulatie—met validatie door gecoördineerde veranderingen in LBP/sCD14, BA-profielen, IL-1β/GSDMD-N en MRI-PDFF/MRE/ELF. Op deze manier wordt de immuunspine omgezet in testbare "wie profiteert"-criteria die voorlopige stopregels, verrijking en surveillance binnen onderzoeken 1.103 informeren. Door expliciet subtype, interventieklasse en hiërarchische eindpunten te koppelen, wordt de immuunspine omgezet in testbare "wie profiteert"-criteria die de trial-efficiëntie kunnen verbeteren, heterogeniteit kunnen verminderen en de causale toeschrijving in TCM-studies kunnen versterken.
Illustratieve, protocolniveau, uitgewerkte voorbeelden voor biomarker-geleide ontwerpen
Om de uitvoerbaarheid van de voorgestelde biomarker- en adaptive-designconcepten te verbeteren, bieden we twee protocolniveau-voorbeelden die zijn gekoppeld aan gepubliceerde trialontwerpen en gevalideerde imaging-/biomarkerdrempels, in plaats van hypothetische parameterkeuzes. Het doel is om te demonstreren hoe mechanistische subtypering kan worden geoperationaliseerd met vooraf gespecificeerde eindpunten, tussentijdse beslissingsregels en reproduceerbare assays.
Uitgewerkt voorbeeld 1: Barrière-verrijkte formuleproef (QSHY) met beeldvormingspoort en fibrose-uitlezing.
Een praktische implementatie van het barrière-dominante schema kan gebruikmaken van het bestaande multicentere, dubbelblinde, double-dummy gerandomiseerde trialontwerp van Qushi Huayu (QSHY) in NAFLD-populaties, waarbij co-primaire eindpunten werden gebruikt die waren afgestemd op het levervetgehalte door middel van vibratiegecontroleerde transiënte elastografie en ALT na 24 weken. Een verrijkt protocol kan vooraf specificeren de intreecriteria van basissteatose via MRI-PDFF (bijv. ≥10%) en verhoogde blootstelling aan de barrières (LBP en/of sCD14 boven het bovenste tertiel/kwartiel van de gescreende cohort), terwijl dezelfde blinding- en vergelijkingsstructuur behouden blijft voor haalbaarheid en interpreteerbaarheid15. Een tussentijdse beslissing in week 12 zou MRI-PDFF als poort gebruiken: een relatieve daling van ≥30% zou worden gedefinieerd als een vroege responssignaal gebaseerd op meta-analytisch bewijs dat deze drempel koppelt aan histologische respons en NASH-resolutie102 en aan fibrose-regressiekans103. Deelnemers zouden doorgaan tot week 24–48 met fibrosegerichte uitkomsten als prioriteit (ELF en/of MRE), waarbij gevestigde prognostische ELF-strata (bijv. <9,8 versus ≥11,3) gebruikt werden voor risicoherclassificatie en uitkomstinterpretatie104. Waar fibrose-verrijking gewenst is, kan de MEFIB-regel (MRE ≥3,3 kPa plus FIB-4 ≥1,6) bij de baseline vooraf worden gespecificeerd, hetzij als een geschiktheidsstratum of als een sleutelsubgroep om de kracht voor fibrose-relevante inferentie105 te versterken. Begeleidende biomarkers (LBP/sCD14, verkennend IL-1β/GSDMD-N) zouden bij de basislijn en week 12 worden verzameld om de betrokkenheid van het pad te testen en om de mechanistische interpretatie van discordante beeldvormings-/biochemische trajecten te ondersteunen.
Uitgewerkt voorbeeld 2: BA–FXR-verrijkte interventieproef (berberine-gebaseerde formulering) met PDFF-poort en metabole co-endpoints.
Een BA–FXR-dysgereguleerde implementatie kan worden gekoppeld aan de fase 2, placebogecontroleerde studie van berberine ursodeoxycholaat (HTD1801/BUDCA), die significante MRI-PDFF-vermindering liet zien naast metabole verbeteringen in vermoedelijke NASH bij type 2 diabetes14. Een realiseerbaar protocol zou BA-asverrijking vooraf specificeren met behulp van baseline BA-profielen en/of FGF19–C4-dynamiek (zoals beschreven in het manuscript), terwijl MRI-PDFF als primaire vroege beeldvormingseindpunt behouden blijft. Een tussentijdse gate van 12–18 weken zou opnieuw de ≥30% relatieve PDFF-daldrempel kunnen aannemen ter ondersteuning van go/no-go beslissingen en steekproefgrootteplanning, in overeenstemming met vroegfase bewijs102. Omdat klinische signalen met berberineproducten heterogeniteit vertonen—waaronder RCT's die neutrale effecten op leverenzymen en metabole metingen rapporteren in subsets van NAFLD—zouden protocollen responstypering en geplande heterogeniteitsanalyses vooraf moeten specificeren in plaats van nulsignalen als post-hoc verrassingente behandelen. Een recente meta-analyse benadrukt ook variabiliteit tussen berberineonderzoeken in formulering, dosis en patiëntprofielen, wat de noodzaak van companion biomarkers en gestratificeerde interpretatie63 ondersteunt. Veiligheidsmonitoring moet prospectief worden gedefinieerd met bijzondere aandacht voor gastro-intestinale tolerantie en het potentieel voor geneesmiddel-geneesmiddelinteractie in metabolisch behandelde cohorten, in lijn met de patronen van bijwerkingen die in de HTD1801 trial14 zijn gerapporteerd.
Implementatietemplate: vereenvoudigd biomarker-gestuurd MAMS
Een pragmatische multi-arm, multi-traps benadering kan worden gepresenteerd als drie vooraf gespecificeerde, klinisch bekende poorten in plaats van een sterk geparametriseerd adaptief platform: Fase 1 selecteert interventies via vroege levervetrespons (MRI-PDFF ≥30% relatieve afname) met behulp van evidence-based gates102; Fase 2 evalueert fibrose-dynamiek met ELF en/of MRE (met optionele MEFIB-verrijking) over 24–48 weken,104.105; Fase 3 bevestigt duurzaamheid met een vooraf bepaald composietresultaat en veiligheidsprofiel. Rapportage moet de Adaptive Designs CONSORT Extension (ACE) volgen om transparantie te waarborgen van vooraf geplande aanpassingen, stopregels en type I foutcontrole106. Deze "uitvoeringstemplate" houdt het framework uitvoerbaar terwijl mechanistische verrijking via bijbehorende biomarkers (LBP/sCD14, BA/FGF19–C4, IL-1β/GSDMD-N) behouden blijft.
Conclusies
Over de aaneengesloten sequentie van epitel- en darmvaatbarrièrefalen, portaalmoleculaire instroom, TLR4–NF-κB-amplificatie en NLRP3-gemedieerde pyroptose, geeft het huidige bewijs een immunometabole ziektearchitectuur voor MASLD/MASH aan. Reorganisatie van epitheliale tight junctions samen met GVB-lekkage verlaagt de activatiedrempel van sinusvormige aangeboren immuniteit; darm-afgeleide inputs—LPS, endogene ethanol en gestoorde galzuurprofielen—worden vervolgens waargenomen door hepatische TLR4 en voortgeplant via inflammatoire cascades, uiteindelijk samenkomen op NLRP3–caspase-1–IL-1β/IL-18 signalering om ontsteking en fibrose 26,27,33 aan te sturen. Deze wervelkolom is hiërarchisch gekoppeld aan BA–FXR/TGR5, SCFA–GPR41/43 en AMPK/Nrf2-circuits, waardoor bidirectionele afstemming tussen metabolisme en immuniteitmogelijk is. Binnen deze biologische context maken multi-target natuurlijke agentia "coaxiale" interventie op barrières, receptor-signaalknopen en metabole drempels mogelijk: berberine, door bacteriële BSH te remmen, de galzuurpool te remodelleren en de ILEALE FXR–FGF15-as te activeren, oefent controle uit over de intrahepatische immunometabole uitlezingen met lage systemische blootstelling en vermindert MRI-PDFF in een fase 2-onderzoek van het ionische complex12,13. Formule-gebaseerde therapieën en polysacchariden voegen translationele signalen toe voor barrièreherstel en inflammasoombeperking 15,17. Samen vormen de darm-leveras een praktische basis om mechanismen, biomarkers en klinische eindpunten binnen één coördinatensysteem uit te lijnen.
Het vertalen van deze kennis naar resultaten vereist drie belangrijke ontwikkelingen. Ten eerste zijn direct menselijk bewijs voor de VVB en reproduceerbare functionele uitlezingen nodig. Samengestelde metingen die een gecoördineerde epitheel-endotheelbreuk vastleggen—tijdreeksprofilering van vasten en gestandaardiseerde postprandiale LBP/sCD14 gekoppeld aan FGF19/C4-dynamiek van galzuursynthese en ileale feedback—ingebed in longitudinale beeldvorming en klinische follow-up, zouden een verifieerbare "barrière → blootstelling → orgaan" keten vaststellen26,27. Ten tweede moeten bruggen van multi-omics naar gelaagde eindpunten expliciet worden gemaakt: prospectieve metagenomics/transcriptomics met plasma- en fecale BA-spectra en SCFA's uitgelijnd op beeldvormingsdrempels—≥30% relatieve MRI-PDFF-afname na 12–24 weken als tussentijdse poort, en MRE (~3,3–3,5 kPa) met ELF (9,8/11,3) na 24–48 weken voor fibrose en prognostische stratificatie—zodat mechanistische signalen hetzelfde kader beslaan als structurele en uitkomstuitslagen102, 105. Ten derde moeten stratificatiehypothesen vooraf worden gespecificeerd en falsifieerbaar: personen in het bovenste kwartiel van vasten of gestandaardiseerde postprandiale LBP/sCD14 zouden meer kans moeten hebben om ≥30% PDFF-reductie te bereiken met gecoördineerde barrière/GVB-bescherming en normalisatie van microbiota–BA, vergezeld van concordante dalingen van LBP/sCD14; degenen met verhoogde IL-1β of NLRP3/pyroptose (GSDMD-N) signaturen zouden bij voorkeur verbetering van ELF/MRE moeten vertonen wanneer de NLRP3–caspase-1 blokkade wordt gekoppeld aan AMPK/Nrf2-retuning; Afhankelijkheid van barrière-only strategieën in inflammasoom-dominante biologie brengt het risico op de bekende mismatch van steatosevermindering zonder fibrose-voordeel 1,7,102.
Methodologisch kunnen multi-arm, multi-traps en biomarker-gedreven adaptieve ontwerpen de efficiëntie en reproduceerbaarheid in multi-mechanisme programma's verhogen. Een initiële fase die wordt geblokkeerd door ≥30% MRI-PDFF afname, kan armen met lage kans triageren; een tweede fase met ELF/MRE kan de randomisatie bijwerken binnen barrière-dominante, inflammasoom-dominante en BA–FXR-dysgereguleerde strata; Een derde fase kan 48 weken composiet klinisch–beeldvormende uitkomsten evalueren. Poortdrempels, stopregels en α toewijzing moeten vooraf worden geregistreerd en transparant gerapporteerd; Laag-biomassa assays (bijv. circulerend of weefsel 16S rDNA) vereisen rigoureuze negatieve controles en decontaminatiepijplijnen, en Q-markers moeten batchconsistentie en traceerbaarheid over materiaalbasis, in vivo blootstelling en farmacodynamische uitlezingen101,106 waarborgen. Het integreren van de barrière–aangeboren-immuniteit–metabole wervelkolom met vooraf bepaalde strata, hiërarchische eindpunten en adaptieve onderzoeken kan multi-target interventies van proof-of-concept naar blijvend voordeel brengen in gedefinieerde populaties, biologische heterogeniteit in MASLD/MASH verhelderen en een operationeel kader bieden voor precieze en vertaalbare combinatietherapie.
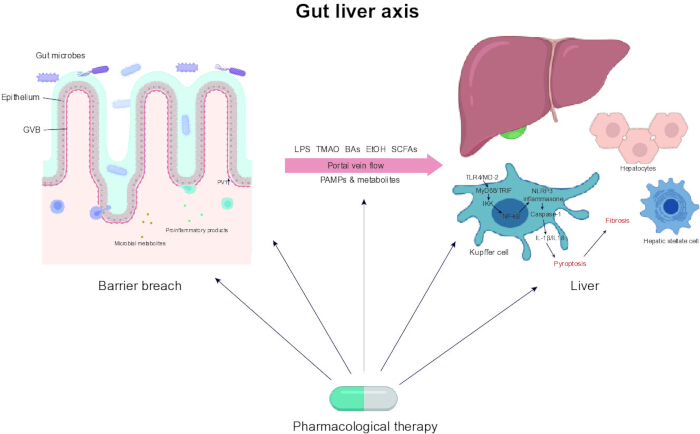
Figuur 1: Grafische samenvatting van de darm-lever-as in MASLD/MASH. Dit diagram vat de belangrijkste mechanismen en therapeutische implicaties van de darm-lever-as bij MASLD samen en de ontwikkeling ervan naar MASH. Het illustreert hoe darmafgeleide stoffen (bijv. LPS, BAs, SCFAs, TMAO) via de portaalader naar de lever transloceren na inflammatie van de darmbarrière, waardoor immuunresponsen (bijv. TLR4–NF-κB, NLRP3-inflammasoom) worden geactiveerd die ontsteking, hepatocytletsel en fibrose veroorzaken. Het kader benadrukt ook multi-target therapieën, waarmee een strategie wordt ondersteund voor biomarker-geleide, gestratificeerde interventie in MASLD/MASH. Afkortingen: MASLD = metabole disfunctie-geassocieerde steatotische leverziekte; MASH = metabole disfunctie-geassocieerde steatohepatitis; LPS = lipopolysaccharide; BAs = galzuren; SCFA's = vetzuren met korte keten; TMAO = trimethylamine N-oxide; TLR4 = Toll-achtige receptor 4; NF-κB = kernfactor kappa B; NLRP3 = NOD-, LRR- en pyrine-bevattend eiwit 3. Klik hier om een grotere versie van deze figuur te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten om te melden.
Dankbetuigingen
Dit werk werd ondersteund door het Zhejiang Provinciale Programma voor Traditionele Chinese Geneeskunde Wetenschap en Technologie (nr. 2024ZL1181) en het Jinhua Gemeentelijk Wetenschaps- en Technologieprogramma, Sleutelproject voor Sociale Ontwikkeling (nr. 2024-3-071).
Referenties
- Soppert, J., et al. Blood endotoxin levels as biomarker of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 21, 2746-2758 (2023).
- Yuan, J., et al. Fatty liver disease caused by high-alcohol-producing Klebsiella pneumoniae. Cell Metab. 30, 675-688.e7 (2019).
- Sharifnia, T., et al. Hepatic TLR4 signaling in obese NAFLD. Am J Physiol Gastrointest Liver Physiol. 309, G270-G278 (2015).
- Miura, K., Yang, L., van Rooijen, N., Ohnishi, H., Seki, E. Hepatic recruitment of macrophages promotes nonalcoholic steatohepatitis through CCR2. Am J Physiol Gastrointest Liver Physiol. 302, G1310-G1321 (2012).
- Seki, E., et al. TLR4 enhances TGF-beta signaling and hepatic fibrosis. Nat Med. 13, 1324-1332 (2007).
- Wree, A., et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice. Hepatology. 59, 898-910 (2014).
- Mridha, A. R., et al. NLRP3 inflammasome blockade reduces liver inflammation and fibrosis in experimental NASH in mice. J Hepatol. 66, 1037-1046 (2017).
- Ioannou, G. N., et al. Genetic deletion or pharmacologic inhibition of the Nlrp3 inflammasome did not ameliorate experimental NASH. J Lipid Res. 64, 100330(2023).
- Neuschwander-Tetri, B. A., et al. Farnesoid X nuclear receptor ligand obeticholic acid for non-cirrhotic, non-alcoholic steatohepatitis (FLINT): a multicentre, randomised, placebo-controlled trial. Lancet. 385, 956-965 (2015).
- Thomas, C., et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 10, 167-177 (2009).
- Gao, W., et al. Dissecting the crosstalk between Nrf2 and NF-κB response pathways in drug-induced toxicity. Front Cell Dev Biol. 9, 809952(2021).
- Sun, R., et al. Orally administered berberine modulates hepatic lipid metabolism by altering microbial bile acid metabolism and the intestinal FXR signaling pathway. Mol Pharmacol. 91, 110-122 (2017).
- Tian, Y., et al. Berberine directly affects the gut microbiota to promote intestinal farnesoid X receptor activation. Drug Metab Dispos. 47, 86-93 (2019).
- Harrison, S. A., et al. A phase 2, proof of concept, randomised controlled trial of berberine ursodeoxycholate in patients with presumed non-alcoholic steatohepatitis and type 2 diabetes. Nat Commun. 12, 5503(2021).
- Liu, Q., et al. Efficacy and safety of Qushi Huayu, a traditional Chinese medicine, in patients with nonalcoholic fatty liver disease in a randomized controlled trial. Phytomedicine. 130, 155398(2024).
- Cui, H., et al. Da-Chai-Hu decoction ameliorates high fat diet-induced nonalcoholic fatty liver disease through remodeling the gut microbiota and modulating the serum metabolism. Front Pharmacol. 11, 584090(2020).
- Chen, Y. S., Chen, Q. Z., Wang, Z. J., Hua, C. Anti-inflammatory and hepatoprotective effects of Ganoderma lucidum polysaccharides against carbon tetrachloride-induced liver injury in Kunming mice. Pharmacology. 103, 143-150 (2019).
- Zheng, N., Wang, H., Zhu, W., Li, Y., Li, H. Astragalus polysaccharide attenuates nonalcoholic fatty liver disease through THDCA in high-fat diet-fed mice. J Ethnopharmacol. 320, 117401(2024).
- Saeed, H., et al. Microbiome-centered therapies for the management of metabolic dysfunction-associated steatotic liver disease. Clin Mol Hepatol. 31, S94-S111 (2025).
- Al-Sadi, R., Guo, S., Ye, D., Rawat, M., Ma, T. Y. TNF-α modulation of intestinal tight junction permeability is mediated by NIK/IKK-α axis activation of the canonical NF-κB pathway. Am J Pathol. 186, 1151-1165 (2016).
- Marchiando, A. M., et al. Caveolin-1-dependent occludin endocytosis is required for TNF-induced tight junction regulation in vivo. J Cell Biol. 189, 111-126 (2010).
- Jakobsson, H. E., et al. The composition of the gut microbiota shapes the colon mucus barrier. EMBO Rep. 16, 164-177 (2015).
- Allam-Ndoul, B., Castonguay-Paradis, S., Veilleux, A. Gut microbiota and intestinal trans-epithelial permeability. Int J Mol Sci. 21, 6402(2020).
- Takiishi, T., Fenero, C. I. M., Câmara, N. O. S. Intestinal barrier and gut microbiota: shaping our immune responses throughout life. Tissue Barriers. 5, e1373208(2017).
- Kimura, I., et al. The gut microbiota suppresses insulin-mediated fat accumulation via the short-chain fatty acid receptor GPR43. Nat Commun. 4, 1829(2013).
- Spadoni, I., et al. A gut-vascular barrier controls the systemic dissemination of bacteria. Science. 350, 830-834 (2015).
- Mouries, J., et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development. J Hepatol. 71, 1216-1228 (2019).
- Di Tommaso, N., Santopaolo, F., Gasbarrini, A., Ponziani, F. R. The gut-vascular barrier as a new protagonist in intestinal and extraintestinal diseases. Int J Mol Sci. 24, 1470(2023).
- Vinolo, M. A., Rodrigues, H. G., Nachbar, R. T., Curi, R. Regulation of inflammation by short chain fatty acids. Nutrients. 3, 858-876 (2011).
- Corrêa-Oliveira, R., Fachi, J. L., Vieira, A., Sato, F. T., Vinolo, M. A. Regulation of immune cell function by short-chain fatty acids. Clin Transl Immunology. 5, e73(2016).
- Larabi, A. B., Masson, H. L. P., Bäumler, A. J. Bile acids as modulators of gut microbiota composition and function. Gut Microbes. 15, 2172671(2023).
- Kim, S. Y., et al. Pro-inflammatory hepatic macrophages generate ROS through NADPH oxidase 2 via endocytosis of monomeric TLR4-MD2 complex. Nat Commun. 8, 2247(2017).
- Yu, L., et al. The NLRP3 inflammasome in non-alcoholic fatty liver disease and steatohepatitis: therapeutic targets and treatment. Front Pharmacol. 13, 780496(2022).
- Wang, L., Hauenstein, A. V. The NLRP3 inflammasome: mechanism of action, role in disease and therapies. Mol Aspects Med. 76, 100889(2020).
- Liang, J. Q., et al. Dietary cholesterol promotes steatohepatitis related hepatocellular carcinoma through dysregulated metabolism and calcium signaling. Nat Commun. 9, 4490(2018).
- Xu, B., et al. Gasdermin D plays a key role as a pyroptosis executor of non-alcoholic steatohepatitis in humans and mice. J Hepatol. 68, 773-782 (2018).
- Tilg, H., Cani, P. D., Mayer, E. A. Gut microbiome and liver diseases. Gut. 65, 2035-2044 (2016).
- Ye, D., Ma, I., Ma, T. Y. Molecular mechanism of tumor necrosis factor-alpha modulation of intestinal epithelial tight junction barrier. Am J Physiol Gastrointest Liver Physiol. 290, G496-G504 (2006).
- Farhadi, A., et al. Susceptibility to gut leakiness: a possible mechanism for endotoxaemia in non-alcoholic steatohepatitis. Liver Int. 28, 1026-1033 (2008).
- Wree, A., et al. NLRP3 inflammasome activation is required for fibrosis development in NAFLD. J Mol Med (Berl). 92, 1069-1082 (2014).
- Panossian, A. Trends and pitfalls in the progress of network pharmacology research on natural products. Pharmaceuticals (Basel). 18, 538(2025).
- Li, L., et al. Network pharmacology: a bright guiding light on the way to explore the personalized precise medication of traditional Chinese medicine. Chin Med. 18, 146(2023).
- Stroeve, J. H., et al. Intestinal FXR-mediated FGF15 production contributes to diurnal control of hepatic bile acid synthesis in mice. Lab Invest. 90, 1457-1467 (2010).
- Song, L., et al. Hepatic FXR-FGF4 is required for bile acid homeostasis via an FGFR4-LRH-1 signal node under cholestatic stress. Cell Metab. 37, 104-120.e9 (2025).
- Lan, Q., et al. Hepatoprotective effect of Qushihuayu formula on non-alcoholic steatohepatitis induced by MCD diet in rat. Chin Med. 16, 27(2021).
- Sterne, J. A. C., et al. 2: a revised tool for assessing risk of bias in randomised trials. BMJ. 366, 14898(2019).
- Sterne, J. A., et al. ROBINS-I: a tool for assessing risk of bias in non-randomised studies of interventions. BMJ. 355, i4919(2016).
- Verbeke, L., et al. The FXR agonist obeticholic acid prevents gut barrier dysfunction and bacterial translocation in cholestatic rats. Am J Pathol. 185, 409-419 (2015).
- Zhong, M., et al. Astragalus mongholicus polysaccharides ameliorate hepatic lipid accumulation and inflammation as well as modulate gut microbiota in NAFLD rats. Food Funct. 13, 7287-7301 (2022).
- Bhattacharyya, S., et al. Toll-like receptor 4 signaling augments transforming growth factor-β responses: a novel mechanism for maintaining and amplifying fibrosis in scleroderma. Am J Pathol. 182, 192-205 (2013).
- Ali, A. A., Fouda, A., Abdelaziz, E. S., Abdelkawy, K., Ahmed, M. H. The promising role of CCL2 as a noninvasive marker for nonalcoholic steatohepatitis diagnosis in Egyptian populations. Eur J Gastroenterol Hepatol. 33, e954-e960 (2021).
- Menzel, A., et al. Common and novel markers for measuring inflammation and oxidative stress ex vivo in research and clinical practice-which to use regarding disease outcomes. Antioxidants (Basel). 10, 414(2021).
- Trubnikov, A., et al. Effectiveness and safety of a shorter treatment regimen in a setting with a high burden of multidrug-resistant tuberculosis. Int J Environ Res Public Health. 18, 4121(2021).
- Chang, C. J., et al. Ganoderma lucidum reduces obesity in mice by modulating the composition of the gut microbiota. Nat Commun. 6, 7489(2015).
- Liu, Y. T., et al. Extensive intestinal first-pass elimination and predominant hepatic distribution of berberine explain its low plasma levels in rats. Drug Metab Dispos. 38, 1779-1784 (2010).
- Tan, X. S., et al. Tissue distribution of berberine and its metabolites after oral administration in rats. PLoS One. 8, e77969(2013).
- Chen, W., et al. Bioavailability study of berberine and the enhancing effects of TPGS on intestinal absorption in rats. AAPS PharmSciTech. 12, 705-711 (2011).
- Roy, S., et al. Hepatic NLRP3-derived Hsp70 binding to TLR4 mediates MASLD to MASH progression upon inhibition of PP2A by harmful algal bloom toxin microcystin, a second hit. Int J Mol Sci. 24, 16354(2023).
- Zeng, H., Umar, S., Rust, B., Lazarova, D., Bordonaro, M. Secondary bile acids and short chain fatty acids in the colon: a focus on colonic microbiome, cell proliferation, inflammation, and cancer. Int J Mol Sci. 20, 1214(2019).
- Visekruna, A., Luu, M. The role of short-chain fatty acids and bile acids in intestinal and liver function, inflammation, and carcinogenesis. Front Cell Dev Biol. 9, 703218(2021).
- Di Bisceglie, A. M., et al. Pharmacokinetics and pharmacodynamics of HTD1801 (berberine ursodeoxycholate, BUDCA) in patients with hyperlipidemia. Lipids Health Dis. 19, 239(2020).
- Nejati, L., Movahedi, A., Salari, G., Moeineddin, R., Nejati, P. The effect of berberine on lipid profile, liver enzymes, and fasting blood glucose in patients with non-alcoholic fatty liver disease (NAFLD): a randomized controlled trial. Med J Islam Repub Iran. 36, 39(2022).
- Nie, Q., et al. The clinical efficacy and safety of berberine in the treatment of non-alcoholic fatty liver disease: a meta-analysis and systematic review. J Transl Med. 22, 225(2024).
- Feng, R., et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Sci Rep. 5, 12155(2015).
- Gu, L., et al. Berberine ameliorates intestinal epithelial tight-junction damage and down-regulates myosin light chain kinase pathways in a mouse model of endotoxinemia. J Infect Dis. 203, 1602-1612 (2011).
- Yan, F., et al. Berberine promotes recovery of colitis and inhibits inflammatory responses in colonic macrophages and epithelial cells in DSS-treated mice. Am J Physiol Gastrointest Liver Physiol. 302, G504-G514 (2012).
- Zhang, H., et al. Berberine suppresses LPS-induced inflammation through modulating Sirt1/NF-κB signaling pathway in RAW264.7 cells. Int Immunopharmacol. 52, 93-100 (2017).
- Mai, W., et al. Berberine inhibits Nod-like receptor family pyrin domain containing 3 inflammasome activation and pyroptosis in nonalcoholic steatohepatitis via the ROS/TXNIP axis. Front Pharmacol. 11, 185(2020).
- Wei, X., Wang, C., Hao, S., Song, H., Yang, L. The therapeutic effect of berberine in the treatment of nonalcoholic fatty liver disease: a meta-analysis. Evid Based Complement Alternat Med. 2016, 3593951(2016).
- Leng, J., et al. Amelioration of non-alcoholic steatohepatitis by Qushi Huayu decoction is associated with inhibition of the intestinal mitogen-activated protein kinase pathway. Phytomedicine. 66, 153135(2020).
- Feng, Q., et al. Qushi Huayu decoction inhibits hepatic lipid accumulation by activating AMP-activated protein kinase in vivo and in vitro. Evid Based Complement Alternat Med. 2013, 184358(2013).
- Sun, Q., et al. Qushi Huayu decoction attenuated hepatic lipid accumulation via JAK2/STAT3/CPT-1A-related fatty acid β-oxidation in mice with non-alcoholic steatohepatitis. Pharm Biol. 60, 2124-2133 (2022).
- Ni, Y., et al. Qushi Huayu decoction ameliorates non-alcoholic fatty liver disease in rats by modulating gut microbiota and serum lipids. Front Endocrinol (Lausanne). 14, 1272214(2023).
- Yang, W., et al. Approaches to establish Q-markers for the quality standards of traditional Chinese medicines. Acta Pharm Sin B. 7, 439-446 (2017).
- Xiong, H., Yu, L. X., Qu, H. Batch-to-batch quality consistency evaluation of botanical drug products using multivariate statistical analysis of the chromatographic fingerprint. AAPS PharmSciTech. 14, 802-810 (2013).
- Mousa, A. M., Mahmoud, M., AlShuraiaan, G. M. Resmetirom: the first disease-specific treatment for MASH. Int J Endocrinol. 2025, 6430023(2025).
- Dahiya, K., Palkar, M., Sharma, S. Unlocking the potential of THR-β agonist therapies: resmetirom's chemistry, biology, and patent insights. Naunyn Schmiedebergs Arch Pharmacol. 398, 9703-9720 (2025).
- Wang, R., et al. Dachaihu decoction inhibits hypernutrition-induced liver metastasis from colorectal cancer by maintaining the gut vascular barrier. Cancer Pathog Ther. 1, 98-110 (2023).
- Xu, S., et al. Da-Chai-Hu-Tang protects from acute intrahepatic cholestasis by inhibiting hepatic inflammation and bile accumulation via activation of PPARα. Front Pharmacol. 13, 847483(2022).
- Mou, Z., et al. The efficacy and safety of Dachaihu decoction in the treatment of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Front Med (Lausanne). 11, 1397900(2024).
- Chen, Y., et al. Polysaccharides from traditional Chinese medicines: extraction, purification, modification, and biological activity. Molecules. 21, 1705(2016).
- Ying, M., et al. Ganoderma atrum polysaccharide ameliorates intestinal mucosal dysfunction associated with autophagy in immunosuppressed mice. Food Chem Toxicol. 138, 111244(2020).
- Chen, X., et al. Research progress on the therapeutic effect of polysaccharides on non-alcoholic fatty liver disease through the regulation of the gut-liver axis. Int J Mol Sci. 23, 11710(2022).
- Bergheim, I., Moreno-Navarrete, J. M. The relevance of intestinal barrier dysfunction, antimicrobial proteins and bacterial endotoxin in metabolic dysfunction-associated steatotic liver disease. Eur J Clin Invest. 54, e14224(2024).
- Yu, M., et al. Multiple fingerprints and spectrum-effect relationship of polysaccharides from Saposhnikoviae Radix. Molecules. 27, 5278(2022).
- Swackhamer, C., Jang, S., Park, B. R., Hamaker, B. R., Jung, S. K. Structure-based standardization of prebiotic soluble dietary fibers based on monosaccharide composition, degree of polymerization, and linkage composition. Carbohydr Polym. 367, 123949(2025).
- Zhu, Y., et al. Monosaccharide composition and glycosidic linkages analysis by ultra high performance liquid chromatography-triple quadrupole tandem mass spectrometry-case study of plant polysaccharides. Int J Biol Macromol. 281, 136471(2024).
- Zhu, B., et al. Characterization and comparison of bioactive polysaccharides from Grifola frondosa by HPSEC-MALLS-RID and saccharide mapping based on HPAEC-PAD. Polymers. 15, 208(2022).
- Suvarna, R., Shetty, S., Pappachan, J. M. Efficacy and safety of resmetirom, a selective thyroid hormone receptor-β agonist, in the treatment of metabolic dysfunction-associated steatotic liver disease (MASLD): a systematic review and meta-analysis. Sci Rep. 14, 19790(2024).
- An, L., et al. The role of gut-derived lipopolysaccharides and the intestinal barrier in fatty liver diseases. J Gastrointest Surg. 26, 671-683 (2022).
- Lau, H. C., Zhang, X., Yu, J. Gut microbiome in metabolic dysfunction-associated steatotic liver disease and associated hepatocellular carcinoma. Nat Rev Gastroenterol Hepatol. 22, 619-638 (2025).
- Hoshiko, H., et al. An observational study to evaluate the association between intestinal permeability, leaky gut related markers, and metabolic health in healthy adults. Healthcare (Basel). 9, 1583(2021).
- Mohr, A. E., Crawford, M., Jasbi, P., Fessler, S., Sweazea, K. L. Lipopolysaccharide and the gut microbiota: considering structural variation. FEBS Lett. 596, 849-875 (2022).
- Caussy, C., et al. Serum bile acid patterns are associated with the presence of NAFLD in twins, and dose-dependent changes with increase in fibrosis stage in patients with biopsy-proven NAFLD. Aliment Pharmacol Ther. 49, 183-193 (2019).
- Pattni, S. S., Brydon, W. G., Dew, T., Walters, J. R. Fibroblast growth factor 19 and 7α-hydroxy-4-cholesten-3-one in the diagnosis of patients with possible bile acid diarrhea. Clin Transl Gastroenterol. 3, e18(2012).
- Walters, J. R., et al. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 41, 54-64 (2015).
- Schumacher, N., et al. Cell-autonomous hepatocyte-specific GP130 signaling is sufficient to trigger a robust innate immune response in mice. J Hepatol. 74, 407-418 (2021).
- Li, X., et al. Short-chain fatty acids in nonalcoholic fatty liver disease: new prospects for short-chain fatty acids as therapeutic targets. Heliyon. 10, e26991(2024).
- Scheffler, L., et al. Widely used commercial ELISA does not detect precursor of haptoglobin2, but recognizes properdin as a potential second member of the zonulin family. Front Endocrinol (Lausanne). 9, 22(2018).
- Tripathi, A., et al. Identification of human zonulin, a physiological modulator of tight junctions, as prehaptoglobin-2. Proc Natl Acad Sci U S A. 106, 16799-16804 (2009).
- Salter, S. J., et al. Reagent and laboratory contamination can critically impact sequence-based microbiome analyses. BMC Biol. 12, 87(2014).
- Stine, J. G., et al. Change in MRI-PDFF and histologic response in patients with nonalcoholic steatohepatitis: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 19, 2274-2283.e5 (2021).
- Tamaki, N., et al. Clinical utility of 30% relative decline in MRI-PDFF in predicting fibrosis regression in non-alcoholic fatty liver disease. Gut. 71, 983-990 (2022).
- Saarinen, K., et al. Enhanced liver fibrosis test predicts liver-related outcomes in the general population. JHEP Rep. 5, 100765(2023).
- Jung, J., et al. MRE combined with FIB-4 (MEFIB) index in detection of candidates for pharmacological treatment of NASH-related fibrosis. Gut. 70, 1946-1953 (2021).
- Dimairo, M., et al. The adaptive designs CONSORT extension (ACE) statement: a checklist with explanation and elaboration guideline for reporting randomised trials that use an adaptive design. BMJ. 369, m115(2020).