Dit protocol biedt een gestandaardiseerde methode voor het isoleren en verrijken van primaire myoblasten uit volwassen en neonatale muisskeletspieren via weefseldissociatie, sequentiële filtratie, preplating en gedefinieerde kweekcondities, waardoor de opbouw en het onderhoud van satellietcel-afgeleide myoblastkweken mogelijk is voor latere experimentele toepassingen.
Methodenartikel
Isolatie van skeletspiersatellietcellen voor in vitro myogenesestudies
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Regeneratie en groei van skeletspieren zijn afhankelijk van satellietcellen, de stamcellen van het spierweefsel. Momenteel dienen deze cellen als het in vitro model dat natuurlijke myogene processen het meest nauwkeurig weergeeft. Desalniettemin is de isolatie van satellietcellen technisch uitdagend, omdat ze slechts in kleine aantallen binnen skeletspieren voorkomen en de doorgaans heterogene aard van de geïsoleerde celpopulaties zijn. In deze studie beschrijven we een gestandaardiseerde methode om primaire myoblasten te isoleren en te verrijken uit skeletspieren van zowel volwassen als neonatale muizen. De procedure beschrijft spierdissectie, enzymatische dissociatie, sequentiële filtratie, preplating-stappen om niet-myogene cellen te beperken, en gedefinieerde kweekvoorwaarden voor het opzetten van satellietcel-afgeleide myoblastculturen. Het protocol biedt praktische richtlijnen over timing, hantering en cruciale stappen voor het opbouwen van een succesvolle cultuur. Primaire myoblasten die met dit protocol worden gegenereerd, kunnen worden gebruikt voor diverse downstream-toepassingen, waaronder studies naar myogenese, functionele analyse, genetische manipulatie, live-cell imaging of geneesmiddelentesten. De cellen fuseren betrouwbaar en rijpen, waardoor ze goed geschikt zijn voor het bestuderen van myoblastfusie, spierontwikkeling, regeneratieve mechanismen om de functie van skeletspieren te herstellen, evenals hun metabolisme.
Inleiding
Het vermogen van skeletspieren om te regenereren na elke aantasting van zijn integriteit is fundamenteel afhankelijk van een gespecialiseerde populatie myogene precursorcellen, bekend als satellietcellen (SC's), genoemd naar hun satellietpositie langs de myovezel. Ze bevinden zich onder de lamina van de spiervezel, verbonden aan de multinucleaire spiervezels 1,2,3. SC's worden gekenmerkt door de expressie van het gepaarde box-eiwit Pax7, dat geconserveerd is over meerdere soorten, waaronder mens, muis, aap en varken. Pax7, dat werd geïdentificeerd als de eerste detecteerbare marker voor SCs in zowel rustende als geactiveerde toestanden, is essentieel voor de ontwikkeling en het overleven van SCs4. Onder normale omstandigheden blijven SC's in een rusttoestand (G0-fase van de celcyclus), gekenmerkt door lage metabole activiteit en transcriptie-inactiviteit 5,6. Bij spierletsel of mechanische stress worden ze geactiveerd, hervatten de celcyclus, nemen het aantal toe en differentiëren zich om bij te dragen aan nieuwe myovezels of beschadigde te herstellen 7,8,9. Tijdens dit proces moet een subset SC's zelfvernieuwing ondergaan, waarbij ze terugkeren naar een rusttoestand (Pax7⁺) om de langetermijnintegriteit van de stamcelpool te behouden. Zelfvernieuwing vindt plaats door asymmetrische deling, waarbij de ene dochtercel stamachtige kenmerken behoudt terwijl de andere een toegewijde myogene voorloper wordt, of symmetrische deling, waarbij beide dochtercellen een stamachtige identiteit behouden of differentiëren, afhankelijk van de fysiologische en nichecontext 10,11,12.
SC's spelen een essentiële rol in spierregeneratie, waardoor ze een belangrijk aandachtspunt zijn in skeletspierbiologie, regeneratieve geneeskunde en onderzoek naar spierdystrofie. Begrijpen hoe deze cellen zich gedragen en functioneren werpt niet alleen licht op de fundamentele processen van spierherstel, maar effent ook de weg voor het ontwikkelen van therapieën om spierafbraak te behandelen en regeneratie te bevorderen.
Het isoleren van SC's uit spierweefsel is een cruciale stap in in vitro studies, waardoor onderzoek mogelijk is naar hun moleculaire kenmerken, proliferatiepotentieel, differentiatieroutes en reacties op diverse stimuli. Dit proces brengt echter verschillende technische uitdagingen met zich mee vanwege de complexe structuur van de spier, de relatief lage hoeveelheid satellietcellen vergeleken met andere celtypen, en de noodzaak om hun levensvatbaarheid en stamstatus tijdens isolatie te behouden.
Momenteel worden drie primaire technieken gebruikt voor de isolatie van SC's: de preplatingmethode, fluorescentie-geactiveerde celsortering (FACS) en magnetisch-geactiveerde celsortering (MACS). Elke methode biedt duidelijke voordelen en beperkingen op het gebied van zuiverheid, opbrengst, cellevensvatbaarheid en behoud van SC's.
De preplating-methode maakt gebruik van de differentiële adhesie-eigenschappen van spiercellen, waarbij SC's tot de minst hechtende behoren. Na enzymatische digestie van skeletspieren wordt de resulterende heterogene celsuspensie op kweekplaten geplaatst die doorgaans bedekt zijn met collageen type I. Na 1-24 uur (afhankelijk van het protocol) incubatie bij 37°C worden niet-hechtende cellen verzameld en overgebracht naar een matrigel-gecoate plaat voor verdere kweek 13,14,15,16. De resulterende populatie bestaat meestal uit zowel SC's als fibroblasten, evenals een klein aantal adipocyten en endotheelcellen17,18. Het herhalen van het preplatingproces elke 24-48 uur tot een week voor SC's geïsoleerd uit volwassen muizen en tot 2 weken voor pasgeborenen kan de zuiverheid van de celpopulatie verbeteren. Hoewel deze methode kosteneffectief en technisch eenvoudig is, is het arbeidsintensief en levert het vaak culturen met variabele samenstelling op. De preplatingmethode is geschikt voor laboratoria zonder FACS of MACS en biedt een eenvoudige manier om satellietcellen te verrijken terwijl levensvatbaarheid en stamachtige eigenschappen behouden blijven. Daarom wordt over het algemeen aanbevolen deze benadering te combineren met aanvullende zuiveringsmethoden om de algehele zuiverheid van de celpopulatie te verbeteren. In het huidige protocol hebben we de preplating-stap geoptimaliseerd door collageen-gecoate platen te gebruiken en de timing aan te passen afhankelijk van het model. Deze differentiële adhesie versnelt de verwijdering van fibroblasten, verkort de preplatingperiode, gebruikmaakt van groeifactoren en vermindert zowel de verwerkingstijd als de cellulaire stress tijdens isolatie.
FACS is een veelgebruikte methode om satellietcellen te isoleren op basis van de expressie van specifieke oppervlaktemarkers (α7-integrine, CD34, CD29, β1-integrine, CXCR4), wat een hoge zuiverheid en specificiteitvan 19,20 mogelijk maakt. Het is echter vaak uitdagend vanwege technische complexiteit, hoge kosten van antistoffen en de noodzaak van gespecialiseerde apparatuur. Bovendien kan de mechanische en biochemische stress tijdens het sorteren de levensvatbaarheid van de cel aantasten. De noodzaak om een single-cel suspensie te genereren kan leiden tot aanzienlijk celverlies, terwijl afhankelijkheid van specifieke fluorescerende markers kan leiden tot een onvolledige representatie van de heterogeniteit van satellietcellen. Daarnaast heeft enzymatische vertering, die wordt gebruikt om cellen te dissociëren, het potentieel om kritische oppervlakteantigenen af te breken, waardoor de nauwkeurige identificatie en isolatie wordt beïnvloed, en het kan ook de myoblastfunctieaantasten 21,22. FACS is geschikt voor het isoleren van zeer zuivere populaties binnen korte tijd, vooral wanneer precieze fenotypische resolutie vereist is. Deze methode is echter minder geschikt bij het intact houden, levensvatbare cellen is cruciaal vanwege de mechanische en biochemische spanningen tijdens sortering, of voor laboratoria zonder gespecialiseerde apparatuur.
MACS daarentegen is een techniek die wordt gebruikt om satellietcellen te isoleren door magnetische korrels die aan antilichamen zijn geconjugeerd te binden tegen specifieke oppervlaktemarkers van fibroblasten en algemene immuuncellen aan hun oppervlakken en deze vervolgens te scheiden van ongewenste celpopulaties met behulp van een magnetisch veld. De elusie van de negatieve selectie uit de stationaire fase is de populatie van de satellietcel van belang. MACS maakt efficiënte verrijking van satellietcellen mogelijk met relatief hoge zuiverheid en schaalbaarheid, terwijl minder gespecialiseerde apparatuur en technische expertise vereist zijn dan FACS. Bovendien behoudt het zachte magnetische scheidingsproces de celintegriteit, waardoor het geschikt is voor latere toepassingen zoals celkweek, genexpressie-analyse en transplantatiestudies. MACS wordt echter beperkt door een lagere zuiverheid wanneer meerdere markers nodig zijn, mogelijke niet-specifieke binding of overdracht van korrels, en een gebrek aan kwantitatieve gegevens over markerexpressie 23,24,25.
Ondanks de beschikbaarheid van protocollen voor isolatie van skeletspiercellen blijft het verkrijgen van reproduceerbare en compositiematig uniforme primaire culturen een uitdaging, vooral vanwege ontwikkelings- en weefselspecifieke variabiliteit. De isolatie van SC's van neonatale spieren is minder uitgebreid gekarakteriseerd dan die van volwassen spieren, met relatief minder gepubliceerde protocollen, waarvan vele verdere optimalisatie vereisen afhankelijk van technische omstandigheden en experimenteel doel 26,27,28. Aanpassing van parameters, waaronder enzymconcentratie, verteringsduur en kweekomstandigheden, is vaak nodig voor verschillende ontwikkelingsstadia – vooral bij neonaten – om maximale opbrengst, levensvatbaarheid en zuiverheid van geïsoleerde satellietcellen te bereiken. In dit artikel demonstreren we een geoptimaliseerd protocol voor de isolatie van satellietcellen uit skeletspieren van volwassen en neonatale muizen (postnatale dagen 6-14, P6-P14), waarbij preplating en MACS-sortering worden gecombineerd met aanpassingen aan preplating-timing en mediumsamenstelling. Dit protocol biedt een reproduceerbare celpopulatie over ontwikkelingsstadia heen, waarbij geïsoleerde cellen een hoge zuiverheid en levensvatbaarheid vertonen. Immunokleuring geeft aan dat het aandeel Pax7+-cellen doorgaans boven de 97% ligt. Bovendien vertonen deze myoblasten robuust differentiatiepotentieel, waardoor ze efficiënt multinucleaire myobuisen vormen bij vervanging van het groeimedium door differentiatiemedium. Gedifferentieerde myotubes kunnen worden waargenomen met fasecontrastmicroscopie of worden geverifieerd via immunokleuring voor myosine heavy chain (MHC), een marker die wijst op volwassen spiervezels.
Protocol
Volwassen mannelijke muizen (3 maanden oud) van het C57BL/6J × STOCK Tyrcch Bmp5se+/+ Myo6sv/J genotype, evenals zowel mannelijke als vrouwelijke pasgeboren muizen (postnatale dagen 6-14, P6-P14) van het C57BL/6J x flox/MK5/flox genotype, werden in deze studie gebruikt. Muizen werden gehouden en gefokt onder ziektevrije omstandigheden binnen de dierenfaciliteit van het Nencki Institute of Experimental Biology, PAS. Tijdens de experimenten kregen muizen een conventioneel knaagdierdieet. Dierenverzorging en euthanasie werden uitgevoerd in overeenstemming met de richtlijnen van de Europese Gemeenschapsraad die in Polen zijn aangenomen (wet van 15 januari 2015 betreffende het gebruik van dieren in onderzoek). Omdat alle studies weefsels van dieren gebruikten zonder lijden te veroorzaken, was goedkeuring van een ethische commissie niet verplicht. De procedures werden uitgevoerd onder toezicht en toestemming van de directeur van het Nencki Instituut voor Experimentele Biologie. De volgende interne goedkeuringen zijn verleend: 410P/2021/IBD en 487W/2022/IBD. Voor de experimenten werden de volgende achterpootspieren geanalyseerd bij volwassen dieren: gastrocnemius, soleus, extensor digitorum longus en tibialis anterior. Bij de pasgeborene werden de hele tricepsspieren van het achterbeen en voorbeen onderzocht.
Een schematisch overzicht van de procedure voor het isoleren en zuiveren van primaire myoblasten uit de achterpootspieren van muizen is weergegeven in Figuur 1.
Informatie over de reagentia en apparatuur die in deze studie zijn gebruikt, is te vinden in de Materiaalkundige Tafel.
1. Spierdissectie
- Euthanace de muis volgens de door de IACUC goedgekeurde richtlijnen die in de instelling zijn vastgesteld.
- Ontleed de achterpootspieren buiten de bioveiligheidskast. Besproei de achterpoten met 70% ethanol en plaats de muis in een rugliggende positie.
OPMERKING: Voor deze stap is geen steriele techniek vereist, behalve het gebruik van autoclaveerde dissectie-instrumenten en 70% ethanol voor oppervlaktedecontaminatie. - Spierverzameling
- Verwijder voorzichtig de huid van beide achterpoten met een autoclav-schaar om de onderliggende spieren bloot te leggen. Maak met steriele schaar en pincet een incisie in de dorsale huid en trek deze voorzichtig terug om de achterpootspieren volledig bloot te leggen. Verwijder zichtbaar vetweefsel en pezen om een schone voorbereiding te garanderen.
- Pel voorzichtig de fascia rond de buik van de spier af om een meer homogene isolatie en minder besmetting te garanderen. Blijf de weefsels isoleren en spieren verzamelen van één achterpoot. Onmiddellijk de spieren overbrengen naar een kweekplaat met 1x fosfaatgebufferde zoutoplossing met 1% penicilline en streptomycine (PBS + P/S). Herhaal de dissectie voor het tegenovergestelde achterbeen en plaats de spieren in een tweede kweekplaat met PBS + P/S.
OPMERKING: De optimale leeftijdscategorie voor pasgeboren muizen is postnatale dag 6 (P6) tot postnatale dag 14 (P14). Onder P6 is spierisolatie minder nauwkeurig en kan het leiden tot besmetting met omliggende weefsels, waardoor de kweekhomogeniteit afneemt. Vanaf P6 wordt de isolatie van spierbuiken – van oorsprong tot aanhechtingspezen – schoner en verbetert daarmee de algehele kwaliteit van de explants. Bij pasgeboren muizen kunnen spieren van meerdere dieren worden samengevoegd tot één plaat. Vanaf dat moment moeten alle procedures onder steriele omstandigheden worden uitgevoerd in een bioveiligheidskast om besmetting te voorkomen, en bij kamertemperatuur (RT) indien anders gespecificeerd.
- Spuit de buitenkant van de plaat met 70% ethanol voordat je het in een steriele bioveiligheidskast plaatst. Met een tweede paar geautoclaveerde pincet verplaats u de spieren van de kweekplaat naar de eerste put van een 6-put plaat met PBS + P/S, en voeg vervolgens 2-3 druppels betadine (100 mg/mL) toe om het weefsel te ontsmetten. Na zacht schudden van minder dan 10 seconden, verplaats je de spieren snel door de tweede en derde put met verse PBS + P/S om betadine grondig af te spoelen en eventueel achtergebleven haar, bindweefsel of ander vuil te verwijderen.
OPMERKING: Spieren mogen niet langdurig aan betadine worden blootgesteld, omdat het toxisch kan zijn voor cellen.
2. Spiervertering
- Met een tweede paar geautoclaveerde tangen wordt de gewassen spieren overgebracht naar twee 1,5 mL buizen (één buis per achterpootspiergroep). Fijnhakken het weefsel met een autoclaveerde schaar totdat de spier is gereduceerd tot kleine, uniforme fragmenten van ongeveer 1-2 mm groot, zodat gelijkmatige blootstelling tijdens de daaropvolgende enzymatische vertering wordt gegarandeerd.
- Collagenase-vertering
- De gehakte spieren worden overgebracht naar weefseldissociatiebuizen, die 0,2% collagenase bevatten in Dulbecco's Modified Eagle Medium (DMEM), gefilterd met een 0,2 μm poriefilter. Gebruik één dissociatiebuis voor elke achterpootspiergroep, waarbij een verhouding van 500 mg weefsel per 3 mL collagenase-oplossing wordt gehandhaafd.
OPMERKING: Collagenase is een proteolytisch enzym dat huid- en oogirritatie en ademhalingssensibilisatie kan veroorzaken als het wordt ingeademd. Behandel het poeder in een chemische dampkap en draag passende persoonlijke beschermingsmiddelen.
Grondig vermalen van het spierweefsel in deze fase is cruciaal voor een optimaal myoblast-resultaat. Als de totale weefselmassa echter meer dan 500 mg is, verhoog dan de hoeveelheid collagenase evenredig, omdat overtollig weefsel de enzymatische verteringsefficiëntie bij de hieronder beschreven enzymconcentratie kan aantasten. - Incubeer de monsters 30 minuten op 37 °C om enzymatische vertering te starten.
- De gehakte spieren worden overgebracht naar weefseldissociatiebuizen, die 0,2% collagenase bevatten in Dulbecco's Modified Eagle Medium (DMEM), gefilterd met een 0,2 μm poriefilter. Gebruik één dissociatiebuis voor elke achterpootspiergroep, waarbij een verhouding van 500 mg weefsel per 3 mL collagenase-oplossing wordt gehandhaafd.
- Voer weefseldissociatie uit met behulp van een mechanische weefseldissociator met het m_muscle_01-programma (verwijst naar een specifiek, vooraf gedefinieerd en geoptimaliseerd programma op de dissociator bestaande uit gecontroleerde mechanische agitatie) dat is ontworpen om enzymatische vertering te bevorderen en de levensvatbaarheid van de cel te behouden. Breng het programma twee keer toe om de mechanische verstoring van weefsel te verbeteren.
- Als er geen weefseldissociator beschikbaar is, haal de gehakte spieren meerdere keren door een 20 G spuitnaald totdat er een homogene suspensie zonder grote weefselfragmenten is verkregen.
Alternatief kun je de gehakte spier overbrengen naar een 15 mL conische buis met 0,2% collagenase.
- Als er geen weefseldissociator beschikbaar is, haal de gehakte spieren meerdere keren door een 20 G spuitnaald totdat er een homogene suspensie zonder grote weefselfragmenten is verkregen.
- Incubeer de monsters opnieuw nog eens 30 minuten bij 37 °C om het verteringsproces te voltooien.
- Herhaal stap 2.3 nogmaals om een grondige mechanische dissociatie van het resterende weefsel te waarborgen.
OPMERKING: Observeer de spiervertering in deze fase zorgvuldig. Het weefsel moet bijna volledig gedissocieerd zijn, met minimale zichtbare fragmenten die overblijven, en het verteringsmedium moet troebel lijken. Overmatige incubatie beschadigt de cellen.
3. Celfiltratie
- Plaats een 100 μm celfilter bovenop een 50 mL conische buis. Maak de zeef vooraf nat met 1 mL voorverwarmd (tot 37 °C) neutraliserend medium (NM) met een hoge glucose-DMEM, met 10% foetaal rundserum (FBS) en 1% P/S.
- Giet de verteerde spiersuspensie over de voorbevochtigde 100 μm zef. Spoel de zeef af met nog eens 1 ml NM om restweefselresten te verwijderen.
- In een nieuwe 50 mL conische buis plaats je een 70 μm celzeef en maak je deze vooraf nat met 1 mL NM-medium. Laat het filtraat van de 100 μm zeef door een voorbevochtigde 70 μm zeef lopen om grotere infiltrerende cellen, waaronder macrofagen, verder te verwijderen. Spoel de 70 μm zeef af met 1 mL NM om eventuele resterende cellen terug te krijgen.
- In een nieuwe 50 mL conische buis plaats je een 40 μm celzeef en laat je het celmengsel door de vooraf bevochtigde 40 μm zeef gaan. Spoel de 40 μm zeef af met 1 mL NM om eventuele resterende cellen terug te krijgen.
- Bereid een 30 μm celfilter voor op een 15 mL conische buis en maak deze vooraf nat met 1 mL NM. Laat het filtraat van de 40 μm zeef door de vooraf bevochtigde 30 μm zeef lopen om de celsuspensie verder te verfijnen. Was de 30 μm zeef met 1 mL NM om het celherstel te maximaliseren.
- Centrifugeer de verzamelde celsuspensie op 300 × g gedurende 15 minuten bij RT. Controleer of er een witte celpellet zichtbaar is onderin de buis. Werk onder een steriele bioveiligheidskast, verwijder en verwijder voorzichtig het supernatant (digestiemedium).
OPMERKING: Na centrifugatie kan de celpellet worden geresuspendeerd in myoblastproliferatiemedium (MPM) en direct naar sectie 5 voor myoblastverrijking worden gebracht, of, optioneel, worden onderworpen aan magnetisch-geactiveerde celsortering (MACS, hieronder beschreven) om de zuiverheid van de myoblastpopulatie verder te verhogen.
4. (Optioneel) Magnetisch geactiveerde celsortering
- Sussief de celpellet die in stap 3.6 is verkregen in een vers voorbereide MACS-sorteerbuffer, bestaande uit 1x PBS (pH 7,2), 0,5% FBS en 2 mM EDTA. Gebruik 80 μL buffer per gram oorspronkelijk weefsel.
OPMERKING: Houd de MACS-sorteerbuffer gedurende de hele procedure op 2-8 °C. - Voeg 20 μL magnetisch labelingreagens toe voor satellietcelisolatie per maximaal 1 g weefsel.
OPMERKING: Voor monsters kleiner dan 1 g gebruik je dezelfde reagensvolumes als aangegeven voor 1 g. Voor monsters groter dan 1 g schaal je alle reagensvolumes proportioneel (bijvoorbeeld, voor 2 g weefsel gebruik je 2x het reagensvolume). - Meng het monster voorzichtig om een homogene etikettering te garanderen en breng het 15 minuten uit op 2-8 °C op ijs.
- Na incubatie wordt het totale volume aangepast naar 500 μL met een MACS-sorteerbuffer voor monsters afkomstig van maximaal 5 g weefsel. Voor grotere hoeveelheden weefsel verdeel je de suspensie gelijkmatig in meerdere buizen om optimale scheidingsefficiëntie te behouden.
- Magnetische scheiding en verzameling van satellietcellen
OPMERKING: Voer magnetische scheiding uit met een magnetisch celseparatiesysteem volgens de instructies van de fabrikant.- Plaats een scheidingskolom in het magnetisch veld van de magnetische scheider. Was de scheidingskolom met 3 ml sorteerbuffer om deze in evenwicht te brengen voordat je het monster aanbrengt.
- Breng de gelabelde celsuspensatie aan op de kolom en verzamel de eluentfractie, die de satellietcelverrijkte populatie bevat.
- Was de kolom met twee opeenvolgende 1 mL delen van de sorteerbuffer. Voeg elke aliquot pas toe nadat het kolomreservoir is leeg. Verzamel de cellen die erdoorheen gaan en combineer ze met het eluent uit stap 4.5.3.
- Centrifugeer de gecombineerde celsuspensie op 300 × g bij RT gedurende 10 minuten om de geïsoleerde satellietcellen in MPM te pelleten.
5. Myoblastzuivering (preplating-stap)
- Bereid platen met collageen voor.
- Verdun type I rattencollageen in 20 mM azijnzuur (opgelost in steriel gedestilleerd water) tot een werkconcentratie van 50 μg/mL en voeg het toe aan het kweekvat. Incubeer 1 uur bij RT.
OPMERKING: Ongeveer 5 mL 50 μg/mL collageen is nodig om een 100 mm plaat met een oppervlakte van ≈80 cm² te coaten. - Aspireer voorzichtig de oplossing van de platen.
- Spoel de platen 3x grondig af met steriele 1x PBS in gelijke hoeveelheden om eventueel resterende zuur te verwijderen.
OPMERKING: Borden zijn geschikt voor direct gebruik of kunnen aan de lucht worden gedroogd en bewaard worden op 2-8 °C totdat ze nodig zijn.
- Verdun type I rattencollageen in 20 mM azijnzuur (opgelost in steriel gedestilleerd water) tot een werkconcentratie van 50 μg/mL en voeg het toe aan het kweekvat. Incubeer 1 uur bij RT.
- Resuspendeercelpellet verkregen in stap 3.6 of stap 4.5.4 in 10 mL myoblastproliferatormedium (MPM) voorverwarmd tot 37 °C.
- Bereid MPM voor volwassen muismyoblasten met een hoog glucosegehalte DMEM, 20% FBS, 10% paardenserum (HS), 0,5% kipembryo-extract (CEE), 20 ng/mL basische fibroblastgroeifactor (bFGF) opgelost in steriel gedistilleerd H2O, en 1% P/S of MPM voor neonatale muismyoblasten met F10-medium (ondersteunt meer gecontroleerde en selectieve groei voor neonatale kweek), dat een hoger aandeel fibroblasten bevat), 20% FBS, 10% HS, 0,5% CEE, 20 ng/mL bFGF en 1% P/S.
OPMERKING: Voeg bFGF direct toe aan het kweekmedium tot een uiteindelijke concentratie van 20 ng/mL. bFGF is essentieel voor het behouden van de ongedifferentieerde toestand van myoblasten en het bevorderen van hun proliferatie29.
CEE bevordert ook myoblast-uitgroei en proliferatie, en speelt een belangrijke rol bij het behouden van gezonde myoblastculturen door spontane myoblastfusie te voorkomen. - Zodra de kweek een grotere myogene zuiverheid bereikt (meestal na drie passages), kan het medium in neonatale myoblasten worden overgezet naar MPM, bestaande uit een 1:1 mengsel van high-glucose DMEM en F10, en vervolgens naar de standaard MPM-formulering die wordt gebruikt voor volwassen muismyoblasten.
OPMERKING: Het is belangrijk om de initiële zuiverheid vooraf te verifiëren, omdat veranderingen in medium het selectieve groeivoordeel van myoblasten ten opzichte van fibroblasten elimineren. - Preplate-cellen.
- Eerste voorplatering
- Volwassen myoblasten: Zaadcellen op met collageen gecoate platen. Bewaar de plaat 24 uur in een 37 °CCO-2 broedmachine.
- Neonatale myoblasten: Plat de cellen op met collageen bedekte schalen en incubeer gedurende 24 uur. Houd kweek in MPM aangevuld met F10-medium (zie sectie 5.4), tenzij anders vermeld.
OPMERKING: In dit stadium onthult microscopisch onderzoek een heterogeen mengsel van spierfragmenten en cellen (Figuur 2A).
Neonatale fibroblasten vertonen een hoge proliferatieve capaciteit, verhoogde cytoskeletflexibiliteit (gekenmerkt door een minder rigide actine-myosine netwerk en een dynamischere focale adhesieomzet), en vertonen onderscheidende integrine-expressieprofielen, vergeleken met volwassen fibroblasten32,33. Deze eigenschappen maken efficiënte hechting aan kweekoppervlakken mogelijk, zelfs zonder exogene extracellulaire matrixcoatings, zoals collageen. Daarom kunnen voor neonatale myoblasten collageengecoate platen worden vervangen door standaard ongecoate weefselkweekplastic, hoewel dit het aantal vereiste pre-platen kan verhogen.
- Tweede preplating
- Volwassen myoblasten: Met een 10 mL serologische pipet, breng je de cellen die nog in MPM hangen voorzichtig over op een met collageen gecoate plaat die voorverwarmd is tot 37 °C. Spoel de originele plaat af met 1-2 ml warme MPM om eventuele resterende los cellen terug te halen. Bewaar de plaat 6-8 uur in een 37 °C, CO2 broedmachine.
OPMERKING: Het proces moet zorgvuldig worden gemonitord met fasecontrastmicroscopie om ervoor te zorgen dat alle niet-hechtende cellen, die het volledige spectrum van myogene cellen vertegenwoordigen, worden verzameld en overgebracht naar nieuwe kweekplaten. - Neonatale myoblasten: Herhaal een tweede preplating op collageengecoate platen nog eens 16 uur, waarbij de oorspronkelijke plaat wordt afgespoeld met 1-2 mL warme MPM F10 om eventuele resterende losstaande cellen terug te winnen.
OPMERKING: Grote cellen, voornamelijk fibroblasten, blijven aan de onderkant van de met collageen bedekte plaat gehecht (Figuur 2B en Figuur 3).
- Volwassen myoblasten: Met een 10 mL serologische pipet, breng je de cellen die nog in MPM hangen voorzichtig over op een met collageen gecoate plaat die voorverwarmd is tot 37 °C. Spoel de originele plaat af met 1-2 ml warme MPM om eventuele resterende los cellen terug te halen. Bewaar de plaat 6-8 uur in een 37 °C, CO2 broedmachine.
- Eerste voorplatering
- Platingcellen op matrigel-gecoate platen
- Maak een matrigeloplossing van 10% door Matrigel te verdunnen met koude DMEM. Gebruik een dispensertip om het oppervlak van de plaat gelijkmatig te bedekken totdat deze volledig bedekt is. Laat Matrigel 15 minuten polymeriseren bij 37 °C.
OPMERKING: Matrigelcoating moet op ijs worden uitgevoerd, omdat het snel polymeriseert bij RT. - Niet-hechtende cellen van een collageengecoate plaat naar een matrigel-gecoate plaat. Spoel de met collageen gecoate plaat af met 1-2 ml warme MPM om eventuele resterende cellen terug te krijgen. Houd de plaat in de CO 2-broedmachine op 37 °C gedurende 72 uur.
- Voor volwassen myoblasten wordt bevestigd dat de kweek na 72 uur voornamelijk hechtende, kleine, afgeronde myoblasten bevat (Figuur 2C). Enkele grote, driehoekige fibroblasten kunnen ook aanwezig zijn, maar in zeer lage hoeveelheden. Als er na het zaaien op Matrigel nog veel fibroblasten aanwezig zijn, herhaal dan de preplating-stappen van 2-6 uur, afhankelijk van de hoeveelheid fibroblasten.
- Voor neonatale myoblasten worden extra passages uitgevoerd in combinatie met een preplatingstap om fibroblasten te verwijderen en de myoblastpopulatie geleidelijk te verrijken vanuit de initiële heterogene kweek.
- Maak een matrigeloplossing van 10% door Matrigel te verdunnen met koude DMEM. Gebruik een dispensertip om het oppervlak van de plaat gelijkmatig te bedekken totdat deze volledig bedekt is. Laat Matrigel 15 minuten polymeriseren bij 37 °C.
6. Onderhoud en uitbreiding van myoblasten
- Houd gezuiverde myoblasten in cultuur door ze in MPM te incuberen, waarbij het medium om de dag wordt vervangen.
OPMERKING: Vermijd het toestaan van cellen die 60-70% confluentie overschrijden, omdat een hogere dichtheid spontane myoblastfusie kan veroorzaken en differentiatie kan initiëren. - Indien nodig breid je de kweek uit door cellen op meerdere platen te splitsen die met 10% matrigel zijn bedekt.
OPMERKING: Volwassen myoblasten: 2-3 passages worden doorgaans aanbevolen, omdat extra passages de celverlenging en spontane fusie vergroten. Neonatale myoblasten kunnen doorgaans 5-6 passages ondergaan zonder significante spontane fusie.- Om de myoblastpopulatie uit te breiden, gebruik je een 1:1 mengsel van high-glucose DMEM en F10 in MPM vanaf passage 3, zodra de fibroblastbesmetting aanzienlijk is afgenomen. Bij passage 4 bestaat de cultuur doorgaans uit een bijna volledig myoblastpopulatie; Schakel over op MPM voor neonatale muismyoblasten.
7. Myoblastdifferentiatie
- Visualiseer de cellen onder een microscoop. Bevestig dat cellen relatief uniform, klein en rond of spilvormig zijn, actief vermenigvuldigen en niet overbevolkt. Dit zorgt ervoor dat de cultuur klaar is voor differentiatie.
- Bedek het weefselkweekoppervlak dat geschikt is voor het experimentele ontwerp met 10% matrigel, zoals beschreven in sectie 5.6.1.
OPMERKING: Hoewel de beeldkwaliteit superieur is op glazen oppervlakken, vertoonden myogene cellen een verminderde hechting en levensvatbaarheid in glazen kamers, waarschijnlijk door een lagere matrigel-eiwitadhesie vergeleken met weefselcultuurplastic34. - Koppel de cellen door 2 mL 0,25% trypsine-EDTA toe te voegen en incubeer bij 37 °C in een CO₂-incubator gedurende 2-5 minuten.
- Onderzoek de kweek onder een microscoop om te bevestigen dat alle cellen zijn losgelaten. Zodra de loskoppeling voltooid is, voeg je 2 mL neutraliserend medium toe (zie sectie 3.1).
- Centrifugeer de celsuspensie op 300 × g bij RT gedurende 10 minuten om de cellen te pelleteren.
- Suspendeer en zaai primaire myoblasten opnieuw op matrigel-gecoate kweekplaten en incubeer bij 37 °C in een CO₂-incubator gedurende 24 uur.
- De volgende dag vervang je MPM door myoblastdifferentiatiemedium (MDM) met een hoog glucosegehalte DMEM, 5% HS en 1% P/S.
OPMERKING: Om hoogwaardige myobuisvorming te bereiken, moet je ervoor zorgen dat myoblasten 80-90% confluentie bereiken voordat je overstapt op differentiatiemedium. Als de gewenste samenvloeiing de volgende dag niet wordt bereikt, blijf dan incuberen totdat de optimale dichtheid is bereikt.
8. Immunokleuring van myoblasten en myotubes
- Was de cellen 2x met 1x PBS om het resterende medium te verwijderen.
- Fixeer de cellen in 4% paraformaldehyde (PFA) in 1x PBS gedurende 15 minuten bij RT. Verdere stappen zullen bij RT worden uitgevoerd indien anders niet gespecificeerd.
OPMERKING: PFA is giftig. Hanteer PFA-oplossingen altijd in een chemische dampkap terwijl je handschoenen, laboratoriumjas en oogbescherming draagt. Vermijd direct contact met huid of ogen. Voer PFA-bevattend afval af volgens institutionele chemische en biohazard-regelgeving. - Incubeer de vaste cellen met 50 mM ammoniumchloride (NH₄Cl) gedurende 30 minuten bij RT (bij voorkeur op een shaker, 50-100 rpm) om vrije aldehydegroepen te quengen en de niet-specifieke binding tijdens latere kleuringsstappen te verminderen.
- Was de cellen 3 x 5 minuten bij RT met 1x PBS (op een shaker, 50-100 rpm).
- Voer permeabilisatie van de cellen uit met 0,2% Triton X-100 in 1x PBS gedurende 10 minuten (op een shaker).
- Was de cellen 2-3 x 5 minuten met 1x PBS (op een shaker).
- Blokkeer de binding van niet-specifieke antistoffen door de cellen te incuberen in blokkerende oplossing (2% paardenserum in 1x PBS met 0,02% Triton X-100) gedurende 1,5 uur bij RT (op een shaker, 50-100 rpm).
- Incubeer de cellen een nacht op 4 °C met verdunde primaire antilichamen (Pax7 - 1:100; MHC - 1:50) in blokkeringsoplossing (op een shaker, 50-100 toeren).
- Was de cellen 3 x 10-15 minuten met 1x PBS met 0,02% Triton X-100 (op een shaker, 50-100 rpm).
- Incubeer de cellen met geschikte secundaire antilichamen verdund 1:250 in blokkerende oplossing gedurende 1-1,5 uur bij RT (op een shaker en beschermd tegen licht).
- Was de cellen 3 x 10-15 minuten met 1x PBS met 0,02% Triton X-100 (op een shaker, 50-100 rpm).
- Bevestig de monsters met een geschikt montagemedium en een dekmantel, zoals gespecificeerd in het experimentele ontwerp.
- Voor langdurige opslag bewaar je de gemonteerde monsters op 4 °C, beschermd tegen licht.
Resultaten
Succesvolle uitvoering van dit protocol levert zeer levensvatbare, morfologisch onderscheidende primaire myoblastculturen op die afkomstig zijn van de achterpootspieren van zowel volwassen als neonatale muizen. Door sequentiële filtratie via celstrainers met afnemende poriën te combineren met optionele magnetisch-geactiveerde celsortering (MACS), maakt dit protocol de isolatie van een sterk gezuiverde myoblastpopulatie mogelijk. Om de zuiverheid van de geïsoleerde Pax7+-cellen verder te verbeteren, werd een geoptimaliseerde preplatingstap geïntegreerd. Na deze stap (protocolsectie 5) blijven de meeste fibroblasten en andere niet-myogene cellen hechten (Figuur 3) aan het aanvankelijk met collageen bedekte oppervlak, terwijl myoblasten in suspensie blijven en zich vervolgens hechten aan de matrigel-gecoate platen (Figuur 2B). Voortbouwend op de eerder aangetoonde effectiviteit van specifieke componenten van het myoblastproliferatiemedium (MPM), waaronder hoge serumconcentratie, suppletie met bFGF en kippenembryo-extract (CEE), en het gebruik van matrigelcoating, biedt deze formulering, door ons geoptimaliseerd, een duidelijk proliferatief voordeel voor myoblasten ten opzichte van niet-myogene cellen 14,30,31,35. Binnen 72 uur kweek in MPM zouden dus kleine, ronde tot spoelvormige myoblasten met een hoge nucleair-cytoplasmatische verhouding moeten domineren (Figuur 2C). Een kleine populatie van grote, afgeplatte fibroblastachtige cellen kan overblijven, meestal minder dan 3% van de kweek.
De celopbrengst na 72 uur na isolatie met dit protocol hangt af van de leeftijd van de donordieren. Voor myoblasten die zijn geïsoleerd uit één volwassen muis met vier achterpootspieren (gastrocnemius, soleus, tibialis anterior en extensor digitorum longus) van beide poten, is de typische opbrengst ongeveer 2-4 × 10⁶ cellen per dier. Meer dan 97% van de cellen die werden geïsoleerd van volwassen (**p < 0,01) en neonatale muizen (***p < 0,0001) waren myogene voorlopers, zoals aangegeven door Pax7+- expressie (Figuur 4A,B), wat de hoge verrijking van myogene voorlopers bevestigt. Deze op Pax7 gebaseerde zuiverheidsbeoordeling werd uitgevoerd na voltooiing van de volledige verrijkingsworkflow, inclusief voorplatering gevolgd door MACS en/of expansie, en niet op de vroege adherente preplate-fracties.
Neonatale myoblasten bereikten een hoge zuiverheid met of zonder MACS (Figuur 4A, B), waardoor dit protocol geschikt is voor laboratoria met verschillende niveaus van technische ondersteuning. Wanneer MACS echter wordt weggelaten, zijn extra voorverplateringsstappen nodig om een vergelijkbare zuiverheid te bereiken.
Voor volwassen myoblasten werd geen directe statistische vergelijking uitgevoerd van MACS-gesorteerde versus ongesorteerde populaties. Echter, gezien een lagere proliferatiecapaciteit en een grotere toewijding aan differentiatie, wordt verwacht dat MACS de verrijking zal verbeteren ten opzichte van alleen preplating.
Bij overgang naar differentiatiemedium (MDM) na het bereiken van 80-90% confluentie, fuseren myoblasten efficiënt tot verlengde, multinucleaire myotubes binnen 48-72 uur. Deze myotubes zijn gemakkelijk zichtbaar met fasecontrastmicroscopie (Figuur 2D) en kunnen verder worden bevestigd door immunokleuring voor myosine heavy chain (MHC) (Figuur 5A,B). De aanwezigheid van georganiseerde sarcomerische structuren in gedifferentieerde myotubes (Figuur 5B) duidt op structurele rijping die consistent is met myogene differentiatie onder deze kweekomstandigheden.
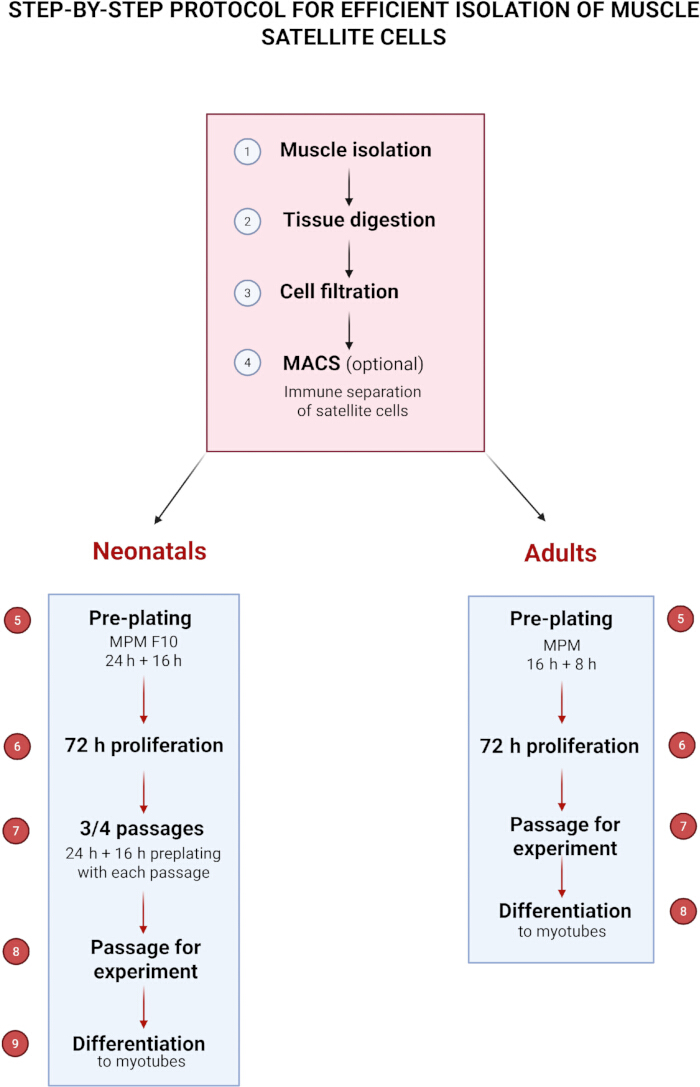
Figuur 1: Stapsgewijze protocol voor de efficiënte isolatie van spiersatellietcellen. Klik hier om een grotere versie van deze figuur te bekijken.
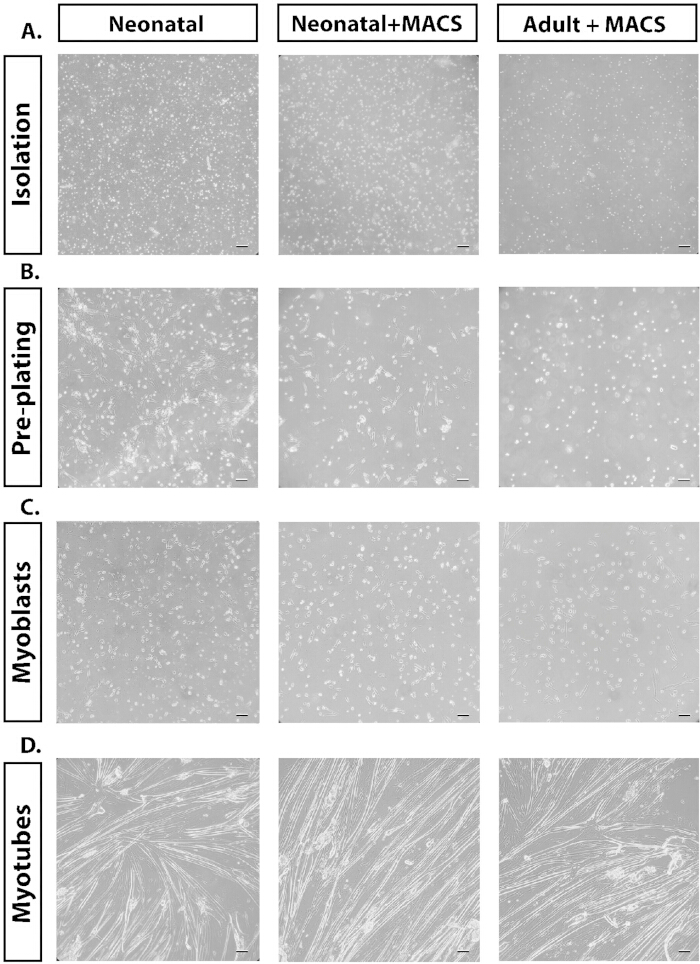
Figuur 2: Representatieve fasecontrastmicroscopiebeelden van de verschillende methodologieën die in de tekst worden besproken. (A) Fasecontrastbeelden (20x) van de isolatie van de cellen na de vertering. (B) Fasecontrast (20x) van de preplating van de culturen met gehechte fibroblasten, samen met niet-gehechte myoblasten. (C) Fasecontrast (20x) van prolifererende myoblasten zodra ze zijn gehecht. (D) Fase-contrast (20x) van gedifferentieerde myotubes. Schaalbalk = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
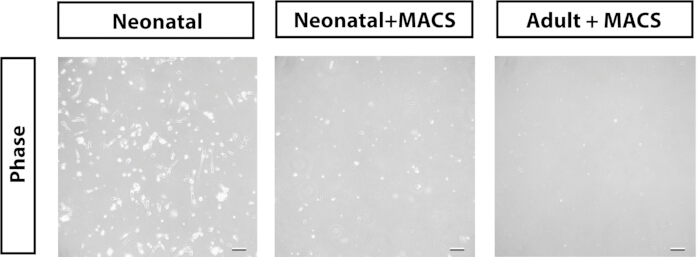
Figuur 3: Vertegenwoordigende fasecontrastmicroscopiebeelden (20×) van cellen die nog vastzitten na de eerste preplatingstap. Schaalbalk = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
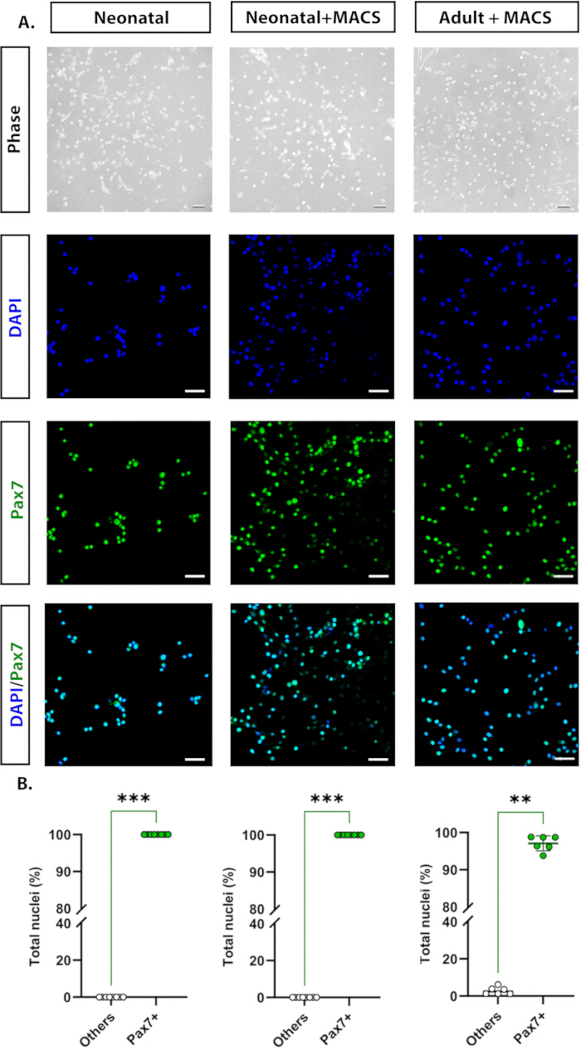
Figuur 4: Representatieve beelden genomen onder fasecontrastmicroscoop (20x) en immunocytochemie (40x). (A) Pax7+ (groen) en kernen gekleurd met DAPI (lichtblauw), en hun colokalisatie in de samengevoegde kanalen. (B) Analyse van de zuiverheid van myoblastcultuur, waarbij het percentage Pax7+- cellen genormaliseerd tot kernen per verworven veld wordt gekwantificeerd (één veld per put, in ten minste zes putten). Immunokleuring werd minstens drie keer herhaald, met twee tot drie technische replica's per experiment. **p < 0,01, ***p < 0,0001 (Statistische significantie werd geanalyseerd met behulp van de Mann Whitney U-test ). Schaalbalk = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
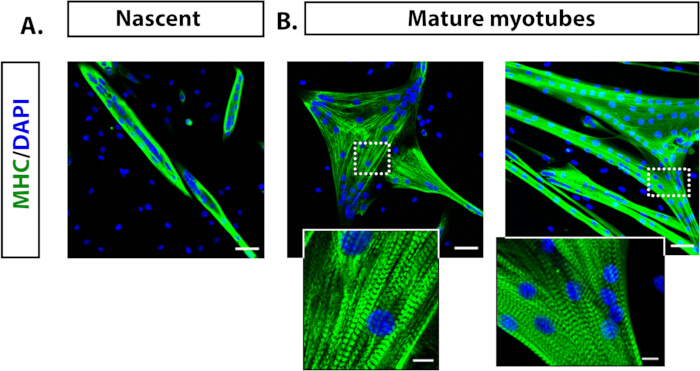
Figuur 5: Representatieve immunofluorescentiebeelden die myotubes tonen die onderscheiden zijn van volwassen muismyoblasten. (A) Ontluikende myotubes (3 dagen in kweek) afgebeeld met 20x MHC (groen) en kernen gekleurd met DAPI (lichtblauw). (B) Volwassen myotubes (6 dagen in kweek) afgebeeld bij 20x en details van de structuur van het sarcomerische patroon gedefinieerd door de myosinekleuring. Immunokleuring werd minstens drie keer herhaald, met twee tot drie technische replica's per experiment. Schaalbalk = 50 μm; Inzoombalk op schaal = 10 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Satellietcellen (SC's) vormen de belangrijkste myogene stam- en voorloperpopulatie die verantwoordelijk is voor skeletspiergroei, herstel en regeneratie 36,37. Hun vermogen om opnieuw in de celcyclus te komen en te differentiëren tot volwassen myovezels maakt hen onmisbaar voor het bestuderen van skeletspierbiologie. Wanneer geïsoleerd en gekweekt onder gedefinieerde in vitro omstandigheden, vermenigvuldigen SC's zich als myoblasten die kunnen worden geïnduceerd om te differentiëren en te fuseren tot multinucleaire myotubes, waarmee belangrijke aspecten van myogenese die in vivo zijn waargenomen, worden herhaald.
Onze methode maakt het mogelijk om zeer levensvatbare, homogene celpopulaties te herstellen door belangrijke parameters zorgvuldig aan te passen, waaronder enzymconcentratie, verteringsduur en kweekcondities, speciaal afgestemd op neonatale weefsels. De combinatie van enzymatische en mechanische dissociatie, gevolgd door meerstapsfiltratie en optionele magnetisch-geactiveerde celsortering (MACS) samen met preplating, zorgt voor een hoge celopbrengst en zuiverheid. Belangrijk is dat dit protocol het mogelijk maakt om culturen te genereren die doorgaans 97% van de Pax7+ myogene voorlopers exederen, waardoor ze geschikt zijn voor downstream differentiatie-assays en moleculaire studies.
De preplatingtechniek is gebaseerd op de verschillende adhesie-eigenschappen van fibroblasten en SCs 16,38,39. Deze stap is bijzonder cruciaal voor het bepalen van kweekzuiverheid, en kleine afwijkingen in timing of wassen kunnen leiden tot fibroblastbesmetting of verminderde myoblastherstel. De opname van een nauwkeurig getimede preplatingstap is bijzonder voordelig, omdat deze myogene cellen efficiënt scheidt van fibroblasten en andere niet-myogene populaties. Deze benadering kan worden toegepast bij afwezigheid van magnetische scheidingsapparatuur of als extra maatregel om de zuiverheid van myoblastculturen verder te verhogen. In ons protocol hebben we deze stap geoptimaliseerd door collageengecoate platen en een nauwkeurig getimede preplatingperiode te gebruiken, die myogene cellen efficiënt scheidt van fibroblasten en andere niet-myogene populaties.
Een andere methodologische vooruitgang van het huidige protocol is het gebruik van een gedefinieerd myoblastproliferatiemedium (MPM) dat geoptimaliseerd is voor zowel volwassen als neonatale cellen. De combinatie van hoge serumconcentratie, kipembryo-extract (CEE) en basische fibroblastgroeifactor (bFGF) ondersteunt een aanhoudende proliferatie en het behoud van een ongedifferentieerd fenotype. CEE draagt in het bijzonder groeibevorderende factoren bij die de levensvatbaarheid van myoblast verbeteren en spontane fusie vertragen, terwijl bFGF de identiteit van SC behoudt door activatie van canonieke signaalroutes29,31. Het gebruik van matrigel-gecoate oppervlakken verbetert verder de celadhesie en proliferatie-efficiëntie, wat bijdraagt aan de hoge levensvatbaarheid en morfologische homogeniteit die binnen 72 uur na isolatie wordt waargenomen.
Bij de overgang naar differentiatiemedium fuseren de gezuiverde myoblasten gemakkelijk tot meerkernige, contractiele myotubes die myosine heavy chain (MHC) tot expressie brengen, wat een behouden myogene potentiaal en structurele rijping aantoont. De resulterende culturen zijn zeer geschikt voor studies naar skeletspierregeneratie, celsignalering, transcriptieregulatie en ziektemodellering. Confluentie is een cruciale factor, omdat culturen met zeer lage confluentie niet zullen voortschrijden, terwijl een te hoge confluentie myoblastfusie en differentiatie zal induceren. Myoblasten mogen niet langer dan 5 dagen in dezelfde kweekschaal worden gehouden, ongeacht de samenvloeiing, omdat langdurige incubatie ook differentiatie kan bevorderen.
Ondanks deze voordelen blijven bepaalde stappen gevoelig voor mislukkingen. Enzymatische vertering moet zorgvuldig worden gekalibreerd om weefseldissociatie in balans te brengen met cellevensvatbaarheid. Preplating-timing, celdichtheid vóór differentiatie en voorzichtige behandeling tijdens dissociatie hebben allemaal een grote invloed op opbrengst, zuiverheid en fusiepotentieel. Veelvoorkomende problemen zoals aanhoudende fibroblastbesmetting, lage opbrengst, voortijdige differentiatie, slechte hechting of zwakke myobuisvorming kunnen vaak worden aangepakt door kleine aanpassingen in preplating, mediumsupplementatie of platingtechniek.
Probleemoplossing en praktische overwegingen:
Isolatiezuiverheid en enzymatische vertering vereisen zorgvuldige aandacht, omdat variaties in enzymtype, concentratie, incubatietijd of weefselversnippering zowel de celopbrengst als de kweekzuiverheid sterk kunnen beïnvloeden. Ondervertering kan weefsel gedeeltelijk intact laten, waardoor de afgifte van SC's wordt verminderd en de zeef in de volgende stap verstopt raakt, terwijl oververtering visueel kan lijken op een biofilm en de levensvatbaarheid van cellen kan aantasten. Zorgvuldige optimalisatie is daarom essentieel voor reproduceerbare resultaten.
Filtratie en het gebruik van zeven zijn ook cruciaal, omdat onvolledige of inefficiënte filtratie weefselresten of aggregaten in de celsuspensie kan achterlaten, wat de celhechting kan verstoren en de cultuurzuiverheid kan verminderen. Het gebruik van zeven van de juiste grootte, het voorzichtig doorvoeren van de suspensie en het voorbevochtigen van de filters kan het verwijderen van vuil verbeteren en de mechanische belasting op de cellen minimaliseren. Als grotere weefselfragmenten het filter verstoppen, moet het worden vervangen door een nieuwe zeef in plaats van de suspensie erdoor te duwen, omdat cellen op het filteroppervlak kunnen blijven hangen en de opbrengst afneemt. Het herhaald filteren met een nieuw filter wanneer nodig kan het herstel van levensvatbare myoblasten verder verbeteren.
Voortijdige of mislukte differentiatie kan optreden wanneer culturen te dicht worden, omdat dit spontane differentiatie of voortijdige fusie kan veroorzaken, waardoor de experimentele timing in gevaar komt. Het monitoren van celdichtheid en het aanpassen van zaaidichtheid of middelvolume vóór differentiatie is daarom cruciaal. Bij overmatige samenvloeiing kan gedeeltelijk splitsen of zacht opnieuw zaaien helpen de proliferatie te behouden zonder onbedoelde myotubevorming te veroorzaken. Omgekeerd, als de gewenste confluentie niet wordt bereikt vóór het begin van de differentiatie, moet de incubatie worden voortgezet totdat de optimale dichtheid is bereikt om effectieve differentiatie te waarborgen. Het behouden van myoblasten na de aanbevolen periode (>5 dagen) verhoogt het risico op spontane differentiatie en vermindert de proliferatieve capaciteit, ongeacht de initiële confluentie. Regelmatige beoordeling van celmorfologie, naleving van kweektijdlijnen en tijdige mediumwisselingen zijn essentieel om zowel levensvatbaarheid als differentiatiepotentieel te behouden.
Aanhoudende fibroblastbesmetting kan worden geminimaliseerd door nauwgezette weefselverwerking, waaronder zorgvuldige verwijdering van bind- en vetweefsel tijdens spierdissectie. Optimalisatie van de preplatingstap is bijzonder belangrijk, omdat snel hechtende fibroblasten zich hechten aan ongecoate oppervlakken terwijl SC's in suspensie blijven. Het gebruik van collageenbedekte kweekplaten in combinatie met een gedefinieerd myoblastproliferatiemedium aangevuld met bFGF bevordert selectieve myoblastexpansie terwijl de groei van fibroblasten wordt beperkt. Extra zuivering kan worden bereikt door negatieve selectiestrategieën zoals MACS om fibroblastpopulaties uit te putten. Regelmatige microscopische monitoring is essentieel om vroege fibroblastovergroei te detecteren en tijdige interventie mogelijk te maken.
Samenvattend bevordert dit protocol de reproduceerbaarheid en efficiëntie van primaire myoblastisolatie door sequentiële zuivering, geoptimaliseerde kweekomstandigheden en aanpasbare zuiveringsopties te integreren. Belangrijk is dat het betrouwbaar sterk verrijkte Pax7+- cellen oplevert, die verder kunnen worden gebruikt voor gecontroleerde studies naar SC's biologie, myogene commitment en differentiatiedynamiek.
In tegenstelling tot protocollen die geoptimaliseerd zijn voor langdurige seriële expansie, die celgedrag kunnen veranderen en myogene potentieelen en fusiecapaciteit kunnen verminderen, is onze methode bewust ontworpen om cellen met een robuuste myogene identiteit en hoge fusiecompetentie te behouden. Deze focus is voordelig voor toepassingen die fysiologische relevantie, efficiënte myogene differentiatie en het behoud van bepalende SC-kenmerken vereisen, met name in experimenten gericht op het bestuderen van myogene differentiatie en regeneratie.
Openbaarmakingen
De auteurs hoeven geen belangenconflicten aan te geven.
Dankbetuigingen
Confocale beeldvorming werd uitgevoerd in het Laboratorium voor Weefselstructuur en -functie beeldvormen, dat dient als een kernfaciliteit voor beeldvorming aan het Nencki Instituut voor Experimentele Biologie en deel uitmaakt van de infrastructuur van de Poolse Euro-BioImaging Node.
Dit werk werd ondersteund door het Nationaal Wetenschapscentrum, Polen (Sonata-subsidie 2022/47/D/NZ3/02737 aan Lilya Lehka en Sonata bis subsidie 2020/38/E/NZ4/00314 aan Grzegorz Sumara), en wettelijke fondsen van het Ministerie van Wetenschap en Hoger Onderwijs aan het Nencki Instituut. Dit werk werd ondersteund door het project dat werd gefinancierd door de Minister van Onderwijs en Wetenschap op basis van contract nr. 2022/WK/05 (Pools Euro-BioImaging Node "Advanced Light Microscopy Node Poland").
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.25% trypsin-EDTA | Gibco | 25200-056 | |
| 100 µm cell strainer | VWR | 732-2759 | |
| 30 µm strainer | Miltenyi Biotec | 130-041-407 | |
| 40 µm cell strainer | VWR | 732-2757 | |
| 70 µm cell strainer | VWR | 130-095-823 | |
| Acetic acid | POCH | 568760114 | Opgelost in dH2O tot een uiteindelijke concentratie van 20 mM en gesteriliseerd door een 0.2 µm filter |
| Alexa Fluor 488, donkey anti-Rabbit | Invitrogen | A21206 | Opgelost in blocking solution (zie Sectie 8.7) bij een 1:250 verdunning |
| Alexa Fluor 488, goat anti-mouse | Abcam | ab150113 | Opgelost in blocking solution (zie Sectie 8.7) bij een 1:250 verdunning |
| Ammonium chloride (NH4Cl) | BioShop | AMC303.500 | Oplossen in water tot een uiteindelijke concentratie 50 mM |
| Antifade Mounting Media | Vectashield | H-2000-10 | |
| Anti-PAX7 antibody | Abcam | ab187339 | Opgelost in blocking solution (zie Sectie 8.7) bij een 1:100 verdunning |
| Basic fibroblast growth factor | Corning | 354060 | Opgelost in steriele dH2O tot een stockconcentratie van 10 µg/mL |
| Betadine, 100 mg/mL | EGIS Pharmaceuticals | ||
| Cell culture plate, 6 well, Cell+ | SARSTEDT | 83.3902.300 | |
| Chicken embryo extract | MP Biomedicals | 2850145 | |
| Collagen I, rat tail | Gibco | A10483-01 | Opgelost in 20 mM azijnzuur |
| Collagenase, type I | Sigma | C0130-500MG | Opgelost in DMEM en gesteriliseerd door een 0.2 µm filter |
| Dissociation tube (gentleMACS C Tubes) | Miltenyi Biotec | 130-093-237 | |
| Dulbecco's Modified Eagle Medium, high glucose | Gibco | 31966-021 | |
| EDTA | Invitrogen | AM9260G | |
| Falcon Conical Centrifuge Tubes, 15 mL | Corning | 352096 | |
| Falcon Conical Centrifuge Tubes, 50 mL | Corning | 352070 | |
| Fetal Bovine Serum | Gibco | 10082147 | |
| Horse serum | Gibco | 26050088 | |
| Magnetic labeling reagent (Satellite Cell isolation Kit) | Miltenyi Biotec | 130-104-268 | |
| Magnetic separator (MidiMACS Separator) | Miltenyi Biotec | 130-042-302 | |
| Matrigel | Corning | CLS356234 | Opgelost in DMEM tot 10 % concentratie |
| Paraformaldehyde, 4% in PBS | Thermo Fisher Scientific | J61899.AK | |
| Penicillin-Streptomycin | Gibco | 15140122 | |
| Phosphate-Buffered Saline | VWR | 392-0334 | |
| Separation column (LS Columns) | Miltenyi Biotec | 130-042-401 | |
| Skeletal Muscle Myosin Antibody, MHC | Santa Cruz | sc-32732 | Opgelost in blocking solution (zie Sectie 8.7) bij een 1:50 verdunning |
| TC-dish, 100 x 20 mm | SARSTEDT | 83.3902 | |
| Tissue dissociator (GentleMACS Dissociator) | Miltenyi Biotec | 130-093-235 | |
| Triton X-100 | Sigma-Aldrich | X100-1L |
Referenties
- Yeh, C. -J., Sattler, K. M., Lepper, C. Molecular regulation of satellite cells via intercellular signaling. Gene. 858, 147172(2023).
- Gonzalez, M. L., Busse, N. I., Waits, C. M., Johnson, S. E. Satellite cells and their regulation in livestock. J Anim Sci. 98 (5), skaa081(2020).
- Mauro, A. Satellite cell of skeletal muscle fibers. J Biophys Biochem Cytol. 9 (2), 493-495 (1961).
- Yin, H., Price, F., Rudnicki, M. A. Satellite cells and the muscle stem cell niche. Physiol Rev. 93, 23-67 (2013).
- Kahn, R. E., Dayanidhi, S., Lacham-Kaplan, O., Hawley, J. A. Molecular clocks, satellite cells, and skeletal muscle regeneration. Am J Physiol Cell Physiol. 324 (1), C1332-C1340 (2023).
- Abreu, P., Mendes, S. V. D., Ceccatto, V. M., Hirabara, S. M. Satellite cell activation induced by aerobic muscle adaptation in response to endurance exercise. Life Sci. 170, 33-40 (2017).
- Dueweke, J. J., Awan, T. M., Mendias, C. L. Regeneration of skeletal muscle after eccentric injury. J Sport Rehabil. 26 (2), 171-179 (2017).
- Michele, D. E. Mechanisms of skeletal muscle repair and regeneration in health and disease. FEBS J. 289 (21), 6460-6462 (2022).
- Domingues-Faria, C., Vasson, M. -P., Goncalves-Mendes, N., Boirie, Y., Walrand, S. Skeletal muscle regeneration and impact of aging and nutrition. Ageing Res Rev. 26, 22-36 (2016).
- Tierney, M. T., Sacco, A. Satellite cell heterogeneity in skeletal muscle homeostasis. Trends Cell Biol. 26 (6), 434-444 (2016).
- Troy, A., et al. Coordination of satellite cell activation and self-renewal by Par-complex-dependent asymmetric activation of p38α/β MAPK. Cell Stem Cell. 11 (4), 541-553 (2012).
- Dumont, N. A., Wang, Y. X., Rudnicki, M. A. Intrinsic and extrinsic mechanisms regulating satellite cell function. Development. 142 (9), 1572-1581 (2015).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal muscle satellite cells: background and methods for isolation and analysis. Myogenesis. DiMario, J. X. 798, Humana Press. 21-52 (2012).
- Gharaibeh, B., et al. Isolation of a slowly adhering cell fraction containing stem cells from murine skeletal muscle by the preplate technique. Nat Protoc. 3 (9), 1501-1509 (2008).
- Benedetti, A., et al. A novel approach for the isolation and long-term expansion of pure satellite cells based on ice-cold treatment. Skelet Muscle. 11 (1), 7(2021).
- Yoshioka, K., et al. A modified preplating method for high-yield and high-purity muscle stem cell isolation. Front Cell Dev Biol. 8, 793(2020).
- Uezumi, A., Fukada, S., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat formation. Nat Cell Biol. 12 (2), 143-152 (2010).
- Christov, C., et al. Muscle satellite cells and endothelial cells: close neighbors and privileged partners. Mol Biol Cell. 18 (4), 1397-1409 (2007).
- Elizalde, G., Munoz, A. Z., Almada, A. E. Protocol for the isolation of mouse muscle stem cells using fluorescence-activated cell sorting. STAR Protoc. 4 (4), 102656(2023).
- Pasut, A., Oleynik, P., Rudnicki, M. A. Isolation of muscle stem cells by fluorescence-activated cell sorting. Myogenesis. DiMario, X. 798, Humana Press. 53-64 (2012).
- Lee, J. D., Sinha, B. C., Larkin, L. M., Vandenburgh, H. H. Isolation and purification of satellite cells for skeletal muscle tissue engineering. J Regen Med. 3 (2), (2015).
- Llufrio, E. M., Wang, L., Naser, F. J., Patti, G. J. Sorting cells alters their redox state and cellular metabolome. Redox Biol. 16, 381-387 (2018).
- Cusmano, A. A., et al. Efficient isolation and ex vivo differentiation of murine satellite cells. Stem Cell. Turksen, K. 2939, Springer. 37-54 (2025).
- Park, Y. G., Moon, J. H., Kim, J. A. Comparative study of magnetic-activated cell sorting and preplating for myoblast purification. Yonsei Med J. 47 (2), 179-186 (2006).
- Park, Y. G., Baek, A., Kim, S. Myoblast purifying by magnetic-activated cell sorting. Methods Cell Biol. 112, Elsevier. 439-447 (2012).
- Lee, H., Han, N. R., Kim, S. J., Yun, J. I., Lee, S. T. Development of a high-yield isolation protocol for active muscle satellite cells. Int J Stem Cells. 15 (3), 283-290 (2022).
- Cui, Y., et al. An easy and practical method for isolation, culture and identification of mouse skeletal muscle satellite cells. Int J Clin Exp Med. 9, 19424-19431 (2016).
- Ding, S., et al. Characterization and isolation of highly purified porcine satellite cells. Cell Death Discov. 3, 17003(2017).
- Pawlikowski, B., Vogler, T. O., Gadek, K., Olwin, B. B. Regulation of skeletal muscle stem cells by fibroblast growth factors. Dev Dyn. 246 (5), 359-367 (2017).
- Shahini, A., et al. Efficient and high-yield isolation of myoblasts from skeletal muscle. Stem Cell Res. 30, 122-129 (2018).
- Lee, D. H., Kwak, K. B., Park, Y. C., Chung, C. H., Ha, D. B. Purification and characterization of myoblast fusion inhibitor. Mol Cells. 1, 177-182 (1991).
- Moulin, V., et al. Fetal and adult human skin fibroblasts display intrinsic differences in contractile capacity. J Cell Physiol. 188 (2), 211-222 (2001).
- Wilson, C. G., et al. Age-dependent expression of collagen receptors in rat cardiac fibroblasts. Microsc Microanal. 17 (4), 555-562 (2011).
- Kohen, N. T., Little, L. E., Healy, K. E. Characterization of Matrigel interfaces during defined hESC culture. Biointerphases. 4 (4), 69-79 (2009).
- Wang, Z., et al. In vitro culture system supporting robust expansion of myogenic progenitors. BioRes Open Access. 3 (3), 79-87 (2014).
- Péault, B., et al. Stem and progenitor cells in skeletal muscle development and therapy. Mol Ther. 15 (5), 867-877 (2007).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Curr Opin Cell Biol. 19 (6), 628-633 (2007).
- Rando, T. A., Blau, H. M. Primary mouse myoblast purification and transplantation. J Cell Biol. 125 (6), 1275-1287 (1994).
- Hindi, L., McMillan, J., Afroze, D., Hindi, S., Kumar, A. Isolation, culturing, and differentiation of primary myoblasts. Bio Protoc. 7 (9), (2017).
Herprints en machtigingen
