Het vermogen om virale vectoren in de prepubertale hersenen tot expressie te brengen is fundamenteel voor het bestuderen van de cellulaire en circuitmechanismen voor hersenontwikkeling. Hier beschrijven we een protocol voor het uitvoeren van stereotaxische virale chirurgie bij de zuigeling op de postnatale dag 11 of 12 (P11-P12) en geven we richtlijnen voor postoperatieve zorg.
Methodenartikel
Stereotaxische chirurgie bij muizenzuigers en postoperatieve zorg
In dit artikel
Samenvatting
Samenvatting
Het begrijpen van de ontwikkelings-, cellulaire en circuitprocessen gedurende de postnatale periode is cruciaal om de complexiteit van hersenontwikkeling en de impact ervan op gedrags- en sociale rijping te verduidelijken. De overgang van de baby naar de volwassenheid omvat aanzienlijke neurobiologische veranderingen, waaronder synaptische snoei en myelinisatie, die fundamenteel zijn voor cognitieve vermogens, emotionele regulatie en sociale interacties. Het bestuderen van hersenontwikkeling bij prepubertale muizen stelt onderzoekers in staat kritieke periodes te identificeren die een gezonde hersengroei ondersteunen en tijdige interventies voor neuro-ontwikkelingsstoornissen op te zetten. Om hersenfuncties precies te ontleden, is stereotaxische chirurgie een cruciale techniek in neurowetenschappelijk onderzoek, met ongeëvenaarde precisie in het targeten van hersengebieden van belang en het mogelijk maken de afgifte van virale agentia. Hoewel stereotaxische operaties bij volwassen muizen veel worden toegepast in neurobiologische laboratoria, zijn er zeer beperkte richtlijnen voor het uitvoeren van stereotaxische operaties bij prepubertale muizen, evenals cruciale postoperatieve zorg om ervoor te zorgen dat de baby succesvol kan worden herintroduceerd bij zijn moeder en nesten van de moeder. Hier beschrijven we een protocol voor stereotaxische chirurgie en virale injectie bij zuigelingen (P11-P12) muizen, waarbij we anesthesie en analgesie, overwegingen voor postoperatieve zorg en verschillen met stereotaxische chirurgie bij volwassenen belichten. Dit protocol kan in elk hersengebied van belang worden geïmplementeerd door de gewenste doelcoördinaten bij te werken en kan worden aangepast voor hersentargeting in latere stadia van de postnatale ontwikkeling, zoals tijdens de jeugdperiode (P15-P30). Al met al biedt dit protocol een instappunt voor het bestuderen van de postnatale hersenontwikkeling en -functie.
Inleiding
De kindertijd en adolescentie zijn cruciale postnatale periodes voor hersenontwikkeling, gekenmerkt door myelinisatie, synaptogenese en synaptische snoei, die de verfijning van circuitsbevorderen 1,2. Het ontstaan van sociale gedragingen, waaronder paren, agressie en sociaal spel, ontstaat tijdens de peripubertale periode (P28-40)3 en wordt streng gereguleerd door circulerende steroïdehormonen 4,5. Ondanks aanzienlijke vooruitgang in instrumenten om de cellulaire basis van sociaal gedrag bij volwassenen te analyseren, is er weinig bekend over de neurale mechanismen die ten grondslag liggen aan het ontstaan van sociaal gedrag gedurende de postnatale ontwikkeling. Redenen voor het gebrek aan begrip van zich ontwikkelende sociale circuits zijn onder andere 1) uitdagingen bij het uitvoeren van operaties bij jonge muizen, waaronder stereotaxische installaties die niet voor jongere muizen zijn ingericht, 2) het balanceren van veiligheid en effectiviteit van analgesie en anesthesie tijdens de operatie6, en 3) acceptatie van zuigelingen door de moeder na de operatie. Bovendien zijn de huidige methoden die worden gebruikt om genetische constructies op vroege postnatale tijdstippen af te leveren, zoals in utero elektroporatie7, intracerebroventriculaire virale injectie in de neonatale muis (P0-P10) hersenen8, of recombinase driver en -responsive line genetische kruisingen9, niet ideaal, omdat ze geen precieze targeting hebben en zich richten op embryonale of P0-targeting.
Hier bieden we een eenvoudig protocol voor stereotaxische chirurgie bij jonge muizen (P11-P12) en postoperatieve zorg ter ondersteuning van succesvolle re-integratie met de moeder en nestgenoten. Dit protocol maakt gebruik van het huidige stereotaxische protocol voor volwassen muizen10 en vereist slechts kleine aanpassingen aan de stereotaxische opstelling. We geven ook gedetailleerde richtlijnen over postoperatieve zorg en succesvolle anesthesie en analgesie bij jonge muizen. We kozen het tijdstip P11-12 voor de operatie omdat er een incubatieperiode van 2 weken is voor virale expressie, zodat muizen in vivo kunnen worden getest vanaf P24, vóór de peripubertale periode (P28-40)3. Ditzelfde protocol kan echter op latere tijdstippen worden gebruikt voor stereotaxische chirurgie. We richten ons op de zich ontwikkelende mediale amygdala (MeA), een amygdala-subdivisie die wordt gekenmerkt door haar rol in een diverse set sociale gedragingen11,12. We onderzoeken specifiek de MeA-subpopulatie die Foxp2 (MeAFoxp2)13 tot expressie brengt, een forkhead box transcriptiefactor, aangezien we eerder hebben ontdekt dat deze cellen uniek zijn geprogrammeerd voor de in vivo verwerking van mannelijke zintuiglijke signalen bij mannelijke muizen gedurende de postnatale ontwikkeling14. Daarnaast is de MeAFoxp2-subpopulatie nodig om territoriale agressie bijmannetjes 14 in beide richtingen te moduleren. Al met al stelt het huidige protocol neurowetenschappers in staat om virale agentia nauwkeurig toe te dienen aan gerichte hersengebieden in belangrijke postnatale stadia van hersenontwikkeling, om de cellulaire en circuit-onderbouwing van sociale en affiliatieve gedragingen gedurende adolescentie en volwassenheid te bestuderen.
Protocol
Deze procedure werd goedgekeurd door de NIEHS Animal Care and Use Committee en was in overeenstemming met de richtlijnen van de National Institutes of Health voor het gebruik en de verzorging van dieren. Geschikte persoonlijke beschermingsmiddelen, waaronder handschoenen, mondkapje, wegwerpjas, haarnet en schoenhoezen, werden gedurende de hele operatie en in aanwezigheid van dieren gebruikt.
1. Voorbereiding en aanpassingen van het muisstereotaxisch apparaat (Figuur 1)
- Bereid het stereotaxische apparaat voor met stereotaxische accessoires voor babymuizen, waaronder een paar niet-veroverende oorbarsten, een aangepaste gasanesthesie-kophouder en een palate bar voor P12-zuigelingen.
- Desinfecteer alle chirurgische instrumenten met een glaskralensterilisator (250 °C, 30 s voor kleinere gereedschappen en 1 minuut voor grotere gereedschappen). Leg steriel gereedschap op een steriel gordijn na sterilisatie. Steriele instrumenten moeten gedurende de operatie op het steriele veld blijven.
- Leg een steriel gordijn over een verwarmingskussen bij een temperatuur van ~37 °C op de stereotaxische installatie om de baby tijdens de operatie op een gecontroleerde temperatuur te houden. Houd de temperatuur van het verwarmingskussen tijdens de operatie in de gaten.
2. Muisoperatie voorbereiding, stereotaxische plaatsing, nivellering en craniotomie
- Meet het lichaamsgewicht om een passende dosering van de analgesie te geven.
- Plaats de muis in een inductiekamer gevuld met isofluraan van 3% met een zuurstofstroom van 0,9 L/min. Controleer of de ademhaling van de muis is afgenomen tot ~1 ademhaling/s en dat er geen reactie is na het testen van de terugtrekkingsreflex van het pedaal. Schakel de isofluraaan/zuurstofstroom over naar het stereotaxische kader en verlaag de isofluranconcentratie tot 2%.
OPMERKING: Voldoende anesthesie moet worden bevestigd door het ontbreken van reacties op de terugtrekkingsreflex van het pedaal gedurende de hele operatie gedurende de hele operatie. Observeer zorgvuldig het ademhalingspatroon van de muis gedurende de hele operatie. Pas de isofluranconcentratie gedurende de operatie aan zodat het laagste percentage wordt gebruikt om diepe anesthesie te behouden en een overdosis narkose te voorkomen. - Bevestig de muis op het aangepaste stereotaxische apparaat met stereotaxische accessoires voor babymuizen. Plaats niet-punctie oorbeulen aan de zijkant van het hoofd van de muis en lijn de oorliniaal zo uit dat deze aan beide zijden even ver is ten opzichte van de stereotaxische frameliniaal. Voor P11-baby's stel je de stereotaxische liniaal in op 5 mm.
OPMERKING: Baby's op P11 hebben hun ogen meestal nog niet open, dus er is geen oogsmeermiddel nodig. Vanaf P12 hebben sommige baby's hun ogen open. Als de ogen van de baby open zijn, moet oogzalf worden aangebracht en opnieuw aangebracht tijdens de operatie. - Injecteer 5 mg/kg Meloxicam via de subcutane (s.c.) intrascapulaire route met een 1 mL spuit en een 27 G naald.
- Verdun 0,5% bupivacaïne (5 mg/mL) met zoutoplossing tot 0,5 mg/mL (1:10) en injecteer s.c. onder de huid van het hoofd (d.w.z. 0,05 mL voor een baby van 5 g).
OPMERKING: Stappen 2.6 tot 3.15 moeten worden uitgevoerd met steriele handschoenen. - Maak een incisie van 1,5 cm met een kleine schaar langs de middenlijn van het hoofd.
- Gebruik een steriel wattenstaafje om voorzichtig het zachte weefsel van het oppervlak van de schedel te verwijderen met betadine.
- Plaats een uitgetrokken glazen capillair (~0,8 mm lang) in een glazen pipethouder. Bevestig de houder op de verticale stereotaktische arm.
OPMERKING: Stappen 2.9 tot 3.10 moeten worden uitgevoerd onder een dissectiemicroscoop. - Gelijk de voor-achterste hoek van het schedeloppervlak:
- Verplaats de capillaire naar de rostrale samenvloeiing van het punt van de dorsale sinussen (RCS) (Figuur 2) zoals beschreven in Chan et al.15.
- Onder een microscoop met 2x vergroting wordt de X (Mediaal-Lateraal), Y (Voor-Posterior) en Z (Dorsaal-Ventraal) coördinaten nulgesteld wanneer de capillaire de schedel in het RCS-punt licht raakt met behulp van de digitale displayconsole van het stereotaxische instrument.
- Verplaats de capillair naar lambda (bij Y = -7,30 mm) en verlaag de capillair zodat deze de schedel iets raakt (Figuur 2).
- Controleer de waarde van de Z-coördinaten en stel de anterieur-posterior hoek in de stereotaxische opstelling in balans om de kantelhoek van de kop te veranderen. Herhaal stappen 2.9.1 tot 2.9.3 totdat het verschil in de waarde van de Z-coördinaat tussen RCS en lambda <0,02 mm is.
- Vlak de mediale-laterale hoek van het schedeloppervlak:
- Verplaats de capillaire naar het RCS-punt.
- Nul de X-coördinaten (mediaal-lateraal) en Y (voor-posterior) wanneer de capillaire licht de schedel raakt in het RCS-punt.
- Om het hoofd te waterpas met behulp van de posterodorsale MeA (MeApd) coördinaten, beweeg je de capillaire naar X = +2,50 mm, Y = -4,20 mm en nul Z (Dorsaal-Ventraal) terwijl de capillaire de schedel iets raakt.
- Verplaats de capillaire naar X = -2,50 mm, Y = -4,20 mm in de andere hersenhelft en verlaag de haarvat iets zodat deze de schedel raakt.
- Controleer de waarde van Z en stel de mediaal-laterale as in de stereotaxische constructie aan om de kantelhoek van de kop te veranderen. Herhaal stappen 2.10.1 tot 2.10.4 totdat het verschil in de Z-waarde tussen de rechter- en linkerhersenhelft <0,03 mm is.
- Verwijder de capillairhouder en monteer een microboor met een #75 boor in een stereotaxische boorhouder op de verticale stereotaxiearm.
- Plaats de punt van de boorbit boven het RCS-punt, nul de X (Mediaal-Lateraal) en Y (Anterior-Posterior) coördinaten. Ga naar X = ±2,03 mm, Y = -4,20 mm om de MeApd van P11-baby's te targeten.
- Boor een craniotomie van 0,5 mm door de schedel.
- Maak het schedeloppervlak zorgvuldig schoon met steriele zoutoplossing met fijne taakdoekjes en wattenstaafjes.
OPMERKING: Breng regelmatig steriele zoutoplossing aan om het schedeloppervlak gehydrateerd te houden.
3. Virale injectie
- Vul een nieuw capillair met minerale olie met een microfil-flexibele naald.
- Bevestig en draai de capillaire aan aan de nanoliter-injector.
- Verwijder de microboor en monteer de nanoliterinjector op de verticale stereotaxische arm.
- Haal minstens het dubbele van de benodigde hoeveelheid virus af (hier 400 nL) met een snelheid van 10 nL/s.
OPMERKING: Elk Aav-virus van belang kan na institutionele goedkeuring worden gebruikt voor virale injectie. In dit protocol gebruikten we AAV2-DIO-mCherry (BSL-1, 2,5 E+13 vg/mL, 3 μl/buis, opgeslagen bij -80 °C en vervolgens overgebracht naar ijs voor de operatie). - Verplaats de capillaire naar het RCS-punt en zet de X- en Y-coördinaten op nul.
- Verplaats de capillaire naar het doelgebied van de hersenen, hier de MeApd (coördinaten: X = ±2,03 mm, Y = -4,20 mm, Z= -5,08 mm vanaf RCS).
- Laat de capillaire laag zakken naar het oppervlak van de schedel en nulstel dan de Z-coördinaat.
- Maak een pad door de haarvat naar de gewenste diepte te brengen en de haarvat weer uit de hersenen te trekken.
- Injecteer ~8 nL virus om zeker te zijn dat de capillaire niet verstopt is voordat je het weer in de hersenen plaatst. Als het verstopt is, voeg dan steriel zoutoplossing toe aan een taartenwisser en veeg voorzichtig de zijkanten en onderkant van het haarvat om de obstructie te verwijderen.
- Verlaag de capillaire nog één keer tot de gewenste diepte en injecteer de gewenste hoeveelheid virale (in dit geval 150 nL virus) met een snelheid van 20 nL/min.
- Als je klaar bent, wacht dan 5 minuten voordat je de capillaire langzaam terugtrekt.
- Indien nodig, herhaal stap 3.4-3.11 om het virus in de contralaterale hemisfeer te injecteren.
- Verwijder de capillaire van de nanoliter-injector. Verwijder gebruikte haarvaten en virale buizen in een 50 mL conische buis met 10% bleekmiddel.
OPMERKING: Individuele laboratoria dienen alle richtlijnen voor afvalhantering, lekkage en bioveiligheidsnaleving van hun Institutionele Biologische en Bioveiligheidsafdeling te volgen. - Naai de huid met een niet-absorberende 7-0 hechting. Probeer het haar op te tillen tijdens het hechten zodat de hechtingen verborgen blijven.
OPMERKING: Meestal zijn 3-4 hechtingen voldoende. In onze handen werkt een 7-0 hechting het beste om te voorkomen dat de dam de hechtingen scheurt zodra de baby terug is in de thuiskooi. - Veeg het hechtingsgebied af met 3% waterstofperoxide, gevolgd door zoutoplossing met steriele wattenstaafjes.
OPMERKING: De operatie duurt doorgaans tussen de 1 en 2 uur, afhankelijk van het aantal geïnjecteerde virussen. Virussen hebben doorgaans minimaal 2 weken nodig voor volledige expressie.
4. Postoperatieve zorg
- Haal de baby uit het stereotaxische frame en plaats hem in een schoon hokje bovenop een warmtekussen. Om uitdroging te voorkomen wordt het injecteren van een steriele zoutoplossing aanbevolen.
- Houd de baby in de gaten totdat hij mobiel is.
- Zodra de baby zich door de kooi kan bewegen, plaats je de dam in een nieuwe schone kooi voor ~2 minuten.
- Plaats de baby in zijn oorspronkelijke thuiskooi naast zijn nestgenoten. Veeg alle jongen voorzichtig af met nest- en bodemmateriaal uit hun thuiskooi en plaats ze daarna terug in het nest. Plaats de dam terug in de kooi.
- Houd de dam en de zuigelingen nauwlettend in de gaten. Controleer of de dam terugkeert naar het nest en de chirurgische baby verzorgt, maar de hechtingen niet trekt.
- Als na 1 uur de moeder de chirurgische baby niet accepteert, gebruik dan een pleegmoeder. Als een moeder al heeft laten zien dat ze jongen accepteert, gebruik deze dam dan voor volgende nestjes (acceptatie na het accepteren van jongen in het eerste nest was 100%).
- Vierentwintig uur na de operatie, controleer de incisieplaats en dien Meloxicam toe (5 mg/kg, s.c.).
- Na succesvolle postoperatieve zorg laat je de chirurgische muis bij de moeder en nestgenoten tot hij bij P21 is gespen. Verwijder alle zichtbare hechtingen binnen 10-14 dagen na de operatie.
OPMERKING: Er worden geen significante verschillen verwacht in voedselinname, lichaamsgewicht of voortbewegingsgedrag bij de chirurgische muizen vergeleken met nestgenootcontroles.
Baby's worden dagelijks minstens 2 dagen na de operatie gecontroleerd en daarna minstens 2 keer per week. Humane eindpuntcriteria: Als de baby na 2 uur na de operatie niet meer loopbaar is, wordt de baby humaan geëuthanaseerd. Als de baby na de operatie minder lichaamsgewicht en/of voortgang vertoont, wordt de baby humanaal geëuthanaseerd.
Resultaten
Veiligheid van de combinatie van isoflurane, bupivacaïne en meloxicam voor babyoperaties
De veiligheid van het gebruik van anesthesie en analgesie bij jonge muizen is nog onduidelijk6. Daarom testten we het gebruik van een combinatie van anesthesie en analgesie bij jonge muizen om de overlevingskans te bepalen. Jonge muizen op P11 (lichaamsgewicht = 6,09 ± 0,90 g, laagste lichaamsgewicht was 3,9 g; n=13) werden in de inductiekamer geplaatst voor initiële anesthesie met 3% isofluraan in 0,9 L/min zuurstof. Zodra de baby's verdoofd waren en niet meer reageerden op de terugtrekkingsreflex van het pedaal, werden ze overgebracht naar het stereotaxische apparaat, en de isoflurananesthesie werd teruggebracht tot 1,5-2% isofluraan in 0,9 L/min zuurstof met een verwarmingspad (41,23 ± 2,28 °C). Na het plaatsen van de zuigelingen in het stereotaxische apparaat werd s.c. interscapulair (5 mg/kg Meloxicam) toegediend en plaatselijke anesthesie onder de huid van het hoofd toegediend (0,05 mg/mL Bupivacaïne). Dertig minuten later haalden we de baby's uit de stereotaxische uitrusting en plaatsten ze in een schone kooi. We observeerden een overlevingskans van 100% (13/13) 30 minuten na de bevalling van de pijn. Bovendien zagen we geen complicaties 24 uur en 72 uur na de operatie, noch in de volwassenheid. Deze resultaten tonen aan dat het combineren van lokale verdoving met een niet-steroïde ontstekingsremmer veilig is voor muizenzuigers en pijn en stress vermindert.
Nauwkeurige en nauwkeurige virale levering in de MeA
Om de nauwkeurigheid en precisie van virale toediening tijdens de stereotaxische operaties bij zuigelingen te bevestigen, hebben we AAV2-hSyn-DIO-mCherry bilateraal toegediend in de MeApd van Foxp2cre+/- mannelijke muizen bij P11 (Figuur 3A). Muizen werden vervolgens gespeend op P21. Bij P45 werden muizenhersenen verzameld voor immunohistochemie en beeldanalyse, zoals eerder beschreven door onze groep14 en anderen16 (Figuur 3B,C). Muizen werden verdoofd en perfuseerd met 30 mL 1× PBS, gevolgd door 30 mL 4% PFA bij 10 mL/min. De hersenen werden 's nachts gefixeerd bij 4 °C in 4% PFA, cryobeschermd in 30% sucrose, ingebed in O.C.T. en gesneden op 50 μm op een cryostaat. Elke derde sectie werd verwerkt op immunohistochemie zoals eerder beschreven14. Vrij drijvende secties werden geblokkeerd met 10% normaal ezelserum, 's nachts geïncubeerd met het primaire antilichaam, gewassen, 4 uur geïncubeerd met het secundaire antilichaam, opnieuw gewassen en gemonteerd met DAPI-bevattend medium voordat het bedekking werd geïncubeerd. Hersensecties werden gekleurd met Foxp2-antilichaam en Alexa Fluor 488 AffiniPure Donkey Anti-Rabbit IgG (H+L).
Om de doeleffectiviteit te bevestigen, bepaalden we de co-expressie van mCherry+- en Foxp2+- cellen in de MeA en observeerden we 90,2% ± 2,1 overlap tussen populaties, wat aangeeft dat mCherry-expressie beperkt is tot Foxp2+-cellen op een cre-afhankelijke manier (Figuur 3D). Dit resultaat benadrukt de hoge efficiëntie van de virale injectie met dit protocol. Daarnaast onderzochten we de nauwkeurigheid van de virale injecties door het percentage mCherry+-cellen in de MeApd te analyseren ten opzichte van het totale percentage mCherry in alle regio's. We observeerden dat 93,7% ± 1,4 van de mCherry+- cellen zich binnen de MeApd bevonden, wat aangeeft dat de ruimtelijke expressie van het virus beperkt is tot ons interessegebied (Figuur 3E).

Figuur 1: Opzet voor stereotaxische chirurgie bij zuigelingen. (A) Stereotaxische installatie. (B) Niet-ruptuur oorbenen. (C) Gasanesthesie-hoofdhouder en gehemeltebalk voor P12-baby's. (D) Kralensterilisator. (E) Verwarmingspadcontroller. (V) Stereotaxische arm. (G) Nanoliter-injector. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Belangrijke herkenningspunten in de P11-muisschedel. (A) Schematische illustratie van belangrijke herkenningspunten in de schedel van de baby. (B) Het hoofd van de baby wordt vastgezet met gespecialiseerde stereotaxische accessoires, waaronder niet-ruptuur oorbenen, een aangepaste gaskophouder en een pelletbalk voor P12-muizen. Afkorting: RCS = Rostrale samenvloeiing van de sinussen, SSS = Superior sagittale sinus, RRV = Rostral-rhinale venen, SOS = Superior olfactorische sinus. Klik hier om een grotere versie van deze figuur te bekijken.
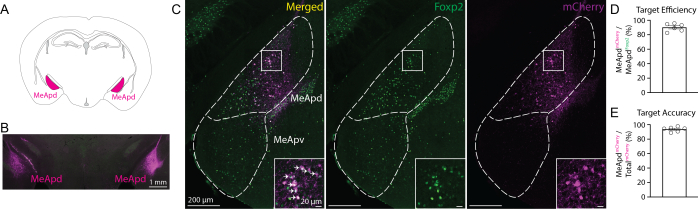
Figuur 3: Gerichte bilaterale virale expressie in de MeApd na stereotaxische operatie bij zuigelingen. (A) Schematische illustratie van de MeApd (coronale weergave). (B) Representatief histologiebeeld van bilaterale expressie van het Foxp2-antilichaam (groen) en mCherry+- cellen (magenta) in Foxp2cre+/- volwassen mannelijke muizen. (C) Vergroot beeld van de MeA vanuit zowel samengevoegde als individuele kanalen. Witte pijlen duiden op co-labelde Foxp2-antilichamen en mCherry+ -cellen. (D) Injectie-efficiëntie. (E) Injectienauwkeurigheid. (D,E) n=3 muizen, linker- en rechterhersenhelft/muis. Afkortingen: MeApd = posterodorsale mediale amygdala; MeApv = posteroventrale mediale amygdala. Klik hier om een grotere versie van deze figuur te bekijken.
| Methoden | Voordelen | Nadelen | Referentie |
| In utero elektroporatie | Grotere plasmidetransfectie | Gebrek aan precieze targeting, toxiciteit, je moet zeer bekwaam zijn | Wang, et al., Methods Mol Biol. (2013). |
| Intracerebroventriculaire virale injectie | Snel, makkelijk, economisch | Gebrek aan nauwkeurige doelgerichtstelling, risico op kindermoord | Kim, et al., J Vis Exp. (2014). |
| Stereotactische micro-injectie bij P0 | Precieze targeting, lager risico op moederlijke afstoting | Celtoxiciteit door virus, niet ideaal om postpuberteitstijdstippen te bestuderen | Chen, et al., J Vis Exp. (2018). |
| Recombinase lijn genetische kruising | Niet-invasief | Gebrek aan nauwkeurige targeting, duur | Robertson et al., Nat Neurosci. (2013). |
Tabel 1: Samenvatting van eerdere methoden die zijn gebruikt voor het bestuderen van cellulaire en circuit-embryonale en postnatale ontwikkeling bij knaagdieren.
Discussie
Het bestuderen van de neurale mechanismen die ten grondslag liggen aan sociaal gedrag gedurende de postnatale ontwikkeling is essentieel om niet alleen hun ontstaan te begrijpen, maar ook om te begrijpen hoe deze mechanismen kunnen worden verstoord door omgevingsfactoren of bij neuro-ontwikkelingsstoornissen. Onze studie beschrijft een gedetailleerd protocol voor stereotaxische chirurgie om het virus precies en efficiënt in de hersenen van P11-12 zuigelingen te brengen. Daarom maakt dit protocol het mogelijk om te manipuleren, opnemen en bestuderen van moleculair gedefinieerde neuronale subpopulaties vóór en na de puberteit met behulp van een virale strategie. We benadrukken pre- en postoperatieve aanpassingen en zorg, evenals een veilige combinatie van anesthesie- en analgesiemiddelen die goed worden verdragen door jonge muizen.
Een belangrijk en uitdagend onderdeel van stereotaxische chirurgie bij zuigelingen is het succesvol opnieuw introduceren van de baby in zijn thuiskooi met zijn moeder en nestgenoten. Om bij herintroductie in de kooi de juiste zorg voor de baby te waarborgen, moet de moeder de baby ophalen en verzorgen (zonder te veel verzorging), en eventuele tekenen van mogelijke verwaarlozing moeten nauwlettend worden gevolgd. Door de incisie en hechtingen van de baby kan de moeder het hoofdgebied te veel verzorgen, wat mogelijk kan leiden tot scheuren en verwijderen van de hechtingen. Dit zou nadelig zijn en daarom is het essentieel om het gedrag van de moeder ten opzichte van de baby na de operatie te monitoren om te overleven. Om de acceptatie van de zuigeling na de operatie te vergroten, raden we aan waterstofperoxide en zoutoplossing na het hechten te gebruiken om achtergebleven bloedresten van huid en vacht te verwijderen en dunnere hechtingen (7-0) te gebruiken dan bij volwassenen (5-0). Deze twee strategieën leidden ertoe dat de moeder postoperatieve muizenzuigertjes accepteerde.
Daarnaast biedt onze studie richtlijnen over het veilig gebruik van anesthesie en analgesie bij babyoperaties. Dit is cruciaal, omdat pasgeborenen en muizen niet zo goed bestand zijn tegen doseringen van analgesie en anesthesie als volwassenen, wat kan leiden tot schadelijke ademhalings- en hartbijwerkingen6. We observeerden dat isoflurane, een orale anesthesie, en de combinatie van meloxicam en bupivacaïne-analgesie, subcutaan toegediend (respectievelijk intracuspuleer en onder de huid van het hoofd), goed werden verdragen door de zuigelingen en resulteerden in langdurige overleving. Bovendien hebben we eerder aangetoond dat de stereotaxische chirurgische procedure bij jonge muizen leidde tot vergelijkbare onderzoekstijden voor soortgenoten bij jonge muizen twee weken na de operatie, in vergelijking met leeftijdsgematchte controles die geen operatie ondergingen14. Deze resultaten wijzen daarom op voldoende herstel en geen duidelijke motorische tekorten na de operatie bij jonge muizen. Opmerkelijk is dat we tijdens de operatie niet de zuurstoftoevoer in het bloed hebben gemeten. Het zuurstofgehalte in het bloed moet worden gecontroleerd met een pulsoximeter om hypoxie17 te voorkomen.
Een ander cruciaal onderdeel van dit protocol is het gebruik van het stereotaxische coördinatensysteem gebaseerd op de lambda en de RCS op de sagittale middenlijn15. RCS is een herkenningspunt dat wordt gedefinieerd door de aansluiting van de sinus sagittale sinus superior en de sinus sinus superior langs de midlijn van de sagittale sinus. Van dit herkenningspunt is aangetoond dat het consequent lagere positionele variabiliteit vertoont dan andere dorsale herkenningspunten na globale uitlijning van de kop. Dit is het geval omdat de grotere afstand tussen RCS/lambda, vergeleken met bregma/lambda, de stabiliteit en reproduceerbaarheid van de horizontale hoeking15 tussen dieren verbetert.
Eerdere methoden voor het bestuderen van neuronale ontwikkeling richtten zich op virale strategieën op embryonale en P0-tijdstippen, of op genetische kruisingen voor lotkaartende cellen van belang (Tabel 1). Technieken zoals in utero elektroporatie en intracerebroventriculaire virale injecties missen nauwkeurige targeting. Door gerichte virale injecties uit te voeren bij P018, wordt dit probleem opgelost door een virale constructie nauwkeurig in een interessegebied te injecteren. Virale constructies kunnen echter na enkele weken cytotoxisch worden, wat leidt tot celdood. Daarom is het injecteren van een viraal construct in de hersenen van de pasgeborene voor longitudinale pubertetale studies die tot in de volwassenheid kunnen doorgaan, misschien niet ideaal. Daarom vermindert onze aanpak, waarbij de virale injectie anderhalve week na de geboorte plaatsvindt, het risico op celtoxiciteit tijdens de puberteit.
Ondanks de voordelen van onze aanpak blijven er verschillende overwegingen bestaan. Ten eerste moeten de hersencoördinaten die bij jonge muizen worden gebruikt, worden aangepast ten opzichte van die bij volwassenen. Bijvoorbeeld, bij P11-zuigelingen gebruiken we de volgende coördinaten om de MeApd te targeten: X= +2,03 mm, Y= -4,20 mm, Z= -5,08 mm; terwijl de coördinaten die bij volwassenen worden gebruikt X= +2,15 mm, Y= -5,00 mm, Z= -5,10 mm zijn. Helaas zijn er minder referenties in hersenatlas voor prepubertale muizen19 dan voor volwassen muizen (Allen Mouse Brain Atlas, mouse.brain-map.org en atlas.brain-map.org)20,21. Daarom moeten onderzoekers om succesvol virale targeting te bereiken in andere hersengebieden buiten de MeA, een geïnformeerde schatting van coördinaten verkrijgen en coördinatentests uitvoeren. Ten tweede moet rekening worden gehouden met de incubatietijd van AAV's. De optimale incubatietijd voor AAV-expressie in vivo is minimaal 2-3 weken. Aangezien in ons protocol stereotaxische chirurgie wordt uitgevoerd bij jonge muizen bij P11, kunnen onderzoekers pas na de operatie beginnen met het testen van muizen bij P25, na de optimale AAV-incubatieperiode.
Over het algemeen biedt dit protocol gedetailleerde richtlijnen voor onderzoekers om hersengebieden van belang met hoge precisie te targeten bij jonge muizen met behulp van virale vectoren. Deze aanpak is zeer voordelig, omdat het uiterst flexibel is: elke commerciële of op maat gemaakte AAV-constructie kan worden geïnjecteerd. Hierdoor kan het het bestuderen van moleculair gedefinieerde celsubpopulaties van belang en hun anatomische circuits, neuronale dynamiek en cellulaire rol vóór en na de puberteit tijdens een kritisch tijdsvenster dat samenhangt met het ontstaan van sociaal gedrag. Daarnaast is deze aanpak succesvol om niet alleen de amygdala te targeten, zoals hier getoond, maar ook andere subcorticale structuren, zoals de hypothalamus en corticale gebieden.
Openbaarmakingen
De auteurs hoeven geen belangenconflicten aan te geven.
Dankbetuigingen
Wij danken Dr. Andrew Gorman, Dr. Donna Webb en David Goulding van de Comparative Medicine Branch (CMB) van het National Institute of Environmental Health Sciences (NIEHS/NIH) voor waardevolle discussies over best practices op het gebied van anesthesie en analgesie bij knaagdieroperaties. We danken ook alle leden van de CMB bij de NIEHS voor hun uiterste zorg voor de proefpersonen en alle leden van de Neurobehavioral Circuits Group. Dit werk werd ondersteund door het Intramurale Onderzoeksprogramma van het National Institute of Environmental Health Sciences, National Institutes of Health (NIEHS/NIH) (ZIA ES103403) (J.E.L.). De bijdragen van de NIH-auteurs worden beschouwd als werken van de Amerikaanse overheid. De bevindingen en conclusies in dit artikel zijn die van de auteurs en weerspiegelen niet noodzakelijkerwijs de standpunten van de NIH of het Amerikaanse ministerie van Volksgezondheid en Human Services.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| #75 boortje | Drill Bit City | 10WS75-850FL | |
| 27 G naald | Covetrus | 60757 | |
| 3% waterstofperoxide | Swan | NDC 0809-0871-43 | |
| 32% paraformaldehyde | Electron Microscopy Sciences | 15714 | |
| AAV2-hSyn-DIO-mCherry | Addgene | 50459-AAV2 | |
| Alexa Fluor 488 AffiniPure Ezel (1:1000) Anti-Konijn IgG (H+L) | Jackson Immuno Research | 711-545-152 | |
| Analytische Weegschaal | Sartorius | 1102--15 | |
| Betadine | Avrio Pharmacy | NDC 67618-155-15 | |
| Bupivacaïne | Hospira | NDC 0409-1163-18 | |
| Cryostat | Leica | CM1950 | |
| Dissectiemicroscoop | Zeiss | 2149-629 | |
| oogzalf | Dechra Veterinary | Puralube | |
| Fluoromount Montage Media met DAPI | Thermo Fisher Scientific | 00-4959-52 | |
| Foxp2 Antilichaam (1:1000) | Atlas Antibody/Cosmo Bio | HPA000382 | |
| Foxp2cre+/- muizen | The Jackson Laboratory | 30541 | |
| Gasanesthesie Hoofdhouder en Hemeltje voor P12 Pups | David Kopf Instruments | 1934-C | |
| Glaskralen Sterilisator | Fisher Scientific | 10-000-632 | |
| Glas Kapillaar | World Precision Instruments | 504949 | |
| Glas Pipethouders | David Kopf Instruments | 1975-1.2-A | |
| Heatpad | Kent Scientific Corporation | RT-0520 | |
| Isofluraan | Piramal Critical Care | NDC 66794-017-10 | |
| Meloxicam | Pivetal Veterinary Supply | NDC 46066-937-13 | |
| Micro Boor | David Kopf Instruments | model 1911 boor | |
| Microfil Flexibele Naald | World Precision Instruments | MF28G67-5 | |
| Microscoopglazen | Thermo Fisher Scientific | 12-550-15 | |
| Minerale Olie | Sigma-Aldrich | M5904-500ML | |
| Nanoliter Injector | World Precision Instruments | NANOLITER2020 | |
| Niet-Absorbeerbare Naald | AD Surgical | S-N718SP13 | |
| Niet-Rapture Oor Bars | David Kopf Instruments | 1921-A | |
| Normaal Ezel Serum | Jackson ImmunoResearch | 017-000-121 | |
| O.C.T. Compound | Sakura | 4583 | |
| Stereotaxische Rig | David Kopf Instruments | 1900 | |
| Steriele Katoenen Swab | ULINE | S-21102 | |
| Steriele Drape | Busse Hospital Disposables | 696 | |
| Steriele Saline | Hospira | NDC 0409-1966-02 | |
| Steriele Water | Hospira | NDC 0409-4887-24 | |
| Sucrose | Fisher Chemical | S5-500 | |
| Spuit | Fisher Scientific | 50-252-2568 |
Referenties
- Andersen, S. L. Trajectories of brain development: Point of vulnerability or window of opportunity. Neurosci Biobehav Rev. 27 (1-2), 3-18 (2003).
- Zeiss, C. J. Comparative milestones in rodent and human postnatal central nervous system development. Toxicol Pathol. 49 (8), 1368-1373 (2021).
- Bell, M. R. Comparing postnatal development of gonadal hormones and associated social behaviors in rats, mice, and humans. Endocrinology. 159 (7), 2596-2613 (2018).
- Auger, A. P., Olesen, K. M. Brain sex differences and the organisation of juvenile social play behaviour. J Neuroendocrinol. 21 (6), 519-525 (2009).
- Barkley, M. S., Goldman, B. D. A quantitative study of serum testosterone, sex accessory organ growth, and the development of intermale aggression in the mouse. Horm Behav. 8 (2), 208-218 (1977).
- National Research Council (US) Committee on Guidelines for the Use of Animals in Neuroscience and Behavioral Research. Guidelines for the care and use of mammals in neuroscience and behavioral research. , The National Academies Press. (2003).
- Wang, C., Mei, L. In utero electroporation in mice. Methods Mol Biol. 1018, 151-163 (2013).
- Kim, J. Y., Grunke, S. D., Levites, Y., Golde, T. E., Jankowsky, J. L. Intracerebroventricular viral injection of the neonatal mouse brain for persistent and widespread neuronal transduction. J Vis Exp. (91), e51863(2014).
- Robertson, S. D., Plummer, N. W., De Marchena, J., Jensen, P. Developmental origins of central norepinephrine neuron diversity. Nat Neurosci. 16 (8), 1016-1023 (2013).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Prakash, N., Abu Irqeba, A., Corbin, J. G. Development and function of the medial amygdala. Trends Neurosci. 48 (1), 22-32 (2025).
- Raam, T., Hong, W. Organization of neural circuits underlying social behavior: A consideration of the medial amygdala. Curr Opin Neurobiol. 68, 124-136 (2021).
- Lischinsky, J. E., et al. Embryonic transcription factor expression in mice predicts medial amygdala neuronal identity and sex-specific responses to innate behavioral cues. Elife. 6, e21012(2017).
- Lischinsky, J. E., et al. Transcriptionally defined amygdala subpopulations play distinct roles in innate social behaviors. Nat Neurosci. 26 (12), 2131-2146 (2023).
- Chan, E., Kovacević, N., Ho, S. K., Henkelman, R. M., Henderson, J. T. Development of a high resolution three-dimensional surgical atlas of the murine head for strains 129s1/svimj and c57bl/6j using magnetic resonance imaging and micro-computed tomography. Neuroscience. 144 (2), 604-615 (2007).
- Tu, L., et al. Free-floating immunostaining of mouse brains. Methods Mol Biol. 176, 1-12 (2021).
- Thal, S. C., Plesnila, N. Non-invasive intraoperative monitoring of blood pressure and arterial pCO during surgical anesthesia in mice. J Neurosci Methods. 159 (2), 261-267 (2007).
- Chen, S. -Y., Kuo, H. -Y., Liu, F. -C. Stereotaxic surgery for genetic manipulation in striatal cells of neonatal mouse brains. J Vis Exp. (137), e57270(2018).
- Kronman, F. N., et al. Developmental mouse brain common coordinate framework. Nat Commun. 15 (1), 9072(2024).
- Dong, H. W. The Allen reference atlas: A digital color brain atlas of the C57BL/6J male mouse. , John Wiley & Sons. (2008).
- Paxinos, G., Franklin, K. B. The mouse brain in stereotaxic coordinates. , Academic Press. (2004).
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar