Deze studie had als doel de relatie te onderzoeken tussen het tijdstip van pesticidetoepassing en bijactiviteit, gemeten met bioakoestiek, in sojabonen. Analyse toonde aan dat pesticidetoepassing, ongeacht het tijdstip, geen effect had op bijenactiviteit, ontbladering of opbrengst. De bijenactiviteit was echter later op de dag en tijdens de piek van de sojabonenbloei hoger.
Onderzoeksartikel
Het beoordelen van de afstoting van een combinatie van insecticide-fungicide voor bijen met behulp van bioakoestiek
In dit artikel
Samenvatting
Samenvatting
Sojabonen (Glycine max (L.) Merr.) en bijen hebben een wederzijds voordelige relatie waarbij nectar wordt uitgewisseld voor bestuivingsdiensten, wat de zaadopbrengst kan verhogen. Het gebruik van pesticiden op sojabonen tijdens de bloei kan deze relatie echter verstoren door bijen te schaden en zo de opbrengstvoordelen van bestuivers te verminderen. Deze studie onderzocht hoe pesticidentoepassingen tijdens bloei het bijenfoerageren en de opbrengst van sojabonen beïnvloeden, met de nadruk op het aanbrengen van het tijdstip (midden op de ochtend vs. mid dag) en de bloeifase (R3—volledige bloei vs. R5—laat/einde van de bloei), vergeleken met een onbehandelde controle. Om dit te doen werd in 2023 en 2024 een experiment uitgevoerd in centraal Ohio, waarbij sojabonenpercelen werden bespoten met een bijengiftig mengsel van een pyrethroïde insecticide (0,9% alfa-cypermethrin) en een sterolbiosynthese-remmend fungicide (41,8% propiconazol) met behulp van een rugzakspuit. De bijenactiviteit werd gemonitord met audiorecorders die in elke grafiek werden geplaatst en geanalyseerd met het machine learning-instrument buzzDetect. Bioakoestische analyse toonde geen effect van pesticidetoepassing op bijenactiviteit, ongeacht het tijdstip. De bijenactiviteit was significant hoger tijdens de R3-groeifase, wanneer sojabonen op het hoogtepunt bloeiden, vergeleken met de R5-groeifase, toen de bloemen minder talrijk waren. De bijenactiviteit was aanzienlijk hoger rond het middaguur dan halverwege de ochtend. Er werden geen significante verschillen in sojaboonontbladering of opbrengst vastgesteld bij pesticidenbehandelingen. Deze resultaten geven inzicht in hoe het foerageren van bijen varieert gedurende het sojaseizoen en gedurende de dag, wat kan bijdragen aan aanbevelingen voor pesticidetoepassing om de blootstelling aan bijen te minimaliseren.
Inleiding
Pesticidentoepassingen kunnen bestuivers beïnvloeden die foerageren in landbouwsystemen 1,2,3. Het is mogelijk om het effect van pesticiden te beperken, althans gedeeltelijk, door toepassingen zo te timen dat blootstelling aan bestuivers wordt geminimaliseerd. Pesticiden waarvan bekend is dat ze giftig zijn voor bestuivers dragen etiketten die toepassing verbieden wanneer bijen actief zijn of wanneer bloemen in bloei staan. Deze richtlijn is in overeenstemming met de richtlijnen van de Amerikaanse EPA en de factsheetsvan de universiteit 4,5. Indien gevolgd, kan deze richtlijn het risico van pesticidetoepassing op bijen verminderen, maar geeft geen specifieker advies over welke groeistadia en tijden van de dag de grootste bijactiviteit hebben. Daarnaast is de regelgevende test die de labeltaal bepaalt uitgevoerd met enkele pesticiden en houdt geen rekening met synergetische interacties tussen pesticiden6.
Een "tankmix" is de combinatie van twee of meer pesticiden in één toepassing7 en wordt veel toegepast om de kosten van pesticidetoepassingen te verlagen en bodemverdichting te verminderen door de verplaatsing van zware toepassingsapparatuur over het veldte minimaliseren. Dit is echter potentieel een risicovolle praktijk voor bijen, aangezien de meeste pesticidencombinaties niet zijn geëvalueerd op hun potentiële effecten op niet-doelorganismen9. Desondanks wordt tankmenging veel gebruikt in veel teeltsystemen, waaronder kikkererwten10, pompoenen11, amandelen12 en sojabonen13,14.
Sojabonen zijn een gewas waarbij pesticiden in aquaria bijzonder belangrijk kunnen zijn voor de gezondheid van bijen. Bijen foerageren vaak op sojaboonbloemen voor nectar, en sojabonen kunnen een belangrijke bron van nectar zijn voor honingproductie 15,16,17,18. Ondanks dat sojabonen zichzelf bestuiven, is herhaaldelijk aangetoond dat insectenbestuiving de opbrengstverhoogt met 19.20.21. Een onderzoek onder sojaboontelers toonde aan dat ongeveer een derde van de toedieningen van bladfungiciden in tanks werd gemengd met bladinsecticiden22. Het wordt aanbevolen om bladfungiciden toe te passen rond het moment dat sojabonen volledig bloeien om veelvoorkomende ziekten zoals anthracnose, Cercospora-bladziekte, frogeye-bladvlek en sojaroestte bestrijden. De toevoeging van een insecticide aan een fungicide wordt door veel boeren gezien als een kosteneffectieve manier om hun gewas te beschermen door het risico op geleedpotige plagen later in hetseizoen 26 te verkleinen. Echter, een verscheidenheid aan bijen en andere niet-doelorganismen loopt risico wanneer een insecticide wordt toegevoegd aan fungicidetoepassingen tijdens sojabonenbloei 15,17,27.
Een fungicide-insecticide mengsel van bijzondere zorg is de combinatie van sterolbiosynthese-remmende (SBI) fungiciden en pyrethroïde insecticiden. Pyrethroïde insecticiden zijn natriumkanaalmodulatoren die zenuwimpulsen bij insectenverstoren. Veel pyrethroïden zijn zeer giftig voor bijen29,30. SBI-fungiciden remmen cytochroom P450 monooxygenase-enzymen (P450's) die belangrijk zijn voor de vorming van schimmelcelmembranen, maar kunnen ook detoxicatieve P450's remmen die pyrethroiden en andere xenobiotica metaboliseren bij bijen31. De combinatie van SBI-fungiciden en pyrethroïde insecticiden is aangetoond giftiger te zijn voor honingbijen en hommels dan elk pesticide op zichzelf32,33. Om deze reden kunnen toepassingen met pyrethroïde insecticiden en SBI-fungiciden in tanks een risico vormen voor bijen en andere bestuivers.
Eerder onderzoek heeft aangetoond dat bijen kunnen worden afgestoten door bepaalde pyrethroïde insecticiden34 en dat blootstelling aan sommige pyrethroïden de bijactiviteit35 kan verminderen. Er is echter ook gedocumenteerd dat fungiciden, wanneer ze gecombineerd worden met insecticiden, het afstotende effect36 kunnen maskeren.
Bioakoestiek, de studie van organismen aan de hand van de geluiden die ze maken, biedt een veelbelovende benadering om veranderingen in bijenactiviteit gedurende een dag of groeiseizoen te evalueren als reactie op pesticidentoepassingen. Door het kenmerkende geluid dat bijen maken tijdens de vlucht—zoemen—als proxy voor bijenactiviteit te gebruiken, kan bioakoestiek effectief worden gecombineerd met machine learning om bijenactiviteit in een bepaald gebied over een gewenste periode te beoordelen. De verzamelde audiogegevens bieden een verbeterde resolutie van bijenactiviteit en maken het mogelijk om dagelijks bijenfoerageerpatronen te onderzoeken. Daarnaast kunnen deze audiogegevens over langere periodes worden onderzocht om trends in activiteit gedurende een groeiseizoen te vinden. Beslissingen over wanneer pesticiden worden toegepast, worden op beide schalen genomen. Bioakoestiek biedt een informatierijke manier om bijenactiviteit te monitoren en vragen over bijenactiviteit binnen smalle tijdsvensters te beantwoorden. In vergelijking met traditionele methoden zoals sweep-netting en pan-trapping vereist een bioakoestische benadering minder arbeid, maakt continu bemonstering over langere periodes mogelijk en is zeer schaalbaar voor grotere onderzoekslocaties. Een van die toepassingen van bioakoestiek is het onderzoeken van pesticide-effecten op bijenactiviteit in landbouwvelden.
Hier wordt gewerkt aan het bepalen van de effecten die een "worst-case scenario" toepassing van een fungicide-insecticide aquariummix, toegepast op sojabonen tijdens bloei, kan hebben op bijenactiviteit en sojaopbrengst. De gebruikte pesticiden waren formuleringen die propiconazol, een SBI-fungicide, en alfa-cypermethrine, een pyrethroïde insecticide, bevatten. Beide pesticiden kunnen tijdens de bloei op sojabonen worden toegepast om schimmelziekten en sojabladluizen (Aphis glycines) te bestrijden. Er werd een bioakoestische benadering gebruikt om te bepalen of het toepassen van deze pesticidecombinatie op verschillende tijdsmomenten van de dag (midden op de ochtend of midden op de dag) en tijdens verschillende groeistadia van soja (piekbloei [R3] of late bloei [R5]) invloed had op de bijenactiviteit. Van bijen werd verwacht dat ze in grote aantallen foerageren en het meest vatbaar zouden zijn voor negatieve effecten van pesticidetoepassing tijdens het midden van de dag en tijdens de R3-groeifase.
Protocol
Experimenteel ontwerp en plotvoorbereiding
Het experiment werd uitgevoerd in juli en begin augustus 2023 en 2024. Gewoonlijk vindt het sojaboonenseizoen in Ohio ongeveer plaats van april tot november. De locaties die tijdens het groeiseizoen van 2023 werden gebruikt, bevonden zich in Clinton County (39.488, -83.769) en Union County (40.296, -83.283), Ohio. De locaties die tijdens het groeiseizoen van 2024 werden gebruikt, bevonden zich in Clinton County (39.489, -83.762), Preble County (39.893, -84.611) en Licking County (39.948, -82.501), Ohio.
Het experiment maakte gebruik van een willekeurig volledig blokontwerp om ruimtelijke effecten binnen het sojaboonveld te controleren. Binnen elk blok werden 5 percelen aangewezen voor een specifieke behandeling. De behandelingen bestonden uit twee groeistadia (R3 en R5) en twee aanbrengingstijden (midden in de ochtend en midden op de dag), en een onbehandelde controle. Dit resulteerde in de volgende 4 pesticidentoepassingen op percelen binnen elk blok: R3 midden in de ochtend, R3 midden op de dag, R5 op het midden van de ochtend, R5 op het middaguur. Toepassingen midden in de ochtend of midden op de dag vonden plaats binnen een venster van ~2 uur, met aanvragen rond 10:00 uur en middagapplicaties rond 12:30 uur. Naast de 5 behandelingspercelen binnen elk blok werden 3 percelen aangewezen als reservepercelen die in het geval van slechte vestiging of groei van sojabonen konden worden overgeplaatst naar de behandelingspercelen. De stadia van sojaboonplanten werden bepaald met behulp van stadiegidsen zoals die van de University of Minnesota Extension39.
Blokken sojabonenpercelen werden ongeveer 1,016 m (40 inch) uit elkaar geplaatst zodat onderzoekers gemakkelijk tussen hen konden lopen. De sojapercelen waren 1,9 m bij 8,5 m (0,0016 ha; 6,25 ft by 28 ft), en de sojaboonvariëteit die voor alle locaties werd gebruikt, was Pioneer P35T155E (Corteva, Indianapolis, IN). Op elk perceel werden 6 rijen geplant en stonden ze 38 cm uit elkaar. Er werd een zaaicapaciteit van 370.658 zaden per ha (150.000 zaden per acre) gebruikt. De bijen die bij het experiment betrokken waren, kwamen allemaal uit lokale populaties. Onderzoekers voegden geen aanvullende bijen toe. De auteurs hadden geen kennis van zowel stationaire als migrerende bijenboeren nabij de experimentlocaties. Alle materialen die voor het experiment zijn gebruikt, staan vermeld in de Materiaaltabel.
Pesticidebereiding
De gebruikte pesticiden waren Fitness-fungicide (41,8% propiconazol-werkzaam) en Fastac EC insecticide (10,9% alfa-cypermethrine werkzame stof). De toedieningssnelheden van pesticiden waren 6 fl oz/ac (438,47 mL/ha) voor het SBI-fungicide en 3,8 fl oz/ac (277,70 mL/ha) voor het pyrethroïde insecticide. Om de pesticiden voor toepassing voor te bereiden, werden 9,375 mL SBI-fungicide en 5,937 mL pyrethroïde insecticide gemengd met water om een eindvolume van 3 L als tankmengsel te bereiken. Chemicaliënresistente handschoenen werden gedragen bij het bereiden van het mengsel. De uiteindelijke concentratie SBI-fungicide in de tank was 3,125 mL per L. De uiteindelijke concentratie pyrethroïde insecticide in het aquarium was 1,979 mL per L.
Toepassing van pesticiden
Dit mengsel werd aangebracht op individuele sojaboonpercelen binnen elk blok met behulp van een op maat gemaakte handzame rugzakspuit. Het pesticidemengsel werd aangebracht bovenop het sojaboondak, met een snelheid van ~5 km per uur. Na het starten van het pesticide-aanbrengproces voor een bepaalde behandeling duurde het ~10 minuten voordat alle percelen de toepassing hadden ontvangen. Voor elke 3 L tank kan een oppervlakte van ~0,027 ha worden bedekt met het pesticide-mengsel. Het verbruikte spuitvolume per hectare is ongeveer 113 L. Dit betekent dat ~0,18 L van het tankmengsel per grafiek is aangebracht. Om te voorkomen dat pesticiden door wind naar andere percelen verdwijnen, werden toepassingen op winderige dagen vermeden. Volledige persoonlijke beschermingsmiddelen (shirt met lange mouwen en lange broek, chemicaliënresistente handschoenen, schoenen plus sokken en beschermende bril) werd gedragen bij het aanbrengen van het pesticide. Als er na afloop van een pesticide-toepassing een teveel pesticidemengsel was, werd dit volgens aanbevelingen van het staatsmilieubeheersingsagentschap verwijderd.
Opstelling/gebruik van de blokfluiter
De algemene opstelling en het gebruik van audiorecorders lijkt op een protocol beschreven door andere auteurs40. Handzame audiorecorders (Sony ICD-PX370) werden bevestigd aan plastic elektrische hekpennen met hakenband, en open-cel schuim werd als voorruit over de microfoon geplaatst. Een kegelvormige 3D-geprinte regenhoes werd ~3 cm boven de recorder aan de paal bevestigd om deze tegen het weer te beschermen.
Audiorecorders werden vervolgens ~24 uur voor de eerste pesticide toegediend in het midden van elk perceel geplaatst en minstens 24 uur na elke toepassing laten draaien. Twaalf recorders werden ingezet voor elke toepassingsdag, vier voor elke tijdstipgroep (mid-op-dag, midden-dag, controle) in zowel R3 als R5.
Audiogegevensverwerking
Alle audio-opnamen werden verwerkt via de machine learning-tool "buzzdetect"41 , die te vinden is op: https://github.com/OSU-Bee-Lab/buzzdetect. Dit hulpmiddel is getraind om het zoemend geluid van insecten te onderscheiden van andere geluiden die vaak voorkomen in de experimentele omgeving, zoals auto's, combines of vliegtuigen. Het programma is niet in staat het gezoem van Apis mellifera te onderscheiden van andere bijensoorten. BuzzDetect kan echter zoemgeluiden onderscheiden van andere niet-zoemende insectengeluiden, hoewel specifieke geluiden (zoals krekelgeluiden, meestal 's nachts) nog steeds moeilijk te onderscheiden zijn. Meer specifieke instructies voor het uitvoeren van buzzDetect zijn te vinden op: https://buzzdetect.readthedocs.io/en/latest/gui/. Na audio-analyse werd R42 gebruikt om het detectiepercentage binnen intervallen van 1 uur en 8 uur te berekenen.
Ontbladeringsgegevens
Bladerverwijderingsbeoordelingen werden uitgevoerd door bladeren van het bovenste sojaboonbladerdak visueel te beoordelen op 10 planten in elk perceel dat bij het experiment betrokken was, inclusief alle behandelingen en onbehandelde controlepercelen zoals aanbevolen door de University of Nebraska Extension43. Deze beoordelingen werden 24 uur na het gebruik van pesticiden uitgevoerd tijdens de R5-groeifase.
Opbrengstgegevens
Sojabonen werden geoogst en de opbrengst werd gemeten in bushels per acre met behulp van een maaidorser en een graanmeterweegsysteem. De opbrengstmetingen werden aangepast naar 13% vocht. De percelen hadden elk 6 rijen; alleen de 4 middelste rijen werden geoogst voor opbrengstmetingen.
Statistische analyse
Alle statistieken zijn uitgevoerd in R42. De gegevens werden geanalyseerd met ofwel lineaire modellen met gemengde effecten via het lme4-pakket44 of bèta-regressie via het glmmTMB-pakket45. De ruwe gegevens van BuzzDetect zijn beschikbaar in het aanvullende materiaal. Voor deze studie werden drie hoofdtypen gegevens geanalyseerd. Gemiddelde bijenactiviteitsgegevens over 1 uur en 8 uur na het toedienen van pesticiden, de opbrengst van elk sojaperceel en de bladloof van sojabonen waargenomen in de R5-groeifase.
De gemiddelde bijactiviteit werd verkregen door het aandeel van de positieve tijd voor bijenzoem in een venster van 8 uur of 1 uur te berekenen. Het venster van één uur is bedoeld om de acute effecten van pesticidetoepassing op bijenactiviteit te schatten, terwijl het venster van acht uur bedoeld is om de acute en residuele effecten te schatten. Resterende toxiciteitsgegevens zijn niet beschikbaar voor alfa-cypermethrine, maar de resterende toxiciteit voor andere pyrethroiden is gerapporteerd op ~8 uur na de eerste toepassing46. Omdat de berekening van bijenactiviteit een verhouding is, werden verschillen in activiteit geanalyseerd met bètaregressie uitgevoerd met het R-pakket "glmmTMB". De modellen onderzochten de gemiddelde detectiepercentages voor 1 uur of 8 uur na het toedienen van een pesticide en hoe deze varieerden bij het vergelijken van behandelde percelen met controlepercelen (de "gespoten" conditie), sojaboongroeistadium, het tijdstip van de dag waarop het pesticide werd aangebracht, of een groeistadium en tijdstip van de dag interactie. De vergelijking tussen behandelde en controlegrafieken wordt weergegeven met de variabele "gespoten" in zowel de 1-uurs- als de 8-uursmodelformules.
In het 1-uur venster model waren de vaste effecten de "gespoten" conditie, groeistadium, tijdstip van de dag en een groeifase en tijdstip van de interactie. Het model had zowel een jaar als een jaar per locatie interactieterm die als willekeurige effecten werden ingebracht. De volledige modelformule was:
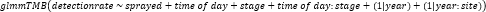 (1)
De variabele detectiesnelheid weerspiegelt de gemiddelde bijendetecties die werden waargenomen ten opzichte van het totale waarnemingsvenster—in dit geval 1 uur. De variabele die wordt gespoten komt overeen met de vraag of een perceel een pesticide heeft ontvangen of dat het een onbehandeld controleperceel was. De variabele time_of_day komt overeen met de vraag of de detecties zijn vastgelegd na de pesticidentoediening midden in de ochtend of het middag gedurende de gewenste tijdsbestek. De variabele fase komt overeen met de groeifase waarin de detecties zijn vastgelegd.
In het 8-uursvenster model waren de vaste effecten de groeifase en de "gespoten" conditie. Het 8-uursmodel bevat nachturen voor de middagsproeitijd, wat zorgt voor een oneerlijke vergelijking tussen de mid-ochtend- en middagsproeitijden. Dit komt doordat de aanbrengingstijden rond het middaguur niet de volledige 8 uur van residuele toxiciteit testen doordat bijen 's avonds inactief zijn, een groot deel van deze 8-uur vensters. Daarom werden middagapplicaties uitgesloten van het model, evenals de termen "tijd van de dag" en "tijd van de dag:podium". De volledige formule voor dit model was:
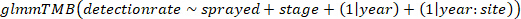 (2)
De variabelen detectiesnelheid, gespoten en stadium hebben in deze formule dezelfde betekenis als in de formule die wordt gebruikt voor de 1-uur vensters. Het enige verschil is dat de variabele detectiesnelheid wordt berekend voor een venster van 8 uur. De opbrengstgegevens werden geanalyseerd met een lineair model met gemengde effecten. Het model keek naar bushels per acre per perceel en hoe de opbrengst per behandeling varieerde. Het vaste effect in het model was de behandeling, en locatie en jaar werden als willekeurige effecten gepast. De volledige modelformule wordt geschreven als:
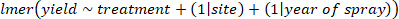 (3)
Bladverlies van sojabonen werd gemeten als het gemiddelde percentage ontbrekende bladoppervlak per perceel. Een lineair model met gemengde effecten werd gebruikt om het effect van het tijdstip van de pesticide op het ontbladeringspercentage te vergelijken. Het vaste effect in het model was het tijdstip waarop de percelen werden bespoten. Locatie en jaar werden als willekeurige effecten ingebracht. De volledige modelformule is:
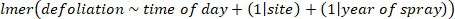 (4)
Alle protocollen die in deze studie zijn gebruikt, zijn samengevoegd in Aanvullend Bestand 1.
Resultaten
Activiteit
Het 8-uur venstermodel (Figuren 1A–B) toonde significante verschillen in bijenactiviteit afhankelijk van de groeifase van de sojabonen (Chi kwadraat = 74,35, P < 0,001, df = 1), met significant hogere gemiddelde detectiepercentages in de R3-fase vergeleken met de R5-fase voor de 8 uur na pesticidetoepassing. Er werden geen significante verschillen in bijenactiviteit waargenomen tussen controleplots en die welke de tankmix ontvingen (Chi-kwadraat = 0,053, P = 0,82, df = 1). Voor deze analyse was de gemiddelde kwadraatfout 0,00094. De varianties voor de parameters die in het experiment betrokken waren, waren: gespoten = 0,021 en fase = 0,041.
Analyse van audiogegevens voor 1 uur na het toedienen van pesticiden (Figuren 2A–B) toonde significante verschillen aan tussen bijenactiviteit afhankelijk van het stadium van de sojabonen (Chi kwadraat = 12,72, P < 0,001, df = 1) en het tijdstip van de dag (Chi kwadraat = 9,97, P = 0,0016, df = 1). De gemiddelde detectiegraad was hoger tijdens de R3-fase dan in de R5-groeifase. De gemiddelde detectiegraad was hoger in het uur na de middagspuittijd dan in het uur na de mid-ochtend sproeitijd. Er werden geen significante verschillen in bijenactiviteit waargenomen wanneer het pesticide-aquariummengsel werd aangebracht (Chi-kwadraat = 0,62, P = 0,43, df = 1). Er werden geen significante verschillen waargenomen met het tijdstip van de dag en de interactieterm in groeifase (Chi kwadraat = 2,52, P = 0,11, df = 1). Voor deze analyse was de gemiddelde kwadraatfout 0,00094. De schattingen van variantie voor parameters die bij de analyse betrokken waren, waren: gespoten = 0,027, tijd van de dag = 0,040, fase = 0,090, tijd van de dag: fase = 0,14.
Wanneer de audio-detecties over alle dagen in het experiment worden gemiddeld, tonen ze een dagelijkse trend in detectiesnelheden die verschillen vertoont wanneer ze worden gescheiden op de groeifase van sojabonen (Figuur 3). Voor beide stadia beginnen de detectiesnelheden snel toe te nemen vanaf ~10:00 en nemen snel af bij ~17:00. Deze trend is echter veel duidelijker in de R3-groeifase. Bovendien bereiken de detectiegraden een veel hogere piek bij ~14:00 in R3 dan in R5.
Opbrengstgegevens
Analyse van de opbrengstgegevens (Figuur 4) gaf niet aan dat er verschillen waren in sojaopbrengst tussen behandelingen. Er werden geen significante verschillen gevonden voor de sojaopbrengst bij welk behandelingstype dan ook (F = 0,16, df = 4, 90,86; P = 0,96).
Ontbladering
Analyse van defoliatiegegevens (Figuur 5) gaf geen significante verschillen in defoliatie aan op basis van het tijdstip van pesticidentoediening (F = 3,046, df = 2,56; P = 0,055). De bladaflozing was over het algemeen laag (meestal <5%).
BESCHIKBAARHEID GEGEVENS:
Alle ruwe gegevens die worden gebruikt om grafieken te maken en statistische analyses uit te voeren, zijn opgenomen in de sectie aanvullende materialen.
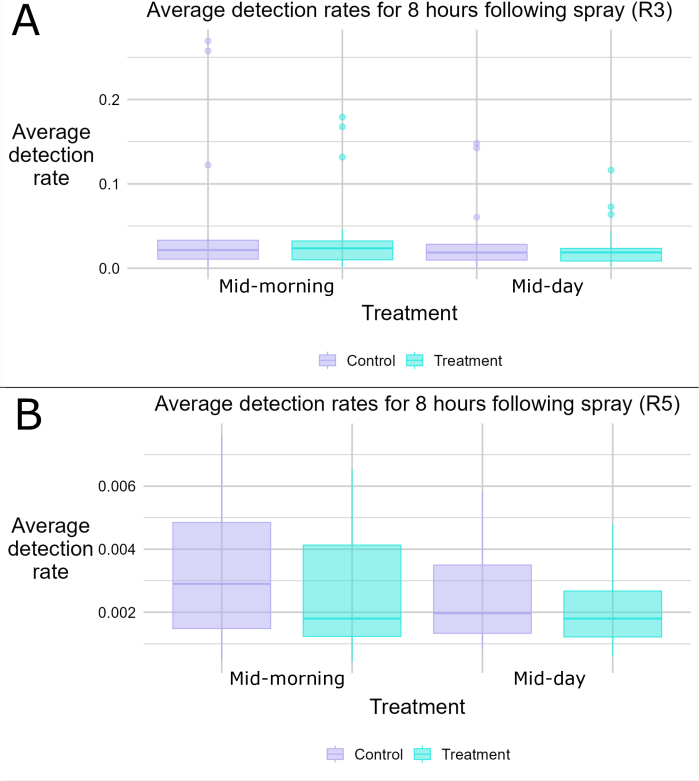
Figuur 1: Verdeling van gemiddelde detectiepercentages voor de 8 uur na het toedienen van pesticiden. (A) Verdeling van gemiddelde detectiepercentages (geblokkeerd door 10 minuten) voor de 8 uur na het toedienen van het pesticide tijdens de R3-groeifase. (B) Verdeling van gemiddelde detectiepercentages (gebagd met 10 minuten) voor de 8 uur na de pesticidetoepassing tijdens de R5-groeifase. De controlegroepen kregen geen pesticidentoediening. Er zijn geen statistisch significante verschillen tussen groepen. Alle boxplots tonen een mediane lijn, bovenste en onderste kwartielen (boven en onderaan van vakken), en snorharen (minimum en maximum). Klik hier om een grotere versie van deze figuur te bekijken.
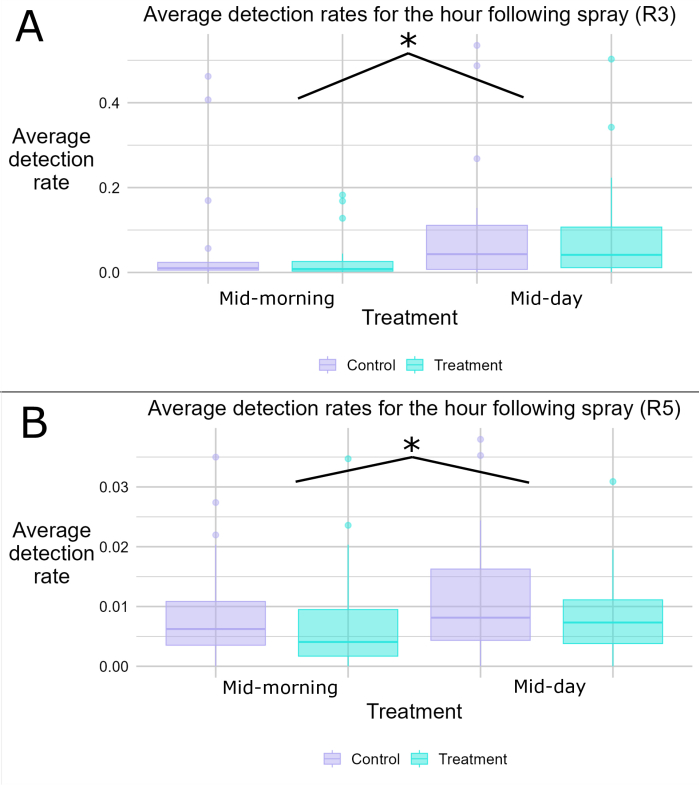
Figuur 2: Verdeling van gemiddelde detectiepercentages voor de 1 uur na het aanbrengen van pesticiden. (A) Verdeling van de gemiddelde detectiesnelheden van bijen (gekort door 10 minuten) gedurende 1 uur na de pesticidetoepassing tijdens de R3-groeifase. De controlegroepen kregen geen pesticidentoediening. (B) Verdeling van gemiddelde detectiepercentages van bijen (geblokkeerd door 10 minuten) gedurende 1 uur na het toedienen van pesticiden tijdens de R5-groeifase. De controlegroepen kregen geen pesticidentoediening. Voor zowel R3 als R5 was er een statistisch significant verschil in gemiddelde detectiepercentages tussen midden- en middaggroepen. Alle boxplots tonen een mediane lijn, bovenste en onderste kwartielen (boven en onderaan van vakken), en snorharen (minimum en maximum). Klik hier om een grotere versie van deze figuur te bekijken.
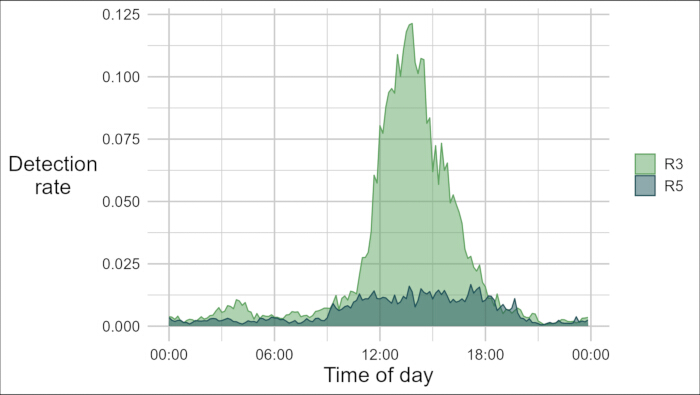
Figuur 3: Gemiddelde detectiesnelheden van alle audiorecorders in de R3- of R5-groeifase. De detectiesnelheden (gebogneerd door 10 minuten) waren gemiddeld over alle audiorecorders die in het experiment werden gebruikt en gescheiden op groeistadium. Valse positieven bij buzzdetecties door krekelgeluiden werden waargenomen tijdens de nachturen, vooral ~4:30 uur. De curves voor elke groeifase zijn niet op elkaar gestapeld. Klik hier om een grotere versie van deze figuur te bekijken.
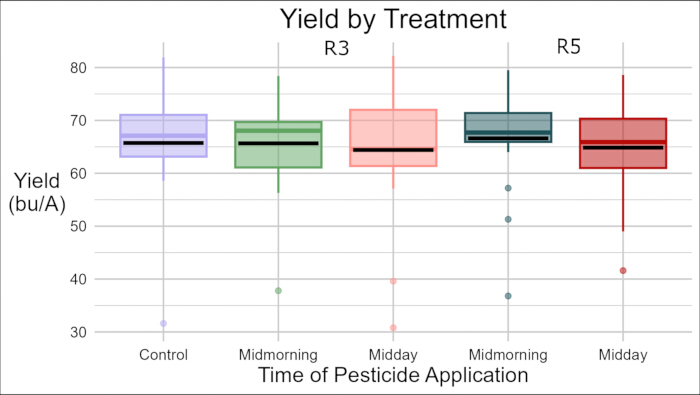
Figuur 4: Opbrengst in bushels per acre sojaboon voor elke behandeling. De controlegroep kreeg geen pesticide toegediend. Er zijn geen statistisch significante verschillen tussen groepen. Alle boxplots tonen een gemiddelde lijn (zwarte balken), mediaanlijn, bovenste en onderste kwartielen (boven- en onderkant van vakken), en snorharen (minimum en maximum). Klik hier om een grotere versie van deze figuur te bekijken.
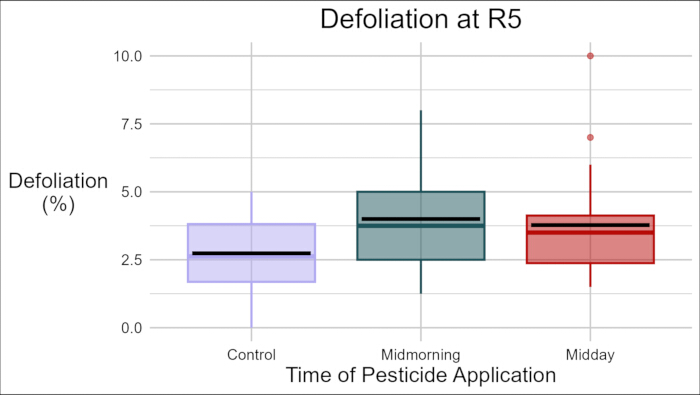
Figuur 5: Bladverliesniveaus beoordeeld in de R5-groeifase. Ontbladering, uitgedrukt als het percentage bladoppervlak dat ontbreekt voor sojabladeren, werd gegroepeerd op basis van het tijdstip van pesticidetoepassing tijdens de R5-groeifase. De controlegroep kreeg geen pesticide toegediend. Er zijn geen statistisch significante verschillen tussen groepen. Alle boxplots tonen een gemiddelde lijn (zwarte balken), mediaanlijn, bovenste en onderste kwartielen (boven- en onderkant van vakken), en snorharen (minimum en maximum). Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullend Bestand 1: De protocollen die nodig zijn om de experimenten te repliceren zijn in dit document vermeld. Klik hier om dit bestand te downloaden.
Discussie
Hoewel het verkennen van plagen en het toedienen van pesticiden volgens een IPM-kader wordt aanbevolen, waren de pesticidentoepassingen in het experiment profylactisch, uitgevoerd op specifieke tijden tijdens het groeiseizoen volgens een vooraf bepaald schema in plaats van op basis van de druk van het ongedierte. Het is mogelijk dat de opbrengst en bladverlies in deze studie na het gebruik van pesticiden onaangetast bleven, omdat de plaagdruk onder de economische drempelwaarden lag. De bladverlies was in de meeste gevallen <5%, wat onder de economische schadedrempel van 15% ligt voor de voortplantingsfasen van sojaboon47. Er was geen duidelijk effect van de profylactische insecticide-fungicide toepassing op de sojabonenopbrengst of op de mate van bladverlies die werd waargenomen tijdens de R5-groeifase. Dit suggereert dat het pesticide de opbrengst van sojabonen niet heeft behouden of insectenherbivoren heeft ontmoedigd. Er is echter geen plaagonderzoek gedaan, en de resultaten van de ontbladering suggereren dat er weinig insectenplagen waren om in deze velden te bestrijden, wat overeenkomt met de bevindingen van andere auteurs48. Evenzo zagen andere auteurs22 vergelijkbare resultaten waarbij het gebruik van pesticiden in tanks de sojaopbrengst niet verhoogde wanneer er weinig tot geen insectendruk was. Deze resultaten suggereren dat er beperkte voordelen zijn aan het toevoegen van een insecticide aan een fungicide-toepassing wanneer de plaagdruk laag is. Daarom kan het toevoegen van insecticide een onnodige uitgave zijn, vooral voor profylactische toepassingen.
Gevallen van bijenzoemen, die werden gebruikt als proxy voor bijenactiviteit in sojabonen, werden niet beïnvloed door het toepassen van de insecticide-fungicide tankmix bij de mid-ochtend- of middag-doseringen, of tijdens de R3- of R5-fasen. Daarnaast werd geen vermindering van bijenactiviteit waargenomen voor de observatievensters van 1 uur of 8 uur na het toedienen van pesticiden. Dit is verrassend, aangezien eerder onderzoek een afstotend effect van pyrethroïde insecticiden34 heeft gedocumenteerd. Dit kan komen doordat het pyrethroïde insecticide werd gecombineerd met een fungicide. Het combineren van deze twee pesticidenklassen is eerder aangetoond dat het de afstotingvan 36 vermindert.
Het is vermeldenswaard dat dit experiment de potentiële effecten van het pesticidegebruik op honingbijen (Apis mellifera) die het in het veld tegenkwamen, niet heeft gemeten. Het ontbreken van het effect van het pesticide op de bijenactiviteit betekent niet noodzakelijk dat de honingbijen die in deze percelen foerageren niet werden beïnvloed door de blootstelling aan pesticiden. Het is mogelijk dat honingbijen die in het veld foerageren het pesticide tegenkwamen, bleven foerageren en later negatieve effecten ondervonden. Studies hebben negatieve effecten van tankmengsels49 en pyrethroïde insecticiden30 op honingbijen gedocumenteerd. Het is mogelijk dat de honingbijen negatief werden beïnvloed, maar dit effect vertaalde zich niet in minder activiteit in het veld. Dit suggereert dat honingbijen mogelijk geen vermijdingsgedrag vertonen voor sommige pesticiden/combinaties die ze in het veld tegenkomen. Andere bijen kunnen worden gevonden op sojavelden, zoals hommels of solitaire bijen15,17. Deze bijen worden waarschijnlijk onevenredig getroffen door pesticidentoepassingen die plaatsvinden wanneer zesojaboonbloemen foerageren.
Dit experiment gaf wel inzicht in wanneer bijen actief zijn in sojavelden. Bijen waren actiever tijdens de piek van sojabonenbloei in de R3-fase dan bij de R5-fase, wat overeenkomt met de resultaten van andere auteurs40. Daarnaast suggereren de gegevens dat bijen actiever zijn in sojabonen midden op de dag dan in de ochtend. Door dit experiment is een hoogresolutiebeeld van bijenactiviteit gedurende een dag en gedurende het groeiseizoen gemaakt. Dit onthult belangrijke patronen van bijenactiviteit in sojavelden, wat belangrijk zal zijn voor het opstellen van pesticide-etiketten en aanbevelingen. Deze resultaten suggereren dat pesticidenapplicatoren het spuiten tijdens R3 en midden op de dag moeten vermijden om de blootstelling aan pesticiden voor bijen te verminderen. Sojaboontelers moeten echter alleen bladinsecticiden toepassen wanneer dat nodig is, afhankelijk van de activiteit van plaaginsecten en economische drempelwaarden.
Openbaarmakingen
Alle auteurs geven geen belangenconflicten op.
Dankbetuigingen
De auteurs bedanken Allen Geyer van Ohio State University voor veldaanplanting, beheer en oogst, en Arthur Rodrigues de Souza, James Underwood en Allison Davis voor hun hulp bij veldwerk. Dit werk werd gefinancierd door de Agriculture and Food Research Initiative van het National Institute of Food and Agriculture van het Amerikaanse ministerie van Landbouw onder subsidie 2022-67019-36437 en het Internal Grant Program van The Ohio State University College of Food, Agricultural, and Environmental Science (Project #2023-013). Onderzoeksondersteuning werd verstrekt door staats- en federale middelen die werden toegewezen aan het Ohio State University, College of Food, Agricultural, and Environmental Sciences, Ohio Experiment Station (OHO01277; OHO01355-MRF).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| ½ in. (1 cm) zachte pakkingschuim | Uline | S-8350 | Microfoonhoes om als windscherm te dienen, gesneden tot 8 x 5 cm |
| 1.75 mm PETG+ 3D Printer Filament - True Red | Inland (Microcenter) | PETG+175FR1 | Filament voor het maken van een recorderhoes, geprint in vaasmodus, met behulp van https://www.thingiverse.com/thing:7319146/files |
| 4 ft. (1.2 m) instap omheiningspaal voor omheiningsdraad | Fi-Shock (Tractor Supply Co.) | 3600956 | Paal voor het vasthouden van een audiorecorder |
| 6 in. (15 cm) herbruikbare kabelbinders | VELCRO | NA | Voor het bevestigen van de recorder aan de paal |
| AAA batterijen | Procell | NA | Voor het voeden van handbediende audiorecorders |
| Fastac EC insecticide | BASF Ag Products | EPA: 7969-298 | Pyrethroid insecticide gebruikt tijdens het experiment. |
| Fitness Fungicide | Loveland products, Inc. | EPA: 34704-1031 | Sterol Biosynthese Remmende (SBI) fungicide gebruikt tijdens het experiment. |
| Grain Gauge H2 weegsysteem | HarvestMaster | NA | Voor het verzamelen van opbrengstgegevens van onderzoekspercelen |
| Handbediende audiorecorder | Sony | ICD-PX370 | Audiorecorders gebruikt tijdens het experiment. Specifiek gebruikt om audiogegevens in sojabonenvelden vast te leggen. |
| Pioneer P35T155E | Corteva | P35T155E | Sojaboonvariëteit gebruikt tijdens het experiment. |
| Quantum Core plot combine | Wintersteiger | NA | Combine gebruikt voor het oogsten van sojabonen tijdens het experiment. |
| Regenhoes | N/A | NA | Voor het beschermen van audiorecorders tegen regen. Te vinden op: https://www.thingiverse.com/thing:7319146 |
| Gumbanden - 2 x 1⁄16 in. (127 x 1.6 mm), #14 | Uline | S-14723 | Voor het bevestigen van het schuimwindscherm aan de recorder |
| SeedPro 360 | ALMACO | NA | Voor het planten van sojabonenzaden in onderzoekspercelen |
Referenties
- Raine, N. E., Rundlöf, M. Pesticide Exposure and Effects on Non-Apis Bees. Annual Review of Entomology. , (2024).
- Vanbergen, A. J. Initiative the IP. Threats to an ecosystem service: pressures on pollinators. Frontiers in Ecology and the Environment. , (2013).
- Zhao, G. P., Yang, F. W., Li, J. W., Xing, H. Z., Ren, F. Z., et al. Toxicities of Neonicotinoid-Containing Pesticide Mixtures on Nontarget Organisms. Environmental Toxicology and Chemistry. , (2020).
- Andrews, H., Rose, M. A. Ohio State University Extension. Protecting Pollinators While Using Pesticides. , (2018).
- U.S. Environmental Protection Agency’s Policy to Mitigate the Acute Risk to Bees from Pesticide Products. , United States Environmental Protection Agency. (2017).
- Lydy, M., Belden, J., Wheelock, C., Hammock, B., Denton, D. Challenges in Regulating Pesticide Mixtures. Ecology and Society. , (2004).
- Gandini, E. M. M., Costa, E. S. P., dos Santos, J. B., Soares, M. A., Barroso, G. M., et al. Compatibility of pesticides and/or fertilizers in tank mixtures. Journal of Cleaner Production. , (2020).
- Fishel, F. M. Tank-Mixing Pesticides without Disasters. EDIS. , (2020).
- Tosi, S., Sfeir, C., Carnesecchi, E., vanEngelsdorp, D., Chauzat, M. P. Lethal, sublethal, and combined effects of pesticides on bees: a meta-analysis and new risk assessment tools. Science of The Total Environment. , (2022).
- Pal, V., Singh, G., Dhaliwal, S. S. Effects of Sequential and Tank Mix Applications of Zinc, Iron and Nitrogen on Symbiotic Parameters, Productivity and Economics of Chickpea (Cicer arietinum L.) Under Field Conditions. J Soil Sci Plant Nutr. , (2023).
- Kammler, K. J., Walters, S. A., Young, B. G. Halosulfuron Tank Mixtures and Adjuvants for Weed Control in Pumpkin Production. , (2008).
- Shannon, B., Walker, E., Johnson, R. M. Toxicity of spray adjuvants and tank mix combinations used in almond orchards to adult honey bees (Apis mellifera). Journal of Economic Entomology. , (2023).
- Younesabadi, M., Das, T. K., Sharma, A. R. Effect of tillage and tank-mix herbicide application on weed management in soybean (Glycine max.). IJA. , (2013).
- Bruff, S. A., Shaw, D. R. Tank-mix Combinations for Weed Control in Stale Seedbed Soybean (Glycine max.). Weed Technology. , (2017).
- Gill, K. A., O’Neal, M. E. Survey of Soybean Insect Pollinators: Community Identification and Sampling Method Analysis. Environ Entomol. , (2015).
- Lin, C. H., Suresh, S., Matcham, E., Monagan, P., Curtis, H., et al. Soybean is a Common Nectar Source for Honey Bees (Hymenoptera: Apidae) in a Midwestern Agricultural Landscape. Journal of Economic Entomology. , (2022).
- Rondeau, S., Bosanac, L. F., Raine, N. E., Forrest, J. R. K. Wild bees and wasps (Hymenoptera) visiting soybean (Fabaceae) flowers in eastern Canada. The Canadian Entomologist. , (2025).
- Robacker, D. C., Flottum, P. K., Sammataro, D., Erickson, E. H. Effects of climatic and edaphic factors on soybean flowers and on the subsequent attractiveness of the plants to honey bees. Field Crops Research. , (1983).
- Blettler, D. C., Fagúndez, G. A., Caviglia, O. P. Contribution of honeybees to soybean yield. Apidologie. , (2018).
- Kengni, S. B., Tchuenguem Fohouo, F. N., Ngakou, A. Impact of the foraging activity of Apis mellifera adansonii Latreille (Hymenoptera: Apidae) and Bradyrhizobium fertilizer on pollination and yield components of Glycine max L. (Fabaceae) in the field. IJBR. , (2015).
- De O. Milfont, M., Rocha, E. E. M., Lima, A. O. N., Freitas, B. M. Higher soybean production using honeybee and wild pollinators, a sustainable alternative to pesticides and autopollination. Environ Chem Lett. , (2013).
- Ng, S. J., Lindsey, L. E., Michel, A. P., Dorrance, A. E. Effect of Mid-Season Foliar Fungicide and Foliar Insecticide Applied Alone and In-Combination on Soybean Yield. Crop, Forage & Turfgrass Management. , (2018).
- Hershman, D. E., Sikora, E. J., Giesler, L. J. Soybean Rust PIPE: Past, Present, and Future. Journal of Integrated Pest Management. , (2011).
- Swoboda, C., Pedersen, P. Effect of Fungicide on Soybean Growth and Yield. Agronomy Journal. , (2009).
- Akem, C. N. The effect of timing of fungicide applications on control of frogeye leaf spot and grain yield of soybeans. Eur J Plant Pathol. , (1995).
- Bueno, A. F., Panizzi, A. R., Hunt, T. E., Dourado, P. M., Pitta, R. M., et al. Challenges for Adoption of Integrated Pest Management (IPM): the Soybean Example. Neotrop Entomol. , (2021).
- St Clair, A. L., Dolezal, A. G., Cass, R. P., Hendriksma, H. P., Stein, D. S., et al. Insecticide application prevents honey bees from realizing benefits of native forage in an agricultural landscape. Sci Total Environ. , (2025).
- Mode of Action Classification. , Insecticide Resistance Action Committee. (2024).
- Kumar, G., Singh, S., Nagarajaiah, R. P. K. Detailed Review on Pesticidal Toxicity to Honey Bees and Its Management. Modern Beekeeping - Bases for Sustainable Production. , (2020).
- Liu, Q., He, Q., Zhang, S., Chai, Y., Gao, Q., et al. Toxic effects of detected pyrethroid pesticides on honeybee (Apis mellifera ligustica). Sci Rep. , (2022).
- Haas, J., Nauen, R. Pesticide risk assessment at the molecular level using honey bee cytochrome P450 enzymes: a complementary approach. Environ Int. , (2021).
- Iverson, A., Hale, C., Richardson, L., Miller, O., McArt, S. Synergistic effects of three sterol biosynthesis inhibiting fungicides on the toxicity of a pyrethroid and neonicotinoid insecticide to bumble bees. Apidologie. , (2019).
- Schuhmann, A., Schmid, A. P., Manzer, S., Schulte, J., Scheiner, R. Interaction of Insecticides and Fungicides in Bees. Frontiers in Insect Science. , (2022).
- Rieth, J. P., Levin, M. D. The repellent effect of two pyrethroid insecticides on the honey bee. Physiological Entomology. , (1988).
- Rieth, J. P., Levin, M. D. Repellency of Two Phenylacetate-Ester Pyrethroids to the Honeybee. Journal of Apicultural Research. , (1989).
- Thompson, H., Wilkins, S. Assessment of the synergy and repellency of pyrethroid/fungicide mixtures. Bulletin of Insectology. , (2003).
- Ekabote, S., Raj, P., Divyajyothi, U. In Vivo Bio-efficacy and Phytotoxicity of Propiconazole + Difenoconazole on Soybean. Chemical Science Review and Letters. , (2020).
- Hodgson, E. W., McCornack, B. P., Tilmon, K., Knodel, J. J. Management Recommendations for Soybean Aphid. J Integr Pest Manag. , (2012).
- Naeve, S. L. Soybean growth stage. , (2018).
- Forrester, K. C., Lin, C. H., Johnson, R. M. Measuring factors affecting honey bee attraction to soybeans using bioacoustics monitoring. Journal of Insect Science. , (2024).
- Hearon, L. E., Johnson, L. H. P., Underwood, J., Lin, C. H., Johnson, R. M. buzzdetect: an open-source deep learning tool for automated bioacoustic pollinator monitoring. J Insect Sci. , (2025).
- R Core Team. R: A Language and Environment for Statistical Computing. , (2024).
- Wright, R., McMechan, J. Estimating Soybean Leaf Defoliation. , (2017).
- Bates, D., Mächler, M., Bolker, B., Walker, S. Fitting Linear Mixed-Effects Models Using lme4. Journal of Statistical Software. , (2015).
- Brooks, M. E., Kristensen, K., Benthem, K. J. van, Magnusson, A., Berg, C. W., et al. glmmTMB Balances Speed and Flexibility Among Packages. The R Journal. , (2017).
- US EPA. Residual Time to 25% Bee Mortality (RT25) Data. , (2014).
- Hayashida, R., Hoback, W. W., de Freitas Bueno, A. A test of economic thresholds for soybeans exposed to stink bugs and defoliation. Crop Protection. , (2023).
- Zelaya Mejia, W. D., Tilmon, K., Ortez, O., Lindsey, L. E. Soybean yield was not influenced by foliar insecticide application. Crop, Forage & Turfgrass Management. , (2024).
- Wernecke, A., Frommberger, M., Forster, R., Pistorius, J. Lethal effects of various tank mixtures on honey bees. J Consum Prot Food Saf. , (2019).
Herprints en machtigingen
