Dit protocol presenteert een gedetailleerde methode om hoogwaardige eencelsuspensies te isoleren uit zowel gezond als tumordragend muislongweefsel. Dit protocol kan worden toegepast op scRNA-seq, flowcytometrie-analyse en primaire celisolatie.
Methodenartikel
Geoptimaliseerde voorbereiding van heel muis tumordragend longweefsel voor flowcytometrie en single-cell RNA-sequencing
In dit artikel
Samenvatting
Samenvatting
NSCLC is verantwoordelijk voor ongeveer 85% van de longkankers, en Kirsten-rattensarcoom (KRAS) is het meest voorkomend gemuteerde gen in NSCLC. Hoewel het beheer van NSCLC de afgelopen jaren aanzienlijk is verbeterd, zijn de heterogeniteit en plasticiteit nog steeds onvolledig begrepen. Single-cell RNA-sequencing (scRNA-seq) is een essentieel hulpmiddel geworden voor het dissecten van cellulaire heterogeniteit in complexe weefsels zoals de long. Het produceren van hoogwaardige single-cel suspenties uit tumordragend longweefsel is echter een uitdaging, vooral tijdens tumorvorming wanneer het weefsel fibrotisch en heterogeen wordt. Een belangrijke vereiste voor succesvolle scRNA-seq is de voorbereiding van levensvatbare individuele cellen met minimale verwerkingsstress of schade. Hier wordt een gedetailleerd stapsgewijs protocol gepresenteerd voor het isoleren van hoogwaardige single-cell suspenties uit zowel gezond als tumordragend muizenlongweefsel in een KrasG12D; tdTomato verslaggever, muismodel. De procedure omvat weefselperfusie, gecontroleerde enzymatische vertering, zachte mechanische dissociatie, rode bloedcellyse, filtratie en levensvatbaarheidsbeoordeling, en bereikt >85% levensvatbare cellen vóór scRNA-seq. Ten slotte worden de tdTomato+ tumorcellen efficiënt geïsoleerd door FACS en kunnen ze als afzonderlijke clusters worden gedetecteerd door scRNA-seq met dit protocol.
Inleiding
Longkanker is wereldwijd een van de belangrijkste oorzaken van kankergerelateerde sterfgevallen. Het kan globaal worden ingedeeld in twee hoofdsubtypen: kleincellige longkanker (SCLC) en niet-kleincellige longkanker (NSCLC)1. NSCLC is verantwoordelijk voor ongeveer 85% van alle longkankergevallen, waarbij adenocarcinoom het meest voorkomende histologisch subtype2 is. Hoewel therapeutische strategieën voor NSCLC de afgelopen decennia aanzienlijk zijn verbeterd, blijft het sterftecijfer van longkanker hoog3. Chemotherapie en immunotherapie zijn de twee belangrijkste behandelmethoden die in de klinische praktijk worden gebruikt; Veel patiënten ervaren echter resistentie tegen geneesmiddelen of reageren niet op immunotherapie 4,5.
De tumormicro-omgeving (TME) speelt een cruciale rol bij tumorinitiatie, progressie en therapeutische resistentie6. Steeds meer bewijs suggereert dat de samenstelling van de TME dynamisch verandert in de loop van de tijd 7,8. Antitumor-immuuncellen worden doorgaans verrijkt in het TME tijdens de vroege stadia van tumorgenese, terwijl immunosuppressieve en kankergeassocieerde celpopulaties dominant worden naarmate detumor zich ontwikkelt. Daarom is het begrijpen van de heterogeniteit en plasticiteit van de TME tijdens longkankerprogressie essentieel om ziektemechanismen te verduidelijken en de therapeutische resultaten te verbeteren.
Single-cell RNA-sequencing (scRNA-seq) maakt hoogresolutieprofilering van genexpressie op individueel celniveau mogelijk, waardoor een uitgebreide karakterisering van complexe weefseltranscriptomenmogelijk is. Deze techniek is onmisbaar geworden voor het bestuderen van cellulaire heterogeniteit en het identificeren van mechanismen die ten grondslag liggen aan tumorprogressie en medicijnresistentie bijlongkanker. De bereiding van een hoogwaardige single-cell suspension is een cruciaal onderdeel van succesvolle scRNA-seq, aangezien celstress of schade tijdens dissociatie kan leiden tot onnauwkeurige resultaten12,13.
Dit protocol maakt het mogelijk RNA te sequencen uit alle afzonderlijke cellen die uit hele tumordragende longen worden gezuiverd, onafhankelijk van celgrootte en zonder levende celsubpopulaties af te werpen. Veel eerdere studies hebben single-cel sequencing van tumordragende longen gerapporteerd die zich ofwel richtten op tumorcellen en CD45+ cellen 14,15,16 afgooiden, of zich richtten op immuuncellen of andere specifieke celtypes17 en afgestoten tumorcellen. Dit protocol heeft als doel alle celtypen efficiënt te dissociëren van het hele muistumordragende longweefsel, terwijl de afgifte van kwaadaardige cellen wordt gewaarborgd en de levensvatbaarheid van normale cellen behouden blijft. Door alle levende individuele cellen op te nemen, maakt dit protocol het mogelijk alle relevante celtypen binnen de tumordragende longmicro-omgeving te bestuderen, inclusief kankergeassocieerde macrofagenachtige cellen (CAML's)18. Optionele fluorescentie-geactiveerde celsortering (FACS) stappen zijn opgenomen voor kwaliteitscontrole en verrijking van specifieke celpopulaties. Aanvullende richtlijnen worden gegeven voor antistofkleuring, 4', 6-diamidino-2-fenylindool (DAPI) labeling en kortdurende fixatieprocedures wanneer onmiddellijke sortering niet haalbaar is.
Een mogelijke beperking van dit protocol is dat het is geoptimaliseerd en gevalideerd voor longweefsels met tumoren in een vroeg stadium en een tumorlast onder de 40%. Voor longen met tumoren van hogere kwaliteit of waarvan de tumorlast meer dan 50% bedraagt, kan de dissociatie-efficiëntie worden aangetast door de aanwezigheid van dichte stromale componenten en uitgebreide fibrose19,20, die de volledige afgifte van kwaadaardige cellen kan blokkeren.
Protocol
Alle diergerelateerde experimenten werden uitgevoerd in overeenstemming met de Scripps Research-richtlijnen voor de verzorging en het gebruik van dieren en goedgekeurd door het Scripps Research Institutional Animal Care and Use Committee onder protocol #10-0019. De KrasLSL-G12D/+; TdTomato+/- muizen werden gegenereerd door KrasLSL-G12D/+ muizen te kruisen met TdTomato reportermuizen. Negen of tien weken oude KrasLSL-G12D/+; TdTomato+/- muizen werden gebruikt als longkankermodellen. Ze zijn intratracheaal geïnfecteerd met lentivirus dat Cre-recombinase expressieert, met een virale titer van 5 × 10,5 plaquevormende eenheden per muis. Tumordragende longweefsels werden na 25 weken verzameld. Mogelijke verteringsproblemen en probleemoplossing worden vermeld in Aanvullende Tabel 1. De reagentia en de gebruikte apparatuur worden vermeld in de Materiaaltabel.
1. Voorbereiding van buffers
- DMEM/F12 medium: Bereid 2% (v/v) hitte-geïnactiveerde FBS voor in DMEM/F12 medium.
- Cell wash buffer: bereid 2% (v/v) warmte-geïnactiveerde FBS voor in Ca+/Mg+ vrije PBS (pH 7,4).
- Perfusiebuffer: Voorgekoelde Ca+/Mg+ vrije PBS (pH 7,4).
- Enzymstockoplossingen: Los 10 mg (1600 U/mg) collagenase IV op in 1 mL DMEM/F12 medium om een collagenase IV-oplossing van 16000 U/mL te verkrijgen; Los 42 mg (1,19 U/mg) Dispase II op in 1 mL DMEM/F12 medium om een 50 U/mL Dispase II-voorraadoplossing te verkrijgen; Los 5 mg DNase I op in 1 mL DMEM/F12 medium om een 5 mg/mL DNase I voorraadoplossing te verkrijgen.
- Verteringsmedium: Meng 250 μL collagenase IV, 200 μL Dispase II en 100 μL DNase I stockoplossingen in 5 mL DMEM/F12 medium om een uiteindelijke concentratie van 800 U/mL collagenase IV, 2 U/mL Dispase II en 0,1 mg/mL DNase I te verkrijgen.
- Resuspension buffer: Mix 1 μL 0,5 M EDTA (10 μM), 1 mL warmte-geïnactiveerde FBS (2% v/v) in 50 mL Ca+/Mg+ vrije PBS (pH 7,4).
- BSA-voorraadoplossing: Los 0,5 g BSA op in 100 mL Ca+/Mg+ vrije PBS om een 0,5% (w/v) BSA-voorraadoplossing te verkrijgen.
- FACS-buffer: Meng 2,5 mL van 1 M HEPES, 200 μL van 0,5 M EDTA in 100 mL BSA-voorraadoplossing om een uiteindelijke concentratie van 25 mM HEPES en 1 mM EDTA te verkrijgen.
2. Verzameling van muislongweefsel
OPMERKING: Alle chirurgische instrumenten worden tussen de monsters met 70% ethanol gedesinfecteerd. Monsters worden tussen elke stap op ijs gehouden en al het plasticwerk is gecertificeerd DNase/RNase-vrij.
- Euthanaseer de muis in eenCO2-kamer (volgens institutioneel goedgekeurde protocollen). Leg de muis op haar rug op een dissectiepad en pind de voeten vast. Spray royaal met 70% ethanol.
- Maak een 2–3 cm brede middenlijninsnijding door de huid en spieren van het onderbuikje. Open voorzichtig de borstkas en vermijd het snijden van de longen of het hart.
- Bevestig een veiligheidsmultifly 21 G-naald op een 50 mL spuit en aspireer 30 mL perfusiebuffer.
- Steek de naald in de linker hartkamer en knip een kleine incisie in het rechter atrium met de scherpe, rechte schaar.
- Perfusie hele lichaam21 met 15 mL perfusiebuffer.
OPMERKING: Het bleken van de lever geeft aan dat de perfusie van het hele lichaam is voltooid. - Verwijder de longen uit de thorax en snijd overtollig weefsel dat aan de longen vastzitweg 22. Plaats de longen in 10 mL voorgekoelde Ca+/Mg+ vrije PBS om overtollig bloed weg te spoelen.
- Breng de longen over in een 1,5 mL buis met 500 μL ijskoude DMEM/F12.
3. Bereiding van de long-eencellige suspensie
- Knip het longweefsel in kleine stukjes (1–2 mm3) met een extra smalle rechte schaar gedurende 2–3 minuten.
- Breng het gemalen longweefsel over in een schaaltje van 6 cm met 5 ml verteringsmedium.
- Plaats een schotel van 6 cm op een thermostaatshaker op 50 rpm gedurende 25 minuten bij 37 °C. Meng de ophanging elke 8 minuten met een 1 mL pipet.
- Plaats een 100 μm gaaszeef in een schaal van 10 cm. Maak de zeef vooraf nat met 1 mL DMEM/F12 medium.
- Breng de verteerde suspensie over in de zeef. Duw het weefsel door de zeef met het rubberen uiteinde van een steriele spuit-ontstopper.
- Plaats een 70 μm gaaszeef over een 50 mL centrifugebuis. Maak de zeef vooraf nat met 1 mL DMEM/F12 medium.
- Filter de celsuspensie door een zeef en spoel de zeef af met 5 mL DMEM/F12 medium.
- Centrifuge-gefilterde celsuspensie bij 400 g gedurende 10 minuten bij 4 °C en verwijder het supernatant voorzichtig. Suspendeer de celpellet opnieuw in 1 mL Red Blood Cell Lysing Buffer voor 2 minuten op kamertemperatuur.
- Voeg 14 mL cel wash buffer toe en centrifugeer op 400 g gedurende 10 minuten bij 4 °C.
OPMERKING: Als de pellet na het wassen nog steeds rood is, herhaal dan stappen 8 en 9. - Verwijder het supernatant en laat de cellen opnieuw suspenderen in een 20 mL resuspensionbuffer.
- Meng 10 μL single-cell suspension met een gelijk volume trypanblauw en voeg 10 μL van het mengsel toe aan de celtelkamer-slide. Controleer de levensvatbaarheid van levende cellen, celnummer en de status van enkele cellen met behulp van een celteller.
4. Flowcytometrie-analyse
- Sussen de cellen opnieuw in een ijskoude FACS-buffer en breng 100 μL celsuspensie over in 1,5 mL buisjes met 1 μL Fc-blokantilichaam (1:100). Incubeer monsters 15 minuten op ijs.
- Centrifugemonsters op 500 g gedurende 5 minuten en gooi het supernatant weg. Susseben de cellen opnieuw in 200 μL CD326-APC antilichaam (1:100) en incubeer 45 minuten in het donker bij 4 °C.
- Centrifugemonsters op 500 g gedurende 5 minuten en gooi het supernatant weg. Cellen opnieuw ophangen in 500 μL FACS-buffer met DAPI-kleuring (1:5000).
- Breng alle monsters over naar FACS-buizen en bescherm ze tegen licht.
- Analyseer de monsters met behulp van de flowcytometer. De volgende fluoroforen werden gebruikt: DAPI-V450, Tdtomato-YG585, CD326-APC. De gatingstrategie wordt weergegeven in Figuur 1.
Resultaten
Hoge cellevensvatbaarheid werd bereikt in de single-cell suspension die met dit geoptimaliseerde protocol werd bereid. Veranderingen die de cellevensvatbaarheid voor tumordragende longen verbeterden, omvatten het optimaliseren van de concentratie enzymen (Aanvullende Tabel 2), schudden en mengen van de monsters tijdens de incubatie bij 37 °C. Bovendien werd het gebruik van een extra 40 μm gaaszeef in stap 6 geëlimineerd om mechanische schuifspanning te verminderen, wat de kans op celbeschadiging vergroot Het toevoegen van de extra zeef kan de vorming van multiplets verminderen. Gemiddeld bedroeg de cellevensvatbaarheid meer dan 85%, vergeleken met minder dan 80% vóór optimalisatie (Tabel 1). Variaties in celconcentratie werden voornamelijk toegeschreven aan verschillen in longgrootte en het gebruikte suspensiemedium tussen replicaten.
In dit door KrasG12D aangedreven muismodel van longadenocarcinoom zijn tumorknobbels aanwezig, en liggen tumorbelastingen tussen 10% en 40% vijfentwintig weken na tumorstart23. Twee eencelsuspensies van de hele long werden onderworpen aan scRNA-seq op het 10x Genomics-platform. De kwaliteitsbeoordeling van de celranger identificeerde respectievelijk 23.488 en 21.436 geschatte cellen in de twee monsters (Tabel 2). De barcodeplot gaf minimale omgevings-RNA-contaminatie aan, waarschijnlijk wat de hoge cellevensvatbaarheid weerspiegelt (Figuur 2A,B).
Principal component analyse (PCA) en uniforme manifold approximation and projection (UMAP) toonden goed gedefinieerde clusters aan, waarbij alle belangrijke longceltypen werden weergegeven (Figuur 3A). Dotplots van representatieve markergenen bevestigden dat canonieke biomarkers sterk tot expressie kwamen in hun overeenkomstige celtypen (Figuur 3B). Bovendien werden TdTomato+ -cellen verrijkt in epitheelgerelateerde clusters, en werden TdTomato+/EpCAM+- cellen succesvol geïsoleerd door FACS (Figuur 1).
Samenvattend maakt dit geoptimaliseerde protocol efficiënte dissociatie mogelijk van muin tumordragend longweefsel, wat leidt tot een hoge cellevensvatbaarheid, lage RNA-contaminatie en een uitgebreide cellulaire representatie.
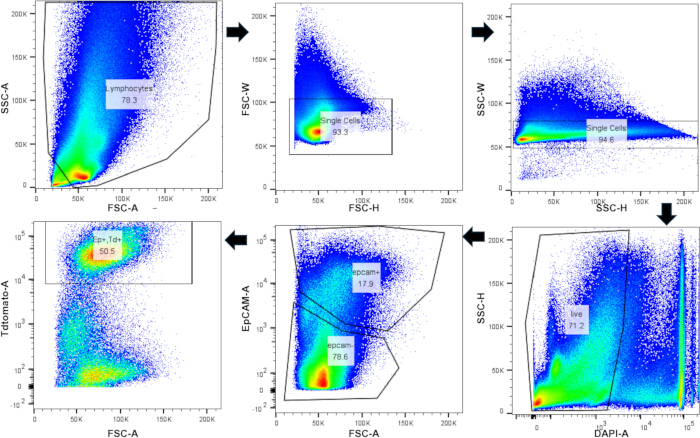
Figuur 1: Isolatie van TdTomato+/CD326 (EpCAM+) cellen door middel van flowcytometrie. Flow cytometrie gatingstrategie voor muislong-eencelsuspensie. Klik hier om een grotere versie van deze figuur te bekijken.
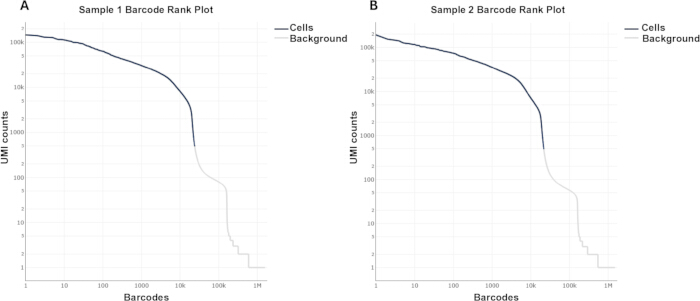
Figuur 2: ScRNA-seq Barcode rangplot van murine tumordragende longen. KrasLSL-G12D/+; TdTomato+/- muizenlongen werden 25 weken na infectie met lentivirus-Cre verzameld. (A,B) Tumordragende long: Barcode-ranggrafiek uit Cellranger-analyse Klik hier om een grotere versie van deze figuur te bekijken.
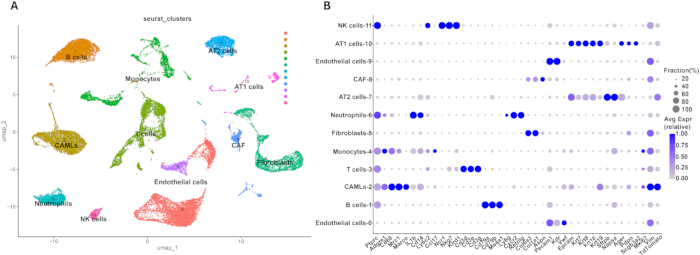
Figuur 3: Single-cell transcriptomics-analyse van murine tumordragende longen. (A) UMAP-projectie van hele tumordragende longendatasets. (B) Puntgrafiek van klassieke genen gebruikt voor clusterannotaties. Klik hier om een grotere versie van deze figuur te bekijken.
| Voor optimalisatie | Na optimalisatie | |||
| Herhaal 1 | Herhaal 2 | Herhaal 1 | Herhaal 2 | |
| Totaal aantal cellen | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Levende cellen | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Percentage levende cellen | 76% | 77% | 83% | 89% |
Tabel 1: Tumordragende long-single-cell suspensiecellevensvatbaarheid vóór en na optimalisatie. De celconcentratie en het percentage levende cellen worden bepaald vóór en na gebruik van dit protocol.
| Voorbeeld 1 | Voorbeeld 2 | |
| Geschat aantal cellen | 23,488 | 21,436 |
| Gemiddelde Reads per cel | 18,354 | 20,542 |
| Mediane genen per cel | 2,565 | 2,513 |
| Totaal gedetecteerde genen | 30,893 | 30,556 |
| Mediaan UMI-tellingen per cel | 6,864 | 6,583 |
| Geldige barcodes | 95.90% | 95.80% |
| Sequencing van verzadiging | 26.10% | 28.20% |
| Fractie leest in cellen | 94.10% | 95.40% |
Tabel 2: ScRNA-seq kwaliteitscontrole-analyse door Cell Ranger. De belangrijkste schattingen van de single-cel data verkregen van Cell Ranger
Aanvullende tabel 1: Oplossingen voor probleemoplossingen. Er worden oplossingen voorgesteld om problemen aan te pakken die tijdens het verteringsproces kunnen optreden. Klik hier om dit bestand te downloaden.
Aanvullende tabel 2: Enzymcocktailcomponenten vóór en na optimalisatie. De uiteindelijke concentraties van de enzymcocktail die voor en na optimalisatie worden gebruikt. Klik hier om dit bestand te downloaden.
Discussie
Dit protocol biedt een gedetailleerde stapsgewijze procedure voor het bereiden van hoogwaardige single-cell suspensies uit muislongweefsel. Er zijn verschillende cruciale stappen nodig om optimale resultaten te bereiken.
Voorafgaand aan enzymatische spijsvertering moet er een perfusie van het hele lichaam worden uitgevoerd om bloed uit de longen te verwijderen. Dit zorgt ervoor dat immuuncellen die door scRNA-seq worden gedetecteerd, afkomstig zijn uit longweefsel in plaats van uit het bloed circuleren. Tijdens de perfusie is het essentieel om de naald in de linkerventrikel te plaatsen om te voorkomen dat het perfusaat in de longcirculatie terechtkomt en de longcellen beschadigt. Om de levensvatbaarheid van cellen te behouden, moeten alle buffers, inclusief wash, resuspension en perfusieoplossingen, vooraf worden gekoeld op ijs. Gezien de inherente heterogeniteit van longweefsel24, moeten monsters vóór en tijdens de spijsvertering in DMEM/F12-medium worden bewaard, omdat dit medium essentiële voedingsstoffen levert die de cellevensvatbaarheid ondersteunen.
Hoge cellevensvatbaarheid en goed gedefinieerde celclusters die in dit protocol worden waargenomen, bevestigen dat de enzymcombinatie zowel mild als effectief is. Calcium- en magnesiumionen staan erom bekend celklontering te bevorderen en de enzymatische activiteitte verhogen 25,26. Daarom wordt Ca+/Mg+ vrije PBS gebruikt om de meeste buffers voor te bereiden om klonteringen te minimaliseren, terwijl DMEM/F12 met deze ionen als basaal medium voor de verteringsbuffer wordt gebruikt om een evenwichtige enzymatische efficiëntie te behouden.
Hoewel eerdere studies dissociatieve muislongen of tumorweefsels beschreven, vertonen ze vaak significante variabiliteit of een onvolledige beschrijving van proteaseselectie en concentratie 11,15,27. Zo gebruikten Han et al.11 enzymcocktails zonder concentratie te rapporteren, wat replicatie bemoeilijkt. Omgekeerd is een sterk gespecialiseerde methode beschreven door Chen et al.28 effectief voor dissociatie van Alveolaire Type II (AT2) cellen, maar vereist deze een complexe workflow, wat onpraktisch is als meerdere muizen tegelijk verzameld moeten worden.
Een cruciale uitdaging in longoncologieonderzoek is de structurele heterogeniteit van de tumordragende long, die bestaat uit zowel fragiele normale cellen als kwaadaardige tumorcellen. Standaardprotocollen of commerciële kits zijn vaak specifiek ontworpen voor normaal weefsel of tumormonsters. Ze leiden ofwel tot onvolledige spijsvertering, het niet vrijmaken van kankercellen uit de tumorkern, of oververtering, wat aanzienlijke stress en celdood veroorzaakt in het gevoeligere normale weefsel in tumordragende longmonsters.
Dit protocol pakt dit aan door de enzymatische cocktail (Collagenase IV, Dispase II en DNase I) fijn af te stemmen om een gebalanceerde dissociatie te bereiken. Deze optimalisatie zorgt voor de afgifte van kwaadaardige cellen terwijl de levensvatbaarheid van normale cellen behouden blijft. Dit wordt ondersteund door flowcytometrie-analyse, waarbij we met succes twee verschillende epitheelcellen hebben geïdentificeerd en opgelost. De epitheelcellen zijn goed gescheiden in TdTomato+- of TdTomato-cellen. Dit resolutieniveau toont aan dat deze methode geschikt is voor het bestuderen van de gehele tumordragende longmicro-omgeving zonder de integriteit van het gastheerweefsel op te offeren. Door alle levende individuele cellen in de analyse op te nemen, maakt dit protocol het mogelijk alle relevante celtypen binnen de tumordragende longmicro-omgeving te bestuderen, inclusief kanker-geassocieerde macrofagenachtige cellen (CAML's) (Figuur 3), die in eerdere studies niet breed zijn gerapporteerd 15,16,17.
Na de vertering toonden scRNA-seq analyses aan dat deze procedure met succes diverse celtypen isoleert. Enzymoplossingen moeten vers worden bereid op de dag van het experiment. Alle verteringsparameters zijn geoptimaliseerd voor één hele muislong. Bij gebruik van slechts één lob of meerdere longen moet de verteringstijd worden aangepast om een hoge cellevensvatbaarheid en volledige weefseldissociatie te waarborgen. Omgevings-RNA-besmetting en multipletvorming zijn twee belangrijke factoren die scRNA-seq kwaliteit29 beïnvloeden. Hoewel dode celverwijderingskits vaak worden gebruikt om de levensvatbaarheid te verbeteren, levert dit protocol consequent meer dan 80% van de levende cellen op na de vertering, waardoor deze stap optioneel is. De barcode-ranggrafiek bevestigde minimale omgevings-RNA-besmetting, zelfs zonder verwijdering van dode cellen.
De huidige studie valideert deze methodologie binnen de context van de gehele tumordragende muislong. Deze geoptimaliseerde enzymatische vertering biedt een sjabloon voor het bestuderen van verschillende andere tumordragende weefsels die worden gekenmerkt door vergelijkbare micro-omgevingen. Bovendien maken de hoge cellevensvatbaarheid en behoud van alle celtypen die door dit protocol worden bereikt, het geschikt voor geavanceerde sequencingtechnologieën, zoals CITE-seq voor oppervlakte-eiwitmapping en ATAC-seq voor epigenetische profilering.
Hoewel dit protocol hoogwaardige single-cel suspensies tegen lage kosten produceert, kan procesgeïnduceerde cellulaire stress nog steeds optreden tijdens enzymatische vertering. Om stressgerelateerde genexpressie-artefacten te minimaliseren, mag een enkele operator niet meer dan vier monsters tegelijk verwerken.
Openbaarmakingen
De auteurs verklaren dat zij geen concurrerende belangen hebben.
Dankbetuigingen
Dit werk is ondersteund door het National Institute of Health, het National Eye Institute (NEI), VS, subsidies 5R01EY026202, R01EY035333; de National Institute of Dental and Craniofacial Research (NIDCR) subsidies R01DE031044, 2R01DE014756, en de National Cancer Institute (NCI) subsidies R01CA271500 en 2R01CA211187.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | Celcultuur |
| Collagenase Type IV | Sigma Aldich | C5138 | Digestieve enzymen |
| Dispase II | Sigma Aldich | D4693 | Digestieve enzymen |
| DNase I | Roche | 11284931001 | DNA verwijderen |
| Falcon 70 Cell strainer | Falcon | 352350 | Onverteerd weefsel verwijderen |
| Steriele schaar | FST | 14088-10 | Weefsels snijden |
| Rode bloedcel lysis buffer | Sigma Aldich | R7757 | Bloedcellen verwijderen |
| Heat-inactiveerd FBS | Phoenix Scientific | PS100 | Cellen beschermen |
| Ca+/Mg+ vrije PBS | Thermo Fisher | 10010023 | Enzymen oplossen/Cellen wassen |
| Safety-multiply 21G naald | Sarstedt | 3051524 | Heel lichaam perfusie |
| 50 mL spuit | BD | 300866 | Heel lichaam perfusie |
| 6 cm schaal | Corning | 430116 | Weefsels verteren |
| 10 cm schaal | Corning | 430167 | Weefsels verteren |
| Fc block antilichaam | BD | 553141; RRID:AB_394655 | Flowcytometrie |
| DAPI | BD | 564907; RRID:AB_2869624 | Flowcytometrie |
| CD326 | BD | 563478; RRID:AB_2738234 | Flowcytometrie |
| HIVmPGKCre VSVG | UI Viral Vector Core | VVC-U of Iowa-7556 | Lentivirus |
| ZE5 (Yeti) flowcytometer | Bio-Rad | Flowcytometrie analyse | |
| KrasLSL-G12D/+ muis | Jackson Laboratory | 008179; RRID:IMSR_JAX:008179 | |
| TdTomato reporter muis | Jackson Laboratory | 007909; RRID:IMSR_JAX:007909 |
Referenties
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Herprints en machtigingen
