De studie presenteert een methode voor in vitro onderzoek van bacteriële infecties met behulp van intestinale organoïden afkomstig van weefselstamcellen. Het protocol beschrijft hoe organoïden in twee dimensies kunnen worden gekweekt en onderscheiden, geïnfecteerd met adherent-invasieve Escherichia coli, en belangrijke metingen worden beoordeeld, waaronder het doorbreken van de epitheliale barrière, infectiebeeldvorming en de repitheliale RNA-respons.
Methodenartikel
Een tweedimensionale organoïde cultuur op invasine of basement membraanextract om gastheer-bacteriën interacties te bestuderen
In dit artikel
Samenvatting
Samenvatting
Organoïdetechnologie biedt een experimenteel in vitro platform voor het bestuderen van menselijke fysiologie in gezondheid en ziekte. In vergelijking met andere in vitro systemen, zoals kankerafgeleide cellijnen of explants, bieden organoïden afkomstig van weefselstamcellen (TSC) belangrijke voordelen: ze kunnen onbeperkt worden uitgebreid terwijl de genomische stabiliteit behouden blijft en ze zijn geschikt voor CRISPR-modificatie. Omdat deze organoïden worden gegenereerd uit normale TSC's, bevatten ze de celtypen van hun oorsprongsweefsel. Dit maakt organoïden bijzonder waardevol voor het onderzoeken van interacties tussen bacteriën en gedifferentieerde, niet-tumorale menselijke cellen. Intestinale organoïden worden gekweekt als tweedimensionale gepolariseerde monolagen op celkweekinserts die zijn bekleed met Basement Membrane Extract (BME) of invasine, een diervrij, kosteneffectief alternatief, en kunnen worden onderscheiden in belangrijke intestinale epitheelcellen voor infectie met pathogene adherent-invasieve E. coli. Belangrijke infectiemetingen zijn onder andere het monitoren van epitheliale genexpressie met Reverse Transcription quantitative PCR (RT-qPCR), het visualiseren van bacterie-epithelium interacties met behulp van confocale microscopie en het kwantificeren van het doorbreken van epitheliale barrières. Het protocol kan gemakkelijk worden aangepast om andere organen en bacteriesoorten te bestuderen, wat een veelzijdig platform biedt voor het onderzoeken van gastheer-microbe interacties in organoïden.
Inleiding
Het intestinale epitheel vormt de eerste verdedigingslinie tegen pathogene bacteriën die aanwezig zijn in het darmlumen. In vitro-modellen van het intestinale epitiheel zijn veel gebruikt om te bestuderen hoe bacteriën interageren met epitheelcellen, hoe deze cellen reageren op infecties en hoe bacteriën de epitheelbarrièredoorbreken 1. Deze modellen zijn bijzonder waardevol voor het onderzoeken van mensspecifieke pathogenen in een gecontroleerde, reductionistische setting. Historisch gezien heeft de in-vitro infectiebiologie vertrouwd op tumorafgeleide cellijnen, bijvoorbeeld Caco-2-cellen, of op door patiënten afgeleide explanten die ex vivo 2,3 worden onderhouden. Meer recentelijk zijn intestinale organoïden die uit menselijke weefselstamcellen worden gegenereerd als een krachtig hulpmiddel dat de voordelen van beide benaderingen combineert: net als cellijnen kunnen organoïden worden doorgevoerd, verbreed, gecryopbewaard, ontdooid en genetisch gemanipuleerd; en net als explanten worden ze afgeleid van niet-tumorale stamcellen die in staat zijn te differentiëren tot alle belangrijke epitheelceltypen 4,5.
Wanneer menselijke intestinale organoïden worden ingebed in een matrix zoals Matrigel of Basement Membrane Extract (BME), organiseren ze zich meestal zelf in bolvormige, gepolariseerde structuren met een apicaal oppervlak naar binnen gericht en een basaal oppervlak naar buiten. Omdat de meeste darmpathogenen epitheelcellen van de apicale kant aantasten, zijn er verschillende strategieën ontwikkeld om dit oppervlak bloot te stellen aan bacteriën in organoïden4. Een benadering is het micro-injecteren van bacteriën direct in het organoïde lumen6. Een andere is het omkeren van de polariteit van organoïden door ze los te laten uit de extracellulaire matrix, waardoor "apicale organoïden" ontstaan in suspensie7. Een derde strategie is het dissociëren van organoïden in enkele cellen en ze te zaaien op celkweekinserts om gepolariseerde, tweedimensionale monolagen (2D-organoïde-sheets) te vormen met de apicale zijde gericht op het bovenste compartiment8. De eerste twee methoden hebben belangrijke beperkingen: micro-injectie is tijdrovend en arbeidsintensief, beperkt de doorvoer, en apical-out organoïden overleven slechts enkele dagen zonder matrixondersteuning en kunnen niet worden onderscheiden1. Daarentegen ondersteunen 2D-organoïde vellen hoogdoorvoer-experimenten (bacteriën kunnen eenvoudig aan het bovenste compartiment worden toegevoegd) en kunnen ze meerdere weken worden onderhouden terwijl ze differentiëren in grote darmepitheelcellentype 9.
In tegenstelling tot vereeuwigde cellijnen die gemakkelijk aan plastic oppervlakken hechten, hebben organoïde-afgeleide cellen plaatcoating nodig voor efficiënte hechting. Coating kan worden uitgevoerd met verdunde BME10, of alternatieve met invasine, een bacterieel eiwit dat integrines bindt aan organoïde cellen11. Invasin is gemakkelijk te produceren in het laboratorium, aanzienlijk kosteneffectiever dan BME of Matrigel, en volledig diervrij.
Dit protocol beschrijft de vestiging en differentiatie van intestinale organoïden als tweedimensionale gepolariseerde monolagen op celkweekinserts die zijn bekleed met invasine of Basement Membrane Extract (BME). De gedifferentieerde organoïde bladen worden vervolgens geïnfecteerd met Adherent-invasive Escherichia coli (AIEC), een pathogene stam die geassocieerd is met inflammatoire darmziekte12. Meerdere downstream infectie-uitslagen zijn opgesteld om epitheelresponsen en bacteriële translocaties te evalueren. Aangezien AIEC epitheelcellen binnendringt en het intestinale epitheel doorbreekt – een mechanisme waarvan wordt gedacht dat het bijdraagt aan de pathogeniciteit ervan – wordt epitheelbreuk gekwantificeerd door bacteriën te meten die de basolaterale kamer van de celkweekinsert bereiken na bevestiging van barrièreintegriteit door transepitheliale/transendotheliale elektrische weerstand (TEER) meting13. Er worden ook procedures aangeboden voor het fixeren en beelden van geïnfecteerde monolagen om intra- en extracellulaire AIEC te visualiseren, evenals voor RNA-extractie om epitheliale transcriptieresponsen op infectie te beoordelen. Het volledige protocol kan in minder dan twee weken worden uitgevoerd en vereist alleen algemeen beschikbare laboratoriumapparatuur, waaronder een BSL-2 kast, een confocale microscoop en een kwantitatief PCR-instrument.
Al met al biedt dit protocol een kostenefficiënte, veelzijdige en toegankelijke methode om bacteriële infecties van gedifferentieerd menselijk darmepitheel in vitro te bestuderen. Het kan gemakkelijk worden aangepast aan andere organoïde systemen en andere microbiële soorten, waardoor het een nuttig blauwdruk is voor in vitro infectiebiologische studies.
Protocol
De menselijke darmorganoïden werden gevormd uit het afvalmateriaal van patiënten die een colorectale kankeroperatie ondergingen aan het Universitair Medisch Centrum Utrecht (UMCU). Patiënten gaven geïnformeerde toestemming voor de aanleg van hun organoïden, in overeenstemming met protocol UPORT Cancer Biobank 21-042, goedgekeurd door de lokale ethische commissie voor biobankieren. Figuur 1A illustreert de 8 secties van het protocol . De details van het reagens en de apparatuur staan vermeld in de Materiaaltabel.
1. Coating van de celkweekinzet
- Coating met invasine
- Voer alle procedures uit in een weefselkweekkap onder steriele omstandigheden.
- Bereid een 5 μg/mL oplossing van invasine voor in steriele fosfaatgebufferde zoutoplossing (PBS).
- Voeg 100 μL van deze oplossing toe aan het bovenste compartiment van elke 3 μm porie polyester celcultuur-insert die in een 24-wells plaat wordt geplaatst.
- Zorg ervoor dat het membraan volledig bedekt is.
- Broed 's nachts uit bij 4 °C.
OPMERKING: Vermijd het vormen van bellen tijdens het doseren, omdat bellen een uniforme coating voorkomen.
- Coating met basement membraanextract (alternatief)
- Ontdooi-basement membraan extract op ijs.
- Bereid een oplossing van 10% voor in ijskoude DMEM.
OPMERKING: Houd de oplossing koud om voortijdige polymerisatie te voorkomen. - Voeg 100 μL van de verdunde oplossing toe aan het bovenste compartiment van elke 3 μm poriecelcultuur-insert.
- Zorg voor volledige dekking van het membraanoppervlak.
- Broed 1 uur uit op kamertemperatuur.
2. Inzaading van organoïde cellen
- Bereiding van organoïden
- Verwijder kweekmedium van organoïde platen die in expansiecondities worden gehouden (3-5 dagen na splitsing).
- Sussen organoïden opnieuw in 1 mL ijskoude DMEM14.
- Breng de suspensie over naar een 15 mL conische buis met 4 mL ijskoude DMEM.
OPMERKING: Gebruik ongeveer 1 full well van een plaat met 12 putten naar zaad-4 celkweekinserts.
- Pelleterende organoïden
- Centrifugeer 5 minuten op 500 × g bij 4 °C.
- Verwijder het supernatant volledig.
- Dissocierende organoïden
- Suspendeer de pellet opnieuw in 3 mL recombinant trypsine substituut.
- Pipetteer op en neer met een P1000-pipet om de organoïden mechanisch te verstoren.
- Incubeer bij 37 °C gedurende 15-20 minuten totdat er losse cellen of kleine clusters (3-4 cellen) zijn verkregen.
OPMERKING: Niet langer dan 20 minuten incubatie. Pipette elke 5 minuten om dissociatie te bevorderen. Steek een P10-tip in een P1000-tip als er verdere mechanische kracht nodig is.
- Wascellen
- Voeg 5 ml ijskoude DMEM toe.
- Centrifugeer 5 minuten op 500 × g bij 4 °C.
- Verwijder het supernatant.
- Bereid celsuspensie voor
- Suspensie-cellen in expansiemedium (100 μL per celkweekinsert; zie Tabel 1 voor de samenstelling van expansiemedium).
OPMERKING: Voeg geen antibiotica mee. Voeg een Rho kinase-remmer toe om anoikis te voorkomen. - Tel cellen met een celteller of hemocytometer.
- Pas aan op ongeveer 2 × 10⁶ cellen /mL.
- Suspensie-cellen in expansiemedium (100 μL per celkweekinsert; zie Tabel 1 voor de samenstelling van expansiemedium).
- Het zaaien van de celcultuurinserts
- Verwijder de coatingoplossing van de inserts.
- Voeg 100 μL celsuspensie (2 × 10⁵ cellen) toe aan het bovenste compartiment.
- Voeg 500 μL expansiemedium toe aan het onderste compartiment.
3. Celcultuur invoegen cultuur en differentiatie
- Incubeer bij 37 °C met 5%CO2 totdat confluentie is bereikt (ongeveer 3 dagen).
OPMERKING: Verver het medium in beide compartimenten elke 4-5 dagen indien nodig. - Zodra het samenvloeit, was je beide compartimenten met voorverwarmde DMEM.
- Voeg 500 μL differentiatiemedium toe (Tabel 2) aan het onderste compartiment.
- Voeg 100 μL Advanced DMEM/F12 aangevuld met HEPES en Glutamax (AdvDMEM++) (Tabel 3) toe aan het bovenste compartiment.
- Incubeer 5 dagen bij 37 °C met 5%CO2.
- Vervang elke 2 dagen het medium in beide compartimenten.
4. Het meten van transepitheliale/transendotheliale elektrische weerstand (TEER)
- Steriliseer TEER-elektroden in 70% ethanol gedurende 15 minuten.
- Spoel elektroden af in steriele PBS.
- Steek de korte elektrode in het bovenste compartiment en de lange elektrode in het onderste compartiment.
OPMERKING: Raak de monolaag niet aan met de elektrodepunt. - Recordweerstandswaarden.
- Meet blankweerstand met een celvrije insert die PBS bevat (100 μL boven, 500 μL lager).
- Bereken TEER: TEER = (R_cell kweekinvoegsel − R_blank) × oppervlakte (cm²)
OPMERKING: Voor 24-well-inserts is het oppervlak = 0,33 cm².
5. Infectie met AIEC
- Bereid bacteriekweek voor
- Inoculeer fluorescerende AIEC in 3 mL LB medium15.
- Broed 's nachts uit bij 37 °C met schudden.
VOORZICHTIG: Voer alle bacteriële procedures uit in een BSL-2 kap.
- Bereid inoculum voor
- Centrifugeer 500 μL cultuur gedurende 5 minuten op 1500 × g.
- Heropsussen in 1 mL AdvDMEM++.
- Meet de optische dichtheid (OD).
- Verdun tot ongeveer 1 × 10⁸ CFU/mL in AdvDMEM++.
OPMERKING: OD = 1 komt overeen met ongeveer 1 × 10⁹ CFU/mL.
- Het infecteren van de monolagen
- Vervang media in beide compartimenten.
- Voeg 500 μL differentiatiemedium toe aan het onderste compartiment.
- Voeg 100 μL bacteriële suspensie toe aan het bovenste compartiment voor de geïnfecteerde aandoening.
- Voeg 100 μL AdvDMEM++ toe aan het bovenste compartiment voor de niet-geïnfecteerde aandoening.
- Incubeer bij 37 °C, 5% CO₂.
6. Beoordeling van epiteelbreuk
- Verzamel 2,5 uur na infectie 100 μL uit het onderste compartiment.
- Verdunnen in PBS en op LB agar.
- Voeg 100 μL vers differentiatiemedium toe aan het onderste compartiment.
- Incubeer platen 's nachts bij 37 °C.
- Herhaal de bemonstering 5 uur na infectie.
- Graafkolonie-vormende eenheid (CFU) de volgende dag.
- Bereken CFU's per celkweek-insert: CFUs/celcultuur-insert = kolonies × 5 × verdunningsfactor
7. Beeldinfectie
- Verwijder het medium 5 uur na infectie en gebruik 4% paraformaldehyde.
VOORZICHTIG: Paraformaldehyde is giftig en vluchtig. Hanteer het in een dampkap terwijl je handschoenen draagt. - Reparatie voor 30 minuten.
- Was drie keer met PBS.
- Verwijder het membraaninzetstuk en plaats cellen die naar boven wijzen in een putplaat.
- Kleur met fluorescerend falloïde gedurende 1-2 uur.
- Was drie keer met PBS.
- Kleurde kernen met DAPI gedurende 10 minuten.
- Was drie keer met PBS.
- Bevestig een glazen glijbaan met montagemedium en breng een dekmantel aan.
- Sluit af met nagellak.
- Maak confocale beelden van DAPI, actine en bacteriekanalen.
- Verkrijg een z-stack die basale tot apicale oppervlakken overspant met intervallen van 1 μm.
- Open afbeeldingen in Fiji.
- Selecteer afbeelding → Z Project → Gemiddelde Intensiteit.
- Selecteer afbeelding → stapels → orthogonale aanzichten om doorsneden te visualiseren.
8. Analyse van de epitheelrespons
- Verwijder media 5 uur na infectie.
- Voeg een 350 μL lysisbuffer toe aan het bovenste compartiment.
- Pipette naar de lysecellen en overbreng naar een RNase-vrije buis op ijs.
- Voer RNA-extractie uit volgens de instructies van de kit.
- Meet de RNA-concentratie en normaliseer monsters.
- Voer omgekeerde transcriptie uit.
- Voer kwantitatieve PCR uit volgens de instructies van de fabrikant (primersequenties voor TNFα en het referentiegen β-actine zijn weergegeven in Tabel 4).
Resultaten
Na het bereiken van confluentie vertoonden de darmcellen op de celkweekinsert een mozaïekachtig patroon (Figuur 1B) zonder zichtbare openingen in de monolaag. Na differentiatie werd de epitheelstrakheid beoordeeld door transepitheliale elektrische weerstand (TEER) te meten (Figuur 1C). TEER-waarden boven 500 Ω·cm² waren consistent met de vorming van een strakke epitheliale monolaag¹⁶.
De hoeveelheid AIEC die in het basolaterale compartiment werd gedetecteerd, nam in de loop van de tijd toe, wat een bacteriële doorbraak van de epitheelbarrière weerspiegelt (Figuur 2A,B). Het ontbreken van AIEC in het onderste compartiment zou wijzen op het falen van bacteriële translocatie.
De workflow voor het visualiseren van infecties is samengevat in Figuur 3A. Confocale beeldvorming toonde de vorming van een gepolariseerde monolaag aan, met kernen basaal gelokaliseerd en een apicale verrijking van het actinenetwerk (Figuur 3B). Hogere vergroting toonde zowel intracellulaire AIEC als extracellulaire bacteriën die aan het apicale membraan gehecht zijn (Figuur 3C).
RT-qPCR-analyse toonde een upregulatie van TNFα-expressie als reactie op AIEC-infectie (Figuur 4A, B), waarmee activatie van een epitheliale ontstekingsrespons werd bevestigd.
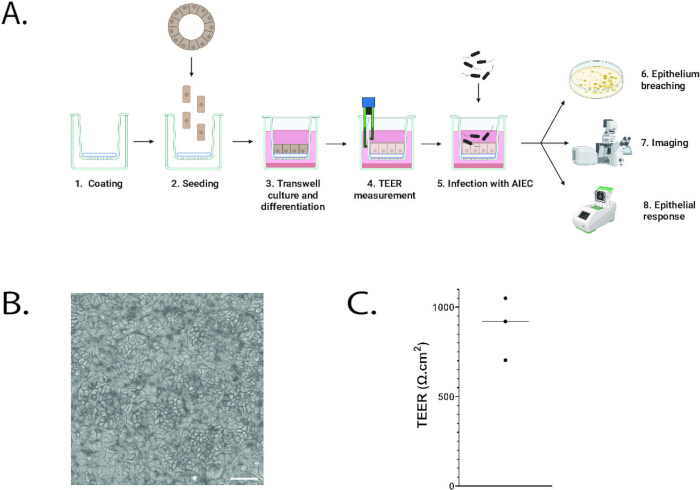
Figuur 1: Overzicht van het protocol. (A) Schema's van het protocol. (B) Helderveldbeeld van intestinale organoïde cellen gekweekt en gedifferentieerd op een invasine-gecoate celkweekinsert. Schaalbalk: 50 μm. (C) Transepitheliale/transendotheliale elektrische weerstand (TEER) van intestinale organoïden die zijn gekweekt en gedifferentieerd op invasine-gecoate celkweekinserts. Elke stip toont een onafhankelijk experiment. Klik hier om een grotere versie van deze figuur te bekijken.
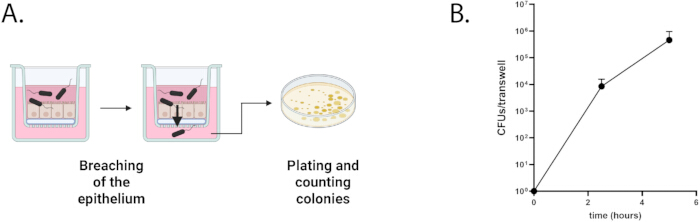
Figuur 2: Beoordeling van epitheelbreuk (A) Schema's van het protocol. (B) Kwantificering van kolonievormende eenheden (CFU's) van AIEC in de loop van de tijd in het onderste compartiment van de celkweekinsert. Klik hier om een grotere versie van deze figuur te bekijken.
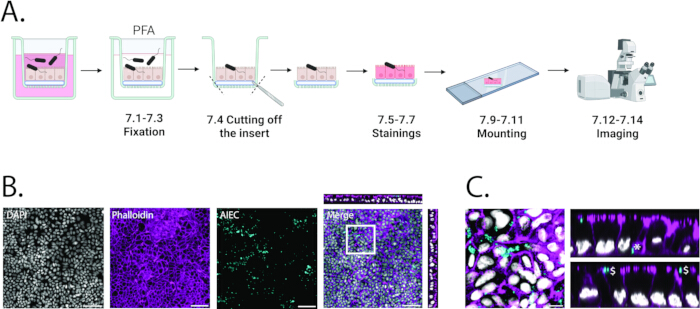
Figuur 3: Beeldvorming van infectie. (A) Schema's van het protocol. (B) Confocale beeldvorming van intestinale organoïden geïnfecteerd met fluorescerende AIEC gedurende 5 uur. Grijs: DAPI. Magenta: falloïdine. Cyan: AIEC. Schaalbalk: 50 μm. Orthogonale weergaven van de samengevoegde afbeelding worden bovenaan en rechts weergegeven. (C) Hoge vergroting van het witte vierkant in B. Grijs: DAPI. Magenta: falloïdine. Cyan: AIEC. Schaalbalk: 10 μm. Orthogonale aanzichten worden rechts weergegeven. Intracellulaire AIEC (*) en extracellulaire AIEC die aan het apicale membraan van epitheelcellen ($) zijn gemarkeerd. Klik hier om een grotere versie van deze figuur te bekijken.
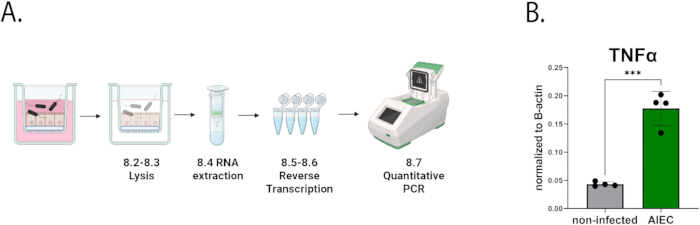
Figuur 4: Analyse van de epitheelrespons. (A) Schema's van het protocol. (B) Expressie van TNFα door intestinale organoïden na 5 uur infectie met AIEC (groen) versus niet-geïnfecteerde controle (grijs). TNFα-expressie werd genormaliseerd naar B-actine-expressie met behulp van de formule 2-(Cq(TNFα)-Cq(β-actine)). n=4 repliceert. Statistische analyse werd uitgevoerd met behulp van een ongepaarde Student's t-test. P < 0,001. Klik hier om een grotere versie van deze figuur te bekijken.
| Component | Concentratie |
| Adv DMEM | 1x finale |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
| Wnt-surrogaat | 0,5 nM |
| R-spo1 UPE | 2% v/v |
| Noggin UPE | 1% v/v |
| B27 zonder vitamine A | 2% v/v |
| N-acetyl cysteïne | 1,25 mM |
| Nicotinamide | 10 μM |
| hEGF | 50 ng/mL |
| A83-01 (TGF-β remmer) | 0,5 μM |
| SB202190 (p38-remmer) | 3 μM |
| Prostaglandine E2 | 1 μM |
| Rho kinase-remmer | 10 μM |
Tabel 1: Expansiemedium voor menselijke darmorganoïden. Samenstelling van het expansiemedium dat wordt gebruikt voor het onderhoud en de proliferatie van menselijke darmorganoïden.
| Component | Concentratie |
| Adv DMEM | 1x finale |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
| R-spo1 UPE | 2% v/v |
| Noggin UPE | 1% v/v |
| B27 zonder vitamine A | 2% v/v |
| NAC | 1,25 mM |
| hEGF | 50 ng/mL |
Tabel 2: Differentiatiemedium voor menselijke intestinale organoïden. Samenstelling van het differentiatiemedium dat wordt gebruikt om de epitheliale rijping van de menselijke intestinale organoïde monolagen te bevorderen.
| Component | Concentratie |
| Adv DMEM | 1x finale |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
Tabel 3: Voordelig DMEM++ voor infectie. Samenstelling van Advanced DMEM/F12 medium aangevuld met HEPES en Glutamax (Adv DMEM++) gebruikt tijdens bacteriële infectietests.
| Naam | Reeks |
| TNFα F | CTCTTCTGCCTGCTGCACTTTG |
| TNFα R | ATGGGCTACAGGCTTGTCACTC |
| β-actine F | TGACGTTGACATCCGTAAAG |
| β-actine R | GAGGAGCAATGATCTTGATCT |
Tabel 4: Primers voor qPCR van TNFα. Toont de primersequenties die worden gebruikt voor kwantitatieve PCR-analyse van TNFα met β-actine als referentiegen.
Discussie
Deze studie stelde een protocol op om bacteriële infecties van menselijke darmepiteelcellen te onderzoeken met behulp van TSC-afgeleide organoïden die op celkweekinserts zijn gekweekt. Inserts met poriën van 3 μm maakten efficiënte celhechting en bacteriële translocatie mogelijk, terwijl poriën van 0,4 μm geen AIEC-doorgang toelaten, wat overeenkomt met de geschatte 1 μm grootte van E. coli. Er werd geen translocatie van organoïde cellen door poriën van 3 μm waargenomen, waarschijnlijk vanwege hun epitheliale en niet-invasieve fenotype.
Verschillende experimentele variabelen waren cruciaal voor reproduceerbaarheid, waaronder efficiënte celhechting, geschikte zaaidichtheid en volledige confluentie vóór infectie. Organoïde-afgeleide epitelcellen hechten zich niet aan ongecoat plastic, waardoor coating essentieel is. BME leverde consequent een hoge hechtingsefficiëntie op. Invasinecoating leverde vergelijkbare resultaten op en is een kosteneffectief alternatief11, hoewel het in eigen huis geproduceerd moet worden. Collageencoating is ook voorgesteld als alternatief17.
Bacteriële groeicondities beïnvloeden de efficiëntie van infecties sterk. E. coli-stammen groeien goed in DMEM; echter, restanten van antibiotica kunnen de proliferatie remmen. Onder optimale omstandigheden vertonen geïnfecteerde culturen meestal een verhoogde troebelheid ten opzichte van controles, en bacteriegroei kan worden bevestigd door het plateren van de inhoud van het apicale compartiment.
De beeldvormingsstrategie maakte visualisatie van zowel intra- als extracellulaire bacteriën mogelijk door AIEC te richten die een fluorofoor tot expressie brengt onder een constitutieve promotor (bijvoorbeeld met behulp van het plasmide pMB1-spect-PthrC-eGFP). Alternatieve methoden maken selectieve detectie van intracellulaire bacteriën mogelijk, waaronder differentiële immunofluorescentiekleuring18 of reporters die tot expressie komen in gedefinieerde stadia van invasie19. Gentamicinebeschermingsassays bieden een extra kwantitatieve benadering20.
Dit model is bewust reductionistisch en richt zich op directe interacties tussen bacteriën en het darmepitheel. Het maakt het mogelijk om infecties te onderzoeken in een gedifferentieerde epitheliale monolaag zonder extra celtypen in vivo. Het differentiatiemedium induceerde voornamelijk enterocyten- en gobletceldifferentiatie21, maar kan worden aangepast om de epitheelsamenstelling te veranderen22,23. De complexiteit van het systeem kan worden verhoogd door immuun- of stromale cellen in het basale compartiment24 te cocultiveren.
Het systeem herhaalt niet de driedimensionale architectuur van het darmslijmvlies. Orgaan-op-chip platforms overwinnen enkele structurele beperkingen25 , maar vereisen meer technische complexiteit en middelen. Bovendien is het model het beste geschikt voor acute infecties, omdat bacteriële overgroei experimenten beperkt tot ongeveer 8 uur. Complexere systemen, zoals microfluïdische platforms die continue media-uitwisseling mogelijk maken, zijn nodig om chronische infecties in vitro26 te bestuderen.
Vergelijkbare celkweek-inzet-gebaseerde organoïde infectiesystemen zijn toegepast op meerdere weefsels en pathogenen, waaronder maagorganoïden geïnfecteerd met Helicobacter pylori27,28, intestinale organoïden geïnfecteerd met Shigella29, luchtwegorganoïden geïnfecteerd met Pseudomonas aeruginosa10, en urotheliale organoïden geïnfecteerd met Enterococcus faecalis30. Dit protocol biedt daarom een veelzijdig kader voor het onderzoeken van epitheel-bacteriële interacties tussen orgaansystemen, mits er rekening wordt gehouden met pathogeenspecifieke groeivereisten.
Organoïdetechnologie levert fysiologisch relevante menselijke modellen om gastheer-pathogeen interacties in niet-getransformeerde epitheelcellente onderzoeken 4,5. Gezien de toenemende last van antibioticaresistente infecties en hun verband met chronische ontstekingsziekten en kanker, vormen dergelijke in vitro systemen waardevolle instrumenten voor mechanistisch en translationeel onderzoek.
Openbaarmakingen
H.C. is uitvinder van verschillende patenten gerelateerd aan organoïdetechnologie. De volledige openheid van H.C. wordt gegeven op https://www.uu.nl/staff/JCClevers/.
Dankbetuigingen
De auteurs danken Utrecht Portal for Organoid Technology (UPORT), in het bijzonder Anneta Brousali, Jorieke Salij en Arnold Binda, evenals de patiënten en chirurgen van het Universitair Medisch Centrum Utrecht voor het leveren van colonweefsel. De auteurs bedanken ook Nicolas Barnich voor het delen van de AIEC-stam LF82. Dit werk werd ondersteund door een CRUK-subsidie OPTIMISTIC (C10674/A27140). TG werd gefinancierd door het Horizon 2020-onderzoeks- en innovatieprogramma van de Europese Unie onder het Marie Sklodowska-Curie-subsidieakkoord 101107988. Schema's werden gemaakt met BioRender (https://www.biorender.com/).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| A83-01 (TGF-β inhibitor) | Tocris | 2939 | |
| Adherent-invasive Escherichia coli LF82 | kind gift of Nicolas Barnich | ||
| Advanced DMEM/F12 | Invitrogen | 12634-010 | |
| B27 without vitamin A | Invitrogen | 12587010 | |
| cDNA kit | Applied Biosystems | 4387406 | De handleiding is hier beschikbaar: https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| Cell counter | DeNovix | H2796 | |
| Cell counter | Leica | Stellaris | |
| Coverslips 24 mm x 50 mm | Menzel-Gläzer | BB024050S1 | |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| DAPI | Sigma-Aldrich | 10236276001 | |
| Disposable Scalpel Sterile N° 10 | Swann Morton | 3033838 | |
| DMEM | Gibco | 11965092 | |
| Fiji | Fiji | Fiji is open access en kan hier worden gedownload: https://imagej.net/software/fiji/downloads | |
| Glutamax | Gibco | 35050-061 | |
| hEGF | Peprotech | AF-100-15 | |
| HEPES | Gibco | 15630-080 | |
| Invasin | custom-made according to Wijnakker et al. PNAS 2024 | ||
| LB | Thermofisher | CM0996 | |
| LB Agar | Thermofisher | CM1116 | |
| Malassez chamber | KOVA | 87144E | |
| Microscope slides | Skycraft | 18901 | |
| Milli cell Voltohmmeter (TEER measurement) | Merck | MERS00002 | |
| mounting medium | Vectors Laboratories | Vectashield H-1000-10 | |
| N-Acetyl Cystein | Sigma-Aldrich | A9165 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| Noggin UPE | IPA Therapeutics | N002 | |
| ParaFormaldehyde solution 4% | Sigma-Aldrich | 1.00496 | |
| Phalloidin 647 | Sigma-Aldrich | 65906-10NMOL | |
| plasmid pMB1-spect-PthrC-eGFP | Addgene | 107408 | |
| Prostaglandine E2 | Tocris | 2296 | |
| qPCR machine | Biorad | C1000-Touch | |
| Rho kinase inhibitor | AbMole | M1817 | |
| RNA extraction kit | Qiagen | 74534 | De handleiding is hier beschikbaar: https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 f-291d-48ae-8206-86b0696b28c0& lang=en |
| R-spo3 UPE | IPA Therapeutics | R001 | |
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Spectinomycin | Sigma-Aldrich | S9007 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| SYBR green | Biorad | 170-8887 | de handleiding is hier beschikbaar: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| Thermocycler | Biorad | T100 | |
| Cell culture insert | Transwells 24w 3 µm pores, Greiner | 662631 | |
| Triton X-100 | Sigma-Aldrich | T8787 | |
| TrypLE | Gibco, Thermo Fisher Scientific | 12605-010 | |
| Wnt surrogate | U-Protein Express | custom order | https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
Referenties
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
Herprints en machtigingen
