SNRNP70 toont potentieel als diagnostische marker voor artrose (OA), met consequent lagere expressie in OA-weefsels dan bij controles. Het kan ook ontstekingsremmende effecten hebben, wat wijst op een therapeutische weg. Toekomstige mechanistische studies zouden kunnen helpen om OA-beheer te bevorderen.
Onderzoeksartikel
SNRNP70 wordt geassocieerd met focale adhesie-gerelateerde signaturen en chondrocytontsteking bij artrose
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Artrose (OA) is een degeneratieve gewrichtsaandoening die wordt gekenmerkt door progressieve kraakbeenafbraak en synoviale ontsteking, maar de belangrijkste moleculaire drijfveren van de pathogenese blijven onvolledig begrepen. Hier werd onderzocht of SNRNP70—een kerncomponent van het U1 snRNP-complex dat essentieel is voor pre-mRNA splicing—bijdraagt aan de progressie van OA. Analyse van tien openbare transcriptomische datasets toonde aan dat SNRNP70 consequent werd verlaagd in OA-kraakbeen vergeleken met normale controles. Een meta-analyse gaf verder een goede diagnostische nauwkeurigheid voor OA, met een gepoolde AUC van 0,92. In primaire rattenchondrocyten die gestimuleerd werden met interleukine-1β (IL-1β), werd SNRNP70 expressie onderdrukt onder inflammatoire omstandigheden. Gedwongen expressie van SNRNP70 verminderde niet alleen de productie van pro-inflammatoire mediatoren (IL-6 en MMP-13), maar herstelde ook belangrijke extracellulaire matrix (ECM)-componenten (ACAN en COL2A1) en bevorderde de migratie en wondgenezing van chondrocyten. De correlatie van Pearson, gevolgd door KEGG-verrijking, gaf aan dat focale adhesiesignalering een route was die geassocieerd werd met SNRNP70 regulatie. Rescue-experimenten ondersteunden het idee dat SNRNP70 de herstelcapaciteit van chondrozyten ten minste gedeeltelijk versterkt door deze route te activeren. Samen suggereren deze bevindingen dat SNRNP70 mogelijk dient als een voorheen onbekende regelaar van de functie van inflammatoire chondrozyten en de homeostase van kraakbeen. Ze roepen ook de mogelijkheid op van een mechanistisch verband tussen spliceosoomactiviteit en focale adhesie-gemedieerde matrixsynthese, wat verdere evaluatie van SNRNP70 als kandidaat diagnostische marker of therapeutisch doelwit bij OA rechtvaardigt.
Inleiding
Artrose (OA) is een veelvoorkomende gewrichtsaandoening die vooral mensen van 65 jaar en ouder treft en ongeveer 7% van de wereldbevolking treft 1,2. Verbazingwekkend genoeg steeg de wereldwijde prevalentie van OA tussen 1990 en 2019 met maar liefst 113,25%, van 247,51 miljoen tot 527,81miljoen 3. OA wordt voornamelijk gekenmerkt door de sluipende progressie van degeneratieve veranderingen in gewrichtsweefsels, met als belangrijkste kenmerken kraakbeenafbraak en synoviale ontsteking 4,5,6. Opmerkelijk is dat mechanische overbelasting en de onstuitbare voortgang van de tijd zijn vastgesteld als de twee meest uitgesproken risicofactoren die bijdragen aan de pathogenese 7,8. Bovendien benadrukken steeds meer studies de cruciale rol die meniscusdegeneratie speelt als een integraal element in de ingewikkelde pathologie van OA9. Eerdere onderzoeken hebben overtuigend aangetoond dat meniscale laesies 68% tot 90% van de OA-patiëntentreffen.
Op moleculair niveau wijst een groeiend aantal bewijs erop dat OA niet alleen een gevolg is van biomechanische stress en veroudering, maar ook een ziekte die wordt veroorzaakt door complexe veranderingen in genregulatie en post-transcriptionele controle 12,13,14. Onder deze mechanismen heeft het spliceosoom steeds meer aandacht gekregen in verschillende ziektecontexten. Intrigerend is dat, hoewel het onderwerp is geweest van uitgebreid onderzoek naar de pathogenese van ontsteking, de rol van het spliceosoom bij OA opvallend onderbelicht is 15,16,17. In wezen kan het spliceosoom worden opgevat als een eiwitgericht metaalribozym18,19. Onder deze mechanismen is RNA-splicing uitgegroeid tot een cruciale factor voor het fenotype van chondrocyten en de homeostase van ECM. Precieze splicing zorgt voor de juiste expressie van structurele en signaaleiwitten die essentieel zijn voor de integriteit van kraakbeen, terwijl aberrant splicing de ECM-omzet kan verstoren, katabole routes kan bevorderen en kraakbeendegeneratie kan versnellen 20,21,22.
Recente studies hebben spliceosomale eiwitten benadrukt als belangrijke regulatoren van de homeostase van gewrichtsweefsel, maar de rol van deze eiwitten in de pathogenese van OA blijft grotendeels onontgonnen23. In het bijzonder regelt SNRNP70, een kerncomponent van het U1 kleine nucleaire ribonucleoproteïnecomplex, de herkenning van 5′-splitplaatsen tijdens pre-mRNA-verwerking en beïnvloedt daarmee de opname of uitsluiting van specifieke exonen24,25. Dysregulatie van SNRNP70 is in verband gebracht met verschillende pathologische aandoeningen, maar de bijdrage ervan aan kraakbeendegeneratie is nog niet eerder gekarakteriseerd. Een mogelijk doelwit van spliceosoom-gemedieerde regulatie is focale adhesiekinase (FAK), een centraal signaalmolecuul dat mechanische en biochemische signalen integreert om chondrocytadhesie, cytoskeletale dynamiek, overleving en mechantransductie26 te reguleren. Verhoogde FAK-activiteit is in verband gebracht met verhoogde focale adhesiesignalering, wat op zijn beurt de ECM-synthese en upregulatie van belangrijke kraakbeenspecifieke eiwitten bevordert, waaronder aggrecan (ACAN) en collageen type II alfa 1 (COL2A1)27,28. Deze eiwitten zijn onmisbaar voor het behouden van de structuur en functie van kraakbeen, en hun afregulering is een kenmerk van de progressie van OA.
Ondanks vooruitgang in transcriptie- en epigenetisch onderzoek naar OA, blijft de rol van door spliceosoom gemedieerde FAK-regulatie bij het reguleren van focale adhesiesignalering en ECM-metabolisme slecht gedefinieerd. Op basis van deze observaties werd geredeneerd dat SNRNP70 het gedrag van chondrocyten en ECM-homeostase kon beïnvloeden door FAK-alternatieve splicing en, stroomafwaarts, focale adhesiesignalering te moduleren. Om dit idee te testen, was de eerste vraag of SNRNP70 expressie in OA is veranderd; Het potentieel als diagnostische marker werd geëvalueerd en mogelijke verbanden met ontstekingsresponsen en focale adhesie-gerelateerde routes in chondrocyten onderzocht.
Protocol
Het dieronderzoeksprotocol werd goedgekeurd door de Ethische Commissie van de Guangxi Medische Universiteit en het Eerste Aangesloten Ziekenhuis van Guangxi Medical University (protocolcode 202109001, nr. 2022-KY-E-252).
VOORZICHTIG: Alle procedures moeten voldoen aan institutionele en nationale richtlijnen voor dierenzorg. Getraind personeel moet PBM dragen (handschoenen, maskers, labjassen) bij het hanteren van dieren of monsters. Operaties vereisen adequate verdoving en postoperatieve monitoring. Meld bijwerkingen (bloedingen, infectie, gedragsveranderingen) snel. Verwijder karkassen en besmette materialen op de juiste manier. Voer regelmatig inspecties uit om naleving te waarborgen. De commerciële details van de dieren, reagentia en apparatuur die in deze studie zijn gebruikt, staan vermeld in de Materiaallijst.
Patiënten en genexpressiedatasets
Om de expressiepatronen van SNRNP70 bij OA te onderzoeken, werden publiekelijk beschikbare RNA-sequencing (RNA-seq) en microarray-datasets systematisch opgehaald uit de Gene Expression Omnibus (GEO) database (https://www.ncbi.nlm.nih.gov/geo/)21. De zoekstrategie bevatte de volgende trefwoorden: "SNRNP70 OR RPU1 OR Snp1 OR U1AP OF U170K OF U1RNP OF RNPU1Z OF SNRP70 OF U1-70K" gecombineerd met "OA." Inclusiecriteria werden als volgt gedefinieerd:(i) datasets afkomstig van menselijke monsters; (ii) studies die zich specifiek richten op OA, waarbij reumatoïde artritis en andere ontstekingsgewrichtsziekten zijn uitgesloten; (iii) beschikbaarheid van ten minste drie onafhankelijke biologische replicaten in zowel OA- als normale controlegroepen (NC), waardoor de berekening van gestandaardiseerde gemiddelde verschillen (SMD) mogelijk wordt. Gegevensverwerkingsworkflow: Na het identificeren van geschikte datasets werden de ruwe expressiegegevens en bijbehorende klinische metadata gedownload. Voor microarray-datasets werden probe-niveau data genormaliseerd met behulp van het robuuste multi-array average (RMA) algoritme, en werden probes geannoteerd met officiële gensymbolen via de platformannotatiebestanden. Voor RNA-seq datasets werden ruwe tellingen omgezet naar transcripts per miljoen (TPM) waarden, waarna log2-getransformeerd om vergelijkbaarheid tussen datasets te waarborgen. Wanneer meerdere probes naar hetzelfde gen werden gekoppeld, bleef de probe met de hoogste expressievariantie tussen de monsters behouden. Kwaliteitscontrole en harmonisatie: Om batcheffecten tussen verschillende studies te minimaliseren, werd de ComBat-functie uit het "sva" R-pakket toegepast. Principal component analysis (PCA) werd zowel voor als na correctie uitgevoerd om de effectiviteit van batch-effectverwijdering te evalueren. Datasets die slechte kwaliteit vertoonden, onvolledige annotaties vertoonden of geen onderscheid maakten tussen OA- en NC-groepen, werden uitgesloten van verdere analyse.
Identificatie van differentieel geexpresseerde SNRNP70 in OA en normaal kraakbeen
Om de differentiële expressie van SNRNP70 tussen OA- en normale kraakbeen (NC) weefsels te evalueren, werd een meerstaps analytische aanpak toegepast. Ten eerste werden expressiegegevens voor SNRNP70 geëxtraheerd uit beschikbare datasets. Statistische vergelijkingen tussen OA- en NC-groepen werden uitgevoerd met behulp van de Student's t-test om te bepalen of de gemiddelde expressieniveaus significant verschilden. Om het discriminerende vermogen van SNRNP70 verder te beoordelen, werden receiver operating characteristic (ROC)-curves gegenereerd met behulp van GraphPad Prism 8.0 en het Sangerbox-platform (http://vip.sangerbox.com/). Het oppervlak onder de curve (AUC) werd berekend om de diagnostische efficiëntie van SNRNP70 expressieniveaus te kwantificeren.
Vervolgens werd een meta-analyse uitgevoerd met behulp van Stata 14.0 om bevindingen over meerdere datasets te integreren. Statistische heterogeniteit werd geëvalueerd met behulp van de Cochran's Q-test en de I2-statistiek . Wanneer de heterogeniteit laag was (p > 0,01 en I2 < 50%), werd een fixed-effects model toegepast; anders werd een random-effects model toegepast. Het gestandaardiseerde gemiddelde verschil (SMD) met het bijbehorende 95% betrouwbaarheidsinterval (BI) werd berekend om het verschil in SNRNP70 expressie tussen OA- en NC-weefsels te kwantificeren. Voor diagnostische nauwkeurigheid werd een diagnostische meta-analyse uitgevoerd met behulp van de Midas-module in Stata. Deze analyse schatte de gevoeligheid, specificiteit, positieve likelihood ratio (PLR), negatieve likelihood ratio (NLR) en diagnostische odds ratio (DOR) voor SNRNP70. Daarnaast werd een samenvattende ontvanger-operating characteristic (sROC) curve geconstrueerd om een algemene beoordeling van de diagnostische prestaties te geven. Ten slotte werden gevoeligheidsanalyses uitgevoerd door individuele datasets sequentieel uit te sluiten om de robuustheid en stabiliteit van de gepoolde resultaten te evalueren. Potentiële publicatiebias werd beoordeeld met behulp van Deeks' funnel plot asymmetrietest. Met dit geïntegreerde analytische kader werden de expressiepatronen en het diagnostisch potentieel van SNRNP70 in OA-weefsels vergeleken met NC-weefsels systematisch geëvalueerd.
Celisolatie en -kweek
Primaire chondrocyten werden geïsoleerd uit het gewrichtskraakbeen van postnatale dag 2 Sprague–Dawley-ratten. In totaal werden zes neonatale ratten gebruikt voor elke isolatie. Omdat de dieren in een vroeg postnataal stadium werden verzameld, werd het geslacht niet vastgesteld. Voor elke onafhankelijke celpreparaat werden kraakbeenweefsels van alle zes ratten geoogst en verzameld vóór de kweek. Elke onafhankelijk geïsoleerde chondrocytpreparat—afgeleid van een aparte set dieren—werd behandeld als één biologische replicatie. Technische replicaten, waaronder herhaalde wells of herhaalde qRT-PCR-reacties uit dezelfde celpreparat, werden niet beschouwd als onafhankelijke biologische replicata.
Kort gezegd werden neonatale ratten onder steriele omstandigheden geëuthanaseerd en werden de kniegewrichten ontleed om het gewrichtskraakbeen bloot te leggen. Kraakbeen werd zorgvuldig gescheiden van het subchondrale bot met behulp van een microchirurgische schaar, gehakt tot fragmenten van ongeveer 1 mm³, en vervolgens sequentieel verteerd met enzymen. De weefselfragmenten werden eerst geïncubeerd met 0,25% trypsine–EDTA gedurende 30 minuten bij 37 °C om het resterende bindweefsel te verwijderen. Na wassen met fosfaatgebufferde zoutoplossing werden de resterende fragmenten verteerd met 0,2% collagenase type II in serumvrije DMEM gedurende 4–6 uur bij 37 °C met zachte schudding. De resulterende celsuspensie werd gefilterd door een 70 μm celzeef, gecentrifugeerd op 300 × g gedurende 5 minuten, en opnieuw opgehangen in complete DMEM, aangevuld met 10% foetaal rundserum, 100 U/mL penicilline en 100 μg/mL streptomycine. Cellen werden in kweekkolven gezaaid en op 37 °C gehouden in een bevochtigde broedmachine met 5% CO₂. Het medium werd elke 2–3 dagen verwisseld. Alleen passage 1 of 2 chondrocyten werden gebruikt voor latere experimenten om dedifferentiatie te minimaliseren.
De identiteit en zuiverheid van chondrocyten werden bevestigd vóór experimenteel gebruik. Morfologisch vertoonden primaire cellen een typisch polygonaal of keienachtig chondrocyt-uiterlijk onder fasecontrastmicroscopie. Op moleculair niveau werd de identiteit van chondrozyten bevestigd door de expressie van kraakbeengeassocieerde markers, waaronder COL2A1 en ACAN, met behulp van een Western blot. Voor het in vitro ontstekingsmodel werden primaire chondrocyten gestimuleerd met recombinante rat-interleukine-1β (IL-1β) bij 10 ng/mL gedurende 48 uur. Onbehandelde cellen die onder identieke omstandigheden werden gekweekt, dienden als de normale controlegroep. Voor SNRNP70 overexpressie-experimenten werden chondrocyten uit onafhankelijke biologische preparaten afzonderlijk getransfecteerd, en werd elke biologische replicaat onafhankelijk verwerkt tijdens transfectie, IL-1β-stimulatie, RNA/eiwitextractie en statistische analyse.
Realtime kwantitatieve PCR (qRT-PCR)
Totaal RNA werd geïsoleerd uit subconfluente chondrocytenculturen (~80% confluentie) met behulp van de RNAfast200-kit. De zuiverheid van RNA werd beoordeeld op een NanoDrop 2000, waarbij alleen monsters werden geaccepteerd met een A260/280-verhouding van 1,8–2,0, en de integriteit werd bevestigd door 1% agarosegelelektroforese. Eerstestreng cDNA werd omgekeerd getranscribeerd uit 1 μg totaal RNA met behulp van de qPCR RT Kit in een 20 μL reactie met willekeurige primers en dNTP's. Het thermische profiel voor omgekeerde transcriptie was 42 °C gedurende 30 minuten, gevolgd door 95 °C gedurende 5 minuten. qPCR werd uitgevoerd met een SYBR Green-gebaseerde premix op een real-time PCR-systeem. Elke 20 μL reactie bestond uit 10 μL SYBR Green Master Mix, 0,5 μL elk van voor- en achteruitprimers (10 μM), 2 μL cDNA en 7 μL nucleasevrij water. De fietsomstandigheden waren: 95 °C gedurende 30 seconden, daarna 40 cycli van 95 °C voor 5 seconden en 60 °C voor 30 seconden. Smeltcurveanalyse werd na amplificatie uitgevoerd om de specificiteit van één product te verifiëren. GAPDH diende als interne referentie, en de relatieve expressie werd berekend met de 2−ΔΔCt-methode . Reacties werden uitgevoerd in drievoudige vorm met drie onafhankelijke biologische replicata. Primersequenties worden vermeld in Tabel 1.
Westelijk vlek
Eiwitexpressie van ACAN, COL2A1 en MMP13 werd geëvalueerd in chondrocyten na behandeling met IL-1β en SNRNP70 overexpressie. Cellen werden twee keer gewassen met ijskoude fosfaatgebuffte zoutoplossing (PBS) en gelyseerd in RIPA-buffer met protease- en fosfataseremmers. Lysaten werden 30 minuten op ijs geïncubeerd met periodiek vortexen, waarna ze 15 minuten bij 4 °C centrifugeerden op 12.000 × g . De eiwitconcentraties in de vrijgemaakte supernatanten werden bepaald met behulp van een BCA-kit. Gelijke hoeveelheden eiwit (30 μg per baan) werden gescheiden door 10% SDS-PAGE en via natte overdracht naar PVDF-membranen overgedragen. De membranen werden 1 uur geblokkeerd met 5% magere melk in TBST bij kamertemperatuur, waarna ze 's nachts bij 4 °C werden onderzocht met primaire antilichamen tegen ACAN (1:1000), COL2A1 (1:1000) of MMP13 (1:1000). Na drie TBST-wasbeurten (elk 10 min) werden membranen geïncubeerd met HRP-geconjugeerde secundaire antilichamen (1:5000) gedurende 1 uur bij kamertemperatuur. Signal werd ontwikkeld met behulp van ECL-reagens en vastgelegd op een ChemiDoc XRS+-systeem. Banddensitometrie werd uitgevoerd met ImageJ, en alle doeleiwitsignalen werden genormaliseerd naar GAPDH als laadcontrole. De gegevens worden gepresenteerd als relatieve eiwitniveaus ten opzichte van de controlegroep.
Transfectie
Chondrocyten werden getransfecteerd met een SNRNP70 overexpressieplasmide (oe-SNRNP70) zodra de culturen ongeveer 80% confluentie bereikten. Voor transfectie werden cellen in 6-wellplaten geplaatst met 2 × 10⁵ cellen per put en 's nachts gehecht in standaard groeimedium (DMEM aangevuld met 10% foetaal rundserum en 1% penicilline/streptomycine) bij 37 °C in 5% CO₂. Transfectionen werden uitgevoerd met LipoFiter 3.0 volgens de instructies van de fabrikant. Kort gezegd werd 2–3 μg plasmide-DNA per put verdund in 100 μL serumvrij medium en gemengd met de juiste hoeveelheid lipide-reagentia. De DNA-lipidecomplexen werden 15–20 minuten bij kamertemperatuur geïncubeerd om complexvorming mogelijk te maken, en vervolgens voorzichtig toegevoegd aan elke put met chondrocyten in een verse, serumvrije medium. Na 6 uur werd het medium vervangen door een volledig groeimedium om cytotoxiciteit te verminderen.
Transfectie-efficiëntie en SNRNP70-expressie werden 48–72 uur na transfectie beoordeeld. SNRNP70 mRNA-niveaus werden gemeten met kwantitatieve real-time PCR (qRT-PCR), met GAPDH als interne controle. De eiwitexpressie werd geëvalueerd met het Simple Western Automated Western Blot System volgens het protocol van de fabrikant. Kort gezegd werden cellysaten bereid, eiwitconcentraties gemeten en monsters op capillaire cartridges geladen voor geautomatiseerde scheiding en immunodetectie met anti-SNRNP70 antilichamen. De transfectie-efficiëntie werd berekend door SNRNP70 expressie in oe-SNRNP70-getransfecteerde cellen te vergelijken met die in controlecellen die met de lege vector werden getransfecteerd.
Immunofluorescentie
Immunofluorescentie werd gebruikt om IL-6- en MMP-13-eiwitniveaus in oe-SNRNP70 chondrocyten na IL-1β-stimulatie te onderzoeken. Kort gezegd werden cellen op steriele glazen dekfolies in 24-wellplaten gezaaid en onder standaardomstandigheden gekweekt totdat ze een samenvloeiing van 70–80% bereikten. Daarna werden ze 15 minuten op kamertemperatuur vastgezet met 4% paraformaldehyde en drie keer gewassen met PBS. Voor permeabilisatie werd 0,1% Triton X-100 in PBS gedurende 10 minuten bij kamertemperatuur aangebracht. Niet-specifieke bindingsplaatsen werden geblokkeerd door de cellen te incuberen in 5% rundereserumalbumine (BSA) in PBS gedurende 1 uur bij kamertemperatuur.
Na blokkering werden cellen 's nachts geïncubeerd bij 4 °C met primaire antilichamen tegen IL-6 en MMP-13 (verdund 1:200 in 1% BSA/PBS). Na drie washes met PBS om ongebonden primaire antilichamen te verwijderen, werden cellen geïncubeerd met soortspecifieke fluorofoor-geconjugeerde secundaire antilichamen (verdund 1:500) gedurende 1 uur bij kamertemperatuur in het donker. De kernen werden 5 minuten geïntroduceerd met 4′,6-diamidino-2-fenylindool (DAPI). Dekfolies werden gemonteerd op glazen glaasjes met antifade montagemedium, en fluorescentiebeelden werden vastgelegd met een fluorescentiemicroscoop op 20× vergroting. Voor kwantitatieve analyse werden 10 willekeurig geselecteerde cellen per monster geanalyseerd in ImageJ om de fluorescentieintensiteit van de doeleiwitten te meten. De gemiddelde fluorescentieintensiteit werd berekend voor elke groep en gebruikt voor statistische vergelijking.
Cell scratch wondsluitingstest
Er werd een kraswondsluitingstest uitgevoerd om het vermogen van chondrocyten te evalueren om een kunstmatige wondopening onder verschillende behandelingsomstandigheden te sluiten. Primaire chondrocyten werden gezaaid in 6-wellplaten met een dichtheid van 1 × 10⁵ cellen per put en gekweekt totdat ongeveer 90% confluentie was bereikt. Er werd een lineaire kras gegenereerd in de celmonolaag met behulp van een steriele pipettip van 200 μL. Losgekoppelde cellen werden verwijderd door tweemaal te wassen met PBS, waarna een vers compleet kweekmedium met de aangegeven behandelingen werd toegevoegd. Cellen werden toegewezen aan de volgende groepen: normale controle, IL-1β-behandeld en IL-1β plus SNRNP70 overexpressie. Beelden van hetzelfde wondgebied werden gemaakt op 6 uur en 12 uur na het krabben met een omgekeerde microscoop (Aanvullende Figuur 1). Wondsluiting werd berekend als het percentage vermindering van het wondoppervlak ten opzichte van het initiële wondoppervlak bij 0 uur met de volgende formule:
wondsluiting (%) = [(wondgebied op 0 uur - wondgebied op het aangegeven tijdstip) / wondgebied op 0 uur] × 100. (1)
Statistische analyse
Alle kwantitatieve gegevens worden gepresenteerd als het gemiddelde ± standaarddeviatie (SD) van drie onafhankelijke biologische replicaten (n = 3), tenzij anders vermeld. Statistische analyses werden uitgevoerd met GraphPad Prism 8.0. Voor vergelijkingen tussen twee groepen werd een ongepaarde Student's t-test gebruikt. De statistische significantie werd als volgt aangegeven: *p < 0,05 en **p < 0,01.
Resultaten
SNRNP70 expressie in gewrichtsholteweefsels
Om de rol van SNRNP70 bij OA volledig te onderzoeken, werd een systematische screening uitgevoerd van 10 publiek beschikbare RNA-seq en microarray-datasets die voldeden aan strikte inclusie- en exclusiecriteria (Tabel 2). SNRNP70 expressieniveaus werden zorgvuldig geëxtraheerd en geanalyseerd over deze datasets. Opvallend is dat in 6 van de 10 cohorten SNRNP70 expressie significant werd gedownreguleerd in OA-weefsels vergeleken met normale controles (p < 0,05), wat wijst op een consistent patroon van transcriptiesuppressie (Figuur 1).
Opmerkelijk is dat drie datasets (GSE114007, GSE169077 en GSE19060) geen statistisch significante verschillen tussen OA- en controlesteekproeven lieten zien. In plaats van deze discrepanties te negeren, werden batchcorrectie en datasetintegratiestrategieën ingezet om de robuustheid en betrouwbaarheid van de analyse te verbeteren. Specifiek werden datasets afkomstig van identieke sequencingplatforms samengevoegd om de statistische kracht te vergroten. Zo werd GSE114007 gecombineerd met GSE89408 om GSE114007-89408 te genereren, terwijl GSE169077, GSE12021 en GSE55457 werden samengevoegd tot GSE169077-12021-55457 (Figuur 1). Deze integratieve benadering minimaliseerde de variabiliteit tussen de studies en versterkte de reproduceerbaarheid van de bevindingen. Samenvattend tonen analyses van menselijke datasets een consistente downregulatie van SNRNP70 in OA-gewrichtsweefsels, wat wijst op het potentieel ervan als diagnostische biomarker. Of deze afname direct splicing-dysregulatie of kraakbeendegeneratie bij mensen veroorzaakt, is echter onduidelijk en wacht nog op verificatie, bij voorkeur in menselijke weefselmodellen.
Klinische diagnostische capaciteit van SNRNP70
Om de diagnostische waarde van SNRNP70 bij OA rigoureus te evalueren, werd een uitgebreide meta-analyse uitgevoerd waarin gegevens van 165 OA-monsters en 125 normale controles werden geïntegreerd. Dit vertegenwoordigt, voor zover we weet, de systematische beoordeling van SNRNP70 als een potentiële diagnostische biomarker in OA. De heterogeniteitsanalyse toonde significante heterogeniteit aan tussen datasets (I2 = 72,9%; p = 0,001), wat een random-effects model noodzakelijk maakt. De gepoolde analyse toonde een robuuste en consistente vermindering van SNRNP70-expressie in OA-weefsels vergeleken met normale controles, met een gestandaardiseerd gemiddelde verschil (SMD) van -1,07 (95% BI: -1,34 tot -0,80) (Figuur 2A–B). Naast expressieprofilering werd de diagnostische prestaties van SNRNP70 verder geëvalueerd. De gepoolde diagnostische testresultaten toonden een gecombineerde gevoeligheid van 0,82 (95% BI: 0,57–0,94) en specificiteit van 0,88 (95% BI: 0,73–0,95), wat de sterke discriminerende capaciteit benadrukt (Figuur 3A). Consistent leverde de samenvattende ontvanger-operating characteristic (SROC)-curve een oppervlakte onder de curve (AUC) van 0,92 op (95% BI: 0,90–0,94), wat de hoge nauwkeurigheid van SNRNP70 bij het onderscheiden van OA-patiënten van gezonde individuen verder benadrukt (Figuur 3B).
Om de robuustheid van deze bevindingen te waarborgen, werd een gevoeligheidsanalyse uitgevoerd, waarmee werd bevestigd dat sequentiële uitsluiting van individuele datasets de totale effectgrootte niet wezenlijk veranderde (Figuur 4A). Belangrijk is dat zowel Deeks funnel plot asymmetrietest (p = 0,41) als Eggers test geen significante publicatiebias aantoonden, wat de geloofwaardigheid van de resultaten versterkte (Figuur 4B). Samen tonen deze gegevens aan dat SNRNP70 expressie verminderd is bij OA en suggereren dat deze als diagnostische biomarker kan dienen. Dat gezegd hebbende, de heterogeniteit tussen datasets en het ontbreken van een onafhankelijke validatiecohort rechtvaardigen voorzichtigheid. Deze bevindingen worden daarom als voorlopig beschouwd, in afwachting van verdere studies om het klinische nut van SNRNP70 bij de diagnose en behandeling van OA te verduidelijken.
SNRNP70 modulatie van de ontstekingsgenexpressie bij OA
Om de regulerende rol van SNRNP70 in inflammatoire signalering tijdens OA-progressie te achterhalen, werd aanvankelijk een in vitro OA-model ontwikkeld door chondrocyten bloot te stellen aan IL-1β, een goed gekarakteriseerde pro-inflammatoire cytokine. qRT-PCR-analyse uitgevoerd na 48 uur IL-1β-stimulatie toonde een significante downregulatie van SNRNP70 mRNA-niveaus vergeleken met de NC-groep (Figuur 5). Deze onderdrukking van SNRNP70-expressie onder ontstekingsomstandigheden was consistent met transcriptomische gegevens uit publiek beschikbare OA-datasets, wat robuust bewijs leverde dat SNRNP70 consequent wordt onderdrukt bij OA-gerelateerde ontsteking. Om verder te onderzoeken of het herstellen van SNRNP70 expressie het ontstekingsfenotype van chondrocyten kon moduleren, werden cellen getransfecteerd met behulp van een SNRNP70 overexpressieplasmide (oe-SN). Opmerkelijk genoeg verminderde de gedwongen expressie van SNRNP70 de door IL-1β veroorzaakte ontsteking aanzienlijk, zoals blijkt uit zowel transcriptionele als translationele veranderingen. Specifiek toonde qRT-PCR een robuuste vermindering van IL-6 en MMP-13 mRNA-niveaus in de oe-SN groep vergeleken met met IL-1β behandelde controles (Figuur 5).
Naast deze moleculaire bevindingen leverde immunofluorescentiekleuring direct cellulair bewijs van het ontstekingsremmende potentieel van SNRNP70. In met IL-1β behandelde cellen vertoonde IL-6 uitgesproken cytoplasmatische accumulatie, wat overeenkomt met een geactiveerde ontstekingstoestand. Opvallend is dat overexpressie van SNRNP70 leidde tot een opvallende afzwakking van de IL-6 cytoplasmatische kleuringsintensiteit (Figuur 6A), waarmee het vermogen om de ontstekingsreactie op cellulair niveau om te keren werd benadrukt. Een vergelijkbaar patroon werd waargenomen voor MMP-13, waarbij de behandeling met IL-1β de expressie versterkte, maar SNRNP70 overexpressie de lokalisatie en signaalintensiteit van MMP-13 duidelijk onderdrukte (Figuur 6B).
In tegenstelling tot eerdere onderzoeken die zich vooral richtten op structurele kraakbeenschade, suggereren de in vitro gegevens van rattenchondrocyten dat SNRNP70 fungeert als regelaar van de ontstekingsgenexpressie. Specifiek werd de gedwongen expressie van SNRNP70 verzwakte IL-1β-gedreven pro-inflammatoire mediatoren, waaronder IL-6 en MMP-13, in dit rattenmodel. Belangrijk is dat deze experimenten, omdat ze uitsluitend in een rat-inflammatoire model zijn uitgevoerd, de bevindingen van de menselijke dataset niet direct herhalen. Desalniettemin bieden deze resultaten een conceptueel kader, dat aangeeft dat SNRNP70 niet alleen als een splicingfactor kan functioneren, maar ook als potentiële modulator van ontsteking—een mogelijkheid die verdere verkenning in menselijk weefsel verdient.
Identificatie van SNRNP70-gerelateerde routes in OA
Om biologische routes te onderzoeken die geassocieerd zijn met SNRNP70 expressie bij artrose, werd Pearson-correlatieanalyse afzonderlijk uitgevoerd in de openbare transcriptomische datasets van GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408 en GSE82107-19060. Genen met een absolute correlatiecoëfficiënt (|r|) > 0,8 en p < 0,05 werden als significant gecorreleerd beschouwd met SNRNP70 expressie in elke dataset. De vereniging van gecorreleerde genen over alle datasets werd gegenereerd, wat resulteerde in 929 SNRNP70-gerelateerde genen.
KEGG-padverrijkingsanalyse werd vervolgens uitgevoerd met behulp van het clusterProfiler-pakket, met aanpassingen voor meerdere tests via de Benjamini–Hochberg-methode. Deze analyse toonde een significante verrijking van de geïdentificeerde genen in verschillende routes, waaronder het focale adhesiepad (Figuur 7). Deze signaalcascade staat bekend om het reguleren van chondrocytadhesie, mechanotransductie en ECM-remodeling, die allemaal belangrijke processen zijn in de progressie van OA. Samen suggereren deze bevindingen een verband tussen SNRNP70 expressie en focale adhesie-gerelateerde genexpressiesignaturen in OA-datasets.
SNRNP70 geneest de herstel van inflammatoire chondrocyten via de focale adhesieweg
Om de rol van SNRNP70 in het wondgenezingsvermogen van inflammatoire chondrocyten te evalueren, werd een scratch wound-closure assay uitgevoerd met primaire chondrocyten. Cellen werden toegewezen aan drie groepen: normale controle, IL-1β-behandeld en IL-1β plus SNRNP70 overexpressie. IL-1β-stimulatie verminderde de mate van krasgapiesluiting vergeleken met de normale controlegroep, wat wijst op een verminderd wondgenezingsvermogen onder ontstekingstoestanden. Daarentegen bevorderde SNRNP70 overexpressie het sluiten van de scratch gap in met IL-1β behandelde chondrocyten ten opzichte van alleen de behandeling met IL-1β (Figuur 8A). Gezamenlijk geven deze resultaten aan dat SNRNP70 overexpressie de wondsluitingsrespons van IL-1β-behandelde chondrozyten versterkt.
Op moleculair niveau toonden Western blot-analyses aan dat IL-1β-behandeling de expressie van kraakbeenmatrixeiwitten ACAN en COL2A1 onderdrukte, terwijl het de upregulatie van het afbrekende enzym MMP13 bevorderde. Belangrijk is dat SNRNP70 overexpressie niet alleen ACAN- en COL2A1-niveaus herstelde, maar ook MMP13 aanzienlijk verlaagde, waardoor ECM-integriteit behouden bleef (Figuur 8B). Mechanistisch, in vitro, waren de gunstige effecten van SNRNP70 nauw samenhangend met de activatie van de focale adhesie-signaalroute.
Gezamenlijk tonen analyses van menselijke datasets aan dat SNRNP70 is gedownreguleerd bij OA en dat de expressie ervan correleert met genen die betrokken zijn bij het focale adhesiepad. Bij rattenchondrocyten die aan IL-1β-stimulatie zijn blootgesteld, bevordert gedwongen expressie van SNRNP70 de herstel van inflammatoire cellen en ECM-synthese, en associeert het ook met focale adhesiesignalering. Hoewel deze in vitro waarnemingen van een rattenmodel suggestief zijn, onderbouwen ze de bevindingen uit menselijke datasets niet direct. Desalniettemin ondersteunen deze convergente bewijslijnen een model waarin SNRNP70 bijdraagt aan de pathogenese van humane OA via focale adhesiesignalering—een hypothese die nu wacht op definitieve bevestiging in menselijke weefsels of in vivo modellen met menselijke relevantie.
BESCHIKBAARHEID GEGEVENS:
De datasets die in deze studie zijn gebruikt en geanalyseerd, zijn beschikbaar uit de GEO-dataset (https://www.ncbi.nlm.nih.gov/geo/). Alle tijdens deze studie gegenereerde of geanalyseerde gegevens zijn volledig gepresenteerd en besproken binnen het manuscript. De ruwe gegevens van deze studie worden geüpload als een aanvullend bestand.
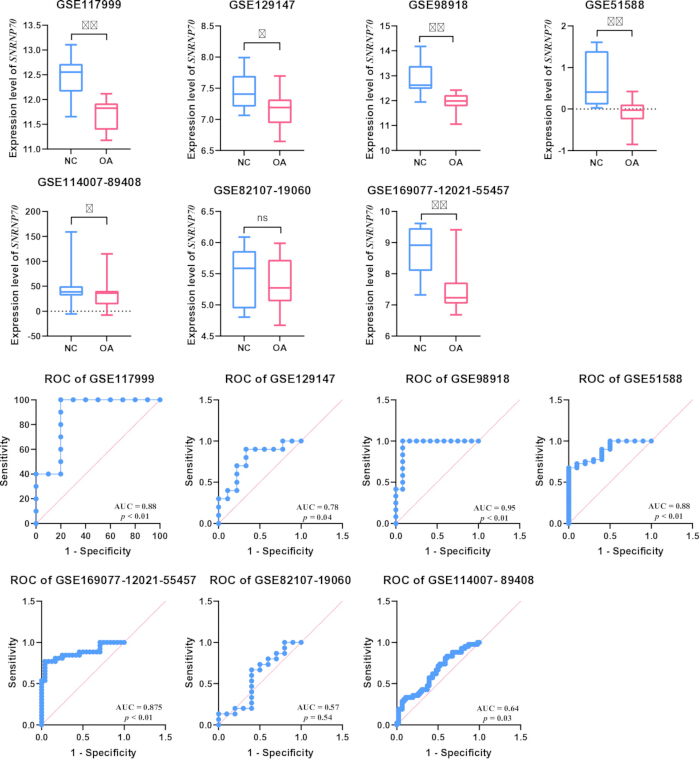
Figuur 1: De t-test van de studenten en de ROC-curve voor zeven studies. De resultaten suggereerden dat SNRNP70 expressie lager was in OA-weefsels dan in NC-weefsels in GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408 en GSE169077-12021-55457 (p < 0,05), en de ROC AUC gaf een hoge haalbaarheid aan. p < 0,05 (*), p < 0,01(**). Klik hier om een grotere versie van deze figuur te bekijken.
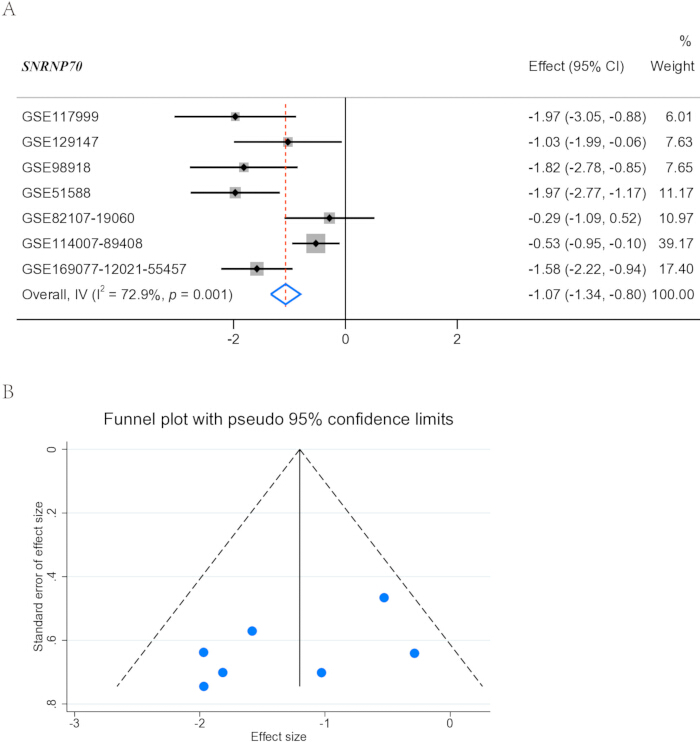
Figuur 2: De meta-analyse voor zeven datasets. (A) De resultaten toonden aan dat I2 = 72,9%, p = 0,001, en de totale SMD -1,07 was. (B) Het trechterdiagram werd geëvalueerd op publicatiebias in de meta-analyse. Het bleek in wezen symmetrisch te zijn. Klik hier om een grotere versie van deze figuur te bekijken.
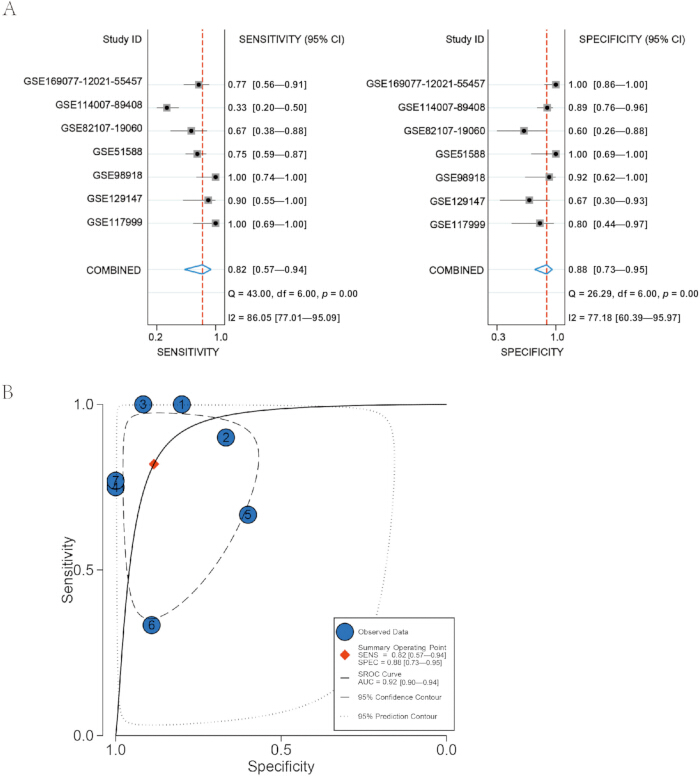
Figuur 3: De diagnostische prestaties van SNRNP70. (A) De Q-test toonde aan dat zowel gevoeligheid als specificiteit p-waarden < 0,05 hadden, met I2-waarden van respectievelijk 86,05% en 77,18%, wat wijst op aanzienlijke heterogeniteit. De studie rapporteerde een gevoeligheid van 0,82 en een specificiteit van 0,88, wat de opmerkelijke prestatie benadrukt. (B) De AUC van de sROC was 0,92, wat wijst op een hoog niveau van vertrouwen in het onderzoek. Klik hier om een grotere versie van deze figuur te bekijken.
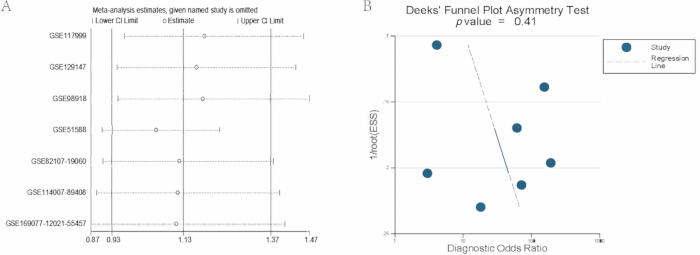
Figuur 4: Invloedanalyse en Deeks trechtergrafiek. (A) De invloedanalyse gaf aan dat het uitsluiten van een individuele studie geen significante invloed had op de totale resultaten. (B) In zeven studies toonden alle resultaten geen significante bias (p = 0,41). Klik hier om een grotere versie van deze figuur te bekijken.
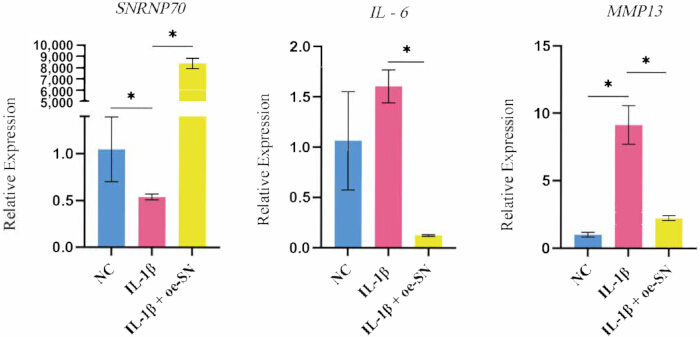
Figuur 5: De qRT-PCR-resultaten geven een significante vermindering van SNRNP70-expressie in chondrocyten aan na behandeling met IL-1β. In de oe-SN-groep was er een opvallende daling van de expressieniveaus van de ontstekingsmarkers IL-6 en MMP13 vergeleken met de IL-1-groep, wat suggereert dat overexpressie van SNRNP70 de ontstekingsmarkers in chondrocyten behandeld met IL-1β kan omkeren. De gegevens worden gepresenteerd als gemiddelde ± SD uit n = 3 onafhankelijke biologische replicata. p-waarden < 0,05 (*), p-waarden < 0,01(**). Klik hier om een grotere versie van deze figuur te bekijken.
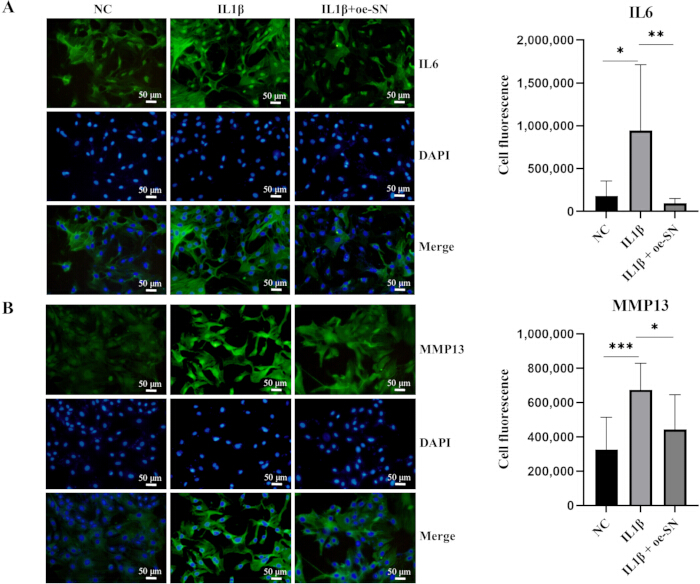
Figuur 6: De IF-analyse van met IL-1β behandelde chondrocyten na IL-1β-behandeling, met de fluorescentieintensiteit. (A) De fluorescentieintensiteit van IL-6 en (B) MMP13 nam significant toe. Echter, overexpressie van SNRNP70 leidde tot een duidelijke vermindering van de fluorescentieintensiteit van de ontstekingsmarkers IL-6 en MMP13. Deze resultaten suggereren dat SNRNP70 overexpressie ontsteking in met IL-1β behandelde chondrocyten kan verminderen. Alle microscopische beelden zijn genomen met 10x vergroting. De gegevens worden gepresenteerd als gemiddelde ± SD uit n = 3 onafhankelijke biologische replicata. p-waarden < 0,05 (*), p-waarden < 0,01(**). Schaalbalk = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
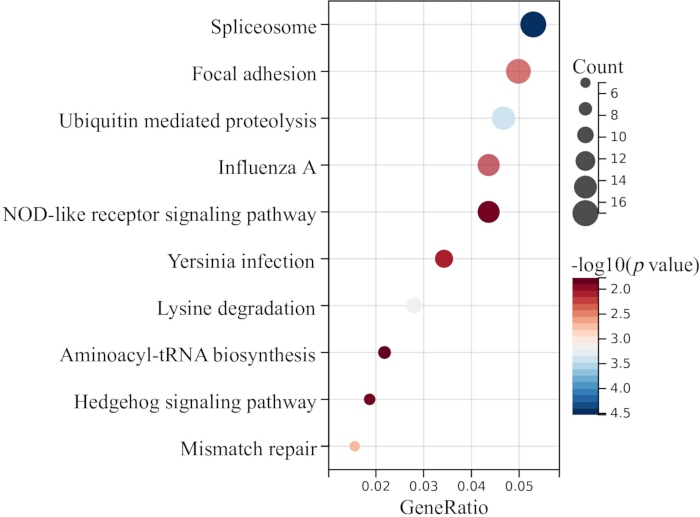
Figuur 7: Correlatie-gebaseerde KEGG-verrijkingsanalyse van SNRNP70-geassocieerde genen in artrose-datasets. Top 10 verrijkte routes geïdentificeerd door clusterProfiler (Benjamini–Hochberg-correctie). Bubble-grootte = genentelling; kleur = betekenis (-log10(p-waarde)). De focale adhesieweg (gehighlight) mediaert chondrocytadhesie, mechanotransductie en ECM-remodellering bij OA. Klik hier om een grotere versie van deze figuur te bekijken.
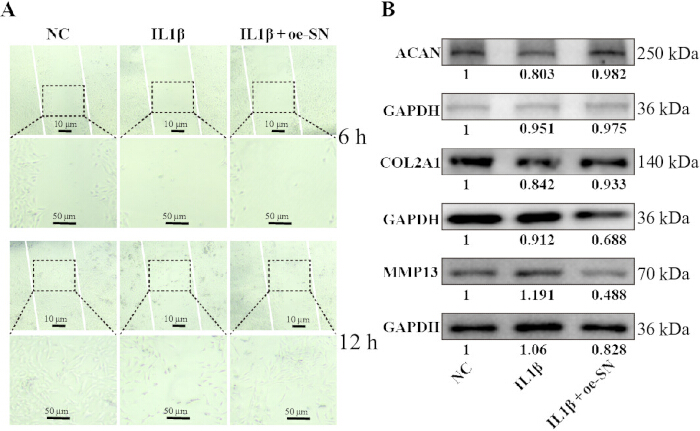
Figuur 8: SNRNP70 overexpressie herstelt ECM-reparatie in met IL-1β behandelde chondrocyten. (A) Beelden van het sluiten van de kraswond in controle, met IL-1β behandeld, en IL-1β plus SNRNP70-overexpressie chondrocyten. (B) Vertegenwoordigende westelijke klonten van belangrijke kraakbeenmatrix en katabole eiwitten. Membranen werden onderzocht op ACAN, COL2A1 en MMP13. GAPDH wordt weergegeven als een laadregelaar. De vergrotingen zijn als volgt: NC-, IL-1β en IL-1β+oe-SN groepen: bij 4x vergroting: schaalbalk = 10 μm. Bij 10x vergroting: schaalbalk = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende Figuur 1: Kwantitatieve analyse van wondsluiting en Western blot-densitometrie. (A) Kwantificering van kraswoundsluiting in primaire chondrocyten uit de NC-, IL-1β- en IL-1β + oe-SNRNP70 groepen. (B) Densitometrische kwantificering van ACAN-, COL2A1- en MMP13-western blot-banden. Bandintensiteiten werden gekwantificeerd met ImageJ en genormaliseerd naar GAPDH. De gegevens worden gepresenteerd als gemiddelde ± SD uit n = 3 onafhankelijke biologische replicata. *p < 0,05, **p < 0,01. Klik hier om dit bestand te downloaden.
| Doelgen | Voorste primerreeks | Voorste primerreeks |
| GAPDH | 5'-TCTCTGCTCCTCCCTGTGTTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGCTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCGCCCC-3' | 5'-GGCATGACTCTCACAATGCG-3' |
Tabel 1: De primers voor de doelgenen. Voor- en achteruitprimersequenties voor GAPDH, SNRNP70, IL6 en MMP13 gebruikt in qRT-PCR worden weergegeven, allemaal in de oriëntatie 5′ > 3′. GAPDH was de interne controle.
| Studie-ID | Platform | NC (n) | OA (n) | Weefsels |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | Kraakbeen |
| GSE117999 | GPL20844 | 10 | 10 | Kraakbeen |
| GSE129147 | GPL15207 | 9 | 10 | Kraakbeen |
| GSE169077 | GPL96 | 5 | 6 | Kraakbeen |
| GSE12021 | GPL96 | 13 | 20 | Synoviums |
| GSE55457 | GPL96 | 10 | 10 | Synoviums |
| GSE89408 | GPL11154 | 28 | 22 | Synoviums |
| GSE82107 | GPL570 | 7 | 10 | Synoviums |
| GSE19060 | GPL570 | 3 | 5 | Meniscus |
| GSE98918 | GPL20844 | 12 | 12 | Meniscus |
| GSE51588 | GPL13497 | 10 | 40 | Subchondrale botten |
Tabel 2: De datasets in deze studie uit de GEO-database. Samenvatting van 11 openbaar beschikbare GEO-datasets die voldoen aan de inclusiecriteria. Voor elke dataset worden accessie-ID, platform en het aantal normale controlemonsters (NC) en artrose (OA) verstrekt, samen met weefseltype. n = aantal monsters.
Discussie
Het huidige werk suggereert dat SNRNP70 mogelijk functioneert als een beschermend gen in de pathogenese van OA, een veelzijdige gewrichtsaandoening die een belangrijke wereldwijde gezondheidszorguitdaging vormt29,30. Deze studie is de eerste die de rol van SNRNP70 in OA rapporteert. In deze studie toonden we significante downregulatie van SNRNP70-expressie in OA-weefsels aan, zoals blijkt uit analyse van GEO-gegevens (totale SMD = -1,07, 95% BI: -1,34, -0,80; Figuur 2). Belangrijk is dat deze bevinding later werd bevestigd in met IL-1β behandelde chondrocyten. Bovendien onderzocht deze studie de rol van SNRNP70 in de ontstekingsrespons van met IL-1β behandelde chondrocyten. Als beschermend gen geassocieerd met OA vertoonde SNRNP70 het vermogen om de progressie van OA te belemmeren door de expressie van IL-1 en MMP13 te onderdrukken. Tot nu toe is dit de eerste experimentele studie die een waarneembaar verschil in SNRNP70 expressieniveaus tussen OA- en NC-weefsels rapporteert, wat wijst op een mogelijke rol voor SNRNP70 in de pathogenese van OA. Deze intrigerende observatie zet ons aan om de mogelijke diagnostische implicaties van SNRNP70 bij OA te overwegen.
De meta-analyse die we uitvoerden, waarbij meerdere RNA-seq datasets en arrays werden opgenomen, leverde bewijs op van de potentiële diagnostische relevantie van SNRNP70. De SMD van -1,07 onderstreepte de consistente downregulatie van SNRNP70 in OA-weefsels, wat de mogelijkheid van bruikbaarheid als diagnostische kandidaat vergrootte. ROC-curveanalyse benadrukte dit potentieel verder, met een AUC van 0,92, wat duidt op robuuste discriminatiekracht. Bovendien ondersteunden de gecombineerde gevoeligheids- en specificiteitswaarden het idee dat SNRNP70 een vroegere en nauwkeurigere OA-diagnose mogelijk maakt. Naast de diagnostische belofte blijft SNRNP70 een kandidaat van belang in de context van OA-beheer. De pathogenese van OA is een multifactorieel proces dat mechanische overbelasting, veroudering, genetische aanleg en ontstekingomvat 31,32. Onder deze factoren is ontsteking steeds meer erkend als een belangrijke oorzaak van deprogressie van OA. Het orkestreert een keten van gebeurtenissen, waaronder kraakbeendegradatie, synovale ontsteking en veranderde gewrichtshomeostase.
Deze studie onderzocht het ontstekingsremmende potentieel van SNRNP70, gemotiveerd door zijn rol als spliceosoomcomponent35,36. Met behulp van een in vitro model werden chondrocyten behandeld met recombinante rat IL-1β om de ontstekingsmicro-omgeving in OA-gewrichten na te bootsen. Deze bevindingen suggereren dat SNRNP70 een rol kan spelen bij het moduleren van ontsteking in IL-1β-gestimuleerde chondrocyten. IF-assays boden verdere ondersteuning voor de ontstekingsremmende eigenschappen van SNRNP70. Chondrocyten met IL-1β behandeld vertoonden een verhoogde expressie van ontstekingseiwitten, die werden verzwakt door oe-SN. Deze modulatie van de expressie van inflammatoire eiwitten door SNRNP70 benadrukt een mogelijke link met de inflammatoire cascade die geassocieerd wordt met de pathogenese van OA.
Hoewel deze studie observationeel bewijs levert van het diagnostische en therapeutische potentieel van SNRNP70 bij OA, blijven de precieze mechanismen achter de effecten een gebied van intrige37. SNRNP70 is een cruciaal onderdeel van het spliceosoom, een complex dat betrokken is bij RNA-splicing, een fundamenteel proces in de regulatie van genexpressie. RNA-splicing speelt een cruciale rol in genexpressie door niet-coderende regio's (introns) te verwijderen en coderende regio's (exonen) van mRNA-moleculen te verbinden, waardoor uiteindelijk het proteoom 38,39,40 wordt gevormd. Het is aannemelijk dat de betrokkenheid van SNRNP70 bij RNA-splicing invloed kan hebben op de expressie van genen die geassocieerd zijn met OA-pathogenese. De specifieke RNA-doelen en splicing-gebeurtenissen die door SNRNP70 worden gereguleerd in door OA aangetaste weefsels moeten nog worden opgehelderd. Het begrijpen van deze mechanismen kan waardevolle inzichten bieden in de moleculaire onderbouwing van OA en kandidatendoelen voor verder onderzoek. Bovendien moet toekomstig onderzoek de interactie van SNRNP70 met andere moleculen onderzoeken die betrokken zijn bij de pathogenese van OA. Het onderzoeken van de overloop van signalen met signaleringsroutes die betrokken zijn bij ontsteking, kraakbeenafbraak en gewrichtsremodelatie kan een meer volledig begrip geven van de veelzijdige effecten ervan.
Deze studie kent bepaalde beperkingen die overweging verdienen. Hoewel de meta-analyse een aanzienlijk aantal datasets bevatte, kunnen variaties in studieontwerp, patiëntdemografie en gegevensverwerking heterogeniteit introduceren. Daarnaast varieerden de opgenomen datasets in weefseloorsprong (bijv. kraakbeen versus synovium) en in verwerkingsplatforms, wat deels de waargenomen heterogeniteit tussen de studies kan verklaren (I2 = 73,3%). Bovendien was deze integratieve analyse gebaseerd op publiek beschikbare menselijke datasets, terwijl de functionele experimenten chondrocyten gebruikten die uit neonatale ratten waren geïsoleerd. Deze cross-species discrepantie beperkt de mate waarin in vitro bevindingen direct kunnen worden geëxtrapoleerd naar de pathofysiologie van de menselijke OA. Een andere kanttekening is de afhankelijkheid van een acuut IL-1β stimulatiemodel, dat alleen de vroege ontstekingsrespons vastlegt en de chronische, progressieve en multifactoriële aard van OA bij mensen niet volledig herhaalt. Daarnaast waren de functionele experimenten beperkt tot gain-of-function benaderingen (SNRNP70 overexpressie); Experimenten met functieverlies (bijvoorbeeld SNRNP70 knockdown) werden niet uitgevoerd, wat een beperking van de huidige studie vormt. Ten slotte, hoewel de correlatieanalyses SNRNP70 impliceren in het focale adhesiepad, werden FAK-splicinggebeurtenissen niet direct onderzocht en werd er niet experimenteel bewijs geleverd dat focale adhesiesignalering stroomafwaarts van SNRNP70 veranderd is. Daarom is validatie in grotere patiëntencohorten en diermodellen gerechtvaardigd om de robuustheid van deze bevindingen te versterken. Bovendien maakten de in vitro-experimenten gebruik van een celkweekmodel, dat mogelijk niet volledig de complexe in vivo microomgeving van OA-gewrichten reproduceert. Toekomstige studies moeten de effecten van SNRNP70 in diermodellen van OA onderzoeken om het therapeutisch potentieel ervan in een fysiologisch relevantere context te beoordelen.
Openbaarmakingen
De auteurs hebben geen belangenconflicten.
Dankbetuigingen
Dit onderzoek werd gefinancierd door het Guangxi Key Research, China (GuiKe AB22035014), het Special Fund of Characteristic Innovation Team van het First Affiliated Hospital van de Guangxi Medical University (YYZS2022003), en het Hainan Provincial Health Science and Technology Innovation Joint Project (WSJK2026QN087) 2026.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Primaire antistof, verdunning 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Primaire antistof, verdunning 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Antibiotica voor celcultuur |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Primaire antistof, verdunning 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Bepaling van de totale eiwitconcentratie |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Real-time PCR detectiesysteem |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Chemiluminescentie beeldvormingssysteem |
| Collagenase type II | Sigma-Aldrich | C6885 | Kraakbeenweefsel vertering, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Kerncounterstain |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Basaal celcultuurmedium |
| ECL reagent | Thermo Fisher Scientific | 34580 | Verbeterde chemiluminescentie reagens |
| Fetal bovine serum | Gibco | 10082147 | 10% concentratie als cultuursupplement |
| Fluorescent microscope | Olympus | BX53 | Immunofluorescence beeldvorming (20x vergroting) |
| GEO database | NCBI | N/A | Openbare RNA-seq en microarray datasets |
| GraphPad Prism 8.0 | GraphPad | N/A | ROC curve analyse |
| HRP-conjugated secundaire antilichamen | Santa Cruz Biotechnology | sc-516102 | Secundaire antistof |
| ImageJ software | NIH | N/A | Densitometrische analysesoftware |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Transfectie reagens |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | RNA zuiverheid en concentratie meting (A260/280 verhouding) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Overexpressieplasmide |
| Penicillin | Thermo Fisher Scientific | 15140122 | Antibioticum voor celcultuur |
| Primer-BLAST | NCBI | N/A | Gene-specifiek primerontwerp |
| Primers (gesynthetiseerd) | Sangon Biotech | N/A | Commerciële synthese van PCR primers |
| Protease en fosfataseremmercocktails | Roche | 4693159001 | Cocktail van protease en fosfataseremmers |
| PVDF membraan | Millipore | IPVH00010 | Eiwitoverdrachtsmembraan |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | Eerste-streng cDNA synthese |
| RIPA buffer | Beyotime | P0013B | Cellyse buffer met protease en fosfataseremmers |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Induce inflammatoire reactie in chondrocyten |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | ROC curve analyse |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Geautomatiseerd eiwitexpressiedetectiesysteem |
| Stata 14.0 | Stata | N/A | Meta-analyse |
| Streptomycin | Thermo Fisher Scientific | Antibioticum voor celcultuur | |
| SYBR® Premix Ex Taq® Kit | Takara | QPK-201 | Real-time kwantitatieve PCR |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Totale RNA extractie uit chondrocyten |
| Trypsin-EDTA | Gibco | 25200072 | Celdetachment, 0,25% trypsin-EDTA |
Referenties
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).