Dit protocol toont aan hoe fysica-gebaseerde neurale simulaties kunnen worden gebruikt om elektrofysiologische biomarkers van neurotherapeutica te interpreteren en hun effect op neurale circuits te ontdekken, waardoor een mechanistisch onderbouwde benadering van neurotherapeutische ontwikkeling wordt geboden.
Methodenartikel
Een protocol voor het ontdekken van neurale mechanismen van neurotherapeutische effecten op elektro-encefalografie met behulp van de humane neocorticale neurosolver
In dit artikel
Samenvatting
Samenvatting
Elektro-encefalografie (EEG) en elektrofysiologische methoden bieden milliseconde-resolutie biomarkers voor aandoeningen van het centrale zenuwstelsel en worden veel gebruikt om behandelingsgerelateerde effecten te beoordelen. Echter, een beperkt begrip van de neurale mechanismen die deze biomarkers genereren, belemmert de ontwikkeling van diagnostiek en therapieën op basis van deze signalen. De Human Neocortical Neurosolver (HNN) is een open-source biofysische modelleringssoftware die gelokaliseerde EEG-biomarkers koppelt aan hun multiscale neurale generatoren. Dit protocol demonstreert een hypothese-gedreven workflow waarbij HNN wordt gebruikt om neurale mechanismen van neurotherapeutisch geïnduceerde EEG-biomarkers te testen door modelparameters te optimaliseren om een match te bereiken tussen gesimuleerde en empirische stroombrongolfvormen. Overeenkomstige activiteit op multischaal cel- en circuitniveau kan vervolgens worden gevisualiseerd en gekwantificeerd, wat validatiedoelen biedt voor modelvoorspellingen in vervolgempirische studies. Er wordt een voorbeeld gegeven dat laat zien hoe je de neurale mechanismen kunt onderzoeken die ten grondslag liggen aan vroege event-gerelateerde potentiële componenten van een auditief opgewekte respons (P1, N1 en P2), en om veranderingen te beoordelen na neurotherapeutisch geïnduceerde veranderingen in de activiteit van neurale circuits. Dit protocol maakt het mogelijk om simulatie-experimenten te ontwerpen om testbare voorspellingen te genereren die EEG-biomarkers koppelen aan onderliggende neurale circuitmechanismen. Een vergelijkbare werkwijze kan worden toegepast om ziektemechanismen of andere therapeutische interventies te bestuderen.
Inleiding
De therapeutische ontwikkeling van het centrale zenuwstelsel (CZS) kent unieke uitdagingen, met goedkeuringspercentages die lager zijn dan in andere ziektegebieden, wat de noodzaak benadrukt van innovatieve methodologische benaderingen1, met name die welke behandelingsgerelateerde effecten op hersendynamiek kunnen blootleggen. Een goed gevestigde benadering om het effect van therapieën op neurale activiteit te bestuderen is elektro-encefalografie (EEG)2,3. EEG geeft een handtekening van hersendynamiek op circuitniveau in vivo en biedt een sterk translationeel potentieel van knaagdiermodellen naar menselijke proeven, aangezien de neurale circuits die EEG-signalen genereren homologie tonen over soorten 4,5,6,7,8. In de farmaceutische ontwikkeling kan EEG meerdere functies vervullen, waaronder het leveren van translationele uitlezingen tussen dier- en menselijke studies, het evalueren van geneesmiddelveiligheid, het begeleiden van de keuze van verbindingen, het informeren van dosis-responsrelaties, het beoordelen van proof-of-mechanism in vroege klinische fasen, en het mogelijk maken van klinische trialstratificatie en cohortverrijking 9,10,11,12,13,14 . Ondanks deze voordelen blijft de interpretatie van EEG-signalen een grote uitdaging, vooral bij het proberen waargenomen veranderingen te koppelen aan onderliggende neurale mechanismen.
Een robuuste EEG-biomarker die wordt gebruikt bij de ontwikkeling van geneesmiddelen in het centraal zenuwstelsel is het event-related potential (ERP). ERP's weerspiegelen tijdgesloten, sensorisch opgewekte hersenactiviteit en zijn veel gebruikt om neuro-ontwikkelings- en neuropsychiatrische stoornissen te bestuderen, waaronder depressie15,16, schizofrenie17,18, autismespectrumstoornis19,20 en de ziekte van Alzheimer21. ERP's worden ook gebruikt om de behandelingseffecten en dosisbereiken op hersencircuits te beoordelen 22,23,24,25, waarbij normalisatie richting gezonde responsen kan wijzen op therapeutische effectiviteit26. Een belangrijke beperking van ERP's en andere EEG-biomarkers (bijv. hersenoscillaties) is echter dat hun associaties met ziektetoestanden of medicijneffecten grotendeels correlationeel zijn. Hoewel statistische analyses relaties kunnen identificeren tussen biomarkers en uitkomsten, bieden ze geen mechanistisch inzicht in hoe specifieke neurale circuitelementen deze signalen genereren. De causale bijdragen van specifieke celtypen en circuitmechanismen blijven daarom onduidelijk. Het begrijpen van de cellulaire en circuitoorsprong van EEG-signalen kan hun waarde aanzienlijk vergroten door waargenomen signaturen te koppelen aan onderliggende fysiologie27,28. In dit manuscript verwijst de term EEG-"biomarker" naar meetbare veranderingen in EEG-signalen na therapeutische interventie, in overeenstemming met de Food and Drug Administration–National Institutes of Health Biomarkers, EndpointS, and other Tools (FDA–NIH BEST) kaderdefinitie 29, in plaats van formele kwalificatie voor een specifiek klinisch gebruik te impliceren30.
Hoewel invasieve elektrofysiologische opnames gedetailleerde inzichten op cel- en circuitniveau kunnen bieden, zijn deze benaderingen grotendeels beperkt tot diermodellen en moeilijk direct te vertalen naar menselijke studies. Alternatieve benaderingen, zoals inverse modelleringstechnieken, kunnen de bronactiviteit schatten uit EEG-signalen, maar missen vaak expliciete mechanistische representaties van onderliggende neurale circuits. Biofysische simulaties bieden een complementair kader door de fysieke processen te modelleren waarmee neurale circuits meetbare EEG-signalengenereren 31,32,33,34 (Figuur 1). In vergelijking met puur statistische biomarkeranalyses of omgekeerde methoden zonder mechanistische aarding, maakt biofysische modellering het mogelijk om hypothesen direct te testen die de dynamica van neurale circuits koppelen aan waargenomen elektrofysiologische signalen.
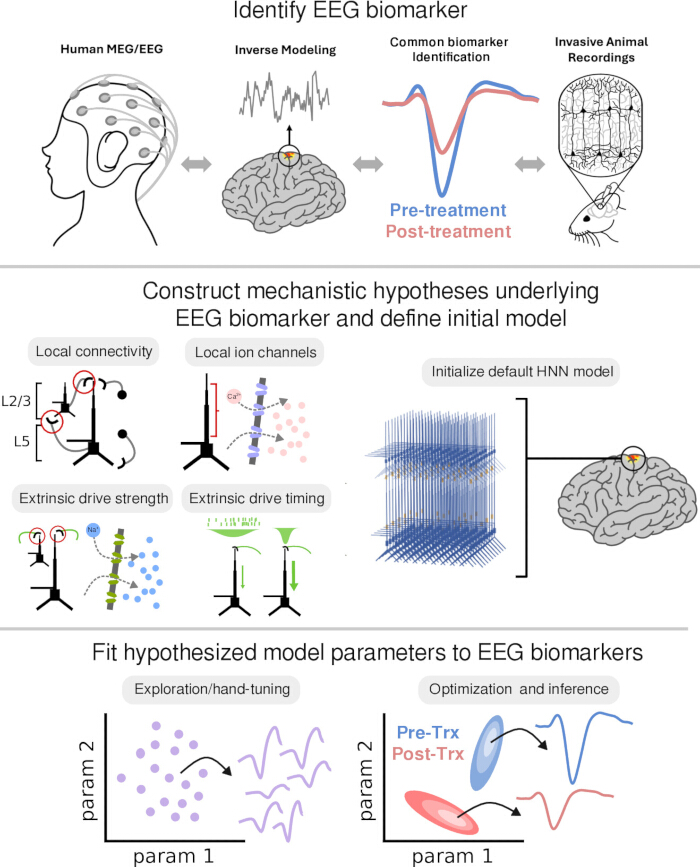
Figuur 1. Biofysische modellering om mechanistische hypothesen te ontwikkelen en te testen die ten grondslag liggen aan farmacologische elektro-encefalografie (EEG) biomarkers. (A) Identificatie van een EEG-biomarker op basis van verschillen in hersensignalen tussen aandoeningen. Een voorbeeld is een auditief gebeurtenis-gerelateerd potentiaal (ERP) dat in de post-behandeling toestand (rood) is verminderd ten opzichte van de pre-behandeling toestand (blauw). (B) Biofysische modellering maakt het mogelijk mechanistische hypothesen te testen die verklaren hoe EEG-biomarkers ontstaan en veranderen bij farmacologische interventie. Er worden hypothesen geformuleerd over door medicijnen veroorzaakte veranderingen in neurale activiteit, en bijbehorende modelparameters worden geïdentificeerd. (C) Het standaard Human Neocortical Neurosolver (HNN)-model wordt gebruikt als uitgangspunt om hypothesen te testen door modelparameters handmatig te wijzigen of geautomatiseerde optimalisatie- en inferentie-algoritmen toe te passen. Verschillen in parameterwaarden tussen voorbehandelings- en nabehandelingscondities komen overeen met modelgebaseerde voorspellingen. Klik hier om een grotere versie van deze figuur te bekijken.
Dit protocol gebruikt de Human Neocortical Neurosolver (HNN), een open-source biofysisch modelleringsframework, om ERP-biomarkers van behandelingsgerelateerde effecten te koppelen aan hun onderliggende mechanismen op cel- en circuitniveau33 (Figuur 2). HNN is gebaseerd op het principe dat synchrone intracellulaire stroomstroom in uitgelijnde piramidale neurondendrieten de primaire stroomdipolen genereert die ten grondslag liggen aan EEG-signalen 6,35,36,37. Het model vertegenwoordigt een canonieke neocorticale kolom bestaande uit exciterende piramidale neuronen en remmende interneuronen, verspreid over corticale lagen 2/3 en 5. Het standaard HNN-netwerk omvat 100 piramidale neuronen en 33 remmende neuronen per laag, wat een gereduceerde maar biologisch gefundeerde representatie van corticale circuits vormt. Piramideneuronen worden gemodelleerd met multicompartiment-dendritische structuren om belangrijke morfologische kenmerken te vangen38, terwijl remmende neuronen worden weergegeven als enkele compartimenten vanwege hun beperkte bijdrage aan extracellulaire stromen33. Synaptische interacties omvatten exciterende α-amino-3-hydroxy-5-methyl-4-isoxazolepropionzuur (AMPA) en N-methyl-D-aspartaat (NMDA) receptoren, en remmende gamma-aminoboterzuur type A en gamma-aminoboterzuur type B (GABAB) receptoren, waarbij alle neuronen actieve ionische geleiding bevatten die worden beheerst door Hodgkin–Huxley-dynamica.
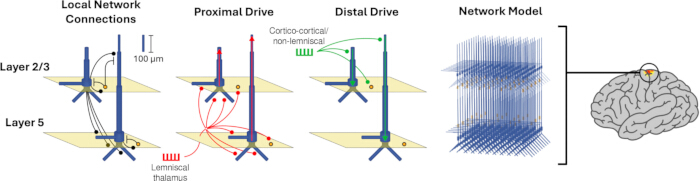
Figuur 2. Schema van het HNN-model. Visualisatie van de belangrijkste componenten van het HNN-model, waaronder lokale netwerkverbindingen tussen exciterende en remmende neuronen, en exogene inputpaden genaamd "proximale drive" en "distale drive". Klik hier om een grotere versie van deze figuur te bekijken.
Neurale activiteit in HNN wordt aangedreven door exogene input die feedforward- en feedbackpaden vertegenwoordigen. Feedforward "proximale" drives corresponderen met inputs van lemniscal thalamus die proximale dendrieten targeten, terwijl feedback "distale" drives corticocorticale en niet-lemniscal thalamische inputs vertegenwoordigen die distale dendrieten targeten. Deze inputs worden gemodelleerd als reeksen van actiepotentialen die synaptische stromen oproepen en intracellulaire stroom genereren langs piramidevormige neurondendrieten. De resulterende stroomdipool op populatieniveau wordt uitgedrukt in nanoampèremeters, waardoor directe vergelijking mogelijk is met oriëntatie-geconstrueerde brongelokaliseerde EEG- of magneto-encefalografie (MEG)-gegevens. De standaardparameterisatie van HNN is gebaseerd op empirische gegevens uit somatosensorische cortexstudies 39,40,41 en is met succes toegepast op auditievesignalen 42,43,44, visuele45 en frontale corticale signalen46, waarbij modelvoorspellingen werden bevestigd in latere experimentele studies 7,41,47.
HNN-simulaties kunnen worden toegepast in meerdere fasen van farmaceutisch onderzoek en ontwikkeling, waaronder doelvalidatie, vergelijking van werkingsmechanismen van geneesmiddelen, dosisoptimalisatie en hypothesegeneratie voor vervolgexperimenten 14,48,49,50. Dit stelt gebruikers in staat mechanistische modellering te integreren in praktische onderzoeksworkflows, wat het genereren en testen van hypothesen ondersteunt over hoe neurotherapeutica neurale circuits beïnvloeden. In dit protocol richten we ons op de vroege P1-, N1- en P2-componenten van auditieve ERP's, omdat deze kenmerken goed zijn gekarakteriseerd en beperkingen bieden voor hypothese-gedreven modellering51. Hoewel de focus ligt op door medicijnen veroorzaakte veranderingen, kan de aanpak worden uitgebreid naar andere neurotherapeutische interventies, zoals hersenstimulatie of gedragstraining, evenals naar studies van CNS-stoornissen.
Het gebruik van HNN volgt een iteratief modelleringskader waarbij modelstructuur en parameters aanvankelijk worden beperkt door bestaande data en vervolgens worden verfijnd door vergelijking met empirische waarnemingen. Grootschalige neurale modellen bevatten veel parameters, maar slechts een subset—aangeduid als parameters of interest—wordt aangepast om specifieke hypothesen te testen. Deze parameters worden niet willekeurig geselecteerd; ze worden eerder gekozen op basis van eerder experimenteel bewijs en literatuur die mogelijke werkingsmechanismen van het neurotherapeutisch middel beschrijven. In dit protocol worden parameters gerelateerd aan exogene inputtiming en -sterkte, lokale remmende connectiviteit en dendritische ionenkanaalconductanties geselecteerd als voorbeelden van biologisch interpreteerbare variabelen die beïnvloed kunnen worden door neurotherapieën.
Beginnend met een standaardmodel passen gebruikers eerst parameters aan in pre-treatment ERP-data met behulp van een combinatie van handmatige tuning en geautomatiseerde optimalisatie. Handmatige afstemming past globale schaal- en invoerparameters aan om de empirische golfvorm te benaderen, wat een intuïtief begrip geeft van hoe parameterwijzigingen de uitvoer van het model beïnvloeden. Geautomatiseerde methoden zoals covariantiematrix adaptatie-evolutiestrategie (CMA-ES), Bayesiaanse optimalisatie en beperkte optimalisatie door lineaire benadering worden vervolgens gebruikt om parameterwaarden te verfijnen en de passing te verbeteren. Zodra een pre-behandelingsmodel is opgesteld, worden parameters die verondersteld zijn rekening te houden met veranderingen na behandeling aangepast om te passen bij de ERP-data na de behandeling.
Om onzekerheid in parameterschatting aan te pakken, wordt simulatie-gebaseerde inferentie (SBI) gebruikt om verdelingen van parameterwaarden te schatten die de waargenomen gegevens52,53 reproduceren. SBI houdt rekening met de mogelijkheid dat meerdere parametercombinaties vergelijkbare resultaten kunnen opleveren en maakt kwantificering van parameteronzekerheid mogelijk. Verschillen tussen de parameters voor en na behandeling kunnen worden beoordeeld met behulp van een overlapindex (OVL)54,55, wat inzicht geeft in mogelijke werkingsmechanismen.
Een belangrijk voordeel van deze aanpak is dat het afstemmen van het model op een specifieke datamodaliteit voorspellingen genereert over meerdere schalen van neurale activiteit, waaronder celpieking, laagspecifieke lokale veldpotentialen (LFP's) en stroombrondichtheid (CSD). Deze voorspellingen bieden doelen voor experimentele validatie met complementaire technieken. Als voorspellingen niet worden ondersteund door empirische gegevens, kan het model worden bijgewerkt door nieuwe beperkingen toe te voegen, waardoor een iteratieve cyclus van hypothesegeneratie, testen en verfijning ontstaat (Figuur 3).
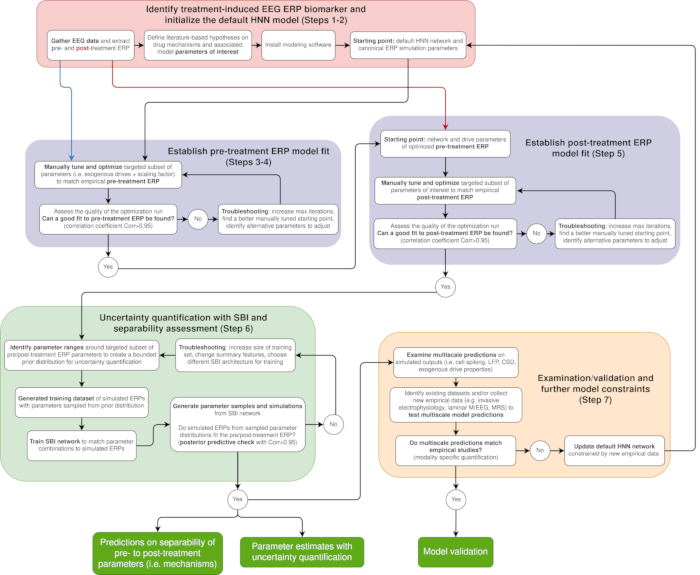
Figuur 3. Iteratieve workflow voor het ontwikkelen en testen van ERP-biomarkervoorspellingen met HNN. De workflow komt overeen met de protocolstappen. De identificatie van een EEG-biomarker en de initialisatie van het standaard HNN-model worden rood weergegeven (Stappen 1–2). Handmatige afstemming en optimalisatie worden gebruikt om modelparameters aan te passen aan pre-treatment en post-treatment ERP-signalen (paars; Stappen 3–5). Onzekerheidskwantificatie met behulp van simulatie-gebaseerde inferentie (SBI) wordt in groen weergegeven (Stap 6). Modelvoorspellingen worden vervolgens onderzocht en vergeleken met experimentele data om het model te valideren of verder te beperken (oranje; Stap 7). Klik hier om een grotere versie van deze figuur te bekijken.
Dit protocol is ontworpen voor gebruik met oriëntatie-geconstrueerde, brongelokaliseerde EEG- of MEG-gegevens die worden verzameld tijdens geëvokeerde responsparadigma's. Standaard preprocessing- en bronlokalisatiemethoden (bijv. minimum norm schatting [MNE]-Python56) kunnen worden gebruikt om de benodigde invoergegevens te genereren. Bronniveausignalen uitgedrukt in nanoampèremeters zijn direct vergelijkbaar met HNN-uitgangen. Voor snelle sensorische reacties zijn bron- en sensorniveausignalen vaak zeer vergelijkbaar, waardoor inzichten uit brongelokaliseerde modellering de interpretatie van sensorniveau EEG-gegevens57,58 kunnen informeren.
Protocol
Alle procedures met betrekking tot menselijke gegevens werden uitgevoerd in overeenstemming met relevante institutionele richtlijnen en regelgeving. De dataset die in deze studie werd gebruikt, is verkregen uit een eerder gepubliceerde studie43, en er was geen aanvullende ethische goedkeuring vereist. Er zijn geen gevaarlijke stoffen of procedures betrokken bij dit protocol.
1. Identificeer een door behandeling geïnduceerde EEG-gebeurtenisgerelateerde potentiële biomarker en definieer modelhypothesen
- Verzamel of identificeer een dataset met experimenteel opgenomen EEG-signalen van proefpersonen van belang (bijvoorbeeld voorbehandeling en nabehandeling in de context van neurotherapieën). Noteer EEG-metingen tijdens de presentatie van een sensorische stimulus en registreer tijdstempels van de sensorische stimulus gelijktijdig met EEG-gegevens om segmentatie in onderzoeken mogelijk te maken. Zorg ervoor dat EEG-gegevens worden opgeslagen in een formaat dat compatibel is met preprocessing-software (bijv. .fif, .set of .edf).
OPMERKING: De bijbehorende coderepository (https://github.com/ntolley/hnn_jove) levert de databestanden die worden gebruikt om de representatieve resultaten te genereren. De repository bevat een voorbewerkte auditieve MEG ERP van Kohl et al. (2022), die dient als de pre-behandeling ERP (originele gegevens beschikbaar op: https://github.com/kohl-carmen/HNN-AEF). De hypothetische ERP na behandeling wordt gegenereerd door de pre-behandelingsgolfvorm te schalen met behulp van een Gaussiaans taps toelopende venster. De bijbehorende databestanden bevinden zich in de repository op data/pre-treatment.txt en data/post-treatment.txt. Omdat MEG- en EEG-signalen vergelijkbare onderliggende neurale generatoren weerspiegelen, is dit protocol toepasbaar op beide modaliteiten. - Identificeer een set kandidaat-ERP-biomarkerkenmerken die worden verondersteld om behandelingsgerelateerde effecten te onderscheiden (bijv. ERP-piektijden en -groottes).
OPMERKING: In dit voorbeeldprotocol worden piekmagnitudes gebruikt als biomarker van belang. - Voorverwerk EEG-gegevens en extraheer biomarkerkenmerken van interesse.
OPMERKING: Verschillende softwarepakketten ondersteunen preprocessing en ERP-analyse, waaronder MNE-Python56, EEGLAB59 en FieldTrip60. Bronlokalisatie wordt aanbevolen voor het modelleren van ERP-signalen, maar is niet vereist. Een voorbeeldworkflow is beschikbaar op https://jonescompneurolab.github.io/hnn-core/stable/auto_examples/workflows/plot_simulate_somato.html. Verschillende eerdere werken beschrijven de voorverwerking en analyse van EEG-signalen in volle detail; Lezers worden vooral uitgenodigd om 56,61 te raadplegen voor een meer volledige achtergrond.- Voer bronlokalisatie uit met sensorniveausignalen uit alle kanalen, of selecteer EEG-sensoren die geanalyseerd moeten worden. Gebruik brongelokaliseerde data voor directe vergelijking met modeloutput; Sensorniveaugegevens zullen geen eenheidscorrespondentie hebben.
OPMERKING: Één-op-één eenheidscorrespondentie zoals hieronder beschreven geldt niet voor sensorniveausignalen. - Segmenteerde EEG-gegevens in proeven met behulp van tijdstempels van de sensorische prikkel.
- Bereken de door trials gemiddelde ERP-golfvormen voor pre-behandeling en post-behandeling aandoeningen.
- Extraheren kandidaat-ERP-biomarkers uit trial-gemiddelde golfvormen (bijvoorbeeld N1-piekmagnitudes berekenen). Definieer piekdetectiecriteria (bijv. tijdsvenster en polariteit) vóór extractie.
- Voer bronlokalisatie uit met sensorniveausignalen uit alle kanalen, of selecteer EEG-sensoren die geanalyseerd moeten worden. Gebruik brongelokaliseerde data voor directe vergelijking met modeloutput; Sensorniveaugegevens zullen geen eenheidscorrespondentie hebben.
- Voer statistische tests uit om te bepalen welke ERP-kenmerken significant verschillen tussen aandoeningen (bijv. voor behandeling versus na behandeling). Selecteer geschikte statistische tests op basis van het studieontwerp en pas multi-vergelijkingscorrectie toe waar nodig (bijv. herhaalde metingen ANOVA gevolgd door Tukey HSD post-hoc testen voor meervoudige vergelijkingen).
OPMERKING: Een codevoorbeeld van statistisch testen is beschikbaar op https://mne.tools/stable/auto_tutorials/stats-sensor-space/20_erp_stats.html. - Geef specifieke, statistisch significante onderscheidende EEG-biomarkerkenmerken uit (bijv. verschillen in N1-magnitudes). Sla de uitvoer op voor gebruik in volgende stappen.
- Definieer literatuurgebaseerde hypothesen over geneesmiddelmechanismen en bijbehorende modelparameters van interesse. Raadpleeg eerdere literatuur en experimentele gegevens om biofysische eigenschappen te identificeren die door de neurotherapeutica zijn veranderd en die mogelijk de verschillen in kenmerken verklaren.
- Identificeer welke parameters van het biofysisch neurale model (HNN) direct worden weergegeven of indirect gerelateerd zijn aan de biologische eigenschappen die in Stap 1.6 zijn geïdentificeerd. Definieer deze als parameters van interesse. Kaart biologische mechanismen in kaart om parameters te modelleren met behulp van eerdere literatuur en HNN-documentatie.
- Geef een geïdentificeerde set modelparameters van belang die overeenkomen met biofysische eigenschappen die verondersteld zijn de geïdentificeerde verschillen in EEG-kenmerken te genereren. Gebruik het standaard HNN-model (geïnitialiseerd in stap 2) als startpunt voor alle parameterwaarden en sla uitvoer op voor volgende stappen.
2. Initialiseer het standaard HNN-model: Installeer modelleringssoftware en stel de projectmap in
OPMERKING: De softwareversies die in deze studie worden gebruikt, zijn gespecificeerd in de Materiaallijst, samen met minimale systeemvereisten. Er zijn meerdere installatieopties beschikbaar (d.w.z. pip, conda en broninstallatie) voor Linux, macOS en Windows.
- Download en installeer een werkende versie van Anaconda Python. Maak een nieuwe Python-omgeving aan en activeer deze voor de installatie van de benodigde softwarepakketten.
- Installeer de biofysische neurale modellering HNN-core software met behulp van besturingssysteemspecifieke installatie-instructies beschikbaar op https://jonescompneurolab.github.io/textbook/content/01_getting_started/installation.html.
OPMERKING: Om de softwareafhankelijkheden die in deze studie worden gebruikt efficiënt te installeren, gebruikt de bijbehorende coderepository (https://github.com/ntolley/hnn_jove) pixi (https://pixi.prefix.dev/latest/). Volg de instructies in het repository README-bestand om pixi te installeren en een lokale versie van de coderepository in te stellen. - Controleer of de geïnstalleerde versie van de biofysische neurale modelleringssoftware 0.6.0 of hoger is door het volgende commando in de terminal te typen: pip show hnn_core
- Zorg ervoor dat de Python-omgeving is geactiveerd en dat de installatie succesvol is voltooid. Start de grafische gebruikersinterface (GUI) door hnn-gui in de terminal te typen en op Enter te drukken.
- Maak een nieuwe projectmap aan in het computerbestandssysteem om alle databestanden die in dit protocol worden gegenereerd op te slaan. Maak de map aan in een toegankelijke map (bijvoorbeeld homemap of werkprojectdirectory).
3. Bepaal de pasvorm van het pre-treatment model met handmatige afstemming
- Begin met de canonieke HNN ERP-simulatie en de standaardparameters. Stem handmatig de scaling factor en exogene driveparameters af om aan te sluiten bij de pre-behandeling ERP (bijvoorbeeld pre-behandeling ERP).
OPMERKING: De HNN GUI laadt automatisch modelparameters die passen bij een somatosensorische ERP40, wat door talrijke studies is aangetoond een goed "canoniek ERP" uitgangspunt te zijn. Deze tutorial richt zich op het aanpassen van de schaalfactor en exogene invoerparameters vanuit dit uitgangspunt. - Laad de empirische ERP-golfvorm vóór de behandeling van stap 1 in de HNN GUI (Figuur 4A–4F)
- Klik op de knop Gegevens laden in de menubalk linksonder in het GUI-venster (Figuur 4D).
OPMERKING: De nomenclatuur voor ERP-piekbenaming varieert sterk binnen de literatuur; de P1/N1/P2-labels in Figuur 4F zijn uitsluitend ter illustratie en komen mogelijk niet overeen met naamgevingsconventies die in andere studies worden gebruikt. - Selecteer in het bestandsbrowservenster een .csv of .txt bestand met de ERP-golfvorm die gemodelleerd moet worden (d.w.z. de doelgolfvorm). Zorg ervoor dat het bestand komma-gescheiden is en opgemaakt met twee kolommen: de eerste kolom bevat tijd (ms), en de tweede kolom bevat de brongelokaliseerde empirische dipoolgolfvorm (nAm). De eerste rij wordt behandeld als een header en mag geen datawaarden bevatten. Informatieve kolomlabels (bijv. "Time (ms)" en "Dipole (nAm)") kunnen optioneel worden opgenomen.}
OPMERKING: Het empirische databestand wordt pre-treatment.txt genoemd in de bijbehorende coderepository. - Inspecteer de golfvorm die automatisch in het figuurpaneel wordt weergegeven (Figuur 4F).
- Klik op de knop Gegevens laden in de menubalk linksonder in het GUI-venster (Figuur 4D).
- Voer de standaardsimulatie van een canonieke ERP uit
- Stel de parameterwaarden van tstop, dt, Trieven, Backend en Cores in in het Simulatieparameters-paneel (Figuur 4B) in op de gewenste waarden. Gebruik tstop om de simulatielengte te regelen, dt om de integratietijdstap te bepalen, en Trials om het aantal herhaalde simulaties met dezelfde modelparameters te regelen. Selecteer Backend als seriële (Joblib) of parallel (MPI) en specificeer het aantal computerkernen.
OPMERKING: De variabiliteit tussen de onderzoeken komt voort uit de standaarddeviatie van de exogene geïnvoceerde aandrijftiming zoals beschreven in stap 3.5 hieronder. - Klik op de Run-knop (Figuur 4D) om de standaardsimulatie van een canonieke ERP te starten.
- Stel de parameterwaarden van tstop, dt, Trieven, Backend en Cores in in het Simulatieparameters-paneel (Figuur 4B) in op de gewenste waarden. Gebruik tstop om de simulatielengte te regelen, dt om de integratietijdstap te bepalen, en Trials om het aantal herhaalde simulaties met dezelfde modelparameters te regelen. Selecteer Backend als seriële (Joblib) of parallel (MPI) en specificeer het aantal computerkernen.
- Maak een grafiek die gesimuleerde ERP vergelijkt met empirische ERP
- Klik op het tabblad Visualisatie linksboven in het GUI-venster (Figuur 4A).
- Klik op het dropdownmenu met het label Data om te vergelijken (niet getoond) en selecteer de geladen doelgolfvorm uit Stap 3.2.
- Klik op Clear as om het plot te resetten.
- Klik op Add plot om een nieuwe plot te genereren met de gesimuleerde initiële ERP-golfvorm (blauw) en doelgolfvorm (oranje) overheen, samen met tekst die de automatisch berekende correlatiecoëfficiënt (Corr) en root mean squared error (RMSE) tussen de twee golfvormen aangeeft (Figuur 4F).
OPMERKING: De HNN-GUI biedt de mogelijkheid om twee goodness-of-fit-metingen te berekenen: Corr en RMSE. Deze maatregelen worden gebruikt voor handmatig afstemmen en optimaliseren (Stap 4).
- Pas de schaalfactor aan
- Pas de schaalfactor aan door handmatig af te stemmen zodat deze ongeveer overeenkomt met de magnitudes van de gesimuleerde en empirische dipoolgolfvormen. Stel de standaard dipoolschaal parameter (Figuur 4C) in het tabblad Simulatie (Figuur 4A) in op 3000.
OPMERKING: De schaalfactor komt overeen met een voorspelling van het geschatte aantal neuronen dat ten grondslag ligt aan de generatie van het EEG-signaal. De standaardwaarde van 3000 geeft aan dat 200 piramidale neuronen (grootte van het HNN-model) × 3000 = 600.000 neuronen nodig zijn om een opgewekte respons te genereren met de grootte in nAm aangegeven op de y-as van figuur 4F.
- Pas de schaalfactor aan door handmatig af te stemmen zodat deze ongeveer overeenkomt met de magnitudes van de gesimuleerde en empirische dipoolgolfvormen. Stel de standaard dipoolschaal parameter (Figuur 4C) in het tabblad Simulatie (Figuur 4A) in op 3000.
- Pas de timing van exogene aandrijvingen aan
- Pas het gemiddelde en de standaarddeviatie van exogene aandrijvingen aan door handmatig af te stemmen om een nauwkeurigere aansluiting te krijgen bij de tijdstip van de empirisch geregistreerde pre-behandeling ERP-pieken (d.w.z. P1/N1/P2) (Figuur 5A–5D).
OPMERKING: De standaard lokale connectiviteit en celparameters die met HNN worden verspreid, zijn afgestemd om gezonde activiteitspatronen op enkelcel- en netwerkniveau te reproduceren. Hoewel lokale netwerkparameters kunnen worden aangepast, wordt aanbevolen om de vooraf afgestemde lokale HNN neocorticale sjabloonmodelparameters aanvankelijk vast te houden en te testen of een betrouwbare fit kan worden bereikt door alleen de exogene drives aan te passen. - Identificeer welke gesimuleerde ERP-pieken niet in de tijd zijn uitgelijnd met de empirische ERP-golfvorm (Figuur 4).
OPMERKING: Dit voorbeeld gaat uit van drie vroege pieken in de empirische ERP, zoals in de standaard canonieke ERP-simulatie. Om pieken toe te voegen, simuleer je extra externe schijven. - Klik op het tabblad Externe schijven linksboven in het GUI-venster (Figuur 4A en Figuur 5A).
OPMERKING: De parameters voor drie vooraf gedefinieerde exogene drives zijn zichtbaar, die de feedforward proximale (evprox1), feedback distale (evdist1) en re-emergent feedforward proximale drive (evprox2) vertegenwoordigen die de standaard canonieke ERP-simulaties genereren (zie Inleiding voor details van het HNN-model en de exogene drive-structuur). Histogrammen die piektijden en -tellingen weergeven, worden weergegeven in Figuur 4E. - Klik op het keuzemenu van de exogene schijf waarvan de gemiddelde tijd het dichtst bij de verkeerd uitgelijnde piek ligt.
- Pas de waarden in de tekstvakken voor Gemiddelde tijd en Std-ontwikkeltijd aan om beter overeen te komen met de timing en breedte van pieken in de doelgolfvorm (Figuur 5B–5D). Pas de gemiddelde tijd aan om piektijd te verschuiven en de standaardontwikkeltijd om de piekbreedte te veranderen.
OPMERKING: De gemiddelde tijd en de STD-ontwikkeltijd bepalen het gemiddelde en de variantie van de exogene pieken die het lokale netwerk activeren in proximale of distale projectiepatronen (zie histogrammen in Figuur 4E). Deze parameters bepalen niet volledig de ERP-piektiming of -breedte. De exacte timing en breedte hangen af van zowel exogene aandrijvingen als van intrinsieke netwerkactiviteit.- Stel de gemiddelde tijd voor de externe schijf van EVPROX1 in op 60 ms.
- Stel de gemiddelde tijd voor de externe schijf van de evdist1 in op 100 ms.
- Stel de gemiddelde tijd voor de externe schijf van de evprox2 in op 150 ms.
- Pas het gemiddelde en de standaarddeviatie van exogene aandrijvingen aan door handmatig af te stemmen om een nauwkeurigere aansluiting te krijgen bij de tijdstip van de empirisch geregistreerde pre-behandeling ERP-pieken (d.w.z. P1/N1/P2) (Figuur 5A–5D).
- Modificeer de grootte van exogene drives
- Pas synaptische gewichten (postsynaptische geleiding) van exogene aandrijvingen aan met handmatige afstemming om een nauwkeurigere aansluiting te krijgen bij de grootte van de empirisch geregistreerde ERP-pieken (d.w.z. P1/N1/P2) (Figuur 6A en Figuur 6B).
- Identificeer welke gesimuleerde ERP-pieken niet in grootte zijn uitgelijnd met de empirische ERP-golfvorm.
- Klik op het tabblad Externe schijven linksboven in het GUI-venster (Figuur 4A).
- Klik op het keuzemenu van de exogene schijf waarvan de gemiddelde tijd het dichtst bij de verkeerd uitgelijnde piek ligt.
- Pas de waarden in de tekstvakken aan onder AMPA-gewichten en NMDA-gewichten om synaptische conductanties aan te passen. Het verhogen van de proximale aandrijvingssterkte naar L5- en L2/3-piramideneuronen levert doorgaans meer positieve pieken op, terwijl het verhogen van de distale aandrijvingskracht doorgaans meer negatieve pieken oplevert.
OPMERKING: Net als bij exogene aandrijftiming wordt de ERP-piekgrootte niet volledig bepaald door de aandrijfsterkte. Spiking-dynamiek kan niet-intuïtieve effecten veroorzaken. Test veranderingen over één orde van grootte (bijv. AMPA L5_pyramidal van 0,014 naar 0,14) en verfijn iteratief. Figuur 6 toont waarden die zijn ingesteld op 10× kleiner dan de standaardsimulatie.- Stel de AMPA-gewichten van de evdist1-schijf in op L5_pyramidal = 0,014243 en L2_pyramidal = 0,0000007.
- Stel de NMDA-gewichten van de evdist1-schijf in op L5_pyramidal = 0,0080074 en L2_pyramidal = 0,0004317.
- Stel de AMPA-gewichten van de evprox2-schijf in op L5_pyramidal = 0,0684013 en L2_pyramidal = 0,143884.
OPMERKING: Een volledige set parameters die worden gebruikt om de representatieve resultaten te genereren is beschikbaar in de bijbehorende coderepository (https://github.com/ntolley/hnn_jove; zie data/opt_baseline_config_correlation_best.json). Gebruikers worden aangemoedigd dit configuratiebestand samen met de meegeleverde databestanden (data/pre-treatment.txt en data/post-treatment.txt) te laden en de voorbeeldworkflows in de notebooks/directory te raadplegen om de gerapporteerde simulaties te reproduceren.
- Sla aangepaste simulatie-instellingen op.
- Na het voltooien van de aanpassingen in stappen 3.5–3.7, klik je op het tabblad Simulatie (Figuur 4A) en voer je "pre-treatment_handtuned" in het tekstvak Naam (Figuur 4B).
- Voer aangepaste simulatie uit
- Klik op de Run-knop om de gewijzigde parameterset te simuleren.
- Bekijk de gegenereerde grafiek in het figuurpaneel (Figuur 4F en Figuur 7A–7D). Toegang tot eerdere grafieken met de bijbehorende figuurtabbladen (bijv. "Figuur 1" en "Figuur 2").
- Itereren handmatig afstemmen
- Blijf iteratief handmatig afstemmen om de correlatiecoëfficiënt te verbeteren.
- Herhaal stap 3.4 om de simulatie opnieuw te combineren met de doelgolfvorm en bereken de correlatiecoëfficiënt opnieuw.
- Sla de uiteindelijke model-uitvoer op.
OPMERKING: Het protocol kan worden gepauzeerd nadat de simulatie-uitvoer is opgeslagen. Hervat door de opgeslagen configuratiebestanden in de software te laden.- Klik op de knop Netwerk opslaan om de best-fit parameter op te slaan als een .json bestand genaamd "pre-treatment_handtuned.json".
- Klik op de knop Simulatie opslaan om een .txt bestand met de naam "pre-treatment_handtuned.txt" op te slaan, dat de gesimuleerde dipoolgolfvorm bevat (Figuur 4D).
- Verplaats beide bestanden naar de projectmap die in Stap 2.5 is aangemaakt. Zorg ervoor dat bestandsnamen overeenkomen met de simulatienaam in het dropdownmenu.
OPMERKING: Bestanden worden opgeslagen in de standaard downloadmap van de webbrowser die wordt gebruikt om de GUI uit te voeren. Verplaats bestanden handmatig of verander tijdelijk de downloadmap van de browser.
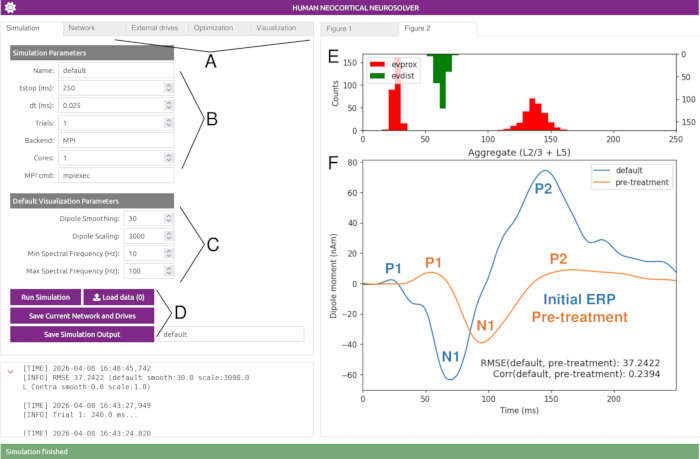
Figuur 4. Vergelijking van canonieke HNN-gesimuleerde ERP-golfvorm met empirische ERP vóór behandeling. (A) Parametercategorieën toegankelijk via grafische gebruikersinterface (GUI) tabbladen. (B) Simulatieparameters die de lengte van de simulatie en het aantal proeven regelen. (C) Visualisatieparameters die de golfvormweergave regelen. (D) Simulatiebedieningspaneel voor het laden van gegevens, het uitvoeren van simulaties en het opslaan van output. (E) Spike-histogrammen die de verdelingen van exogene aandrijvingsinputs in de canonieke ERP-simulatie tonen. (F) Dipoolgolfvorm van de canonieke ERP-simulatie (blauw) overgelegd met een empirische auditieve ERP (oranje) van Kohl et al.43. De initiële simulatie past niet bij de gegevens, met verkeerd uitgelijnde piektiming en -magnitude (Corr < 0,95). Het experimentele paradigma dat werd gebruikt om de empirische ERP te genereren wordt beschreven in Kohl et al.43: tonen (1 kHz, 50 ms duur, 10 ms fade-in/out) werden afwisselend gepresenteerd aan het linker- en rechteroor, met interstimulusintervallen van 0,8–1,2 seconden op 60 dB boven het subjectieve gehoorniveau. Klik hier om een grotere versie van deze figuur te bekijken.
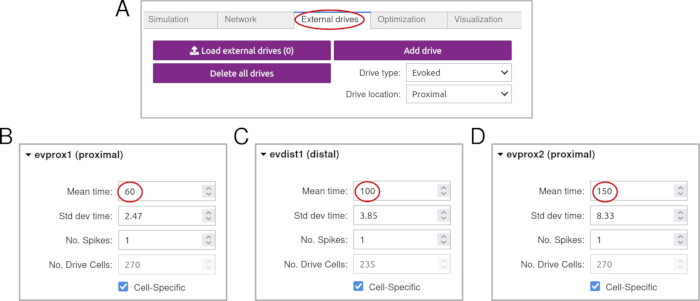
Figuur 5. Aanpassing van exogene aandrijvingstiming om ERP-pieken uit te lijnen. (A) Het tabblad "Externe schijven" in de GUI, gebruikt om geëvokeerde invoer naar het model te configureren. (B–D) Aanpassing van gemiddelde tijdparameters voor individuele exogene aandrijvingen om gesimuleerde ERP-pieken af te stemmen op empirische gegevens. Specifiek, (B) proximale schijf evprox1 uitgelijnd op ~60 ms, (C) distale schijf evdist1 uitgelijnd op ~100 ms, en (D) proximale schijf evprox2 uitgelijnd op ~150 ms. Het aanpassen van de gemiddelde tijdparameter (gemarkeerd) verschuift de timing van gesimuleerde pieken en verbetert de correspondentie met de empirische golfvorm. Deze aanpassingen dragen bij aan een verbeterde uitlijning en een verhoogde correlatie met de doel-ERP (zie Figuur 7B). Klik hier om een grotere versie van deze figuur te bekijken.
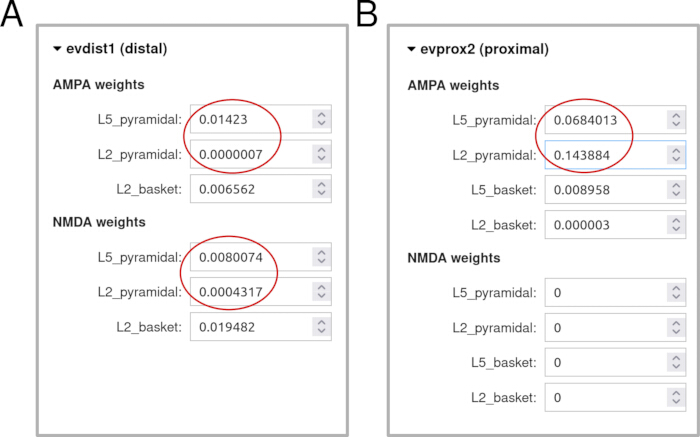
Figuur 6. Aanpassing van de exogene aandrijfsterkte om ERP-piekmagnitudes aan te passen. (A en B) Synaptische gewichten voor α-amino-3-hydroxy-5-methyl-4-isoxazolepropioninezuur (AMPA) en N-methyl-D-aspartaat (NMDA) receptoren worden aangepast via het tabblad "Externe schijven" in de grafische gebruikersinterface (GUI). (A) Aanpassing van synaptische gewichten voor de distale aandrijving (evdist1), inclusief AMPA- en NMDA-geleidingen gericht op laag 2/3 (L2/3) en laag 5 (L5) piramidale neuronen. (B) Aanpassing van synaptische gewichten voor de proximale drive (evprox2), die voornamelijk de AMPA-geleiding in piramidale neuronen beïnvloedt. In dit voorbeeld worden synaptische gewichten met een factor 10 verminderd ten opzichte van de standaardwaarden, wat resulteert in verminderde ERP-piekmagnitudes en verbeterde overeenstemming met de empirische golfvorm (zie Figuur 7C). Klik hier om een grotere versie van deze figuur te bekijken.
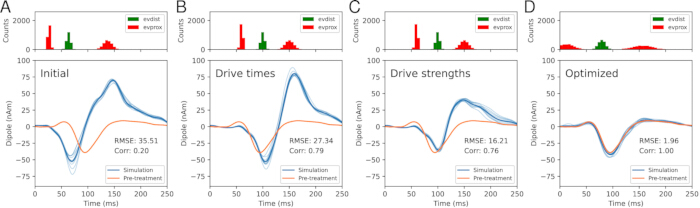
Figuur 7. Handmatige afstelling en optimalisatie om modelparameters te passen. Alle simulaties tonen 5 proeven, met gemiddelde ERP (donkerblauw) en individuele proeven (lichtblauw). (A) Canonieke ERP-simulatie (blauw) overgelegd met pre-treatment ERP (oranje). (B) Aanpassing van exogene aandrijftiming verbetert de piekuitlijning. (C) Vermindering van synaptische gewichten vermindert piekgroottes. (D) Geautomatiseerde optimalisatie zorgt voor een nauwe aansluiting bij de empirische golfvorm (Corr = 1,0), inclusief een verhoogde variabiliteit in geëvokeerde aandrijvingstiming. Klik hier om een grotere versie van deze figuur te bekijken.
4. Vestig pre-treatment model fit met parameteroptimalisatie
OPMERKING: Controle van willekeurige seeding voor optimalisatie is momenteel niet beschikbaar in de GUI. Voor reproduceerbare optimalisatieruns gebruik je de Python API. De bijbehorende coderepository bevat een voorbeeldimplementatie (zie code/baseline_optimization.py), waarbij een vast willekeurig seed kan worden ingesteld door een seedparameter aan de optimalisatiefunctie door te geven (bijv. optim.fit(..., seed=123)).
OPMERKING: Dit voorbeeld laat zien hoe je doelparameters kunt optimaliseren om enkele waarden te schatten die een nauwe passing op de golfvorm geven met behulp van CMA-ES (niet te verwarren met SBI; beide zijn benaderingen om modelparameters te passen, maar de primaire output van SBI is een verdeling). Een voorbeeld van hoe je verdelingen van parameters kunt schatten die rekening kunnen houden met golfvormen, wordt getoond in de sectie Resultaten . Voor pre-behandeling ERP's begin je met het optimaliseren van exogene schijfparameters onder de aanname dat cel- en lokale netwerkverbindingen in het standaard HNN neocorticale model vastliggen. De multiscale voorspelling die door HNN wordt gegeven en beschreven in Stap 7, biedt doelen voor validatie van deze aanname. Naarmate er nieuwe informatie beschikbaar komt om modelvoorspellingen te beperken, maakt het HNN-kader het mogelijk om een willekeurige set parameters te schatten.
- Open optimalisatie-instellingen
- Klik op het tabblad Optimalisatie linksboven in de GUI (Figuur 8A).
- Configureer de instellingen van de optimalisatie-uitvoering, inclusief het aantal iteraties, de oplosser en de doelstellingsfunctie.
OPMERKING: De standaard optimalisatie-instellingen (Doelfunctie = "dipole_corr"; Solver = "cma") geschikt zijn voor ERP-golfvormen. Deze doelfunctie maximaliseert de correlatiecoëfficiënt tussen gesimuleerde en empirische golfvormen. Verhoog de maximale iteraties als je veel parameters optimaliseert. De correlatiecoëfficiënt is een schaalvrije maat; daarom past u bij het gebruik van "dipole_corr" de schaalfactor aan na optimalisatie (Stap 4.7.1). Alternatief kun je "dipole_rmse" gebruiken om RMSE te minimaliseren, in welk geval de schaalfactor vast blijft. - Klik op het tekstvak Maximale iteraties en voer 100 in.
- Selecteer parameters voor optimalisatie
- Klik op het dropdownmenu van een exogene schijf waarvan de parameters geoptimaliseerd zullen worden (Figuur 8A en Figuur 8B, rode cirkel).
- Selecteer de schijfparameters die geoptimaliseerd moeten worden door op het selectievakje onder "Geoptimaliseerd tegen?" te klikken. (Figuur 8B).
- Definieer parameterbeperkingen
- Specificeer het bereik van parameterwaarden dat door de optimizer wordt onderzocht door waarden in te voeren in de Min- en Max-tekstvakken onder Constraints (%) (Figuur 8B).
OPMERKING: Standaardwaarden van 20% zijn geschikt voor simulaties die al een hoge correlatiecoëfficiënt hebben (Corr > 0,9). Bijvoorbeeld, het toepassen van een bereik van 20% op een gemiddelde tijd van 65,53 ms levert grenzen op van 52,42–78,64 ms. Bij slechte initiële fits, verhoog de Min- en Max-percentages; het aantal benodigde simulaties kan echter aanzienlijk toenemen.
- Specificeer het bereik van parameterwaarden dat door de optimizer wordt onderzocht door waarden in te voeren in de Min- en Max-tekstvakken onder Constraints (%) (Figuur 8B).
- Run optimalisatie
- Klik op de knop Optimaliseren uitvoeren (Figuur 8A) om de optimalisatieroutine uit te voeren.
- Resultaten van opslaan van optimalisatie
- Klik op de knop Optimalisatiegeschiedenis opslaan (Figuur 8A).
- Verplaats het opgeslagen bestand naar de projectmap die in Stap 2.5 is aangemaakt.
OPMERKING: Optimalisatieresultaten kunnen worden opgeslagen en hergebruikt. Het protocol kan in deze fase worden gepauzeerd en hervat door de opgeslagen optimalisatiegeschiedenis te laden.
- Beoordeel de optimalisatiekwaliteit
- Evalueer de kwaliteit van de optimalisatie-uitvoering.
OPMERKING: Bij het gebruik van de correlatiecoëfficiënt als goodness-of-fit-maat wordt een stopcriterium van Corr > 0,95 aanbevolen, omdat dit doorgaans een gesimuleerde golfvorm weergeeft die prominente pieken en dalen van de doel-ERP reproduceert. Vroegtijdige stopzetten wordt momenteel niet ondersteund, maar is in ontwikkeling. Verhoog het aantal iteraties als aan het stopcriterium niet wordt voldaan, maar het verlies elke 10 iteraties blijft afnemen.
- Evalueer de kwaliteit van de optimalisatie-uitvoering.
- Bepaal de volgende stappen op basis van het optimalisatieresultaat
- Als een goede passing met de pre-behandeling ERP wordt bereikt (d.w.z. Corr > 0,95), pas dan de schaalfactor opnieuw aan om RMSE te minimaliseren en ga door naar stap 5.
OPMERKING: Zoals beschreven in Stap 4.1, wanneer "dipole_corr" als doelfunctie wordt gebruikt, pas je de schaalfactor na optimalisatie opnieuw aan. In dit voorbeeld werd de schaalfactor verlaagd van de standaard van 3000× (Figuur 7A–7C) naar 1000× (Figuur 7D). - Als optimalisatie niet goed aansluit bij de pre-treatment ERP, keer dan terug naar stap 4.2 en voer probleemoplossing uit door het maximale aantal tactieken te verhogen, het handmatig afgestemde startpunt te verbeteren of alternatieve parameters te selecteren om aan te passen.
OPMERKING: Raadpleeg de sectie "Troubleshooting bij het aanpassen van parameters aan data-features" in de Discussie voor een gedetailleerde uitleg van de stappen voor probleemoplossing.
- Als een goede passing met de pre-behandeling ERP wordt bereikt (d.w.z. Corr > 0,95), pas dan de schaalfactor opnieuw aan om RMSE te minimaliseren en ga door naar stap 5.
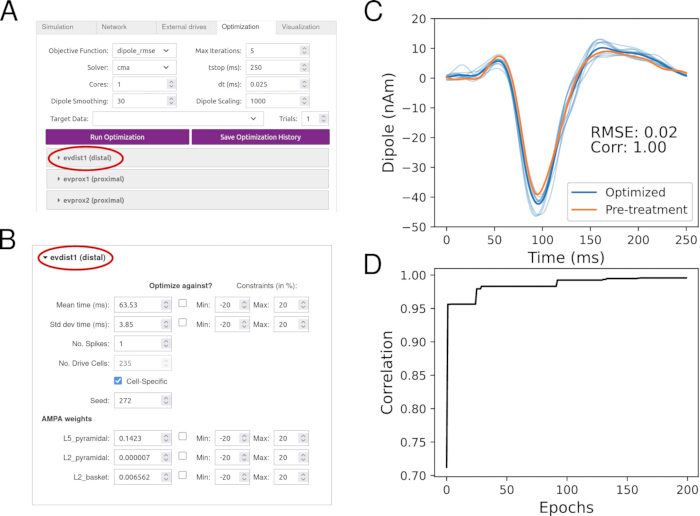
Figuur 8. Optimalisatie van exogene drijfparameters om de aansluiting op pre-behandeling ERP te verbeteren. (A) Optimalisatietabblad in de GUI voor het configureren van optimalisatieparameters. (B) Selectie van parameters en constraintbereiken voor optimalisatie. (C) Voorbeeldoptimalisatieresultaat dat een verbeterde aansluiting op empirische ERP-gegevens toont van Kohl et al.43. (D) Optimalisatieverliescurve die convergentie toont na ongeveer 80 iteraties. Klik hier om een grotere versie van deze figuur te bekijken.
5. Vaststellen van de pasvorm na de behandeling
- Begin met de geoptimaliseerde pre-behandeling ERP-simulatie. Stel de parameters van interesse handmatig af en optimaliseer ze om te passen bij de ERP na de behandeling.
- Laad de empirische ERP-golfvorm na behandeling
- Laad de empirische ERP-golfvorm na de behandeling van stap 1 in de GUI (dezelfde procedure als stap 3.2; Figuur 9A).
- Belastinggeoptimaliseerde voorbehandelingsparameters
- Laad de geoptimaliseerde pre-behandeling ERP-parameters van stappen 1–4 als uitgangspunt (Figuur 9A).
- Voer handmatig afstellen en optimaliseren uit
- Voer handmatig handmatig afstemmen en parameteroptimalisatie uit (dezelfde procedures als in Stappen 3.2–3.11 en Stap 4) op de parameters van belang die in Stap 1.7 zijn geïdentificeerd.
- Blijf afstellen en optimaliseren totdat een hoge correlatie (Corr > 0,95) is bereikt tussen gesimuleerde en post-behandeling ERP.
OPMERKING: Ter illustratie werd in Figuur 9B handafstemming toegepast op een signaalgerichte parameter (verminderde lokale GABA-B maximale geleiding), wat een nauwere aansluiting op de nabehandelingsgegevens opleverde. Er werd geen optimalisatie uitgevoerd om te evalueren hoe goed deze parameterwijziging rekening houdt met de data. De sectie "Representatieve Resultaten" beschrijft hoe je verdelingen van meerdere parameters kunt schatten die verondersteld worden post-behandelingsparameters van belang te zijn met behulp van SBI. SBI (gedetailleerd in stap 6) wordt aanbevolen voor rigoureuze onderzoeken omdat het de verdelingen van parameters schat die rekening houden met een ERP-golfvorm, waardoor robuuste vergelijkingen tussen parameterfits mogelijk zijn.
- Bewaar modelconfiguratie en vergelijk parameters
- Sla de modelconfiguratie op en vergelijk geoptimaliseerde waarden voor parameters van belang tussen voor- en nabehandelingscondities (gegevens niet getoond).
- Herhaal stap 3.11 om een .json bestand met modelparameters te exporteren. Verplaats het bestand naar de projectmap die in Stap 2.5 is aangemaakt.
- Bekijk exogene schijfparameters door te klikken op Externe schijven laden (Figuur 5A) en selecteer het pre-treatment of post-treatment netwerkconfiguratiebestand.
- Bekijk lokale netwerkparameters door te klikken op Laden lokale netwerkconnectiviteit (Figuur 9C) en selecteer het configuratiebestand voor het voorbehandel of het nabehandelingsnetwerk.
- Identificeer veranderingen in parameterwaarden tussen de netwerkconfiguraties vóór en na de behandeling. Interpreteer deze veranderingen als modelgebaseerde voorspellingen van biomarkermechanismen na behandeling.
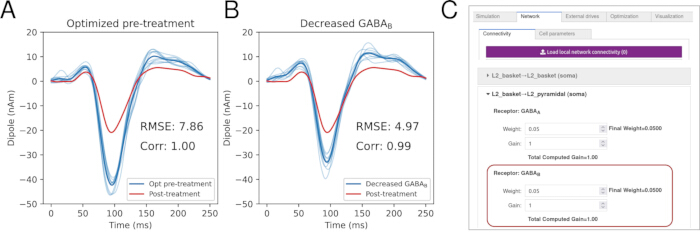
Figuur 9. Evaluatie van de synaptische sterkte van gamma-aminoboterzuur type B (GABAB) als mechanisme van EEG-biomarkers na behandeling. (A) Geoptimaliseerde pre-treatment simulatie (blauw) overliggend met post-treatment ERP (rood), met verminderde piekmagnitudes. (B) Vermindering van de synaptische sterkte van GABAB vermindert de N1-amplitude, wat wijst op een mogelijk mechanisme. (C) GUI-paneel dat toont waar de lokale GABA B-synaptische sterkte wordt aangepast. Klik hier om een grotere versie van deze figuur te bekijken.
6. Onzekerheidskwantificatie uitvoeren met SBI en de scheidbaarheid beoordelen met behulp van de HNN-Python application programming interface
OPMERKING: SBI vereist de installatie van een apart Python-pakket62. Raadpleeg de bijbehorende repository (https://github.com/ntolley/hnn_jove) voor een codevoorbeeld waarin wordt uitgelegd hoe parameterinferentie in HNN wordt uitgevoerd met het SBI-softwarepakket. De code is georganiseerd om de stappen in het volgende protocol te volgen. Een volledige bespreking van het toepassen van SBI op het HHNN-model wordt gegeven in55.
- Installeer het SBI-pakket
- Installeer het SBI-pakket door het volgende commando uit te voeren in een terminal met de Python-omgeving geactiveerd: pip install sbi.
- Definieer priorparameterbereiken
- Identificeer parameterbereiken rond de beoogde subset van pre-treatment en post-treatment ERP-parameters om een begrensde priorverdeling te creëren voor onzekerheidskwantificatie.
- Genereer trainingsdataset.
- Definieer een parameter-updatefunctie (dezelfde aanpak als parameteroptimalisatie).
- Fix de willekeurige seed voor het genereren van monsters uit de priorverdeling om reproduceerbaarheid te waarborgen. Als je NumPy gebruikt voor het genereren van willekeurige steekproeven, maak dan een instantie van een willekeurige getallengenerator aan in het Python-script (bijv. rng = np.random.default_rng(123)) en gebruik deze generator voor steekproefneming.
OPMERKING: De bijbehorende coderepository (https://github.com/ntolley/hnn_jove) biedt een voorbeeld van het gebruik van een NumPy random generator in code/generate_simulations.py. - Neem parameters uit de priorverdeling.
OPMERKING: 10.000 steekproeven werden gebruikt om de representatieve resultaten te genereren. - Genereer een dataset van gesimuleerde ERP's met behulp van de gemonsterde parameterwaarden.
- Selecteer samenvattende statistieken.
- Kies een samenvattende statistiek die de EEG-golfvorm karakteriseert.
OPMERKING: Een samenvattende statistiek is elke grootheid die belangrijke kenmerken van een EEG-golfvorm vastlegt. Veelvoorkomende keuzes zijn piektiming en magnitude. In dit manuscript wordt hoofdcomponentanalyse (PCA) gebruikt om samenvattende statistieken te extraheren (d.w.z. de belastingen van de eerste vier hoofdcomponenten). Zie55 voor een volledige bespreking. - Treinnetwerk SBI
OPMERKING: Deze tutorial gebruikt de standaard trainingsparameters (bijv. density_estimator="maf", training_batch_size=200, learning_rate=0,0005) die worden meegeleverd met het SBI-pakket voor het neurale posterior estimator-object. Trainingsparameters worden beschreven in de SBI-documentatie (https://sbi.readthedocs.io/en/stable/api_reference/_autosummary/sbi.inference.NPE_B.html). - Stel de globale PyTorch random seed in om reproduceerbare training te garanderen door torch.manual_seed(0) in het Python-script op te nemen na het importeren van Torch.
- Train het SBI-netwerk om parametercombinaties toe te passen aan gesimuleerde ERP-golfvormen.
OPMERKING: Het getrainde SBI-netwerk is een Python-object dat samenvattende statistieken uit EEG-gegevens als invoer accepteert en een verdeling van parameters (posterior distributie) uitvoert. Als de training succesvol is, produceert het simuleren van parameters uit deze verdeling in het HNN-model EEG-golfvormen vergelijkbaar met de empirische gegevens (posterior predictive check [PPC]). - Genereer posterior samples en evalueer fit
- Geef de experimentele EEG-golfvorm als conditioneringsinput aan het getrainde netwerk.
- Trek parametermonsters uit de posterieure verdeling, geconditioneerd op de experimentele EEG-golfvorm.
- Simuleer de parametermonsters die uit de posterior verdeling zijn getrokken.
- Bereken de gelijkenis tussen de gesimuleerde golfvormen en de experimentele EEG-golfvorm die als invoer wordt geleverd.
OPMERKING: Deze procedure wordt een PPC genoemd. Een goed getraind netwerk produceert simulaties die nauw overeenkomen met de empirische golfvorm (hoge correlatie of lage RMSE). Als de PPC geen bevredigende simulaties oplevert, bestaan er twee mogelijkheden: (1) de veronderstelde mechanismen houden geen rekening met de biomarker, waardoor nieuwe hypothesen en bijgewerkte priorverdelingen nodig zijn; of (2) het SBI-netwerk niet succesvol is getraind. In dat geval verhoog je het trainingsbudget of pas je de samenvattende statistieken aan. - Als gesimuleerde ERP's uit de gesamplede parameterverdelingen passen bij de pre-behandeling en post-behandeling ERP (PPC met Corr > 0,95), ga dan door naar stap 6.8. Anders ga je door naar stap 6.7.
- Kies een samenvattende statistiek die de EEG-golfvorm karakteriseert.
- Probleemoplossing voor SBI-netwerktraining
OPMERKING: Een mislukte PPC geeft aan dat de trainingsparameters van het SBI-netwerk aanpassing vereisen. Raadpleeg de sectie "Troubleshooting bij het aanpassen van parameters aan data-features" in de Discussie voor een gedetailleerde uitleg.- Vergroot de grootte van de trainingsdataset.
- Pas de samenvattingsfuncties aan.
- Kies een andere SBI-architectuur voor training.
- Visualiseer posterieure verdelingen en beoordeel de scheidbaarheid
- Geef de array van parametermonsters van stap 6.6.2 door aan de pairplotfunctie en ken verschillende kleuren toe aan de verdelingen die overeenkomen met elke ERP-conditie.
OPMERKING: De bijbehorende coderepository demonstreert plotfunctionaliteit om Figuur 10 te reproduceren. - Inspecteer de diagonale panelen van de gegenereerde pairplot op niet-overlappende verdelingen. Beoordeel de scheidbaarheid door de OVL te berekenen (Figuur 10A). Parameters met sterk gescheiden verdelingen (OVL < 0,1) komen overeen met voorspelde werkingsmechanismen van het neurotherapeutisch middel die na behandeling veranderen ten opzichte van de voorbehandeling.
OPMERKING: OVL is een maatstaf die de distributiescheidbaarheid in het bereik (0,1) kwantificeert, waarbij OVL = 0,0 geen overlap aangeeft en OVL = 1,0 volledige overlap54,55. Code om OVL te berekenen wordt geleverd in de bijbehorende coderepository.
- Geef de array van parametermonsters van stap 6.6.2 door aan de pairplotfunctie en ken verschillende kleuren toe aan de verdelingen die overeenkomen met elke ERP-conditie.
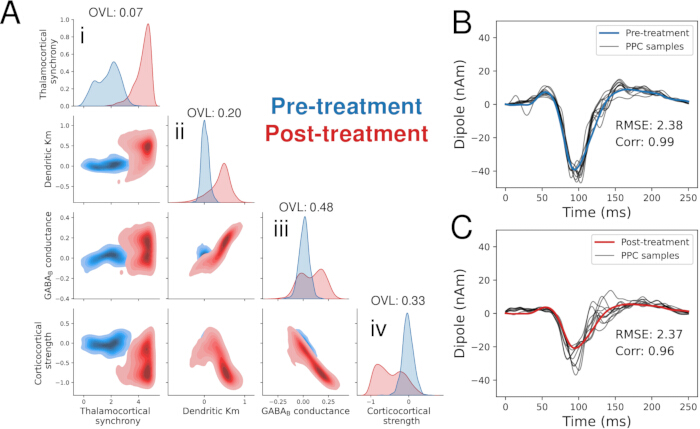
Figuur 10. SBI voor de kwantificatie van parameteronzekerheid en identificatie van neurotherapeutische mechanismen. (A) Pairplot-visualisatie van parameterverdelingen die zijn geschat met SBI. Diagonale panelen (i–iv) tonen univariate verdelingen voor individuele parameters, waaronder (i) thalamocorticale synchronisatie, (ii) dendritische Km geleiding, (iii) GABAB-geleiding en (iv) corticocorticale feedbacksterkte. Eenheden voor (i) worden uitgedrukt als een multiplicatieve schaalfactor van de standaard (voorbehandeling) parameterwaarde. Eenheden voor (ii-iv) worden uitgedrukt als een multiplicatieve schaalfactor van de standaard (voorbehandeling) parameterwaarde op een logaritmische schaal. Verdelingen voor pre-behandeling (blauw) en post-behandeling (rood) condities tonen verschillende gradaties van scheidbaarheid, waarbij thalamocorticale synchronisatie de laagste overlap vertoont (overlapwaarde, OVL = 0,07), wat het sterkste behandelingsgerelateerde effect aangeeft. Off-diagonale panelen tonen bivariate relaties tussen parameters. (B) Posterior predictive check (PPC) voor ERP vóór behandeling; Gesimuleerde golfvormen (zwart) komen nauw overeen met empirische gegevens (blauw). (C) PPC voor ERP na behandeling; Gesimuleerde golfvormen (zwart) komen nauw overeen met empirische gegevens (rood). Klik hier om een grotere versie van deze figuur te bekijken.
7. Onderzoek uitvoeren, valideren en verdere modelbeperkingen uitvoeren
OPMERKING: Deze stap geeft voorbeelden van hoe je elementen van gesimuleerde activiteit in de GUI kunt visualiseren. Deze multiscale details bieden doelen om modelgebaseerde voorspellingen te valideren en te informeren in vervolgexperimenten 7,47. Dit protocol biedt geen richtlijnen voor het selecteren van welke voorspellingen het beste geschikt zijn voor validatie-experimenten of hoe validatie-experimenten moeten worden uitgevoerd (d.w.z. Stap 7.3).
- Laad modelparameters en voer simulaties uit
- Laadmodelparameters geoptimaliseerd voor pre-behandeling en post-behandeling condities en voer simulaties uit.
OPMERKING: Parameters uit optimalisatie in stappen 4–5 kunnen worden geladen en onderzocht. Voorbeelden van hoe netwerkparameters die door SBI zijn geproduceerd in Stap 6 vanuit de Python-interface kunnen worden geëxporteerd, zijn opgenomen in de bijbehorende GitHub-repository.
- Laadmodelparameters geoptimaliseerd voor pre-behandeling en post-behandeling condities en voer simulaties uit.
- Onderzoek multiscale-voorspellingen
- Onderzoek multiscale voorspellingen van gesimuleerde outputs.
- Plot celniveau spikingactiviteit
- Klik op het tabblad Visualisatie (Figuur 4A).
- Klik op het dropdownmenu met het label Layout-sjabloon en selecteer Dipole Layers-Spikes.
- Selecteer onder het dropdownmenu Dataset de simulatieresultaten die worden uitgezet.
- Klik op Make figure om de piekactiviteit te visualiseren die bijdraagt aan de dipoolgolfvorm.
OPMERKING: Bepaalde microcircuitfuncties (bijv. LFP en CSD) zijn alleen beschikbaar via de HNN-Python application programming interface (API). Code-gebaseerde tutorials voor deze functies zijn beschikbaar op de HNN-voorbeeldpagina (https://jonescompneurolab.github.io/hnn-core/stable/index.html).
- Valideer modelvoorspellingen met empirische gegevens
- Identificeer bestaande datasets en/of verzamel nieuwe empirische gegevens (bijv. invasieve elektrofysiologie, laminaire MEG/EEG en magnetische resonantiespectroscopie) om multischaalmodelvoorspellingen te testen.
- Vergelijk voorspellingen van multischaalmodellen met empirische datasets.
- Als multiscale voorspellingen overeenkomen met empirische datasets, beschouw dan het model dat gevalideerd is voor de geselecteerde microcircuitfeature.
- Als multiscale voorspellingen niet overeenkomen met empirische datasets, update dan het standaard HNN-netwerk door het te beperken met nieuwe empirische gegevens en keer terug naar Stap 3.
Resultaten
Deze sectie presenteert een scenario waarin een neurotherapeut met een onbekend werkingsmechanisme wordt onderzocht met behulp van de HNN-modelleringssoftware. Het doel is om EEG-signalen voor en na behandeling te gebruiken om voorspellingen te genereren over hoe de neurotherapeutische neurotherapie neurale circuits verandert. De resultaten worden gepresenteerd voor demonstratiedoeleinden om te illustreren hoe HNN-modellering kan worden toegepast om neurotherapeutische mechanismen te onderzoeken.
Het ontwikkelen van mechanistische hypothesen ten grondslag liggen aan EEG ERP-biomarkers (Stap 1)
In dit voorbeeld wordt een hypothetisch sensorisch ERP-paradigma gebruikt om te onderzoeken hoe de neurotherapeutische methode het signaal verandert (Stap 1). Figuur 1A toont een auditieve ERP vóór de behandeling (blauw) naast een hypothetische ERP na behandeling (rood; zie ook Figuur 9). De auditieve ERP vóór de behandeling is experimenteel opgenomen brongelokaliseerde gegevens van Kohl et al.43, en de hypothetische ERP na behandeling wordt gegenereerd door de golfvorm vóór de behandeling te schalen met een Gaussisch taps toelopende venster. Zoals getoond, veroorzaakt de hypothetische neurotherapie een grote afname in de omvang van de P1-, N1- en P2-componenten ten opzichte van de ERP vóór de behandeling.
Let op dat in Kohl et al.43, waaruit de pre-behandeling ERP-gegevens zijn verkregen, de HNN-simulaties een model gebruikten waarin piramidale neuronen werden versterkt met realistischere calciumkanaaldynamica dan in het standaard HNN-model. Als gevolg hiervan verschillen de simulatieresultaten in Kohl et al.43 enigszins van die hier getoond. Het Kohl et al. 2020-model (en andere bijgewerkte HNN-modellen) zijn toegankelijk via de Python API (https://jonescompneurolab.github.io/hnn-core/stable/generated/hnn_core.calcium_model.html#hnn_core.calcium_model). Toegang tot dergelijke uitgebreide modellen via de GUI is momenteel in ontwikkeling.
Identificeer vervolgens modelparameters die behandelingsgerelateerde effecten vertegenwoordigen (d.w.z. parameters van interesse) die worden verondersteld om te verklaren hoe de neurotherapie de P1-, N1- en P2-magnitudes vermindert (stappen 1.6–1.8). Brede categorieën van kandidaat-neurale mechanismen (en bijbehorende modelparameters) omvatten de timing van exogene synaptische inputs, lokale neuronale ionenkanaalconductanties, lokale synaptische connectiviteit en exogene synaptische connectiviteit (Figuur 1B). In dit voorbeeld worden kandidaatmechanismen uit elke categorie geëvalueerd met behulp van HNN om te beoordelen hoe veranderingen in deze parameters de gesimuleerde ERP beïnvloeden.
Parameters van belang
- Standaarddeviatie van de eerste (thalamocorticale) proximale aandrijving (d.w.z. thalamocorticale synchronisatie), die variabiliteit in synchronisatie van initiële feedforward sensorische input vertegenwoordigt.
- Muscarine-kalium (Km) kanaalconductantie in laag 5 (L5) piramidale neuronen, die de neuronale excitabiliteit regelen, zodanig dat de excitabiliteit afneemt naarmate de geleidbaarheid toeneemt.
- Lokale GABA B-receptorsterkte, overeenkomend met een langzame remmende synaps die door interneuronen aan alle cellen in het lokale netwerk wordt geleverd.
- Geleidingssterkte van de feedback (corticocorticale) distale aandrijving, die de sterkte weergeeft van de ~100 ms sensorisch opgewekte feedbackinput naar AMPA- en NMDA-synapsen in supragranulaire lagen.
Het vaststellen van de pre-treatment ERP-model fit (Stappen 3–4)
Simuleer de pre-treatment ERP door stappen 3–4 te volgen (definitieve pre-behandelingssimulatie weergegeven in Figuur 8C). Een succesvol resultaat wordt aangegeven door een nauwe overeenkomst tussen gesimuleerde en empirische golfvormen, gekwantificeerd door een hoge correlatiecoëfficiënt en een lage RMSE.
Het vaststellen van de ERP-model na behandeling (Stap 5)
Gebruik het pre-treatment ERP-model als uitgangspunt en pas handmatige afstemming en parameteroptimalisatie toe om te bepalen of de parameters van belang de empirische post-treatment ERP kunnen reproduceren. Een geslaagde fit geeft aan dat de veronderstelde parameters voldoende zijn om behandelingsgerelateerde veranderingen in de ERP-golfvorm te verklaren.
Onzekerheidskwantificatie met SBI (Stap 6)
Vanwege parameterdegeneratie die inherent is aan biofysische modellen is onzekerheidskwantificatie met SBI (Stap 6) essentieel om voorspellingen te doen over parameterveranderingen vóór tot na behandeling. Een cruciale voorwaarde voor SBI is het nauwkeurig afstemmen van pre-treatment en post-treatment ERP's (Stappen 3–5). Als nauwkeurige fits niet worden bereikt, kunnen posterieure monsters die door SBI worden gegenereerd de empirische golfvormen niet reproduceren, wat leidt tot onbetrouwbare voorspellingen.
Als een succesvolle passing niet kan worden bereikt in stappen 3–5, herzien dan de selectie van parameters van belang en hun voorgaande bereiken voordat SBI wordt toegepast.
In dit voorbeeld wordt SBI alleen toegepast op de vier parameters na de behandeling van belang, terwijl alle andere parameters vast blijven. Hoewel het toepassen van SBI op een grotere parameterset de robuustheid kan verbeteren, verhoogt het de rekenkosten aanzienlijk (zie Bespreking).
SBI wordt gebruikt om volledige parameterverdelingen te schatten die gesimuleerde ERP's genereren die nauw overeenkomen met doelgolfvormen. Kort gezegd is SBI een Bayesiaanse inferentiebenadering die een neuraal netwerk traint om modeluitvoer te koppelen aan verdelingen van modelparameters 52,53,55. Het getrainde netwerk wordt vervolgens toegepast op empirische golfvormen om parameterverdelingen af te leiden die consistent zijn met de data. Dit vereist voorafgaande hypothesen over parameterbereiken.
In dit voorbeeld wordt een uniforme priorverdeling gedefinieerd over de vier parameters van belang: thalamocorticale synchronie, piramidale neuron dendritische Km-conductantie, lokale GABAB-conductantie en corticocorticale feedbacksterkte. Priorgrenzen worden gedefinieerd als scalaire veelvouden van standaardwaarden: 0–5× voor thalamocorticale synchronie en 10−1–101× voor de overige parameters.
Figuur 10A toont de resulterende parameterverdelingen voor pre-behandeling en post-behandeling ERP's, gevisualiseerd met behulp van een pairplot. Diagonale panelen tonen univariate verdelingen, terwijl niet-diagonale panelen bivariate relaties tonen. Mechanistische voorspellingen komen overeen met parameters met sterk gescheiden verdelingen tussen de omstandigheden.
Inspectie van de univariate verdelingen toont aan dat thalamocorticale synchronie de grootste scheidbaarheid van vóór tot na behandeling vertoont (laagste OVL van 0,07) en toeneemt na behandeling (Figuur 10A(iii), rood). Dit geeft aan dat het HNN-kader modulatie van thalamocorticale synchronie voorspelt als een potentieel werkingsmechanisme.
Posterior predictieve validatie
Valideer afgeleide parameterverdelingen met behulp van een PPC. Genereer onafhankelijke parametermonsters uit de posterior verdeling en simuleer overeenkomstige ERP's. Een succesvolle PPC wordt aangegeven wanneer gesimuleerde golfvormen nauw overeenkomen met de empirische ERP.
Zoals weergegeven in Figuur 10B en Figuur 10C, komen zowel pre-behandeling (Figuur 10B, blauw) als post-behandeling (Figuur 10C, rood) golfvormen nauw overeen met simulaties gegenereerd van posterieure monsters (zwart), met correlatiecoëfficiënten van respectievelijk 0,99 en 0,96 (gemiddeld over 10 onafhankelijke steekproeven). Deze resultaten bevestigen dat de afgeleide parameterverdelingen nauwkeurige golfvormreconstructies opleveren.
Een voorbeeld van een mislukte PPC is te vinden in Aanvullende Figuur 1. Het voorbeeld volgt dezelfde structuur als Figuur 10 en gebruikt hetzelfde getrainde SBI-netwerk; echter, er wordt een alternatieve golfvorm na de behandeling gebruikt die niet goed wordt weergegeven in de trainingsset (bijvoorbeeld ERP-golfvormen met een positieve afbuiging bij de N1-latentie). De mislukte PPC wordt aangegeven in aanvullende figuur 1C, waar de correlatiecoëfficiënt laag is (bijv. Corr < 0,95). Opmerkelijk is dat de posterieure verdeling in Aanvullende Figuur 1A sterk gescheiden parameterverdelingen laat zien. Zonder het uitvoeren van een PPC kunnen deze resultaten verkeerd worden geïnterpreteerd als betekenisvolle verschillen tussen voorbehandelings- en nabehandelingsaandoeningen. Dit voorbeeld benadrukt het belang van het uitvoeren van een PPC naast de interpretatie van posterior verdelingen, aangezien resultaten van een mislukte PPC onbetrouwbaar zijn en niet verder geanalyseerd mogen worden.
Modelonderzoek en validatie (Stap 7)
Met behulp van het HNN-model is het mogelijk om direct activiteit op cel- en circuitniveau, zoals pieken, te inspecteren en te visualiseren die aan elke ERP-simulatie ten grondslag liggen (Stap 7.2.2). Figuur 11A en Figuur 11B tonen gesimuleerde ERP's die zijn samengesteld uit de parameters voor en na behandeling, samen met overeenkomstige celspecifieke piekactiviteit (Figuur 11C en Figuur 11D).
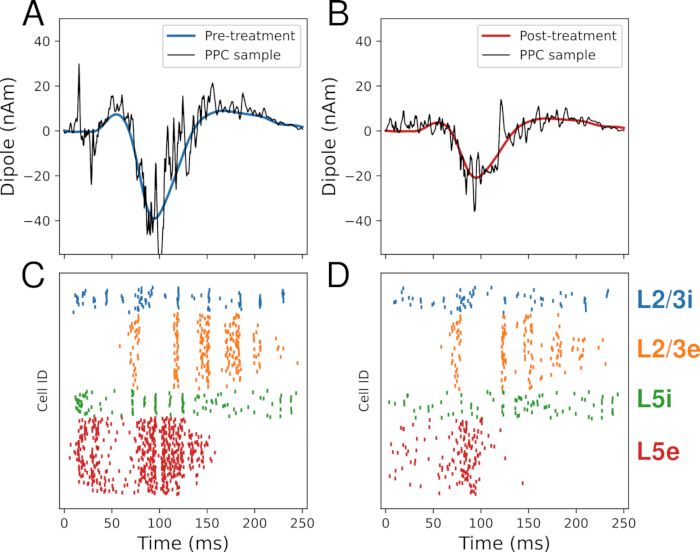
Figuur 11. Spikingactiviteit op celniveau onderbouwt de generatie van de EEG-biomarker. (A) Pre-treatment ERP (blauw) met een enkele posterior predictive simulatie (zwart). (B) ERP na behandeling (rood) met een bijbehorende posterieure voorspellende simulatie (zwart). (C) Gesimuleerde piekactiviteit die ten grondslag ligt aan de pre-behandeling ERP. (D) Gesimuleerde piekactiviteit die ten grondslag ligt aan de ERP na de behandeling. Klik hier om een grotere versie van deze figuur te bekijken.
De golfvormen worden zonder gladmaking weergegeven om de bijdrage van spike-timing aan de huidige dipool te benadrukken. In experimentele EEG-signalen produceren grote neuronale populaties ruimtelijk gemiddelde signalen die vloeiender lijken. Omdat HNN een kleinere populatie simuleert (200 piramidale neuronen), wordt smoothing gebruikt om grotere activiteit (>100.000 neuronen) te benaderen.
Een opvallend verschil tussen aandoeningen is verminderde piekactiviteit in L5-piramidale neuronen na behandeling (Figuur 11C en Figuur 11D, rode stip). Let op dat Figuur 11 een enkele steekproef uit de posterieure verdeling toont; Meerdere monsters moeten worden geanalyseerd om robuuste voorspellingen te genereren. Deze resultaten tonen aan dat de hypothetische neurotherapeutische activiteit van multischaalcircuits verandert, wat resulteert in verminderde amplitudes van P1–N1–P2.
Voorspellingen zoals deze kunnen direct worden getest via invasieve elektrofysiologie (bijv. high-density laminaire probe-opnames) of andere beeldvormingsmodaliteiten (Stap 7.3). Nieuw verkregen gegevens kunnen vervolgens worden gebruikt om modelvoorspellingen verder te beperken. Hoewel dit protocol zich richt op het aanpassen van macroschaal EEG-gegevens om microcircuitactiviteit af te leiden, kan het framework ook omgekeerd worden toegepast door microcircuitgegevens (bijv. spiking, LFP/CSD) te passen om macroschaal EEG-signalen af te leiden.
Aanvullende Figuur 1. Voorbeeld van een mislukte posterior predictive check in de SBI-workflow. De grafieken zijn identiek georganiseerd aan Figuur 10. De pre-behandelingsgegevens (blauw) zijn identiek aan Figuur 10. De hypothetische nabehandelingsgegevens werden identiek gegenereerd als voorheen (golfvorm vermenigvuldigd met een Gaussisch taps toelopende venster), maar getransformeerd om een positieve piek te produceren die niet goed wordt weergegeven in de trainingsset van HNN-simulaties. (A) Pairplot-visualisatie van parameterverdelingen die zijn geschat met SBI. Diagonale panelen (i–iv) tonen univariate verdelingen voor individuele parameters, waaronder (i) thalamocorticale synchronisatie, (ii) dendritische Km geleiding, (iii) GABAB-geleiding en (iv) corticocorticale feedbacksterkte. Verdelingen voor pre-behandeling (blauw) en post-behandeling (rood) condities tonen een hoge scheidbaarheid voor alle parameters (OVL < 0,1). Off-diagonale panelen tonen bivariate relaties tussen parameters. (B) Posterior predictive check (PPC) voor ERP vóór behandeling; Gesimuleerde golfvormen (zwart) komen nauw overeen met empirische gegevens (blauw). (C) PPC voor ERP na behandeling; gesimuleerde golfvormen (zwart) verschillen sterk van de empirische gegevens (rood), waarbij Corr < 0,95 een mislukte PPC aangeeft. Klik hier om dit bestand te downloaden.
Discussie
Computationele neurale modellering van EEG-biomarkers kan dieper inzicht geven in hoe CNS-therapieën neurale circuits herconfigureren en voorspellingen geven over de biologische processen die ten grondslag liggen aan therapeutische effecten. De hier gepresenteerde workflow laat zien hoe een veelvoorkomend gemeten EEG-biomarker, auditieve ERP's, samen met biofysische modellering met behulp van de HNN, kunnen worden gebruikt als een venster naar de mechanismen waarmee een geneesmiddel de neurale activiteit beïnvloedt. Door macroschaal EEG-metingen te koppelen aan onderliggende cellulaire en circuitniveauprocessen, biedt dit protocol een gestructureerd en hypothese-gedreven kader voor mechanistische interpretatie. Belangrijk is dat de benadering niet beperkt is tot ERP's en kan worden uitgebreid naar het onderzoeken van andere lokale EEG-signalen, waaronder laagfrequente neurale oscillaties40,63 en transiënte spectrale gebeurtenissen 7,47,64, waardoor de toepasbaarheid wordt verbreed over elektrofysiologische biomarkers en experimentele paradigma's.
In vergelijking met andere kaders voor neurale modellering van EEG biedt HNN een balans tussen modelcomplexiteit en rekenkundige efficiëntie die bijzonder voordelig is voor iteratief hypothesetesten. Zo maakt The Virtual Brain simulatie mogelijk van grootschalige hersennetwerken die ruimtelijke EEG-signalengenereren 34,65. Om echter volledige hersenmodellering te bereiken, wordt neurale activiteit weergegeven met verminderde wiskundige formuleringen, die gedetailleerde cellulaire kenmerken zoals piramidale neuronmorfologie elimineren en de mogelijkheid beperken om modelparameters direct te koppelen aan cellulaire werkingsmechanismen van geneesmiddelen. Omgekeerd kunnen grootschalige morfologisch en fysiologisch gedetailleerde modellen EEG-signalen simuleren met een hoge biologische realiteitvan 66,67,68,69, maar tegen een aanzienlijke rekenkosten, waarbij vaak enkele uren aan berekening nodig is om slechts enkele seconden neurale activiteit te simuleren. Deze rekenlast kan de toegankelijkheid beperken en het iteratieve proces dat nodig is voor hypothesevorming en -testen vertragen. HNN neemt een tussenpositie in (Figuur 2), waardoor simulatie van gelokaliseerde neocorticale circuits met voldoende biologische details mogelijk is om voorspellingen op cel- en circuitniveau te genereren, terwijl de rekenefficiëntie behouden blijft (d.w.z. simulaties van de orde van seconden), waardoor het zeer geschikt is voor integratie in experimentele workflows.
Ondanks deze voordelen moeten verschillende beperkingen worden meegenomen bij het toepassen van EEG en biofysische neurale modellering om hersenziekten en medicijnmechanismen te bestuderen. De biofysische cel- en circuiteigenschappen die EEG-signalen genereren, vatten niet het volledige spectrum van biologische processen die door farmacologische interventies worden beïnvloed. Bijvoorbeeld, systemische of immunologische responsen beïnvloeden mogelijk geen directe invloed op EEG-signalen en worden daarom mogelijk niet weerspiegeld in de gemodelleerde uitgangen. Daarnaast worden mechanistische hypothesen vaak afgeleid uit dierstudies, die mogelijk niet volledig overeenkomen met de menselijke hersenfunctie, vooral bij neuropsychiatrische aandoeningen waar klinische uitkomsten gebaseerd zijn op gedrags- en cognitieve beoordelingen70,71. Een andere belangrijke uitdaging is het onderscheiden van acute en chronische farmacologische effecten. Hoewel acute interacties tussen geneesmiddelen en receptoren relatief goed zijn gekarakteriseerd, zijn de langetermijnaanpassingen die door langdurige blootstelling aan geneesmiddelen worden geïnduceerd minder goed begrepen en worden ze mogelijk niet volledig vastgelegd in de huidige modelleringskaders. Bovendien vertegenwoordigt het HNN-model een enkel gelokaliseerd canoniek neocorticaal netwerk, terwijl neurotherapieën en CNS-ziekten vaak verspreide effecten uitoefenen over meerdere hersengebieden. Hoewel invloeden uit andere regio's kunnen worden benaderd door veranderingen in de timing en sterkte van exogene inputs, is directe empirische karakterisering van deze upstream- of downstreamcircuits vaak beperkt, wat de modelinterpretatie beperkt.
Parameterdegeneratie vormt een fundamentele uitdaging in alle biofysische neurale modellen, omdat meerdere parameterconfiguraties vergelijkbare modeluitkomsten kunnen opleveren. In dit protocol wordt SBI gebruikt om dit probleem aan te pakken door verdelingen te schatten van parameters die ERP-golfvormen genereren die consistent zijn met empirische gegevens (Figuur 10). Deze benadering maakt het mogelijk onzekerheid in modelparameters te kwantificeren, waardoor een robuuster kader voor mechanistische interpretatie wordt geboden dan enkelpuntschattingen. Voor computationele tractabiliteit wordt SBI echter toegepast op een beperkte subset parameters die overeenkomen met veronderstelde geneesmiddelmechanismen, en aannames over niet-geschatte parameters kunnen de resulterende netwerkdynamiek beïnvloeden. Het uitbreiden van inferentie naar grotere parameterruimtes kan worden bereikt met benaderingen zoals sequentiële neurale posterior schatting, die parameterschattingen iteratief verfijnt en verkenning van parameterverdelingen in hogere dimensies mogelijk maakt52 (>10 dimensies). Naast probabilistische inferentie kan het opnemen van onafhankelijke experimentele beperkingen de parameteronzekerheid verder verminderen en de specificiteit van modelvoorspellingen verbeteren. Omdat EEG-signalen voornamelijk gecoördineerde activiteit weerspiegelen over corticale lagen, leveren complementaire technieken zoals invasieve laminaire elektrofysiologie—waaronder metingen van celpieken, LFP en CSD—waardevolle informatie om modeloplossingen te beperken en mechanistische hypothesen te verfijnen.
Succesvolle toepassing van dit protocol hangt af van de zorgvuldige uitvoering van verschillende kritieke stappen. Na het identificeren van een ERP-biomarker en het installeren van het modelleringsframework (Stappen 1–2), is de primaire vereiste het behalen van succesvolle resultaten in elke fase van de workflow (Figuur 3). In stappen 3–5 omvat dit het selecteren en verfijnen van hypothetische parameters die handmatig kunnen worden afgestemd of geoptimaliseerd om een nauwe aansluiting te bereiken tussen gesimuleerde en empirische pre-behandeling en post-behandeling ERP's. Als een bevredigende passing niet kan worden verkregen, moeten alternatieve parameters worden onderzocht en iteratief getest. Hoewel herhaalde storingen onwaarschijnlijk zijn gezien eerdere demonstraties van HNN's vermogen om ERP-functies te reproduceren, kan aanhoudende storing wijzen op de noodzaak om het standaardnetwerkmodel aan te passen of extra biofysische details toe te voegen. Stap 6 vereist zorgvuldige configuratie van SBI, inclusief de juiste selectie van parameterbereiken, samenvattende statistieken en trainingsparameters om een nauwkeurige schatting van parameterverdelingen te garanderen. Na succesvolle voltooiing van Stap 6 levert het protocol zowel modelgebaseerde voorspellingen als bijbehorende onzekerheidsschattingen op. Stap 7 is cruciaal voor het valideren van deze voorspellingen, hoewel de specifieke validatiestrategieën afhankelijk zijn van beschikbare experimentele modaliteiten. Mogelijke validatiebenaderingen omvatten laminaire elektrofysiologische opnames om laag- en celspecifieke spikingactiviteit en LFP/CSD-signalen7 te beoordelen, laag-opgeloste MEG/EEG-metingen, magnetische resonantiespectroscopie of positronemissietomografie voor het beoordelen van neurotransmittersystemen, en diffusietensorbeeldvorming voor het evalueren van structurele connectiviteit zoals thalamocorticale paden.
Probleemoplossing en aanpassing zijn essentieel om het protocol aan te passen aan verschillende datasets en experimentele contexten, vooral in stappen 3–6 waar modelparameters worden aangepast aan empirische gegevens. Parameteroptimalisatie (stappen 4–5) kan niet convergeren naar een hoge correlatie (Corr > 0,95), in welk geval meerdere aanpassingen kunnen worden gedaan. Deze omvatten het aanpassen van optimizer-hyperparameters (bijvoorbeeld het vergroten van populatiegrootte in de CMA-ES solver om de robuustheid te verbeteren, met hogere rekenkosten), het verfijnen van schaal- en gladmakingsparameters (bijvoorbeeld het testen van smoothingwaarden tussen 5 en 60 ms), en het uitbreiden van het bereik van exogene schijfparameters of het introduceren van extra drives om golfvormkenmerken beter vast te leggen. In sommige gevallen kunnen geoptimaliseerde simulaties een hoge correlatie bereiken terwijl ze geen lagere amplitude ERP-kenmerken zoals de P1-component vastleggen; Dit kan worden aangepakt door strengere verliesdrempels toe te passen of specifieke tijdsvensters te wegen om deze kenmerken tijdens optimalisatie te benadrukken. Voor SBI (Stap 6) betekent falen van PPC's dat de gesimuleerde golfvormen de empirische gegevens niet adequaat weergeven (Aanvullende Figuur 1). In dergelijke gevallen moeten de priorparameterverdelingen worden herzien door de parameterbereiken uit te breiden of extra parameters toe te voegen, en de omvang van de trainingsdataset kan worden vergroot. Aanvullende verbeteringen kunnen worden bereikt door samenvattende statistieken aan te passen of alternatieve SBI-architecturen te selecteren. Ten slotte, wanneer validatie in Stap 7 faalt, kan het standaard HNN-netwerk aanpassing vereisen om extra of alternatieve circuitelementen toe te voegen. Het modulaire ontwerp van HNN ondersteunt dergelijke uitbreidingen, waardoor de synaptische connectiviteit en cellulaire eigenschappen via de GUI kunnen worden gewijzigd, en meer geavanceerde structurele veranderingen via de Python-interface. Zo heeft eerder onderzoek het standaardmodel aangepast om meer gedetailleerde interneuronconnectiviteit in frontale cortex46 te integreren, wat resulteert in nieuwe testbare voorspellingen. Het open raamwerk van HNN faciliteert het delen en hergebruiken van uitgebreide modellen, wat verdere verfijning en validatie in experimentele contexten ondersteunt.
Openbaarmakingen
N.T. en S.R.J. zijn mede-uitvinders van een lopende octrooiaanvraag met betrekking tot methoden voor parameterinferentie in neurale circuitmodellen zoals beschreven in dit werk. De overige auteurs geven geen belangenconflicten op.
Dankbetuigingen
Alle code die wordt gebruikt om de resultaten in dit protocol te produceren, is te vinden op: https://github.com/ntolley/hnn_jove. Dit werk werd ondersteund door de Brown Biomedical Innovation to Impact Award, de National Institutes of Health (NIH; https://www.nih.gov; subsidienummers U24NS129945 en P50MH109429), en de National Science Foundation (NSF; https://www.nsf.gov; subsidienummer 2424101). De financiers hadden geen rol in het ontwerp van de studie, het verzamelen en analyseren van gegevens, de beslissing om te publiceren of de voorbereiding van het manuscript. Dit werk maakte gebruik van computationele middelen die werden ondersteund door de NIHS10 instrumentatiesubsidie S10OD036341 (High-Performance Compute Cluster for Brain Science) via het Center for Computation and Visualization (CCV) aan Brown University.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Anaconda Python | Anaconda, Inc. | N.V. | Python distributie; Python versie ≥3.9 en <3.14 |
| Computerwerkstation | N.V. | N.V. | Besturingssysteem: Windows ≥10, Linux of macOS. Minimaal aanbevolen hardware: ≥16 GB RAM, ≥8 CPU-kernen |
| EEGLAB | EEGLAB-ontwikkelaars | N.V. | Optionele MATLAB-gebaseerde toolbox voor EEG-voorverwerking en ERP-analyse |
| FieldTrip | Donders Instituut voor Hersenen, Cognitie en Gedrag, Radboud Universiteit | N.V. | Optionele MATLAB-gebaseerde toolbox voor EEG/MEG-analyse |
| Human Neocortical Neurosolver (HNN-core) | HNN-ontwikkelaars | N.V. | Biofysische neurale modelleringssoftware; versie ≥0.6.0 gebruikt in deze studie |
| MATLAB | MathWorks | N.V. | Vereist om EEGLAB en FieldTrip (indien gebruikt) uit te voeren |
| MNE-Python | MNE-ontwikkelaars | N.V. | Gebruikt voor EEG-voorverwerking en bronlokalisatie |
| NumPy | NumPy-ontwikkelaars | N.V. | Gebruikt voor numerieke berekeningen en willekeurige getallengeneratie |
| Pixi (pakket/omgevingsbeheerder) | Prefix.dev | N.V. | Gebruikt voor het beheren van afhankelijkheden in het bijbehorende code-repository |
| PyTorch | PyTorch-ontwikkelaars | N.V. | Gebruikt voor het trainen van SBI-neurale netwerken en het instellen van willekeurige zaden |
| SBI (Simulation-Based Inference)-pakket | SBI-ontwikkelaars | N.V. | Python-pakket voor parameterinferentie en onzekerheidsquantificering |
| Windows Subsystem for Linux (WSL2) | Microsoft Corporation | N.V. | Alleen vereist voor Windows-gebaseerde installaties |
Referenties
- Gribkoff VK, Kaczmarek LK. The need for new approaches in CNS drug discovery: Why drugs have failed, and what can be done to improve outcomes. Neuropharmacology. 2017;120:11-19.
- Loo SK, Lenartowicz A, Makeig S. Research review: Use of EEG biomarkers in child psychiatry research—current state and future directions. J Child Psychol Psychiatry. 2016;57(1):4-17.
- McLoughlin G, Makeig S, Tsuang MT. In search of biomarkers in psychiatry: EEG-based measures of brain function. Am J Med Genet B Neuropsychiatr Genet. 2014;165(2):111-121.
- Douglas RJ, Martin KAC. Neuronal circuits of the neocortex. Annu Rev Neurosci. 2004;27:419-451.
- Harris KD, Shepherd GMG. The neocortical circuit: themes and variations. Nat Neurosci. 2015;18(2):170-181.
- Murakami S, Okada Y. Contributions of principal neocortical neurons to magnetoencephalography and electroencephalography signals. J Physiol. 2006;575(3):925-936.
- Sherman MA, et al. Neural mechanisms of transient neocortical beta rhythms: Converging evidence from humans, computational modeling, monkeys, and mice. Proc Natl Acad Sci U S A. 2016;113(33):E4885-E4894.
- Shin H, et al. The rate of transient beta frequency events predicts behavior across tasks and species. eLife. 2017;6:e29086.
- De Pieri M, et al. Pharmaco-EEG of antipsychotic treatment response: A systematic review. Schizophrenia. 2023;9(1):85.
- Hyun J, Baik M, Kang U. Effects of psychotropic drugs on quantitative EEG among patients with schizophrenia-spectrum disorders. Clin Psychopharmacol Neurosci. 2011;9(2):78-85.
- Jobert M, et al. Guidelines for the recording and evaluation of pharmaco-EEG data in man: The International Pharmaco-EEG Society (IPEG). Neuropsychobiology. 2012;66(4):201-220.
- Mandema JW, Danhof M. Electroencephalogram effect measures and relationships between pharmacokinetics and pharmacodynamics of centrally acting drugs. Clin Pharmacokinet. 1992;23:191-215.
- Leiser SC, Dunlop J, Bowlby MR, Devilbiss DM. Aligning strategies for using EEG as a surrogate biomarker: A review of preclinical and clinical research. Biochem Pharmacol. 2011;81(12):1408-1421.
- Wilson FJ, Danjou P. Early decision-making in drug development: The potential role of pharmaco-EEG and pharmaco-sleep. Neuropsychobiology. 2016;72(3-4):188-194.
- Klumpp H, Shankman SA. Using event-related potentials and startle to evaluate time course in anxiety and depression. Biol Psychiatry Cogn Neurosci Neuroimaging. 2018;3(1):10-18.
- Proudfit GH, et al. Depression and event-related potentials: Emotional disengagement and reward insensitivity. Curr Opin Psychol. 2015;4:110-113.
- Luck SJ, et al. A roadmap for the development and validation of event-related potential biomarkers in schizophrenia research. Biol Psychiatry. 2011;70(1):28-34.
- Salisbury DF, Collins KC, McCarley RW. Reductions in the N1 and P2 auditory event-related potentials in first-hospitalized and chronic schizophrenia. Schizophr Bull. 2010;36(5):991-1000.
- Kang E, et al. Atypicality of the N170 event-related potential in autism spectrum disorder: A meta-analysis. Biol Psychiatry Cogn Neurosci Neuroimaging. 2018;3(8):657-666.
- Modi ME, Sahin M. Translational use of event-related potentials to assess circuit integrity in ASD. Nat Rev Neurol. 2017;13(3):160-170.
- Horvath A, et al. EEG and ERP biomarkers of Alzheimer’s disease: A critical review. Front Biosci (Landmark Ed). 2018;23:183-220.
- Malver LP, et al. Electroencephalography and analgesics. Br J Clin Pharmacol. 2014;77(1):72-95.
- Preskorn SH, et al. Normalizing effects of EVP-6124 on event-related potentials and cognition: A randomized trial in schizophrenia. J Psychiatr Pract. 2014;20(1):12-24.
- Schwertner A, et al. Effects of subanesthetic ketamine on visual and auditory event-related potentials in humans: A systematic review. Front Behav Neurosci. 2018;12:70.
- Visser S, et al. Dose-dependent EEG effects of zolpidem provide evidence for GABAA receptor subtype selectivity in vivo. J Pharmacol Exp Ther. 2003;304(3):1251-1257.
- Okoroafor F, et al. Neurophysiologic biomarkers of invasive neuromodulation therapy for epilepsy. Neuromodulation: Technol Neural Interface. 2026;29(3):360-375.
- Maki-Marttunen T, et al. Biophysical psychiatry—how computational neuroscience can help understand the complex mechanisms of mental disorders. Front Psychiatry. 2019;10:534.
- Murray JD, Demirtas M, Anticevic A. Biophysical modeling of large-scale brain dynamics and applications for computational psychiatry. Biol Psychiatry Cogn Neurosci Neuroimaging. 2018;3(9):777-787.
- Cagney DN, et al. The FDA NIH biomarkers, endpoints, and other tools (BEST) resource in neuro-oncology. Neuro Oncol. 2018;20(9):1162-1172.
- Cecchi M, et al. Validation of a suite of ERP and QEEG biomarkers in schizophrenia. Schizophr Res. 2023;254:178-189.
- Dura-Bernal S, et al. NetPyNE, a tool for data-driven multiscale modeling of brain circuits. eLife. 2019;8:e44494.
- Linden H, et al. LFPy: a tool for biophysical simulation of extracellular potentials. Front Neuroinform. 2014;7:41.
- Neymotin SA, et al. Human Neocortical Neurosolver (HNN), a new software tool for interpreting MEG/EEG data. eLife. 2020;9:e51214.
- Sanz Leon P, et al. The Virtual Brain: a simulator of primate brain network dynamics. Front Neuroinform. 2013;7:10.
- Hamalainen M, et al. Magnetoencephalography—theory, instrumentation, and applications. Rev Mod Phys. 1993;65(2):413-497.
- Ikeda H, Wang Y, Okada YC. Origins of the somatic N20 and high-frequency oscillations evoked by trigeminal stimulation in the piglets. Clin Neurophysiol. 2005;116(4):827-841.
- Okada YC, Wu J, Kyuhou S. Genesis of MEG signals in CNS structure. Electroencephalogr Clin Neurophysiol. 1997;103(4):474-485.
- Bush PC, Sejnowski TJ. Reduced compartmental models of pyramidal cells. J Neurosci Methods. 1993;46(2):159-166.
- Jones SR, et al. Neural correlates of tactile detection. J Neurosci. 2007;27(40):10751-10764.
- Jones SR, et al. Quantitative analysis of MEG mu rhythm. J Neurophysiol. 2009;102(6):3554-3572.
- Law RG, et al. Thalamocortical mechanisms regulating beta events. Cereb Cortex. 2022;32(4):668-688.
- Fernandez Pujol C, Blundon EG, Dykstra AR. Laminar specificity of the auditory perceptual awareness negativity: A biophysical modeling study. PLoS Comput Biol. 2023;19(6):e1011003.
- Kohl C, Parviainen T, Jones SR. Neural mechanisms underlying auditory evoked responses. Brain Topogr. 2022;35(1):19-35.
- Lankinen K, Ahveninen J, Jas M, Raij T, Ahlfors SP. Neuronal modeling of cross-sensory visual evoked magnetoencephalography responses in the auditory cortex. J Neurosci. 2024;44(17):e1119232024.
- Kaplan L, et al. Modeling cortical dynamics using HNN [poster presentation]. Presented at: Society for Neuroscience Annual Meeting; San Diego, CA, USA; 2025.
- Diesburg DA, Wessel JR, Jones SR. Biophysical modeling of ERP generation. J Neurosci. 2024;44(20).
- Bonaiuto JJ, et al. Laminar dynamics of beta bursts. Neuroimage. 2021;242:118479.
- Ferrante M, Blackwell KT, Migliore M, Ascoli GA. Computational models of neuronal biophysics. Curr Med Chem. 2008;15(24):2456-2471.
- Geerts H, et al. Quantitative systems pharmacology for neuroscience drug discovery. CPT Pharmacometrics Syst Pharmacol. 2020;9(1):5-20.
- Geerts H, et al. Computational neuroscience and systems pharmacology. J Pharmacokinet Pharmacodyn. 2024;51(5):563-573.
- Kappenman ES, Luck SJ. ERP components: brainwave recordings. Oxford Handbook ERP Components. 2012;1:3-30.
- Goncalves PJ, et al. Training neural density estimators. eLife. 2020;9:e56261.
- Papamakarios G, et al. Normalizing flows for probabilistic modeling. J Mach Learn Res. 2021;22(57):1-64.
- Pastore M, Calcagni A. Measuring distribution similarities. Front Psychol. 2019;10.
- Tolley N, et al. Estimating parameters in neural models with SBI. PLoS Comput Biol. 2024;20(2):e1011108.
- Gramfort A, et al. MEG and EEG analysis with MNE-Python. Front Neuroinform. 2013;7:267.
- Sliva DD, et al. Transcranial stimulation and EEG perception. Front Psychol. 2018;9:2117.
- Thorpe RV, et al. Distinct neocortical mechanisms underlie human SI responses to median nerve and laser evoked peripheral activation. bioRxiv. 2021; Available at: https://doi.org/10.1101/2021.10.11.463545.
- Delorme A, Makeig S. EEGLAB toolbox. J Neurosci Methods. 2004;134(1):9-21.
- Oostenveld R, et al. FieldTrip software. Comput Intell Neurosci. 2011;2011:156869.
- Puce A, Hämäläinen MS. A review of issues related to data acquisition and analysis in EEG/MEG studies. Brain Sci. 2017;7(6):58.
- Tejero-Cantero A, et al. sbi: toolkit for simulation-based inference. J Open Source Softw. 2020;5(52):2505.
- Lee S, Jones SR. Distinguishing mechanisms of gamma frequency oscillations in human current source signals using a computational model of a laminar neocortical network. Front Hum Neurosci. 2013;7:869.
- Szul MJ, et al. Beta burst waveform motifs. Prog Neurobiol. 2023;228:102490.
- Hashemi M, et al. Bayesian virtual epileptic patient. Neuroimage. 2020;217:116839.
- Billeh YN, et al. Systematic integration of structural and functional data into multi-scale models of mouse primary visual cortex. Neuron. 2020;106(3):388-403.
- Borges FS, Moreira JV, Takarabe LM, Lytton WW, Dura-Bernal S. Large-scale biophysically detailed model of somatosensory thalamocortical circuits in NetPyNE. Front Neuroinform. 2022;16:884245.
- Markram H, et al. Reconstruction of neocortical microcircuitry. Cell. 2015;163(2):456-492.
- Hagen E, Næss S, Ness TV, Einevoll GT. Multimodal modeling of neural network activity: computing LFP, ECoG, EEG, and MEG signals with LFPy 2.0. Front Neuroinform. 2018;12:92.
- Geerts H. Of mice and men in CNS drug discovery. CNS Drugs. 2009;23(11):915-926.
- Nestler EJ, Hyman SE. Animal models of neuropsychiatric disorders. Nat Neurosci. 2010;13(10):1161-1169.
Herprints en machtigingen
