Dit protocol stelt een dynamisch long-op-een-chip co-kweeksysteem vast dat menselijke primaire luchtwegepitelcellen en pulmonale microvasculaire endotheelcellen combineert voor twee modellen: gezond en COPD-model. Het systeem reproduceert luchtweg-vasculaire interacties onder lucht-vloeistofinterface en stroming, en biedt barrièrebeoordeling, celfenotypering en RNA-analyse.
Methodenartikel
Het opzetten van een epitheel-endotheliale co-cultuur long-op-een chip voor onderzoek bij gezonde en COPD-aandoeningen
In dit artikel
Samenvatting
Samenvatting
Twee dynamische long-op-een-chip co-cultuurmodellen werden ontwikkeld om de luchtweg-vaatinterface te recreëren door primaire luchtwegepitelcellen en pulmonale microvasculaire endotheelcellen te integreren. Het ene model gebruikt commercieel verkrijgbare cellen van gezonde donoren, terwijl het andere cellen gebruikt afkomstig van patiënten met chronische obstructieve longziekte (COPD), waardoor een directe vergelijking van gezonde en zieke aandoeningen onder identieke kweekomstandigheden mogelijk is. Beide modellen ondersteunen epitheliale differentiatie onder continue perfusie en lucht-vloeistofinterface (ALI) condities, wat resulteert in een fysiologisch relevante epitheliale barrière ondersteund door een onderliggende endotheellaag. De workflow omvat extracellulaire matrixcoating, celzaaien, ALI-vestiging, beoordeling van barrièrefuncties, celfenotypering en celtype-specifieke RNA-extractie. Permeabiliteitsassays toonden robuuste barrièreintegriteit in beide systemen, terwijl immunofluorescentie continue lokalisatie bevestigde van Zonula Occludens-1 (ZO-1) en vasculaire endotheliale cadherine (VE-cadherine) bij celverbindingen. Epitheliale differentiatie werd bevestigd door β-tubuline IV-kleuring en visualisatie van ciliaire slagen. Hoogwaardige RNA werd afzonderlijk verkregen uit elk compartiment, ter ondersteuning van celtype-specifieke moleculaire analyses. Het COPD-model herhaalde belangrijke kenmerken van de ziekte, met name een verhoogde slijmproductie, zonder de barrièrefunctie of cellevensvatbaarheid aan te tasten. Het gebruik van door patiënten afgeleide epitheel- en endotheelcellen behoudt individuele pathologische kenmerken, waardoor het onderzoek naar intercellulaire mechanismen bij COPD mogelijk wordt. Deze benadering biedt een fysiologisch relevant alternatief voor statische in vitro- en diermodellen en ondersteunt preklinische studies naar ingeademde geneesmiddelen, blootstelling aan ziekteverwekkers en epitheel-endotheliale interacties. Belangrijk is dat de gezonde en COPD-long-op-een-chip-modellen zowel in combinatie kunnen worden gebruikt voor directe vergelijkende studies als onafhankelijk voor mechanistisch onderzoek, therapeutisch testen en geneesmiddelenontwikkeling. Het systeem kan ook worden aangepast aan andere ademhalingsaandoeningen waarbij de epitheel- of endotheelcompartimenten zijn aangepast, waardoor het een veelzijdig en translationeel platform biedt voor respiratuuronderzoek.
Inleiding
De interactie tussen luchtwegepitelcellen en pulmonale microvasculaire endotheelcellen is essentieel voor het handhaven van de longhomeostase en het coördineren van reacties op letsel, infectie en ontsteking. Samen vormen deze celtypen een functionele barrière die gasuitwisseling, immuunbewaking en vasculaire permeabiliteit reguleert. Hun dynamische crosstalk omvat paracriene signalering, directe cel-celinteracties en reacties op mechanische prikkels, die allemaal cruciaal zijn voor longfunctie en structurele integriteit1.
Bij chronische obstructieve longziekte (COPD), een progressieve longaandoening die wordt gekenmerkt door chronische ontsteking, herstructurering van de luchtwegen en de vernietiging van de alveolair-capillaire interface, is de barrièrefunctie van zowel het luchtwegepitiheel als het pulmonale vasculaire endotheel aangetast en gaat deze gepaard met abnormale cytokineafgifte en ontregelde weefselherstelmechanismen 2,3. De wisselwerking tussen luchtwegepitelcellen en pulmonale microvasculaire endotheelcellen is echter nog slecht begrepen. Deze beperking is deels te wijten aan de tekortkomingen van bestaande in vitro- en in vivo-modellen. Hoewel diermodellen belangrijke inzichten hebben gegeven in de ademhalingsfysiologie en pathologie, wordt hun relevantie beperkt door verschillen tussen soorten in immuunfunctie, longarchitectuur, cellulaire signalering en medicijnmetabolisme, wat de vertaling naar de menselijke biologie kan belemmeren.
Conventionele in vitro systemen, zoals tweedimensionale (2D) culturen van geïmmortaliseerde luchtwegepitelcellijnen, slagen er niet in belangrijke kenmerken van het luchtwegepitiheel te replicituleren, waaronder juiste differentiatie en biomechanische respons. Hoewel driedimensionale (3D) lucht-vloeistofinterface (ALI) monoculturen van primaire luchtwegepitelcellen de fysiologische relevantie vergroten, blijven ze statisch en missen ze interacties met andere celtypen en mechanische prikkels4. De long is een dynamisch orgaan dat continu wordt blootgesteld aan luchtstroom, schuifspanning, stijfheid van de extracellulaire matrix en cyclische rek die door ademhaling wordt gegenereerd. Deze factoren beïnvloeden het cellulaire gedrag en weefselremodelleringsterk 5. Daarom zijn statische modellen onvoldoende om processen zoals leukocytadhesie, immuunceltransport en realtime reacties op geneesmiddelblootstelling te repliceren.
Om deze beperkingen aan te pakken, zijn orgaan-op-een-chip-platforms ontstaan als geavanceerde systemen voor het modelleren van complexe cellulaire interacties. Long-on-a-chip-modellen integreren microfluïdische technologie met mensgemaakte cellen om belangrijke structurele en mechanische kenmerken van de longmicro-omgeving te repliceren. Deze platforms maken co-cultuur mogelijk van luchtwegepitel- en pulmonale vaatcellen binnen een dynamische, driedimensionale omgeving die in vivo condities nauwer nabootst6. De integratie van fysiologische ademhalingsbewegingen, vloeistofstroom en realtime monitoring verbetert de studie van epitheel–endotheliale communicatie onder zowel normale als zieke omstandigheden7–9.
Ondanks deze vooruitgang vertrouwen de meeste bestaande long-on-a-chip-systemen op cellen afkomstig van gezonde donoren,waardoor hun vermogen om ziekte-specifieke interacties te modelleren beperkt wordt. Daarnaast missen veel platforms de flexibiliteit om patiëntafgeleide cellen te integreren of om de complexe COPD-microomgeving te recreëren. Bovendien blijven gedetailleerde protocollen voor co-kweek van primaire luchtwegepitel- en pulmonale microvasculaire endotheelcellen—hetzij afkomstig van commerciële bronnen, hetzij van COPD-patiënten—met celtype-specifieke extracellulaire matrix (ECM)-coatings beperkt.
In deze studie werd een commercieel beschikbaar tweekanaals microfluïdisch long-op-een-chipplatform gebruikt om twee co-kweekmodellen op te zetten bestaande uit primaire luchtwegepitelcellen en pulmonale microvasculaire endotheelcellen. Een gezond model werd ontwikkeld met commercieel verkrijgbare cellen afkomstig van verschillende donoren, terwijl een COPD-model werd ontwikkeld met behulp van luchtwegepitel- en endotheelcellen afkomstig van dezelfde patiënt. Beide modellen maken gebruik van een celtype-specifieke ECM-coating om de in vivo longmicro-omgeving beter na te bootsen. Deze systemen maken het mogelijk om epitheel-endotheliale interacties te onderzoeken onder fysiologische en pathologische omstandigheden. De gezonde en COPD-modellen kunnen worden gebruikt in combinatie voor directe vergelijkende studies of onafhankelijk voor mechanistische onderzoeken en therapeutische tests.
Dit co-kweeksysteem weerspiegelt de anatomische organisatie van het luchtwegepitiheel en de longvaat, die functioneren als een geïntegreerde epitheel–endotheeleenheid. Het luchtwegepitel is een pseudogestratificeerde laag bestaande uit basale, secretorische en trilhaarcellen, gelegen boven een vasculariste bindweefsellaag (lamina propria) en gescheiden van het endoheel door een basalmembraan. In dit model benadert de ECM-coating (collageen type I, fibronectine en laminine) de samenstelling van epitheel- en endotheelbasale membranen. Het poreuze membraan dat de twee kanalen scheidt, bootst het subepitheliale bindweefsel na, hoewel het geen vasculaire complexiteit heeft. Meerdere mechanismen dragen bij aan de epitheel-endotheliale communicatie, waaronder paracriene signalering, gecoördineerde regulatie van permeabiliteit, rekrutering van immuuncellen en reacties op mechanische prikkels zoals ademhalingsgeïnduceerde stretch, die de vasculaire weerstand en mechanotransductiepaden beïnvloeden.
Deze methodologische studie beschrijft de stappen die nodig zijn om een volledig gedifferentieerd luchtwegepiteel te vestigen, gekweekt onder lucht-vloeistofinterface (ALI) omstandigheden met een onderliggend pulmonaal microvasculair endotheel. Het systeem maakt kwalitatieve en functionele beoordeling van de barrièreintegriteit mogelijk, waarbij reproduceerbare schijnbare permeabiliteit (Papp) waarden ≤ 1 × 10⁻6 cm/s worden bereikt. Daarnaast worden protocollen aangeboden voor celfenotypering en voor het extraheren en kwantificeren van RNA uit elk compartiment, wat consequent hoogwaardige RNA oplevert (RNA-integriteitsnummer > 7). Deze methode is niet bedoeld voor kwantitatieve mRNA-analyse of gedetailleerde beoordeling van slijmproductie, noch onderzoekt zij de effecten van mechanische rek, hoewel dergelijke toepassingen met dit systeem mogelijk zijn.
Protocol
Al het gebruik van primaire menselijke cellen werd goedgekeurd door de Lokale Ethische Commissie Onderzoek UZ Leuven (S51577/S57114/S70453). Commercieel verkrijgbare primaire menselijke bronchiale epitheelcellen (HBEC) en pulmonale microvasculaire endotheelcellen (HPMEC) werden verkregen van twee niet-rokende donoren (Aanvullende Tabellen 1, 2). Primaire cellen voor het COPD-model werden geïsoleerd uit geëpplanteerd longweefsel van drie COPD-patiënten met een rookvoorgeschiedenis (Aanvullende Tabel 3), volgens een goed gevestigd protocol (ethische goedkeuring S51577) en opgeslagen in de BREATHE-biobank. Zowel HBEC als HPMEC zijn verkregen van dezelfde COPD-patiënt.
Om het gezonde long-op-een-chip-model te vestigen, werden commerciële HBEC en HPMEC gebruikt. Voor het COPD-model werden primaire bronchiale epitheliale en pulmonale microvasculaire endotheelcellen geïsoleerd uit geëxplanteerd longweefsel dat van dezelfde patiënt was verkregen na een longtransplantatie. Het long-op-een-chip systeem dat in deze studie wordt gebruikt, is een microfluïdisch tweekanaalsplatform bestaande uit parallelle luchtweg- (boven) en vaat- (onder) microkanalen, gescheiden door een poreus, extracellulair matrix-gecoat membraan (Figuur 1). Hetzelfde protocol werd gebruikt om zowel gezonde als COPD-modellen te bouwen. De chemicaliën, reagentia en kits die in het protocol worden gebruikt, staan vermeld in de Materiaallijst.
1. Vestiging van long-op-een-chip co-cultuurmodellen onder laminaire stroming
- Chipvoorbereiding
- Plaats de chiphouder in een 120 mm vierkante celkweekschaal, met de hoeken naar boven gericht, om de juiste oriëntatie te waarborgen, en plaats vervolgens de chips in de houder. Zorg ervoor dat alle chips correct worden geplaatst vóór de activatiestap (Figuur 2).
- Bereid de activatieoplossing voor door het activeringsreagenspoeder op te lossen in de bijbehorende buffer, beide geleverd door de fabrikant, om een uiteindelijke concentratie van 0,5 mg/mL te verkrijgen.
- Activeer de binnenoppervlakken van de chipkanalen om extracellulaire matrix (ECM) hechting te bevorderen door voorzichtig ongeveer 35 μL van de activatieoplossing via de inlaat van het onderste kanaal in te voeren. Pipette totdat de oplossing begint uit de uitlaat van het onderste kanaal te komen. Herhaal de procedure door ongeveer 50 μL van de oplossing in de inlaat van het bovenste kanaal te brengen.
OPMERKING: Het activatiereagenspoeder is lichtgevoelig. Bereid de activatieoplossing direct voor gebruik voor en gooi de resterende oplossing 1 uur na de reconstitutie weg. - Verwijder alle overtollige activatieoplossing van het oppervlak van de chip door voorzichtige aspiratie. Zorg ervoor dat je alleen de activatieoplossing van het chipoppervlak verwijdert — aspireer deze niet uit de kanalen.
OPMERKING: Inspecteer de kanalen onder een microscoop om bellen te detecteren voordat ultraviolet (UV) wordt geactiveerd. Als er een aanwezig is, verwijder ze dan door ze voorzichtig te wassen met een activatieoplossing totdat alle belletjes zijn verwijderd. - Blootstel de chips 10 minuten aan een UV-lamp en was daarna elk kanaal twee keer met 200 μL van de bijbehorende buffer.
- Pipetteer verse activatieoplossing in beide kanalen zoals hierboven beschreven en stel de chips nog eens 5 minuten bloot aan UV.
- Aspirateer de oplossing volledig uit beide kanalen, was elk kanaal twee keer met 200 μL van de bijbehorende buffer, en was vervolgens elk kanaal één keer met 200 μL steriele koude fosfaatgevulde zoutoplossing zonder Ca2⁺ en Mg2⁺ (DPBS -/-).
- Bereid een ECM-coatingoplossing voor in DPBS (-/-) met humaan collageen type I (100 μg/mL), humaan fibronectine (50 μg/mL) en humaan laminine (50 μg/mL). Gebruik 100 μL oplossing als referentievolume per chip.
- Voeg 50 μL toe aan het bovenste kanaal en 35 μL aan het onderste kanaal, terwijl tegelijkertijd de uitstroom via de uitlaatpoorten wordt aspireerd.
OPMERKING: Inspecteer de kanalen onder een microscoop om eventuele bellen te detecteren. Als het aanwezig is, was je voorzichtig met de ECM-oplossing om ze te verwijderen. - Laat kleine druppels ECM-oplossing achter op zowel kanaalinlaat- als uitlaatpoorten om verdamping tijdens nachtelijke (ON) incubatie te voorkomen.
- Incubeer de chips ON bij 37 °C met 5% CO₂. De volgende dag aspireer je de ECM-oplossing en was je beide kanalen met 200 μL voorverwarmde DPBS (-/-) bij 37 °C.
- Celzaaiing en ondergedompelde cultuur
Zet HBEC uit in T25 cm 2-kolven bedekt met humaan collageen type IV (150 μg/mL in DPBS (-/-)) met behulp van het luchtwegepitelcelexpansiemedium tot 60%–70% confluentie is bereikt.
Parallel doe je HPMEC uit in T75 cm2 kolven bedekt met gelatine (2 mg/mL in DPBS (-/-)) met behulp van endotheliale cel (EC) groeimedium totdat 90%–100% confluentie is bereikt.
Raadpleeg aanvullende tabel 4 voor de samenstelling van de belangrijkste reagentia en cultuurmedia. - Inzaaien van HPMEC
- Aspireer het medium. Was cellen met 10 mL DPBS (-/-).
- Voeg 3 ml 0,25% trypsins-EDTA toe (1X). Incubeer 30 seconden op kamertemperatuur (RT).
- Voeg 12 mL EC groeimedium toe (4× het volume van het gebruikte trypsine) om trypsine te inactiveren. Voeg 5 mL EC groeimedium toe om eventuele resterende cellen te verzamelen (eindvolume = 20 mL).
- Bevestig volledige celloslating onder de microscoop.
- Neem ~20 μL om levende cellen te tellen met trypanblauw.
- Centrifugeer de resterende celsuspensie op 900 × g gedurende 5 minuten bij RT in een 50 mL kegelvormige buis.
- Sussie de pellet opnieuw in EC-groeimedium. Pas aan op 7 × 10⁶ cellen /mL.
- Zaad HPMEC (passage 5) in het onderste kanaal (~20 μL; 1,4 × 10⁵ cellen/kanaal).
- Keer de chips onmiddellijk om en incubeer 2 uur bij 37 °C met 5% CO₂ (Figuur 3).
- Zet chips terug in de oorspronkelijke oriëntatie.
- Was met 200 μL warm (37°C) EC groeimedium.
- Controleer de bevestiging onder de microscoop. Verleng de incubatie indien nodig.
- Plaatsing HBEC
- Aspireer het medium. Was met 5 mL warme DPBS (-/-).
- Voeg 1 ml trypsine toe. Incubeer 5 minuten bij 37 °C met 5% CO₂.
- Monitor loskoppeling onder de microscoop.
- Voeg 1 ml gedefinieerde trypsineremmer (DTI) toe in een verhouding van 1:1 om trypsine te inactiveren.
- Voeg 8 mL luchtwegepitheelcel expansiemedium toe (eindvolume = 10 mL).
- Overbreng naar een 50 mL buis.
- Neem ~20 μL voor celtelling met trypan blauw.
- Centrifugeer de resterende celsuspensie op 200 × g gedurende 5 minuten bij RT.
- Gooi het supernatant weg.
- Suspendeer de pellet opnieuw in het luchtwegepitelcel-expansiemedium. Pas aan op 3,5 × 10⁶ cellen /mL.
- Vul het luchtweg-epitheelcelexpansiemedium aan met 50 nM synthetisch, lichtstabiel retinoïnezuur en 10 ng/mL recombinant humaan epidermale groeifactor (rhEGF).
- Zaad HBEC (doorgang 2) naar het bovenste kanaal (~35 μL; 1,2 × 10⁵ cellen/kanaal).
- Incubeer 4 uur bij 37 °C met 5% CO₂ (Figuur 4).
- Vervang het medium in beide kanalen.
- Incubeer 's nachts (ON) onder statische omstandigheden bij 37 °C met 5% CO₂.
OPMERKING: Vanaf deze stap gebruik je voor alle stappen alleen ontgassd medium. Ontgassing moet worden uitgevoerd met een Steriflip-eenheid die is aangesloten op een vacuümsysteem om het risico op bellevorming in de chip te minimaliseren.
- Verbinding met stroming
- Voeg warm (37°C) luchtwegepiteluitzettingsmedium toe, aangevuld met synthetisch, lichtstabiel retinoïnezuur en rhEGF aan het bovenste inlaatreservoir.
- Voeg warm (37°C) EC groeimedium toe aan het onderste inlaatreservoir.
- Vul elk inlaatreservoir met 3 mL medium en elk uitlaatreservoir met 300 μL.
- Plaats de draagbare modules in de cultuurmodule (Figuur 5).
- Druk op de knop om de "Prime"-cyclus te selecteren met de draaiknop.
- Druk op de knop om de cyclus te starten .
- Laat de cyclus doorlopen (~1 min).
- Controleer de onderkant van elke module op druppels bij alle vier de fluidische poorten.
- Herhaal de "Prime"-cyclus als er geen druppels zichtbaar zijn.
- Was beide chipkanalen één keer met het juiste medium.
- Laat een druppel achter op elke inlaat en uitlaatpoort om bellen te voorkomen.
- Houd de chip in de dominante hand en de draagbare module in de andere hand.
- Schuif de chip in de rails totdat hij volledig zit zitten.
- Plaats de samengestelde eenheid in de cultuurmodule.
- Stel de debiet in op 30 μL/u voor beide kanalen met behulp van de draaischijf.
- Handhaven vloeistof–vloeistof interface (LLI) condities.
- Houd chips aan de module onder de vloeistof-vloeistofinterface (LLI) om uniforme vorming van epitheel- en endotheellagen mogelijk te maken
- Vervang medium elke 3 dagen. Aspireer het medium uit uitlaatreservoirs. Voeg 3 ml vers medium toe aan elk inlaatreservoir.
OPMERKING: Let onder de microscoop op bellen. Als aanwezig, koppel dan de chip los, spoel de kanalen met medium en sluit je weer aan.
- Differentiatie van epitheelcellen en luchtvloeistof-interfacecultuur
- Monitor cellen dagelijks onder de microscoop.
- Bevestig de vorming van een homogene epitheelcellaag zonder gaten (meestal 3–5 dagen).
- Stel de lucht-vloeistofinterface (ALI) vast.
- Aspireer medium uit de bovenste inlaat- en uitlaatreservoirs.
- Spoel het restmedium uit het bovenste kanaal door de debiet te verhogen tot 600μL/u met behulp van de draaiknop
- Snel aspiraat medium uit de bovenste uitlaatreservoirs.
- Aspireer medium uit de bodeminlaatreservoirs.
- Voeg 3 mL epitheliale differentiatiemedium toe, aangevuld met 10 ng/mL vasculaire endotheliale groeifactor (VEGF) en 1 μg/mL vitamine C.
- Stel het bovenste kanaal in op "air" met de draaiknop.
- Stel de bodemkanaaldebiet in op 30 μL/h.
- Houd de ALI-cultuur 2 weken in stand.
- Observeer de ontwikkeling van epitheeldifferentiatie onder de microscoop.
- Bevestig de vorming van een pseudogelaagd epitheel. Monitor het slaan van cilia en de productie van slijm.
- Monitor de morfologie van endotheelcellen bij inlaat- en uitlaatgebieden.
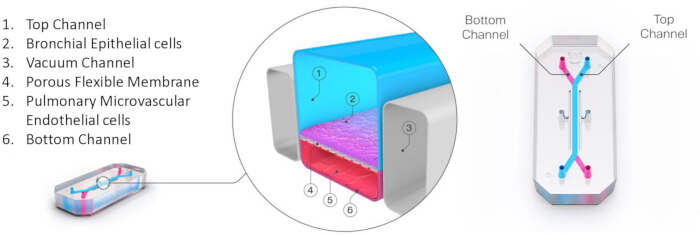
Figuur 1: Microfluïdisch long-op-een-chip platform. Dwarsdoorsnede (links) en bovenaanzicht (rechts) van het tweekanaals microfluïdische long-op-een-chip-apparaat. De schematische illustraties zijn uitsluitend ter illustratieve doeleinden beschikbaar. Klik hier om een grotere versie van deze figuur te bekijken.
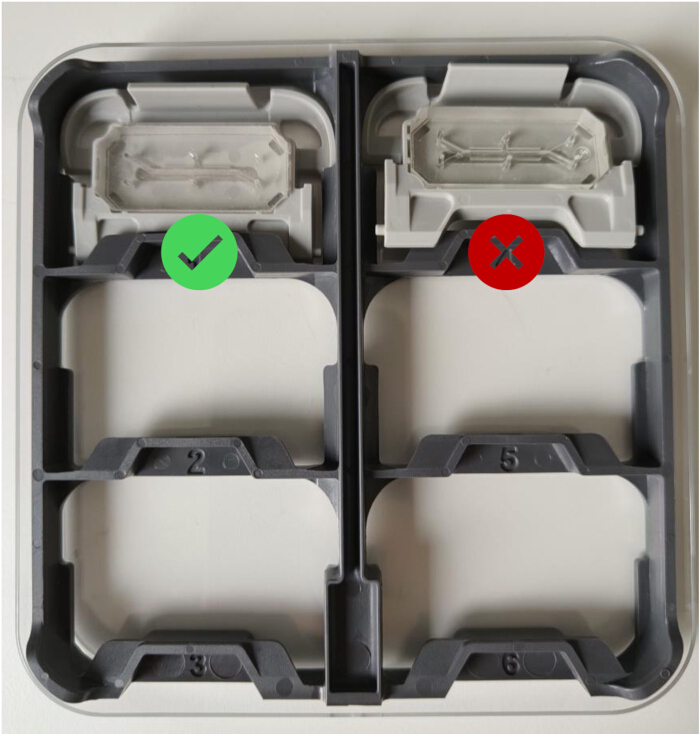
Figuur 2: Positionering van de chip in de chiphouder. Representatieve afbeelding die de juiste oriëntatie van de chiphouder en de plaatsing van de chip toont. Klik hier om een grotere versie van deze figuur te bekijken.
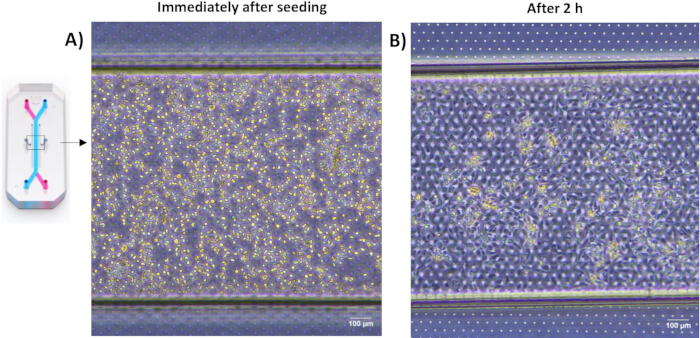
Figuur 3: Endotheelcelzaaiing in de microfluïdische chip. Representatieve brightfield-beelden van pulmonale microvasculaire endotheelcellen direct na het zaaien (A) en na 2 uur incubatie (B). Schaalbalk: 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
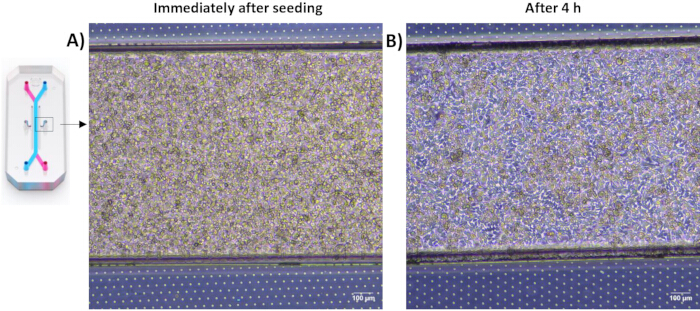
Figuur 4: Zaaien van luchtwegepitelcellen in de microfludiïde chip.
Representatieve brightfield-beelden van luchtwegepitelcellen direct na het zaaien (A) en na 4 uur incubatie (B). Schaalbalk: 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
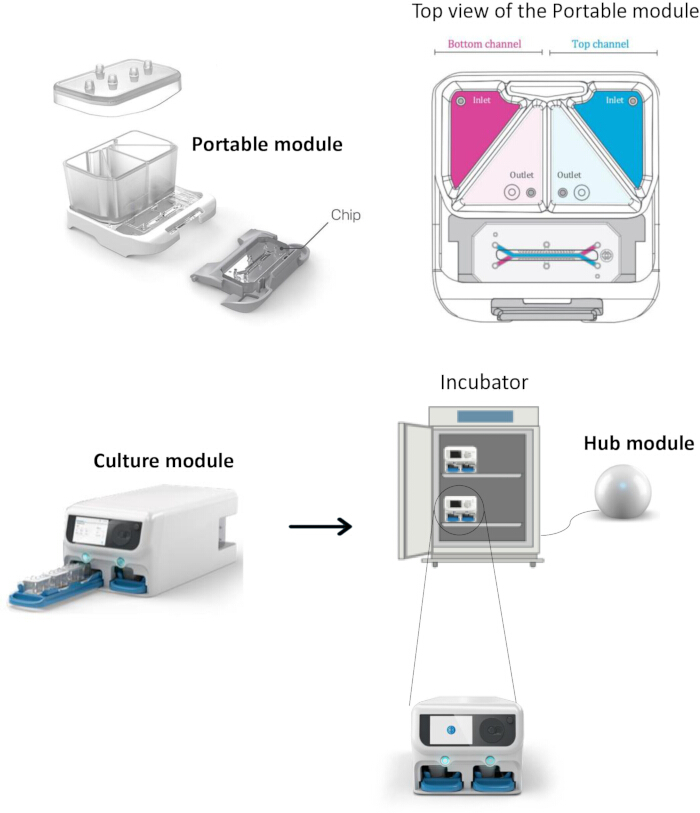
Figuur 5: Configuratie van het microfluidische long-op-een-chipsysteem.
Het bovenste deel van de afbeelding toont de draagbare module met vier reservoirs (twee inlaten en twee uitlaat) die worden gebruikt voor middelmatige toevoer en afvalwaterafzuiging. Het microfluidische apparaat is verbonden met een cultuurmodule die de debiet regelt en met een naafmodule die gas, lucht en stroom levert. De schematische weergave wordt uitsluitend ter illustratie aangeboden. Klik hier om een grotere versie van deze figuur te bekijken.
2. Beoordeling van de integriteit van barrières
De integriteit van barrières werd op twee manieren beoordeeld: ten eerste functioneel door de permeabiliteit van fluorescentief-gelabelde dextran over tijd te evalueren (voor ALI en na 10 dagen ALI), en ten tweede kwalitatief door immunodetectie van Zonula Occludens-1 (ZO-1) in het bronchiale epitieel en Vasculair Endotheliaal-cadherine (VE-cadherine) in het pulmonale vasculaire endotheel.
- Barrièrefunctie
- Voeg onder de laminaire stroming 1 mL epitheliaal differentiatiemedium toe, aangevuld met VEGF en vitamine C en met 100 μg/mL fluorescentief-gelabelde dextran, aan het bovenste inlaatreservoir van het luchtwegkanaal. Voeg tegelijkertijd 1 mL tracervrij medium toe aan het onderste inlaatreservoir van het vaatkanaal.
- Breng het medium met de tracer in het bovenste kanaal. Met de draaiknop stel je de debiet in beide kanalen in op 600 μL/u voor 3 minuten, en aspireer je vervolgens het medium uit zowel de boven- als de onderste uitlaatreservoirs.
- Plaats de chip, verbonden met de draagbare module, terug in de cultuurmodule. Met de draaiknop stel je beide kanalen in op een debiet van 45 μL/h en houd je deze debiet 3 uur aan.
- Verzamel 100 μL medium uit boven- en onderuitlaatreservoirs en meet de fluorescentieintensiteit met een plaatlezer.
- Bereken de schijnbare permeabiliteit (Papp) met behulp van de permeabiliteitsvergelijking:
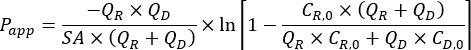
waarbij SA het oppervlak van het co-cultuurkanaal vertegenwoordigt (0,17 cm2), QR en QD de vloeistofstromingsraten in respectievelijk de doserings- en ontvangskanalen aangeven (cm3/s) en CR,0 en CD,0 overeenkomen met de teruggewonnen concentraties in respectievelijk de doseer- en ontvangskanalen.
OPMERKING: Een Papp-waarde onder 1 x 10⁻⁶ cm/s duidt op een sterke barrièreintegriteit, wat de lage permeabiliteit van de epitheellaag naar de tracer weerspiegelt. Deze drempel wordt door de systeemfabrikant vastgesteld als een interne kwaliteitscontrolemaatregel.
- Immunodetectie van tight en adherens junctions
- Na 2 weken ALI verwijder je voorzichtig de chip uit de draagbare module.
- Fix de cellen door 50 μL 4% paraformaldehyde (PFA) aan beide kanalen toe te voegen gedurende 20 minuten bij RT.
VOORZICHTIG: PFA is giftig; Voer alle stappen uit in een gecertificeerde chemische afzuigkap. - Was beide kanalen twee keer met 200 μL DPBS (-/-) en bewaar de chips op 4 °C tot ze kleuren.
- Permeabiliseer de cellen door 50 μL van 0,1% Triton X-100 toe te voegen in DPBS (-/-) gedurende 5 minuten bij RT. Vervolgens blokkeren met 50 μL 0,1% Triton X-100 in DPBS (-/-) met 10% geitenserum, per kanaal gedurende 1 uur bij RT.
- Incubeer het bovenste (bronchiale epitheel) kanaal met 50 μL muis monoklonaal anti-menselijk ZO-1 primair antilichaam (1:100), en het onderste (pulmonale vaat-endotheel) kanaal met 50 μL konijn monoklonaal anti-human VE-cadherine primair antilichaam (1:600).
- Verdun beide antilichamen in antilichaamoplossing (0,1% Triton X-100 in PBS (-/-) met 1% geitenserum) en incubeer ON bij 4°C onder statische omstandigheden.
- Was de chips drie keer met 200 μL DPBS (-/-). Vervolgens incubeer je elk kanaal 1 uur bij RT met 50 μL geschikte fluorofoor-geconjugeerde secundaire antilichamen, verdund in antilichaamoplossing (1:500): geitenanti-muis secundair antilichaam in het bovenkanaal en geitenantikonijn secundair antilichaam in het onderste kanaal.
- Was beide kanalen drie keer met 200 μL DPBS (-/-). Voer nucleaire kleuring uit met 50 μL voor elk kanaal van 4′,6-diamidino-2-fenylindool (DAPI, 1 μg/mL in DPBS (-/-)) gedurende 10 minuten bij RT.
- Voer een laatste wash uit met 200 μL DPBS (-/-) en bewaar de chip in DPBS (-/-) bij 4°C in het donker tot de beeldvorming.
- Maak beeld van de chips op dekfolies (20x60 mm met een dikte van 0,16-0,19 mm) met een omgekeerde fluorescentiemicroscoop uitgerust met een roterende schijfmodule, een hooggevoelige camera en een 20X objectief (NA 0,8). Gebruik geschikte software voor beeldverwerving en analyse voor nabewerking.
3. Fenotypering
- Voorbereiding van spansecties
- Fix de chips met 4% PFA zoals beschreven in sectie 2.2.2.
- Snijd het omliggende polydimethylsiloxaan (PDMS) van de chip weg met een scheermesje.
- Vul beide kanalen met 50 μL 2% laagsmeltende agarose in DPBS (-/-), en laat agarose bij RT stollen.
- Snijd de chip dwars in twee helften met een scheermesje, bed elke helft in een medium met optimale snijtemperatuur (OCT) en bewaar bij −80 °C tot het snijden.
- Cryosectie
- Maak een cryostaat klaar en snijd 200 μm cryosecties uit chiphalven.
- Verzamel chipsecties met een pincet in putten van een plaat met 48 putten gevuld met DPBS (-/-) en bewaar deze bij 4 °C tot immunokleuring.
- Immunofluorescentie kleuring
OPMERKING: Voer elke stap uit in de 48-wellplaat en gebruik 400 μL als referentievolume.- Permeabiliseer de cellen en blokkeer de niet-specifieke binding zoals eerder beschreven in sectie 2.2.4.
- Incubeer elke sectie ON bij 4°C met primaire antilichamen specifiek voor epitheliale ciliatiecellen (β-tubuline IV, 1:2000) of voor endotheelcellen (CD31, 1:25), verdund in antistofoplossing (0,1% Triton X-100 in DPBS met 1% geitenserum).
- Was secties drie keer met DPBS (-/-).
- Incubeer secties gedurende 1 uur bij RT met geschikte fluorofoor-geconjugeerde geitenanti-muis secundaire antilichamen (1:500) voor β-tubuline IV en CD31, verdund in antilichaamoplossing, beschermd tegen licht.
- Was de secties drie keer met DPBS (-/-) en voer nucleaire kleuring uit met DAPI (1 μg/mL in DPBS (-/-)) gedurende 10 minuten bij RT.
- Was secties één keer met DPBS (-/-) voordat je ze monteert.
- Plaats met een pincet één afstandhouder op elke microscoopglaasje en plaats vervolgens een sectie in het midden. Voeg 1–2 druppels montagemedium toe en plaats een ronde deklaag.
- Laat ze in het donker bij RT drogen en sluit dan de randen van de deklaag af met transparante nagellak.
- Bewaar de preparaten op 4°C in het donker tot de beeldvorming.
- Maak beeld van de chipsecties met een omgekeerde fluorescentiemicroscoop, uitgerust met een roterende schijfmodule, een camera met hoge gevoeligheid en een 40X-objectief (NA 1.25). Verwerk beelden met geschikte microscopiesoftware.
4. RNA-extractie en kwantificering
- Verzameling van cellen uit chips onder laminaire stroming
- Na 2 weken ALI-kweek koppel je de chips los van de draagbare modules en was je beide kanalen twee keer met 200 μL DPBS (-/-) voorverwarmd bij 37 °C.
- Voeg 35 μL van 0,25% trypsine-EDTA (1X) toe aan de endotheelcellen in het onderste kanaal en incubeer ongeveer 30 seconden bij RT.
- Inspecteer de cellen onder de microscoop om volledige loskoppeling te bevestigen. Daarna verzamel je de celsuspensatie in een buis en centrifugeer je op 900 × g gedurende 5 minuten bij RT.
- Sussief de celpellet opnieuw in 50 μL fenol-gebaseerd RNA-isolatiereagens en bewaar bij -80 °C tot RNA-extractie.
- Voeg 50 μL fenol-gebaseerd RNA-isolatiereagens direct toe aan het bovenste kanaal om epitheelcellen te lyseren, sluit poorten af met tips en breng 3-4 minuten op ijs.
- Pipetteer voorzichtig om volledige lysis te garanderen, verzamel lysaat in een buis en bewaar het bij -80 °C tot RNA-extractie.
- Inspecteer beide kanalen onder een microscoop om de volledige celverzameling te bevestigen.
- RNA-extractie
- Voeg chloroform toe (0,2 volume per 1 volume fenol-gebaseerd RNA-isolatiereagens dat voor lyse wordt gebruikt; 10 μL per monster), meng de buizen grondig door te schudden en incubeer op ijs gedurende 2-3 minuten.
- Centrifugeer op 12.000 × g gedurende 15 minuten bij 4 °C om fasen te scheiden en de bovenste waterige fase zorgvuldig over te brengen in een nieuwe buis zonder de interfase te verstoren. Voeg vervolgens 5 μg RNA-vrij glycogeen toe aan de waterige fase als drager.
- Voeg isopropanol toe (0,5 volume per 1 volume lysisreagens; 25 μL per monster), incubeer monsters bij 4 °C gedurende 10 minuten, en centrifugeer bij 12.000 × g gedurende 10 minuten bij 4 °C.
- Gooi het supernatant weg terwijl je de RNA-pellet behoudt.
- Wassen en heropsuspensie van RNA
- Was de RNA-pellet met 75% ethanol (1 volume per 1 volume lysereagens; 50 μL per monster), vortex kort en centrifugeer op 7.500 × g gedurende 5 minuten bij 4 °C.
- Gooi het supernatant weg en laat het pelletje 5–10 minuten aan de lucht drogen.
- Suspendeer RNA opnieuw in 30 μL RNase-vrij water door zacht pipetteren en sla RNA op bij -80 °C tot verder gebruik.
- Beoordeel de integriteit en kwantificatie van RNA met behulp van een op microfluidische chip gebaseerde nucleïnezuurscheidingssysteem.
Resultaten
Vaststelling van de long-op-een-chip co-cultuurmodellen
Brightfield-beeldvorming toonde celadhesie en groei in de loop van de tijd aan in het long-op-een-chip co-cultuursysteem. Bronchiale luchtwegepitelcellen vermeerderden in ondergedompelde cultuur op het vloeistof-vloeistof grensvlak (LLI), waarbij een uniforme laag langs het bovenste kanaal ontstond (Figuur 6A), terwijl pulmonale vaatcellen zich uitbreidden om het hele onderste kanaal te bedekken en een confluente monolaag vormden (Figuur 6B).
Zodra de co-kweek was gevestigd, werden endotheelcellen gemonitord bij de inlaat- en uitlaatgebieden van het onderste kanaal, die de enige gebieden zijn die toegankelijk zijn voor microscopisch onderzoek. Zoals getoond in Figuur 7, bleven endotheelcellen levensvatbaar en vertoonden ze een verlengde morfologie die in lijn was met de stromingsrichting. Na 14 dagen ALI-kweek toonde de epitheellaag in zowel gezonde als COPD-modellen zichtbare ciliaire kloppen (aanvullende video). Zoals verwacht vertoonde het COPD-model een duidelijk verhoogde slijmproductie vergeleken met het gezonde model (Figuur 8), waarmee belangrijke kenmerken van de COPD-pathologie werden herhaald.
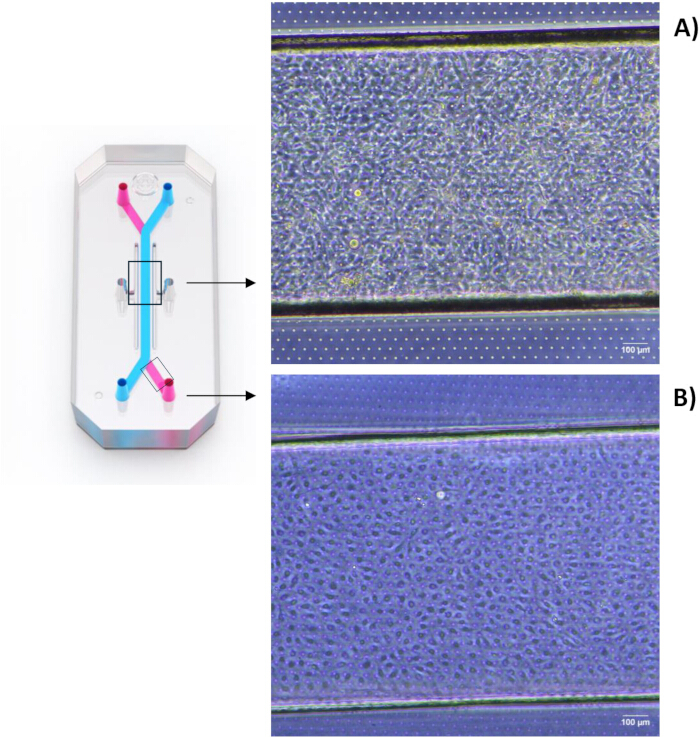
Figuur 6: Co-kweek van luchtwegepitel- en endotheelcellen in het microfluïdisch apparaat.
Representatieve beelden van primaire bronchiale epitheelcellen op het bovenoppervlak (A) en primaire pulmonale microvasculaire endotheelcellen op het onderste oppervlak (B) van het poreuze membraan onder vloeistof-vloeistofinterface (LLI) condities. Schaalbalk: 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
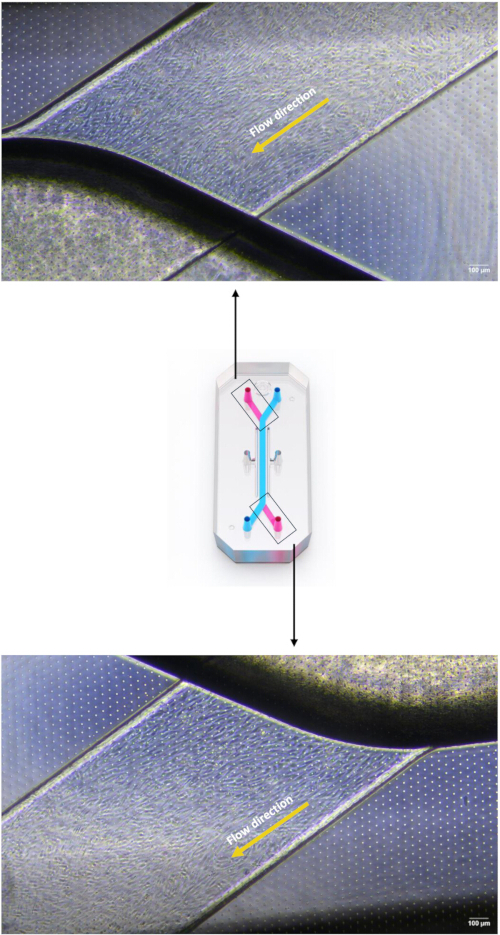
Figuur 7: Endotheelcellen in het onderste microfluïdische kanaal tijdens lucht-vloeistofinterface.
Representatieve brightfield-beelden die pulmonale microvasculaire endotheelcellen tonen bij de inlaat (boven) en uitlaat (onder) van het onderste kanaal tijdens de lucht-vloeistofinterface (ALI). Schaalbalk: 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
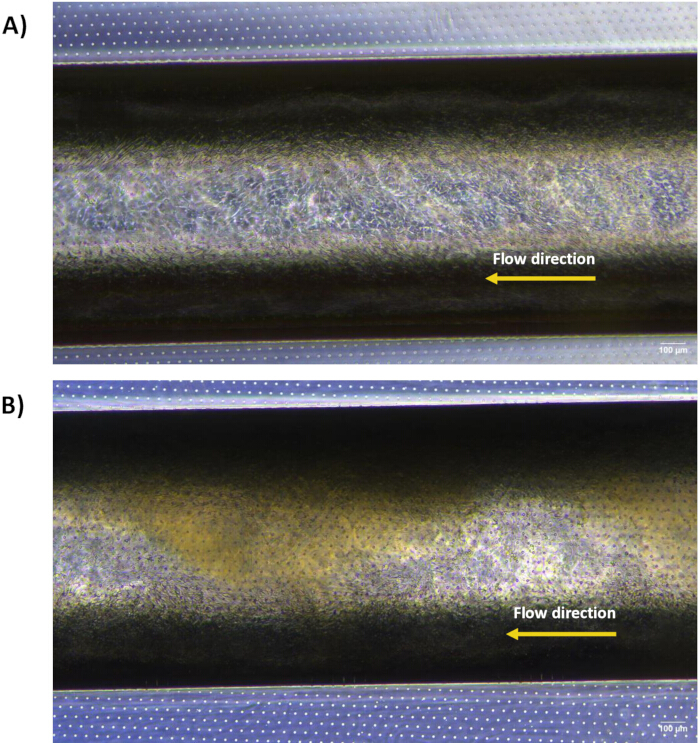
Figuur 8: Slijmophoping in het luchtwegkanaal.
Representatieve beelden die slijmproductie tonen na 14 dagen lucht-vloeistofinterface (ALI) in gezonde (A) en COPD (B) co-cultuurmodellen. De bruine laag in het luchtwegcompartiment vertegenwoordigt opgehoopt slijm. Schaalbalk: 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Kwantitatieve beoordeling van de integriteit van barrières
Functionele beoordeling van barrièreintegriteit toonde een lagere schijnbare permeabiliteit (Papp) aan in zowel gezonde als COPD-modellen vergeleken met de positieve controle (ECM-gecoate chip zonder cellen) (Figuur 9).
Bij afwezigheid van cellen duidden hoge Papp-waarden op minimale vorming van barrières. Daarentegen passeerde de fluorescerende dextrantracer in aanwezigheid van epitheel- en endotheellagen de ECM niet, wat resulteerde in een duidelijk verminderde permeabiliteit en een sterke barrière aanduidde. Dit effect werd zowel vóór als na 10 dagen ALI waargenomen, wat aantoont dat de barrièrefunctie vroeg wordt vastgesteld tijdens differentiatie.
Zoals weergegeven in Figuur 10, lagen in het gezonde model de gemiddelde Papp-waarden vóór ALI al onder de drempel die wijst op robuuste barrièreintegriteit (1 × 10⁻6 cm/s) en daalden ze verder tijdens ALI-kweek. In het COPD-model lagen de gemiddelde Papp-waarden ook binnen het sterke barrièrebereik vóór ALI en, hoewel licht verhoogd na 10 dagen ALI, bleef de barrièreintegriteit robuust.
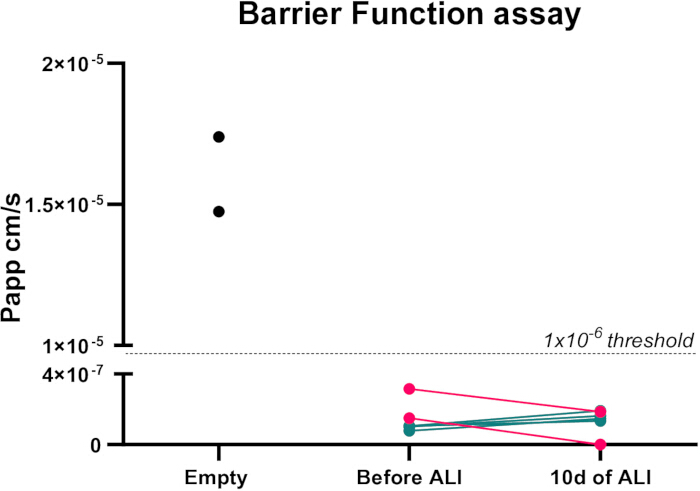
Figuur 9: Beoordeling van barrièrefunctie in het long-op-een-chipmodel.
Schijnbare permeabiliteit (Papp) gemeten in ECM-gecoate chips zonder cellen (positieve controle voor lekkage; zwart), en in gezonde (roze) en COPD (groene) co-cultuurmodellen voor en na 10 dagen van lucht-vloeistofinterface (ALI). Elke stip vertegenwoordigt een individuele chip. Het gezonde model bevat cellen van afzonderlijke donoren, terwijl het COPD-model cellen gebruikt die afkomstig zijn van één enkele patiënt. Klik hier om een grotere versie van deze figuur te bekijken.
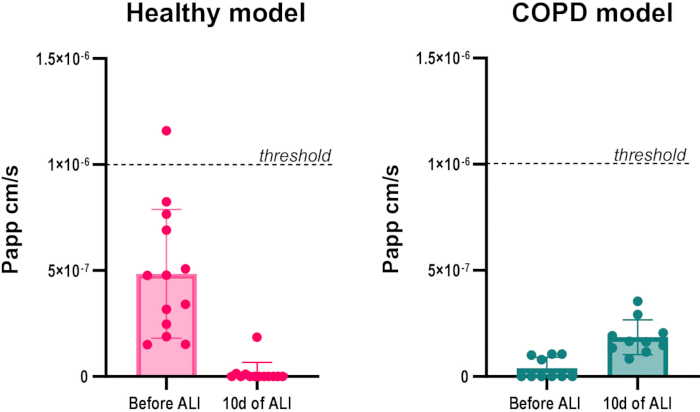
Figuur 10: Vergelijking van barrièrefunctie in gezonde en COPD-modellen.
Schijnbare permeabiliteit (Papp) gemeten voor en na 10 dagen van de lucht-vloeistofinterface (ALI) in gezonde (links) en COPD (rechts) co-cultuurmodellen. Elke stip vertegenwoordigt een individuele chip. Waarden zijn gemiddelde ± SD. Het COPD-model bevat cellen van drie patiënten, terwijl het gezonde model cellen van verschillende donoren combineert. Klik hier om een grotere versie van deze figuur te bekijken.
Immunodetectie van tight en adherens junctions
Immunofluorescentieanalyse bevestigde de structurele organisatie van junctionale eiwitten. ZO-1 vertoonde continue lokalisatie langs de randen van bronchiale epitheelcellen, wat wijst op een intacte epitheliale barrière (Figuur 11A). Evenzo toonde VE-cadherinekleuring een uniforme verdeling bij endotheelverbindingen, consistent met een confluente endotheliale monolaag. Endotheelcellen vertoonden een verlengde morfologie die was afgestemd op de stromingsrichting (Figuur 11B).
Er werden geen verschillen waargenomen tussen de gezonde en COPD-modellen in de lokalisatie van tight en adherens junction-eiwitten. Deze bevindingen zijn consistent met de functionele barrièregegevens en ondersteunen de aanwezigheid van een fysiologisch relevante epitheel–endotheliale interface met behouden junctionale integriteit in beide modellen.
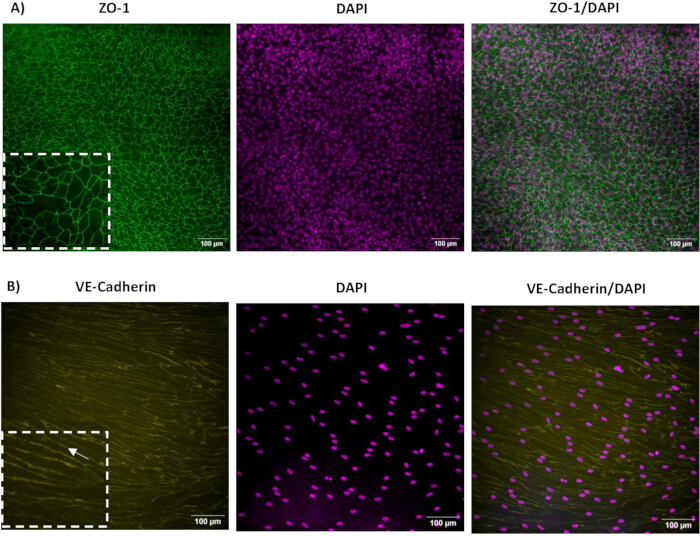
Figuur 11: Junctionale eiwitexpressie in het long-op-een-chip co-cultuurmodel.
Van bovenaf immunofluorescentiebeelden verkregen na 14 dagen lucht-vloeistofinterface (ALI) tonen ZO-1 lokalisatie in het luchtwegepitheelcompartiment (A) en VE-cadherine lokalisatie in het endotheelcompartiment (B). De kernen zijn gekleurd met DAPI. De pijl geeft de stromingsrichting aan. Schaalbalk: 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Fenotypering
Immunofluorescentie kleuring van chipcryosecties toonde β-tubuline IV-positieve cellen aan de apicale zijde van het membraan, wat wijst op differentiatie van luchtwegepitelcellen in trilhaarcellen, een bepalend kenmerk van rijp bronchieel epitheel (Figuur 12A). CD31-kleuring bevestigde de aanwezigheid van een confluente endotheliale monolaag langs de basale zijde van het membraan (Figuur 12B). Deze resultaten tonen aan dat het co-kweeksysteem de vaststelling van fysiologisch relevante epitheliale en endotheliale fenotypes in beide modellen ondersteunt.
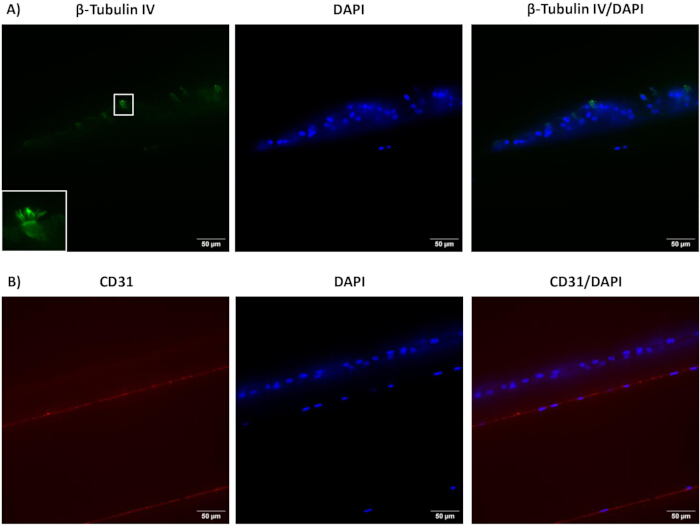
Figuur 12: Immunofluorescentiebeelden van long-op-een-chip dwarsdoorsneden. Representatieve immunofluorescentie kleuring van chipdoorsneden na 14 dagen lucht-vloeistofinterface (ALI) toont β-tubuline IV-expressie in het luchtwegepitheelcompartiment (A) en CD31-expressie in het endotheelcompartiment (B). De kernen zijn gekleurd met DAPI. Schaalbalk: 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
RNA-extractie en kwantificering
RNA geïsoleerd uit luchtwegepitelcellen leverde concentraties op van 59 tot 135 ng/μL, met RNA Integrity Numbers (RIN)11 van 7,4–9,6, terwijl RNA van microvasculaire endotheelcellen varieerde van 12 tot 46 ng/μL, met RIN-waarden van 9,6–10, in beide modellen. Gegevens gaven aan dat beide modellen voldoende hoeveelheden hoogwaardige RNA bereikten, geschikt voor downstream moleculaire analyses.
Aanvullende tabel 1: Donateurinformatie voor de bronchiale luchtwegepitheelcellen. De tabel geeft bronchiale luchtwegepitelcellen weer die in het gezonde model worden gebruikt. Klik hier om dit bestand te downloaden.
Aanvullende tabel 2: Donateurinformatie voor de pulmonale microvasculaire endotheelcellen. Donateurinformatie voor pulmonale microvasculaire endotheelcellen gebruikt in het gezonde model. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 3: Patiëntinformatie. De tabel geeft informatie weer voor luchtwegepiteliale en pulmonale microvasculaire endotheelcellen die in het COPD-model worden gebruikt. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 4: Overzicht van de belangrijkste reagentia en kweekmedia die in het protocol worden gebruikt.Klik hier om dit bestand te downloaden.
Aanvullende video 1: Ciliair slaan in het luchtwegkanaal (gezond model).
Representatieve video die ciliaire kloppen toont na 14 dagen lucht-vloeistofinterface (ALI). Klik hier om dit bestand te downloaden.
Aanvullende video 2: Ciliaire bestraffing in het luchtwegkanaal (COPD-model).
Representatieve video die ciliaire kloppen toont na 14 dagen lucht-vloeistofinterface (ALI). Klik hier om dit bestand te downloaden.
Discussie
Deze studie presenteert een gedetailleerd protocol voor het opzetten van een long-op-een-chip co-cultuursysteem om zowel een gezond model te genereren, met commercieel beschikbare bronchiale epitheliale en pulmonale microvasculaire endotheelcellen, als een COPD-model met patiëntafgeleide cellen uit geëplieerde longen. In beide modellen worden de twee celtypen gescheiden door een poreus, rekbaar membraan bedekt met celtype-specifieke extracellulaire matrix (ECM), waardoor een microomgeving ontstaat die meer lijkt op de in vivo long. Het protocol omvat ook methoden voor het beoordelen van de integriteit van barrières, celfenotypering en RNA-extractie uit elk compartiment. Beide modellen werden succesvol onderhouden onder dynamische perfusie en lucht–vloeistofinterface (ALI) condities, wat resulteerde in een fysiologisch relevante epitheel–endotheliale barrière met een volledig gedifferentieerd pseudogestratificeerd luchtwegepitheel. Endotheelcellen waren uitgelijnd met de stroomrichting, zoals in vivo waargenomen, en hoogwaardige RNA werden uit beide compartimenten verkregen.
Verschillende cruciale stappen zijn essentieel om dit co-cultuursysteem succesvol op te zetten. Nauwkeurige zaaiing van epitheelcellen is vereist om een uniforme dekking te bereiken, aangezien een niet-uniforme verspreiding kan leiden tot onvolledige oppervlaktebedekking en een verzwakte vorming van barrières. In zulke gevallen moet het apicale compartiment voorzichtig worden geaspireerd en epitheelcellen opnieuw worden gezaaid. De vestiging van ALI moet pas worden uitgevoerd wanneer zowel de epitheel- als de endotheellagen continue monolagen vormen, aangezien voortijdige blootstelling aan ALIs kan leiden tot lekkage van vaatmedium in het luchtwegcompartiment en een belemmerde differentiatie. Als confluency niet wordt bereikt, moet de oprichting van de ALI worden uitgesteld.
Onvolledige verwijdering van het apicale medium of inconsistente blootstelling aan ALIs kan leiden tot heterogene epitheelrijping. Restmedium in het bovenste kanaal kan worden verwijderd door de debiet te verhogen tot 600 μL/u gedurende 3–4 minuten. Bubblevorming, die de perfusie verstoort en de levensvatbaarheid van cellen beïnvloedt, kan optreden door onvoldoende evenwicht. Bubbels kunnen worden verwijderd door de stroom tijdelijk te verhogen tot 600μL/u gedurende 3-4 minuten of, als het aanhoudt, door de chip los te koppelen en handmatig met een pipet los te maken. In het COPD-model kan overmatige slijmproductie het luchtwegkanaal blokkeren en de perfusie belemmeren; in dergelijke gevallen wordt zacht wassen met DPBS aanbevolen, gevolgd door het heroprichten van ALI.
De meeste bestaande co-kweeksystemen die luchtwegepiteliale en pulmonale endotheelcellen combineren, vertrouwen op commercieel verkrijgbare primaire cellen en generieke ECM-coatings zoals collageen of fibronectine 10,12. Hoewel deze adhesie ondersteunen, reproduceren ze slechts gedeeltelijk de biochemische en mechanische eigenschappen van de luchtweg-vaatinterface. Daarentegen gebruikt het huidige systeem celtype-specifieke ECM-coatings, wat een microomgeving biedt die het menselijk longweefsel13 nauwer nabootst.
De functie van barrières wordt vaak beoordeeld met behulp van transepitheliale/transendotheliale elektrische weerstand (TEER), hoewel deze methode kan worden beïnvloed door epitheliale multilayer organisatie14. In deze studie werd dextranpermeabiliteit gebruikt om de functionele integriteit te beoordelen. De waargenomen Papp-waarden lagen onder de drempel voor sterke barrièreintegriteit (1 × 10⁻6 cm/s), wat wijst op een robuuste epitheel–endotheliale grens. Het luchtwegepitiheel vertoonde differentiatiekenmerken, waaronder ciliaire slagen en slijmproductie, samen met continue lokalisatie van ZO-1 en VE-cadherine bij celverbindingen. Daarnaast werd er consequent hoogwaardige RNA uit beide compartimenten verkregen, waardoor celtype-specifieke downstream-analyses mogelijk werden.
Een belangrijke vooruitgang in dit werk is de ontwikkeling van een COPD-long-op-een-chip-model waarbij zowel epitheelcellen als endotheelcellen van dezelfde patiënt worden afgeleid. Voor zover ik recent weet, is zo'n patiëntgematchte co-cultuur nog niet eerder gerapporteerd. Eerdere studies hebben COPD-afgeleide epitheelcellen 7,8 opgenomen, maar vertrouwden op commercieel verkregen endotheelcellen, waardoor het onderzoek naar ziekte-specifieke epitheel-endotheelinteracties beperkt is. Het huidige model overwint deze beperking door patiëntspecifieke cellulaire interacties te behouden.
Het COPD-model herhaalde belangrijke ziektekenmerken, waaronder een verhoogde slijmproductie3, terwijl de endotheelalignering en de junctionale integriteit tijdens de stroming behouden bleven. Belangrijk is dat de co-kweek van door patiënten afgeleide epitheel- en endotheelcellen de barrièrefunctie of levensvatbaarheid niet aantastte, ondanks verhoogde slijmproductie. Het systeem bleef stabiel onder ALI-omstandigheden en continue perfusie, wat het gebruik voor langetermijnstudies ondersteunde. Daarnaast maakt het platform mechanische rek mogelijk, wat de fysiologische relevantie verder versterkt.
Een belangrijke kracht van deze workflow is het vermogen om gezonde en COPD-omstandigheden binnen hetzelfde platform te evalueren onder vergelijkbare experimentele parameters. Dit maakt directe beoordeling mogelijk van ziektegerelateerde verschillen in epitheliale differentiatie, endotheelfunctie en barrièreintegriteit. De modellen kunnen ook onafhankelijk worden gebruikt, afhankelijk van de onderzoeksvraag. Het gezonde model is geschikt voor mechanistische studies en routemodulatie, terwijl het COPD-model een platform biedt voor therapeutische evaluatie en medicijntesten. Het vermogen om hoogwaardige RNA uit elk compartiment afzonderlijk te extraheren, maakt celtype-specifieke moleculaire profilering verder mogelijk. Het gebruik van patiëntgematchte cellen in het COPD-model behoudt ziekte-relevante interacties die anders verloren zouden gaan bij het combineren van niet-verwante celbronnen.
Ondanks deze voordelen moeten er verschillende beperkingen worden overwogen. Het gebruik van long-on-a-chip systemen vereist gespecialiseerde apparatuur en technische expertise, wat de toegankelijkheid kan beperken. Daarnaast bevat het model momenteel geen andere relevante longceltypen, zoals immuun- of stromale cellen, die de reacties op pathogenen en medicijnen kunnen beïnvloeden. Het platform kan echter worden aangepast om circulerende immuuncellen te bevatten, waardoor hun interacties met epitheel- en endotheelcompartimenten onderzocht kunnen worden. Toegang tot patiëntafgeleid COPD-materiaal kan ook beperkt zijn, en interpatiënte variabiliteit kan de reproduceerbaarheid beïnvloeden. Bovendien kan overmatige slijmproductie de perfusie verstoren.
De impact van cyclisch mechanisch rekken werd in deze studie niet onderzocht, maar vertegenwoordigt een belangrijke toekomstige richting. Het rekbare membraan maakt simulatie mogelijk van ademhalingsgerelateerde mechanische krachten, waarvan bekend is dat ze de celfunctie, reparatie en homeostasebeïnvloeden 15,16. Eerdere studies hebben aangetoond dat mechanische spanning de opname en het transport van nanodeeltjes over de epitheliale barrière10 kan verbeteren.
Samenvattend bieden de gezonde en COPD long-on-a-chip modellen die hier worden gepresenteerd een fysiologisch relevant platform voor het bestuderen van epitheel-endotheliale interacties in gezondheid en ziekte. De dynamische aard van het systeem maakt nauwkeurige controle van stromingscondities mogelijk en ondersteunt toepassingen zoals geneesmiddelentesten en studies van pathogenenblootstelling. Dit protocol biedt een robuust alternatief voor traditionele in vitro- en diermodellen en vormt een waardevol hulpmiddel voor de vooruitgang van translationeel respiratoire onderzoek.
Openbaarmakingen
Geen enkele auteur heeft belangenconflicten.
Dankbetuigingen
Dit werk werd gefinancierd door een onderzoeksbeurs (G065221N) van de Research Foundation-Flanders.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.25% trypsin-EDTA (1X) (for endothelial cells) | Gibco | 25200-056 | Gebaten voor enzymatische detachering van pulmonaire microvasculaire endotheelcellen. |
| 120 mm x 120 mm vierkante celcultuurschaal | VWR | 688161 | Gebaten om de chipcradle te houden tijdens de voorbereiding en handeling van de chip. |
| 2100 Bioanalyzer | Agilent | G2939A | Gebaten om de kwaliteit en integriteit van RNA te beoordelen. |
| 2-propanol | Sigma-Aldrich | I9516 | Gebaten om RNA te laten neerslaan tijdens extractie. |
| 4′,6-diamidino-2-fenylindole (DAPI) | Invitrogen | D1306 | Gebaten om celkernen te kleuren tijdens immunofluorescentie. |
| 50 mL kegelbuisjes | Cellstar | 227261 | Gebaten voor celverzameling, centrifugatie en bereiding van celsuspensies. |
| Agilent RNA 6000 Nano Kit | Agilent | 5067-1511 | Gebaten voor RNA-kwaliteitsanalyse met de Bioanalyzer. |
| Amphotericin B | Gibco | 15290-026 | Gebaten om schimmelbesmetting tijdens celcultuur te voorkomen. |
| Automatische celteller | NanoEntek | EVE PLUS | Gebaten om de celconcentratie en levensvatbaarheid te bepalen vóór het zaaien. |
| Celcultuur multiwell platen, 48 well, steriele | Falcon | 353078 | Gebaten om dwarsdoorsneden vast te houden tijdens kleuringsprocedures. |
| Centrifuge | Hettich | 320R | Gebaten om cellen te pelletten vóór het zaaien. |
| Chip Cradle | Emulate | support@emulatebio.com | Gebaten om chips te ondersteunen en vast te houden tijdens oppervlakteactivering, coating en celzaaien. |
| Chloroform | Sigma-Aldrich | 366927 | Gebaten voor fasescheiding tijdens RNA-extractie. |
| Cicero spinning disk module | CrestOptics S.p.A. | Gebaten om hogesnelheid confocale fluorescentie-beeldvorming uit te voeren. | |
| Dekglasjes | Epredia | BB02400600AC13MNZ0 | Gebaten om chips te ondersteunen tijdens confocale beeldvorming. Beschrijving: 24 x 60 mm, #1.5 |
| Cryostat | Thermo Fisher Scientific | NX70 | Gebaten om OCT-ingebedde monsters te sectioneren. |
| Culture module (Zoë-CM) | Emulate | support@emulatebio.com | Gebaten om de omgevingsomstandigheden voor celcultuur binnen het microfluïdische systeem te regelen. |
| Define trypsin inhibitor (DTI) | Thermo Fisher | R007100 | Gebaten om trypsine-activiteit te neutraliseren na detachering van epitheelcellen. |
| Dextran Cascade Blue 3KDa | Thermo Fisher | D7132 | Gebaten als een fluorescerende tracer om de barrièrepermeabiliteit te beoordelen. |
| Endotheelcellen Groeimedium MV2 kit | PromoCell | C-22022 | Gebaten voor onderhoud en expansie van pulmonaire microvasculaire endotheelcellen. |
| ER-1 oppervlakte activeringsreagens (lichtgevoelige activeringspoeder) | Emulate | support@emulatebio.com | Gebaten om chipoppervlakken te activeren voor daaropvolgende coating. |
| ER-2 oppervlakte activeringsreagens (buffer) | Emulate | support@emulatebio.com | Gebaten als buffer tijdens oppervlakteactivering van de chip. |
| Ethanol absoluut | Thermo Fisher Scientific | 437433T | Gebaten om RNA-pellets te wassen tijdens extractie. |
| Fluorescent plate reader | Agilent | BioTek Sinergy H1 microplate reader | Gebaten om de fluorescentie-intensiteit te meten voor permeabiliteitsassays. |
| Gelatine uit runderhuid | Sigma-Aldrich | G9391 | Gebaten om cultuuroppervlakken te coaten om endotheelcel-adhesie te bevorderen. |
| Goat Anti-Mouse Alexa Fluor 488 (voor ZO-1 en β-tubuline IV) | Thermo Fisher | A11001 | Gebaten om muis primaire antilichamen met groene fluorescentie te detecteren. |
| Goat Anti-Mouse Alexa Fluor 594 (voor CD31) | Thermo Fisher | A11005 | Gebaten om muis primaire antilichamen met rode fluorescentie te detecteren. |
| Goat Anti-Rabbit Alexa Fluor 555 (voor VE-cadherine) | Thermo Fisher | A21429 | Gebaten om konijn primaire antilichamen met oranjerode fluorescentie te detecteren. |
| Hub module (Orb-HM) | Emulate | support@emulatebio.com | Gebaten om gas en stroom te leveren aan de cultuurmodule. |
| Human Bronchial Epithelial Cells (HBEC) | Lonza | CC-2540S | Gebaten als luchtweg-epitheelcellen om het gezonde co-cultuurmodel te vestigen. |
| Human Collagen IV | Sigma | C5533 | Gebaten om T25 flasks te coaten om epitheliale celanhechting te bevorderen. |
| Human Collagen type I | Advanced Biomatrix | 5007 | Gebaten als een component van de extracellulaire matrixoplossing voor chipcoating. |
| Human Fibronectin | Sigma-Aldrich | F0895 | Gebaten als een component van de extracellulaire matrixoplossing voor chipcoating. |
| Human Laminine | Sigma -Aldrich | L4544 | Gebaten als een component van de extracellulaire matrixoplossing voor chipcoating. |
| Human Pulmonary Microvascular Endothelial Cells (HPMEC) | PromoCell | C-12281 | Gebaten als pulmonaire microvasculaire endotheelcellen om het gezonde co-cultuurmodel te vestigen. |
| human recombinant epidermal growth factor (hrEGF) | PromoCell | C-60182 | Gebaten om epitheliale celproliferatie te bevorderen. |
| Hydrocortison stockoplossing | StemCell Technologies | 7925 | Gebaten als een supplement in cultuurmedia om differentiatie van luchtweg-epitheelcellen te ondersteunen. |
| ImageJ | Fiji software | versie ImageJ 1.54p | Gebaten om verworven beelden te verwerken en te analyseren. |
| Omgekeerde microscoop voor celcultuur | Leica Microsystems | DMi1 | G |
Referenties
- Blume, C., et al. Cellular crosstalk between airway epithelial and endothelial cells regulates barrier functions during exposure to double-stranded RNA. Immun Inflamm Dis. , (2017).
- Sakao, S., Voelkel, N. F., Tatsumi, K. The vascular bed in COPD: pulmonary hypertension and pulmonary vascular alterations. Eur Respir Rev. , (2014).
- Shaykhiev, R., Crystal, R. G. Early events in the pathogenesis of chronic obstructive pulmonary disease: smoking-induced reprogramming of airway epithelial basal progenitor cells. Ann Am Thorac Soc. , (2014).
- Blume, C., Davies, D. E. In vitro and ex vivo models of human asthma. Eur J Pharm Biopharm. , (2013).
- Lin, C., et al. Mechanotransduction regulates the interplays between alveolar epithelial and vascular endothelial cells in lung. Front Physiol. , (2022).
- Shrestha, J., et al. Lung-on-a-chip: the future of respiratory disease models and pharmacological studies. Crit Rev Biotechnol. , (2020).
- Benam, K. H., et al. Small airway-on-a-chip enables analysis of human lung inflammation and drug responses in vitro. Nat Methods. , (2016).
- Benam, K. H., et al. Matched-comparative modeling of normal and diseased human airway responses using a microengineered breathing lung chip. Cell Syst. , (2016).
- Plebani, R., et al. Modeling pulmonary cystic fibrosis in a human lung airway-on-a-chip. J Cyst Fibros. , (2022).
- Huh, D., et al. Reconstituting organ-level lung functions on a chip. Science. , (2010).
- Schroeder, A., et al. The RIN: an RNA integrity number for assigning integrity values to RNA measurements. BMC Mol Biol. , (2006).
- Stucki, A. O., et al. A lung-on-a-chip array with an integrated bio-inspired respiration mechanism. Lab Chip. , (2015).
- Burgstaller, G., et al. The instructive extracellular matrix of the lung. Eur Respir J. , (2017).
- Srinivasan, B., et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. , (2015).
- Fang, Y., Wu, D., Birukov, K. G. Mechanosensing and mechanoregulation of endothelial cell functions. Compr Physiol. , (2019).
- Santus, P., et al. The airways' mechanical stress in lung disease: implications for COPD pathophysiology and treatment evaluation. Can Respir J. , (2019).