Deze studie onderzocht de potentiële rol van JNK1/2-signalering bij door Aconitine veroorzaakte myocardschade bij ratten. Verhoogde JNK1/2-fosforylering was geassocieerd met myocardschade, terwijl farmacologische remming van de JNK-route myocardschade gedeeltelijk verlichtte, wat suggereert dat JNK-signalering kan bijdragen aan door Aconitine veroorzaakte cardiotoxiciteit.
Onderzoeksartikel
Aconitine induceert myocardschade bij ratten die geassocieerd is met activatie van het JNK1/2-signaalpad
In dit artikel
Samenvatting
Samenvatting
Acute Aconitine (Acon) vergiftiging kan een hartritmestoornis en myocardschade veroorzaken; de onderliggende mechanismen blijven echter onduidelijk. Deze studie onderzocht het mechanisme van myocardletsel veroorzaakt door acute aconvergiftiging. Een rattenmodel (n = 51) van acute Acon-vergiftiging werd vastgesteld door intragastrische toediening. Elektrocardiografische traceren werden gebruikt om veranderingen in het hartritme vast te leggen. Hematoxyline- en eosinekleuring (HE) en Masson-kleuring werden uitgevoerd om myocardpathologische schade en collageenafzetting te evalueren. De expressieniveaus van hartenzymen en -eiwitten in veneus bloed werden gedetecteerd met enzymgekoppelde immunosorbentassay (ELISA) kits. De structuur-activiteitrelatie tussen Acon en de JNK-route werd onderzocht door moleculaire koppeling. De expressieniveaus van gefosforyleerde c-Jun N-terminale kinase 1/2 (JNK1/2) eiwitten werden gedetecteerd door Western blotting. In deze studie werden ventriculaire aritmieën waargenomen bij ratten na intragastrische toediening van Acon. Myocardweefsel vertoonde een verstoorde ordening van myocardvezels en cellen, vergezeld van abnormale collageenafzetting. Moleculaire koppelingsresultaten wezen op mogelijke interacties tussen Acon en JNK1/2. Ondertussen waren de expressieniveaus van hartenzymen en -eiwitten, evenals gefosforyleerd JNK1/2, significant verhoogd. Verdere studies toonden aan dat behandeling met de JNK-remmer gedeeltelijk Acon-geïnduceerd myocardletsel bij ratten SP600125 terugkeren. Deze resultaten geven aan dat JNK1/2-fosforylering betrokken is bij de ontwikkeling van myocardschade veroorzaakt door acute aconitinevergiftiging. De bevindingen suggereren dat activatie van de JNK1/2-signaalroute bijdraagt aan door Aconitine veroorzaakte myocardschade, en dat remming van de JNK1/2-route myocardletsel veroorzaakt door acute Aconitine-intoxicatie kan verlichten.
Inleiding
Acon is een natuurlijk diterreen-alkaloïde-extract uit de Aconitum-plant uit de familie van de ranonkelaceae. Het heeft ontstekingsremmendeeffecten 1,2, pijnstillend, antitumor, reumatische ontsteking, immuunmetabolisme en bloedcirculatiebevorderende effecten 3,4,5. Echter, ongeschikt of overmatig gebruik van preparaten met acon kan leiden tot ernstige vergiftigingen. Symptomen veroorzaakt door aconitinevergiftiging zijn onder andere hartklachten6, neurologische symptomen7 en gastro-intestinale klachten8. In de afgelopen jaren zijn er wereldwijd regelmatig meldingen geweest van gevallen waarbij Akonietvergiftiging of overlijden 9,10,11 betreft. Aconvergiftiging uit zich voornamelijk in het cardiovasculaire systeem, het zenuwstelsel en het spijsverteringssysteem. Onder hen is de belangrijkste doodsoorzaak door vergiftiging cardiotoxiciteit. De hartschade veroorzaakt door Acon is zeer ernstig; Vooral het korte begin van het syndroom maakt het moeilijk om de klinische behandeling tijdig uit te voeren. Meestal veroorzaakt acute aconvergiftiging binnenenkele uren misselijkheid, diarree, duizeligheid, pijn op de borst, dyspneu en andere eerste symptomen. Op dit moment is het gedetailleerde mechanisme van myocardschade veroorzaakt door acute Acon-vergiftiging nog onduidelijk, en er zijn geen klinisch effectieve geneesmiddelen die myocardschade door Acon-vergiftiging12,13 effectief kunnen verlichten.
Schade bij acute Acon-vergiftiging die het mogelijk maakt het mechanisme van myocardschade te onderzoeken, kan een belangrijke mogelijkheid bieden voor een tijdsafhankelijk onderzoek. Zo'n model zou potentie kunnen bieden voor toekomstige behandeling van patiënten met acute Acon-vergiftigingsaandoeningen en kan voorkomen dat het syndroom vroegtijdig ontwikkelt. Studies hebben gespeculeerd over de rol van de c-Jun n-terminale kinase (JNK) signaalweg in de immuunrespons op vergiften. De JNK-signaalweg is een van de mitogeen-geactiveerde eiwitkinase-signaleringsroutes (MAPK). De JNK-familie heeft drie genen (JNK1/MAPK8, JNK2/MAPK9 en JNK3/MAPK10). JNK1 en JNK2 kunnen in de meeste weefsels tot expressie komen, inclusief het hart, terwijl JNK3 voornamelijk in de hersenen14 voorkomt en vooral gerelateerd is aan de oxidatieve stress en ontstekingsreactie van cellen15. Studies hebben aangetoond dat de door JNK gemedieerde signaalroute een belangrijke rol speelt bij hersen- en myocardischemie/reperfusieletsel16,17. Toediening van C66 verlicht vetrijke dieet-geïnduceerde myocardontsteking door de activatie van JNK in muisharten te remmen18. Chlorogenzuur verlicht door TNF-α geïnduceerde cardiomyocytletsel door het remmen van JNK-signalering19. Pinocembrin verlicht door LPS veroorzaakte myocardschade en ontstekingsrespons door het remmen van de p38/JNK MAPK-signaalroute, en verlicht hartstoornissen en hartritmestoornissen20. Deze studies geven aan dat veranderingen in JNK-signalering, voornamelijk JNK1/2, nauw samenhangen met myocardschade. Ondertussen is JNK ook een doelwit stroomafwaarts van Acon voor een reeks activiteiten. Een studie vond dat hoge doses Acon-blootstelling het activatiepad van het JNK-enzym kunnen beïnvloeden, wat ontwikkelingstoxiciteit veroorzaakt bij zebravisembryo's (juvenielen), zoals verkorte lichaamslengte, gebogen lichaamsvorm en hersenontwikkelingsdefecten21. Deze studie suggereert dat Acon mogelijk het JNK-signaalpad activeert. De rol van de JNK-signaalweg bij myocardschade veroorzaakt door acute aconitinevergiftiging is echter onduidelijk.
Deze studie stelde een rattenmodel vast van acute aconvergiftiging door myocardschade door verschillende intragastrische doseringen en tijdsintervallen in te stellen. Daarnaast onderzochten we het effect van Acon op het fosforyleringsniveau van JNK1/2 in het myocarde en de activatie van het JNK-signaalpad in dit model. Het onderzoeken van de rol van JNK1/2-fosforylering bij myocardletsel bij ratten veroorzaakt door acute Acon-vergiftiging biedt een theoretische basis voor de studie van myocardschade veroorzaakt door acute Acon-vergiftiging.
Protocol
Het experimentele ontwerp en uitvoeringsplan werden goedgekeurd door het Animal Experiment Committee van de Kunming Medical University voor goedkeuring (goedkeuringsnummer: Kmmu20220652) op 06/2022. Alle experimentele plannen werden uitgevoerd in overeenstemming met de "Richtlijnen voor Dierproeven van de Kunming Medische Universiteit". De lijst van alle materialen die in deze studie zijn gebruikt, staat in de Materiaaloverzicht.
VOORZICHTIGHEID: Vanwege de hoge toxiciteit van Acon werden alle voorbereidings- en toedieningsprocedures uitgevoerd in overeenstemming met de institutionele laboratoriumveiligheidsvoorschriften. Personeel dat Acon hanteerde droeg passende persoonlijke beschermingsmiddelen, waaronder handschoenen, laboratoriumjassen en maskers, en procedures waarbij Acon-voorbereiding werd uitgevoerd met passende voorzorgsmaatregelen om het blootstellingsrisico te minimaliseren. Dieren werden nauwlettend gemonitord tijdens en na toediening van Acon, op tekenen van ernstige toxiciteit en stress, en humane eindpunten werden toegepast wanneer nodig om het lijden te minimaliseren. Biologisch afval en met Acon-contaminatie vervuilde materialen werden afgevoerd in overeenstemming met de institutionele bioveiligheidsvoorschriften.
Dierbehandeling
Volwassen mannelijke Sprague-Dawley (SD) ratten (2 maanden oud, 230 g) werden grootgebracht in het SPF dierproefgebouw, het experimenteel dierencentrum van de Kunming Medical University. De voederomstandigheden van alle SD-ratten werden behandeld volgens de voedingsbehoeften van SPF-ratten. Ze werden adaptief opgevoed gedurende een week en vasten 12 uur voor het experiment. Acon werd opgelost in een 0,05 M acetaatbuffer (Acet), en de SD-ratten werden verdeeld in 4 groepen volgens het principe van random control: Groep 1 (Acon-1 mg) toegediend 1mg/kg Acon via gave; Groep 2 (Acon-2 mg) toegediend 2mg/kg Acon intragastrisch; Groep 3 (Acet), toegediend 2 mL 0,05 M acetaat, gebuffreerd door intragastrische inspanning; en Groep 4 (controle, geen behandeling toegepast). Monsters werden genomen 1, 3 en 6 uur na intragastrische toediening. In totaal werden 36 ratten bestudeerd, waarvan 3 per groep op 1 uur, 3 uur en 6 uur. Op elk aangewezen tijdstip werden ECG-opnames voor het eerst uitgevoerd. Vervolgens werden ratten verdoofd en werden bloedmonsters verzameld voor serumbiochemische analyse. Na bloedafname werden de ratten geofferd en het hartweefsel snel verwijderd. Delen van het myocardweefsel werden gefixeerd voor histologische analyse (HE- en Masson-kleuring), terwijl de resterende weefsels werden opgeslagen voor eiwitexpressie-analyse met Western blotting. In experimenten waarbij de JNK1/2-activatoren en remmers worden getest, worden SD-ratten verdeeld in 5 groepen volgens het principe van willekeurige controle: de modelgroep kreeg 2 mg/kg intragastrische Acon-toediening, en de remmergroep kreeg aanvankelijk een intraperitoneale injectie van 6 mg/kg SP60012522, gevolgd door 2 mg/kg Acon via gavage 2 uur later. De agonistengroep kreeg aanvankelijk een intraperitoneale injectie van 0,1 mg/kg Anisomycine (Anis)23,24, gevolgd door 2 mg/kg Acon door gavage 2 uur later. De DMSO-groep kreeg een intraperitoneale injectie van 2 mL 0,8% DMSO-cosolvent gemengde oplossing. De controlegroep kreeg geen behandeling. In totaal werden 15 ratten bestudeerd. Alle kleuringsresultaten werden geblindeerd geanalyseerd om observationele bias te minimaliseren. Tijdens de experimentele periode werden ratten continu gemonitord op overlevingsstatus en tekenen van ernstige toxiciteit na toediening van Aconitine. De sterfte werd geregistreerd op elk aangewezen observatiemoment (1 uur, 3 uur en 6 uur). De dood werd gedefinieerd als het volledig stoppen van ademhaling en hartslag. Dieren met ernstige nood, waaronder aanhoudende dyspneu, verlies van oprichtende reflex, onvermogen om te lopen of een doodslopende toestand, werden als humane eindpunten beschouwd en werden onmiddellijk onder diepe narcose geëuthanaseerd om het lijden te minimaliseren. Het aantal sterfgevallen per groep ratten (Tabel 1–4).
Rat-elektrocardiogram (ECG) traceren
Ratten in elke groep werden onderworpen aan ECG-traceringen. De specifieke methode was als volgt: na anesthesie door intraperitoneale injectie van natriumpentobarbital in een dosis van 30 mg/kg. De ratten zaten op rug op de proefconsole van het dierexperiment. De computer was aangesloten op het BL-420N biologische signaalacquisitie- en analysesysteem, en de ECG-leiddraadstekker werd in de 3-kanaals ingangspoort van het BL-420N-systeem geplaatst. Spelden werden subcutaan ingebracht aan de binnenkant van de rechter voorpoot, rechterachterpoot en linkerachterpoot van de ratten. De pinnen werden voor de operatie geweekt en gesteriliseerd in 75% alcohol, en er werd voorzichtig op gelet dat de pinnen niet in de spieren werden gestoken. De ECG-leiddraadelektrodeclips werden vervolgens verbonden met de pennen van elk ledemaat. De stroomschakelaar en systeemsoftware van het BL-420N biologische signaalverzamelings- en analysesysteem werden ingeschakeld. Kanaal 3 werd geselecteerd voor signaalacquisitie, en het signaaltype werd ingesteld als rat ECG. De parameters werden als volgt ingesteld: bemonsteringsfrequentie, 1 kHz; bereik, 2,0 mV; tijdconstante (hoogdoorlaatfiltering), 200 ms (0,80 Hz); laagdoorlaatfiltering, 100 Hz; scansnelheid, 200,0 ms/div; en het 50 Hz notchfilter was uitgeschakeld. Lead II ECG werd geregistreerd en ECG-veranderingen werden waargenomen. Nadat het ECG stabiel was, werden er 3 minuten gemonitord en geregistreerd, en werden de gegevens opgeslagen door groepen voor verdere analyse. Na de ECG-opname werden de elektrodeklemmen en pinnen verwijderd en werden de ratten teruggebracht naar hun kooien. De ratten werden warm gehouden en hun ademhaling werd gecontroleerd tot volledig herstel van de narcose om verstikkingsgerelateerde dood te voorkomen. Op dag 1 werden basis-ECG-opnames uitgevoerd voorafgaand aan elke behandeling. Op dag 2 kregen ratten Acon toegediend via intragastrische gavage, en ECG-opnames werden vervolgens 1 uur, 3 uur en 6 uur na toediening uitgevoerd met dezelfde procedure.
Hematoxyline- en Eosine-kleuring (HE) en Masson-kleuring
Harten werden gesneden in het horizontale kortasvlak, en het hartweefsel van de harttop van SD-ratten werd verzameld en vastgezet in 4% polyformaldehyde bij kamertemperatuur gedurende 24 uur. De vastgelegde weefsels werden gedehydrateerd, vrijgemaakt met xyleen en ingebed in paraffinewas. Vervolgens werden secties (4 μm dik) gekleurd met HE- en Masson-kleuring volgens de standaardprocedure. Bij HE-kleuring werd de hematoxyline-kleuring gedurende 2 minuten uitgevoerd, daarna werden de monsters 1 minuut in warm water geweekt, en daarna werd er 30 seconden eosinekleuring uitgevoerd. Bij Masson-kleuring kleur je 5 minuten met Weigert ijzerhematoxyline-oplossing, daarna 3–5 minuten met Masson blauwe oplossing en tenslotte 1–2 minuten met anilineblauwe oplossing. De preparaten werden onder een gewone optische microscoop bekeken. Voor elke sectie werden vijf niet-overlappende microscopische velden willekeurig geselecteerd met dezelfde vergroting, waarbij grote vaten en duidelijke artefacten werden vermeden. De collageenvolumefractie (CVF) werd berekend met behulp van ImageJ, volgens Vergelijking (1):
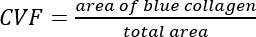 (1)
Enzym-gekoppelde immunosorbent-assay (ELISA)
Na het opnemen van het ECG werden de ratten verdoofd met natriumpentobarbital, waarna een midline laparotomie werd uitgevoerd om veneus bloed af te nemen. Bloedmonsters werden afgenomen door een punctie van de inferieure vena cava met een wegwerpnaald voor veneuze bloedafname. Het bloed werd 's nachts geïncubeerd bij 4 °C, en het supernatant werd na centrifugatie opgevangen bij 1000 × g gedurende 20 minuten. Concentraties van CK-MB, AST, LDH, cTn-1 en h-FABP werden bepaald met behulp van een ELISA-assaykit. De ELISA werd uitgevoerd volgens de instructies van de fabrikant. De optische dichtheid (OD) waarden van elke put werden bepaald bij 450 nm, met behulp van een microplaatlezer.
Westelijke blottinganalyse
Het totale eiwit werd uit hartweefsel geëxtraheerd met behulp van een proteïne-extractiekit. Er werd een BCA Protein Assay kit gebruikt om de eiwitconcentratie te bepalen. Het totale eiwit (het monstervolume van het te testen eiwit was 10 μL) werd gescheiden met 10% natriumdodecylsulfaat-polyacrylamide gelelektroforese en overgebracht naar het PVDF-membraan, waarbij 5% magere melk 30 minuten werd geblokkeerd. Vervolgens werd het membraan 's nachts geïncubeerd met JNK1/2 (1:500), p-JNK1/2 (1:1000) en GAPDH (1:4000) primaire antilichaam. De volgende dag werden alle membranen drie keer gewassen met PBST en vervolgens 1 uur geïncubeerd met het juiste secundaire antilichaam (1:5000). Ten slotte werden verbeterde chemiluminescentie-reagentia gebruikt voor signaaldetectie; de ontwikkelende oplossing werd gelijkmatig druppelgewijs op de PVDF-membraanstroken aangebracht en liet 10 seconden incuberen, gevolgd door belichting, ontwikkeling en beeldvorming. De intensiteiten van de Western blot-band werden gemeten met behulp van ImageJ-software.
Moleculaire dockingvalidatie
De SDF 3D moleculaire structuur van Aconitine werd gedownload uit de PubChem-database, en de SDF-structuur werd omgezet in een mol2-structuur met OpenBabel-software. De eiwitstructuren met de hoogste resolutie en langste PDB van JNK1 en JNK2 werden gedownload uit de Uniprot- en Protein Data Bank-databases. Hydrogenering, ligandverwijdering en volledige waterstoftoevoeging werden uitgevoerd op macromoleculaire eiwitten, terwijl volledige waterstoftoevoeging en elektronenbelasting werden uitgevoerd op kleine molecuulverbindingen, en torsiebruggen werden gezet. Moleculaire koppelingsexperimenten werden uitgevoerd via AutoDock Vina, waarbij bindingsaffiniteiten ≤ -7,0 kcal/mol werden gedefinieerd als indicatief voor sterke ligand-eiwitinteracties. PyMol werd gebruikt om de 3D-structuur van het dockingcomplex te visualiseren, en Discovery Studio werd gebruikt om de 2D-structuur van het dockingcomplex te visualiseren.
Statistische analyse
Alle experimenten werden drie keer onafhankelijk herhaald. GraphPad Prism 8 werd gebruikt om alle data statistisch te analyseren en te graferen. Alle gegevens werden weergegeven als gemiddelde ± standaarddeviatie (SD). De t-test van studenten werd gebruikt voor vergelijkingen tussen twee groepen. Voor vergelijkingen tussen meerdere groepen op hetzelfde tijdstip of tijdsverloop binnen dezelfde groep werd eenrichtings-ANOVA gebruikt. p < 0,05 werd beschouwd als een statistisch significante25.
Resultaten
ECG-resultaten van ratten na Acon-gavage
Eerdere studies hebben aangetoond dat de toxische effecten van Aconitine optreden in de vroege fase, meestal binnen enkele uren na toedieningvan 26,27. Daarom hebben we, om het vroege optreden en de progressie van acute cardiotoxiciteit binnen dit tijdsvenster vast te leggen, drie tijdstippen geselecteerd: 1 uur, 3 uur en 6 uur voor de experimenten. De resultaten van het elektrocardiogram toonden aan dat na 1 uur, 3 uur en 6 uur ACON-werking geen hartritmestoornissen optraden in de controlegroep en de Acet-groep, en dat de ECG-veranderingen niet zichtbaar waren. Ratten in de Acon-1mg-groep hadden respectievelijk voortijdige ventrikelcontracties en vroegtijdige ventrikelbigeminie, respectievelijk voortijdige ventrikeltriplet, korte uitbarsting ventrikeltachycardie, monomorfe ventrikeltachycardie, bidirectionele ventrikeltachycardie en één of meer ventriculaire aritmieën. Ratten in de Acon-2 mg-groep ontwikkelden voortijdige ventrikelcontracties, één of meer ventriculaire aritmieën, waaronder voortijdige ventrikelbigeminie, korte uitbarsting ventrikeltachycardie en bidirectionele ventrikeltachycardie (Figuur 1, aanvullende figuren 1–2). Acon bevordert pathologische myocardbeschadiging en verhoogt de verkleuring van collageen in het myocardweefsel van ratten.
Myocardweefsel werd onderzocht met HE-kleuring. De resultaten toonden aan dat, vergeleken met de controlegroep en de Acet-groep, na 1 uur, 3 uur en 6 uur Acon-behandeling, het myocardweefsel van SD-ratten in de Acon-1 mg-groep gedeeltelijke ruptuur van de myocardspiervezels vertoonde, een wanordelijke rangschikking van myocardcellen, het myocardinterstitium verbreed, oedeem voorkomt in het myocardinterstitium, De meeste myocardcellen zijn gezwollen, de kernen zijn diep gekleurd en gecondenseerd, een groot aantal myocardiale cellen ondergaat degeneratie en er worden ronde vacuolen gevormd in het myocardvezelcytoplasma (aangegeven door pijlen). De spiervezelstriaties in het myocardweefsel van SD-ratten in de Acon-2 mg-groep waren onduidelijk of verdwenen; De opstelling van de spierbundels was los en wanordelijk, de intermusculaire ruimtes waren verbreed, een groot aantal celkernen was diep gekleurd, nucleaire pyknose, intercellulair oedeem en myocardcellen waren gezwollen en degeneratief. Het cytoplasma van de myocardvezels vertoonde ronde vacuolen (weergegeven met pijlen) (Figuur 2A, Aanvullende Figuur 3A, Aanvullende Figuur 4A).
Masson-kleuring werd uitgevoerd om collageenafzetting in myocardweefsel te evalueren. In de controle- en acetgroepen vertoonden cardiomyocyten een normale morfologie, met minimale collageenafzetting waargenomen in het myocardinterstitium. In de Acon-1 mg-groep werden milde verhogingen van blauw gekleurd collageen waargenomen in sommige interstitiële gebieden. In de Acon-2 mg-groep waren meer uitgebreide blauw gekleurde gebieden diffuus verspreid over het myocardweefsel, gepaard met een gedesorganiseerde myofilamentopstelling en verstoring van de normale myocardstructuur. De mate van collageenkleuring in de Acon-2 mg-groep was groter dan die in de Acon-1 mg-groep. Kwantitatieve analyse toonde aan dat de collageenvolumefractie (CVF) significant toenam in zowel de Acon-1 mg als Acon-2 mg groepen vergeleken met de controle- en Acet-groepen (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05). Opmerkelijk is dat de CVF-waarde zijn hoogste niveau bereikte in de Acon-2 mg-groep 6 uur na intragastrische toediening (Figuur 2B, Aanvullende Figuur 3B, Aanvullende Figuur 4B). Gezien de korte observatieperiode (1–6 uur) zijn deze bevindingen waarschijnlijker een weerspiegeling van acute interstitiële veranderingen, zoals oedeem of veranderingen in collageenkleurpatronen, dan van gevestigde myocardfibrose. Daarnaast was er geen significant verschil in hartgewicht tussen de groepen na 1 uur, 3 uur en 6 uur na de behandeling van Acon-1 mg of Acon-2 mg (Tabel 5).
Acon bevordert hartenzymen en cardiale eiwitniveaus in veneus bloed van ratten
Om door Acon-geïnduceerde myocardschade te evalueren, hebben we serumniveaus van hartschademarkers gemeten, waaronder CK-MB, AST, LDH, cTn-I en h-FABP. In vergelijking met de controle- en Acet-groepen vertoonden de Acon-1 mg- en Acon-2 mg-groepen significant verhoogde niveaus van CK-MB, AST, LDH, cTn-I en h-FABP na 1 uur, 3 uur en 6 uur (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05). Bovendien waren op dezelfde momenten de stijgingen van deze markers duidelijker in de Acon-2 mg-groep dan in de Acon-1 mg-groep (p < 0,05) (Figuur 3).
Moleculaire koppelingsresultaten
Om het effect van Acon op de signaalroute van myocardschade bij ratten verder te onderzoeken, gebruikten we moleculaire koppeling om Acon-gerelateerde pathway-eiwitten te identificeren. De koppelingsresultaten toonden aan dat Acon stabiel kon binden aan de actieve pockets van zowel JNK1 als JNK2 via meerdere niet-covalente interacties. In JNK1 vormde Aconitine twee conventionele waterstofbruggen met ALA267 en SER299, met bindingsafstanden van respectievelijk 2,0 Å en 2,1 Å, wat wijst op sterke directionele interacties die bijdragen aan ligandverankering. Daarnaast werden uitgebreide van der Waals-interacties waargenomen tussen Aconitine en omliggende residuen, wat een nauwe ruimtelijke complementariteit binnen de bindingspocket mogelijk maakte. Hydrofobe interacties, waaronder Alkyl/π-Alkyl interacties met ILE304, stabiliseerden de ligand verder binnen de hydrofobe microomgeving. Koolstof-waterstofbindingen werden ook geïdentificeerd, waarmee een coöperatief interactienetwerk ontstond dat ligandbinding ondersteunt (Figuur 4A–C). In JNK2 vormde Aconitine één conventionele waterstofbinding met LEU302 (2,1 Å), die diende als een belangrijke ankerinteractie. Net als bij JNK1 droegen van der Waals-interacties, hydrofobe interacties en koolstof-waterstofbindingen gezamenlijk bij aan de stabilisatie van het ligand-eiwitcomplex (Figuur 4D–F). De dockingresultaten voor de geteste verbindingen worden gerapporteerd als bindingsscores (kcal/mol) en gepresenteerd in Tabel 6. Over het algemeen zorgden waterstofbruggen voor specificiteit en verankering, verbeterde hydrofobe interacties ligandeninbedding en bindingsaffiniteit, en van der Waals-interacties droegen bij aan de algehele stabiliteit van het complex. Deze bevindingen geven aan dat Aconitine stabiele complexen kan vormen met zowel JNK1 als JNK2, wat het potentieel als doelagent ondersteunt.
Acon reguleert het fosforyleringsniveau van JNK op
Om het effect van Acon op de JNK-signaalroute in myocardweefsel verder te onderzoeken, werd de expressie van JNK1/2-fosforylering beoordeeld met Western blotting. In vergelijking met de controle- en acetgroepen toonden de Acon-1 mg- en Acon-2 mg-groepen significant verhoogde niveaus van p-JNK1/2 (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05). Bovendien was het fosforyleringsniveau van JNK1/2 significant hoger in de Acon-2 mg-groep dan in de Acon-1 mg-groep (p < 0,05) (Figuur 5A). Binnen de Acon-2 mg-groep toonden vergelijkingen tussen verschillende tijdstippen aan dat de p-JNK1/2-niveaus significant verhoogd waren na 1 uur, 3 uur en 6 uur, met het hoogste niveau waargenomen bij 6 uur (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05) (Figuur 5B). Op basis van deze resultaten werd de Acon-2 mg-groep om 6 uur geselecteerd voor latere experimenten.
JNK-remmer verlicht pathologische schade aan het myocardvirus en collageenkleuring in het myocardweefsel van ratten
Om de regulerende rol van de JNK-signaalroute verder te evalueren, werden de expressieniveaus van p-JNK1 en p-JNK2 in myocardweefsel beoordeeld met Western blotting. In vergelijking met de controle- en DMSO-groepen toonde de Acon-groep significant verhoogde expressieniveaus van p-JNK1 en p-JNK2 (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05). Vergeleken met de Acon-groep toonde de Acon+SP600125 groep significant verminderde niveaus van p-JNK1 en p-JNK2 (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05). Daarentegen vertoonde de Acon + Anis-groep in vergelijking met de Acon+SP600125-groep significant verhoogde expressieniveaus van p-JNK1 en p-JNK2 (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05) (Figuur 6).
De effecten van Anis en SP600125 op myocardschade werden verder onderzocht. De resultaten van de HE-kleuring toonden aan dat, vergeleken met de Acon-groep, het interstitiële oedeem van het myocardweefsel in de Acon+SP600125-groep was verminderd, de zwelling van sommige cardiomyocyten verdween en het celcytoplasma uniform was. De spierruimte is vol, de intermusculaire ruimte wordt dunner, sommige myocardvezels zijn strak en ordelijk gerangschikt, een klein aantal celkernen is diep gekleurd, en het cytoplasma van de myocardvezels vertoont kleine ronde vacuolen, waardoor de pathologische schade van het myocardhart wordt verlicht. In vergelijking met de Acon+SP600125 groep had de Acon + Anis groep gebroken myocardvezels, verbrede spieropeningen, losjes en wanordelijk gerangschikte myocardiale vezels, gezwollen en degeneratiede myocardcellen, was nucleaire chromatine diep gekleurd en trad er intercellulair oedeem op (Figuur 7A).
Masson-kleuring werd uitgevoerd om collageenkleuring in myocardweefsel te beoordelen. In de Acon+SP600125 groep werden matig blauw gekleurde gebieden waargenomen in het myocardinterstitium. In vergelijking met de Acon-groep was de collageenvolumefractie (CVF) in de Acon+SP600125-groep significant verminderd, wat wijst op een verzwakking van door Aconitine geïnduceerde interstitiële veranderingen. Daarentegen werden in de Acon + Anis-groep uitgebreidere blauw gekleurde collageengebieden waargenomen in het myocardinterstitium vergeleken met de Acon+SP600125-groep, vergezeld van een significante toename van CVF (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05) (Figuur 7B). Daarnaast was er geen significant verschil in hartgewicht tussen de groepen (Tabel 5). Gezien de korte observatieperiode (1–6 uur) zijn deze veranderingen waarschijnlijker het gevolg van acute interstitiële veranderingen, zoals oedeem of veranderingen in collageenkleurpatronen, dan van gevestigde myocardfibrose. Deze bevindingen suggereren dat SP600125 door Aconitine veroorzaakt myocardletsel verlicht, terwijl Anisomycine de myocardschade onder deze experimentele omstandigheden verder verergert.
JNK-remmer vermindert de expressie van hartenzymen en harteiwitten in rattenserum
De ELISA-resultaten toonden aan dat vergeleken met de Acon-groep de expressies van CK-MB, AST en LDH significant waren verminderd in de Acon + SP600125 groep, terwijl de expressies van CK-MB, AST en LDH toenamen na de werking van Anis (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05). Daarnaast was de expressie van cTn-I en h-FABP in vergelijking met de Acon-groep significant verminderd in de Acon + SP600125 groep (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05). In vergelijking met de Acon + SP600125 groep was de expressie van cTn-I en h-FABP significant verhoogd in de Acon + Anis groep (n = 3 ratten per groep, eenrichtings-ANOVA, p < 0,05) (Figuur 8A–8B).
BESCHIKBAARHEID GEGEVENS:
Alle ruwe gegevens die in deze studie zijn gebruikt, zijn beschikbaar in de aanvullende bestanden die bij het manuscript zijn gevoegd.
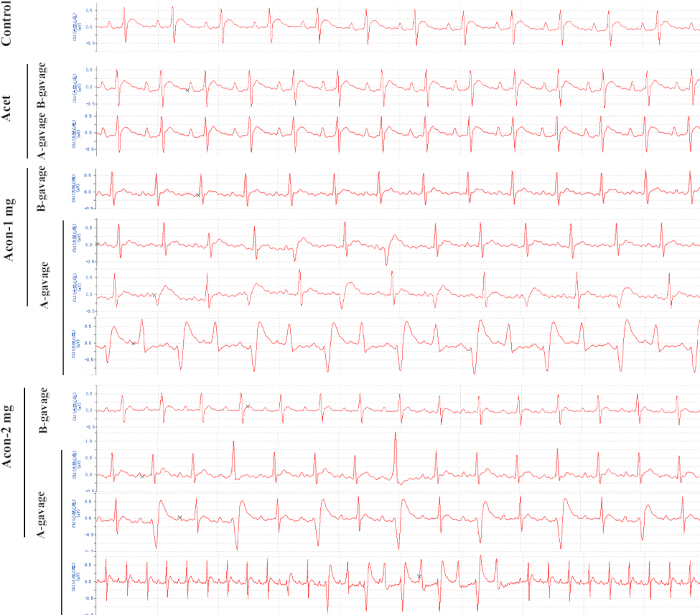
Figuur 1: Afbeelding van een elektrocardiogram van aritmie bij ratten (na 6 uur aconactie). Van boven naar beneden: de controlegroep, de Acet-groep, de Acon-1 mg-groep en de Acon-2 mg-groep. Typen hartritmestoornissen bij Acon-1mg-A-gavage en Acon-2 mg-A-gavage (in volgorde van hartritmestoornis van boven naar beneden): Acon-1mg-A-gavage: voortijdige ventrikelcontracties; voortijdige ventrikelbigeminie; Bidirectionele ventrikeltachycardie. Acon-2 mg-A-gavage: voortijdige ventrikelcontracties; voortijdige ventrikelbigeminie; Korte uitbarsting van ventriculaire tachycardie. Afkortingen; B-gavage = Voor Acon gavage; A-gavage = Na Acon gavage. Klik hier om een grotere versie van deze figuur te bekijken.
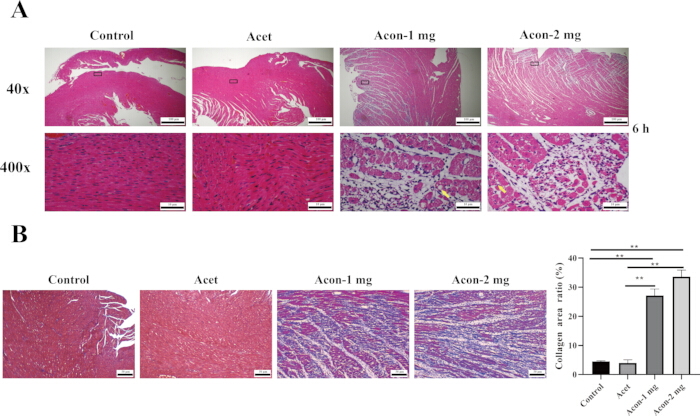
Figuur 2: Myocardschade en collageenkleuring in rattenmyocardweefsel aangegeven door HE- en Masson-kleuring. (A) De pathologische veranderingen in het myocardweefsel van ratten werden vastgesteld door HE-kleuring (de gele pijl geeft de ronde vacuolen aan die gevormd zijn door beschadigde cardiomyocyten); schaalstaaf = 100 μm. (B) Collageenkleuring in het myocardweefsel van ratten werd gedetecteerd door Masson-kleuring; schaal = 50 μm. Gemiddelde ± SD, n = 3. Alle P-waarden zijn berekend met behulp van onafhankelijke eenrichtingsanalyse van variantie. *p < 0,05, **p < 0,01. 40x en 400x. Klik hier om een grotere versie van deze figuur te bekijken.
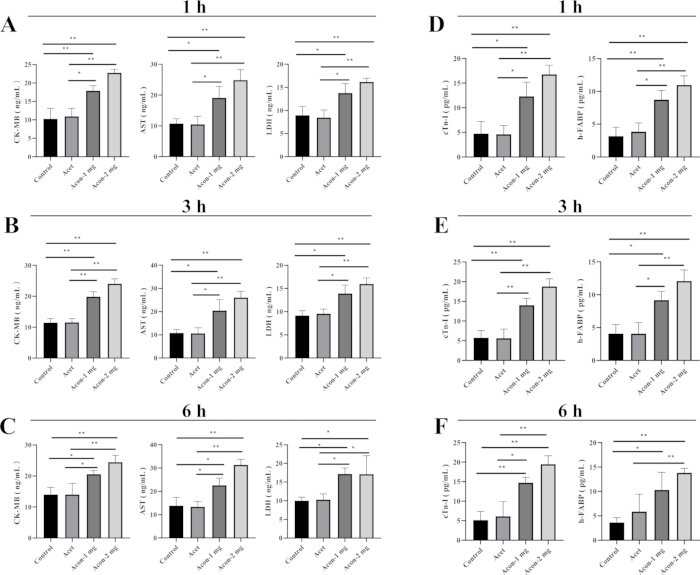
Figuur 3: De niveaus van CK-MB, AST, LDH, cTn-I en h-FABP in rattenserum wezen op myocardschade. (A–F). De niveaus van CK-MB, AST, LDH, cTn-I en h-FABP werden gemeten met ELISA-kits. Mean±SD, n = 3. Alle p-waarden zijn berekend met behulp van onafhankelijke eenrichtingsvariantieanalyse. *p < 0,05, **p < 0,01. Afkortingen; CK-MB = Creatine Kinase-MB; AST = Aspartaataminotransferase; LDH = Lactaatdehydrogenase; cTn-I = Cardiale Troponine I; H-FABP = harttype vetzuurbindend eiwit. Klik hier om een grotere versie van deze figuur te bekijken.
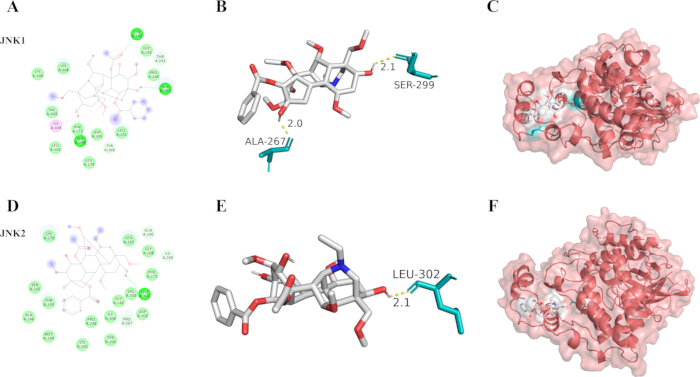
Figuur 4: Resultaten van moleculaire koppeling van Acon met de JNK-route. (A–B) en (D–E) De 2D-interactiediagrammen van Acon met het JNK1/2-eiwit. (C) en (F) De 3D-interactiediagrammen van Acon met het JNK1/2-eiwit. Afkortingen; JNK = c-Jun N-terminale Kinase. Klik hier om een grotere versie van deze figuur te bekijken.
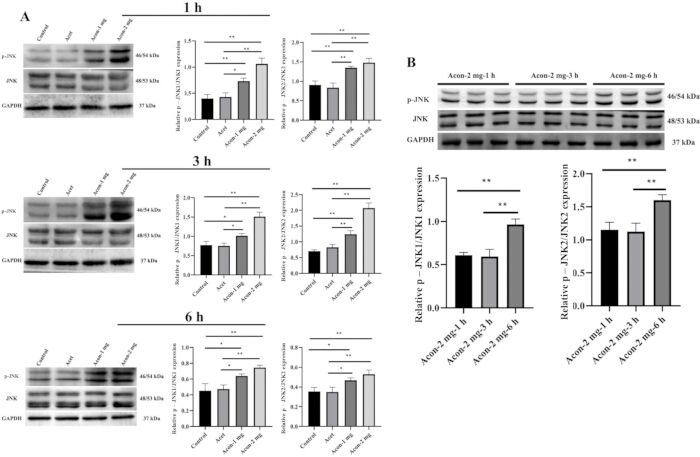
Figuur 5: Acon reguleert het fosforyleringsniveau van JNK op. (A–B) De expressieniveaus van p-JNK1/2 en JNK1/2 in rattenmyocardweefsels werden gedetecteerd door Western blotting. Gemiddelde ± SD, n = 3. Alle p-waarden zijn berekend met behulp van onafhankelijke eenrichtingsvariantieanalyse. *p < 0,05, *p < 0,01. Klik hier om een grotere versie van deze figuur te bekijken.
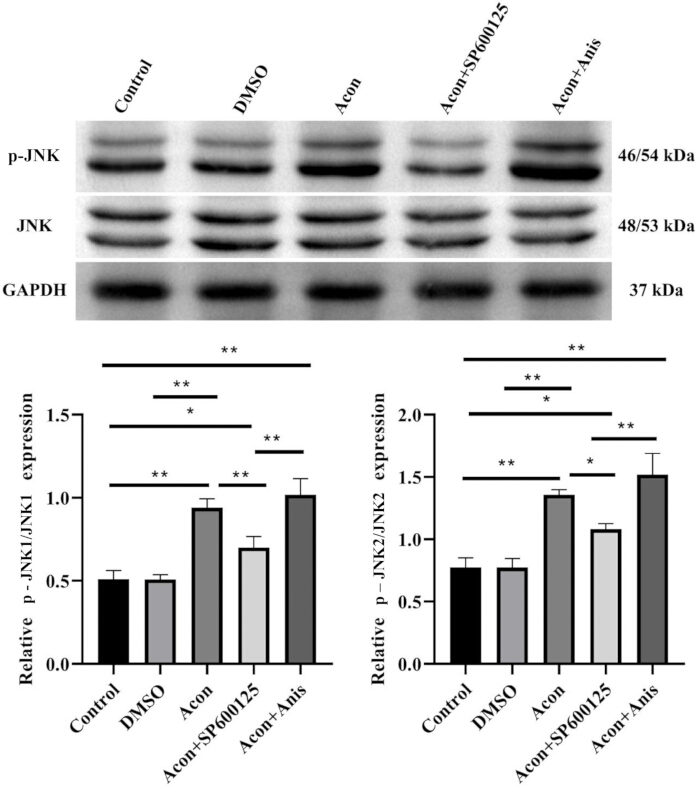
Figuur 6: JNK-remmer remt door Acon-geïnduceerde JNK-fosforylering. De expressieniveaus van p-JNK1/2 en JNK1/2 in rattenmyocardweefsels werden gedetecteerd door Western blotting. Gemiddelde ± SD, n = 3. Alle p-waarden zijn berekend met behulp van onafhankelijke eenrichtingsvariantieanalyse. *p < 0,05, **p < 0,01. Klik hier om een grotere versie van deze figuur te bekijken.
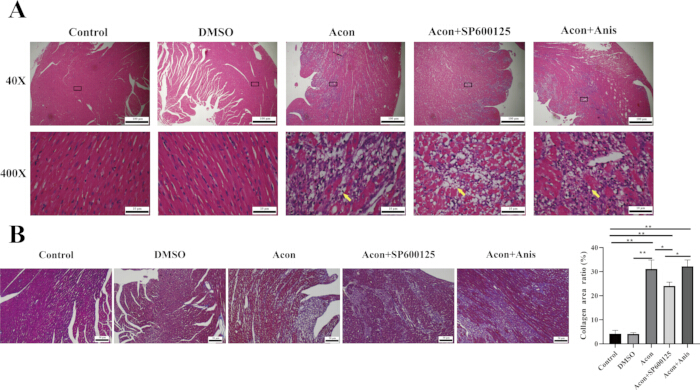
Figuur 7: JNK-remmer verlicht myocardpathologische schade en collageenkleuring bij ratten. (A) De pathologische veranderingen in het myocardweefsel van ratten werden gedetecteerd door HE-kleuring (de gele pijl toont de ronde vacuolen gevormd door beschadigde cardiomyocyten); schaal = 100 μm. (B) Collageenkleuring in het myocardweefsel van ratten werd vastgesteld door Masson-kleuring; schaal = 50 μm. Mean±SD, n = 3. Alle p-waarden zijn berekend met behulp van onafhankelijke eenrichtingsvariantieanalyse. *p < 0,05, **p < 0,01. 40 en 400x. Klik hier om een grotere versie van deze figuur te bekijken.
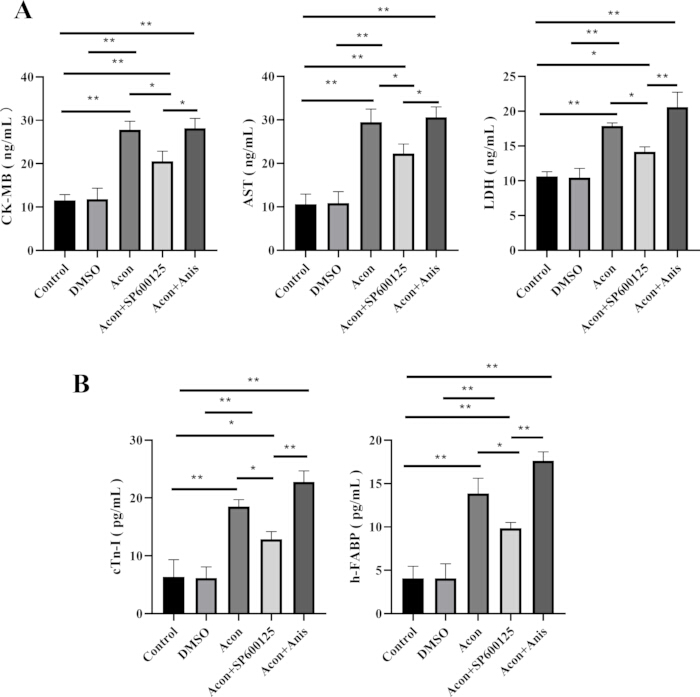
Figuur 8: JNK-remmer verlaagt de niveaus van CK-MB, AST, LDH, cTn-I en h-FABP in rattenserum. (A–B) De niveaus van CK-MB, AST, LDH, cTn-I en h-FABP-expressie werden gedetecteerd met ELISA-assaykits. Alle p-waarden zijn berekend met behulp van onafhankelijke eenrichtingsvariantieanalyse. Mean±SD, n = 3. *p < 0,05, **p < 0,01. Afkortingen; CK-MB = creatinekinase-MB; AST = aspartaataminotransferase; LDH = lactaatdehydrogenase; cTn-I = harttroponine I; H-FABP = harttype vetzuurbindend eiwit. Klik hier om een grotere versie van deze figuur te bekijken.
| Controle | Acet | Acon-1 mg | Acon-2 mg | |
| Ratten | 9 | 9 | 9 | 9 |
| Aantal rattensterfgevallen | 0 | 0 | 0 | 0 |
Tabel 1: Aantal rattendoden na 1 uur Acon-actie. 1 uur na toediening van Acon stierven er geen ratten in de controlegroep, Acet-groep, Acon-1 mg groep en Acon-2 mg groep. (Het aantal dieren dat uiteindelijk in de analyse per groep werd opgenomen was 3, en dode ratten werden niet vervangen).
| Controle | Acet | Acon-1 mg | Acon-2 mg | |
| Ratten | 9 | 9 | 9 | 9 |
| Aantal rattensterfgevallen | 0 | 0 | 0 | 0 |
Tabel 2: Aantal rattensterfgevallen na 3 uur Acon-actie. 3 uur na toediening van Acon stierven er geen ratten in de controlegroep, Acet-groep, Acon-1 mg groep en Acon-2 mg groep. (Het aantal dieren dat uiteindelijk in de analyse per groep werd opgenomen was 3, en dode ratten werden niet vervangen).
| Controle | Acet | Acon-1 mg | Acon-2 mg | |
| Ratten | 9 | 9 | 9 | 9 |
| Aantal rattensterfgevallen | 0 | 0 | 4 | 4 |
Tabel 3: Aantal rattendoden na 6 uur Acon-actie. 6 uur na toediening van Acon-diabetes stierven 4 van de 9 ratten in de Acon-1 mg groep, en 4 van de 9 ratten stierven in de Acon-2 mg groep. (Het aantal dieren dat uiteindelijk in de analyse per groep werd opgenomen was 3, en dode ratten werden niet vervangen).
| Controle | DMSO | Acon | Acon + SP600125 | Acon + Anis | |
| Ratten | 9 | 9 | 9 | 9 | 9 |
| Aantal rattensterfgevallen | 0 | 0 | 3 | 1 | 3 |
Tabel 4: Aantal rattendoden na Anis en SP600125 actie. Het aantal rattensterfgevallen varieerde tussen verschillende behandelgroepen: in de Acon-2 mg-groep stierven 3 van de 9 ratten; in de Acon+SP600125 groep stierf 1 op de 9 ratten; en in de Acon + Anis-groep stierven 3 van de 9 ratten. (Het aantal dieren dat uiteindelijk in de analyse per groep werd opgenomen was 3, en dode ratten werden niet vervangen).
| Groep | Hartgewicht (g) |
| Controle | 0,71 ± 0,03 |
| Acet | 0,73 ± 0,02 |
| Acon-1 mg (1 uur) | 0,73 ± 0,06 |
| Acon-2 mg (1 uur) | 0,75 ± 0,02 |
| Acon-1 mg (3 uur) | 0,71 ± 0,04 |
| Acon-2 mg (3 uur) | 0,77 ± 0,03 |
| Acon-1mg (6 uur) | 0,72 ± 0,03 |
| Acon-2 mg (6 uur) | 0,77 ± 0,02 |
| DMSO | 0,70 ± 0,03 |
| Acon + SP600125 | 0,74 ± 0,03 |
| Acon + Anis | 0,75 ± 0,04 |
Tabel 5: Het hartgewicht van ratten. Er was geen significant verschil in hartgewicht tussen de groepen.
| Ligand | JNK1 | JNK2 |
| Acon | -7,8 Kcal/mol | -8,41 Kcal/mol |
Tabel 6: Resultaten van de moleculaire koppelingsstudies. De koppelscores tussen Acon en JNK1 zijn -7,8 Kcal/mol, en de koppelscores tussen Acon en JNK2 zijn -8,41 Kcal/mol.
Aanvullende Figuur 1: Afbeelding van een elektrocardiogram van aritmie bij ratten (na 1 uur Acon-werking). Van boven naar beneden: de controlegroep, de Acet-groep, de Acon-1 mg-groep en de Acon-2 mg-groep. Typen hartritmestoornissen bij Acon-1mg-A-gavage en Acon-2 mg-A-gavage (in volgorde van hartritmestoornis van boven naar beneden): voortijdige ventrikelcontracties; voortijdige ventrikelbigeminie; voortijdige ventriculaire triplet; korte ventrikeltachycardie met korte burst; monomorf ventriculair hartslag tachycardie; Bidirectionele ventrikeltachycardie. Acon-2 mg-A-gavage: Bidirectionele ventrikeltachycardie. Afkortingen; B-gavage = Voor Acon gavage; A-gavage = Na Acon gavage. Klik hier om dit bestand te downloaden.
Aanvullende Figuur 2: Illustratie van een elektrocardiogram van aritmie bij ratten (na 3 uur aconwerking). Van boven naar beneden: de controlegroep, de Acet-groep, de Acon-1 mg-groep en de Acon-2 mg-groep. Typen hartritmestoornissen bij Acon-1mg-A-gavage en Acon-2 mg-A-gavage (in volgorde van hartritmestoornis van boven naar beneden): Voortijdige ventrikelcontracties; korte uitbarstingen van ventrikeltachycardie; Bidirectionele ventrikeltachycardie. Acon-2 mg-A-gavage: Voortijdige ventrikelcontracties; Bidirectionele ventrikeltachycardie. Afkortingen; B-gavage = Voor Acon gavage; A-gavage = Na Acon gavage. Klik hier om dit bestand te downloaden.
Aanvullende figuur 3: Acon bevordert myocardschade en collageenkleuring na 1 uur ACON-werking. (A) De pathologische veranderingen in het myocardweefsel van ratten werden gedetecteerd door HE-kleuring (Opmerking: de gele pijl toont de ronde vacuolen gevormd door beschadigde cardiomyocyten); schaal = 100 μm. (B) Fibrose in rattenmyocardweefsel werd vastgesteld door Masson-kleuring; schaal = 50 μm. Gemiddelde ± SD, n = 3. Alle p-waarden zijn berekend met behulp van onafhankelijke eenrichtingsvariantieanalyse. *p < 0,05, **p < 0,01, 40x en 400x. Klik hier om dit bestand te downloaden.
Aanvullende figuur 4: Acon bevordert myocardschade en collageenkleuring na 3 uur Acon-werking. (A) De pathologische veranderingen in het myocardweefsel van ratten werden gedetecteerd door HE-kleuring (de gele pijl toont de ronde vacuolen gevormd door beschadigde cardiomyocyten); schaal = 100 μm. (B) Collageenkleuring in het myocardweefsel van ratten werd vastgesteld door Masson-kleuring; schaal = 50 μm. Gemiddelde ± SD, n = 3. Alle p-waarden zijn berekend met behulp van onafhankelijke eenrichtingsvariantieanalyse. *p < 0,05, **p < 0,01. 40x en 400x. Klik hier om dit bestand te downloaden.
Discussie
Acon kan hartritmestoornissen en myocardschade veroorzaken; de onderliggende mechanismen van door Acon-geïnduceerde myocardschade blijven echter onduidelijk. In deze studie werd met succes een rattenmodel van acute Aconvergiftiging met myocardschade opgebouwd. Deze resultaten toonden aan dat activatie van de JNK-signaalweg een belangrijk nastroommechanisme kan zijn bij myocardschade veroorzaakt door acute Acon-vergiftiging. Specifiek waren de fosforyleringsniveaus van JNK1/2 significant verhoogd bij ratten met door Acon-geïnduceerde hartritmestoornissen en myocardschade. Bovendien keerde de remming van de JNK-route gedeeltelijk de myocardschade die was veroorzaakt door acute Acon-vergiftiging om. Deze bevindingen suggereren dat activatie van de JNK-route een belangrijke rol speelt in de pathogenese van door Aconitine veroorzaakte myocardschade.
De belangrijkste doodsoorzaak door acute Acon-vergiftiging is cardiotoxiciteit. Eerdere studies hebben aangetoond dat na Acon-behandeling de myocardvezels bij ratten degenereerd en ongeordend raakten, de nucleaire kleuring verdiepte, neutrofieleninfiltratie plaatsvond en ronde vacuolenverschenen op 28. Het is consistent met de onderzoeksresultaten. De HE-kleuring toonde aan dat het myocardweefsel in de met Acon behandelde groep pathologische veranderingen vertoonde, waaronder een verstoorde opbouw van de spierbundels, verbreding van spieropeningen en ruptuur van spiervezels. Daarnaast worden onder normale omstandigheden de hartenzymen CK-MB, AST, LDH en harteiwitten cTn-I en h-FABP in zeer kleine hoeveelheden in het serum29 aangetroffen. Wanneer myocardcellen beschadigd raken, worden deze markers in grote hoeveelheden in het bloed vrijgegeven:30, 31, 32, 33.
De resultaten van deze studie tonen aan dat CK-MB, AST, LDH, cTn-I en h-FABP in het veneuze serum van ratten in de Acon-gavagegroep bij elk observatiemoment in verschillende mate toenamen. Het expressieniveau is het hoogst na 6 uur in de intragastrische toediening. Deze bevinding komt overeen met eerdere studies34. Ze ontdekten dat Acon schade veroorzaakte aan de H9C2-cardiomyocyten van ratten en verhoogde AST-niveaus. Eerdere studies gebruikten Acon om myocardschade bij ratten op te wekken en zo de effecten van antidota op myocardschade te bestuderen35. Ze ontdekten dat de niveaus van LDH en CK-MB in het serum van ratten met myocardschade verhoogd waren. Kortom, de experimentele resultaten van de gewrichtsdetectie van myocardschademarkers tonen aan dat het ratmodel van myocardschade veroorzaakt door acute Aconvergiftiging succesvol kan worden vastgesteld 1, 3 en 6 uur na intragastrische toediening van 1–2 mg/kg Acon. Het modelleereffect van 2 mg/kg Acon na intragastrische toediening gedurende 6 uur is het beste, wat voldoet aan de eisen van latere experimenten.
Studies hebben aangetoond dat het effect van Acon op Na+ en Ca2+ ionkanalen leidt tot een toename van de intracellulaire calciumionconcentratie, wat de P38-MAPK signaalroute verder activeert en vervolgens de JNK-cascade reactie 36,37,38 activeert. JNK-activatie bevordert myocardschade39,40. Dit komt overeen met de resultaten van dit experiment. In deze studie ontdekten we dat Acon de JNK1/2-fosforylering in cardiomyocyten bevorderde en de JNK-signaalroute activeerde. Dit suggereert dat JNK-activatie een downstream signaalrespons kan zijn die bijdraagt aan door Aconitine veroorzaakte myocardschade. De moleculaire en farmacokinetische mechanismen die ten grondslag liggen aan de stimulatie van JNK1/2-fosforylering door Acon vereisen echter verder onderzoek.
Studies hebben aangetoond dat wanneer een grote hoeveelheid JNK1/2 wordt gefosforyleerd, de JNK-signaalweg wordt geactiveerd, wat op zijn beurt de ongecontroleerde expressie van genen in de kern van cardiomyocyten bemiddelt en de celcyclus verstoort. Remming van het JNK-signaalpad kan myocardschade verlichten41,42. In de HE-resultaten kan de JNK-route-remmer SP600125 de pathologische veranderingen in myocardweefsel die door Acon worden geïnduceerd aanzienlijk verminderen. Eerdere studies toonden aan dat in een rattenmodel van een acuut myocardinfarct geïnduceerd door coronaire arterieligatatie, blauw gekleurde collageenvezels en collageenafzetting in myocardweefsel duidelijk toenamen, vergezeld van activatie van de JNK-signaalroute. Behandeling met traditionele Chinese medicijngranules verminderde de afzetting van myocardcollageen door remming van de JNK-signaalweg 43,44.
Bij ratten met diabetisch myocardletsel waren het collageenvezelgehalte (blauwe kleuring) en de collageenvolumefractie (CVF) significant verhoogd. Tegelijkertijd werd het JNK-signaalpad geactiveerd. Laag-dosis ethanol is gerapporteerd als remmend voor de activatie van de JNK-route, waardoor de toename van collageenvezelafzetting en CVF in het myocardweefselvan ratten 45 wordt verminderd. In de huidige studie gaf moleculaire koppelingsanalyse aan dat Aconitine mogelijk interageert met JNK1 en JNK2 via meerdere niet-covalente interacties; Deze resultaten moeten echter als ondersteunend bewijs worden beschouwd en vormen geen direct bewijs van fysiologische binding. Bovendien toonden in vivo experimenten aan dat Acon, als stressor, de JNK1/2-fosforylering upreguleerde, waardoor de JNK-signaalroute werd geactiveerd. Deze activatie werd geassocieerd met verhoogde collageenafzetting (blauwe kleuring) en verhoogde CVF in het myocardweefsel van ratten, wat uiteindelijk leidde tot myocardschade. De toevoeging van de JNK-remmer SP600125 echter de toxische effecten van Acon aanzienlijk geremd, waardoor de toename van de CVF-waarde van myocardweefsel werd verminderd. Myocardschade verstoort de integriteit van het normale myocytembraan van het hart en verlies van intracellulaire inhoud in de extracellulaire ruimte, wat zich uitt in verhoogde niveaus van myocardenzymen in het bloed46,47. Deze resultaten toonden aan dat de toename van het myocardenzymgehalte in rattenbloed ook aangaf dat Acon myocardschade veroorzaakte. Tegelijkertijd remden JNK-remmers de afgifte van myocardenzymen, wat suggereert dat JNK-remmers de door Acon veroorzaakte myocardschade gedeeltelijk kunnen verlichten.
Verschillende beperkingen van deze studie moeten worden erkend. Ten eerste was de steekproefgrootte op elk tijdstip relatief klein (n = 3 per groep), wat de statistische kracht van de analyses kan beperken, en er werd geen formele krachtanalyse uitgevoerd vóór de bepaling van de steekproefgrootte. Daarnaast werd slechts één Aconitine-dosisbereik en relatief korte observatieperiodes (1–6 uur) geëvalueerd, wat de beoordeling van langetermijnpathologische veranderingen en dosisresponsrelaties beperkte. Ten tweede, hoewel verhoogde JNK1/2-fosforylering en farmacologische interventie de betrokkenheid van de JNK-signaalroute bij door Aconitine veroorzaakte myocardschade suggereerden, zijn de upstream-mechanismen die Aconitine-blootstelling koppelen aan JNK-activatie niet volledig onderzocht. Aconitine is bekend om het voornamelijk invloed te hebben op spanningsgestuurde Na⁺-kanalen en intracellulaire Ca2⁺-homeostase, wat kan bijdragen aan downstream JNK-activatie. Gerelateerde signaalgebeurtenissen, waaronder oxidatieve stress en calciumoverbelasting, werden echter niet direct onderzocht in de huidige studie. Ten derde leverde de moleculaire koppelingsanalyse slechts ondersteunend bewijs voor mogelijke interacties tussen Aconitine en JNK1/2 en gaf geen directe fysiologische binding weer. Er werd geen aanvullende experimentele validatie uitgevoerd, zoals oppervlakteplasmonresonantie of pull-down assays. Bovendien werden alleen JNK1/2 onderzocht, terwijl de potentiële rol van JNK3 bij door Aconitine veroorzaakte cardiotoxiciteit onduidelijk blijft. Ten slotte werd er geen elektrocardiografische beoordeling uitgevoerd na SP600125 of anisine-interventie. Daarom vereist de vraag of de regulatie van de JNK-route direct invloed heeft op door Aconitine veroorzaakte ventriculaire aritmieën.
Samenvattend activeert Acon de JNK-signaalroute, zoals blijkt uit verhoogde fosforylering van JNK1/2, wat kan bijdragen aan myocardschade, zoals blijkt uit een verhoogde collageenafzetting en verhoogde hartenzymafgifte in het myocardweefsel van ratten. Aangezien Aconitine-geïnduceerde cardiotoxiciteit meerdere upstream-gebeurtenissen omvat, waaronder activatie van het Na⁺-kanaal, Ca2⁺-overbelasting en oxidatieve stress, kan activatie van het JNK-pad een belangrijke downstream-signaalgebeurtenis zijn die bijdraagt aan myocardschade.
Openbaarmakingen
Dit manuscript is eerder als preprint op Research Square geplaatst voordat het door peer review en publicatie werd overwogen. De preprint is beschikbaar op: https://doi.org/10.21203/rs.3.rs-4218950/v148. De auteurs verklaren geen concurrerende belangen.
Dankbetuigingen
Dit werk werd ondersteund door de National Natural Science Foundation of China (82260387).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 4% Paraformaldehyde | Wuhan Service-bio Co., Ltd. | HJ203501 | Weefselfixatie |
| Aconitine (Acon) | Chengdu DeSiTe Biological Technology Co., Ltd. | drk-0335-960330 | Giftige verbinding voor intubatiemodel |
| Aniline Blue Solution | Beijing Solarbio Co., Ltd. | G1350 | Masson-kleuring |
| Anisomycin (Anis) | MedChemExpress Co., Ltd. | 153154 | JNK-routeactivator/controle |
| AST ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E13023r | Hartenzymdetectie |
| AutoDock Vina | Open-source | N/A | Moleculair docking |
| BCA Protein Assay Kit | Sangon Biotech (Shanghai, China) | Niet gespecificeerd | Eiwitquantificering |
| Centrifuge | Dongguan cnzcn Co., Ltd. | TD5M-WS | 1000 × g centrifugeren |
| Chem3D Software | PerkinElmer | N/A | Ligand energieminimalisatie |
| CK-MB ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E14403r | Hartenzymdetectie |
| cTn-I ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E08594r | Harteiwitdetectie |
| Disposable Venous Blood Collection Needle | KINDLY Co., Ltd. | https://www.kdlchina.cn/specimen-collection/220.html | Bloedverzameling |
| Enhanced Chemiluminescence (ECL) Reagent | Millipore Co., Ltd. | 21302A4 | Western blot visualisatie |
| Eosin | Beijing Solarbio Co., Ltd. | 20200905 | H&E-kleuring |
| GraphPad Prism 8 | GraphPad Software, Inc. | N/A | Statistische analyse |
| Hematoxyline | Wuhan Service-bio Co., Ltd. | CR2203066 | H&E-kleuring |
| h-FABP ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E16184r | Harteiwitdetectie |
| ImageJ Software | National Institutes of Health (NIH) | N/A | Western blot-kwantificering |
| JNK1/2 Primary Antibody | HuaAn Biotechnology (Hangzhou, China) | ET1609-42 | Western blot-antilichaam |
| LDH ELISA Kit | Shanghai Enzyme-Linked Biotechnology | ml003416 | Hartenzymdetectie |
| Masson Blue Solution | Beijing Solarbio Co., Ltd. | 20220303 | Masson-kleuring |
| Microplate Reader | Thermo Fisher Scientific | ME001000C | ELISA OD-meting (450 nm) |
| Optical Microscope (Olympus C33) | Olympus (Tokyo, Japan) | C33 | Histologisch beeld |
| Paraffinewas | Leica Co., Ltd. | 2110068 | Weefselinbedding |
| PBST Buffer | Meilunbio Co., Ltd. | MA0015-Apr-27G2 | Wasbuffer |
| p-JNK1/2 Primary Antibody | HuaAn Biotechnology (Hangzhou, China) | ET1601-28 | Gefosforyleerd JNK-antilichaam |
| Protein Data Bank (PDB) | RCSB | https://www.rcsb.org/ | Eiwitstructuurbron |
| Protein Extraction Kit | Sangon Biotech (Shanghai, China) | C510003-0050 | Eiwitextractie uit weefsel |
| PubChem Database | NIH | https://pubchem.ncbi.nlm.nih.gov | Ligandstructuurbron |
| PVDF Membrane | Millipore Co., Ltd. | R1PB81493 | Western blot-overdrachtsmembraan |
| PyMOL | Schrödinger, Inc. | https://pymol.org/ | Dockingvisualisatie |
| SDS-PAGE Gel (10%) | Beijing Solarbio Co., Ltd. | 817X031 | Eiwitelektroforese |
| Skimmed Milk Powder | Beijing Solarbio Co., Ltd. | http://www.solarbio-hd.com/solarbiohd-Products-23261665/ | Blockingreagens (5%) |
| Sodium Pentobarbital | Thermo Fisher Scientific Inc. | 57-33-0 | Verdoving voor dierproeven |
| SP600125 (JNK-remmer) | MedChemExpress Co., Ltd. | 112518 | JNK-routeremmer |
| SPF Animal Housing Facility | Kunming Medical University | N/A | Dierverblijfsomstandigheden |
| Sprague-Dawley Rats (mannetje, 2 maanden, ~230 g) | Beijing Huafukang Biological Technology Co., Ltd. | http://www.hfkbio.com/ | Experimentele dieren (n = 51) |
| Weigert Iron Hematoxylin | Guangzhou Wexis Co., Ltd. | 18092001 | Masson-kleuring |
| Xyleen | Tianjin Tjhxsj Co., Ltd. | 20220208 | Weefselklaring |