Dit protocol beschrijft de recombinante productie en zuivering van hydrofobine SC16 uit Escherichia coli en biedt fluorescentie-gebaseerde assays om de zelfassemblage te monitoren.
Methodenartikel
Recombinante productie en zuivering van hydrofobine SC16 uit Escherichia coli en monitoring van zelfassemblage met fluorescentietests
In dit artikel
Samenvatting
Samenvatting
Hydrofobines zijn kleine amfipathische eiwitten die zichzelf assembleren op hydrofobe–hydrofiele grensvlakken om stabiele, waterdichte coatings over schimmelsporen te vormen. Klasse I hydrofobines vormen bijzonder stabiele "rodlets" die geordende amyloïde-achtige structuren bevatten die oppervlakken bedekken. Deze bijzondere oppervlaktechemie geeft hen potentiële toepassingen in geneesmiddelafgifte, schuimstabilisatie, emulgering en oppervlaktemodificatie. Om hydrofobines te produceren, is er behoefte aan uitgebreide, hoogproductieve protocollen van eenvoudige expressiesystemen. Bovendien is het noodzakelijk om eenvoudige methoden te bieden om de hydrofobinefunctie na recombinantproductie en zuivering te karakteriseren. Hier beschrijven we protocollen voor de productie en karakterisering van SC16, een klasse IB hydrofobine geproduceerd door de schimmel Schizophyllum commune, die recombinant kan worden tot expressie gebracht in Escherichia coli en vervolgens kan worden gezuiverd onder niet-reducerende, natuurlijke omstandigheden. Dit omvat de transformatie van een expressieplasmide dat codeert voor SC16, gefuseerd met een N-terminal fusie-eiwit in E. coli, inductie van eiwitexpressie, cellyse onder natuurlijke omstandigheden, affiniteitschromatografie en protease-splitsing om het hydrofobine te isoleren bij opbrengsten van ≥5 mg. De zelfassemblage van SC16 kan vervolgens worden gemonitord met eindpunt- of kinetische fluorescentie-gebaseerde assays met thioflavine T. Beide assays omvatten incubatie van SC16 met langdurige menging om zelfassemblage bij lucht-watergrensen te bevorderen en worden gemonitord met fluorescentiemetingen. Samen bieden deze benaderingen vereenvoudigde protocollen voor het zuiveren van SC16 en het monitoren van de zelfassemblage, en kunnen ze worden uitgebreid naar andere systemen met vergelijkbare eiwitzelfassemblage.
Inleiding
Hydrofobines zijn oppervlakte-actieve amfipathische eiwitten die door schimmels worden uitgescheiden en zichzelf assembleren op hydrofobe–hydrofiele grensvlakken (bijvoorbeeld lucht–water-grensvlakken op schimmelstructuren). In de natuur zijn hun taken het bedekken van sporen en vruchtlichamen 1,2, waardoor ze waterbestendig worden, wateroverlast in luchtkanalen voorkomen en verspreiding vergemakkelijken1. Vanwege hun ongebruikelijke oppervlaktechemie hebben hydrofobines diverse industriële toepassingen, waaronder coatings om de biocompatibiliteit van implantaten en protheseste verhogen 3,4,5, biocompatibele oppervlakteactieve stoffen voor geneesmiddelafgifte en medische behandelingen 6,7,8,9,10, en kandidaten voor nanoplastic capture11.
Hydrofobines kunnen worden onderverdeeld in klasse I en klasse II, die beide zichzelf assembleren op hydrofobe–hydrofiele grensvlakken, waaronder lucht–water, olie–water 12,13,14 en plastic–water 15,16,17 grensvlakken. Een bepalend kenmerk van klasse I hydrofobines is dat ze zeer stabiele "rodlet"-structuren vormen op grensvlakken, met geordende amyloïde-achtige (β-sheet-rich) kenmerken18, waardoor ze bijzonder geschikt zijn voor toepassingen waarbij oppervlaktemodificatie of bescherming nodig is. Daarentegen vormen klasse II hydrofobines geen amyloïde-achtige structuren, maar vormen ze films die gemakkelijk gedissocieerdkunnen worden 1,18. Interessant genoeg bestaat er ook een derde klasse hydrofobines, met structurele kenmerken behouden uit klasse I en klasseII 18,19. Vanwege deze verschillen is het monitoren van de zelfassemblage van hydrofobine belangrijk voor classificatie en voor het beoordelen van de juiste vouwing en functie van recombinant geproduceerde hydrofobines.
De zelfassemblage van hydrofobines kan gemakkelijk worden gemonitord met fluorometrische methoden met amyloïdebindende kleurstoffen zoals thioflavine T (ThT), die binden aan cross-β structuren die aanwezig zijn in amyloïden20. ThT bevat een enkele covalente binding die twee aromatische ringen scheidt die normaal vrij draaien. Bij binding aan cross-β structuren wordt deze rotatie beperkt, wat resulteert in fluorescentie20. Vanwege zijn selectieve fluorescentie wordt ThT veel gebruikt om hydrofobine-zelfassemblage te monitoren bij lucht-watergrensen 21,22,23,24,25,26,27,28. ThT-assays leveren tijdsafhankelijke kinetische informatie over hydrofobine-zelfassemblage 23,27,28, wat voordelen biedt ten opzichte van technieken zoals atoomkrachtmicroscopie (AFM) en contacthoekmetingen, die een lagere doorvoer hebben en minder geschikt zijn voor tijdsafhankelijke analyse. Daarnaast vertoont ThT een sterke fluorescentieversterking bij binding van kruis-β structuren, met minimale fluorescentie in zijn vrije vorm20. Deze eigenschappen maken ThT-assays eenvoudige en gevoelige methoden voor het monitoren van hydrophobine-zelfassemblage, die kunnen worden aangevuld met intensievere structurele technieken.
Gezien de diverse toepassingen van hydrofobines is er behoefte aan toegankelijke protocollen om hun zelfassemblage te monitoren. Specifiek biedt het huidige protocol een kader voor het optimaliseren van de zuivering en functionele karakterisering van recombinante hydrofobines. Eerder beschreven Morris en Sunde (2013) protocollen voor recombinante expressie in Escherichia coli, zuivering en ThT-gebaseerde monitoring van hydrofobine-zelfassemblage21. Dit werk zet deze methoden verder door een aangepaste procedure te beschrijven voor het zuiveren van hydrofobine SC16. SC16 is een klasse I hydrofobine (uit Schizophyllum commune) die gemakkelijk kan worden gezuiverd van E. coli zonder denaturatie, reductie of heroxidatie van disulfidebindingen. Het resulterende SC16-eiwit is functioneel, zoals aangetoond door eindpunt- en kinetische ThT-gebaseerde zelfassemblage-assays die de vorming van staafjes monitoren. Het doel van dit artikel is om een uitgebreid en gestroomlijnd protocol te beschrijven voor de recombinante productie, zuivering en functionele ThT-gebaseerde assays van de klasse IB hydrofobine SC16.
Protocol
Deze studie omvat geen menselijke deelnemers, gewervelde dieren of weefselmonsters. Daarom was er geen ethische goedkeuring vereist.
1. Expressie van hydrofobine SC16 in E. coli
- Transformeer SHuffle T7 Express E. coli-cellen door hitteshock bij 42°C gedurende 45 seconden met behulp van een pET-21-expressieplasmide die codeert voor een hexahistidine-gelabeld B1-domein van eiwit G dat is gefuseerd met SC16 (H-GB1-SC16).
OPMERKING: SHuffle T7 Express-cellen zijn geselecteerd vanwege hun vermogen om correcte vorming van disulfidebindingente bevorderen 29. Het H-GB1-SC16-plasmide kan worden gegenereerd door restrictie-enzymklonering zoals eerder beschreven30. - Inoculeer 2 mL lysogeniebouillon (LB) met 100 μg mL−1 ampicilline met één kolonie. Incubeer 's nachts bij 37°C met schudden.
- Inoculeer 1 L LB (in een 2,8 L gebaffelde rondbodem kolf) met 1 ml van de nachtkweek. Laat de cultuur groeien bij 37°C met schudden (~120–135 rpm, cirkelvormige baan van 19 mm) totdat de optische dichtheid bij 600 nm 0,6 ± 0,1 bereikt.
- Voeg isopropyl-β-D-1-thiogalactopyranoside toe aan een uiteindelijke concentratie van 0,5 mM om expressie van H-GB1-SC16 te induceren. Incubeer een nacht bij 20°C met schudden.
OPMERKING: Deze temperatuur werd gekozen om het risico op insluitingslichaamvorming en onjuiste vouwingte verminderen. - Oogst de cellen door centrifugatie op 4000 × g gedurende 20 minuten. Giet het supernatant eraf.
PAUZEPUNT: Bewaar de celpellet tot 3 weken bij −20°C voordat je doorgaat met zuivering. Vermijd herhaalde vries-dooicycli.
2. Zuivering van hydrofobine SC16
- Sussief de celpellet opnieuw in 30 mL lysisbuffer (20 mM tris(hydroxymethyl)aminomethaan [Tris], pH 8, 250 mM NaCl).
- Lys de cellen door de suspensie 15 minuten te incuberen in een waterbad van 80°C. Meng voorzichtig elke 5 minuten tijdens de incubatie.
OPMERKING: Deze stap is afhankelijk van SC16-warmtestabiliteit en is mogelijk niet geschikt voor andere eiwitten.
VOORZICHTIG: Gebruik hittebestendige handschoenen bij het hanteren van slangen en waterbaden bij 80°C. Vermijd het spetteren van hete vloeistof tijdens het mengen en verwijderen van de buis. - Centrifugeer het cellysaat op 25.000 × g gedurende 20 minuten bij 4°C. Laad het supernatant op een zwaartekrachtkolom met 2–3 mL Ni2+-geladen immobiliseerde metaalaffiniteitschromatografie (IMAC) hars.
- Was de kolom met een lysisbuffer die 30 mM imidazol bevat. Eliut eiwit met 10 mL lysisbuffer met 300 mM imidazol.
- Dialyseer de geëlueerde fractie tegen 1 L buffer met Tris (pH 8; 20 mM) en NaCl (50 mM) gedurende 3 uur met 3500 kDa moleculair gewicht cutoff dialysebuis, roerend bij 100 rpm.
OPMERKING: De roersnelheid tijdens dialyse kan variëren afhankelijk van de opstelling (bijvoorbeeld het volume van de buis en de geometrie van de beker). Roer op het minimale toerental dat nodig is om een zachte rotatie van de dialysezak te induceren. - Voeg trombineprotease (20 U mg−1 fusie-eiwit) direct toe aan de dialysezak (10 mL totaal reactievolume) om het fusie-eiwit te splijten. Vervang de buffer.
PAUZEPUNT: Na toevoeging van proteases en buffervervanging blijft de dialyse 's nachts doorgaan bij 4°C. Hervat de zuivering de volgende dag. Controleer de voltooiing van de splijting met SDS-PAGE (verwacht verdwijning van de ~18 kDa-band en het verschijnen van banden bij ~10 en ~8 kDa). - Laad het gedialyseerde monster opnieuw op de Ni2⁺-geladen IMAC-kolom. Spoel en elueer met ongeveer 12 ml buffer elk met respectievelijk 30 mM en 300 mM imidazol.
- Analyseer verzamelde fracties door natriumdodecylsulfaat–polyacrylamide gelelektroforese (SDS-PAGE) onder reducerende omstandigheden (met β-mercaptoethanol in de laadbuffer). Identificeer SC16 aan de hand van de aanwezigheid van een band in de wasfractie bij het verwachte molecuulgewicht (~10 kDa). Dialyseer de washfractie die SC16 bevat volledig tegen 1 L buffer met Tris (pH 8; 20 mM) en NaCl (50 mM) gedurende 3 uur om resterende imidazol te verwijderen.
OPMERKING: SC16 wordt typisch gedetecteerd in de wasfractie, terwijl H-GB1 typisch verrijkt is in het eluaat. Er kan ook een kleine hoeveelheid rest-SC16 aanwezig zijn in het eluaat. - Kwantificeer SC16 met een methode naar keuze (bijv. aminozuuranalyse met high-performance vloeistofchromatografie, Bradford-assay of absorptie bij 280 nm). Met deze methode worden opbrengsten van ≥5 mg SC16 per liter kweek verwacht.
OPMERKING: Onze groep kwantificeert SC16 routinematig door absorptie bij 280 nm met een voorspelde extinctiecoëfficiënt van 3480 M−1 cm−1 32 . Dit is de voorkeursmethode voor SC16-kwantificatie vanwege de eenvoud. - Verzamel monsters tijdens de zuivering voor SDS-PAGE analyse.
3. Eindpuntfluorescentietest van SC16 zelfassemblage
- Bereid driedubbele reactiemengsels voor die elk 50 μg mL−1 SC16, 50 mM NaCl en 20 mM bevatten van 2-(N-morfolino)ethanesulfonzuur (MES), Tris en natriumfosfaat. Bereid vooraf een voorraadbuffer voor met MES, Tris en natriumfosfaat, aangepast tot een uiteindelijke pH van 6,5 door druppelgewijze toevoeging van geconcentreerd HCl of 1 M NaOH. Voeg direct eiwit en NaCl toe voordat je met de assay begint.
OPMERKING: Besturing kan in deze stap worden voorbereid. Neem bijvoorbeeld positieve controles met SC16 mee die geen end-over-end rotatie ondergaan en negatieve controles die alleen buffer bevatten. SC16-concentraties van 25–100 μg mL−1 zijn getest, met resultaten die het meest consistent zijn bij 50 μg mL−1. Optimaliseer deze parameter indien nodig. - Breng de mengsels over in buizen van 2–5 mL.
OPMERKING: Zorg ervoor dat de monsterbuis tot 50% gevuld is om bij inversie een juiste menging mogelijk te maken. - Draai de buizen van kop tot eind op 20 toeren per minuut gedurende 2 uur. Breng 100 μL van elk monster over in een zwarte plaat met een ondoorzichtige bodem van 96 putjes met ronde, schoorsteenachtige putten.
- Voeg gefilterd ThT toe aan een uiteindelijke concentratie van 20 μM aan alle monsters.
- Stel de microplaatlezer in op excitatie- en emissiegolflengten binnen het juiste bereik voor ThT-fluorescentie 33,34,35,36. Stel de versterking in op 55 en integratietijd op 20 μs. Meet de fluorescentieintensiteit voor elk monster direct na de rotatieperiode van 2 uur.
OPMERKING: De gerapporteerde excitatie- en emissiemaxima van ThT zijn respectievelijk 450 nm en 490 nm37. Dit experiment gebruikte excitatie- en emissiewaarden van respectievelijk 438 en 494 nm, gebaseerd op de beschikbaarheid van optische filters. Een end-over-end rotatie werd uitgevoerd met een gefabriceerd rotatieapparaat.
4. Kinetische fluorescentietest van SC16 zelfassemblage
- Bereid driedubbele reactiemengsels van 100 μL voor in een zwarte 96-well plaat.
- Neem 50 μg mL−1 SC16, 50 mM NaCl, 20 μM gefilterd ThT en 20 mM elk van MES, Tris en natriumfosfaat op. Bereid negatieve controles voor die alleen ThT bevatten en bufferen (zonder SC16).
- Pas de pH van de buffer (met Tris, MES en natriumfosfaat) aan naar 5,5, 6,5, 7,5 of 8,5 met geconcentreerd HCl of 1 M NaOH voordat SC16 en ThT worden toegevoegd. Het gemengde buffersysteem maakt pH-aanpassing mogelijk zonder de bufferidentiteit te veranderen.
- Plaats de plaat in de microplate-lezer.
- Stel excitatie- en emissiegolflengten in binnen het juiste bereik voor ThT-fluorescentie 33,34,35,36.
- Programmeer de lezer voor cyclische metingen elke 70 seconden.
- Inclusief 60 seconden orbitale schuddingen bij 432 rpm, gevolgd door een rustperiode van 10 seconden per cyclus.
- Stel de integratietijd in op 20 μs en de versterking op 55.
- Voer de test 120 cycli uit om fluorescentieveranderingen over 2 uur schudden te monitoren.
OPMERKING: Zorg ervoor dat orbitale schudding is geselecteerd; lineair schudden kan inconsistente of suboptimale zelfassemblageresultaten opleveren.
Resultaten
Figuur 1 toont een met Coomassie gekleurde SDS-PAGE gel die de zuivering van SC16 monitort. Codes vertegenwoordigen marker (M), vóór inductie (B), na inductie (A), oplosbare fractie (S), doorstroombeweging (F), wash (W), eluate (E) en gedialyseerde (D). In het eerste IMAC-eluaat komt een band met een geschatte molecuulmassa van ~18 kDa overeen met het H-GB1-SC16-eiwit vóór de trombinesplijting. Na het splijten met tromfine is er geen eiwit meer in de tweede IMAC flow-through fractie, en een ~10 kDa-band die overeenkomt met SC16 in de wash. In het tweede IMAC-eluaat is er wat residueel SC16 en een kleiner ~8 kDa-eiwit dat overeenkomt met H-GB1. Gezuiverde SC16 werd vervolgens gebruikt voor eindpunt- en kinetische zelfassemblage-assays. Deze resultaten bevestigen succesvolle zuivering van SC16, zoals blijkt uit de aanwezigheid van de verwachte molecuulgewichtsband en de scheiding van de H-GB1 fusiepartner na trombinesplitsing.
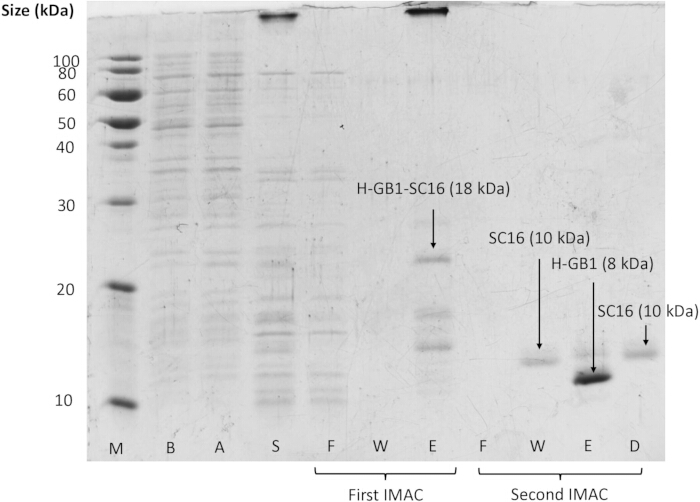
Figuur 1. SDS-PAGE-analyse van de zuivering van SC16 voor de eerste (voor trombinesplitsing) en tweede (na trombinesplitsing) IMAC-scheidingen. Een molecuulgewichtmarker (M) wordt getoond, samen met monsters die vóór inductie (B), na inductie (A), de cellysesupernatant (S), doorstroomfracties (F), wash (W) en eluate (E) fracties zijn, evenals het gedialyseerde monster (D). Klik hier om een grotere versie van deze figuur te bekijken.
De eindpunt-ThT-test van SC16-zelfassemblage, gepresenteerd in Tabel 1, toont een 11-voudige toename van de ThT-fluorescentieintensiteit na 2 uur benchtoprotatie vergeleken met eiwithoudende controles die niet werden geroteerd. Evenzo zien we geen significante verandering in fluorescentieintensiteit bij het roteren van buffermonsters. Deze toename van ThT-fluorescentie bij het agiteren van SC16 vertegenwoordigt de vorming van amyloïde-achtige β-sheets die indicatief zijn voor SC16 zelfassemblage24,25. Deze resultaten tonen aan dat de beschreven fluorescentie-gebaseerde assay SC16-zelfassemblage effectief monitort onder de geteste omstandigheden.
| Voorbeeld | ThT-fluorescentie (Tellen ± SD) |
| SC16 zonder rotatie | 2679 ± 177 |
| SC16 na de rotatie | 30315 ± 2141 |
| Puffer na rotatie | 665 ± 888 |
Tabel 1. ThT-fluorescentiemetingen werden verzameld na end-over-end rotatie van SC16-monsters. SC16 (50 μg mL−1) monsters werden ofwel geïncubeerd zonder te bewegen of 2 uur geroteerd. ThT (20 μM) werd toegevoegd vóór fluorescentiemetingen. Fluorescentie werd gemeten bij excitatie- en emissiegolflengten van respectievelijk 438 en 494 nm, en wordt gerapporteerd als ruwe tellingen. Waarden worden gepresenteerd als gemiddelde ± standaarddeviatie (SD).
De kinetische zelfassemblage-assay van SC16 wanneer deze enkele uren in verschillende buffers wordt geroerd, wordt weergegeven in Figuur 2. Typische S-vormige kinetische zelfassemblagecurves voor amyloïdfibrilleren omvatten karakteristieke vertraging, groei en plateauperiodes38. Voor SC16 wordt tijdens de eerste metingen geen substantiële vertraging waargenomen, hoewel dit gedrag is gedocumenteerd bij andere hydrofobines, zoals EAS21,23. Zelfassemblagecurves voor elke pH zijn vergelijkbaar, met sterke, positieve hellingen die overeenkomen met de vorming van staafjes. Na ongeveer 20 minuten onrust stabiliseert de fluorescentieintensiteit en neemt dan langzaam af. In controlemonsters zonder SC16 zijn er geen substantiële veranderingen in fluorescentie gedurende het experiment.
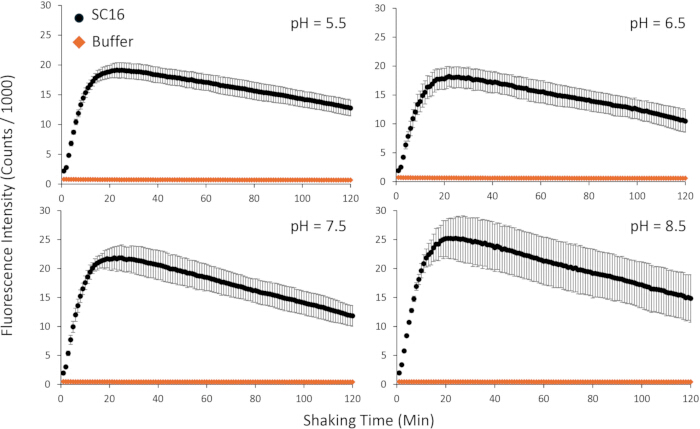
Figuur 2. Zelfassemblagecurves van SC16 gemeten met een kinetische ThT-fluorescentietest. SC16 werd bereid bij 50 μg mL−1 in een multicomponentbuffer met 20 μM ThT, 50 mM NaCl, 20 mM natriumfosfaat, 20 mM MES en 20 mM Tris. Metingen werden verricht na 60 seconden orbitale schudding en een rustperiode van 10 seconden. De x-as vertegenwoordigt de schudtijd (totaal 2 uur). Fluorescentie werd gemeten met excitatie- en emissiegolflengtes van respectievelijk 438 nm en 494 nm, en wordt gerapporteerd als tellingen × 10−3. Foutbalken geven standaarddeviatie aan (n = 3). De panelen komen overeen met pH 5,5 (linksboven), 6,5 (rechtsboven), 7,5 (linksonder) en 8,5 (rechtsonder). Klik hier om een grotere versie van deze figuur te bekijken.
Figuur 3 toont een voorbeeld van suboptimale resultaten voor de kinetische zelfassemblage-assay. In dit geval werd de assay uitgevoerd zoals beschreven in het protocolgedeelte, maar dan met een "lineaire" schudinstelling in plaats van de "orbitale" schudinstelling.
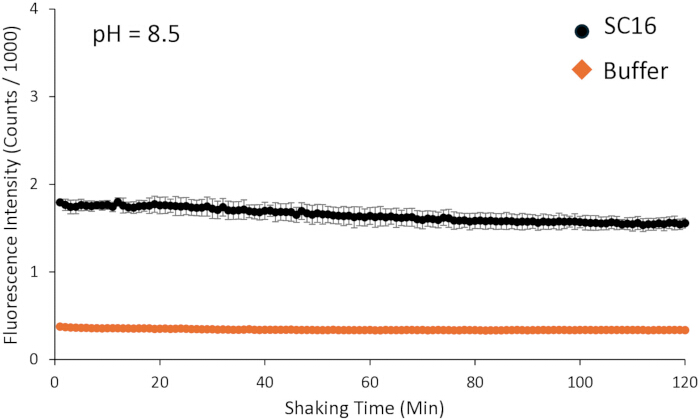
Figuur 3. Voorbeeld van suboptimale kinetische zelfassemblagegegevens van SC16 verkregen met de kinetische ThT-fluorescentie-assay. In dit geval werd het schudden uitgevoerd met een lineaire instelling in plaats van orbitale schudden. Monsters werden voorbereid zoals beschreven in Figuur 2. Metingen werden verricht na 60 seconden lineair schudden en een rustperiode van 10 seconden. De x-as vertegenwoordigt de schudtijd (totaal 2 uur). Fluorescentie werd gemeten met excitatie- en emissiegolflengtes van respectievelijk 438 nm en 494 nm, en wordt gerapporteerd als tellingen × 10−3. Foutbalken geven standaarddeviatie aan (n = 3). Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Hier vatten we protocollen samen voor de expressie en zuivering van de hydrofobine SC16, evenals voor laag- en hoge-doorvoer fluorescentie-assays van SC16-zelfassemblage, elk met eigen voor- en nadelen. Deze workflows kunnen worden toegepast op gerelateerde systemen om de zelfassemblage van eiwitten te monitoren. In dit protocol wordt warmte gebruikt om cellen te lyseren voorafgaand aan SC16-zuivering, in tegenstelling tot de meeste protocollen die meer traditionele methoden gebruiken om E. coli te lyseren. We hebben vastgesteld dat H-GB1-SC16 oplosbaar en warmtebestendig is tot 80°C, en dat warmtelyse dient als een eerste stap voor het opruimen van monsters door niet-hittestabiele proteasen en andere verontreinigende eiwitten in cel39 te precipiteren. SC16 vormt echter een speciaal geval, aangezien hydrofobines vaak onoplosbaar tot expressie komen in inclusielichamen 12,21,40. Wanneer uitgedrukt als inclusielichamen, zijn denatureringscondities doorgaans vereist, gevolgd door hervouwen volgens de gevestigde protocollen 21,40,41.
In dit protocol wordt SDS-PAGE gebruikt om de SC16-zuivering bij elke stap te evalueren, inclusief de celpellet voor en na inductie, de oplosbare fractie na cellyse en alle daaropvolgende kolomfracties. Dit wordt geïllustreerd in Figuur 1; echter, vergeleken met H-GB1 is de band die overeenkomt met SC16 relatief zwak. We hebben gemerkt dat het voor veel hydrofobines, waaronder SC16, een uitdagend is om een consistente en intense Coomassie-kleuring te bereiken. SC16 verschijnt typisch als een medium intensiteitsband wanneer β-mercaptoethanol wordt gebruikt als reducerend middel. In sommige gevallen kan zilverkleuring nodig zijn om hydrofobines duidelijker te kunnen zien.
Endpunt- en kinetische fluorescentie-assays kunnen worden gebruikt om SC16-zelfassemblage te monitoren. De eindpunt-ThT-test is voordelig omdat het een snelle, eenvoudige beoordeling van zelfassemblage biedt. Naast de toegenomen fluorescentie na 2 uur rotatie op de werkbank, gaat zelfassemblage vaak gepaard met zichtbare witte troebelheid in de reactiebuis. Deze test gebruikt een eenvoudige rotator op het werkbank voor het mengen, wat slijtage aan microplaatlezercomponenten minimaliseert. Uit onze ervaring is deze test relatief ongevoelig voor instrumentele parameters, zoals de schudinstellingen in een microplaatlezer.
De kinetische ThT-test geeft meer gedetailleerde informatie over zelfassemblage. Zo is SC16-zelfassemblage niet significant afhankelijk van buffercondities24, hoewel bij hogere pH-waarden grotere variatie tussen replicaten wordt waargenomen. Dit gedrag is echter niet universeel onder hydrofobines, en factoren zoals zoutconcentratie, pH 24,27,42 en additieven (bijv. detergenten of alcoholen) zijn bekend om hun invloed op de zelfassemblage van hydrofobine 27,28. Zo vertoont hydrofobine SLH4 efficiëntere zelfassemblage bij lage ionensterkte en lage pH24, terwijl HFBII-zelfassemblage onafhankelijk is van pH en elektrolytenconcentratie42, vergelijkbaar met SC16. Andere studies hebben de effecten van additieven op de vorming van stokjes gecorreleerd met veranderingen in oppervlaktespanning27,28. Gezien deze verschillen is het belangrijk om de samenstelling en pH van buffers voor elk systeem te overwegen en hun invloed op de zelfassemblagecurve te monitoren, inclusief de lagfase, groei en plateauregio's.
Een belangrijke beperking is dat de kinetische ThT-test zeer gevoelig is voor de instrumentele parameters van de microplaatlezer en per instrument kan variëren. Zo wordt een aanzienlijk verschil waargenomen in SC16 zelfassemblage tussen orbitale (cirkelbeweging) en lineaire (heen-en-weer) schudinstellingen (respectievelijk Figuur 2 en Figuur 3). Hoewel ThT-gebaseerde assays een effectieve methode bieden om hydrofobine-zelfassemblage te modelleren, hebben ze inherente beperkingen door variabele selectiviteit, wat kan leiden tot vals-positieve of vals-negatieve signalen43. Daarnaast kan lichtverstrooiing van hydrofobineaggregaten invloed hebben op de gemeten fluorescentieintensiteit44, wat de meetnauwkeurigheid vermindert. Monsterverdunning en een verminderde padlengte kunnen helpen deze effecten te beperken.
De hier samengevat protocollen bieden effectieve methoden voor het zuiveren en monitoren van de zelfassemblage van SC16. De eindpunttest is eenvoudig en minder afhankelijk van instrumentatie, terwijl de kinetische test gedetailleerde tijdsresolutie levert, zij het met een grotere gevoeligheid voor instrumentele parameters. Dit protocol beschrijft een eenvoudige benadering voor het zuiveren van SC16 en kan toepasbaar zijn op andere correct gevouwen hydrofobines die tot expressie komen in E. coli. Hoewel de beschreven ThT-assays inherente beperkingen hebben, bieden ze toegankelijke tijdsafhankelijke zelfassemblage-informatie in vergelijking met technieken zoals AFM of alleen contacthoekmetingen. Deze workflows kunnen worden aangepast voor verwante eiwitten en zijn bijzonder relevant voor toepassingen in biomaterialenontwikkeling, geneesmiddelafgifte en andere gebieden waar het begrijpen van eiwitzelfassemblage belangrijk is.
Openbaarmakingen
De auteurs geven geen concurrerende financiële of niet-financiële belangen op.
Dankbetuigingen
De auteurs erkennen financiering uit het New Frontiers in Research Fund (Exploration Stream; NFRFE-2023-00322) en de Natural Sciences and Engineering Research Council of Canada (NSERC; Discovery Grant; RGPIN-2024-06440). IED wordt ondersteund door een Canada Graduate Scholarship – Master's Program (NSERC). RH wordt ondersteund door de Molly Appeal Donors via het Dalhousie Faculty of Medicine 2024 Graduate Studentship Program en de Nova Scotia Graduate Scholarship (doctoraatsniveau).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 2-(N-morpholino)ethanesulfonic acid (MES) | Sigma-Aldrich | 145224-94-8 | Buffer component voor zelfassemblage assays |
| 5 mL ronde bodem polystyreen buis | Falcon | 352054 | Gebruikt voor zelfassemblage assays met lage doorvoer |
| 96-well zwarte polystyreen microplaat | Grenier | 655076 | Gebruikt voor fluorescentiemetingen in microplaat reader |
| Acrylamide/Bis-acrylamide (29:1) oplossing (40%) | BioShop | ACR004.500 | Gebruikt om SDS-PAGE gels voor te bereiden |
| Agar | BioShop | AGR002.1 | Agar gebruikt om ampicilline-resistente LB platen te maken |
| Ampicilline | IBI Scientific | IB02040 | Antibioticum gebruikt in LB-agar platen |
| 2.8 L Fernbach kolven met baffles | Fisher Scientific | 955239 | Gebruikt voor grootschalige bacteriecultuurgroei |
| β-mercaptoethanol | TCI Chemicals | 60-24-2 | Reducerend middel gebruikt in SDS-PAGE monstervoorbereiding |
| Kolom (1.5 cm diameter zwaartekracht kolom) | Bio-Rad | 7371522 | Gebruikt voor nikkel affiniteitszuivering |
| Dialyse slang (3500 kDa MWCO) | BioDesign | D302 | Gebruikt voor bufferuitwisseling tijdens zuivering |
| Emissiefilter | Edmund Optics | 84080 | Gebruikt voor ThT assays (494 nm, bandpass 20 nm) |
| Excitatifilter | Edmund Optics | 67012 | Gebruikt voor ThT assays (438 nm, bandpass 24 nm) |
| Fluorescentie microplaat reader | Tecan | Infinite F200 Pro | Gebruikt om ThT fluorescentie intensiteit te meten |
| Hotplate | Lab Fish | HS5C | Gebruikt voor waterbad opstelling met temperatuurmonitoring |
| Zoutzuur (HCl) | Fisher Chemical | A144-212 | Gebruikt voor pH aanpassing van buffers |
| Imidazool | TCI Chemicals | 288-32-4 | Gebruikt in IMAC zuivering (was en elutie buffers) |
| Isopropyl β-D-1-thiogalactopyranosid (IPTG) | Sigma-Aldrich | 367-93-1 | Induceert eiwit expressie in E. coli |
| LB bouillon (Lennox) | BioShop | LBL405.5 | Groeimedium voor bacteriecultuur |
| Laagsnelheid gekoelde centrifuge | Beckman Coulter | 360291 | Gebruikt om cellen te pelleteren voor opslag |
| Nikkel NTA agarose kralen | GoldBio | H-350-50 | Resin gebruikt voor affiniteitszuivering van His-getagde eiwitten |
| SC16 plasmide | BioBasic | N/A | Custom DNA construct coderend voor H-GB1-SC16 fusie-eiwit |
| SHuffle T7 Express competente E. coli | New England Biolabs | C3029J | Gaststam gebruikt voor recombinante eiwitexpressie |
| Natriumchloride (NaCl) | BioShop | SOD001.5 | Buffer component en ionisatorische sterkte regulator |
| Natriumhydroxide (NaOH) | Fisher Chemical | SS255-1 | Gebruikt voor pH aanpassing van buffers |
| Natriumfosfaat | BioShop | SPD579.1 | Buffer component voor pH handhaving |
| Spectrofotometer | Pharmacia Biotech | 5096 | Gebruikt voor kwantificering van SC16 |
| Thioflavine T (ThT) | Acros Organics | 2390-54-7 | Fluorescente kleurstof gebruikt om eiwit zelfassemblage te monitoren |
| Trombiine protease | Sigma-Aldrich | 04-04-9002 | Gebruikt voor splitsing van H-GB1-SC16 fusie-eiwit |
| Tris(hydroxymethyl)aminomethaan (Tris) | BioShop | TRS001.5 | Buffer gebruikt in zuivering en assay oplossingen |
| Hogesnelheid gekoelde centrifuge | Sorvall | 46915 | Gebruikt om lysate te klaren na cel lysis |
| SDS-PAGE opstelling | Bio-Rad | 1658000EDU | Gebruikt om SDS-PAGE gels voor te bereiden en te draaien |
Herprints en machtigingen
