Antibioticaresistentie bij adherent-invasieve Escherichia coli-stammen vormt uitdagingen bij het beoordelen van bacteriële invasie met de traditionele gentamicine-beschermingsassay. Er wordt een verbeterde methode beschreven om bacteriële invasie kwantitatief te evalueren door kolonievormende eenheden op te sommen en kwalitatief door geïnfecteerde cellen te visualiseren met immunofluorescentie-confocale microscopie.
Methodenartikel
Amikacine Beschermingsassay voor Kwantificering en Visualisatie van Escherichia coli-celinvasie
In dit artikel
Samenvatting
Samenvatting
Epitheelcelinvasie is een belangrijk fenotype voor veel enterische pathogenen, waaronder Salmonella, Shigella en Vibrio. Een opkomende invasieve pathogeen is adherent-invasive Escherichia coli (AIEC), die betrokken is bij de pathogenese van inflammatoire darmziekte (IBD). AIEC-stammen missen virulentiefactoren die vaak geassocieerd worden met andere invasieve pathogenen, waardoor genetische identificatie een uitdaging is. Als gevolg hiervan worden AIEC-stammen fenotypisch geclassificeerd op basis van hun vermogen om epitheelcellen binnen te dringen met behulp van een veldstandaard gentamicine-beschermingsassay. Omdat AIEC-stammen echter vaak worden geïsoleerd van IBD-patiënten die verschillende antibiotica krijgen als onderdeel van hun behandelregime, heeft de toename van gentamicineresistente isolaten deze test minder betrouwbaar gemaakt voor AIEC-classificatie. Om dit probleem te omzeilen werd een alternatieve amikacine-gebaseerde beschermingsassay ontwikkeld om AIEC-celinvasie te kwantificeren en te visualiseren. Deze test maakt gebruik van amikacine, een breedspectrum semisynthetisch aminoglycoside dat effectief stammen aanpakt die resistent zijn tegen andere aminoglycosiden, terwijl het extracellulair blijft aan eukaryote gastheercellen. Daardoor worden extracellulaire bacteriën tijdens infectie gedood, terwijl intracellulaire bacteriën "beschermd" zijn. Dit vormt de basis van een kwantitatieve assay om staminvasieve effecten te vergelijken, gemeten als het percentage invasiescore met behulp van kolonievormende eenheden (CFU) dat na infectie is teruggevonden. Deze assay kan ook worden gebruikt als kwalitatieve meting van invasie door geïnfecteerde epitheelcellen te immunokleuren en deze cellen te visualiseren via confocale microscopie. Deze methode dient als diagnostisch hulpmiddel om IBD-patiënten te screenen op AIEC, dat ook kan worden toegepast op andere multiresistente pathogenen om celinvasie te beoordelen, een proxy voor virulentie en pathogeniciteit.
Inleiding
Inflammatoire darmziekte (IBD), waaronder de ziekte van Crohn (CD) en colitis ulcerosa, is een chronische ontstekingsaandoening in de maag-darm-intestinale ontsteking die miljoenen mensen wereldwijd treft1. Ondanks de toenemende wereldwijde incidentie van IBD blijft de precieze etiologie onduidelijk, vanwege de complexe wisselwerking van genetische, milieu-, microbiële en immunologische factoren 2,3. Een kenmerkend aspect van IBD is de veranderde samenstelling van darmmicrobiële stoffen, die vaak wordt veroorzaakt door omgevingsfactoren, zoals een suikerrijk en vetrijk dieet dat gebruikelijk is in geïndustrialiseerde landen 4,5. De microbiota van IBD-patiënten wordt vaak gekenmerkt door verminderde microbiële diversiteit, verrijking van pathogene gammaproteobacteriën en uitputting van beschermende Firmicutes 6,7. Bij patiënten met CD is Escherichia coli (E. coli) verrijkt in de darmmicrobiota, associeert met en dringt het darmslijmvlies binnen, en correleert positief met actieve en ernstige ziekte8,9. Dit opkomende pathotype van E. coli, geassocieerd met CD, wordt adherent-invasive Escherichia coli (AIEC) genoemd.
AIEC zijn gram-negatieve opportunistische pathogenen die het ileale slijmvlies van CD-patiënten met een grotere neiging koloniseren dan gezonde controles10. AIEC-stammen die van CD-patiënten zijn geïsoleerd, zijn genetisch divers en beslaan vaak alle E. coli-fylogroepen , waaronder zowel commensale als pathogene E. coli11. In tegenstelling tot ziekteverwekkers zoals Shigella en Salmonella, die vertrouwen op het gebruik van type III secretiesystemen om de invasie van gastheercellen te faciliteren, ontbreken deze geconserveerde virulentiesystemen12. Daarom berust ons begrip van AIEC-virulentie grotendeels op het in vitro-fenotype, dat wordt gekenmerkt door het vermogen om zich aan epitheelcellen te hechten en binnen te dringen, en te overleven binnen macrofagen10.
Epitheelcelinvasie door AIEC wordt gemedieerd door meerdere virulentiefactoren, waaronder de type 1 pilus en de lange polaire fimbriae. FimH, gelegen aan de punt van de type 1 pilus, bemiddelt adhesie aan mannoseresiduen op de zwaar geglycosyleerde gastheerreceptor CEACAM613. Deze binding bevordert de toegang van AIEC tot enterocyten en ondersteunt de intracellulaire replicatie14. AIEC hecht zich ook aan microfold (M) cellen, gespecialiseerde epitheelcellen die zich boven de Peyer-patches bevinden via interacties tussen de lange polaire fimbriae en het M-celoppervlakte-eiwit glycoproteïne 215,16. Deze adhesie stelt AIEC in staat om over M-cellen te transloceren, onderliggende macrofagen te bereiken en de expressie van pro-inflammatoire cytokines zoals TNF-α te stimuleren, die niet alleen ontsteking bevorderen maar ook de bacteriële replicatie binnen macrofagenondersteunen 17,18. Er wordt verondersteld dat deze pathogene mechanismen chronische ontsteking in de gastheer in stand houden, zoals waargenomen bij CD.
AIEC wordt gedefinieerd door hun in vitrofenotype , waardoor de gentamicinebeschermingstest onmisbaar is voor stamclassificatie en de ontdekking van virulentiefactoren8. Deze aanpak kan worden bemoeilijkt door gentamicineresistente isolaten, wat kan leiden tot hun verkeerde classificatie als invasieve11. Om dit probleem te omzeilen werden alternatieve antibiotica getest die gentamicineresistente isolaten effectief doden zonder door te dringen in de celmembranen van de gasther. Met deze benadering werd amicacine geïdentificeerd als een geschikt alternatief voor gentamicine, met vergelijkbare effectiviteit en compatibiliteit met standaard invasietests, evenals minimale cytotoxiciteit, zoals aangetoond door trypanblauwe kleuring in eerdere studies en hier verder gevalideerd met een lactaatdehydrogenase-afgiftetest (Aanvullende Figuur 1)11. Amikacine is een semisynthetisch aminoglycoside afkomstig van kanamycine dat de bacteriegroei remt door de eiwitsynthese19 te verstoren. Amikacine is bijzonder effectief tegen multiresistente gramnegatieve bacteriën, waaronder Pseudomonas, Acinetobacter en Escherichia-soorten 19. Opmerkelijk is dat structurele aanpassingen aan de kanamycine ruggengraat amikacine minder vatbaar maken voor enzymen die bacteriële aminoglycoside inactiveren19. Als gevolg hiervan vormt amicacine een robuust alternatief voor gentamicine om multiresistente bacteriën te targeten in invasietests. De volgende protocollen beschrijven hoe het invasiefenotype van E. coli kan worden beoordeeld met zowel de referentiestam NRG857c als klinische isolaten met de amicacinebeschermingsassay.
Protocol
OPMERKING: Dit protocol beschrijft een methode om de invasiecapaciteit van AIEC-stammen in Caco-2 epitheelcellen te beoordelen. De amikacineconcentratie die in dit protocol wordt gebruikt (240 μg/mL) komt overeen met 10× de minimale remmende concentratie (MIC), zoals bepaald met amikacine MIC-teststrips over een panel van 32 representatieve AIEC klinische isolaten van 13 patiënten met inflammatoire darmziekte11. Onderzoekers dienen de MIC voor hun eigen AIEC-isolaten te bepalen voordat ze de assay uitvoeren (zie Materiaaltabel), omdat de antibioticagevoeligheid kan variëren tussen isolaten. Sectie 1 beschrijft de amicacinebeschermingstest voor de kwantificering van procentuele invasie, en sectie 2 beschrijft de amicacinebeschermingstest voor confocale microscopie.
1. Amikacin Protection Assay voor kwantificering van procentuele invasie
- Collageencoating van 24-wellplaten
- Verdun 35,29 μL steriel glaciale azijnzuur (zie Materiaaltabel) in 30 mL 1× PBS (zie Materiaaltabel) in een 50 mL conische buis.
- Pipetteer 300 μL collageen (zie Materiaaltabel) in de 1× PBS met azijnzuuroplossing.
- Vortexoplossing voor 10 seconden om goed te mengen.
- Doseer 250 μL van de verdunde collageenoplossing in elke put van een steriele 24-well weefselkweekbehandelde plaat.
OPMERKING: De 30 mL collageenoplossing is voldoende om ongeveer vijf platen met 24 putjes te bedekken. - Kantel de plaat in alle richtingen om ervoor te zorgen dat de oplossing de bodem van elke put gelijkmatig heeft bedekt.
- Incubeer de platen bij 37 °C gedurende 2 uur zodat het collageen aan het plastic oppervlak kan hechten.
- Na de incubatie aspireer je de collageenoplossing uit elke put.
- Pipette 1 mL 1× PBS in elke put om restanten van collageen af te spoelen en elke put te aspireren. Herhaal deze stap nog twee keer (in totaal 3 wasbeurten).
- Droge platen in een biologische veiligheidskast om te zorgen dat al het zichtbare vocht is verdampt.
OPMERKING: Platen kunnen direct worden gebruikt voor celzaaiing of kunnen bij kamertemperatuur worden bewaard. Bij het opbergen van platen sluit je de buitenste omtrek af met steriele parafilm of plaats je ze in een steriele ziplockzak.
- Bereiding van amikacine-stockoplossingen
- Weeg 240 mg amikacinedilfaulf (zie Materiaaltabel) en breng over in een 1,5 mL microcentrifugebuis.
- Pipetteer 1 mL steriel water en oplos amicacine door vortexen, wat resulteert in een uiteindelijke concentratie van 240 mg/mL (1000× voorraad).
- Maak 20 μL aliquot van de amikacineoplossing en bewaar bij -20 °C.
OPMERKING: Amikacine is stabiel bij -20 °C gedurende 6–12 maanden. Bereid eenmalige aliquots voor om herhaalde vries-dooicycli te minimaliseren.
- Bereiding van Caco-2-cellen
- Caco-2-cellen ontdooien uit bevroren voorraad
- Bereid het volledige groeimedium voor door het hoogglucosegehalte van Dulbecco's Modified Eagle Medium (DMEM, zie Materiaaltabel) aan te vullen met 10% foetaal rundserum (FBS, zie Materiaaltabel) en 1% antibiotica-antimycotische oplossing (zie Materiaaltabel).
- Voorwarm medium in een 37 °C waterbad voor 30 minuten.
- Plaats het bevroren flesje met Caco-2-cellen in een waterbad van 37 °C en laat het 1–2 minuten incuberen totdat de cellen volledig ontdooid zijn.
- Haal het flesje uit het waterbad en spuit de buitenkant van het flesje met 70% ethanol.
- Binnen een biologische veiligheidskast pipetten de cellen in een 15 mL kegelvormige buis met 9 mL complete groeimedia.
- Centrifugecellen op 500 × g gedurende 5 minuten op kamertemperatuur.
- Aspireer het supernatant en suspendeer de celpellet opnieuw in 5 mL complete groeimedia.
- Breng cellen over in een 75cm 2 weefselkweekkolf (T75) met 10 ml warme complete groeimedia.
- Draai de plaat drie keer om ervoor te zorgen dat de cellen gelijkmatig over de onderkant van de plaat verdeeld zijn.
- Incubeer de cellen bij 37 °C met 5%CO2 totdat de cellen ~90% confluentie bereiken (6–7 dagen).
OPMERKING: Confluency wordt geschat door visualisatiebenadering van de cellen met behulp van een lichtmicroscoop. Vervang het medium elke 3 dagen terwijl de cellen herstellen.
- Inzaaien van Caco-2-cellen
- Voorverwarmend volledig groeimedium en 0,25% (w/v) trypsine-EDTA (zie Materiaaltabel) in een waterbad van 37 °C.
- Zodra Caco-2-cellen ~90% confluentie bereiken, aspireer je celkweekmedia en voeg 2 ml trypsine-EDTA toe. Kantel de kolf zodat de trypsine-oplossing het hele onderoppervlak van de fles bedekt om te zorgen dat alle sporen van FBS worden geïnactiveerd.
- Aspiratief trypsine-EDTA-oplossing en voeg 3 ml trypsine-EDTA toe. Incubeer de cellen op 37 °C met 5%CO2 gedurende 5–15 minuten. Visualiseer de cellen met een lichtmicroscoop op verschillende momenten tijdens de incubatieperiode om celafronding te observeren, wat aangeeft dat de cellen zich hebben losgemaakt.
OPMERKING: Vermijd het slaan tegen de zijkant van de kolf om celloslating te bevorderen, omdat dit cellen kan laten klonteren. - Pipetteer 6 ml complete groeimedium om de trypsine-EDTA-oplossing te deactiveren en meng door zachtjes op en neer te pipetten om de cellen opnieuw te laten ophangen.
- Pipetteer cellen in een 15 mL conische buis en centrifugeer op 500 × g gedurende 5 minuten naar pelletcellen.
- Aspiraat media en resuspendeer cellen in 3 mL complete groeimedia.
- Breng 10 μL van de opgehangen Caco-2-cellen over naar een 1,5 mL microcentrifugebuis. Voeg 10 μL Trypanblauwe kleurstof toe (zie Materiaaltabel) aan de 1,5 mL microcentrifugebuis en meng door meerdere keren op en neer te pipetten.
- Pipet 10 μL van het Caco-2/Trypan blauwe mengsel naar een cel-counter schuif (zie Materiaaltabel). Tel het aantal levende cellen op om de levensvatbaarheid van de cel te berekenen.
OPMERKING: Bij het opsommen van het aantal aanwezige Caco-2-cellen moet alleen het aantal levende cellen worden beschouwd, niet het totale aantal cellen voor zaaien. - Zaad Caco-2-cellen in een 24-well plaat of een T75-kolf.
- Voor een plaat met 24 putten, volg de onderstaande stappen:
- Zaad Caco-2-cellen bij een concentratie van 1 x 10⁵ cellen/mL met behulp van de onderstaande vergelijking:
[(1 × 10⁵ cellen)(Aantal putten die zaaien + 2)] / [Levensvatbare celconcentratie (cellen/mL)] = cellen (mL) - Verwijder het hierboven berekende volume cellen uit de opgehangen Caco-2-cellen in stap 3.2.6 in een 15 mL conische buis. Bereken het volume van het volledige groeimedium dat aan de cellen moet worden toegevoegd met behulp van de onderstaande vergelijking:
(Aantal putten die zaaien + 2 putten) - cellen (mL) = media (mL)
OPMERKING: De "+2 putten" in de berekening zijn bedoeld om rekening te houden met pipetfouten. - Pipetteer het hierboven berekende mediavolume in de 15 mL conische laag met de Caco-2-cellen en meng door meerdere keren omhoog en omlaag te pipetten.
- Pipetteer 1 mL Caco-2-cellen in complete groeimedia (eindconcentratie 1 x 10⁵ cellen/mL) in elke put van de met collageen gecoate 24-put plaat.
- Incubeer de plaat bij 37 °C met 5%CO2 totdat de cellen ~90% confluentie bereiken (3–4 dagen).
- Zaad Caco-2-cellen bij een concentratie van 1 x 10⁵ cellen/mL met behulp van de onderstaande vergelijking:
- Voor een T75-fles volgt u de onderstaande stappen:
- Breng 7,5 x 10⁵ levensvatbare cellen over naar een T75-fles met behulp van de volgende vergelijking:
[(7,5 × 10⁵ cellen)] / [levensvatbare celconcentratie (cellen/mL)] = cellen (mL)
OPMERKING: Het aantal levensvatbare cellen dat aan de T75-fles moet worden toegevoegd, is bepaald op basis van ATCC-richtlijnen voor Caco-2 celkweek. - Verwijder het hierboven berekende volume cellen en breng het over in een T75-fles. Bereken het volume van het volledige groeimedium dat aan de cellen moet worden toegevoegd met behulp van de onderstaande vergelijking:
15 mL - volume cellen toegevoegd aan de kolf = media (mL) - Pipetteer het hierboven berekende volume naar de T75-kolf.
- Draai het bord voorzichtig meerdere keren om de cellen gelijkmatig over de bodem van de fles te verspreiden. Incubeer bij 37 °C met 5%CO2 totdat de cellen ~90% confluentie bereiken (3–4 dagen).
- Breng 7,5 x 10⁵ levensvatbare cellen over naar een T75-fles met behulp van de volgende vergelijking:
- Caco-2-cellen ontdooien uit bevroren voorraad
- Amikacin Beschermingstest
OPMERKING: Zorg ervoor dat alle celkweekmedia voorverwarmd zijn tot 37 °C vóór de start van het experiment.- Bereiding van bacteriën
- Met een steriele houten stok of een steriele pipettip schraap je voorzichtig bacteriën af van een bevroren bacteriële glycerolvoorraad die bij -80 °C is opgeslagen, en strepen ze op een LB-agarplaat voor losse kolonies. Breng de plaat 's nachts uit bij 37 °C.
- Met een steriele houten stok of een steriele pipettip haal je een enkele kolonie van de agarplaat en inoculeer in 3 mL LB-bouillon. Incubeer de cultuur bij 37 °C met schudden op 200 rpm gedurende de nacht.
- Voer een 1:10 verdunning uit van de nachtelijke cultuur in 1 mL LB-bouillon en meet de optische dichtheid bij 600 nm (OD600) van de cultuur met een spectrofotometer.
- Berekening van de meervoudigheid van infectie (MOI)
- Breng 100 μL van de nachtcultuur over naar een 1,5 mL microcentrifugebuis en centrifugeer op 6000 × g gedurende 10 minuten bij 4 °C.
- Aspireer het supernatant voorzichtig om de celpellet niet te verstoren. Susser de pellet opnieuw in 1 ml serum en antibiotica-antimycoticavrij medium.
OPMERKING: Dit is een verdunning van de bacteriële nachtkweek in 1:10. Voor de MOI-berekening gebruik je de ruwe OD600-waarde die is berekend voor de verdunde nachtcultuur in stap 4.1.3, niet de OD600-waarde die is gecorrigeerd voor de verdunningsfactor. - Bereken het volume bacteriële suspensie dat toegevoegd moet worden vanaf stap 4.2.2 om Caco-2-cellen te infecteren bij een MOI van 10 met de volgende berekening:
[1 OD-eenheid/2,4 × 109 bacteriën] × [10 bacteriën/cel] × [1 mL × OD 1:10] × 1 ×105 ×103 = volume (uL)
OPMERKING: Noteer zorgvuldig het berekende volume voor elk monster, want deze waarde zal later worden gebruikt om het inoculum CFU/mL te berekenen. Dit volume bacteriële suspensie is slechts voor 1 put binnen de 24-wellplaat. - Bereid het infectiemedium voor door het berekende volume bacteriële suspensie uit stap 4.2.3 over te brengen in een steriele microcentrifugebuis van 1,5 mL. Voeg 1 ml serum en antibiotica-antimycoticum vrij medium toe. Meng voorzichtig door meerdere keren op en neer te pipetteren.
- Caco-2 celinfectie
- Verwijder de 24-put plaat met de Caco-2 celmonolagen uit de couveuse en aspireer het volledige medium.
- Pipette 1 ml serum en anti-mycotisch vrij medium in elke put en aspiratief om sporen van serumhoudend medium te verwijderen. Herhaal deze stap nog één keer (in totaal 2 wasbeurten).
OPMERKING: Verlaag de vacuümdruk bij het aspireren om verstoring van de celmonolaag te voorkomen. - Pipetteer 1 mL van het infectiemedium vanaf stap 4.2.4 naar elke put van de 24-wellplaat met de Caco-2 cellen.
- Centrifugeer de 24-wellplaat op 500 × g gedurende 15 minuten bij kamertemperatuur om het contact van bacteriën met de epitheelcellen te synchroniseren.
- Incubeer de 24-well plaat bij 37 °C met 5% CO2 gedurende 3 uur om bacteriële invasie mogelijk te maken.
- Bepaal tijdens de incubatieperiode de CFU/mL van de verdunde nachtkweek uit stap 4.2.2 door 10-voudige seriële verdunningen uit te voeren in steriele 1× PBS met een 96-well plaat.
- Om elke verdunning voor te bereiden, breng je 200 μL van de verdunde nachtcultuur van stap 4.2.2 over naar de eerste put in de plaat.
- Pipetteer 20 μL van de cultuur naar de volgende rij, die 180 μL 1× PBS bevat. Meng door 10 keer op en neer te pipetten. Herhaal tot de verdunning 10-6 bereikt met elke keer een nieuwe pipettip voor de overdracht.
- Plaat 10 μL spotverdunning in drievoudig verdunning van de 10-2 tot 10-6 verdunningen op LB agarplaten. Laat de vlekken onder een vlam in de agar worden opgenomen.
- Incubeer platen 's nachts bij 27–30 °C om overgroei van kolonies te voorkomen en om duidelijke, gescheiden individuele kolonies te garanderen.
OPMERKING: Spotplating in drievoudig exemplaar verbetert de kwantificatienauwkeurigheid en maakt detectie mogelijk over een reeks bacteriële concentraties. Een lagere incubatietemperatuur vertraagt de bacteriegroei, waardoor een nauwkeurigere CFU-schatting mogelijk is uit monsters met hoge concentraties.
- Bereid antibiotica-bevattende media voor door 240 μg/mL amicacine toe te voegen aan voorverwarmd serum en antibiotica-antimycotische vrije media.
- Na voltooiing van de 3-uursinfectie aspireer je het medium uit de Caco-2 celmonolagen. Voeg 1 ml serum en antibiotica-antimycotische vrije media toe aan elke put. Herhaal deze stap nog één keer (in totaal 2 wasbeurten).
- Pipetteer 1 mL van 240 μg/mL amikacine-bevattende media in elke put en incubeer bij 37 °C met 5% CO2 gedurende 1 uur om extracellulaire bacteriën te elimineren.
- Aspiraat het medium uit elke put en voeg 1 ml 1× PBS toe om hechtende bacteriën die door amikacine zijn gedood weg te spoelen. Herhaal deze stap nog één keer (in totaal 2 wasbeurten).
- Pipet 200 μL van 1% Triton-X-100 (zie Materiaaltabel) verdund in 1× PBS in elke put. Incubeer op een orbitale shaker op 90 rpm gedurende 10 minuten om epitheelcellen te lyseren.
- Koppel cellen van de 24-put plaat door ongeveer 30 keer per put op en neer te pipetten.
OPMERKING: Omdat het coaten van de platen met collageen de celhechting verbetert, is het belangrijk ervoor te zorgen dat de monolaag van de plaat is losgekomen. Dit kan visueel worden bevestigd door een gelyseerde put te vergelijken ten opzichte van een niet-gelyseerde put en een put zonder Caco-2-cellen, die er helder uitzien. - Voer 10-voudige seriële verdunning uit van de cellysaten in een 96-wellplaat met 1× PBS.
OPMERKING: Voer seriële verdunningen uit tot de 10-3 verdunning. - Plaat 10 μL spotverdunning in drievoudig verdunning, variërend van onverdunde tot 10-3 verdunnings, op LB agarplaten. Laat de vlekken onder een vlam in de agar worden opgenomen. Incubeer platen 's nachts bij 27–30 °C om overgroei van de kolonie te voorkomen en om duidelijke, gescheiden individuele kolonies te garanderen.
- Kolonietelling en berekening van invasiepercentages
- Na de overnachtelijke broedtijd tellen we het aantal kolonies in elke plek, verdund door de verdunde nachtcultuur en het teruggevonden lysaat. Kies een verdunning waarbij elke plek meer dan 7 geïsoleerde kolonies bevat. Gebruik dezelfde verdunning over de driedubbele verdunning om het gemiddelde aantal bacteriekolonies te berekenen dat voor die verdunning wordt teruggewonnen.
OPMERKING: Tel spotverdunningen met goed geïsoleerde enkele kolonies en vermijd het tellen van verdunningen die kolonies bevatten die elkaar raken. - Bereken het inoculum CFU/mL, de teruggewonnen CFU/mL en het percentage invasie met behulp van de volgende vergelijkingen hieronder:
Inoculum CFU (CFU/mL):
CFU-inoculum = (gemiddeld aantal kolonies)(verdunningsfactor)(volume uit infectiemedium (μL) x 100
Geraadpleegd CFU (CFU/mL):
CFUteruggevonden = (gemiddeld aantal kolonies)(verdunningsfactor) x 100
Percentage invasie (%):
Invasie (%) = [(CFUgeraadpleegd)/(CFUinoculum)] × 100
- Na de overnachtelijke broedtijd tellen we het aantal kolonies in elke plek, verdund door de verdunde nachtcultuur en het teruggevonden lysaat. Kies een verdunning waarbij elke plek meer dan 7 geïsoleerde kolonies bevat. Gebruik dezelfde verdunning over de driedubbele verdunning om het gemiddelde aantal bacteriekolonies te berekenen dat voor die verdunning wordt teruggewonnen.
- Bereiding van bacteriën
2. Amikacine Protection Assay voor confocale microscopie
- Bereiding van steriele poly-L-lysine gecoate dekfolies
- In een biologische veiligheidskast gebruik je steriele pincetten om dekfolies met poly-L-lysine gecoate dekfolies (zie Materiaaltabel) op een papieren handdoek te plaatsen die in 70% ethanol is gedrenkt.
- Spuit beide schuifstukken van de dekfolies met 70% ethanol en gebruik steriele pincetten om de dekmantel naar beide kanten te draaien.
- Laat dekdekkers onder UV-licht in de biologische veiligheidskast drogen tot ze helemaal droog zijn.
- Caco-2 cellen zaaien in een 6-well plaat
- In een biologische veiligheidskast plaats je 1 poly-L-lysine gecoate deklaag in elke put van een 6-wellen plaat.
- Herhaal stappen 3.2.1–3.2.8 uit de sectie "Seeding of Caco-2 cellen".
- Zaad Caco-2-cellen bij een concentratie van 1 x 10⁵ cellen/mL in een 6-wellplaat met behulp van de onderstaande vergelijking:
[(1 × 10⁵ cellen)(Aantal putten zaait + 2)] / [Levensvatbare celconcentratie (cellen/mL)] × 2 = cellen (mL)
OPMERKING: Deze waarde wordt met 2 vermenigvuldigd om rekening te houden met het toevoegen van 2 mL media per put bij gebruik van een 6-well plaat. - Verwijder het hierboven berekende volume cellen in een 15 mL kegelvormige buis. Bereken het volume van het volledige groeimedium dat aan de cellen moet worden toegevoegd met behulp van de onderstaande vergelijking:
(Aantal putten die zaaien + 2 putten) x 2 - cellen (mL) = media (mL) - Pipetteer het hierboven berekende mediavolume in de 15 mL conische laag met de Caco-2-cellen en meng door meerdere keren omhoog en omlaag te pipetten.
- Voeg 2 ml Caco-2-cellen in complete groeimedia toe aan elke put van de 6-putplaat (eindconcentratie 1 × 10⁵ cellen/mL).
- Incubeer de plaat bij 37 °C met 5%CO2 totdat de cellen ~90% confluentie bereiken (2–3 dagen).
- Amikacin beschermingsassay
- Voer de amikacinebeschermingstest uit zoals beschreven in Sectie 1, Stappen 4.1-4.3.10
- Immunofluorescentiekleuring
- Fixatie en permeabilisatie van Caco-2-cellen
- Fixeer cellen door 1 mL 4% paraformaldehyde verdund in 1X PBS (zie Materiaaltabel) aan elke put toe te voegen. Broeuw 10 minuten op kamertemperatuur in het donker.
- Aspireer elke put en voeg 1 mL 1× PBS toe om cellen te wassen. Herhaal deze stap nog twee keer (in totaal 3 wasbeurten).
OPMERKING: Cellen kunnen meerdere dagen worden opgeslagen in 1X PBS bij 4 °C. - Voeg 1 ml van 0,1% Triton-X-100 toe aan elke put en incubeer 10 minuten bij kamertemperatuur om cellen te permeabiliseren.
- Aspireer Triton-X-100 oplossing en voeg 1 mL 1× PBS toe aan elke put. Incubeer cellen met 1× PBS gedurende 5 minuten. Herhaal deze stap nog twee keer (in totaal 3 wasbeurten).
- Blokkering en antilichaamkleuring
- Om niet-specifieke antistofbinding te voorkomen, bereid een blokkerende oplossing voor met 1% bovin serumalbumine (BSA), 22,52 mg/mL glycine in 1× PBS + 0,1% Tween20 (zie Tabel van Materiaal).
- Voeg 1 ml blokkingsoplossing toe aan elke put en incubeer 1 uur op kamertemperatuur.
OPMERKING: De blokstap kan ook worden uitgevoerd bij 4 °C gedurende 16 uur. - Aspireer blokkerende oplossing en incubeer cellen met het primaire antilichaam anti-Rabbit E. coli (zie Materiaaltabel) verdund (aanbevolen 1:500 verdunning) in blokkerende oplossing gedurende 1 uur bij kamertemperatuur.
OPMERKING: Incubatie met het primaire antilichaam kan ook plaatsvinden bij 4 °C gedurende 16 uur. - Aspireer primaire antistofoplossing en voeg 1 mL van 1× PBS + 0,1% Tween20 toe. Incubeer cellen in 1× PBS + 0,1% Tween20 gedurende 5 minuten. Herhaal deze stap nog twee keer (in totaal 3 wasbeurten).
- Incubeer cellen met geitenanti-Rabbit Alexa Fluor 488 secundair antilichaam (zie Materiaaltabel) verdund (aanbevolen 1:1000 verdunning) in blokkerende oplossing gedurende 1 uur bij kamertemperatuur. Wikkel de plaat in aluminiumfolie om de fluorofoor te beschermen tegen licht.
- Aspireer de secundaire antistofoplossing en voeg 1 mL 1× PBS + 0,1% Tween20 toe. Incubeer cellen in 1× PBS + 0,1% Tween20 gedurende 5 minuten. Herhaal deze stap nog twee keer (in totaal 3 wasbeurten).
- Tegenbeitsing en het monteren van de dekmantel
- Om gastheer- en bacteriële DNA en gastheeractine te kleuren, bereid een gecombineerde verdunning voor met 10 mg/mL Hoechst (aanbevolen 1:2000 verdunning, zie Materiaaltabel) en rhodamine-falloïde (aanbevolen 1:1000 verdunning, zie Materiaaltabel) in 1× PBS.
- Voeg 1 ml kleurstofoplossing toe aan elke put en laat het 10 minuten incuberen.
- Verwijder de verfoplossing en voeg 1 ml 1× PBS toe aan elke put. Herhaal deze stap nog één keer (in totaal 2 wasbeurten).
- Voeg 1 mL 1× PBS toe en laat cellen ondergedompeld in de oplossing.
- Plaats één druppel montagemateriaal (zie Materiaaltabel) op de gelabelde dia.
- Til voorzichtig de coverslip van de 6-well plaat met een gebogen naald en draai de coverslip om zodat de zijde met de cellen naar de slide met het montagemedium kijkt.
- Plaats de dekmantel op het montagemedium. Zorg ervoor dat het montagemateriaal gelijkmatig over de hele dekmantel wordt verspreid.
- Incubeer de gemonteerde dia's op kamertemperatuur 's nachts in het donker.
- Sluit de randen van de deklaag af met doorzichtige nagellak en bewaar de glaasjes bij 4 °C in een diadoos.
- Maak beeld van de gemonteerde monsters met de juiste kanalen die overeenkomen met de kleurstoffen/fluoroforen die met een confocale microscoop worden gebruikt.
- Fixatie en permeabilisatie van Caco-2-cellen
Resultaten
Om de effectiviteit van amikacinebehandeling bij het elimineren van extracellulaire bacteriën te evalueren en intracellulaire invasie te visualiseren, voerden we infectieexperimenten uit met Caco-2 celmonolagen. Zoals weergegeven in Figuur 1, resulteerde behandeling met gentamicine of amicacine na infectie met E. coli NRG857c (positieve controle) of E. coli DH5α (negatieve controle) tot vergelijkbare invasieprofielen. Deze bevindingen geven aan dat amicacine even effectief is als gentamicine in het elimineren van extracellulaire bacteriën en de intracellulaire bacteriële belasting nauwkeurig weergeeft, wat het gebruik als alternatief antibioticum voor invasie-assays ondersteunt. Een herstelbereik van ~4-10% herstel van NRG857c en <1% voor E. coli DH5α wordt als acceptabel beschouwd voor nauwkeurige interpretatie van invasiefenotypes ten opzichte van mutantstammen of andere klinische isolaten, in overeenstemming met eerdere observaties11. Als de invasiepercentages voor de positieve en negatieve controles buiten dit verwachte herstelbereik liggen, moeten de resultaten met voorzichtigheid worden geïnterpreteerd en moet de assay worden herhaald.
Om aan te tonen dat amicacine effectief gentamicineresistente klinische E. coli-isolaten kan targeten, werden gentamicine- en amicacinebeschermingsassays parallel uitgevoerd en werden de invasieprofielen van de isolaten onderzocht. Zoals weergegeven in Figuur 2, resulteerde de behandeling van gentamicineresistente isolaten met gentamicine in zeer variabele herstelwaarden, variërend van 21,52% tot 2788,50%. Daarentegen verminderde behandeling met amicacine het herstel in alle isolaten aanzienlijk, wat de effectiviteit benadrukte en nauwkeurigere en betrouwbaardere invasiemetingen mogelijk maakte.
Ten slotte werden Caco-2-cellen geïnfecteerd met E. coli NRG857c om het intracellulaire fenotype van AIEC tijdens de invasie te beoordelen. Figuur 3 toont een representatief beeld van een geïnfecteerde Caco-2-cel met bacteriën (groen) gekleurd door immunofluorescentie, gastheeractine (rood) en DNA (blauw) zichtbaar door tegenkleuring met respectievelijk rhodamine-phalloidine en Hoechst. Op 4 uur na infectie wordt waargenomen dat NRG857c zich repliceert in het cytoplasma, zich vestigend nabij de kern en binnen actinegrenzen, wat de intracellulaire aard van deze bacteriën bevestigt.
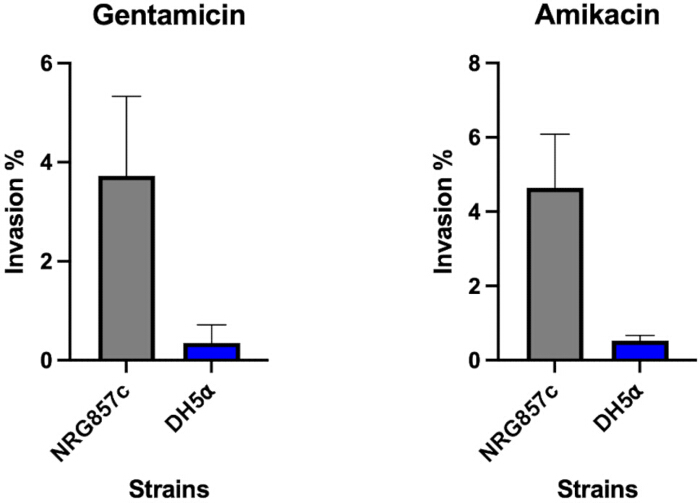
Figuur 1: Toevoeging van gentamicine of amicacine aan Caco-2-cellen die geïnfecteerd zijn met AIEC-stam NRG857c resulteert in vergelijkbare invasieprofielen. Caco-2 cel monolagen werden geïnfecteerd met AIEC-stam NRG857c en E. coli DH5α bij een MOI van 10. Na 3 uur infectie werden cellen 1 uur behandeld met gentamicine (100 μg/mL) of amikacine (240 μg/mL) om extracellulaire bacteriën te elimineren. Cellen werden vervolgens gelyseerd met 1% Triton-X-100, en homogenaten werden seriël verdund en geplateerd op LB-agar voor CFU-enumeratie. Invasie werd uitgedrukt als het percentage teruggevonden bacteriën ten opzichte van het oorspronkelijke inoculum. De gegevens vertegenwoordigen drie onafhankelijke experimenten (n = 3); foutbalken geven standaarddeviatie van het gemiddelde aan. Klik hier om een grotere versie van deze figuur te bekijken.
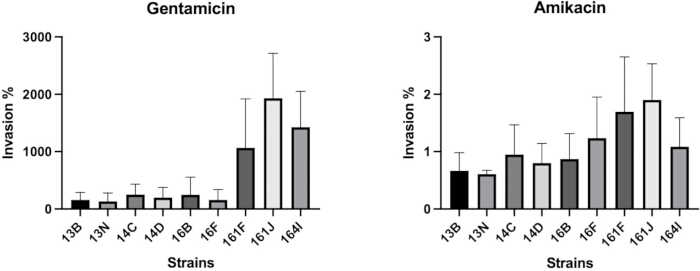
Figuur 2: Amikacine richt zich effectief op gentamicineresistente E. coli-stammen . Caco-2-celmonolagen werden geïnfecteerd met E. coli-stammen die geïsoleerd waren van IBD-patiënten met een Moi van 10. Na 3 uur infectie werden cellen 1 uur behandeld met gentamicine (100 μg/mL) of amikacine (240 μg/mL) om extracellulaire bacteriën te elimineren. Cellen werden vervolgens gelyseerd met 1% Triton-X-100, en homogenaten werden seriël verdund en geplateerd op LB-agar voor CFU-enumeratie. Invasie werd uitgedrukt als het percentage teruggevonden bacteriën ten opzichte van het oorspronkelijke inoculum. De gegevens vertegenwoordigen drie onafhankelijke experimenten (n = 3); foutbalken geven standaarddeviatie van het gemiddelde aan. Klik hier om een grotere versie van deze figuur te bekijken.
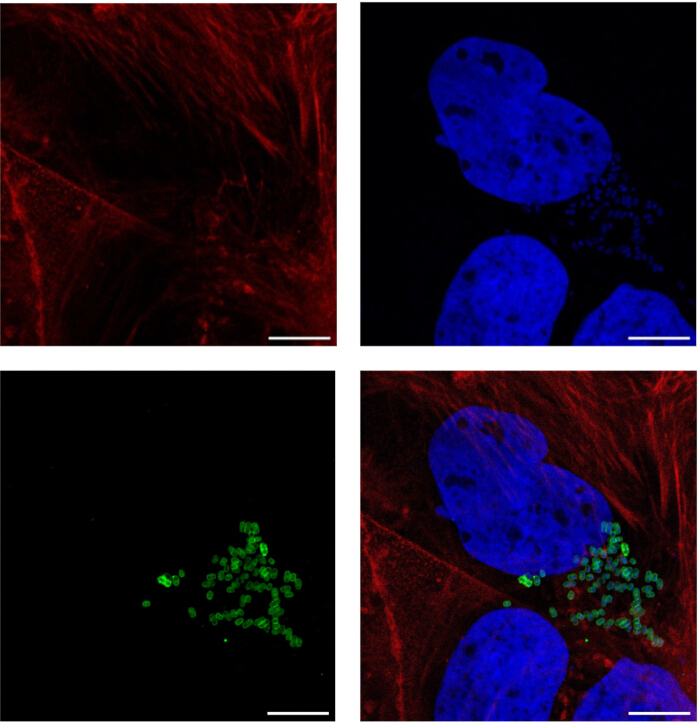
Figuur 3: Visualisatie van epitheelcelinvasie door E. coli. Representatieve confocale microfoto's van Caco-2-cellen infecteerden E. coli NRG857c. Caco-2-cellen werden 3 uur geïnfecteerd, gevolgd door 1 uur incubatie met amicacine (240 μg/mL). Hostactine werd gekleurd met rhodamine-Phallodine (rood), en gastheer- en bacterie-DNA werden gekleurd met Hoechst (blauw). E. coli (groen) werd gedetecteerd met behulp van een antikonijn E. coli primair antilichaam en een geitenantikonijn Alexa Fluor 488 secundair antilichaam. De beelden werden gemaakt met een objectief van 63× met een zoom van 3× met behulp van een Leica-confocale microscoop. Schaalbalken = 10 μm. Klik hier om een grotere versie van deze figuur te bekijken.
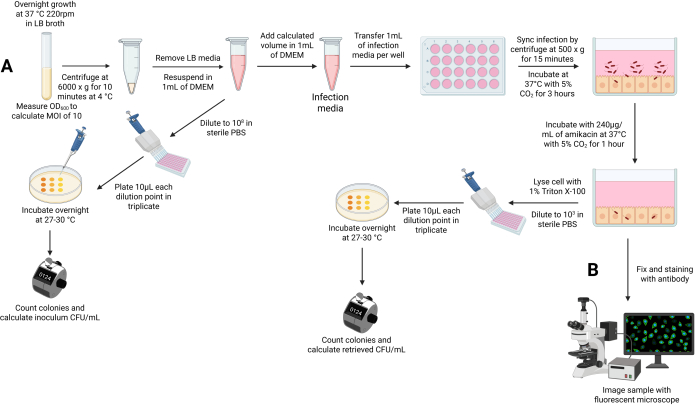
Figuur 4: Stroomdiagram van de studie. (A) AIEC-stammen werden 's nachts gekweekt, gewassen en toegevoegd aan Caco-2 monolagen met een MOI van 10. Na 3 uur infectie en 1 uur amicacinebehandeling werden intracellulaire bacteriën teruggevonden en gekwantificeerd door seriële verdunningen in drievoudig formaat te plateren. (B) Geïnfecteerde monolagen werden gefixeerd, gekleurd met antilichamen en afgebeeld met fluorescentiemicroscopie. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende Figuur 1: Amikacinebehandeling resulteert in minimale cytotoxiciteit in epitheelcellen. Caco-2-cellen werden behandeld met gentamicine (100 μg/mL) of amikacine (240 μg/mL) gedurende 1 uur. Cytotoxiciteit werd bepaald door het meten van de lactaatdehydrogenase die in het kweekmedium vrijkomt. Foutbalken geven standaarddeviatie van het gemiddelde aan (n = 3). Klik hier om dit bestand te downloaden.
Discussie
De amicacinebeschermingstest is een aangepaste benadering om de invasie van E. coli in epitheelcellen te beoordelen. Verschillende stappen zijn cruciaal voor het succes van deze assay, waaronder het coaten van collageen van de platen, het behouden van de integriteit van de monolaag en efficiënte cellyse. Caco-2 cellen zijn een hechtende cellijn die zich kan hechten aan met weefselcultuur behandeld plastic en monolagen20 kan vormen. Tijdens infectie kan het gebruik van serumvrije media en herhaald wassen echter de celloslating beïnvloeden, wat leidt tot een ondervertegenwoordiging van bacteriële invasie21. Om dit op te lossen, kan het coaten van platen met extracellulaire matrixcomponenten, zoals type IV-collageen, de celhechting bevorderen en de vorming van een stabiele, confluente monolaag tijdens infectie21. Dit is belangrijk omdat aangetoond is dat de AIEC-stam LF82 nauwe verbindingen tijdens invasie kan verstoren, en onvolledige monolaagvorming deze stap kan omzeilen, wat leidt tot scheve resultaten22. Tot slot is efficiënte cellyse een andere belangrijke stap die het herstel van bacteriën beïnvloedt, aangezien onvolledige lysis invasieve invasieve effecten kan verhullen en zo de uitkomsten van de assay kan verstoren23. Om dit te omzeilen is het belangrijk om het cellysaat grondig opnieuw te suspenderen na de incubatie met Triton-X-100.
Naast de technische uitdagingen die kunnen bijdragen aan de variabiliteit in invasie-assay, is aangetoond dat het percentage inoculum dat na infectie voor AIEC-stam LF82 wordt gevonden, tussen 0,61 en 17,25% ligt. Deze variabiliteit kan worden beïnvloed door het ontbreken van bepaalde omgevingssignalen, zoals galzouten, mucine en andere darmmetabolieten in deze in vitro-test die bekend zijn als bijdrage aan AIEC-virulentie 24,25,26. Specifiek is aangetoond dat galzouten de expressie van lange polaire fimbriae induceren, die de AIEC-hechting en translocatie over M-cellen27 verhogen. Andere gastro-intestinale pathogenen, zoals Vibrio en Shigella, staan erom bekend hun type III-secretiesystemen te reguleren als reactie op gal om de invasie van epitheelcellen te bemiddelen28,29. Subculturing met galzouten om virulentiefactorexpressie te induceren is standaard in gentamicinebeschermingsprotocollen voor andere pathogenen, en het kweken van AIEC met deze omgevingssignalen kan de invasie stabiliseren en consistentere profielen opleveren30,31.
Een andere beperking van deze assay is dat bacteriële invasie op één tijdstip wordt beoordeeld, wat, hoewel standaard in het veld, waarschijnlijk het invasieproces12 te veel vereenvoudigt. Bacteriële invasie is een dynamisch proces waarbij ze hechten, internaliseren, intracellulaire replicatie en ontsnapping uit gastheercel32 inhoudt. Omdat nieuwe genen die bijdragen aan AIEC-invasie moeilijk te identificeren zijn, het gebruik van een enkele tijdpunt-assay het aantal genen dat aan dit proces bijdraagtonderschatten kan 12. Tijdverloop-invasie-assays zijn daarom gebruikt om te beoordelen hoe specifieke genen bijdragen aan invasie en om AIEC-replicatie in I-407 en Hep-2 cellen 8,33 te bestuderen. Hoewel het gebruik van een tijdverloopinvasie-assay waardevol is om de bijdrage van individuele genen aan de invasie te karakteriseren, is het arbeidsintensief, vooral bij het screenen van veel klinische isolaten. Om deze reden wordt één tijdstip gebruikt om de invasie te beoordelen.
Daarnaast is de intracellulaire levensstijl van AIEC niet erg goed gekarakteriseerd. De meeste studies gebruiken procentuele invasie als primaire meting om veranderingen in CFU van verschillende virulentiefactordeletiemutanten te detecteren14,34. Visualisatie van geïnfecteerde gastheercellen kan unieke inzichten geven in de AIEC-biologie die worden gemist bij alleen CFU-enumeratie35. Daarom moet om de rol van verschillende genen bij celinvasie volledig te evalueren, immunofluorescentiemicroscopie van geïnfecteerde cellen worden uitgevoerd in combinatie met CFU-enumeratie. Dit is belangrijk omdat het kan leiden tot het identificeren van genen die functioneren in endosomale overleving en ontsnapping, het cytoskelet van de gastheer aanpakken, of verschillen vertonen in bacteriële belasting per cel, wat over het hoofd gezien kan worden door alleen CFU-herstel te gebruiken. Het is belangrijk op te merken dat het gebruik van het hier beschreven immunofluorescentiekleuringsprotocol om intracellulaire bacteriën te detecteren, geen onderscheid maakt tussen echt geïnternaliseerde bacteriën en die aan het celoppervlak zijn gekleefd. Een differentiële kleuringsmethode, waarbij extracellulaire bacteriën worden gelabeld met een duidelijk secundair antilichaam vóór permeabilisatie en intracellulaire bacteriën worden gekleurd na permeabilisatie, zou deze beperking aanpakken en zou in toekomstige studies kunnen worden toegepast om deze populaties definitiever te onderscheiden36.
Het belang van deze methode ligt grotendeels in het vermogen om multidrugresistente E. coli-isolaten te screenen van IBD-patiënten die een diverseantibioticabehandeling ondergaan. Gentamicine wordt gebruikt voor de behandeling van patiënten met vroege start van IBD en kan worden toegediend voor andere bacteriële infecties37. De opkomst van gentamicineresistente isolaten zou het gebruik van de standaardtest uitsluiten, waardoor amicacine een betrouwbaarder alternatief11 zou zijn. Het gebruik van de protocollen die in dit artikel zijn beschreven, maakt een grondigere karakterisering van de infectiebiologie van AIEC mogelijk en helpt het nieuwe genen te identificeren die kunnen bijdragen aan invasie. Deze methoden zijn belangrijk in de context van onderzoek naar bacteriële pathogenese en gastheer-pathogeen interactie, omdat ze de ontdekking van nieuwe virulentiefactoren mogelijk maken, de karakterisering van de intracellulaire levenscyclus van bacteriën, en het onderzoeken van gastheerroutes die tijdens infectie worden aangevallen. Daarnaast zijn ze breed toepasbaar voor het bestuderen van andere invasieve pathogenen met behulp van in vitro epitheelcelmodellen.
Openbaarmakingen
De auteurs geven geen belangenconflicten aan.
Dankbetuigingen
Dit werk werd ondersteund door de Howard Hughes Medical Institute Emerging Pathogens Initiative (K.O., J.N.), Welch Foundation subsidie 1-561 (K.O.), Once Upon a Time Foundation (K.O.), NIH-subsidie R35 GM134945 (K.O.), NIH-subsidie NIDDK K08-DK-123316 (J.N.), Burroughs Wellcome Fund Career Awards for Medical Scientists - 1020904 (J.N.) en NIH T32 AI007520 (S.F.).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 75 cm2 Tissue culture flask | Fisher Scientific | FB012937 | |
| Amikacin disulfate | Research Products International | A20540-25.0 | |
| Antibiotic-Antimycotic (100x) | Gibco | 15240062 | |
| Anti-E.coli antibody | Abcam | ab137967 | |
| BioLite microwell plates - 6 well | Fisher Scientific | 12-556-004 | |
| Bovine serum albumin | Sigma-Aldrich | A7906 | |
| Collagen I, Rat tail, 100 mg | Corning | 354236 | |
| Countess cell counting chamber slide | Invitrogen | C10312 | |
| DMEM, high glucose | Gibco | 11965118 | |
| Fetal bovine serum | Corning | 35-011-CV | |
| Galcial acetic acid | Sigma-Aldrich | A6283 | |
| Glycine ultrapure | USBiological | G8165 | |
| Goat anti-Rabbit IgG (H + L) cross-adsorbed secondary antibody, Alexa Fluor 488 | Invitrogen | A-11008 | |
| Hoechst 33342, trihydrochloride trihydrate | Invitrogen | H3570 | |
| Liofilchem MTS amikacin [AK] 0.016-256 μg/mL | Fisher Scientific | 22-777-704 | Amikacin MIC Test Strips |
| Paraformaldehyde solution, 4% in PBS | Fisher Scientific | J19943.K2 | |
| PBS, 1x | Corning | 21-040-CV | |
| Poly-L-lysine coated sterile German glass coverslips for cell culture | Neuvitro | NC1327375 | |
| ProLong gold antifade mountant | Invitrogen | P36934 | |
| Rhodamine-Phalloidin | Invitrogen | R415 | Red-orange 540/565 nm |
| Surface treated sterile tissue culture plates | Fisher Scientific | FB012929 | 24-well plates |
| Triton X-100 (Electrophoresis) | Fisher Scientific | BP151-100 | |
| Trypan blue | Invitrogen | T10282 | |
| Trypsin-EDTA (0.25%), phenol red | Gibco | 25200056 | |
| Tween-20 | Fisher Scientific | BP337-100 |
Referenties
- Bruner, L. P., White, A. M., Proksell, S. Inflammatory bowel disease. Prim Care. 50 (3), 411-427 (2023).
- Richard, N., Savoye, G., Leboutte, M., Amamou, A., Ghosh, S., et al. Crohn's disease: Why the ileum?. World J Gastroenterol. 29 (21), 3222-3240 (2023).
- Hracs, L., et al. Global evolution of inflammatory bowel disease across epidemiologic stages. Nature. 642 (8067), 458-466 (2025).
- Lewis, J. D., Abreu, M. T. Diet as a trigger or therapy for inflammatory bowel diseases. Gastroenterology. 152 (2), 398-414.e6 (2017).
- Khan, S., et al. Dietary simple sugars alter microbial ecology in the gut and promote colitis in mice. Sci Transl Med. 12 (567), (2020).
- Ma, X., et al. Gut microbiota in the early stage of Crohn's disease has unique characteristics. Gut Pathog. 14 (1), 46 (2022).
- Vester-Andersen, M. K., et al. Increased abundance of proteobacteria in aggressive Crohn's disease seven years after diagnosis. Sci Rep. 9 (1), 13473 (2019).
- Boudeau, J., Glasser, A. L., Masseret, E., Joly, B., Darfeuille-Michaud, A. Invasive ability of an Escherichia coli strain isolated from the ileal mucosa of a patient with Crohn's disease. Infect Immun. 67 (9), 4499-4509 (1999).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Barnich, N., et al. Adherent-invasive Escherichia coli in Crohn's disease: the 25th anniversary. Gut. , (2025).
- Kim, J., et al. Genetic and microbial analysis of invasiveness for Escherichia coli strains associated with inflammatory bowel disease. Cell Mol Gastroenterol Hepatol. 19 (4), 101451 (2025).
- Camprubi-Font, C., Martinez-Medina, M. Why the discovery of adherent-invasive Escherichia coli molecular markers is so challenging?. World J Biol Chem. 11 (1), 1-13 (2020).
- Barnich, N., et al. CEACAM6 acts as a receptor for adherent-invasive E. coli, supporting ileal mucosa colonization in Crohn disease. J Clin Invest. 117 (6), 1566-1574 (2007).
- Boudeau, J., Barnich, N., Darfeuille-Michaud, A. Type 1 pili-mediated adherence of Escherichia coli strain LF82 isolated from Crohn's disease is involved in bacterial invasion of intestinal epithelial cells. Mol Microbiol. 39 (5), 1272-1284 (2001).
- Hase, K., et al. Uptake through glycoprotein 2 of FimH(+) bacteria by M cells initiates mucosal immune response. Nature. 462 (7270), 226-230 (2009).
- Chassaing, B., et al. Crohn disease--associated adherent-invasive E. coli bacteria target mouse and human Peyer's patches via long polar fimbriae. J Clin Invest. 121 (3), 966-975 (2011).
- Glasser, A. L., Boudeau, J., Barnich, N., Perruchot, M. H., Colombel, J. F., et al. Adherent invasive Escherichia coli strains from patients with Crohn's disease survive and replicate within macrophages without inducing host cell death. Infect Immun. 69 (9), 5529-5537 (2001).
- Bringer, M. A., Billard, E., Glasser, A. L., Colombel, J. F., Darfeuille-Michaud, A. Replication of Crohn's disease-associated AIEC within macrophages is dependent on TNF-alpha secretion. Lab Invest. 92 (3), 411-419 (2012).
- Ristuccia, A. M., Cunha, B. A. An overview of amikacin. Ther Drug Monit. 7 (1), 12-25 (1985).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., et al. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Vllasaliu, D., Falcone, F. H., Stolnik, S., Garnett, M. Basement membrane influences intestinal epithelial cell growth and presents a barrier to the movement of macromolecules. Exp Cell Res. 323 (1), 218-231 (2014).
- Wine, E., Ossa, J. C., Gray-Owen, S. D., Sherman, P. M. Adherent-invasive Escherichia coli, strain LF82 disrupts apical junctional complexes in polarized epithelia. BMC Microbiol. 9, 180 (2009).
- Jamur, M. C., Oliver, C. Permeabilization of cell membranes. Methods Mol Biol. 588, 63-66 (2010).
- Delmas, J., et al. Metabolic adaptation of adherent-invasive Escherichia coli to exposure to bile salts. Sci Rep. 9 (1), 2175 (2019).
- Zhang, S., et al. Mucosal metabolites fuel the growth and virulence of E. coli linked to Crohn's disease. JCI Insight. 7 (10), (2022).
- Viennois, E., et al. Dietary emulsifiers directly impact adherent-invasive E. coli gene expression to drive chronic intestinal inflammation. Cell Rep. 33 (1), 108229 (2020).
- Chassaing, B., Etienne-Mesmin, L., Bonnet, R., Darfeuille-Michaud, A. Bile salts induce long polar fimbriae expression favouring Crohn's disease-associated adherent-invasive Escherichia coli interaction with Peyer's patches. Environ Microbiol. 15 (2), 355-371 (2013).
- Gotoh, K., et al. Bile acid-induced virulence gene expression of Vibrio parahaemolyticus reveals a novel therapeutic potential for bile acid sequestrants. PLoS One. 5 (10), e13365 (2010).
- Bajunaid, W., et al. The T3SS of Shigella: Expression, structure, function, and role in vacuole escape. Microorganisms. 8 (12), (2020).
- Poore, K., Lenneman, B. R., Faherty, C. S. Epithelial cell infection analyses with Shigella. J Vis Exp. (204), e66426 (2024).
- Chimalapati, S., Lafrance, A. E., Chen, L., Orth, K. Vibrio parahaemolyticus: Basic techniques for growth, genetic manipulation, and analysis of virulence factors. Curr Protoc Microbiol. 59 (1), e131 (2020).
- Rodrigues, E., Marzook, N. B., Pallett, M. A., Sateriale, A. Convergent mechanisms of epithelial cell structure manipulation by intestinal pathogens. PLoS Pathog. 21 (7), e1013367 (2025).
- Jaishankar, J., et al. A critical role for Vibrio parahaemolyticus LPS to mediate evasion of host immune response during infection. Proc Natl Acad Sci U S A. 122 (33), e2426547122 (2025).
- Cieza, R. J., Hu, J., Ross, B. N., Sbrana, E., Torres, A. G. The IbeA invasin of adherent-invasive Escherichia coli mediates interaction with intestinal epithelia and macrophages. Infect Immun. 83 (5), 1904-1918 (2015).
- Liu, H., Semino-Mora, C., Dubois, A. Mechanism of H. pylori intracellular entry: an in vitro study. Front Cell Infect Microbiol. 2, 13 (2012).
- Heesemann, J., Laufs, R. Double immunofluorescence microscopic technique for accurate differentiation of extracellularly and intracellularly located bacteria in cell culture. J Clin Microbiol. 22 (2), 168-175 (1985).
- Lev-Tzion, R., Ledder, O., Shteyer, E., Tan, M. L. N., Uhlig, H. H., et al. Oral vancomycin and gentamicin for treatment of very early onset inflammatory bowel disease. Digestion. 95 (4), 310-313 (2017).
Herprints en machtigingen
