Dit protocol beschrijft de totstandkoming van uit patiënten afgeleide colontumor-organoïden in co-cultuur met autologe lymfocyten, gevolgd door behandeling met therapeutische kleine moleculen en immuuncheckpointremmers om de T-celreactiviteit en de effectiviteit van de behandeling te evalueren.
Methodenartikel
Een multimodaal raamwerk voor de beoordeling van co-culturen van patiënt-afgeleide colontumor-organoïden en immuuncellen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
T-cellen spelen een sleutelrol bij kankerimmunotherapie, en het begrijpen van hun interacties met tumoren is essentieel voor de ontwikkeling van nieuwe immunotherapieën. Dit protocol beschrijft de stapsgewijze workflow voor het vestigen van colorectale kanker-patiëntafgeleide organoïden (PDO's) uit onze biobank en het ontwikkelen van autologe PDO-T-cel co-cultuursystemen. Met behulp van Annexine V NIR- en gekliefde caspase-3-kleuring hebben we flowcytometrieprotocollen voor oppervlakte- en intracellulaire kleuring gestandaardiseerd om de T-celreactiviteit en cytotoxiciteit, cũng als het doden van tumororganoïden, te beoordelen. Naast analyse op basis van flowcytometrie bevat het protocol methodologische benaderingen voor functionele assays, zoals ELISpot-assays om de secretie van granzym B en perforine te kwantificeren, en live-cell imaging om T-cel-gemedieerde tumordoding in de tijd te monitoren via Annexine V-gebaseerde apoptosedetectie. Deze workflow specificeert verder de opzet van de co-cultuurcondities, inclusief de incorporatie van doelinhibitoren en immuuncheckpoint-inhibitoren in zowel monotherapie- als combinatietherapie-instellingen. Er worden richtlijnen gegeven voor het selecteren en toepassen van belangrijke immunologische en tumor-geassocieerde markers, waaronder CD137 voor T-celreactiviteit, CD107a voor T-celdegranulatie, caspase-3 voor tumorapoptose en Ki67 voor tumorproliferatie. Gezamenlijk biedt dit artikel een uitgebreid en reproduceerbaar kader voor het vestigen van colorectale kankerorganoïden, autologe T-celkweek en expansie, co-cultuuropzet, therapeutische verstoringen en downstream-analyses met behulp van flowcytometrie, ELISpot, confocale microscopie en live-cell imaging.
Inleiding
Colorectale kanker (CRC) blijft wereldwijd een van de belangrijkste oorzaken van kankergerelateerde sterfte, ondanks vorderingen in vroege detectie en multimodale therapieën1. Een grote uitdaging bij het verbeteren van de patiëntuitkomsten is het gebrek aan preklinische modellen die de complexe architectuur, intratumorale heterogeniteit, tumor-immuuninteracties en therapeutische responsen die bij menselijke CRC worden waargenomen, nauwkeurig nabootsen2,3,4,5,6. Conventionele modellen, waaronder genetisch gemodificeerde muismodellen (GEMMs) en patient-derived xenografts (PDXs), hebben het CRC-onderzoek aanzienlijk vooruitgeholpen, maar kennen opmerkelijke beperkingen. GEMMs slagen er vaak niet in om de diversiteit van menselijke tumoren te vatten en worden ontwikkeld in murine micro-omgevingen die aanzienlijk verschillen van de menselijke fysiologie. Op dezelfde manier behouden PDX-modellen aspecten van tumorheterogeniteit, maar zijn ze kostbaar, tijdrovend, afhankelijk van immuundeficiënte muizen en beperkt in hun vermogen om mensspecifieke immuunresponsen te bestuderen vanwege soortspecifieke verschillen7,8. Daarnaast benadrukken toenemende beperkingen op het gebruik van kleine laboratoriumdieren de behoefte aan menselijker relevante en ethisch duurzame alternatieven.
In de afgelopen jaren zijn patiëntafgeleide organoïden (PDO's) ontstaan als een transformatief platform voor translationeel kankeronderzoek. CRC-organoïden, gegenereerd uit verse chirurgische monsters of biopten, behouden de histologische, genetische en fenotypische kenmerken van primaire tumoren, inclusief clonale diversiteit en therapie-responsieve celtoestanden. Deze eigenschappen maken PDO's waardevolle instrumenten voor ziektemodellering, functionele genomica, biomarker-ontdekking en gepersonaliseerde geneeskunde7,8,9,10,11. Belangrijk is dat de integratie van menselijke immuuncomponenten in organoïdesystemen hun bruikbaarheid verder heeft uitgebreid. Co-cultuur van CRC-organoïden met mononucleaire cellen uit perifeer bloed (PBMC's) of gemanipuleerde immuunsubsets maakt het mogelijk om tumor-immuuninteracties, mechanismen van immuunontwijking, antigeenpresentatie en immuuntherapiereacties in een fysiologisch relevant systeem te onderzoeken12. Dergelijke modellen ondersteunen de evaluatie van checkpointremmers, CAR-T/TCR-therapieën en bispecifieke antilichamen, terwijl ze inzicht bieden in predictieve biomarkers en resistentiemechanismen.
Naast immunotherapie zijn CRC-organoïden steeds belangrijker geworden voor drugscreening en toepassingen in de precisie-oncologie. Op patiënten gebaseerde culturen kunnen worden getest op chemotherapeutische en gerichte therapeutische middelen om individuele behandelingsreacties te voorspellen, waarbij verschillende studies correlaties hebben aangetoond tussen organoïdereacties en klinische uitkomsten. Deze systemen bieden daarom een schaalbaar en patiëntgericht alternatief voor conventionele diergebaseerde benaderingen10,13,14,15,16,17,18.
Hier wordt een hanteerbaar en schaalbaar protocol gepresenteerd voor het vestigen van uit patiënten afgeleide CRC-organoïden en het integreren hiervan in immuun co-cultuursystemen voor translationeel en preklinisch onderzoek. Tumorgeweefsels worden enzymatisch gedissocieerd en ingebed in een driedimensionale extracellulaire matrix onder geoptimaliseerde groeicondities die de tumorheterogeniteit en liniediifferentiatie behouden. Gevestigde organoïden kunnen worden uitgebreid, cryopreserveerd, genetisch gemanipuleerd en gebruikt voor downstream-applicaties, waaronder moleculaire karakterisering, drug perturbation-studies en immuunprofilering. Daarnaast maakt co-cultuur met PBMCs de beoordeling van immuun-gemedieerde cytotoxiciteit, gevoeligheid voor checkpoint-blokkade en tumorspecifieke immuunactivatie mogelijk.
We beschrijven verder protocollen voor weefselverwerking, kwaliteitsbeoordeling van organoïden, flowcytometrische analyse, immunofluorescentie-imaging en ELISpot-gebaseerde immuunmonitoring. Samen bieden deze op organoïden gebaseerde systemen een ethisch duurzaam en klinisch relevant platform voor het bestuderen van de biologie van colorectale kanker (CRC), therapeutische resistentie, tumorheterogeniteit en immuuntherapiereacties. Voortdurende vorderingen in organoïde-engineering en micro-omgevingsintegratie blijven deze modellen positioneren als een hoeksteen van toekomstig CRC-onderzoek en precisie-oncologie.
Protocol
Alle patiënten gaven geïnformeerde toestemming onder het door de IRB goedgekeurde Montefiore Einstein Comprehensive Cancer Center Biobank-protocol (Einstein IRB# 2021-13730). De klinische coördinatie en regelgevende ondersteuning werden verzorgd door het Cancer Clinical Trials Office (CCTO). Tumorgeweefsels werden verzameld na chirurgische resectie volgens de standaardzorg en pathologische beoordeling, en vervolgens verwerkt voor formalinefixatie, generatie van patiënt-afgeleide organoïden of cryopreservatie in DMEM met 20% FBS en 10% DMSO. Alle reagensvoorbereidingen staan in Tabel 1.
1. Vestiging van tumororganoïdcultuur uit biopsie- of resectieweefsel (4 u)
- Plaats het vers verkregen tumorweefsel in een steriele Petrischaal en was dit 5 keer met organoïden-wasbuffer, telkens gedurende 5 min op ijs. Dissekeer het weefsel met een steriel scheermesje of fijne naalden in kleine blokjes van ongeveer 1–2 mm3.
OPMERKING: Houd het weefsel tijdens de dissectie vochtig met ijskoud fosfaatgebufferde zoutoplossing (PBS) om uitdroging te voorkomen. - Overbreng de gedissekeerde weefselfragmenten naar een 15 mL Falcon-buis, was deze één keer met Dulbecco's fosfaatgebufferde zoutoplossing (DPBS) en centrifugeer 5 min bij 200 x g op kamertemperatuur (RT). Verwijder voorzichtig het supernatant en breng de weefselblokjes vervolgens over naar een steriele 6-wells plaat of een 35-mm Petrischaal.
- Hak het weefsel verder in fijnere stukjes met steriele, schuine, geautoclaveerde scharen. Verdun 1 mL 1X Gentle Collagenase/Hyaluronidase in 9 mL DPBS. Voeg 10 µL Y-27632 (ROCK-inhibitor) en 20 µL Primocin toe.
- Voeg de voorverwarmde dissociatie-oplossing toe aan de 15 mL buis met de weefselstukjes. Coat uw P1000-tip opnieuw voordat u herhaaldelijk opzuigt en uitspuugt om de weefselstukjes te agiteren.
- Incubeer de 15 mL buis 30 min in een schuddend waterbad bij 37 °C, waarbij de buis elke 10 min wordt omgedraaid. Laat de weefselstukjes bezinken, breng het grootste deel van de digestie-oplossing over naar een nieuwe buis en centrifugeer 5 min bij 500 x g op RT.
- Voeg 1 mL DMEM toe aan de oorspronkelijke 15 mL buis en pipetteer krachtig met een gecoate P1000-tip om weefselfragmenten mechanisch te dissociëren en extra crypten vrij te maken.
- Controleer de voortgang onder een microscoop om te zien of het weefsel uiteenvalt in enkelvoudige cellen of kleine clusters. Breng 10–20 µL van uw DMEM met weefselstukjes over naar een Petrischaal en onderzoek deze onder de microscoop op crypten.
OPMERKING: De incubatietijd varieert per monstertype. Voor biopsieën is de incubatietijd 15–30 min, en voor chirurgische resecties is dit 45–60 min. - Zodra crypten zijn gedetecteerd (of na 30 min voor biopsieën/60 min voor resecties), stop de digestie met een gelijk volume ijskoud basaal medium en centrifugeer 5 min bij 500 x g op RT.
- Was het pellet met DPBS om het opnieuw te suspenderen en centrifugeer vervolgens opnieuw. Optioneel kan de suspensie worden overgebracht naar een conische buis en gecentrifugeerd worden bij 300 x g gedurende 5 min op RT om de cellen te pelletteren.
OPMERKING: Voor CRC is RBC-lyse meestal niet nodig. - Als het pellet rood oogt, lyseer dan de erytrocyten door deze 15 min bij RT te incuberen in 5 mL RBC-lysebuffer . Vul de buis na lyse onmiddellijk met PBS en centrifugeer opnieuw.
- Was het pellet één keer met DPBS. Centrifugeer 5 min bij 300 x g op RT en verwijder vervolgens het supernatant. Suspendeer het pellet in een klein volume medium. Tel de levende cellen met een hemocytometer met trypaanblauw-uitsluiting of een geautomatiseerde celteller.
- Suspendeer de cellen in ijskoud Matrigel (basaalmembraanmatrix) (Optioneel: concentratie van ~1,5–3 x 10⁴ cellen per 10 µL medium). Meng de celsuspensie met de basaalmembraanmatrix met behulp van gekoelde tips met een wijde opening (sommige laboratoria gebruiken een 1:1 verhouding van basaalmembraanmatrix tot volledig organoïdenmedium).
OPMERKING: Houd de basaalmembraanmatrix en alle mengsels ijskoud om voortijdige polymerisatie te voorkomen. - Breng ~50 µL koepels (domes) van het mengsel van cellen en basaalmembraanmatrix aan in elke well van een voorverwarmde, steriele 24-wells kweekplaat. Incubeer de plaat 10–12 min bij 37 °C zodat de basaalmembraanmatrix kan stollen tot een koepelvorm (plaats de plaat ondersteboven).
- Zet de plaat na stolling van de basaalmembraanmatrix rechtop. Voeg voorzichtig 500 µL/well PDO-medium toe dat Rock-inhibitor (1:1000) en Primocin (1:500) bevat.
OPMERKING: Gebruik Primocin in alle kweekmedia totdat er een bevroren organoïden-biobank is opgezet om contaminatie te voorkomen. - Vervang het organoïdenmedium tweemaal per week door vers, volledig organoïdenmedium. Controleer de groei van de organoïden regelmatig onder een microscoop.
2. Isolatie van menselijke PBMC's uit bloed (2 u)
- Verdeel aliquots van 5 mL Histopaque over steriele 15 mL Falcon-buisjes, laat deze equilibreren tot RT en breng voorzichtig een gelijk volume vers menselijk bloed (tot 5 mL) aan als bovenlaag. Breng het bloed langzaam langs de wand van het buisje over het Ficoll aan zonder de interface te verstoren; houd het totale volume ≤10 mL per buisje.
OPMERKING: Behoud duidelijke Ficoll- en bloedlagen vóór centrifugatie voor een optimale scheiding. - Indien er meerdere buisjes worden gebruikt, moeten deze correct worden gebalanceerd in de centrifuge. Vermijd mengen of schudden. De bloed–Ficoll-interface moet intact blijven.
- Centrifugeer bij 1500 x g gedurende 15 min bij RT. Gebruik remstand 0 om verstoring van de gradiënt te voorkomen. Na centrifugatie vormen zich duidelijke lagen: a) de onderste RBC-laag, b) de middelste PBMC buffy coat en c) de bovenste plasmalaag. Aspireer voorzichtig de plasma en verwijder deze totdat de buffy coat-laag zichtbaar is.
OPMERKING: Hanteer het buisje voorzichtig om de PBMC-laag niet te verstoren. - Aspireer met een nieuwe steriele pipet voorzichtig de buffy coat-laag die de PBMCs bevat en breng de cellen over naar een nieuw steriel 15 mL Falcon-buisje. Om Ficoll en bloedplaatjes te verwijderen, worden de cellen tweemaal gewassen met 10 mL PBSA (PBS + 0,1% BSA) door centrifugatie bij 1000 x g gedurende 7 min bij RT, waarbij na elke wasbeurt het supernatant voorzichtig wordt verwijderd.
- Om resterende bloedplaatjes te verwijderen, wordt er eenmaal gewassen met PBSA en gecentrifugeerd bij 200 x g gedurende 7 min bij RT. Verwijder voorzichtig het supernatant. Als het pellet rood oogt, voer dan RBC-lyse uit door incubatie in 5 mL RBC-lysebuffer bij 37 °C gedurende 5 min, was vervolgens met PBSA en centrifugeer bij 200 x g gedurende 7 min bij RT.
- Resuspendeer het PBMC-pellet in 2 mL DPBS of kweekmedium en bepaal het aantal levensvatbare cellen met Trypan blue met behulp van een hemocytometer of een automatische cel teller. Indien niet direct gebruikt, cryopreserveer de PBMCs bij 5–10 x 106 cellen/mL in 90% FBS en 10% DMSO. Vries geleidelijk in bij –80 °C gedurende een nacht en breng ze daarna over naar vloeibare stikstof voor langdurige bewaring.
- Expansie van PBMCs (7–12 dagen):
- Pellet de cellen door centrifugatie bij 500 x g gedurende 5 min bij RT. Resuspendeer op 5 x 10⁵ cellen/well in T-cel expansiemedium en activeer met een CD3/CD28-cocktail.
- Stimuleer de cellen met 500 IU/mL IL-2 en incubeer gedurende 3 dagen. Meng en tel op dag 3 de cellen en breid de kweek vervolgens uit door toevoeging van met IL-2 aangevuld T-cel expansiemedium.
- Stel de cellen in op 1–2,5 x 10^5 cellen/mL in compleet T-cel expansiemedium, incubeer gedurende 2 dagen en monitor de levensvatbaarheid elke 2–3 dagen tijdens de expansie.
OPMERKING: Vervang elke 2–3 dagen door vers, warm compleet medium (overschrijd niet >3 dagen). PBMCs kunnen worden cryopreserveerd in T-cel vriesmedium voor toekomstig gebruik.
3. Organoïde co-cultuur (4 dagen):
- Voorbereiding en kwaliteitscontrole:
- Zorg ervoor dat organoïden gezond en vrij van contaminatie zijn en fenotypisch gekarakteriseerd zijn vóór de co-cultuur. Verkrijg PBMC's van donoren met toestemming of uit commerciële bronnen en bevestig de levensvatbaarheid en het basis-fenotype vóór gebruik.
- Bepaal of PBMC's vers, in rust of vooraf geactiveerd worden gebruikt, en of ze autoloog of allogeen zijn. Beoordeel de levensvatbaarheid, grootte-uniformiteit en marker-expressie van de organoïden vóór de co-cultuur.
- Valideer de levensvatbaarheid van de PBMC's en de basis-immuunsamenstelling (CD3, CD4, CD8, NK-markers, monocyten) en leg de metadata van de donor vast.
- Isolatie van organoïden voor co-cultuur met PBMC's:
- Verwijder het kweekmedium en voeg in elke well een voorverwarmde cell-recovery-oplossing toe om de extracellulaire matrix op te lossen en de organoïden vrij te maken. Resuspendeer de organoïden voorzichtig met een wide-bore pipetpunt en incubeer kort tot de matrix is opgelost en de organoïden zijn vrijgekomen.
- Overbreng de suspensie naar een opvangbuis, voeg indien nodig 0,5M EDTA toe en pas het volume aan met een gebalanceerde buffer. Centrifugeer om de organoïden te pelletteren, verwijder het supernatant, was met basaal medium bevattende supplementen (HEPES en Glutamax) en antibiotica, en centrifugeer opnieuw om opnieuw te pelletteren.
- Resuspendeer de organoïden in compleet kweekmedium, zaai ze uit in een weefselkweek-behandelde plaat en laat ze circa 24 u herstellen vóór verdere verwerking.
- Parallelle PBMC-terugwinning:
- Ontdooi cryopreserveerde PBMC's snel volgens de standaardprocedure en verdun ze onmiddellijk in voorverwarmd T-cel-expansiemedium om osmotische shock te minimaliseren.
OPMERKING: Sommige celverlies is gebruikelijk tijdens het ontdooien; het voorverwarmen van het medium verbetert de terugwinning. - Centrifugeer ontdooide PBMC's bij 400 x g om de cellen te pelletteren, verwijder het vriesmedium en incubeer kort in T-cel-expansiemedium bevattende benzonase om celklontervorming te verminderen en de kwaliteit van de single-cell-suspensie te verbeteren.
- Was en pelletteer PBMC's opnieuw in vers expansiemedium, en resuspendeer ze vervolgens in T-cel-kweekmedium aangevuld met cytokines (bijv. IL-2) om de levensvatbaarheid en het herstel te ondersteunen. Zaai PBMC's uit in een multi-wellplaat voor een rustperiode van een nacht vóór de co-cultuur.
- Ontdooi cryopreserveerde PBMC's snel volgens de standaardprocedure en verdun ze onmiddellijk in voorverwarmd T-cel-expansiemedium om osmotische shock te minimaliseren.
- Voorbereiding vóór de co-cultuur (1 dag vóór de co-cultuur):
- Behandel de organoïden optioneel met een immuunstimulerend cytokine (bijv. IFN-γ) vóór de co-cultuur om antigenpresentatie-routes te verbeteren.
- Bereid de co-cultuurplaat ten minste 24 u van tevoren voor door de wells te coaten met een co-stimulerend antilichaam (bijv. anti-CD28) en bewaar deze bij 4 °C. Verwijder vóór gebruik het ongebonden antilichaam en was de wells twee keer met DPBS.
- Dissociatie van organoïden tot single-cells (Dag van het co-cultuur-experiment):
- Verzamel vooraf gestimuleerde organoïden, pelletteer ze en verwijder het supernatant, resuspendeer ze vervolgens in een enzymatisch dissociatiereagens (bijv. TrypLE) samen met alle adherente cellen om de volledige celpopulatie terug te winnen.
- Incubeer met voorzichtig mengen en monitor microscopisch tot de meeste organoïden zijn gedissocieerd tot single-cells of kleine clusters, waarbij over-digestie moet worden vermeden.
- Neutraliseer het dissociatiereagens met buffer, pelletteer de cellen, verwijder het supernatant en resuspendeer in T-cel-kweekmedium voor telling en menging.
- Celtelling en voorbereiding voor co-cultuur:
- Meng de celsuspensie voorzichtig en bepaal het aantal levensvatbare cellen met een hemocytometer of een automatische teller met een levensvatbaarheidsverf. Pas de tumor–PBMC-ratio aan naar de gewenste dichtheid in T-celmedium.
- Bereid PBMC's voor door te pelletteren, te resuspenderen in vers medium en het aantal levensvatbare cellen te bepalen. Was en resuspendeer PBMC's in T-celmedium aangevuld met cytokines (bijv. IL-2) en optionele immunomodulerende antilichamen (bijv. anti-PD-1) indien vereist.
- Voer de co-cultuur uit:
- Combineer gedissocieerde tumorcellen en PBMC's in de gewenste effector:target-ratio. Was de anti-CD28-gecoate wells vóór het toevoegen van de cellen, waarbij moet worden voorkomen dat de wells uitdrogen.
- Zaai het organoïde–PBMC-mengsel uit in het vereiste assay-volume en incubeer onder standaard kweekcondities. Ververs of split de culturen indien nodig tijdens het experiment.
- Experimenteel ontwerp en controles (voor behandelstrategie):
- Gebruik het co-cultuursysteem om te evalueren hoe geneesmiddelen (bijv. checkpoint-remmers of kleine moleculen) de PBMC-responsen op tumor-organoïden moduleren.
- Neem biologische replica's mee (meerdere organoïde-lijnen en PBMC-donoren) en technische replica's (minstens drie wells per conditie).
- Neem controles mee: alleen organoïde, alleen PBMC (vehicle of geactiveerd), organoïde + PBMC's (vehicle), organoïde + geneesmiddel, en PBMC + geneesmiddel condities.
- Typische tijdstroomschema's voor co-cultuur:
- Analyseer co-culturen na 24, 48 en 72 u na initiatie om immuunactivatie, proliferatie, cytokine-secretie, apoptose en tumorceldoding te beoordelen.
- Beoordeel vroege activatiemarkers en cytokine-secretie na 24 u, en evalueer cytotoxiciteit, proliferatie en activatie-/uitputtingsmarkers na 48–72 u met behulp van flowcytometrie, imaging of levensvatbaarheid-assays.
OPMERKING: Latere tijdstippen (bijv. dag 5–7) kunnen worden opgenomen om chronische activatie, immuunuitputting of langetermijnresponsen op geneesmiddelen te beoordelen.
- Immunofluorescentiekleuring van organoïden:
- Was de slides 5 min in PBS en fixeer ze 20 min bij RT in een 4% paraformaldehyde (PFA)-oplossing. Was de slides na fixatie twee keer gedurende 5 min in PBS.
OPMERKING: Houd organoïden gedurende de hele kleuring gehydrateerd. Slides kunnen indien nodig tot 3 u bij RT in PBS worden bewaard, maar vermijd bewaring overnacht in PBS. - Permeabiliseer organoïden met 0,1–0,5% Triton X-100 in PBS gedurende 15–20 min bij RT om intracellulaire en nucleaire kleuring mogelijk te maken terwijl de organoïde-structuur behouden blijft.
OPMERKING: Vermijd over-permeabilisatie, omdat dit de organoïde-structuur kan verstoren. Correcte permeabilisatie zorgt voor uniforme cytoplasmatische en nucleaire kleuring terwijl de morfologie voor imaging behouden blijft. - Was slides twee keer met 1x IF-buffer en blokkeer met 1–10% BSA (of soortspecifiek serum) in IF-buffer gedurende 60–120 min bij RT om aspecifieke kleuring te verminderen.
OPMERKING: BSA is geschikt voor algemene blokkering, maar soortspecifiek serum wordt aanbevolen voor specifieke marker-kleuring om aspecifieke binding te verminderen en de signaalspecificiteit te verbeteren. - Was slides drie keer (elk 5 min) en incubeer met primaire antilichamen (10–50 µg/mL) in 1% serum-blokkeringsbuffer overnacht bij 4 °C in een bevochtigde kamer.
OPMERKING: Dek slides af met parafilm om verdamping te voorkomen en optimaliseer de concentratie van het primaire antilichaam door titratie voor specifieke kleuring met minimale achtergrond. - Was slides in 1x IF gedurende 3 x 5 min.
OPMERKING: Het wassen moet worden geoptimaliseerd voor individuele antilichaamkleuring. Als er gelijktijdig meer dan één primair antilichaam wordt gebruikt, moet het wassen worden gestandaardiseerd. - Incubeer organoïde-slides met fluorofoor-geconjugeerde secundaire antilichamen (1:200–1:500 in 1% serum-blokkeringsbuffer) in een bevochtigde kamer overnacht bij 4 °C of 2 u bij RT in het donker.
OPMERKING: Voer na het toevoegen van het secundaire antilichaam alle volgende stappen in het donker uit om fotobleken van de fluoroforen te voorkomen. - Was slides met 1x IF-buffer (2x 5 min) gevolgd door PBS (5 min). Incubeer met DAPI (1 µg/mL) en AlexaFluor-594-geconjugeerde antilichamen (20 µg/mL) in 5% serum-blokkeringsbuffer gedurende 1 u bij RT in het donker, en was vervolgens met PBS (3x 5 min).
- Voeg montage medium toe aan de slides en het dekglas, en plaats vervolgens het dekglas op de slide terwijl luchtbellen worden vermeden. Als er montage medium met DAPI wordt gebruikt, kan de DAPI-kleuring worden overgeslagen. Gebruik een hard-mounting medium voor slide-scanning toepassingen.
- Laat slides een uur drogen bij RT, bewaar ze bij –20 °C en beeld ze af met behulp van confocale microscopie of een slide-scanner.
- Was de slides 5 min in PBS en fixeer ze 20 min bij RT in een 4% paraformaldehyde (PFA)-oplossing. Was de slides na fixatie twee keer gedurende 5 min in PBS.
4. Protocol voor flowcytometrie en intracellulaire kleuring voor organoïden
- Aspireer zorgvuldig het organoïden-kweekmedium en was de organoïden voorzichtig één keer met 1x PBS om resterend medium en serumproteïnen te verwijderen. Laat de organoïden vrij uit de extracellulaire matrix met behulp van koude PBS of een hersteloplossing en pipetteer voorzichtig om de matrix te verbreken, waarbij schuifspanning tot een minimum wordt beperkt.
- Overbreng de organoïdensuspensie naar een centrifugebuis, pellet bij 300 x g gedurende 5 min bij 4 °C en verwijder het supernatant. Resuspendeer de organoïdenpellet in 250–500 µL 0,05% TrypLE-oplossing voor enzymatische dissociatie. Incubeer bij 37 °C voor een efficiënte digestie van cel-celverbindingen.
OPMERKING: Meng de suspensie elke 5 min voorzichtig door te tikken en op en neer te pipetteren, en controleer onder een microscoop totdat een single-cell suspensie is bereikt zonder overdigestie. - Filter de celsuspensie door een 40 µm cell strainer om klonters te verwijderen. Centrifugeer de cellen bij 300 x g gedurende 5 min bij 4 °C en resuspendeer in 1x PBS zonder Ca2+ / Mg2+ buffer.
- Tel de cellen en pas deze aan op ~1 x 10⁶ cellen/mL in kleuringsbuffer. Incubeer met Fc-blok (1:200) en een viabiliteitskleurstof (bijv. Live/Dead Blue, 1:1000–1:3000) om aspecifieke binding te verminderen en levende/dode cellen te identificeren.
- Incubeer de cellen gedurende 30 min bij RT in het donker, was vervolgens één keer met 1x PBS en één keer met kleuringsbuffer.
- Bereid de oppervlakte-antilichaamcocktail voor door elk antilichaam in de geoptimaliseerde werkverdunning in kleuringsbuffer te mengen en de totale volumes voor de mastermix te berekenen met behulp van de getitreerde µL/test-waarden.
OPMERKING: Als uw panel meerdere fluorochromen op polymeerbasis bevat (bijv. Brilliant Violet, Brilliant Ultraviolet of Brilliant Blue kleurstoffen), voeg dan Brilliant Stain Buffer (BSB) toe aan de antilichaamcocktail om interacties tussen fluorochromen te verminderen en de signaalresolutie te verbeteren. Voeg BSB toe volgens de instructies van de fabrikant (doorgaans 1x eindconcentratie), meng voorzichtig en bereid een mastermix voor alle monsters voor (~10% extra volume). Bescherm tegen licht en bewaar op ijs tot gebruik. - Voeg de antilichaamcocktail toe en incubeer gedurende 30–50 min bij RT in het donker. Was met kleuringsbuffer en PBS (zonder Ca2⁺/Mg2⁺) en centrifugeer vervolgens bij 500 x g gedurende 5 min. Bereid de werkingsoplossing voor fixatie/permeabilisatie door het concentraat te verdunnen met het verdunningsmiddel. Bijvoorbeeld, 1 deel concentraat: 3 delen verdunningsmiddel (om 1x of de gespecificeerde werksterkte te verkrijgen).
- Voeg de fixatie/permeabilisatie-oplossing toe om de cellen volledig te resuspenderen (~100–200 µL per 1 miljoen cellen) en incubeer gedurende 15–20 min bij RT of 2–8 °C, beschermd tegen licht. Was na de fixatietijd de cellen met 1x permeabilisatiebuffer. Verwijder het supernatant. Herhaal het wassen minstens één keer (soms twee keer) om overtollig fixatiemiddel te verwijderen.
- Bereid een intracellulaire kleuringscocktail voor door fluorescent gekoppelde antilichamen te verdunnen tot geoptimaliseerde concentraties in 1x permeabilisatiebuffer. Voeg de intracellulaire antilichaamcocktail toe aan de gepermeabiliseerde cellen, inclusief antilichamen gericht tegen cytokinen, transcriptiefactoren of gefosforyleerde proteïnen, indien vereist.
- Incubeer de cellen gedurende 2 u bij RT in het donker.
OPMERKING: Indien nodig kan de incubatietijd worden verkort tot de minimale aanbeveling van de fabrikant of kan deze overnacht bij 4 °C in het donker worden uitgevoerd zonder de kleuringskwaliteit te beïnvloeden. - Was de cellen twee keer met 1x permeabilisatiebuffer en één keer met kleuringsbuffer, en resuspendeer de pellet vervolgens in 250–300 µL kleuringsbuffer.
- Filter de suspensie door een 40 µm strainer om een single-cell suspensie te verkrijgen en bewaar de monsters op ijs of bij 4 °C, beschermd tegen licht, tot aan de analyse. Vermijd langdurige bewaring van gekleurde monsters en analyseer de monsters zo snel mogelijk na kleuring op de cytometer.
- Gebruik een flowcytometer met geschikte lasers en filters die passen bij de fluoroforen. Stel compensatiecontroles in, inclusief enkel-gekleurde monsters en fluorescence-minus-one (FMO) controles.
- Veramel ten minste 50.000–100.000 events per monster voor een robuuste statistische analyse. Analyseer de gegevens met FlowJo, FCS Express of vergelijkbare software. Gate op levende, enkelvoudige cellen. Analyseer de expressie van oppervlakte- en intracellulaire markers.
OPMERKING: Titreer elk antilichaam-fluorochroomconjugaat met behulp van seriële verdunningen om de optimale concentratie te bepalen die een maximaal signaal, minimale achtergrond en een duidelijke populatiescheiding oplevert.
5. Annexine V-gebaseerde apoptoseanalyse via flowcytometrie:
- Essentiële controles en reagentia:
- Ongekleurde controle: stelt de basislijn van cellulaire autofluorescentie vast, waardoor een onderscheid kan worden gemaakt tussen het werkelijke positieve signaal en de achtergrond.
- Controles met enkelvoudige kleuring: Vereist voor elk fluorochroom in het panel om een correcte compensatie (conventionele cytometrie) of spectrale ontmenging (spectrale cytometrie) mogelijk te maken. Deze waarborgen een nauwkeurige scheiding van signalen over de kanalen.
- Fluorescence-minus-one (FMO)-controles: Essentieel voor het definiëren van gates voor zwakke of transitionele populaties. Ze helpen om overschatting van zwak positieve events te voorkomen.
- Positieve controle voor apoptose: Een monster waarin apoptose doelbewust is geïnduceerd (bijv. staurosporine-behandelde cellen) valideert dat de assay apoptotische gebeurtenissen betrouwbaar detecteert.
- Isotypecontroles: Niet nuttig voor Annexine V zelf, aangezien de binding fosfolipide-specifiek is en niet door antilichamen wordt gemedieerd. Ze kunnen echter wel worden toegevoegd voor aanvullende antilichamen tegen oppervlaktemarkers indien nodig.
OPMERKING: Gebruik Annexine V-bindingsbuffer die calciumionen bevat, aangezien de binding van Annexine V calciumafhankelijk is; gebruik een commerciële of gevalideerde equivalente buffer. - Een membraan-ondoordringbare levensvatbaarheidskleurstof (bijv. PI, 7-AAD, DAPI of fixeerbare dead cell dyes) wordt gebruikt om vroeg-apoptotische cellen te onderscheiden van laat-apoptotische/necrotische cellen. Selecteer een kleurstof die compatibel is met de lasers van de flowcytometer en de fixatiecondities.
- Kleuringsprocedure:
- Oogst de samen gekweekte cellen door de platen te centrifugeren bij 500 x g. g gedurende 5 min. Aspireer voorzichtig het supernatant en gooi dit weg om het kweekmedium en zwevend debris te verwijderen. Was de cellen twee keer met koud kleuringsbuffer (bijv. PBS met 1–2% FBS) om achtergrondkleuring te verminderen en interfererende eiwitten te verwijderen.
- Indien lineage- of subsetmarkers nodig zijn (bijv. CD8 voor PBMC's, een kankerstamcelmarker zoals Lgr5 in tumorcellen), worden de cellen gedurende 30–45 min bij kamertemperatuur op een zachte schudmachine, beschermd tegen licht, geïncubeerd met antilichaamcocktails. Oppervlaktekleuring in deze fase behoudt de antigenintegriteit en maakt compartimentspecifieke analyse mogelijk.
- Was de cellen twee keer: eerst met koude kleuringsbuffer om ongebonden antilichamen te verwijderen, gevolgd door Annexine V-bindingsbuffer (bijv. BioLegend Cat. Nr. 422201) om de beschikbaarheid van calcium te waarborgen. Pas de celconcentratie aan naar ongeveer 1 x 10⁶ cellen/mL in bindbuffer.
- Toevoegen 5 µL van fluorochroom-geconjugeerd Annexine V-reagens aan 100 µL cel-suspensie per monster. Het gekozen fluorochroom moet spectraal compatibel zijn met andere kleurstoffen in het panel.
- Kleur tegen met een levensvatigheidsdye zoals PI, 7-AAD of DAPI. Voor PI en DAPI liggen optimale verdunningen doorgaans tussen 1:1.000 en 1:60.000, afhankelijk van het instrument en de lasersterkte, en dienen empirisch te worden bepaald. Fixeerbare levensvatigheidsdyes zijn bij voorkeur te gebruiken indien downstream fixatie vereist is.
- Resuspendeer de cellen voorzichtig door herhaaldelijk op te zuigen en uit te pipetteren en incubeer deze gedurende 20–40 min bij kamertemperatuur in het donker. De optimale incubatietijd dient empirisch te worden bepaald, aangezien overmatige incubatie kan leiden tot een toename van aspecifieke binding of fout-positieve resultaten.
- Toevoegen 200 µL Annexine V-bindingsbuffer aan elke put (minimaal 100 µL (indien de monsters sterk geconcentreerd zijn). Dit biedt voldoende volume voor flowcytometrie en handhaaft de buffercondities tijdens de acquisitie. Analyseer de monsters onmiddellijk op een gekalibreerde flowcytometer, waarbij wordt gecontroleerd of de spanningsinstellingen zijn geoptimaliseerd om negatieve en positieve populaties duidelijk te kunnen onderscheiden.
- Aanbevolen gatingstrategie:
- Gebruik forward scatter (FSC) versus side scatter (SSC) plots om klein debris en grote aggregaten te elimineren, zodat alleen intacte cellen overblijven. Pas FSC-A versus FSC-H (of FSC-W) gating toe om doubletten en aggregaten te verwijderen, om ervoor te zorgen dat alleen enkelvoudige cellen worden geanalyseerd.
- Sluit op basis van de levensvatbaarheidskleurstof indien passend sterk positieve dode cellen uit. Neem de kleurstof alternatieve op in de kwadranten van de Annexine V-analyse. Gebruik oppervlaktemarkers om PBMCs (bijv. CD45+) te onderscheiden van tumorcellen (bijv. EpCAM+ of een andere tumorspecifieke marker). Dit maakt compartimentspecifieke kwantificering van apoptose mogelijk.
- Zet binnen elk gegated compartiment Annexine V uit tegen de levensvatbaarheidskleurstof om vier populaties te genereren: a) Annexine V− / Kleurstof− = Levensvatbare cellen; b) Annexine V+ / Kleurstof− = Vroeg apoptotische cellen; c) Annexine V+ / Kleurstof+ = Laat apoptotische of necrotische cellen; d) Annexine V− / Kleurstof+ = Primaire necrotische cellen of artefacten (voorzichtig te interpreteren).
- Verder onderverdelen van PBMC's in subsets (bijv. CD4 T-cellen, CD8 T-cellen, NK-cellen, monocyten) om apoptoseprofielen in specifieke immuunpopulaties te onderzoeken.
6. ELISPOT-assay voor T-celmonitoring in organoïde co-culturen (3 dagen):
- Was op dag 0 de vooraf gecoate PVDF-membraan 96-well plaat en activeer deze. Bewaar 24 u bij 4 °C volgens het ELISpot-protocolkit voor de detectie van het antilichaam/cytokine van belang.
- Op dag 1:
- Maak van de organoïden een suspensie van enkelvoudige cellen zoals beschreven in sectie 3.5. Centrifugeer 5 min bij 500 x g bij RT en resuspendeer vervolgens in CTL-medium (meegeleverd bij de CTL ELISpot-kit). Ontdooi de cryopreserveerde PBMC's of gebruik vers geïsoleerde PBMC's. Centrifugeer de PBMC's 5 min bij 500 x g bij RT.
- Resuspendeer de PBMC's in het kit-medium. Voer de co-cultuur uit door de enkelvoudige organoïde-cellen voorzichtig te mengen met de PBMC's in een ratio van 5:1. Voeg 200 µL/well van het co-cultuurmengsel toe aan elke well van de vooraf geactiveerde 96-well assayplaat. Tik zeer voorzichtig tegen de plaat. Incubeer 4 u bij 37 °C. Haal na 4 u de assayplaat voorzichtig uit de incubator. Voeg behandelingen toe aan de aangewezen wells, inclusief passende positieve en negatieve controles.
OPMERKING: De ratio organoïde:PBMC moet worden geoptimaliseerd voor een optimale ontwikkeling van cytokine-spots en scanningresultaten.
- Op dag 2:
- Volg na 24 u incubatie het kleuringsprotocol van de fabrikant. Overweeg controles voor enkelvoudige kleur en dubbele kleur om het aantal cellen dat de gespecificeerde markers uitscheidt te detecteren en te vergelijken. De incubatietijd varieert per kleur en de spotontwikkeling moet regelmatig worden gecontroleerd. Scan de plaat volgens de instructies van de fabrikant. Zet de uitgescheiden immuunspots uit en vergelijk deze.
OPMERKING: Op basis van het experimentele ontwerp en de markers van belang geeft de relatie tussen de uitgeplaatte cellen en de spots de expressie van het cytokine/antilichaam aan in enkelvoudige of dubbele kleur.
- Volg na 24 u incubatie het kleuringsprotocol van de fabrikant. Overweeg controles voor enkelvoudige kleur en dubbele kleur om het aantal cellen dat de gespecificeerde markers uitscheidt te detecteren en te vergelijken. De incubatietijd varieert per kleur en de spotontwikkeling moet regelmatig worden gecontroleerd. Scan de plaat volgens de instructies van de fabrikant. Zet de uitgescheiden immuunspots uit en vergelijk deze.
7. Real-time detectie van apoptose met Annexin V NIR en live-cell imaging (3 dagen):
In combinatie met geautomatiseerde live-cell imaging maakt Annexin V NIR real-time, high-throughput monitoring van apoptotische celdood mogelijk voor de analyse van drugrespons en cytotoxiciteit.
- Maak op dag 0 de organoïden om tot een single-cell suspensie. Kleur de cellen met een GFP-cell tracer. Zaai de gekleurde enkelcellen uit in 100 µL volledig medium per putje. Laat de cellen hechten en clusters vormen.
OPMERKING: Gebruik 96-wells platen met U-bodem en ultra-lage hechting. Typische startdensiteiten (empirisch aanpassen): 5.000 cellen/putje, 10.000 cellen/putje. Neem putjes op voor een onbehandelde negatieve controle, voertuigcontrole en eventuele experimentele behandelingen (in triplo of meer). - Ontdooi op dag 1 cryopreserveerde PBMC's of gebruik vers geïsoleerde PBMC's. Centrifugeer de PBMC's bij 500 x g gedurende 5 min bij RT. Resuspendeer de PBMC's in expansiemedium aangevuld met IL-2 en incubeer ze in de incubator.
- Kleur op dag 2 de PBMC's met een gele cell tracer-kleurstof. Resuspendeer de PBMC's na het kleuren in RPMI. Verwijder het organoïdemedium zeer voorzichtig uit de plaat. Voer de co-cultuur uit door de organoïde enkelcellen voorzichtig te mengen met de PBMC's in een ratio van 1:5. Voeg 200 µL RPMI-medium met PBMC's toe aan elk putje van het co-cultuurmengsel. Tik de plaat zeer voorzichtig aan en plaats deze in de incubator.
OPMERKING: Vermijd het verstoren van de organoïde enkelcellen op de bodem van de putjes. - Incubeer gedurende 2–4 u bij 37 °C. Verwijder na 4 u de plaat voorzichtig uit de incubator.
- Bereid de drug-putjes voor met passende positieve en negatieve controles. Reconstitueer het geliofiliseerde Annexin V NIR-reagens in 100 µL volledig medium of PBS en meng voorzichtig. Bereid een 2x behandelmedium voor met Annexin V NIR in een tweemaal zo hoge concentratie als de uiteindelijke werkconcentratie (bijv. 1:100 voor een uiteindelijke verdunning van 1:200) en zorg dat het medium ≥1 mM Ca2⁺ bevat.
- Voeg een 1:200 verdunning van Annexin V NIR toe aan de putjes. Plaats de plaat voor de volgende 48–72 u in een live-cell imaging incubator.
OPMERKING: De ratio tussen organoïden en PBMC's moet worden geoptimaliseerd om voldoende cel-celinteracties en meetbare apoptotische responsen te garanderen. - Live-cell imaging en analyse
- Gebruik een 4x of 10x objectief en neem beelden op in het NIR-kanaal voor Annexin V NIR (plus extra kanalen bij multiplexing). Scan de plaat elke 4–6 u gedurende 24–72 u, afhankelijk van de behandelduur.
- Gebruik live-cell imaging software zoals de IncuCyte CX3. Analyseer voor basiskwantificering het NIR-kanaal met behulp van het totale oppervlak of het aantal objecten; gebruik voor kinetiek op enkelcelniveau de Cell-by-Cell of Object-analysemodules. Controleer bij multiplexing (bijv. Cell tracer yellow en GFP) de aantekeningen over spectrale ontmenging.
Resultaten
Om te beginnen hebben we tumor-organoïden gegenereerd uit monsters van verschillende patiëntenen met behulp van een gestandaardiseerde workflow (Figuur 1). Deze PDO's vereisen doorgaans 2 weken voor de vestiging, waarna ze kunnen worden uitgebreid en gepassaged voor verder onderzoek. Er moet worden opgemerkt dat de vestigingstijd en de generatie van organoïden per weefsel verschillen. Zo hebben sommige weefsels extra tijd nodig om de organoïden te genereren, en hebben sommige organoïden meer tijd nodig om de juiste confluentie te bereiken om gepassaged te worden. De supplementen in het medium voor de organoïden kunnen dienovereenkomstig worden aangepast.
Vervolgens hebben we het hier beschreven protocol (Figuur 2) gebruikt om een co-cultuur van organoïden en T-cellen op te zetten. PBMCs uit het perifere bloed van de patiënt werden geïsoleerd zoals beschreven en vervolgens geëxpandeerd. De tumor:lymfocyt-ratio moet worden geoptimaliseerd, aangezien ratio's buiten dit bereik tot andere resultaten kunnen leiden. Een lagere ratio kan de mate van interacties tussen organoïden en T-cellen beperken.
Om de functionaliteit van het co-cultuursysteem te beoordelen, hebben we parallelle immunofluorescentie-beeldvorming van organoïden en co-culturen uitgevoerd om Ki67 en cleaved caspase-3 respectievelijk als biomarkers voor proliferatie en apoptose te vergelijken (Figuur 3). De levensvatbaarheid en functionaliteit van de co-cultuur werden aangetoond door Annexine V- en DAPI-kleuring. Om T-cellen te onderscheiden van organoïden, werden immuuncellen en organoïden eerst gekleurd zoals beschreven en geanalyseerd via flowcytometrie (Figuur 4A). Na de behandelingen werden de co-culturen gekleurd met Annexine V en DAPI en gemeten met behulp van flowcytometrie. De Cell Trace-markers maken een aparte meting van apoptose in T-cellen (Figuur 4B) en organoïden (Figuur 4C) mogelijk.
De immuunbiomarkers CD107a en CD137 werden ook geëvalueerd middels flowcytometrie (Figuur 5A). Beide markers duiden doorgaans op T-celactivatie of degranulatie. In deze studie kan de T-celreactiviteit na co-cultuur worden geëvalueerd aan de hand van de expressie van CD107a en CD137 (Figuur 5 B,C). Vervolgens werd een live-cell imaging-systeem gebruikt om de apoptose van PDO-T-celcocultures tijdens de behandeling te monitoren. De kwalitatieve (Figuur 6A) en kwantitatieve (Figuur 6Banalyses tonen organoïde-apoptose onder verschillende omstandigheden gedurende een periode van 33 uur. Het IncuCyte CX3-platform werd gebruikt om interacties tussen tumorganoïden en PBMC's continu te monitoren. De scantijd kan worden ingesteld op het gewenste tijdstip na een willekeurige behandeling.
Er werd een Immunospot-assay uitgevoerd om de secretie van Granzyme B- en Perforine-cytokinen te kwantificeren in organoïde-coculturen die gedurende 24 u behandeld waren met geneesmiddel A en anti-PD-1, zowel in monotherapie als in combinatie. We hebben ELISpot double color gebruikt voor CRC PDO-cocultuur (Figuur 7). Het is belangrijk op te merken dat de verhouding tussen organoïden en lymfocyten kan leiden tot verschillende cytokineprofielen.
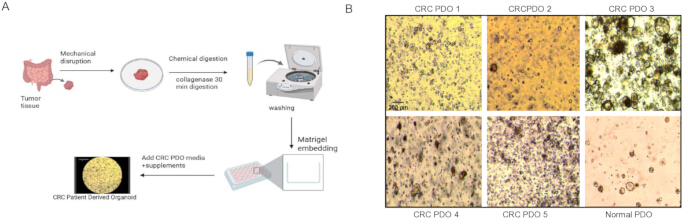
Figuur 1. Vestiging van CRC-tumorganoïden. (A) Grafische weergave van de procedure voor de vestiging van tumorganoïden. (B) Representatieve gevestigde patiëntafgeleide organoïden. Beelden met 4X vergroting van gevestigde PDO-culturen tijdens normale groei (verkregen met Echo Revolve middels fasecontrastmicroscopie). Schaalbalk = 200 µm. Deze figuur is aangepast van Mohammadi M et al. 19. Klik hier om een grotere versie van deze figuur te bekijken.
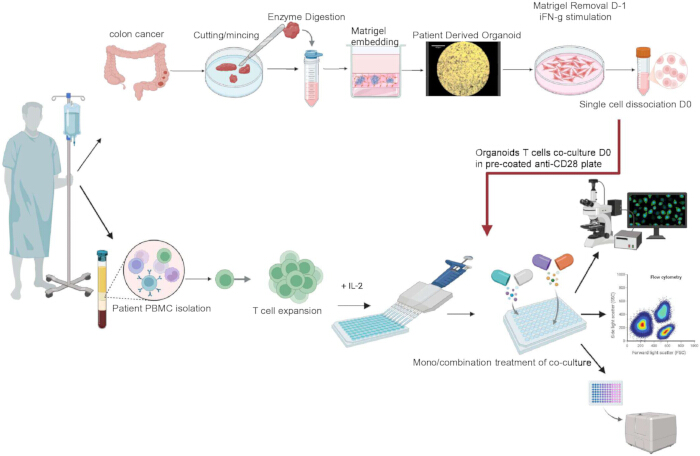
Figuur 2. Grafische weergave van de co-cultuur van tumororganoïden en immuuncellen en de daaropvolgende analyse. Tumororganoïden worden parallel aan de isolatie en expansie van immuuncellen gevestigd. Single-cell suspensies van tumororganoïden en immuuncellen worden in gedefinieerde ratio's samen gekweekt. Na 24 h worden de co-culturen behandeld. De daaropvolgende analyses worden uitgevoerd zoals beschreven in dit protocol. Klik hier om een grotere versie van deze figuur te bekijken.
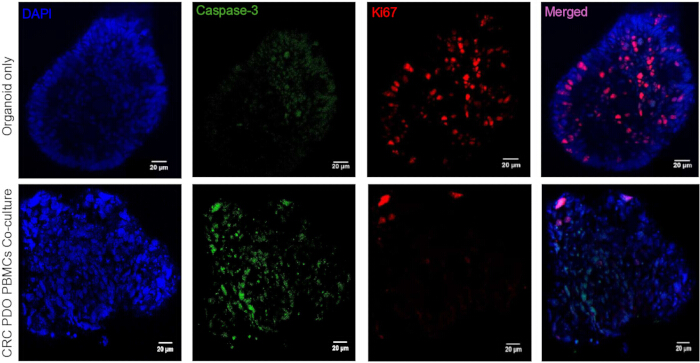
Figuur 3. Vergelijking van organoïden en co-cultuur na 24 u. Confocale microscopie werd uitgevoerd om Ki67 (proliferatie) en cleaved caspase-3 (apoptose) markers te beoordelen met een 40X vergroting. De organoïden werden geplaatst en in co-cultuur gebracht met autologe immuuncellen. Ze werden daarnaast gekleurd met DAPI voor visualisatie van de kernen. Schaalbalk = 20 µm. Klik hier om een grotere versie van deze figuur te bekijken.
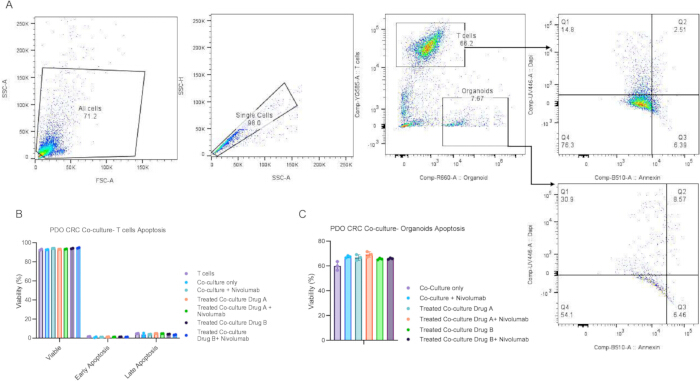
Figuur 4. Kwantificering van apoptose in co-culturen met behulp van een apoptose-flowcytometrie-assay. (A) Gating-strategie voor flowcytometrie die de labeling van tumorcellen met CellTrace Far Red en T-cellen met CellTrace Far Yellow laat zien. De Annexin V vs DAPI-plots tonen de viabiliteit van T-cellen en organoïden na 48 h. (B) Kwantificering van de viabiliteit van T-cellen onder verschillende behandelingscondities. (C) Kwantificering van apoptose in tumororganoïden onder verschillende behandelingscondities. Het experiment werd in drievoud uitgevoerd. Drug A en Drug B werden geëvalueerd als doelgerichte therapieën, zowel afzonderlijk als in combinatie met anti-PD-1 (nivolumab). Klik hier om een grotere versie van deze figuur te bekijken.
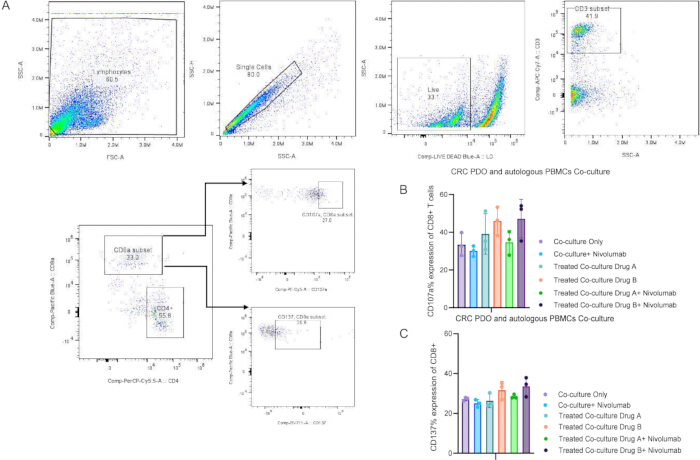
Figuur 5. Evaluatie van immuunmarkers in CRC organoïde-immuuncel co-cultuur. (A) Flowcytometrie gating-strategie om CD8+ T-cellen te detecteren die de T-cel activatiemarkers CD107a en CD137 tot expressie brengen. (B) Vergelijking van de CD107a expressieniveaus van CD8+ T-cellen uit co-culturen over verschillende behandelingsgroepen. (C) Vergelijking van de CD137 expressieniveaus van CD8+ T-cellen uit co-culturen over verschillende behandelingsgroepen. Drug A en Drug B werden geëvalueerd als doelgerichte therapieën, zowel afzonderlijk als in combinatie met anti-PD-1 (nivolumab). Het experiment werd in triplicaat uitgevoerd. De staafgrafiek toont het gemiddelde percentage met SD voor markers in verschillende groepen (p = 0,0023 via eenweg-ANOVA). Klik hier om een grotere versie van deze figuur te bekijken.
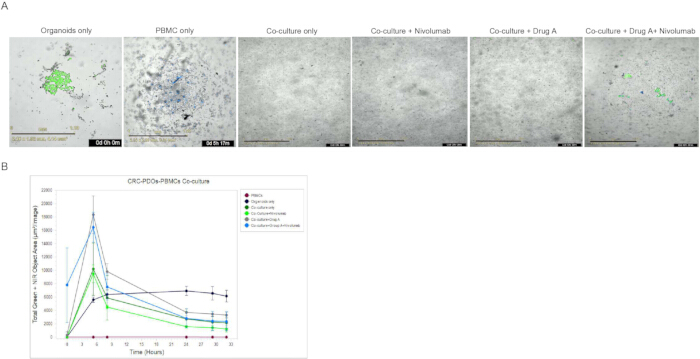
Figuur 6. Live-cell imaging analyse van CRC-organoïde-immuuncel co-cultuur. (A) Representatieve live-cell beelden (korte time-lapse opnames) van tumororganoïden en immuuncellen vastgelegd met het IncuCyte CX3-systeem op dag 0. Tumororganoïden zijn gelabeld met een groene fluorescerende kleurstof om ze te onderscheiden van perifere mononucleaire bloedcellen gekleurd met cell trace yellow, fluorescerende kleurstof (PBMC's; blauw). (B) Kwantificering van apoptose van tumororganoïden tijdens co-cultuur onder verschillende behandelingscondities. Apoptotische celdood werd gemonitord met de Annexin V Near-Infrared (NIR) assay tijdens continue live-cell imaging over een periode van 33 h. Schaalbalk = 1 mm. Klik hier om een grotere versie van deze figuur te bekijken.
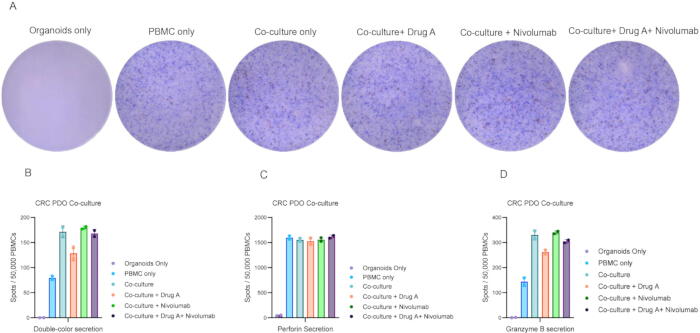
Figuur 7. Representatieve ELISpot-resultaten voor cytokine-kwantificatie (granzyme B en perforine) in CRC organoïde-immuuncel co-culture. (A) Representatieve imaging van de immuunassay en ontwikkeling van menselijke Granzyme B (rood) en perforine (blauw) secreties door stimulatie en behandeling van effectorcellen na 24 u co-culture. (B) Dubbelgekleurde (perforine in blauw en Granzyme B in rood) secreties. (C) Perforine-secretie per conditie. (D) Granzyme B-secretie per conditie. De assay werd in dubbeltoestand uitgevoerd. Scanning en telling werden uitgevoerd met een CTL-analyzer, en de gegevens werden uitgezet in GraphPad Prism. Klik hier om een grotere versie van deze figuur te bekijken.
| Nummer | Buffer/reagens | Procedure | Opmerkingen |
| 1 | CRC PDO-medium | Ontdooi L-WRN, kweek gedurende de gespecificeerde tijd tot confluentie is bereikt, verzamel het medium en voeg elke dag vers medium toe gedurende maximaal 12-14 dagen. Voeg Advanced DMEM toe aan het verzamelde medium, filter dit en supplementeer direct na het filteren met GLUTAMAX I, HEPES, [LEU15]-Gastrine I Human, B-27 (serumvrij), N2, penicilline-streptomycine en N-acetylcysteïne. | Voeg op de startdag van het experiment de tweede set supplementen toe aan het kweekmedium voor de organoïden: A83-01, SB202190, EGF, nicotinamide en PGE2. Voeg Y-27632 en Primocin toe gedurende de eerste week na het ontdooien en passeren. Bewaar bij -80 °C. |
| 2 | Wasmedium voor organoïden | Voeg Primocin in een verhouding van 1:500, Gentamicine in een verhouding van 1:200, 1% Penicilline/streptomycine en Amfotericine in een verhouding van 1:100 toe in PBS | |
| 3 | Ontdooiingsmedium voor T-cellen | Supplementeer RPMI-1640 met 1% penicilline/streptomycine en 10% FBS | |
| 4 | T-cel groeimedium | Voeg 10% humaan serumalbumine en 1% penicilline/streptomycine toe aan RPMI-1640. | Bewaar het medium bij 4 °C niet langer dan 1 maand |
| 5 | T-celexpansiemedium | Vul het T-celgroeimedium aan met 500 IU/mL IL-2 en een CD3/CD28-cocktail. | Vers bereiden |
| 6 | Invriesmedium | Maak 10% DMSO in FBS | |
| 7 | Coatingsbuffer | Voeg 1% BSA en 15 mM HEPES toe aan Advanced DMEM/F12 | Bewaar de buffer bij 4 °C gedurende maximaal 3 maanden |
| 8 | FACS-buffer | Voeg 1% FBS toe aan PBS | Bewaren bij 4 °C |
| 9 | IF-buffer | Voeg 0,2% Triton X-100 en 0,05% Tween-20 toe aan PBS | Bewaren bij 4 °C |
| 10 | Blokkeringsbuffer | Voeg 1% runderseerumeiwit (BSA) toe aan de IF-buffer | Bewaren bij 4 °C |
Tabel 1: Bereiding van reagentia. De samenstelling en bereiding van buffers, media, kleuringsoplossingen en supplementen die worden gebruikt voor de kweek van organoïden afgeleid van patiënten met colorectale kanker, PBMC-isolatie en -expansie, co-kweek van organoïden en immuuncellen, flowcytometrie, immunofluorescentie, ELISpot en live-cell imaging-assays worden in dit protocol beschreven.
Discussie
In dit protocol werd een hanteerbare, reproduceerbare methode beschreven voor het genereren van PDO's en uitgebreide T-cellen uit onze biobankrepository. De PDO CRC co-cultuuropstelling voor onze patiëntenmonsters met verschillende mutaties, samen met het behandelingsschema, werden ook in detail beschreven. De behaalde resultaten demonstreerden het effect van de behandeling op de co-cultuurmodellen.
Het hier beschreven organoïde co-cultuursysteem biedt een robuust, aanpasbaar platform voor het modelleren van complexe biologische interacties in vitro. Door PBMC's te integreren met bijbehorende patiëntafgeleide organoïden, bootst dit protocol de signaleringsdynamiek en functionele heterogeniteit van organoïden beter na dan conventionele 2-D celculturen. In tegenstelling tot eerdere benaderingen met een lagere reproduceerbaarheid of beperkte levensvatbaarheid, optimaliseert onze methode de cultuurcondities om zowel de integriteit van de organoïden als de T-celactiviteit te behouden voor de gewenste tijdstippen20,21. Een belangrijk voordeel van dit protocol is de flexibiliteit. Het kan worden toegepast op diverse organoïdetypen, waaronder darm-, lever- en longmodellen, en ondersteunt co-cultuur met een reeks immuuncellen13,14,20,21,22,23. Deze aanpasbaarheid stelt onderzoekers in staat de methode af te stemmen op hun specifieke biologische vraagstukken, van het ontleden van gastheer-pathogeen interacties tot het evalueren van therapeutische reacties in een patiëntspecifieke context13,20,24,25. Bovendien is de workflow compatibel met downstream-analyses, waaronder transcriptomica, metabolomica en imaging, waardoor het nut voor mechanistische en translationele studies wordt uitgebreid26,27.
Deze protocollen zijn zeer toepasbaar binnen diverse gebieden van de kankerimmunologie, translationele oncologie en gepersonaliseerde geneeskunde13,20,21. Het organoïde-immuun co-cultureplatform biedt een fysiologisch relevant en schaalbaar systeem voor het bestuderen van patiëntspecifieke tumor-immuuninteracties, het evalueren van immunotherapieën en gerichte behandelingen, en het identificeren van biomarkers voor respons of resistentie13,14,20,21. Door de integratie van functionele assays zoals flowcytometrie, ELISpot en live-cell imaging maken deze methoden een uitgebreide analyse mogelijk van immuunactivatie, cytotoxiciteit en tumorgedrag13,14,20,21. Het gebruik van driedimensionale, uit patiënten afgeleide organoïden versterkt de translationele relevantie verder door tumorheterogeniteit en micro-omgevingskenmerken te behouden, waardoor deze protocollen waardevolle instrumenten zijn voor preklinische drugstesten en de ontwikkeling van immunotherapy van de volgende generatie13,14,20.
Ondanks hun voordelen hebben organoïde-modellen nog steeds beperkingen. De efficiëntie van de vestiging van organoïden varieert afhankelijk van het tumortype, de monsterkwaliteit en de eerdere behandelgeschiedenis, in het bijzonder bij zwaar voorbehandelde tumoren20,21. Bovendien ontbreken in organoïden vaak cruciale componenten van de tumor-micro-omgeving, zoals fibroblasten, vaten en stromale signalering14,20,21. Hoewel co-culturesystemen de modellering van tumor-immuuninteracties verbeteren, blijft het behoud van de levensvatbaarheid en functie van immuuncellen in vitro uitdagend13,14,20,21. Variabiliteit in kweekcondities en extracellulaire matrices tussen laboratoria beperkt daarnaast de standaardisatie en reproduceerbaarheid14,20,21.
Toekomstige vorderingen in het organoïdonderzoek zullen zich richten op de integratie van fibroblasten, endotheelcellen, microbiota en autologe immuuncellen om de tumormicro-omgeving beter na te bootsen en gepersonaliseerde immunotherapie-testen te verbeteren28. Opkomende organ-on-chip-systemen en CRISPR/Cas9-gebaseerde engineering zullen ziektemodellering, functionele studies en therapeutische screening verder verbeteren. Standaardisatie via biobanking-initiatieven zal naar verwachting de schaalbaarheid, reproduceerbaarheid en klinische translatie verbeteren. In het geheel biedt dit protocol een reproduceerbaar, fysiologisch relevant platform voor het bestuderen van interacties tussen organoïden en immuuncellen en ondersteunt het translationeel onderzoek en precisie-oncologie.
Openbaarmakingen
C.K. meldt de volgende belangenverstrengelingen, die allen geen betrekking hebben op dit manuscript: Loki Therapeutics (onderzoeksfinanciering), Teiko (consultant), Seattle Genetics (consultant), Insights Driven Research (consultant), BMS (consultant), Guardant Health (consultant), OMNI Oncology (consultant), Exelixis (consultant), Nuvectis Pharma (consultant, geneesmiddelen), Real CME (honoraria). C.K. en N.T. zijn co-uitvinders van de Amerikaanse voorlopige aanvraag 63/746,435, ingediend op 17 januari 2025, welke geen betrekking heeft op dit manuscript. De overige auteurs hebben geen belangenverstrengelingen te melden.
Dankbetuigingen
Dit werk werd ondersteund door het Montefiore Einstein Comprehensive Cancer Center CCSG (P30CA013330). Wij danken Hillary Guzik, Rotem Alon, Jinghang Zhang, Swathi Swaminathan en Jacky Chuen voor de technische ondersteuning. Flowcytometrie-onderzoeken werden uitgevoerd met een Cytek Aurora-analyzer, gefinancierd door de National Institutes of Health (1S10OD026833-01) bij de Albert Einstein College of Medicine Flow Cytometry Core Facility. Confocale beeldvorming werd uitgevoerd met een Leica STELLARIS 8-microscoop, gefinancierd door de NIH (1S10OD034397-01) bij de Albert Einstein College of Medicine Analytical Imaging Facility. E.N., W.E. en C.K. werden ondersteund door NIH-beurzen T32CA200561, R01CA248536, R42CA287679 en K12CA279871. De financiers hadden geen rol bij de voorbereiding van het manuscript.
We erkennen tevens The Ruth L. and David S. Gottesman Institute for Stem Cell and Regenerative Medicine Research voor MM, NS en NT.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Chemicaliën, reagentia en antilichamen | |||
| B27-supplement zonder vitamine A | GIBCO | C12587-010 | |
| B27-supplement | GIBCO | 17504-044 | |
| N-acetylcysteïne | Sigma-Aldrich | A9165-5G | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| Humaan recombinant EGF | Peprotech | AF-100-15 | |
| N2 | Gibco | 17502001 | |
| A83-01 | Tocris | 2939 | |
| SB202190 | Cayman Chemicals | 10010399 | |
| Prostaglandine E2 | Cayman Chemical | 14010-1 | |
| Y-27632 | Sigma-Aldrich | Y-0503 | |
| Collagenase type II | Sigma-Aldrich | C6885 | |
| Hyaluronidase type IV | Sigma-Aldrich | H3506 | |
| Advanced DMEM-F12 | GIBCO | 12634-028 | |
| Penicilline/streptomycine | GIBCO | 15070063 | |
| Ultraglutamine type I | Lonza | BE17-605E | |
| HEPES | GIBCO | 15630-056 | |
| TrypLE Express | GIBCO | 12604-013 | |
| Herstelmedium voor het invriezen van celkweken | GIBCO | 12648-010 | |
| RPMI 1640 | GIBCO | 11875093 | |
| Menselijk serum, afkomstig van menselijk AB-plasma van mannen | Sigma-Aldrich | H3667 | |
| Benzonase | Merck | 70746-3 | |
| Humaan recombinant interferon gamma | Peprotech | 300-02 | |
| Dispase type II | Sigma-Aldrich | D4693 | |
| Celhersteloplossing | Corning | 354253 | |
| Invivogen Primocin | Invivogen ANTPM1 | NC9141851 | |
| Recombinant menselijke IL-2 (geëxpressed in E. coli, vrij van dragers) | Biolegend | 791906 | |
| Recombinant menselijk IL-7 (geëxpressieerd in E. coli, carrier-vrij) | Biolegend | 569706 | |
| Recombinant humaan IL-15 (carrier-vrij) | Biolegend | 570306 | |
| PE/Cyanine5 anti-humaan CD107a (LAMP-1) | Biolegend | 328656 | |
| Brilliant Violet 711™ anti-humaan CD137 (4-1BB) | Biolegend | 309832 | |
| Pacific Blue™ anti-human CD8a-antilichaam | Biolegend | 300928 | |
| anti-humaan CD3-APC/Cy7 | Biolegend | 317342 | |
| anti-menselijk CD4PerCP/Cyanine5.5 anti-menselijk CD4 | Biolegend | 980810 | |
| Alexa Fluor® 647 anti-human/muis Granzyme B | Biolegend | 515406 | |
| anti-human CD56-PE/Cy7 | Biolegend | 985912 | |
| PE/Dazzle™ 594 anti-human IFN-γ Antilichaam | Biolegend | 506530 | |
| PE anti-human CD274 (B7-H1, PD-L1) | Biolegend | 393608 | |
| Gezuiverd anti-menselijk CD28-antilichaam | Biolegend | 302901 | |
| Brilliant Violet 510™ anti-human CD45-antilichaam | Biolegend | 304036 | |
| Muis anti-mens CD326 (EpCAM) (PE/Cy7-geconjugeerd) | Biolegend | 324222 | |
| anti-Ki67 | Abcam | ab15580 | |
| NucView® 488 Caspase-3 Assay Kit voor levende cellen | Biotium | 30029 | |
| FITC Annexine V apoptosedetectiekit met PI | Biolegend | 640914 | |
| PE/Cyanine7 Annexine V | Biolegend | 640950 | |
| Incucyte® Annexine V NIR-kleurstof | Sartorius | 4768 | |
| LEVEND/DOOD™ Fixable Blue Dead Cell Stain Kit, voor UV-excitatie | Invitrogen | L23105 | |
| Cell Trace Far Yellow | Thermo Fisher | C34567 | |
| Cell Trace Far red | Thermo Fisher | C34564 | |
| Groen CMFDA | MedChem Express | HY-126561 | |
| Human TruStain FcX™ (Fc-receptorblokkeringsoplossing) | Biolegend | 422302 | |
| Brilliant Stain Buffer | BD Biosciences | 563794 | |
| BD Pharmingen™ Kleuringsbuffer (BSA) | BD Biosciences | 554657 | |
| Compensatiekraaltjes | Biolegends | 424602 | |
| Corning® Dulbecco’Fosfaatgebufferde zoutoplossing, 1X zonder calcium en magnesium | Corning | 20-031-CM | |
| Corning® Dulbecco’Fosfaatgebufferde zoutoplossing, 1X met calcium en magnesium | Corning | 20-030-CV | |
| Anti-humaan PD1-antilichaam (nivolumab) | Merus/Selleckchem | A2002 | |
| Dimethylsulfoxide | Fisher Scientific | BP231-100 | |
| DMEM | Genesee | 25-500 | |
| EDTA-buffer | Invitrogen | 15575020 | |
| FBS | VWR | 97068-075 | |
| PBS | Genesee | 25-507 | |
| Paraformaldehyde (PFA) | Thermo Scientific Chemicals | 0473779L | |
| Fixatie/Permeabilisatie-oplossingskit | BD | 554714 | |
| Gastrine I MENS*** (HUMAN) | Millipore | G9145-.1MG | |
| GLUTAMAX I | Fisher Scientific | 35050061 | |
| CD3/CD28-cocktail | STEMCELL Technologies | 10971 | |
| Immunocult expansiemedium | STEMCELL Technologies | 10981 | |
| ProLong Diamond Antifade Mountant met DAPI | Invitrogen | P36962 | |
| Triton X-100 | Thermo Scientific Chemicals | 215680025 | |
| Trypanblauwoplossing, 0,4% | Gibco | 15250061 | |
| Tween-20 | TCI America | T0543500G | |
| Apparatuur | |||
| Flowcytometer/Flowcytometrie Core-faciliteit | Cytek (Wuxi) Biosciences | Model nr. N7-0021 | |
| Flowcytometer/Singh Lab | Invitrogen | ATTUNE NXT (Model nr. 4486517) | |
| Confocale microscoop | Leica | STELLARIS 8 | |
| Live-cell analysesysteem | Sartorius | Incucyte CX3 |
Referenties
- Cervantes A, et al. Metastatic colorectal cancer: ESMO Clinical Practice Guideline for diagnosis, treatment and follow-up. Ann Oncol. 2023;34(1):10-32.
- Colonna G. Overcoming barriers in cancer biology research: current limitations and solutions. Cancers (Basel). 2025;17(13):2102.
- Liu Y, et al. Patient-derived xenograft models in cancer therapy: technologies and applications. Signal Transduct Target Ther. 2023;8(1):160.
- Rocha Neto J, Gaspar MM, Reis CP. Experimental murine models for colorectal cancer research. Cancers (Basel). 2023;15(9):2570.
- Bleijs M, van de Wetering M, Clevers H, Drost J. Xenograft and organoid model systems in cancer research. EMBO J. 2019;38(15).
- Hou X, et al. Opportunities and challenges of patient-derived models in cancer research: patient-derived xenografts, patient-derived organoids and patient-derived cells. World J Surg Oncol. 2022;20(1):37.
- Tentler JJ, et al. Patient-derived tumour xenografts as models for oncology drug development. Nat Rev Clin Oncol. 2012;9(6):338-50.
- Drost J, Clevers H. Organoids in cancer research. Nat Rev Cancer. 2018;18(7):407-18.
- Zeng G, et al. Advancing cancer research through organoid technology. J Transl Med. 2024;22(1):1007.
- Jin MZ, et al. Organoids: an intermediate modeling platform in precision oncology. Cancer Lett. 2018;414:174-80.
- Dart A. Organoid 2.0. Nat Rev Cancer. 2019;19(3):126-7.
- Cattaneo CM, et al. Tumor organoid-T-cell coculture systems. Nat Protoc. 2020;15(1):15-39.
- Neal JT, et al. Organoid modeling of the tumor immune microenvironment. Cell. 2018;175(7):1972-88.e16.
- Bar-Ephraim YE, Kretzschmar K, Clevers H. Organoids in immunological research. Nat Rev Immunol. 2020;20(5):279-93.
- Jang J, et al. Redefining preclinical testing: human-relevant alternatives beyond animal models. BMB Rep. 2025; in press.
- Xie BY, Wu AW. Organoid culture of isolated cells from patient-derived tissues with colorectal cancer. Chin Med J (Engl). 2016;129(20):2469-75.
- Vlachogiannis G, et al. Patient-derived organoids model treatment response of metastatic gastrointestinal cancers. Science. 2018;359(6378):920-6.
- Ooft SN, et al. Patient-derived organoids can predict response to chemotherapy in metastatic colorectal cancer patients. Sci Transl Med. 2019;11(513).
- Mohammadi M, et al. Cyclin-dependent kinase 9 inhibitors as oncogene signaling modulators in combination with targeted therapy for the treatment of colorectal cancer [Preprint]. bioRxiv. 2025:2025.08.13.669992. doi:10.1101/2025.08.13.669992.
- Guo L, et al. Toward reproducible tumor organoid culture: focusing on standardization. Front Immunol. 2024;15:1290504.
- Wang J, et al. Tumor organoid-immune co-culture models: exploring a new frontier in cancer research. Cell Death Discov. 2025;11:98.
- Najafi M, et al. Organoid-immune co-cultures: a next-generation platform for studying human immunology and disease. Trends Immunol. 2026;47(1):45-62.
- Kakni P, et al. A microwell-based intestinal organoid-macrophage co-culture system to study intestinal inflammation. Biomaterials. 2022;276:121018.
- Meirelles LA, Persat A. Decoding host-microbe interactions with engineered human organoids. EMBO J. 2025;44(6):1569-73.
- Ryu JO, et al. Applications and research trends in organoid-based infectious disease models. Sci Rep. 2025;15:7816.
- Du L, et al. Spatial omics in 3D culture model systems. Nat Rev Bioeng. 2025;3(1):45-67.
- Lombardi M, et al. Organoid models through the lens of metabolomics. Analyst. 2026;151(4):1458-78.
- Skardal A, et al. Drug compound screening in single and integrated multi-organoid body-on-a-chip systems. Biofabrication. 2020;12(2):025017.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar