Dit artikel beschrijft gedetailleerde protocollen voor het onderhouden van een laboratoriumkolonie van Carausius morosus, inclusief belangrijke procedures voor dierhouderij, de omgang met eieren, de verzorging van pasgeboren dieren, representatieve prestatiegegevens en een overzicht van de levensduur en biologische kenmerken van de soort.
Methodenartikel
Een gestandaardiseerd protocol voor het fokken van Carausius morosus (Phasmatodea, Insecta) in laboratoriumomstandigheden
In dit artikel
Samenvatting
Samenvatting
Carausius morosus, de Indiase wandelende tak, is een slank, takachtig insect dat endemisch is in India. Hoewel het via gevangenschap wereldwijd is geïntroduceerd en veelvuldig in laboratoria wordt gebruikt of als huisdier wordt gehouden, ontbreken gestandaardiseerde laboratoriumprotocollen voor de dierhouderij. Hier rapporteren we gedetailleerde laboratoriumkweekcondities voor C. morosus. We houden de populaties aan bij 23 °C, 70% relatieve vochtigheid en een fotoperiode van 12:12 u licht-donker. Deze kweek is onder deze omstandigheden gedurende meer dan twee jaar succesvol in stand gehouden, met gestandaardiseerde protocollen voor de dieet- en kooiopstelling. We rapporteren daarnaast methoden voor de verzorging van eieren en pasgeborenen om lopende experimenten met C. morosus te ondersteunen. Onder onze kweekcondities kwamen 105 gemonitorde batches eieren, gelegd in dezelfde periode van 24 uur, uit binnen een consistente periode van 12 dagen, waarbij 13,9% van de pasgeborenen succesvol de volwassen leeftijd bereikte. Deze gestandaardiseerde methoden verbeteren de reproduceerbaarheid en toegankelijkheid, wat het bredere gebruik van C. morosus als laboratoriummodel mogelijk maakt voor een breed scala aan studies, waaronder analyses van ontwikkeling, gedrag en fysiologie.
Inleiding
Naarmate de belangstelling voor alternatieve niet-zoogdierlijke modelsystemen toeneemt, bieden insecten de mogelijkheid om een breed scala aan biologische diversiteit te verkennen, terwijl ze tegelijkertijd goedkopere onderzoeksmodellen, eenvoudigere verzorgingseisen en minder regelgevende barrières bieden dan zoogdiermodellen1. Opkomende insectmodellen maken het mogelijk om unieke biologische fenomenen te onderzoeken, waaronder bijvoorbeeld parthenogenese bij wandelende takken zoals Carausius morosus (Sinéty, 1901)2. Hoewel de fruitvlieg Drosophila melanogaster ons begrip van ontwikkelings- en genetische processen sinds het begin van de 20e eeuw heeft gevormd3, bieden andere insectmodellen zoals C. morosus een unieke kans, niet alleen voor de ontwikkelingsbiologie, maar ook voor het onderzoek naar motorische controle, voortbeweging en door neurohormonen gereguleerde systemen4.
Daarnaast blijven hemimetabole (direct ontwikkelende) insecten ondervertegenwoordigd binnen het vakgebied van de evolutionaire ontwikkelingsbiologie, waarbij de holometabole (indirect ontwikkelende of metamorfose ondergaande) D. melanogaster dient als het best bestudeerde modelinsect. Door direct ontwikkelende insectensoorten te bestuderen zoals C. morosus, die verschillende nimfstadia doorloopt voordat de seksuele volwassenheid wordt bereikt5, kunnen we belangrijke fylogenetische gaten in het onderzoek naar de evolutionaire ontwikkelingsbiologie opvullen. Dit maakt een vergelijking mogelijk tussen hemimetabole en holometabole insecten, die vroeg in de insectenevolutie divergeerden maar niet gelijkmatig vertegenwoordigd zijn in de huidige laboratoriummodellen. Het bredere gebruik van C. morosus als laboratoriumorganisme is beperkt door inconsistente, niet-reproduceerbare kweekcondities en een gebrek aan duidelijke benchmarks voor ontwikkeling en overleving. Hier beschrijven we een stapsgewijs protocol met gedefinieerde kweekcondities en verwachte resultaten dat in verschillende laboratoria kan worden toegepast, ter ondersteuning van diverse toepassingen, waaronder het volgen van de embryogenese, longitudinale ontwikkeling en experimenten naar de reproductieve output.
C. morosus zijn eenvoudig in gevangenschap te houden, waardoor ze zeer geschikt zijn voor zowel laboratoriumonderzoek als onderwijsomgevingen. Hun vermogen om parthenogenetisch voort te planten6 maakt complexe kweekopstellingen overbodig, waardoor de onderhoudseisen worden verminderd en het populatiebeheer wordt vereenvoudigd. Hoewel een succesvolle kweek profiteert van gecontroleerde omgevingscondities, blijft de verzorging eenvoudig en kosteneffectief in vergelijking met veel andere laboratoriummodellen. C. morosus voedt zich gemakkelijk met gangbaar plantmateriaal zoals klimop (Hedera helix), braam (Rubus fruticosus) of rozenbladeren (Rosa spp.). Andere voordelen van dit systeem zijn autotomie, het vermogen om poten te regenereren7, de grote lichaamsomvang en de mogelijkheid om zich van een breed scala aan waardplanten te voeden. Deze soort heeft echter ook beperkingen, waaronder het ontbreken van een publiek beschikbare genoomsequentie, een relatief lange ontwikkeltijd en een hard embryonaal exochorion dat injecties bemoeilijkt8. Ondanks deze beperkingen biedt C. morosus een praktisch en effectief model voor zowel onderzoeks- als onderwijstoepassingen.
Gestandaardiseerde kweekprotocollen voor C. morosus zijn essentieel voor het verkrijgen van consistente en reproduceerbare resultaten in onderzoeksstudies. Hoewel er in de literatuur meerdere laboratoriumstudies over C. morosus zijn gerapporteerd6,9,10,11,12, zijn er naar onze kennis tot op heden geen gedetailleerde protocollen gepubliceerd voor het kweken van C. morosus in het laboratorium. In deze studie hebben we met succes een uitgebreide set gestandaardiseerde protocollen ontwikkeld voor laboratoriumculturen van C. morosus, inclusief de kweek van eieren, pasgeboren larven en reproductief volwassen exemplaren. Met deze methoden beogen we dit insect toegankelijker te maken voor de bredere biologische onderzoeksgemeenschap.
Protocol
1. Omgevingsomstandigheden voor opfok
- Houd de laboratoriumcultuur in een klimaatgeregelde ruimte of incubator met de volgende omgevingsinstellingen: 23 °C, relatieve vochtigheid 70%, licht-donker-fotoperiode van 12:12 uur.
OPMERKING: Onder deze omstandigheden, C. morosus Verwacht wordt dat de eieren ongeveer 74 tot 80 dagen na het leggen uitkomen.
2. Opzetten en onderhoud van gaasomheiningen
OPMERKING: Voor de huisvesting worden gaas-insectenkooien met stoffen gaasventilatie aan drie zijden aanbevolen C. morosusEen behuizing van 61 x 61 x 91,5 cm is geschikt voor het onderhouden van tot 50 volwassen exemplaren of, bij het opzetten van een nieuwe kolonie, tot 500 jongen.
- Selecteer een gaasomheining van passende grootte. Zorg ervoor dat de container schoon is en vrij van vuil voordat u de dieren introduceert.
- Voor het opzetten van een nieuwe kolonie met behulp van volwassen dieren, plaats 25–50 volwassen vrouwtjes in een schone 61 cm x 61 cm x 91,5 cm grote gaasbehouding.
OPMERKING: De openingen van het gaas moeten liggen tussen 0,2–1,0 mm om te voorkomen dat de kleine eerstelarven ontsnappen. - Voor het opzetten van een nieuwe kolonie met jongen, breng maximaal ongeveer 500 jongen over naar een schone 61 cm x 61 cm x 91,5 cm gaasbehouding.
3. Voeding en onderhoud
- Tijdens het schoonmaken van de kooi laten de insecten in de behuizing blijven; neem ze voorzichtig van het blad af en plaats ze op de bodem van de gaasbehuizing terwijl u rond hen heen schoonmaakt.
OPMERKING: Verwacht dat het schoonmaken ongeveer 10 minuten duurt–20 min per kooi. - Geef eenmaal per week verse bladeren, zoals van klimop, braam of roos. Zorg ervoor dat alle plantmateriaal vrij is van pesticiden. Spoel de bladeren met kraantjeswater voordat ze in de kooien worden geplaatst, om oppervlakte-afval en verontreinigingen te verwijderen.
- Knip de stengels zodanig dat ze passen in kleine potjes of flessen die gevuld zijn met kraanwater om de hydratatie van de bladeren te behouden. Plaats de voorbereide bladverzameling binnenin de behuizing, zorg ervoor dat de bladeren verhoogd zijn en toegankelijk voor de insecten. Sluit de behuizing zorgvuldig nadat alles is geplaatst.
- Verwijder tijdens de wekelijkse kooischoonmaak verwelkte of uitgedroogde bladeren en alle opgehoopte uitwerpselen van de bodem van de behuizing.
OPMERKING: Vervang het loof wanneer de bladeren tekenen van uitdroging vertonen, zoals droogheid, broosheid, verwelking of verkleuring. Het in stand houden van een schone omgeving is essentieel voor de gezondheid en het welzijn van de kolonie. - Besproei elke behuizing dagelijks lichtjes met 1–2 spuitbeurten kraanwater uit een spuitfles van 250 mL om een goede hydratatie te waarborgen.
OPMERKING: Dit is bijzonder cruciaal bij de eerste dag na het uitkomen. Verminder de dichtheid indien snel voedselverbruik optreedt.
4. Verzamelen en onderhouden van Carausius morosus kuikens
OPMERKING: In dit onderzoek gebruiken we “kuiken” om individuen direct na het uitkomen uit het ei (eerste instar) aan te duiden, terwijl “nimf” verwijst naar aan jonge stadia na postembryonale vervellingen.
- Verzamel 6 cm Petrischalen met pas uitgekomen jongen.
- Overbreng met behulp van stompe plastic pincetten voorzichtig niet meer dan 500 uitgekomen jongen naar een schone 61 cm x 61 cm x 91,5 cm grote gaasomheining.
OPMERKING: Verzamel alleen volledig uitgekomen, uitgestrekte nimfen die de uitbreiding van het exoskelet hebben voltooid. Het storen van de nimfen voordat ze volledig uit het ei zijn gekomen, kan de lichaamsuitrekking belemmeren en leiden tot vroegtijdig overlijden. Om soortgelijke redenen dient direct contact met de nimfen na overbrenging naar de gaasomheining tot een minimum te worden beperkt. - Vers blad wordt geleverd zoals beschreven in sectie 3.
- Label nieuwe koloniebehouders met de volgende informatie: datum(s) van eibatchverzameling, datum van uitkomen of bereik van uitkomdatums, en aantal toegevoegde uitgekomen jongen.
OPMERKING: Dit registreert de leeftijd van de behuizing en voorspelt het begin van de reproductieve rijpheid. - Besproei elk hok licht onmiddellijk na het verplaatsen van de pas uitgekomen jongen, en daarna dagelijks, met 1–2 spuitbeurten kraanwater uit een spuitfles van 250 mL om een goede hydratatie te waarborgen.
OPMERKING: Dit is bijzonder cruciaal op de eerste dag na het uitkomen. De jongen kunnen gedurende de gehele ontwikkeling tot volwassenheid in dezelfde behuizing blijven. Onder de in sectie 1 beschreven laboratoriumomstandigheden overleeft ongeveer 13% van de uitgekomen jongen de ontwikkeling tot volwassenheid in 4–5 maanden (Tabel 1). - Verwijder tijdens de wekelijkse kooischoonmaak alle dode of beschadigde jongen om besmetting te voorkomen.
5. Verzamelen en onderhouden van C. morosus eieren
- Open een behuizing met volwassen vrouwtjes.
- Gebruik een behandschte hand om de ondergrond op de bodem van de kooi, die zowel eitjes als uitwerpselen bevat, zachtjes naar de vooropening te vegen.
- Breng het materiaal zorgvuldig met een bevroerde hand over naar een 15 cm Petrischaal voor het ophalen van eitjes.
6. Afvoeren van insecten en verwijderen van behuizingafval
OPMERKING: Wanneer C. morosus niet langer nodig zijn voor experimenten, zijn overleden, of er zijn geen eieren nodig:
- Euthanasie/Verwijdering van insecten: Breng levende of dode insecten die niet langer nodig zijn voor kweek of experimenten over in een autoclaveerbare afvalzak en bewaar in een -20 °C-vrieskast gedurende ten minste 72 uur.
- Eiternage: Om overbevolking te voorkomen, verwijder alle eieren niet gebruikt voor experimenten uit kooien of Petrischalen, plaats ze in een autoclaveerbare afvalzak en bewaar bij -20 °C gedurende ten minste 72 uur.
- Afvalverwerking: Plaats alle verontreinigde afvalstoffen uit behuizingen of materialen die gebruikt zijn voor het verzamelen van eieren of insecten in een autoclaveerbare afvalzak en bewaar bij -20 °C. °C gedurende ten minste 72 uur.
- Na het invriezen van materialen, breng de sterielbare afvalzak over naar een biohazardcontainer voor correcte verwijdering.
OPMERKING: Aangezien C. morosus is een invasieve soort buiten India, is het van cruciaal belang dat alle materialen zoals hierboven beschreven correct worden afgevoerd om een onbedoelde uitstoting in het milieu te voorkomen.
7. Eicelwinning
- Gebruik een stompe plastic pincet om elk ei voorzichtig op te nemen en plaats het in een schone 6 cm petrischaal.
OPMERKING: Volwassen eieren zijn beschermd door een verhard exochorion en zijn donkerbruin van kleur, wat ze doet lijken op plantenzaden. Het gebruik van een witte achtergrond kan helpen bij het onderscheid tussen uitwerpselen en eieren tijdens het sorteren. - Label de schotel met de datum en het tijdstip van verzameling voor volgdoeleinden. Houd het deksel tijdens de incubatie eraf om ventilatie toe te staan.
OPMERKING: Een 6 cm petrischaal is voldoende voor het opslaan van tot 200 eitjes. - Ongeveer 1 week voor het verwachte uitkomen (74–80 dagen na het leggen van eieren; Kovacikova & Extavour, ongepubliceerde gegevens), plaats het deksel van de petrischaal terug.
- Begin dagelijks met het monitoren van de eiercontainers vóór de verwachte uitkomstdatum om uitkomende jongen te kunnen observeren.
8. Levensverwachting
- Na het uitkomen, volg de individuen terwijl ze vijf tot zes vervellingen doormaken voordat ze reproductief volwassen worden, wat onder de in sectie 1 beschreven laboratoriumomstandigheden gemiddeld 139 dagen na het uitkomen plaatsvindt (Tabel 1).
- Om dit protocol te volgen, definieer de ontwikkelingstijd onder deze kweekomstandigheden als volgt: de duur van embryogenese (van eileg tot uitkomen) is 74–80 dagen; de tijd van uitkomen tot seksuele volwassenheid (begin van eileg) is ongeveer 135 dagen, wat overeenkomt met ongeveer 200 dagen van eileg tot seksuele volwassenheid, en de totale levensduur van eileg tot overlijden is ongeveer 9,5 maand.
Resultaten
We hebben gegevens verzameld die de succesvolle laboratoriumkweek van C. morosus documenteren, van eieren tot reproductief volwassen individuen, tussen september 2024 en november 2025. Gedurende deze periode van 14 maanden hebben we vijf kooien ingericht, onderhouden en gemonitord voor een of meer van de volgende parameters: mortaliteit van volwassenen, aantal gelegde eieren, timing van het uitkomen van de eieren en overleving van de nakomelingen tot volwassenheid. Onze methode ondersteunt langetermijnonderhoud van de kolonie zonder duidelijke tekenen van ziekten door pathogenen of reproductieve achteruitgang, wat allemaal suboptimale resultaten zouden vormen. Gedurende meer dan twee jaar van continue kweek hebben we geen duidelijke massale sterfte door pathogenen waargenomen, en de productie van eieren en nakomelingen bleef over de generaties heen stabiel.
Gegevens weergegeven in Figuur 1 en Figuur 2 presenteer de observaties van de vijf gemonitorde kooien vanaf de opzet tot de volwassenheid van de uitkomelingen, inclusief de gelegde eieren en de sterfte onder de volwassenen per kooi. Nadat de stichtingsindividuen in elke kooi de seksuele rijpe leeftijd hadden bereikt en begonnen met het leggen van eieren, hebben we het aantal aanwezige volwassenen in elke kooi vastgelegd om de beginpopulatie bij aanvang van de ovipositie vast te stellen. Het aantal volwassenen in elke kooi over de tijd wordt weergegeven in Figuur 1 en Tabel 1We interpreteren de gestage afname van de overleving als ouderdomsgerelateerde mortaliteit.
We hebben parallel de eiproductie gemonitord in dezelfde vijf kooien die werden gebruikt voor het monitoren van de overleving van volwassenen (Figuur 1 en Figuur 2). De dagelijkse ei-tellingen per kooi waren het hoogst tijdens de eerste 30–50 dagen van de eilegging en namen daarna geleidelijk af. Hoewel de totale eiproductie varieerde tussen de kooien (Tabel 2), was dit algemene patroon consistent over alle vijf de replica-kooien. We hebben de uitvalsdynamiek van de eieren over een periode van 50 dagen gemonitord voor in totaal 105 ei-batches, waarbij elke ei-batch een groep eieren is die binnen een periode van 24 u in dezelfde kooi is gelegd. Voor de analyses van de batchgrootte in Figuur 3 werden 75 batches ingedeeld in kleine, middelgrote en grote categorieën. We stelden vast dat zodra het eerste ei in een batch uitkwam, 90% voltooiing van het uitkomen werd bereikt binnen 12 dagen na het verschijnen van het eerste kuiken (Figuur 3D), onafhankelijk van de batchgrootte (Figuur 3B). Met de term “voltooiing van het uitkomen” om de proportie eieren in een batch te beschrijven die tegen een bepaald tijdstip na het verschijnen van het eerste kuiken uit een batch zijn uitgekomen, merken we op dat de distributie van ei-batches op basis van de dag van 90% voltooiing van het uitkomen aangeeft dat de meeste batches deze drempel bereikten tussen uitkomdag 10 en 14 (Figuur 3C) na het verschijnen van het eerste kuiken.
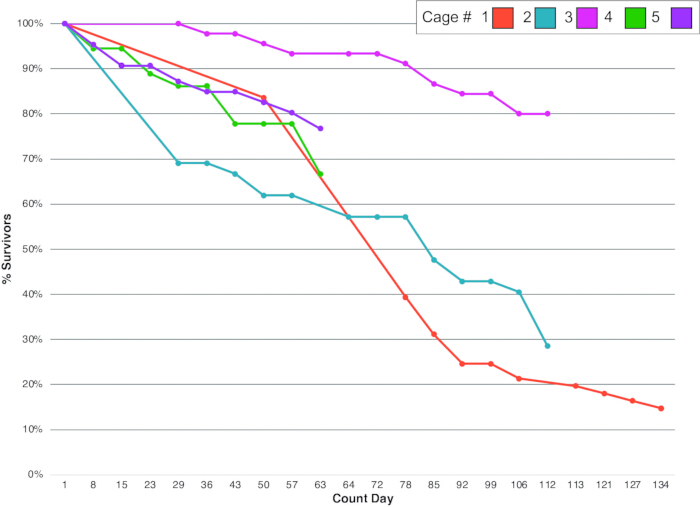
Figuur 1. Dynamiek van de mortaliteit bij volwassenen. Overlevingstrajecten in vijf herhaalde experimentele kooien met C. morosus in de loop van de tijd. Het overlevingspercentage is uitgezet tegen de tijd voor individuen in elke gemonitorde kooi. Zie de samenvattende statistieken in Tabel 1. Klik hier om een grotere versie van deze figuur te bekijken.
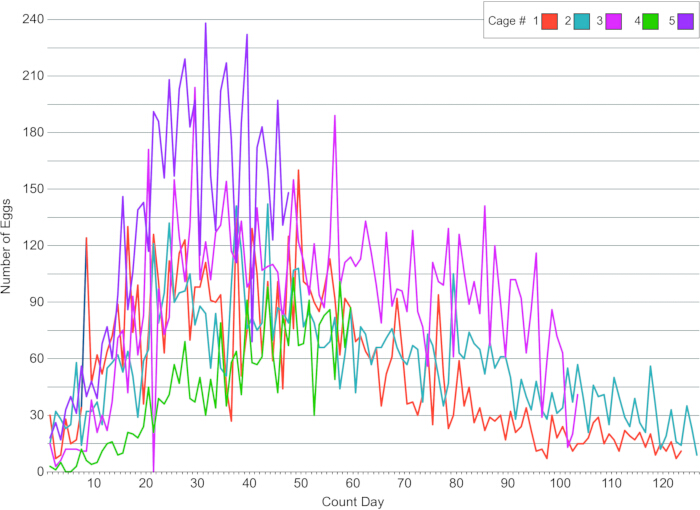
Figuur 2. Dynamiek van de eiproductie. Het aantal eieren verzameld uit dezelfde vijf kooien die werden gemonitord in Figuur 1. Kooien 1 tot en met 5 werden dagelijks gemonitord gedurende respectievelijk 47, 58, 106, 129 en 132 dagen. De grafiek toont gegevens van de eerste 126 dagen van de ovipositie. Zie de samenvattende metrieken in Tabel 2. Klik hier om een grotere versie van deze figuur te bekijken.
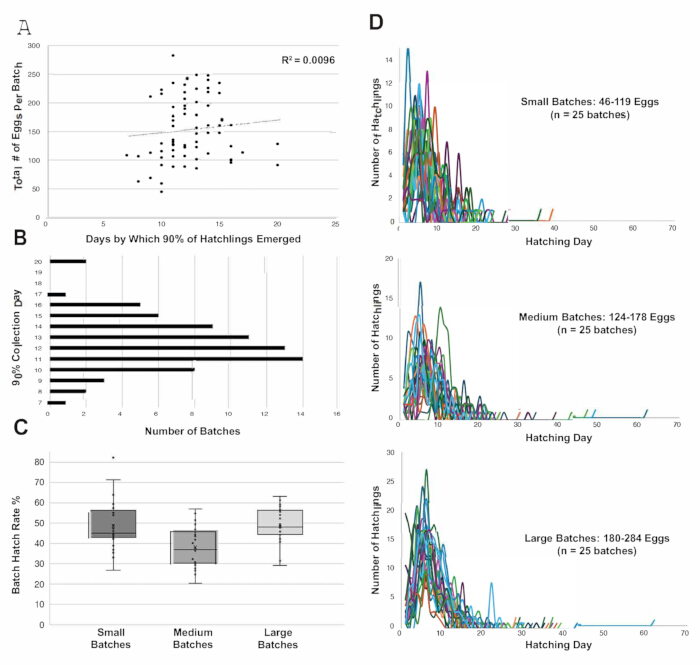
Figuur 3. Dynamiek van het uitkomen van eieren. (A) Relatie tussen het totaal aantal eieren per batch en het aantal dagen dat nodig is om 90% uitkomst te bereiken. (B) Verdeling van eierbatches per dag waarop zij 90% uitkomst bereikten over de uitkomdagen 7–20. (C) Verdeling van de uitkomst percentages per batch over kleine, middelgrote en grote eierbatches. n = 25 batches per batchgrootte-categorie. (D) Uitkomsttrajecten over een verzamelperiode van 70 dagen voor de 75 eierbatches die zijn gebruikt in de analyse van de batchgrootte. In totaal werden 105 eierbatches gemonitord; voor de hier getoonde analyses werden 75 batches gegroepeerd op basis van het totaal aantal eieren met behulp van terciel-afkapwaarden. Klik hier om een grotere versie van deze figuur te bekijken.
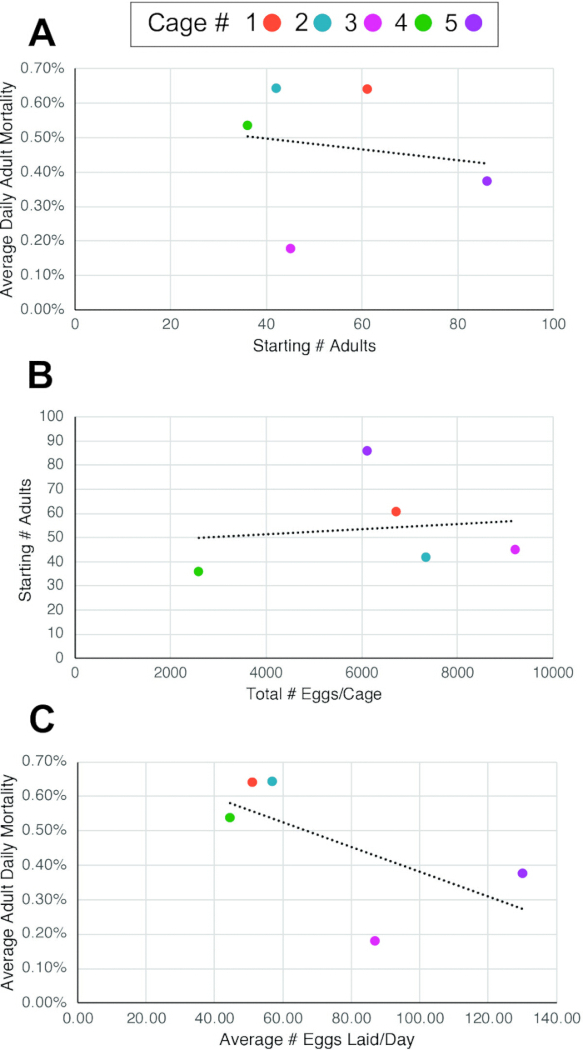
Figuur 4. Relaties tussen het aantal volwassenen, de sterfte van volwassenen en de eiproductie per kooi. (A) Er is geen significant verband (R2 = 0,025) tussen de gemiddelde dagelijkse sterfte van volwassenen en het aantal startende volwassenen in een kooi. (B) Er is geen significant verband (R2 = 0,017) tussen de totale eiproductie en het aantal startende volwassenen in een kooi. (C) Er is een matige negatieve correlatie (R2 = 0,411) tussen de gemiddelde dagelijkse eiproductie en de gemiddelde dagelijkse sterfte van volwassenen. Gemiddelde dagelijkse sterfte van volwassenen = (% totale sterfte) / (totaal aantal gemonitorde dagen). Klik hier om een grotere versie van deze figuur te bekijken.
| Kooi nr. | oud kooinoemer | Eerste dag van het uitkomen nestlingen toegevoegd aan de moedercage | Laatste dag van het uitkomen nestelingen toegevoegd aan kooivormer | # Uitbroeden larven aan de kooi toegevoegd | Bereik van uitkomstdagen slingers werden toegevoegd | Gemiddelde tijd tussen begin kooi en tellen volwassen exemplaren | Eerste dag van de telling van volwassenen | Eerste dag dat volwassenen eieren begonnen te leggen | Tijdverloop tussen uitkomen en volwassenheid | Tijd verstreken tussen uitkomen en eiafzetting | Beginaantal volwassenen | Overleving van kuikens tot volwassen exemplaars zuurkast | Laatste teldag voor volwassenen | Eindaantal volwassenen | Duur van monitoring volwassene # [dagen] | Gemiddelde mortaliteit bij volwassenen over de gemonitorde periode [%] | Gemiddelde dagelijkse adultmortaliteit [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | ND | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | Niet gedetecteerd | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | ND | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | Niet bepaald | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | Niet bepaald | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | Niet bepaald | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| Gemiddelden | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
Tabel 1: Overleving van volwassenen en mortaliteitsdynamiek in experimentele kooien.Resultaten van de overleving van volwassenen voor vijf replica experimentele kooien. Voor elke kooi vermelden we de datumbereik van de oprichting van de kooi, het aantal pasgeborenen dat is gebruikt om elke kooi op te richten (voor 2 van de 5 kooien), de overleving van pasgeborenen tot volwassenheid (voor 2 van de 5 kooien), de tijd tussen de oprichting van de kooi, de start van de tellingen van volwassenen en de start van de eiafscheiding, de duur van de monitoring van volwassenen, de begin- en eindgrootte van de populatie volwassenen, de mortaliteit van volwassenen over de gemonitorde periode en de gemiddelde dagelijkse mortaliteit. De overleving van pasgeborenen tot volwassenheid werd alleen berekend voor kooien met bekende beginaantallen pasgeborenen.
| Kooi # | Datum start eierverzameling | Datum einde eierverzameling | Duur van eierverzameling [dagen] | Totaal aantal eieren/kooi | Gemiddeld aantal gelegde eieren/dag | Startaantal volwassen individuen | Totaal aantal eieren/startende volwassenen | Gemiddeld aantal eieren/startende volwassene/dag |
| 1 | 5/29/2025 | 10/8/ 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 7/4/2025 | 11/10/2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 7/27/2025 | 11/10/2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 9/13/2025 | 11/10/2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 9/24/2025 | 11/10/2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| Gemiddelden | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
Tabel 2: Eipropductie in de experimentele kooien. Eiproductie van vijf replicate experimentele kooien met volwassen exemplaren. Voor elke kooi vermelden we de start- en einddatum van de eiverzameling, de totale duur van de eiverzameling, de cumulatieve eipropductie per kooi en het gemiddeld aantal per dag gelegde eieren.
Discussie
De hier beschreven husbandery-methoden bieden een eenvoudig, reproduceerbaar kader voor het onderhouden van laboratoriumpopulaties van C. morosus. Hoewel C. morosus al lange tijd in laboratoria of als huisdier wordt gehouden, zijn de husbandery-protocollen voor laboratoriumonderzoek per studie verschillend geweest6,9,10,11,12. Het waarborgen van consistente omgevingscondities en voederpraktijken is essentieel om C. morosus tot een betrouwbaar laboratoriummodel-organisme te maken voor ontwikkelingsbiologisch, fysiologisch en evolutionair onderzoek.
Ontwikkelingstijd in C. morosus in vergelijking met andere modelinsecten
In vergelijking met holometabole insecten zoals de fruitvlieg Drosophila melanogaster, vertoont C. morosus tragere ontwikkelsnelheden en een langere juveniele fase. Terwijl D. melanogaster de embryogenese in ~24 h voltooit en binnen 10–12 dagen bij 25 °C de reproductieve volwassenheid bereikt13, vereist C. morosus onder onze kweekomstandigheden 74–80 dagen voor de embryogenese en ongeveer 135–139 dagen na het uitkomen om de reproductieve volwassenheid te bereiken, wat overeenkomt met ongeveer 200 dagen van ei-legging tot reproductieve volwassenheid bij 23 °C (gegevens niet getoond). Deze verlengde tijdlijn weerspiegelt fundamentele fysiologische en evolutionaire verschillen tussen hemimetabole en holometabole insecten14,15 en wordt herhaaldelijk aangetroffen bij de Phasmatodea16,17,18. Hoewel andere hemimetabole insecten, zoals de krekel Gryllus bimaculatus, de embryogenese voltooien en de seksuele volwassenheid bereiken in een korter tijdsbestek (respectievelijk tien dagen en zes weken bij 29 °C19), biedt de tragere ontwikkeling van C. morosus een unieke mogelijkheid voor reproduceerbaar onderzoek en gedetailleerde, longitudinale studies naar embryogenese en juveniele ontwikkeling.
Bron van het gebladerte en voedingspraktijken
In dit protocol beschrijven we het gebruik van klimop (Hedera helix) als de primaire voedselbron voor onze C. morosus-kolonie, waarbij het blad het hele jaar door werd verzameld op een vaste locatie op de campus. Hoewel klimop mogelijk niet voor alle laboratoria toegankelijk is, is gerapporteerd dat verschillende alternatieve plantaardige voedselbronnen geschikt zijn voor het onderhouden van C. morosus-kolonies, waaronder braam (Rubus spp.), liguster (Ligustrum spp.), vuurdoorn (Pyracantha spp.), roos (Rosa spp.), meidoorn (Crataegus monogyna), eik (Quercus spp.) en hazel (Corylus spp.)20. Een belangrijk aandachtspunt bij het gebruik van blad dat van externe bronnen is verzameld, is dat de voedingswaarde minder gecontroleerd is dan in laboratoriesystemen die vertrouwen op gestandaardiseerde diëten (bijv. Drosophila melanogaster), wat potentieel kan leiden tot nutritionele variabiliteit. Om dit te beperken, gebruikten we in alle seizoenen dezelfde plantensoort van dezelfde locatie en boden we wekelijks blad aan in alle kooien tijdens het routinematige kooionderhoud. De klimoptakken die voor voeding werden gebruikt, bevatten doorgaans een mix van jonge scheuten en volwassen bladeren; we selecteerden de takken niet op een specifiek stadium van bladontwikkeling. Alle bladeren werden gewassen voordat ze aan de kooien werden toegevoegd. Ons wekelijkse vervangingsschema, waarbij al het blad werd verwijderd en op dezelfde dag werd vervangen, werd geïmplementeerd voor de consistentie en om de omvang van de kolonie te beheren. Afgesneden klimopblad werd bewaard in met water gevulde vaten in de kooien om de hydratatie gedurende de week te behouden. In de meeste gevallen bleven de bladeren de hele week in goede conditie, hoewel er incidenteel uitdroging of uitputting kon optreden, in welk geval we het blad eerder dan na 1 week zouden vervangen.
Kolonieomvang, overlevingspercentages en reproductie van volwassenen
Een correcte opzet van de kolonie en zorgvuldig beheer van de populatiedichtheid waren essentieel om de stammen gezond te houden. Het handhaven van een maximum van ongeveer 500 pasgeborenen of 50 volwassen dieren per behuizing van 61 cm x 61 cm x 91,5 cm droeg bij aan stabiele omstandigheden, het onderhoud van de kolonie en reproduceerbare ontwikkelingswaarnemingen.
Een vergelijking van de gemiddelde dagelijkse mortaliteit met het aantal stichtende volwassenen in een kooi (Figuur 4A en Tabel 1) liet geen voorspelbare relatie tussen deze twee parameters zien. Evenzo was er geen sterke voorspellende relatie tussen het totale aantal stichtende volwassenen en de totale eiproductie (Figuur 4B, Tabel 1 en Tabel 2). In plaats daarvan vertoonden kooien met een lagere gemiddelde dagelijkse mortaliteit van volwassenen een lichte neiging tot een hogere gemiddelde dagelijkse eiproductie (Figuur 4C). Verschillen tussen kooien suggereren echter dat de eiproductie varieerde tussen de volwassenen (Tabel 1 en Tabel 2), wat zou kunnen betekenen dat factoren buiten de overleving van volwassenen bijdragen aan fecunditeitspatronen, en dat individuele vrouwtjes mogelijk ook variëren in het aantal eieren dat ze per dag leggen.
De eierproductie in alle gemonitorde kooien nam over de loop van het experiment over het algemeen af (Figuur 2). De meeste kooien vertoonden de hoogste dagelijkse leggraden vroeg in de reproductieperiode (eerste 50 dagen), waarna de productie geleidelijk afnam (Figuur 2). Dit patroon is consistent met onze waarneming dat individuen doorgaans seksuele volwassenheid bereiken en beginnen met het leggen van eieren ongeveer 135 dagen na het uitkomen, en dat de mortaliteit ongeveer 90 dagen later begint (~225 dagen na het uitkomen; gegevens niet getoond).
Timing en dynamiek van het uitkomen
Over de gemonitorde eibatchs heen vond het grootste deel van het uitkomen plaats binnen een consistente periode van 12 dagen na het begin van de emergentie (Figuur 3D). Evenzo was er geen correlatie tussen de batchgrootte en het tijdstip waarop 90% van het uitkomen was voltooid (Figuur 3A), en de meeste batches bereikten een voltooiing van 90% van het uitkomen tussen dag 10 en 14 nadat de eerste hatchling was verschenen (Figuur 3B). Deze voorspelbare uitkomstperiode is een nuttige eigenschap voor het beheer van C. morosus-kolonies, omdat het mogelijk maakt om hatchlings te groeperen in cohorten van vergelijkbare leeftijd, wat de ontwikkelingsstadiëring verbetert en de experimentele variabiliteit vermindert. Weten wanneer het bulkuitkomen zal plaatsvinden, maakt bovendien een betere planning van de omloop van verblijven en de toewijzing van middelen mogelijk, inclusief de tijdige voorbereiding van verblijven, bladgroen en trackingsmaterialen, wat vooral belangrijk is voor grootschalige studies of langetermijnonderzoeken. Hoewel er zowel seksuele als parthenogenetische Phasmatodea-soorten zijn bestudeerd, zijn we ons niet bewust van bewijs dat de reproductiewijze op zichzelf verschillen in de timing van de embryogenese veroorzaakt. In plaats daarvan is gerapporteerd dat variatie in de ontwikkeling soortspecifiek is en wordt beïnvloed door omgevingscondities2.
Behandeling van eieren en overwegingen met betrekking tot het substraat
Onze methode voor het hanteren van eieren houdt in dat eieren direct van de bodem van de behuizing worden verzameld en worden uitgebroed in geventileerde Petrischalen. Deze aanpak maakt de eieren gemakkelijk observeerbaar, in tegenstelling tot kreksystemen waarbij eieren in substraten zoals kokosvezel of katoenen lonten worden verzameld21. Het harde exochorion van C. morosus-eieren biedt bescherming tijdens het hanteren en tegen uitdroging, waardoor veilige incubatie in Petrischalen zonder aanvullend substraat mogelijk is onder onze kweekcondities. Samen bieden deze gestandaardiseerde procedures een gestructureerde aanpak voor het behouden van gezonde C. morosus-populaties voor reproduceerbaar ontwikkelings-, gedrags-, genetisch of fysiologisch onderzoek. Consistente omgevingscontroles (23 °C, 70% RH, 12:12 LD), regelmatig onderhoud van de behuizing en voorspelbare ontwikkelingstijdlijnen maken C. morosus tot een toegankelijk en goedkoop modelsysteem. Belangrijk is dat C. morosus eenvoudig te onderhouden is, in tegenstelling tot sommige kreksystemen waar overbevolking, kannibalisme of pathogene belasting kolonies snel kunnen destabiliseren22, waardoor ze zeer geschikt zijn voor grootschalige experimenten en studies over meerdere generaties. Naarmate C. morosus breder wordt geadopteerd als hemimetabole modelsoort, zou het gebruik van gestandaardiseerde methoden de reproduceerbaarheid en vergelijkbaarheid tussen studies in meerdere gebieden van de insectenbiologie moeten bevorderen.
Overleving van uitkomen tot volwassenheid
De overleving van uitkomst tot volwassenheid in onze studie (~13%) is aanzienlijk lager dan die gerapporteerd in een andere kwantitatieve studie naar de overleving van C. morosus-nimfen onder gecontroleerde laboratoriumomstandigheden, waarin 68% van de individuen volwassen werd onder calorische restrictie en tot 87% onder ab libitum voeding23. Wij speculeren dat de lagere overleving die wij in onze kolonie waarnamen (~13%) ten opzichte van het eerdere rapport te wijten is aan verschillen in de manier waarop de dieren werden gekweekt, wat op zijn beurt de verschillende doelen van onze cultuur en die van de vorige studie weerspiegelt. Ons protocol was ontworpen om grote, continu reproducerende kolonies te onderhouden, in plaats van de overleving van individuele groepen te maximaliseren. Daarom hielden we de dieren bij relatief hoge dichtheden, in tegenstelling tot de vorige studie, waarin geïsoleerde dieren van ei tot volwassenheid werden gekweekt in individuele kooien23. Wij speculeren dat de methode van kweek bij hoge dichtheid die we hier beschrijven de mortaliteit kan verhogen vergeleken met kweek in isolatie, vooral tijdens de vroege nimfstadia, wanneer individuen gevoeliger kunnen zijn voor overbevolking of concurrentie. In onze grotere kooien kan variatie in plantkwaliteit ook een rol hebben gespeeld, vergeleken met de individuele kweekaanpak, waarbij individuen schijfjes van gecontroleerde grootte kregen die uit plantbladeren waren gesneden23. Ondanks de relatief lagere overlevingskans produceerde onze kolonie echter consistent grote aantallen eieren en bleef deze over tijd stabiel (Figuur 1, Figuur 3, Tabel 1 en Tabel 2). Dit suggereert dat de aanpak die we hier beschrijven effectief is voor het onderhouden van een laboratoriumcultuur op de lange termijn.
Factoren die de overleving beïnvloeden en beperkingen van het protocol
Verschillende factoren in dit protocol hebben waarschijnlijk invloed op de overleving en moeten zorgvuldig worden gecontroleerd. De populatiedichtheid is een belangrijke parameter, aangezien overbevolking de overleving kan verminderen, met name tijdens de vroege instar-stadia. Een andere parameter die de overleving beïnvloedt, is adequate hydratatie, vooral tijdens de vroege instar-stadia. Alle in het protocol beschreven procedures en tijdstippen zijn gebaseerd op de specifieke omgevingscondities die in deze studie zijn gebruikt. Wijzigingen in luchtvochtigheid, temperatuur, luchtstroom of plantensoort kunnen echter de frequentie van het vernevelen van water, de regelmaat waarmee het blad moet worden vervangen, de uitkomsttijd van de eieren en de algemene overleving beïnvloeden. In drogere kweekcondities kan bijvoorbeeld vaker water worden verneveld en moeten planten vaker worden vervangen om de hydratatie te behouden. Verschillende plantensoorten kunnen daarnaast de voeding en ontwikkeling beïnvloeden. Deze factoren moeten worden aangepast afhankelijk van de opkweekcondities en de experimentele doelen. Voor toepassingen waarbij een hoge overleving van juvenielen, individuele tracking of gedragstesten vereist zijn, kunnen lagere begindichtheden wenselijk zijn.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te verklaren.
Dankbetuigingen
Dit project werd ondersteund door National Science Foundation Award IOS 22207477 aan CGE, die een onderzoeker is van het Howard Hughes Medical Institute. Wij erkennen dat Carausius morosus vermoedelijk afkomstig is uit Tamil Nadu, India, en dat laboratoriumculturen van deze soort al sinds ten minste 1908 buiten India worden onderhouden. Wij danken Stanislav Gorb en Thies Büscher (Universiteit van Kiel) hartelijk voor het leveren van de eerste groep volwassenen die werd gebruikt om onze cultuur op te zetten, en alle leden van het Extavour-lab voor hun ondersteuning, inclusief voormalig lablid Dr. Upendra Bhattarai (huidige affiliatie: Brown University), die de initiële kolonie heeft opgezet.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Autoclaveerbare polypropyleenzakken, 30.5 cm × 61 cm | VWR | 95042-554 | Voor de afvoer van insecten, eieren en behuizingsafval |
| Biohazard-container | N/A | N/A | Voor afvoer na invriezen |
| Stompe plastic pincet | Amazon | B07YZ5FB27 | Voor het verzamelen en hanteren van eieren en pasgeboren larven |
| Klimaatgecontroleerde ruimte of incubator | N/A | N/A | Voor het handhaven van 23 °C, 70% RH en een 12:12 u licht-donker fotoperiode |
| Wegwerphandschoenen | N/A | N/A | Voor eiverzameling en afvalverwerking |
| Wegwerppetrischalen, 150 × 15 mm | VWR | 25384-326 | Voor eiverzameling |
| Wegwerppetrischalen, 60 × 15 mm | VWR | 25384-092 | Voor ei-incubatie |
| Verse bladeren (klimop, braam of rozenbladeren) | N/A | N/A | Bestrijdingsmiddelvrije voedselbron |
| Vriezer, -20 °C | N/A | N/A | Voor euthanasie/afvoer en het invriezen van eieren of afval vóór afvoer |
| Gaasachtige insectenbehuizingen | Amazon | B09GS2CH1G | Gebruikt om insecten te huisvesten |
| Sprayflacon, 250 mL | Amazon | B000H88PCU | Voor het benevelen van gaasbehuizingen |
| Hoge glazen container, 18–23 cm hoogte | N/A | N/A | Gebruikt voor water en plantstengels |
| Kraanwater | N/A | N/A | Voor beneveling en het behouden van de hydratatie van het blad |
| Wit sorteeroppervlak of tray | N/A | N/A | Voor het onderscheiden van eieren van uitwerpselen tijdens het sorteren |
Referenties
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
Herprints en machtigingen
