Dit protocol biedt een gestandaardiseerde methode voor het maken van sneden binnen een kamer om het begin, de piektiming en de kinetiek van door wondvorming veroorzaakte vluchtige emissies vast te stellen, samen met gelijktijdige metingen van de gasuitwisseling.
Methodenartikel
Een methode voor het snijden binnen een kamer voor real-time kwantificering van vluchtige stoffen bij bladbeschadiging en gasuitwisseling
31 weergaven
⸱
11 september 2026
In dit artikel
Samenvatting
Samenvatting
Vluchtige organische stoffen (VOC's) die door plantenbladeren worden uitgestoten, spelen een sleutelrol bij stresssignalering, interacties tussen plant en atmosfeer en plantverdediging. Hiervan worden wond-geïnduceerde VOC's (wVOC's) binnen enkele seconden na mechanische schade, herbivorie of omgevingsverstoring uitgestoten. Hun emissiedynamiek is sterk afhankelijk van de timing, ernst en methode van weefselbeschadiging. Toch blijft een nauwkeurige kwantificering uitdagend vanwege mechanische artefacten, variabele blootstellingscondities en vertragingen tussen de beschadiging en de meting. Deze studie presenteert een gestandaardiseerd protocol voor bladexcisie binnen een kamer voor real-time monitoring van wVOC's en gasuitwisseling. Een snijinstrument van chirurgische kwaliteit werd geïntegreerd in een draagbare gasuitwisselingskamer om schone, gecontroleerde sneden mogelijk te maken binnen een afgesloten kamer onder stabiele licht-, vochtigheids-, CO2- en temperatuuromstandigheden. Een proton-transfer-reaction time-of-flight massaspectrometer (PTR-TOF-MS) mat continu de vluchtige emissies bij de uitlaat van de kamer, waardoor vertraging en signaalvervorming tot een minimum werden beperkt. Deze opstelling bepaalt het begin van de emissie, de timing van de piek, de maximale stijgsnelheid en de totale afgifte met een hoge temporele getrouwheid. Toepassing van de methode op Quercus rubra, Acer platanoides en Gossypium hirsutum demonstreerde het vermogen om verschillende wond-geïnduceerde emissiepatronen bij contrasterende bladtypen te onderscheiden. Door vertragingen die gepaard gaan met conventionele bemonstering te elimineren, maakt deze methode de volledige kinetische baan van wond-geïnduceerde emissies inzichtelijk en overwint het belangrijke beperkingen van eerdere benaderingen. Het biedt een robuust kader voor het bestuderen van snelle stressreacties in de plantenfysiologie, ecologische biochemie en interacties tussen planten en de atmosfeer.
Inleiding
Planten reageren op beschadiging door het snel vrijgeven van een chemisch signaal, maar het nauwkeurig vastleggen van dat signaal blijft technisch uitdagend. Binnen enkele seconden na herbivorie, windschade of mechanische verstoring laten planten een kortstondige burst van vluchtige organische verbindingen (VOC's) vrij, die interne afweersystemen activeren en naburige planten voorbereiden1,2,3,4. Deze wond-geïnduceerde VOC's (wVOC's) omvatten green leaf volatiles (GLV's), methanol, kortketenige alcoholen en aldehyden, terpenoïden en oxylipine-derivaten. Deze ontstaan ofwel door de novo synthese in mesofylcellen of door het openscheuren van opslagstructuren zoals harskanalen en trichomen. Als directe stresssignalen coördineren wVOC's fysiologische afweermechanismen, bemiddelen ze de communicatie tussen planten en interageren ze met de atmosferische chemie1,5,6,7.
Omdat natuurlijke herbivorie mechanische schade combineert met saliculaire en microbiële elicitoren, maken experimentele studies gebruik van gesimuleerde verwonding om responsen op enkel fysiek letsel te isoleren8. De vluchtige aard van wVOC's maakt het echter inherent moeilijk om deze vast te leggen. Conventionele methoden, zoals statische headspace-bemonstering gekoppeld aan gaschromatografie-massaspectrometrie (GC-MS), missen vaak de initiële emissiepiek en vervormen het kinetische profiel daarvan9,10. Vertragingen in de equilibratie, verhoogde incubatietemperaturen en verlengde bemonsteringslijnen verhogen de verblijftijd en vervormen het geregistreerde signaal, in het bijzonder voor reactieve verbindingen zoals sesquiterpenen9,11,12. Gecombineerd zorgen deze artefacten voor een vermindering van de signaalsterkte en maskeren ze de temporele dynamiek van wondgeïnduceerde vluchtige emissies, wat de interpretatie van stressresponsen bij planten bemoeilijkt.
Veel studies onderbreken de meting om bladeren buiten de kamer te beschadigen. Deze onderbreking destabiliseert de gasstroom, verandert de timing van de beschadiging en vermindert de controle over de precisie van de incisie13,14,15. Als gevolg hiervan gaan de eerste minuten na de beschadiging vaak verloren of raken deze vervormd13, precies op het moment dat de emissiesnelheden pieken en karakteristieke kinetische patronen ontstaan3,6,16,17. Sommige benaderingen verplaatsten de excisie van het blad naar de binnenzijde van grote kamers met behulp van Teflon-messen of mechanische ponsen12,18,19. Deze opstellingen leidden echter vaak tot instabiliteit van de afdichting, inconsistente snijlengtes en ongelijkmatige incisies door verschuiving van de snijder of verschillen in de stevigheid van het blad. Het grote kamervolume vertraagde bovendien de luchtverversing en verbreedde het vluchtige signaal16. Samen beletten deze experimentele beperkingen een nauwkeurige karakterisering van de temporele dynamiek van wondgeïnduceerde emissies onder stabiele fysiologische omstandigheden.
Om deze uitdagingen te overwinnen, presenteert deze studie een protocol voor real-time verwonding binnen de kamer, waarbij een snijder van chirurgische kwaliteit is geïntegreerd in een gasuitwisselingssysteem gekoppeld aan proton-transfer-reaction time-of-flight massaspectrometrie (PTR-TOF-MS). Het protocol maakt synchrone bladverwonding en detectie van vluchtige stoffen mogelijk onder gecontroleerde omgevingsomstandigheden, terwijl gelijktijdig vluchtige fluxen en gasuitwisseling met een hoge temporele resolutie worden gemeten. Door de bladexcisie binnen de meetkamer uit te voeren, minimaliseert het protocol bemonsteringsvertragingen die gepaard gaan met conventionele benaderingen, behoudt het de temporele dynamiek van snel geëmitteerde wond-geïnduceerde vluchtige stoffen en illustreert het een gestandaardiseerde snijprocedure voor bladeren met verschillende mechanische eigenschappen. Deze temporele resolutie maakt directe karakterisering mogelijk van het begin, de piektiming en de soortspecifieke kinetiek van wond-geïnduceerde emissies van vluchtige stoffen.
Het protocol werd geëvalueerd met drie soorten met contrasterende anatomische en fysiologische kenmerken (Quercus rubra, Acer platanoides en Gossypium hirsutum) om de toepasbaarheid op diverse bladtypen aan te tonen. Door identieke meetcondities toe te passen op alle soorten wordt aangetoond dat het protocol in staat is om wond-geïnduceerde VOC-dynamiek te analyseren over een breed scala aan emissiepatronen, terwijl de experimentele variabiliteit wordt geminimaliseerd. De aanpak is breed toepasbaar voor studies die metingen van wond-geïnduceerde VOC's met een hoge temporele resolutie vereisen onder gecontroleerde omgevingscondities. Samen bieden deze kenmerken een gestandaardiseerd kader voor het onderzoek naar snelle stressreacties van planten en faciliteren ze de toepassing van het protocol over verschillende soorten en experimentele systemen.
Protocol
Alle planten werden gekweekt onder gecontroleerde omgevingscondities in groeikamers. De gebruikte reagentia en apparatuur staan vermeld in de Tabel met materialen.
1. Constructie en installatie van de bladsnijder in de kamer
- Fabriceer een roterende bladsnijder die is ontworpen om in de interne afmetingen (4 cm × 2 cm) van de standaard meetkop te passen.
- Bevestig een scheermesje aan een roestvrijstalen staaf (1 mm diameter) met zilverhard solderen om mechanische stabiliteit te garanderen.
WAARSCHUWING: Scheermesjes zijn extreem scherp. Draag snijbestendige handschoenen tijdens de hantering. Voer scheermesjes na gebruik af volgens de institutionele laboratoriumveiligheidsprocedures voor scherpe voorwerpen. Voer het zilverhard solderen uit onder geschikte ventilatie en draag een veiligheidsbril. - Plaats de meshouderstaaf in een roestvrijstalen spuitnaald (buitendiameter 1,6 mm) om vrije axiale rotatie mogelijk te maken.
- Afdicht beide uiteinden van de naald met een polytetrafluoretheleen (PTFE) stop met lage emissie om luchtdichte omstandigheden te behouden terwijl de rotatie gewaarborgd blijft.
- Monteer een handmatige draaiknop aan het proximale uiteinde van de staaf om gecontroleerde rotatie van de interne snijder mogelijk te maken.
- Bevestig twee flexibele steunen gemaakt van veerbronsplaat (0,2 mm dikte) aan het buitenoppervlak van de naald om de snijder aan de onderste helft van de kamer te bevestigen.
- Maak een driehoekige incisie in de pakking van de onderste kamer om invoering van het mesje mogelijk te maken zonder contact met het blandoppervlak.
- Dicht het invoerpunt af met een afdichtingskit met lage emissie om gaslekkage te voorkomen.
OPMERKING: Verifieer voordat u verdergaat of de installatie van de snijder de afdichting van de kamer niet heeft aangetast. Bevestig dat de kamer volledig sluit, dat het thermokoppel in contact blijft met het blandoppervlak en dat het gasuitwisselingssysteem een stabiele luchtstroom aangeeft zonder tekenen van lekkage. Ga alleen verder nadat stabiele kamercondities zijn bevestigd. Kies een meslengte die een snede van ongeveer 10 mm produceert. Het geïntegreerde snijmechanisme en de positie ervan in de bladerkamer worden getoond in Afbeelding 1B.
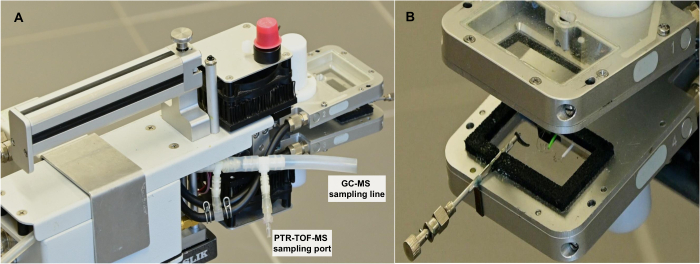
Figuur 1Gemodificeerd gasuitwisselingssysteem met een geïntegreerde bladsnijder in de kamer en bemonsteringslijnen voor vluchtige stoffen. (A) Overzicht van het gemodificeerde gasuitwisselingssysteem, met weergave van de PTR-TOF-MS-bemonsteringspoort en de GC-MS-bemonsteringslijn die nabij de uitlaat van de kamer zijn geplaatst voor de opvang van vluchtige stoffen. (BClose-up van de geopende kamer waarop het geïntegreerde snijmechanisme en de regio waarin het blad tijdens de beschadiging wordt gepositioneerd, te zien zijn. De snijder is hermetisch in de kamer geïntegreerd, waardoor bladbeschadiging mogelijk is zonder de behuizing tijdens de meting te openen. Deze configuratie maakt real-time monitoring van vluchtige emissies en gasuitwisseling onder gecontroleerde omgevingscondities mogelijk. Klik hier om een grotere versie van deze figuur te bekijken.
2. Configuratie van vluchtige bemonsteringspaden
- Installeer een Teflon T-stuk (1/16″ of 1/8″ ID) naast de uitlaat van de kamer (Figuur 1A) om de lengte van de slang tussen de kamer en de vluchtige stoffenanalysator te minimaliseren.
- Verbind de uitlaat met het VOC-opvangsyteem met behulp van inerte slang (bijv. FEP of PTFE; 1,6 mm binnendiameter). Installeer het T-stuk direct naast de uitlaat van de kamer om de slang tussen de kamer en de vluchtige stoffenanalysator zo kort mogelijk te houden, waardoor het interne volume, de verblijftijd en adsorptieverliezen worden geminimaliseerd.
- Houd de luchtstroom in de kamer op 750 µmol s-1.
OPMERKING: Korte inerte slang vermindert de adsorptie en verblijftijd voor reactieve verbindingen.
3. Voorbereiding van plantmateriaal
- Kweek Quercus rubra, Acer platanoides en Gossypium hirsutum gedurende 4 maanden in een klimaatkamer bij 25 °C overdag / 20 °C 's nachts, 60% relatieve vochtigheid, een lichtintensiteit van 10 µmol m-2 s-1 en een fotoperiode van 16 u / 8 u.
- Houd de planten gedurende het gehele experiment onder een omgevingsconcentratie van CO2 (~430 ppm).
- Bewater alle planten elke twee dagen totdat de bodem de veldcapaciteit bereikt.
- Selecteer voor de experimenten volledig uitgebreide, niet-senescente bladeren van een vergelijkbaar ontwikkelingsstadium.
4. Experimenten voor bladverwonding en VOC-verzameling
- Sluit het blad af en stel de omgevingscondities in
- Sluit een volledig uitgebreid, aangehecht blad af in de cuvet die is uitgerust met de interne snijder.
- Stel de bloktemperatuur in op 25 °C, de relatieve luchtvochtigheid op 60%, de actinische lichtintensiteit op 100 µmol m-2 s-1 (90% rood, 10% blauw) en de luchtstroom op 750 µmol s-1.
- Laat het blad acclimatiseren onder de geselecteerde omgevingscondities totdat steady-state waarden voor de netto CO2 assimilatie, stomataire conductantie en baseline VOC-signalen zijn bereikt, doorgaans binnen 20–30 min na het afsluiten van het blad.
- Voer gasuitwisseling, fluorescentie- en VOC-monitoring uit
- Begin gelijktijdige metingen van gasuitwisseling en VOC's met een resolutie van 1 Hz.
- Registreer na voltooiing van de gasuitwisselingsmetingen de steady-state fluorescentie-opbrengst (Fs) en pas vervolgens een verzadigingspuls (80 µmol m-2 s-1, 0,6 s) toe via de kamerfluorimeter (305-FL) om de maximale fluorescentie-opbrengst (Fm′) in licht-geadapteerde bladeren te bepalen.
- Schakel het actinische licht uit en laat het blad 20 min donker-adapteren.
- Registreer de donkerrespiratie van het blad.
- Meet de initiële fluorescentie (F₀) met zwak gemoduleerd meetlicht (0,03 µmol m-2 s-1), gevolgd door een verzadigingspuls om de maximale fluorescentie in donker-geadapteerde bladeren (Fm) te verkrijgen.
- Schakel het actinische licht weer in.
- Zet de VOC- en gasuitwisselingsmetingen voort onder dezelfde omgevingscondities totdat de baseline vóór verwonding stabiel is.
OPMERKING: Bevestig vóór de verwonding dat de geselecteerde omgevingscondities stabiel blijven en dat de netto CO₂ assimilatie, transpiratie en baseline VOC-signalen steady-state waarden hebben bereikt. Ga pas verder nadat deze condities zijn gehandhaafd onder de geselecteerde meetinstellingen.
- Bladverwonding en VOC-collectie
- Plaats de eerste VOC-cartridge in de uitlaatlijn en sluit deze aan op een draagbare luchtbemonsteringspomp met constante stroom. Trek kamerlucht door de cartridge met een constante stroomsnelheid van 20 mL min-1. Gebruik een multi-bed roestvrijstalen adsorbentcartridge (10,5 cm lengte, 3 mm binnendiameter) die geschikt is voor de vangst van C3–C17 vluchtige stoffen, gevuld met Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) en Carbotrap X 20/40 mesh (0,1 g), gerangschikt van zwakste naar sterkste adsorptiekracht in de bemonsteringsrichting.
OPMERKING: Conditioneer de cartridges vóór bemonstering door gedurende 3 u bij 250 °C helium van hoge zuiverheid met 200 mL min-1 door de cartridge te leiden. Bemonstering met cartridges maakt daaropvolgende offline GC-MS-analyse mogelijk voor de identificatie van verbindingen wanneer dit vereist is door de experimentele doelstellingen. Hoewel collectie met cartridges deel uitmaakt van de hier beschreven workflow, zijn de representatieve resultaten in deze studie afgeleid van continue PTR-TOF-MS-metingen. Stem de keuze van het adsorbent af op het vluchtigheidsbereik en de polariteit van de doel-VOC's, evenals op de bemonsteringscondities. - Collecteer VOC's vóór verwonding gedurende 15 min bij 20 mL min-1.
- Vervang de cartridge en collecteer VOC's gedurende 2 min.
- Draai de interne snijder 360° om het blad uit te snijden zonder de kamer te openen en breng het mes terug naar de beginpositie.
OPMERKING: Positioneer het blad in de kamer zodanig dat de incisie in de afgesloten lamina wordt gemaakt, terwijl de volledige afdichting van de kamer behouden blijft. Vermijd, indien toegestaan door de grootte en morfologie van het blad, het doorsnijden van de primaire nerf en houd de positie van de incisie zo consistent mogelijk tussen de monsters. Omdat schade aan de hoofdnerf de door verwonding geïnduceerde vluchtige emissies aanzienlijk kan verhogen, verbetert een consistente plaatsing van de wond de experimentele reproduceerbaarheid5.
WAARSCHUWING: Zorg dat de kamer volledig is afgesloten voordat u snijdt. - Zet de VOC-collectie voort met dezelfde cartridge gedurende 13 min.
- Plaats een derde cartridge en collecteer VOC's gedurende 15 min.
- Bedrijf de PTR-TOF-MS continu tijdens alle perioden voor real-time detectie.
OPMERKING: Collecteer vóór en na elke plantmeting een achtergrondmonster van een lege kamer onder dezelfde omgevingscondities. Gebruik deze achtergrondmetingen voor baselinecorrectie van de VOC-emissiedata tijdens de data-analyse.
- Plaats de eerste VOC-cartridge in de uitlaatlijn en sluit deze aan op een draagbare luchtbemonsteringspomp met constante stroom. Trek kamerlucht door de cartridge met een constante stroomsnelheid van 20 mL min-1. Gebruik een multi-bed roestvrijstalen adsorbentcartridge (10,5 cm lengte, 3 mm binnendiameter) die geschikt is voor de vangst van C3–C17 vluchtige stoffen, gevuld met Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) en Carbotrap X 20/40 mesh (0,1 g), gerangschikt van zwakste naar sterkste adsorptiekracht in de bemonsteringsrichting.
5. Detectie van vluchtige stoffen en bediening van het instrument
- Stel de temperaturen van de PTR-TOF-MS-inlaat en de driftbuis in op 80 °C, de inlaatstroom op 100 mL min-1, de waterdampstroom op 4,0 mL min-1, de ionenstroom op 4,0 mA, de druk van de driftkamer op 2,1 mbar, de velddichtheidsverhouding van de driftbuis op 115 Td en de druk van de TOF-MS-module op 1,2 × 10⁻⁷ mbar.
- Registreer vluchtige signalen met een temporele resolutie van 1 Hz en een bemonsteringsinterval van 40 ps.
- Kalibreer de PTR-TOF-MS voor elk experiment met een gecertificeerd gasstandaardmengsel dat representatieve VOS bevat uit de belangrijkste klassen van plantenvluchtige stoffen. Verwerk de kalibratiegegevens en bereken de VOS-concentraties met de PTR-MS Viewer-software volgens de beschreven procedures13,16.
6. Offline GC-MS-analyse van cartridge-monsters
OPMERKING: De volgende procedure beschrijft de offline analyse van cartridge-monsters die tijdens de bovenstaande workflow zijn verzameld. GC-MS-analyse biedt aanvullende identificatie van verbindingen, terwijl de representatieve resultaten in deze studie zijn gebaseerd op continue PTR-TOF-MS-metingen.
- Desorbeer de cartridges thermisch met behulp van een geautomatiseerde thermische desorptie-eenheid gekoppeld aan een GC-MS-systeem volgens de procedure beschreven door Kännaste et al.20.
- Identificeer de verbindingen door vergelijking met authentieke standaarden en de NIST massaspectrale bibliotheek. Voer massaspectrometrische detectie uit met elektronenimpactionisatie (70 eV) en bevestig de identiteit van de verbindingen door zowel de retentietijden als de massaspectra te matchen met authentieke standaarden, indien beschikbaar.
OPMERKING: De bemonstering van de cartridges volgt het gewijzigde protocol van Kännaste et al.20 voor het opvangen van C3–C17 vluchtige stoffen.
7. Data-analyse
- Trek de achtergrond van de lege kamer af van alle emissiesporen vóór de analyse. Definieer de nullijn vóór beschadiging voor elke gemonitorde massa als het gemiddelde signaal gedurende een vast interval direct vóór het snijden.
- Gebruik het tijdstip van snijden als het gemeenschappelijke referentiepunt voor alle gemonitorde massa's. Bepaal het begin van de emissie als de eerste detecteerbare toename in het nullijn-gecorrigeerde VOC-signaal na het snijden van het blad.
OPMERKING: Het begin van de emissie werd gedefinieerd als de eerste opeenvolgende toename boven de nullijn vóór beschadiging die doorliep in de stijgende fase van de emissiepiek, waardoor geïsoleerde fluctuaties die toe te schrijven zijn aan instrumentele ruis werden uitgesloten. - Bereken de tijd tot de piek als het interval tussen het tijdstip van snijden en het maximale emissiesignaal. Bereken de maximale helling van de emissiepiek uit de eerste afgeleide van het nullijn-gecorrigeerde signaal met behulp van het gemiddelde van de voorwaartse en achterwaartse hellingen tussen aangrenzende datapunten13. Definieer de piekamplitude als de maximale waargenomen emissiewaarde tijdens de piek.
Resultaten
Om te evalueren of de bemonsteringspositie van vluchtige stoffen de signaaldetectie beïnvloedt, hebben we twee configuraties vergeleken met behulp van gecontroleerde gasinjecties in de bladkamer. In de ene opstelling werden vluchtige stoffen direct bemonsterd bij de uitlaat van de gemodificeerde gasuitwisselingskamer (Figuur 1). Daarentegen stroomde in de andere opstelling de lucht door de leidingen van de gasuitwisselingsanalyzer voordat deze de detector bereikte. Door beide signalen gelijktijdig vast te leggen, was een directe vergelijking van hun temporele dynamiek mogelijk.
Injectie van pure vluchtige verbindingen leidde tot snelle detectorresponsen met duidelijke emissiepieken (Figuur 2). Bij directe bemonstering aan de uitlaat van de kamer stegen de signalen onmiddellijk na injectie, bereikten scherpe maxima en namen snel af. Bij bemonstering na de analysebuizing produceerden dezelfde verbindingen vertraagde en gedempte responsen.
Voor isopreen (m/z 69) was de tijdsvertraging tussen de bemonsteringsposities minimaal en bleven de piekamplitudes vergelijkbaar (Figuur 2A). Voor Z-3-hexen-1-ol (m/z 83) verminderde de passage door de leidingen de piekhoogte en werd de afbouwcurve breder in vergelijking met directe bemonstering (Figuur 2B). Dit effect was het sterkst voor α-pineen (m/z 137), waarbij de passage door de leidingen de piek sterk dempte vergeleken met het signaal dat direct bij de uitlaat van de kamer werd gemeten (Figuur 2C).
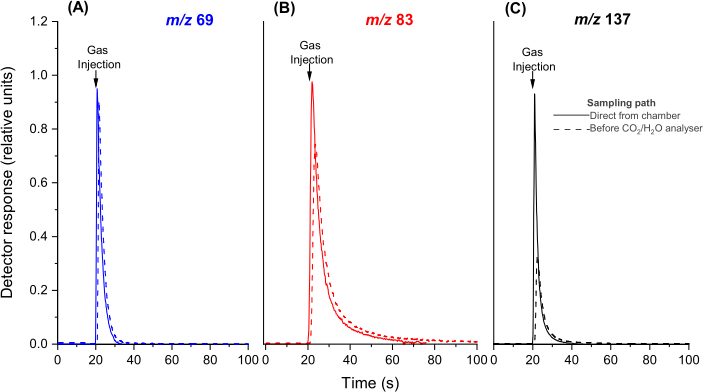
Figuur 2Effect van de bemonsteringspositie op de temporele respons van vluchtige detectie. Responsies op injectie van puur (A) isopreen (m/z 69), (B) Z-3-hexen-1-ol, voornamelijk gedetecteerd als het fragmention m/z 83, en (C) α-pineen (m/z 137) werden geregistreerd op twee bemonsteringsposities. Doorgetrokken lijnen vertegenwoordigen bemonstering direct na de uitlaat van de kamer, terwijl gestreepte lijnen de standaard bemonsteringspositie vertegenwoordigen vóór de CO₂/H₂O-analyzers, na passage door de leidingen van het gasuitwisselingssysteem. Pijlen geven de gasinjectie aan. Responsies werden genormaliseerd naar het maximale signaal gedetecteerd door de PTR-QMS-bemonstering naast de kamer. Voor de visualisatie van verschillen in de vorm van de respons zijn de tijdsklassen van de standaardbemonstering met 0,9 s verschoven ten opzichte van de directe bemonstering. Deze figuur is aangepast van Rasulov et al..16. Klik hier om een grotere versie van deze figuur te bekijken.
Het afsnijden van bladeren triggerde snelle, verbinding-specifieke vluchtige emissies in alle soorten (Quercus rubra, Acer platanoides en Gossypium hirsutum), en het systeem detecteerde deze emissies binnen enkele seconden. Omdat de opstelling binnen de kamer zowel het begin als de piek van de emissie direct vastlegde, maakte dit kwantificering van verbinding-specifieke kinetiek mogelijk zonder de meting te onderbreken.
Bij alle soorten werd het dominante wond-geïnduceerde PTR-TOF-MS-signaal gedetecteerd bij m/z 9, wat op basis van eerdere PTR-TOF-MS-studies voorlopig is toegewezen aan LOX-afgeleide hexenaal-achtige verbindingen (Figuur 3, Figuur 4 en Figuur 5). De piekemissies varieerden tussen 24–30 nmol m-2 s-1 over de drie soorten, wat het vermogen van het protocol illustreert om wond-geïnduceerde VOC-dynamiek over een breed bereik van emissie-intensiteiten op te lossen (Figuur 3, Figuur 4 en Figuur 5). In alle gevallen nam m/z 9 binnen enkele seconden na het snijden toe, bereikte een piek binnen ~39–57 s en vertoonde de steilste stijging van alle gemonitorde massa's (Tabel 1), waardoor het werd geïdentificeerd als de dominante acute component van de wondburst.
Massa 69 bleef verwaarloosbaar vóór het snijden bij A. platanoides (Figuur 4B) en G. hirsutum (Figuur 5B) en nam slechts gering mee toe na verwonding. In tegenstelling hiermee vertoonde Q. rubra aanzienlijke basisemissies voorafgaand aan het snijden, gevolgd door een bescheiden tijdelijke toename en daaropvolgende stabilisatie, wat consistent is met constitutieve isopreenafgifte bovenop de wondrespons (Figuur 3B).
Andere gemonitorde massa's onthulden een duidelijke temporele sequentie na het snijden. Over de soorten heen definieerden m/z 43, 57, 69 en 9 de vroege fase van de burst, terwijl m/z 45 en 83 later piekten (Figuur 3, Figuur 4 en Figuur 5; Tabel 1). Dit patroon was het meest uitgesproken bij A. platanoides, waarbij m/z 45 direct na het snijden begon te stijgen maar pas na ~15 s piekte, wat duidt op een tragere en meer langdurige respons dan de vroege LOX-gerelateerde fragmenten (Figuur 4A; Tabel 1). Op soortgelijke wijze piekte m/z 83 later dan de vroege fragmenten bij alle soorten en was deze vooral vertraagd bij G. hirsutum, waarbij het maximum pas na ~23 s werd bereikt (Figuur 5A; Tabel 1).
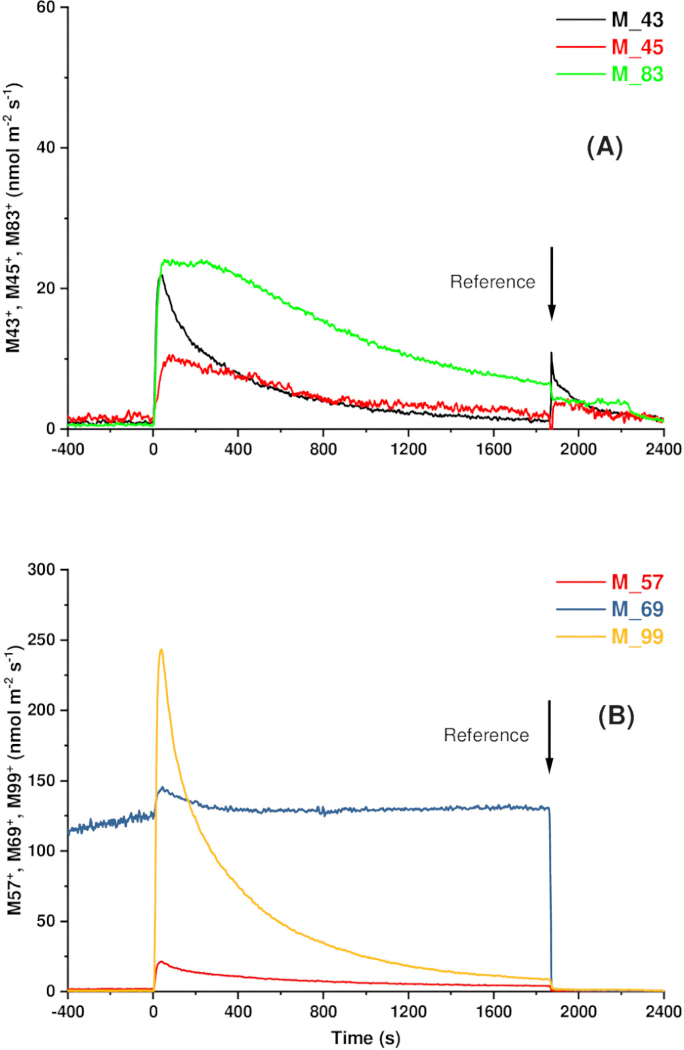
Figuur 3Tijdsopgeloste, wond-geïnduceerde vluchtige emissies in een representatief blad van Quercus rubra. (A) m/z 43, 45 en 83. (B) m/z 57, 69 en 9. Op t = 0 werd het blad doorgesneden met een in de kamer geplaatste bladsnijder, zoals getoond in Figuur 1waarbij een incisie van 10 mm werd gemaakt. Vluchtige emissies werden continu gemonitord met een proton-transfer reactie time-of-flight massaspectrometer (PTR-TOF-MS), en gasuitwisselingssnelheden werden gemeten met een Walz GFS-30 systeem. De signalen worden weergegeven als representatieve, baseline-gecorrigeerde emissieprofielen die de temporele resolutie illustreren die met het protocol kan worden bereikt. Zie Tabel 1 voor representatieve kinetische descriptoren die uit deze emissieprofielen zijn geëxtraheerd. Klik hier om een grotere versie van deze figuur te bekijken.
Ondanks deze gedeelde kenmerken laten de representatieve metingen zien dat emissietrajecten per soort kunnen verschillen. Bij Q. rubra stegen m/z 43 en 57 snel, maar liepen ze uiteen tijdens de afbouwfase, waarbij m/z 57 langzamer afnam dan m/z 43 (Figuur 3A,B). Bij A. platanoides was dit patroon omgekeerd, waarbij m/z 43 een langzamere afname in de late fase vertoonde (Figuur 4A). Bij G. hirsutum waren alle signalen lager in magnitude en combineerden de emissieprofielen snelle initiële pieken met een geleidelijkere afname. Opvallend is dat m/z 45 een kleine secundaire toename vertoonde tijdens de afbouwfase (Figuur 5A).
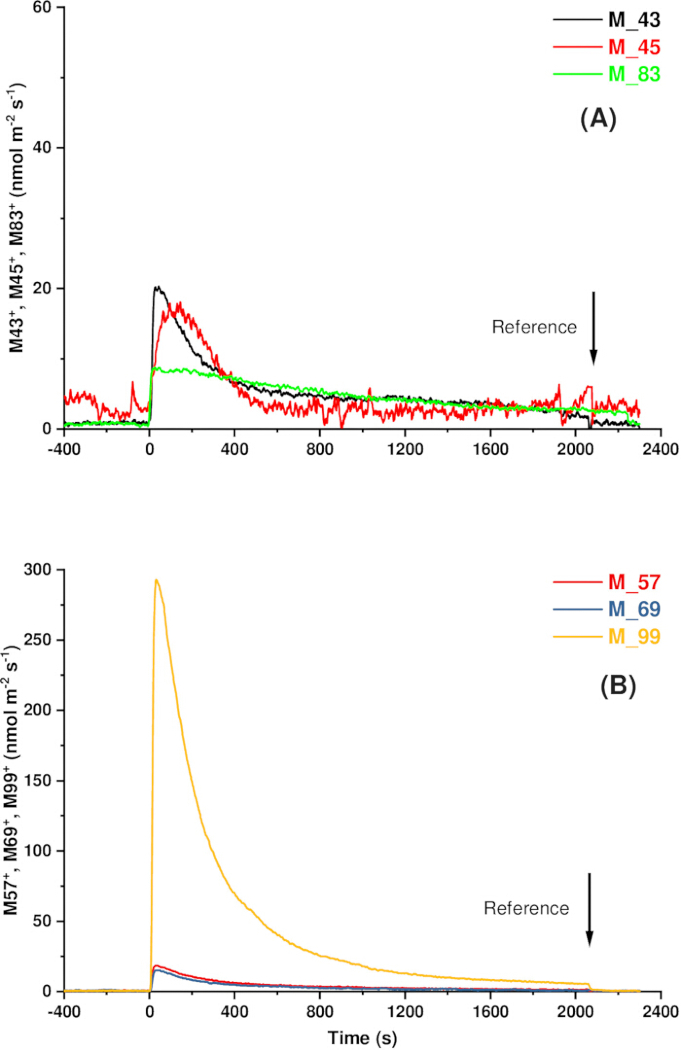
Figuur 4: Tijdsopgeloste, door wondvorming geïnduceerde vluchtige emissies in een representatief blad van Acer platanoides. (A) m/z 43, 45 en 83. (B) m/z 57, 69 en 9. Het blad werd op t = 0 gesneden met een snijmechanisme in de kamer (Figuur 1; 10 mm incisie). Vluchtige emissies werden continu gemeten met een proton-transfer reactie time-of-flight massaspectrometer (PTR-TOF-MS), en gasuitwisseling werd gemeten met een Walz GFS-300 systeem. De signalen worden weergegeven als representatieve, baseline-gecorrigeerde emissieprofielen die de temporele resolutie illustreren die met het protocol kan worden bereikt. Zie Tabel 1 voor representatieve kinetische beschrijvers geëxtraheerd uit deze emissieprofielen. Klik hier om een grotere versie van deze figuur te bekijken.
Samen wijzen deze patronen erop dat wond-geïnduceerde emissies een verbinding-specifieke cascade volgen in plaats van één enkele synchrone uitstoot, waarbij scherpe vroege componenten worden gevolgd door bredere, vertraagde responsen.
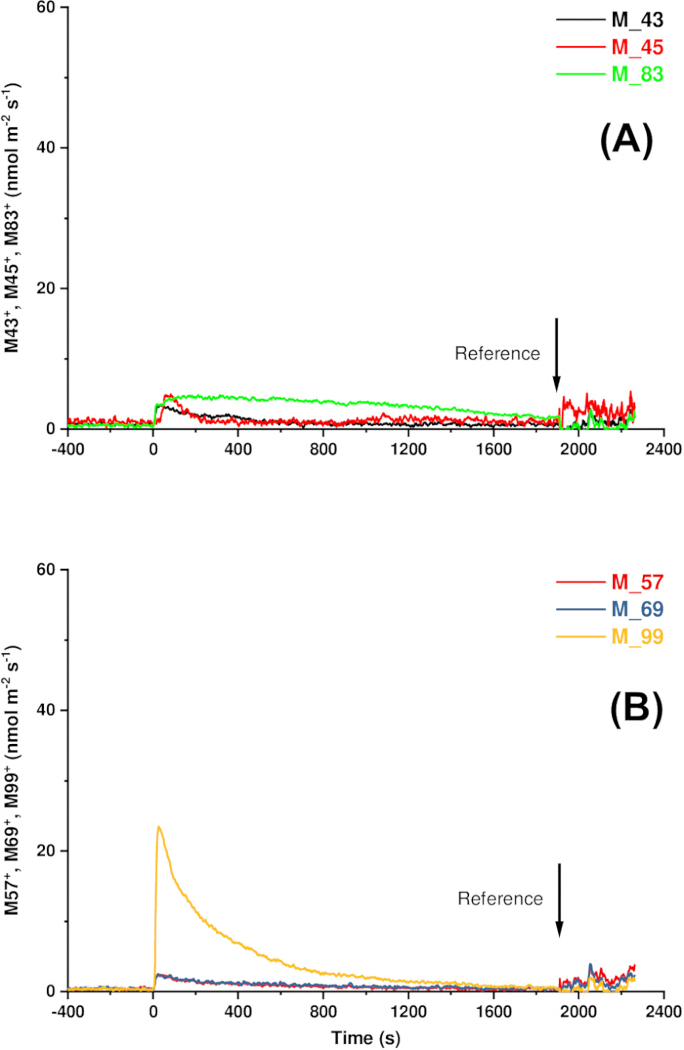
Figuur 5Tijdsopgeloste, door wondvorming geïnduceerde vluchtige emissies in een representatief blad van Gossypium hirsutum. (A) m/z 43, 45 en 83. (B) m/z 57, 69 en 9. Het blad werd bij t = 0 gesneden met een snijinstrument in de kamer (Figuur 1; 10 mm incisie). Vluchtige emissies werden continu gemeten met een proton-transfer reaction time-of-flight massaspectrometer (PTR-TOF-MS), en gasuitwisseling werd gemeten met een Walz GFS-30 systeem. De signalen worden weergegeven als representatieve, baseline-gecorrigeerde emissieprofielen die de tijdresolutie illustreren die met het protocol kan worden bereikt. Zie Tabel 1 voor representatieve kinetische descriptoren die uit deze emissieprofielen zijn geëxtraheerd. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Het hier gepresenteerde protocol maakt een analyse met een hoge temporele resolutie mogelijk van door wondvorming geïnduceerde vluchtige emissies onder gecontroleerde experimentele omstandigheden. Door het snijevent direct in de bladerkamer te integreren en de vluchtige signalen continu te monitoren (Figuur 1), legt het systeem de emissierespons vast zonder de vertekeningen die worden veroorzaakt door vertraagde bemonstering, het openen van de kamer of bladmanipulatie buiten de meetopstelling. Deze verstoringen kunnen zowel de schijnbare timing als de omvang van emissiepieken bij metingen in een afgesloten kamer verschuiven3,6,13,17. Door wondvorming en meting in dezelfde behuizing te houden, behoudt het protocol de tijdlijn van de emissie en maakt het een betrouwbare, tijdsonderverdeelde kwantificering van door stress geïnduceerde vluchtige responsen mogelijk.
| Soorten | Geprotoneerde molecuulmassa | Piekamplitude (nmol m-2 s-1) | Aanlooptijd na insnijding (s) | Tijdstip van piek (s) | Maximale helling (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
Tabel 1: Representatieve waarden van piekmagnitude, emissie-onset, tijd tot piek en maximale helling geëxtraheerd uit continue PTR-TOF-MS-metingen na bladbeschadiging.De waarden omvatten piekmagnitude, emissie-onset, tijd tot piek en maximale helling. Deze waarden illustreren het type kinetische descriptoren dat door het protocol wordt gegenereerd en worden verstrekt als proof-of-concept voorbeelden in plaats van statistische vergelijkingen tussen soorten. Emissie-onset werd gedefinieerd als de eerste detecteerbare toename boven de baseline vóór beschadiging na het snijden, tijd tot piek als het interval tussen het snijden en het maximale signaal, en maximale helling als de maximale eerste afgeleide van het baseline-gecorrigeerde signaal.
Een vergelijking van de bemonsteringsposities toonde aan dat de bemonsteringsconfiguratie het geregistreerde signaal aanzienlijk beïnvloedde (Figuur 2). Directe bemonstering bij de uitlaat van de kamer behield de snelle piekvorming, terwijl bemonstering na de analyzerbuis de piekvorming vertraagde en de signaalintensiteit dempte. Dit effect was verwaarloosbaar voor isoprene (m/z 69), matig voor m/z 83 en het sterkst voor α-pinene (m/z 137), wat consistent is met toenemende transportgerelateerde vervorming bij zwaardere of reactievere verbindingen10,21. Adsorptie aan buisoppervlakken, vertraagd transport door de bemonsteringslijn en chemische interacties tijdens het transport kunnen emissiepieken verbreden of dempen, waardoor de interpretatie van de vluchtige kinetiek verandert9,12,21.
Een centraal voordeel van het huidige protocol is het vermogen om de vroegste fase van wond-geïnduceerde vluchtige emissies te onderscheiden. Bij alle soorten trad deze vroege fase binnen enkele seconden na het snijden op en werd deze gedomineerd door een burst bij m/z 99, die zowel de hoogste piekamplitude als de steilste maximale helling vertoonde (Figuur 3, Figuur 4, en Figuur 5; Tabel 1). Piekmaxima traden op binnen ~40–57 s na het snijden, aanzienlijk eerder dan de 100–280 s die gewoonlijk in eerdere studies werden gerapporteerd13,19,22. Deze verschuiving weerspiegelt waarschijnlijk de synchronisatie van wondinflictie en detectie binnen de kamer, waardoor vertragingen veroorzaakt door bladbehandeling en transport via de bemonsteringslijn worden geminimaliseerd.
Door het synchroniseren van de beschadiging en de detectie binnen dezelfde behuizing, loste het protocol ook een cascade op fragmentniveau op, waarbij m/z 43 en 57 direct na het snijden stegen, terwijl m/z 45 later piekte en bredere afbraakdynamieken vertoonde (Figuur 3, Figuur 4, en Figuur 5; Tabel 1). Deze volgorde blijft consistent met eerdere PTR-gebaseerde studies, ondanks het gebrek aan scheiding op verbindingsniveau vergeleken met GC-MS, waarin vroege emissies worden gedomineerd door lipoxygenase-afgeleide C6-aldehyden, gevolgd door downstream alcoholen en verwante producten19,22. In overeenstemming met eerdere PTR-TOF-MS-studies komt het dominante m/z 99-signaal overeen met hexenaal-type verbindingen, waarvan het dehydratatiefragment bij m/z 81 is geïdentificeerd als een belangrijk vroeg signaal, terwijl m/z 83 bijdragen van hexenolen en hexanaal weerspiegelt22. Deze sequentie ondersteunt verder een grootte- en routeafhankelijke hiërarchie, waarbij kleinere, snel gevormde geoxygeneerde verbindingen eerder worden vrijgegeven dan grotere of complexere moleculen13,23.
Naast fragmenten afkomstig van lipoxygenase vertoonde het signaal bij m/z 69, voorlopig toegewezen aan isopreen, verschillende emissietrajecten tussen de representatieve voorbeelden (Figuur 3, Figuur 4 en Figuur 5). Q. rubra vertoonde aanzienlijke basisemissies, terwijl A. platanoides en G. hirsutum slechts sporen produceerden, wat overeenkomt met hun bekende emissiekenmerken24,25. Over de soorten heen reageerde isopreen slechts zwak op verwonding, wat consistent is met de de novo synthese via de MEP-route, die afhankelijk is van het fotosynthetisch metabolisme en daarom slechts indirect wordt beïnvloed door mechanische beschadiging15.
Deze snelle dynamiek weerspiegelt goed gedocumenteerde biochemische reacties van bladeren op mechanische beschadiging. Mechanisch letsel activeert snel de lipoxygenase-route, die kortstondige pulsen van C6-vluchtige stoffen en aanverwante geoxideerde verbindingen produceert uit membraanlipide-oxidatie5,7,17,22,23. Deze emissies vertonen sterk asymmetrische dynamiek, met een snelle stijging na weefseldestructie, gevolgd door een langzamere afnamefase16. Dit asymmetrische patroon in het huidige systeem ontvouwt zich op een tijdschaal van seconden tot minuten, zoals geïllustreerd door de representatieve kinetische beschrijvers samengevat in Tabel 1, terwijl studies waarin bladeren buiten de kamer worden beschadigd, vertraagde pieken rapporteren13. Deze eerdere resolutie legt het signaal vast vanaf het begin, vermindert temporele vervaging en maakt directe kwantificering van zowel de stijging- als de afnamefase mogelijk. Deze kinetische kenmerken definiëren samen het volledige emissietraject, dat door discrete of vertraagde bemonsteringsmethoden vaak wordt onderschat5,15.
Het standaardiseren van het snijproces binnen de kamer verbetert de reproduceerbaarheid van het experiment verder door een consistente wondgeometrie en -ernst te garanderen, welke beide worden bepaald door de lengte van de incisie en direct invloed hebben op de omvang van de VOC-emissie5,18,22. Desalniettemin, aangezien het snijblad een vaste positie in de kamer inneemt, wordt de plaatsing van de incisie beïnvloed door de bladgrootte, morfologie en de noodzaak om een luchtdichte afsluiting te behouden. Indien mogelijk moet de incisie worden geplaatst in de interveinale lamina, terwijl de hoofdnerf en andere grote nerven worden vermeden. Echter kan het volledig vermijden van grote nerven niet altijd worden gegarandeerd, in het bijzonder bij smalle of kleine bladeren. Omdat schade aan grote nerven de door wonden geïnduceerde VOC-emissies aanzienlijk kan veranderen5, moet de positie van de incisie zo consistent mogelijk worden gehouden tussen monsters binnen hetzelfde experiment.
Het handhaven van stabiele omgevingscondities is even belangrijk voor het verkrijgen van reproduceerbare metingen van door wondvorming geïnduceerde VOC's. Omdat de productie, afgifte en transport van VOC's worden beïnvloed door omgevingsfactoren, werden de temperatuur in de kamer, de luchtvochtigheid, de bestraling, de CO2concentratie en de luchtstroom gedurende alle metingen constant gehouden. De standaardisatie van deze variabelen minimaliseert de experimentele variabiliteit verder en verbetert de reproduceerbaarheid van de kinetiek van door wondvorming geïnduceerde VOC's. Bovendien is het protocol volledig compatibel met gelijktijdige gasuitwisselingsmetingen, waardoor toekomstige toepassingen de dynamiek van VOC-emissies direct kunnen relateren aan veranderingen in fotosynthese en transpiratie onder identieke experimentele omstandigheden26. Dergelijke metingen kunnen helpen om de biochemische regulatie van VOC-productie te onderscheiden van fysieke processen die de afgifte van vluchtige stoffen beïnvloeden, waaronder verhoogde verdamping van wateroplosbare geoxygeneerde verbindingen uit beschadigd weefsel16. Bijgevolg moeten verschillen tussen behandelingen of soorten alleen worden geïnterpreteerd wanneer de omgevingscondities, de wondgeometrie en het plantmateriaal, inclusief het ontwikkelingsstadium van het blad, gedurende het gehele experiment zijn gestandaardiseerd12.
Hoewel eerdere benaderingen binnen een kamer de haalbaarheid van real-time metingen van door wonden geïnduceerde VOC's hebben aangetoond, onthulden ze ook belangrijke technische beperkingen. Onregelmatige sneden, inconsistente wondgrootte en verstoringen van de kamerafdichting zorgden voor variabiliteit tussen de metingen18,19. Daarnaast vertrouwden deze benaderingen vaak op relatief grote kamervolumes, wat de luchtverversing vertraagde, de piekvorming uitstelde en de vluchtige signaalprofielen verbreedde22,27. Dergelijke effecten worden prominenter bij minder vluchtige verbindingen en kunnen variëren met de temperatuur21. In tegenstelling hiermee reduceert de kleinere kamer die in het huidige protocol wordt gebruikt (~8 mL intern volume) de verblijftijd van de lucht, wat bijdraagt aan de scherpere start die in onze metingen is waargenomen (Figuur 1).
Het protocol is ontwikkeld voor gecontroleerde fysiologische experimenten in plaats van voor directe in situ monitoring van bosecosystemen. Metingen worden uitgevoerd op aangehechte bladeren onder goed gedefinieerde omgevingscondities, waardoor experimentele variabiliteit wordt geminimaliseerd en een nauwkeurige karakterisering van wond-geïnduceerde VOC-kinetiek mogelijk wordt. Veldtoepassingen zullen afhangen van de beschikbaarheid van draagbare systemen voor gasuitwisseling en VOC-detectie. Aangezien het geïntegreerde snismechanisme echter met slechts kleine aanpassingen kan worden aangepast aan verschillende kamerconfiguraties, zou de aanpak gemakkelijk overdraagbaar moeten zijn naar draagbare gasuitwisselingsplatforms en andere experimentele platforms zodra deze technologieën beschikbaar komen. Deze flexibiliteit vergroot de mogelijkheden om snelle stressreacties van planten te onderzoeken, terwijl de temporele resolutie behouden blijft die nodig is voor een nauwkeurige karakterisering van VOC-emissiedynamiek, wat mechanistische studies naar de vroegste fysiologische en biochemische reacties op bladschade faciliteert.
Openbaarmakingen
De auteurs verklaren dat er geen belangenverstrengelingen zijn.
Dankbetuigingen
Wij erkennen de financiering door de Estse Onderzoeksraad (PRG2207) en het Ministerie van Onderwijs en Onderzoek van Estland (Center of Excellence Agro-CropFuture, “Agroecology and new crops in future climates”, TK200U1).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| GC-MS-systeem met TD-20 thermische desorbeerder | Shimadzu | GCMS-QP2010 Plus; TD-20 | GC-MS-systeem met TD-20 thermische desorbeerder. www.shimadzu.com |
| GFS-3000 gasuitwisselingssysteem | Walz GmbH | GFS-3000 | Metingen van de gasuitwisseling van bladeren. www.walz.com |
| Helium van hoge zuiverheid (99,999%) | Lokale leverancier | N/A | Gebruikt voor conditionering van adsorberpatronen en thermische desorptie in de GC-MS. www.airliquide.com (of gelijkwaardige leverancier). |
| Isopreen-kalibratiestandaard | Sigma-Aldrich Chemie GmbH | Custom | Custom isopreen-kalibratiestandaard (3,43 ppm). www.sigmaaldrich.com |
| Dichtingspasta met lage emissie | Lokale leverancier | N/A | Gebruikt om het invoerpunt van de snijder in de kamer af te dichten. |
| Multi-bed adsorberpatroon van roestvrij staal | Supelco | Custom | 10,5 cm lengte × 3 mm i.d.; gevuld met Carbotrap C (0,2 g, 20–40 mesh), Carbopack B (0,1 g, 40–60 mesh), en Carbotrap X (0,1 g, 20–40 mesh). Gebruikt voor optionele offline GC-MS-identificatie van VOS. www.sigmaaldrich.com |
| Draagbare luchtbemonsteringspomp met constante stroom | SKC Inc. | 210-1003MTX | Draagbare luchtbemonsteringspomp met constante stroom. |
| PTR-TOF 8000 massaspectrometer | Ionicon Analytik GmbH | PTR-TOF 8000 | VOS-detectie. www.ionicon.com |
| Zilversoldeerd draad | Lokale leverancier | N/A | Gebruikt om een scheermesje aan een roestvrijstalen staaf te bevestigen. |
| Veer messing plaat (0,2 mm dikte) | Lokale leverancier | N/A | Flexibele steunen gebruikt om de snijder vast te zetten. |
| Roestvrijstalen staaf (1 mm diameter) | Lokale leverancier | N/A | Ondersteuningsstaaf voor de snijder. |
| Roestvrijstalen injectienaald (1,6 mm buitendiameter) | Lokale leverancier | N/A | Huisvesting voor een roterend snijmes. |
| Teflon stoppers | Lokale leverancier | N/A | Gebruikt om de behuizing van de snijder af te dichten terwijl rotatie mogelijk blijft. |
| Teflon T-stuk connector | Lokale leverancier | N/A | Geïnstalleerd nabij de uitlaat van de kamer om de slanglengte te verminderen. |
| Teflon slangen (FEP of PTFE) | Lokale leverancier | N/A | VOS-bemonsteringslijn tussen de kamer en de detectoren. |
| VOS-kalibratiegasmengsel | Ionimed GmbH | Custom | 1 ppm van elke verbinding in N2; gebruikt voor PTR-TOF-MS kalibratie. www.ionimed.com |
Referenties
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar