Dit protocol beschrijft de CRISPR-Cas9-gemedieerde disruptie van de nodC locus in Mesorhizobium ciceri met behulp van homology-directed repair en GFP-gebaseerde screening om symbiose-defecte mutanten te genereren voor functionele genomische studies in kikkererwten-geassocieerde rhizobia.
Methodenartikel
CRISPR-Cas9 genoomredigering in Mesorhizobium ciceri via nodC-disruptie voor studies naar symbiose bij kikkererwten
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Mesorhizobium ciceri, een stikstofbindende symbiont van de kikkererwt (Cicer arietinum), blijft genetisch lastig te manipuleren met conventionele methoden voor homologe recombinatie, die arbeidsintensief zijn en vaak ongewenste selectiemarkers achterlaten. In dit protocol beschrijven we een gestroomlijnde strategie voor genoomredigering met behulp van een Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR)-associated protein 9 (Cas9)-systeem met een breed gastheerbereik, aangepast voor M. ciceri. We demonstreren de effectiviteit van deze methode door te richten op nodC, dat codeert voor de N-acetylglucosaminyltransferase die nodig is voor de synthese van het chitine-skelet in Nod-factoren, de primaire signaleringsmoleculen die betrokken zijn bij symbiotische moleculaire communicatie. Dit protocol beschrijft in detail het systematische ontwerp van single-guide RNA's (sgRNA's) en de constructie van een template voor homology-directed repair (HDR). Het HDR-template is ontworpen om de site-specifieke integratie van een green fluorescent protein (GFP)-reporter te faciliteren, geflankeerd door de nodC-splitsingsplaats. Na overdracht van het Cas9/sgRNA/HDR-construct via biparentale paring werden putative mutanten geïdentificeerd met behulp van een screeningsmethode op basis van fluorescentie. De succesvolle disruptie van de 1.3 kb nodC-locus binnen de nodulatie- (nod)-cassette werd aanvankelijk gescreend door visualisatie van de GFP-expressie in mutante kolonies met fluorescentiemicroscopie. De disruptie werd verder gevalideerd door restrictiedigestie, amplificatie van de geïntegreerde cassette uit genomisch DNA en Sanger-sequencing. De GFP-expressie werd bovendien gekwantificeerd via reverse transcription quantitative polymerase chain reaction. Om de functionele impact van de mutatie te valideren, werden infectieassays met kikkererwten uitgevoerd, waaruit bleek dat de nodulatie in planten geïnoculeerd met ΔnodC M. ciceri was verminderd in vergelijking met de wildtype-stam. Over het algemeen biedt dit protocol een efficiënt en reproduceerbaar kader voor precieze gen-disruptie en functionele genomica-studies in Mesorhizobium.
Inleiding
Het Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR)-associated protein 9 (Cas9) nuclease-systeem, oorspronkelijk geïdentificeerd als een adaptief immuunmechanisme in prokaryoten, is aangepast tot een effectieve en betrouwbare tool voor genoomredigering1,2. Het systeem maakt gebruik van een synthetisch gids-RNA (sgRNA) om doel-DNA-sequenties te identificeren via Watson-Crick basenparing. Het sgRNA bestaat uit 20 nucleotiden die complementair zijn aan de genomische regio grenzend aan de protospacer adjacent motif (PAM) sequentie NGG. Cas9 veroorzaakt een dubbelstrengs breuk (DSB) op een specifieke locatie binnen de doelsequentie, doorgaans 3 basenparen (bp) stroomopwaarts van de PAM-site1. De resulterende DSB's kunnen worden hersteld via non-homologe end joining of via homology-directed repair (HDR) met behulp van een donormaat3,4. Deze strategie is op grote schaal toegepast voor gen-disruptie, knock-in en knock-out benaderingen in bacteriën5,6,7,8. Het hoofddoel van dit protocol is het ontwikkelen van een efficiënte methode voor genoomredigering van Mesorhizobium ciceri met behulp van een CRISPR-Cas9-systeem met een breed gastheerspectrum.
M. ciceri is een Gram-negatieve bodembacterie die functioneert als een essentiële stikstoffixerende endosymbiont van de kikkererwt (Cicer arietinum)9. Eén stam, M. ciceri CC1192, vertoont een hoge nodulatie-efficiëntie en het genoom hiervan is gesequenced10. Ondanks het agrarische belang blijft genetische manipulatie van Mesorhizobium-soorten beperkt. CRISPR-gebaseerde systemen zijn eerder geïmplementeerd in andere rhizobia, waaronder CRISPR-interferentie (CRISPRi) in Rhizobium etli11, genoomredigering in Sinorhizobium meliloti12 en base-editing in S. meliloti13. Er is echter nog geen robuust platform voor genoomredigering voor M. ciceri gerapporteerd. Conventionele benaderingen zijn afhankelijk van homologe recombinatie via suicide-plasmiden, wat arbeidsintensief is, meerdere selectierondes vereist en vaak antibiotica-resistentiemarkers als genomische littekens achterlaat14.
Om deze beperkingen aan te pakken, werd het pCasPP-vectorsysteem, oorspronkelijk ontwikkeld voor Paenibacillus polymyxa, aangepast voor gebruik in M. ciceri15. Het pCasPP-raamwerk maakt gebruik van een Streptococcus pyogenes Cas9 die codon-geoptimaliseerd is voor actinomyceten met een hoog GC-gehalte en bevat een lacZ-cassette voor blauw-wit screening van sgRNA-klonering onder de constitutieve gapdh-promotor8. Biparentale paring werd uitgevoerd tussen de donorstam Escherichia coli en de recipientstam Mesorhizobium om de editeervector over te dragen16. Om de screeningsefficiëntie te verhogen, werd de groen fluorescerende eiwitvariant (GFP) bjGFP, oorspronkelijk codon-geoptimaliseerd voor Bradyrhizobium diazoefficiens, opgenomen in het HDR-donormodel16. Deze op fluorescentie gebaseerde screeningsstrategie werd toegepast om de essentiële nodC-locus te targeten, welke vereist is voor de vroege stadia van symbiotische signalering tussen de bacterie en de kikkererwt17,18.
Dit protocol biedt een nauwkeurig en efficiënt alternatief voor methoden voor willekeurige chemische of ultraviolette (UV) mutagenese. In validatie-experimenten vertoonden meer dan 80% van de herwonnen kolonies GFP-fluorescentie, en representatieve bewerkte kolonies werden verder bevestigd middels polymerasekettereactie (PCR) en Sanger-sequencing. De resulterende ΔnodC M. ciceri mutanten vormen een nuttige bron voor het bestuderen van symbiotische signalering en gastheer-microbe interacties. Over het algemeen biedt dit raamwerk de rhizobium-onderzoeksgemeenschap een efficiënte en schaalbare benadering voor functionele genomica-studies in Mesorhizobium.
Protocol
Alle experimentele protocollen met betrekking tot plantengroei, microbiële inoculatie en de omgang met genetisch gemodificeerde bacteriën werden uitgevoerd in overeenstemming met de institutionele richtlijnen en regelgeving. De plantenteelt en bacteriële inoculaties werden uitgevoerd onder gecontroleerde omstandigheden in een groeikamer. De M. ciceri-stam die in deze studie is gebruikt, is geclassificeerd als een micro-organisme van Biosafety Level 1 (BSL-1). Omdat alle experimenten werden uitgevoerd onder gecontroleerde laboratoriumomstandigheden zonder uitzetting in het veld, was er conform de institutionele biosafety-richtlijnen geen formele institutionele biosafety-goedkeuring vereist. Alle biologische afvalstoffen die tijdens de studie zijn gegenereerd, zijn geautoclaveerd vóór disposal.
1. Bereiding van competente cellen
Chemisch competente E. coli DH5α- en E. coli S17-1λpir-cellen werden klaargemaakt en gevalideerd volgens de procedure beschreven in Aanvullend bestand 1.
2. Ontwerp van gids-RNA
- Ontwerp van gids-RNA's
- Open het Benchling-platform (https://benchling.com/). Log in op een bestaand Benchling-account of maak een nieuw account aan.
- Maak een nieuw project aan en open de CRISPR Guide Design Tool.
- Upload of plak de volledige target DNA-sequentie voor het ontwerp van het gids-RNA. Selecteer de ontwerpoptie “Single Guide” en stel de gidslengte in op 20 bp.
- Selecteer de genoomreferentie uit de beschikbare opties. Selecteer voor het ontwerp van gids-RNA gericht op M. ciceri Bradyrhizobium diazoefficiens USDA 110 als referentiegenoom. Gebruik NGG als de protospacer adjacent motif (PAM)-sequentie die vereist is voor Streptococcus pyogenes Cas9 (SpCas9)-activiteit.
- Gebruik het algoritme van Hsu et al.19 om de voorspelde off-target knipfrequenties te berekenen. Houd een drempelwaarde van ≥50 aan om aspecifieke splitsing in de referentiegenoomachtergrond te minimaliseren.
- Gebruik het Doench-Root-algoritme20 om de voorspelde on-target efficiëntiescores te berekenen. Stel een drempelwaarde voor targetselectie in van ≥60 om gidsen te identificeren met een gunstige voorspelde Cas9-splitsingsefficiëntie op de targetlocus.
- Klik op “Finish” om de lijst met kandidaat gids-RNA's te genereren.
- Selectie van gids-RNA's
- Open het resultatenpaneel van het gids-RNA.
- Geef prioriteit aan kandidaat sgRNA's waarvan voorspeld wordt dat ze een dubbelstrengs breuk veroorzaken binnen 100 bp van het translationele startcodon (ATG), om de kans op het produceren van een niet-functioneel eiwit te vergroten.
- Evalueer de off-target en on-target scores. Geef prioriteit aan een hogere off-target score boven een iets hogere on-target score om het risico op onbedoelde off-target splitsing te verminderen.
- Selecteer één of twee kandidaat single-guide RNA's (sgRNA's) die voldoen aan alle selectiecriteria.
- Preparatie van gRNA-oligonucleotiden
- Genereer de reverse-complement sequentie van het geselecteerde gids-RNA.
- Voeg de sequentie 5′-ACGC toe aan het 5′-uiteinde van het gids-RNA en voeg de sequentie 5′-AAAC toe aan het 5′-uiteinde van de reverse-complement streng.
- Bestel beide oligonucleotiden met 5′-fosforylering en PAGE-zuivering bij een syntheseschaal van 25 nmol.
- Annealing van gRNA-oligonucleotiden
- Bereid 30 mM HEPES-buffer voor door 7,15 g HEPES-vrij zuur op te lossen in ongeveer 800 mL gedestilleerd water. Stel de pH bij naar 7,8 met natriumhydroxide en vul aan tot een eindvolume van 1 L.
- Resuspendeer elk gefosforyleerd oligonucleotide in nuclease-vrij water tot een eindconcentratie van 100 µM. Combineer 5 µL van elk oligonucleotide met 90 µL 30 mM HEPES-buffer in een steriele microcentrifugebuis.
- Vortex kortstondig en centrifugeer om de vloeistof te verzamelen. Anneal de oligonucleotiden in een thermocycler door te incuberen bij 95°C gedurende 5 min en af te koelen tot 4°C met een afkoelsnelheid van 0,1°C/s.
- Verdun de geannealde oligonucleotiden 10-voudig met nuclease-vrij water.
- Assemblage van gRNA in pCasPP-vector
- Verkrijg de pCasPP-vector zoals eerder beschreven door Rütering et al.15.
- De plasmidsequentie werd verstrekt door Jochen Schmid, en het construct dat in deze studie werd gebruikt, werd verkregen via Dr. Syed Shams Yazdani (ICGEB).
- Stel een Golden Gate-reactie samen bestaande uit 100 ng pCasPP-vector, 0,3 µL geanneald oligonucleotide-insert, 2 µL 10× T4 DNA-ligasebuffer, 1 µL T4 DNA-ligase, 1 µL BbsI-restrictie-enzym en nuclease-vrij water tot een eindvolume van 20 µL.
- Bereid een negatieve controle-reactie voor door het insert te vervangen door nuclease-vrij water.
- Meng de reacties voorzichtig en centrifugeer kortstondig.
- Cycluscondities voor Golden Gate-assemblage
- Plaats de reactiebuizen in een thermocycler. Voer negen cycli uit bestaande uit 37°C gedurende 10 min gevolgd door 16°C gedurende 10 min.
- Incubeer de reacties bij 50°C gedurende 5 min en vervolgens bij 65°C gedurende 20 min. Bewaar de reacties bij 4°C tot gebruik.
- Transformatie van assemblagereacties
- Ontdooi 50 µL competente Escherichia coli DH5α-cellen op ijs gedurende 10–15 min.
- Voeg 3 µL van elke Golden Gate-assemblagereactie toe aan de competente cellen. Verwerk de negatieve controle-reactie parallel. Incubeer de mengsels op ijs gedurende 30 min.
- Geef de cellen een hitte-shock bij 42°C gedurende 45 s en plaats de buizen onmiddellijk gedurende 2 min terug op ijs. Voeg 950 µL Super Optimal broth with Catabolite repression (SOC)-medium toe.
- Bereid SOC-medium voor bestaande uit 0,5% gistextract, 2% trypton, 10 mM NaCl, 2,5 mM KCl, 10 mM MgCl₂, 10 mM MgSO₄ en 20 mM glucose. Steriliseer het medium door filtratie met een 0,4 µm spuitfilter onder aseptische omstandigheden.
- Incubeer de culturen bij 37°C en 180 rpm gedurende 1 u.
- Selectie van positieve transformanten
- Bereid LB-agarplaten voor aangevuld met 50 µg/mL neomycine, 0,2 mM isopropyl β-D-1-thiogalactopyranoside (IPTG) en 32 mg/L 5-bromo-4-chloro-3-indolyl β-D-galactopyranoside (X-gal). Plaats 100 µL van de herstelcultuur op de selectieve platen. Incubeer de platen bij 37°C gedurende 12–16 u.
- Selecteer witte kolonies en gooi blauwe kolonies weg. Verifieer dat de negatieve controleplaat minder dan vijf kolonies bevat.
- Screening en expansie van positieve klonen
- Strijk drie tot vier onafhankelijke witte kolonies uit op verse selectieve LB-agarplaten.
- Incubeer de platen bij 37°C gedurende 12–16 u. Inoculeer individuele kolonies in 10 mL LB-medium aangevuld met 50 µg/mL neomycine.
- Verwerk elk gids-RNA-construct onafhankelijk gedurende de verdere workflow.
- Validatie van pCasPP-gRNA-constructs
- Oogst bacteriële culturen door centrifugatie. Isoleer plasmid-DNA met een silica-kolom plasmid-purificatiekit.
- Digest het geïsoleerde plasmid-DNA met XbaI en EcoRI in de geschikte reactiebuffer gedurende 1 u bij 37°C.
- Scheid de digestieproducten op een 1% agarosegel bereid in 1× Tris-acetaat-EDTA (TAE)-buffer met ethidiumbromide bij een eindconcentratie van 0,5 µg/mL.
- Run de gel bij 90–110 V totdat het kleurfront over ongeveer 70–80% van de gellengte is gemigreerd. Visualiseer de DNA-fragmenten met een UV-transilluminator.
- Bevestig positieve klonen door detectie van een fragment van 1.280 bp, en identificeer lege-vector-controles door detectie van een fragment van 1.630 bp. De lege pCasPP-vector is ongeveer 9.663 bp en bevat een lacZ-gen; insertie van het 24 bp gRNA-oligonucleotide verwijdert het lacZ-fragment, wat resulteert in een kleiner gRNA-bevattend pCasPP-construct. De XbaI- en EcoRI-restrictieplaatsen die de lacZ-regio flankeren, worden gebruikt voor diagnostische bevestiging van gRNA-clonering.
- Preparatie van glycerolvoorraden
- Kweek een bevestigde positieve kloon in selectief LB-medium.
- Bereid een glycerolvoorraad door 700 µL log-fase cultuur te mengen met 300 µL steriel 50% glycerol. Breng het mengsel over in steriele cryovials. Bewaar de glycerolvoorraden bij −80°C.
OPMERKING: Vermijd herhaalde vries-dooi-cycli. Bereid meerdere aliquots om de plasmidstabiliteit en bacteriële viabiliteit te behouden. De voltooide Golden Gate-assemblagereactie kan gedurende één nacht bij 4°C of 1–2 weken bij −20°C worden bewaard vóór transformatie.
3. Assemblage van het sjabloon voor homologiericht herstel
- Preparatie van het groen fluorescent eiwit (GFP) insert
- Verkrijg het plasmide pRJPaph-bjGFP dat de fluorescente reportercassette bevat16 (Tabel 1)10,15,16,21,22,23. Het plasmide is verstrekt door Prof. Hans-Martin Fischer (ETH Zürich, Zwitserland) en is verkrijgbaar via Addgene (Plasmide #67032).
- Exciteer de gfp-cassette uit pRJPaph-bjGFP door restrictiedigestie met SacI en KpnI zoals beschreven in Aanvullend Bestand 2 (Stap 3.1). De gfp-sequentie in pRJPaph-bjGFP is een synthetisch bjGFP-gen dat codon-geoptimaliseerd is voor Bradyrhizobium diazoefficiens.
- Purificeer het verwachte gfp-fragment van 1081 bp.
- Constructie van pUC18-gfp
- Verkrijg de pUC18-backbone (Addgene plasmide #50004)21.
- Lineariseer pUC18 met SacI en KpnI zoals beschreven in Aanvullend Bestand 2 (Stap 3.2).
- Ligeer het gepurificeerde gfp-fragment in de gelineariseerde pUC18-vector zoals beschreven in Aanvullend Bestand 2 (Stap 3.2).
- Transformeer competente E. coli DH5α-cellen volgens de transformatieprocedure beschreven in Stap 2.7, waarbij het ligatiemengsel gegenereerd in Stap 3.2.3 wordt gebruikt in plaats van de Golden Gate assembly-reactie.
- Selecteer positieve transformanten en verifieer de gfp-insertie via colony polymerase chain reaction (PCR) zoals beschreven in Aanvullend Bestand 2 (Stap 3.2).
- Amplificatie van homologiearmen
- Ontwerp primers om upstream (UHA) en downstream (DHA) homologiearmen van ongeveer 400–500 bp te amplificeren uit genomisch DNA van M. ciceri (Tabel 2).
- Incorporeer SacI/EcoRI-restrictieplaatsen in de UHA-primers en XbaI/KpnI-restrictieplaatsen in de DHA-primers. Gebruik de primers F_nodC_Up_EcoRI en R_nodC_Up_SacI voor amplificatie van de UHA en de primers F_nodCdown_KpnI en R_nodCdown_XbaI voor amplificatie van de DHA (Tabel 2).
- Isoleer genomisch DNA van M. ciceri volgens Weerakkody et al.25.
- Amplificeer en purificeer de UHA- en DHA-fragmenten zoals beschreven in Aanvullend Bestand 2 (Stap 3.3).
- Constructie van pUC18-UHA-gfp
- Kloon het UHA-fragment in pUC18-gfp met EcoRI en SacI zoals beschreven in Aanvullend Bestand 2 (Stap 3.4).
- Bevestig de correcte assemblage van het plasmide door restrictiedigestie met XbaI en KpnI. Een succesvolle assemblage moet fragmenten van ongeveer 500 en 3725 bp genereren.
- Ga verder met één geverifieerde kloon.
- Constructie van pUC18-UHA-gfp-DHA
- Kloon het DHA-fragment in pUC18-UHA-gfp met KpnI en XbaI zoals beschreven in Aanvullend Bestand 2 (Stap 3.5).
- Bevestig de correcte assemblage door restrictiedigestie met SacI en EcoRI. Een succesvolle assemblage moet fragmenten van ongeveer 400 en 4271 bp genereren.
- Verifieer 5–6 kandidaatklonen via Sanger-sequencing met de primers F_nodC_Up_EcoRI, BjGFP_BP_F1 en R_nodCdown_XbaI (Tabel 2), die samen het grootste deel van de Homology-Directed Repair (HDR)-cassettesequentie bestrijken.
- Amplificatie en purificatie van het uiteindelijke HDR-template
- Amplificeer de volledige HDR-cassette met de primers F_FL_nodCgfp_XbaI and R_nodCdown_XbaI (Tabel 2).
- Purificeer het verwachte HDR-fragment van 2012 bp en digesteer het gepurificeerde PCR-product met XbaI zoals beschreven in Aanvullend Bestand 2 (Stap 3.6).
- Preparatie van pCasPP-gRNA-vectoren
- Haal de pCasPP-gRNA1- en pCasPP-gRNA2-plasmiden op die in Stap 2 zijn gegenereerd.
- Lineariseer de plasmiden met XbaI en defosforyleer de vector-backbone zoals beschreven in Aanvullend Bestand 2 (Stap 3.7).
- Kloneren van het HDR-template in pCasPP-gRNA-vectoren
- Ligeer de HDR-cassette in XbaI-gelineariseerde pCasPP-gRNA1 of pCasPP-gRNA2 zoals beschreven in Aanvullend Bestand 2 (Stap 3.8).
- Transformeer competente E. coli DH5α-cellen en selecteer transformanten op LB-agar bevattend 50 µg/mL neomycine.
- Screening van HDR-bevattende klonen
- Screen transformanten op GFP-fluorescentie met een fluorescentie-stereomicroscoop uitgerust met een standaard GFP-filterset (excitatie 470–488 nm; emissie 507–510 nm).
- Classificeer kolonies als GFP-positief op basis van de aanwezigheid van een duidelijke, uniforme groene fluorescentie die duidelijk hoger is dan de zwakke autofluorescentie waargenomen in niet-geëditeerde negatieve-controlekolonies.
- Breid GFP-positieve klonen uit en isoleer plasmide-DNA.
- Validatie van de HDR-vectorassemblage
- Bevestig de HDR-insertie door XbaI-restrictiedigestie.
- Verifieer de succesvolle assemblage door het vrijkomen van het verwachte HDR-fragment van 2012 bp samen met een pCasPP-gRNA-vector-backbone van ongeveer 9,300 bp.
OPMERKING: Na hitte-inactivatie van de restrictie-enzymen en fosfatase kunnen reactiemengsels gedurende één nacht bij 4°C of tot 1 maand bij −20°C worden bewaard. Bewaar bevestigde plasmide-constructen bij −20°C voor langdurige bewaring.
| Stam of plasmide | Beschrijving | Referentie | ||||
| Mesorhizobium ciceri CC1192 | Recipiëntstam gebruikt voor CRISPR-Cas9 genoomredigering en tests voor knolvorming bij kikkererwten | Haskett et al.10 | ||||
| pCasPP | CRISPR-Cas9 genoomredigeringsvector gebruikt voor de klonering van guide RNA en de levering van HDR-templates | Rütering et al.15 | ||||
| pRJPaph-bjGFP | GFP-reporterplasmide gebruikt als bron van de GFP-cassette (Addgene plasmid #67032) | Ledermann et al.16 | ||||
| pUC18 | Algemene kloneringsvector gebruikt voor de assemblage van HDR-templates (Addgene plasmid #50004) | Norrander et al.21 | ||||
| Escherichia coli S17-1λpir | Donorstam gebruikt voor biparentale conjugatie | Simon et al.22 | ||||
| Escherichia coli DH5α | Kloneringsgast gebruikt voor plasmidepropagatie | Hanahan et al.23 | ||||
Tabel 1: Bacteriële stammen en plasmiden gebruikt in deze studie. Deze tabel vermeldt de bacteriële stammen en plasmiden die zijn gebruikt voor plasmidpropagatie, CRISPR-Cas9-gemedieerde genoomredigering, assemblage van homology-directed repair (HDR)-templates, biparentale paring en fluorescentielabeling van Mesorhizobium ciceri CC1192.
| Categorie | Naam | Sequentie (5′  3′) of beschrijving |
| Bacteriestam | Escherichia coli DH5α | Kloneringsgaststam |
| Bacteriestam | Escherichia coli S17-1λpir | Donorstam voor biparentale paring |
| Kloneringsvector | pUC18 | Kloneringsbackbone-vector |
| CRISPR-vector | pCasPP | CRISPR-Cas9-vector met breed gastbereik |
| Reporterplasmide | pRJPaph-bjGFP | GFP-reporterplasmide |
| Primer | F_guide1_BbsI | pACGCTGTTTACAGAGGCATGCAAG |
| Primer | R_guide1_BbsI | pAAACCTTGCATGCCTCTGTAAACA |
| Primer | F_guide2_BbsI | pACGCGCTTGTTCGGATCCGACCGT |
| Primer | R_guide2_BbsI | pAAACACGGTCGGATCCGAACAAGC |
| Primer | F_nodC_Up_EcoRI | AAAGAATTCCTCATTGCAAGCCAGCAGT |
| Primer | R_nodC_Up_SacI | AAAGAGCTCCGGAAAGCTTGTTTCGGATCC |
| Primer | F_nodCdown_KpnI | AAAGGTACCTCGAGAGCACCGCATAAGAC |
| Primer | R_nodCdown_XbaI | AATTCTAGATGGTTCGGTACTTTCGTGCA |
| Primer | F_FL_nodCgfp_XbaI | AAATTCTAGACTCATTGCAAGCCAGCCAGT |
| Primer | BjGFP_BP_F1 | GAAGTTCATCTGCACCACCG |
| Primer | BjGFP_BP_R1 | GTCCTTGAACGAGATGGTGC |
| Primer | BjGFP_BP_F2 | CCAACTTCAAGATCCGCCAC |
| Primer | GFP_R | CCAACTTCAAGATCCGCCAC |
| Primer | BjGFP_BP_R2 | CTTGTACAGCTCGTCCATGC |
| Primer | 16S_F1 | ATCCTGGCTCAGAACGAACG |
| Primer | 16S_R1 | ATTCCCACGCGTTACTCACC |
| Primer | 16S_F2 | AGTCCGAGAGGGTGAGTGG |
| Primer | 16S_R2 | GTCAGTACCGAGCCAGTGAG |
| Primer | F1_nodC | CGATTTCCAGAACCGTCGTC |
| Primer | nodC_R | CGATTTCCAGAACCGTCGTC |
| Primer | R1_nodC | TCCCCTGCTACAATGAGGAC |
| Primer | F2_nodC | AGTGACTCCGCAATTCCAGA |
| Primer | R2_nodC | TGTCGGTAAAAGTGTTTCCC |
| Primer | F1_nodB | TGGTTCGGTACTTTCGTGCA |
| Primer | R1_nodB | AGTCGCGTGGATCAATGGAC |
| Primer | F1_nodA | TGATCGTCGCTGAATTGGGC |
| Primer | R1_nodA | CAACTGATGGAGCACTGGGT |
| Primer | F1_nodD | TGGCCTTAAGAGACGTGTCG |
| Primer | R1_nodD | AAATGCCTGACCAGCCGTAA |
Tabel 2: Bacteriële stammen, plasmiden en oligonucleotide primers gebruikt in deze studie. Deze tabel bevat de bacteriële stammen, plasmiden en oligonucleotide primers die zijn gebruikt voor de constructie van single-guide RNA (sgRNA), de assemblage van homology-directed repair (HDR)-templates, diagnostische polymerasekettingreactie (PCR), Sanger-sequencing en reverse transcription kwantitatieve polymerasekettingreactie (RT-qPCR). Primersequenties worden weergegeven in de 5′ 3′-oriëntatie. Opmerking: BjGFP_BP_F2 en GFP_R verwijzen naar dezelfde oligonucleotide sequentie, maar worden onder verschillende primernamen vermeld omdat ze in verschillende experimentele assays zijn gebruikt.
4. Biparentale paring voor overdracht van plasmide naar M. ciceri CC1192
- Transformatie van de donor E. coli Cellen
- Transformeren *E. coli* S17-1λpir-cellen met pCasPP-gRNA1-HDR- of pCasPP-gRNA2-HDR-constructen volgens de procedure beschreven in Aanvullend bestand 3 (Stap 4.1).
- Selecteer transformanten op LB-agar bevattend 50 µg/mL neomycine
- Screen transformanten op GFP-fluorescentie met excitatie bij ongeveer 488 nm en emissiedetectie bij ongeveer 510–520 nm.
- Classificeer kolonies als GFP-positief indien zij een uniforme, duidelijke groene fluorescentie vertonen die afwezig is bij niet-getransformeerde kolonies E. coli S17-1λpir-controlekolonies wanneer deze onder identieke microscoopinstellingen werden onderzocht.
- Bereid glycerolvoorraden voor van bevestigde GFP-positieve donorclonen.
- Bereiding van zaad- en startculturen
- Bereid de donor voor *E. coli* S17-1λPIR en ontvanger *M. ciceri* starterculturen volgens Aanvullend bestand 3 (Stap 4.2).
- Kweek startculturen tot een OD₆₀₀ van 0,3–0,4, wat overeenkomt met een geschatte celdichtheid van ongeveer 1 × 10⁸ KVEE/ml
- Bereiding van subculturen voor biparentale paring
- Bereid donor- en recipient-subculturen voor en kweek deze tot de vereiste exponentiële groeifase volgens Aanvullend bestand 3 (Stap 4.3).
- Meet de optische dichtheid bij 600 nm (OD600) met een UV-vis-spectrofotometer volgens de procedure voor de meting van de optische dichtheid zoals beschreven in Aanvullend bestand 1 (Stap 1.2.3).
- Procedure voor biparentale paring
- Voer membraanfilter-biparentale paring uit volgens Aanvullend bestand 3 (Stap 4.4).
- Pipetteer vier aliquots van de paringssuspensie op een steriele 0.22 µm polyvinylideenfluoride (PVDF) membraanfilter (47 mm diameter), waarbij voldoende afstand tussen de spots wordt gewaarborgd om vermenging te voorkomen.
- Herstel en selectie van transconjuganten
- Herstel de transconjuganten en voer een dubbele antibioticumselectie uit volgens Aanvullend bestand 3 (Stap 4.5).
- Subcultuur de transconjuganten herhaaldelijk op medium met enkel carbenicilline om residuele plasmiden te elimineren.
- Bevestig het verwijderen van het plasmide door het uitblijven van koloniegroei op een medium met neomycine en door diagnostische PCR die de afwezigheid van de pCasPP-backbone aantoont, terwijl de chromosomaal geïntegreerde HDR-cassette behouden blijft.
OPMERKING: Successieve passaging is vereist om de stabiliteit van de geïntegreerde modificatie te verifiëren en residuele episomale plasmiden te elimineren.
- Screening van GFP-positieve kolonies
- Screen gezuiverde transconjuganten op GFP-fluorescentie en vergelijk deze met het wildtype M. ciceri controles volgens Aanvullend bestand 3 (Stap 4.6).
- Selecteer fluorescente kolonies als vermoedelijke HDR-positieve stammen.
- Classificeer koloniën als GFP-positief indien zij een uniforme, duidelijke groene fluorescentie vertonen die afwezig is bij het wildtype *M. ciceri* kolonies onder identieke microscoopinstellingen en belichtingsomstandigheden.
- Bevestig GFP-positieve kolonies via diagnostische PCR voordat u overgaat tot verdere validatie.
- Bewaar bevestigde kolonies op gist-mannitol (YM) agar bij 4°C voor kortstondig onderhoud of als glycerolstocks met 20%–25% glycerol bij −80°C voor langdurige bewaring.
5. Validatie van nodC-mutanten
- Validatie van GFP-integratie op de nodC-locus
- Inoculeer een enkele GFP-expresserende M. ciceri kolonie in 10 mL gist-mannitolbouillon (YMB) aangevuld met 100 µg/mL carbenicilline24Incubeer de cultuur bij 28°C onder schudding bij 180 rpm gedurende 20–24 u.
- Oogst de bacteriële cellen door centrifugatie bij 8.000 × g gedurende 10 min bij 25°CVerzamel het celpellet en isoleer genomisch DNA volgens Weerakkody et al.25.
- Voer een diagnostische PCR uit met genomisch DNA als template (Tabel 2). Bereid een 10 µL PCR-reactie bestaande uit 5 µL 2× PCR-mastermix, 0.2 µM F1_nodB- en nodC_R-primers of F1_nodB- en gfp_R-primers, en 50 ng genomisch DNA.
- Programmeer de thermocycler voor een initiële denaturatie bij 95°C gedurende 5 min, gevolgd door 35 cycli van 95°C gedurende 1 min, 62°C gedurende 30 s, en 72°C gedurende 45 s, met een laatste extensie bij 72°C gedurende 5 min.
- Scheid de PCR-producten op een 1% (w/v) agarosegel zoals eerder beschreven. Bevestig de GFP-integratie door met F1_nodB/nodC_R een product van ongeveer 430 bp in het wildtype (WT) en een product van ongeveer 1500 bp in de gedisrupteerde mutant te detecteren, en met F1_nodB/gfp_R een product van ongeveer 1000 bp in de mutant (geen product in WT).
- Voeg passende controles toe tijdens de PCR-validatie. Gebruik plasmid-DNA dat de doelsequentie bevat als positieve controle en een template-vrije controle (NTC) met nucleasevrij water als negatieve controle.
- Kwantificering van GFP-expressie middels reverse transcriptie kwantitatieve polymerasekettingreactie (RT-qPCR)
- Isoleer totaal RNA uit WT en mutant M. ciceri culturen met behulp van TRIzol-reagens volgens de instructies van de fabrikant.
- Behandel het RNA met DNase I volgens de instructies van de fabrikant om contaminerend genomisch DNA te verwijderen. Verifieer de volledige verwijdering van DNA met een controle zonder reverse transcriptase (−RT) tijdens de qPCR.
- Synthetiseer cDNA van de eerste streng uit 1 µg totaal RNA met behulp van een commercieel verkrijgbare kit voor de synthese van cDNA-eerste streng volgens de instructies van de fabrikant. Bereid een 20 µL reactie met RNA, oligo(dT)-primers, dNTP's, reactiebuffer, RNase-inhibitor en reverse transcriptase.
- Incubeer de cDNA-synthesereactie bij 42°C gedurende 60 min, gevolgd door hitte-inactivatie bij 70°C gedurende 5 min. Bewaar cDNA bij −20°C tot gebruik.
- Bereid de RT-qPCR-reacties voor in technisch triplikaat. Stel samen 10 µL reacties die ... bevatten 5 µL 2× SYBR Green Master Mix, 0.2 µM BjGFP_BP_F1- en BjGFP_BP_R1-primers voor GFP-amplificatie, of 16S_F1- en 16S_R1-primers voor amplificatie van het referentiegen (Tabel 2), 2 µL cDNA-template (ongeveer 20 ng) en nucleasevrij water.
- Voer RT-qPCR uit met de volgende cycluscondities: initiële denaturatie bij 95°C gedurende 2 min, gevolgd door 40 cycli van 95°C gedurende 15 s en 58°C gedurende 45 s, gevolgd door smeltkrompeanalyse van 65°C naar 95°C.
- Voer qRT-PCR uit met behulp van een Bio-Rad CFX96 Real-Time PCR Detection System. Analyseer amplificatieplots, Ct waarden en smeltcurves met de Bio-Rad CFX Manager-software.
- Bereken de relatieve genexpressie met de 2^-ΔΔCt-methode−ΔΔCt methode. Normaliseer de expressie ten opzichte van het 16S rRNA-referentiegen en gebruik de WT M. ciceri stam als kalibratiemonster. Analyseer drie biologische replica's, die elk in technisch triplikaat zijn gemeten.
- Beoordeling van het nodulatiepotentieel
- Bereiding van het bacteriële inoculum
- Inoculeer enkele kolonies van WT- en mutantstammen in selectief YMB dat bevat 100 µg/mL carbenicilline. Incubeer culturen bij 28°C onder schudding bij 180 rpm gedurende 30–36 u.
- Verdun de culturen 1:100 in vers selectief YMB en volg de groei door de OD te meten600 met behulp van een UV-Vis spectrophotometer. Stel het instrument nul met niet-geïnoculeerd YMB en zet de incubatie voort tot de culturen een OD600 van 0,3–0,4 bereiken, wat overeenkomst komt met ongeveer 1 × 10⁸ kbe/ml
- Gebruik 3 mL van de gestandaardiseerde bacteriële suspensie voor de inoculatie van elke plant.
- Infectie-assay voor kikkererwtenplanten
- Verkrijg zaden van C. arietinum cultivar BDG25618,24 van het ICAR–Indian Agricultural Research Institute (IARI), New Delhi, India.
- Was de zaden grondig met stromend kraanwater, gevolgd door Milli-Q gezuiverd water. Steriliseer het oppervlak van de zaden in 1% natriumhypochloriet gedurende 5 min onder agitatie en spoel vijf keer na met steriel gezuiverd water.
- Behandel de zaden 2–3 uur lang bij kamertemperatuur met 0,1% Bavistin-fungicide (50% carbendazim benatbaar poeder). Was de behandelde zaden tweemaal met steriel gezuiverd water.
- Plaats zaden op vochtig steriel filterpapier in steriele Petrischalen (110 mm) × 40 mm), verzegelen met Parafilm en incuberen in het donker bij 28°C ± 2°C gedurende 3 dagen.
- Verplaats de gekiemde zaailingen individueel naar steriel zand. Steriliseer het zand bij 121°C en 15 psi gedurende 20 min vóór gebruik.
- Bereid stikstofvrije McKnight-voedingsoplossing door 6,0 g CaSO₄, 1,0 g MgSO4₄·7H₂O, 1,0 g KH₂PO₄, 1,5 g KCl, 14,3 mg H₃BO₃, 0,4 mg CuSO₄₄·5H₂O, 0,08 mg MnSO₄₄·4H₂O, 0,45 mg H₂MoO₄, en 1,1 mg ZnSO4₄·7H₂O in steriel gedestilleerd water tot een eindvolume van 5 L.
- Kweek zaailingen in potten met een diameter van 10 cm die gevuld zijn met steriel zand, waarbij vier planten per pot worden aangehouden. Bewater elke pot tweemaal per week met 20 mL stikstofvrije McKnight-oplossing.
- Houd planten onder gecontroleerde omstandigheden van 22°C ± 2°C (dag), 18°C ± 2°C (nacht), 55%–60% relatieve vochtigheid, een fotoperiode van 16 uur licht/8 uur donker en een lichtintensiteit van 200 µmol fotonen m⁻2 s⁻1Laat de zaailingen 6–7 dagen groeien vóór inoculatie.
- Breng 3 mL bacteriële suspensie direct aan op elke zaailing. Handhaaf mock-behandelde controles door 3 mL steriel YMB aan te brengen. Gebruik 16 biologische replica-planten per behandelingsgroep.
- Oogst de wortels en scheuten 20 dagen na inoculatie. Tel de wortelknolletjes handmatig en noteer de verse biomassa onmiddellijk na de oogst.
- Droog de weefsels bij 65°C totdat een constant gewicht is bereikt. Definieer constant gewicht als twee opeenvolgende metingen, verkregen na droogintervallen van 24 uur, die verschillen met <0,01 g, noteer vervolgens de droge biomassa.
- Druk de resultaten uit als gemiddelde ± standaardfout (SE). Voer een eenweg-ANOVA uit, gevolgd door de multiple-comparison-test van Tukey met behulp van GraphPad Prism versie 10.0, waarbij P < 0,05 statistisch significant.
OPMERKING: Handhaaf gedurende de gehele sterilisatie van de zaden, de kieming, de inoculatie en de plantengroei steriele omstandigheden.
WAARSCHUWING: Hanteer natriumhypochloriet- en fungicide oplossingen met gebruikmaking van geschikte persoonlijke beschermingsmiddelen, waaronder handschoenen en oogbescherming.
- Bereiding van het bacteriële inoculum
Resultaten
In dit protocol werd CRISPR-Cas9 genoomredigering aangepast voor M. ciceri CC1192 door het nodC-locus te targeten. Om functieverlies te bevorderen, werden sgRNA's ontworpen om de 5′-proximale regio van de coderende sequentie van nodC te targeten, waardoor een DSB in het begin van de coderende regio werd geïntroduceerd om de translatie van het gecodeerde eiwit te verstoren (Figuur 1A).
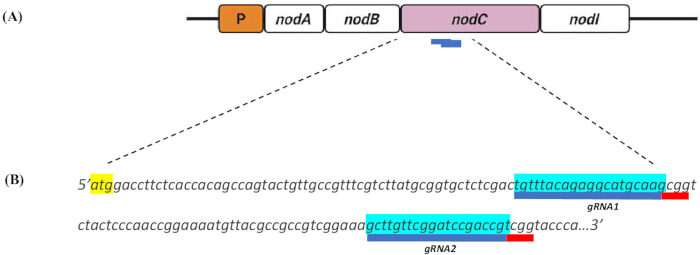
Figuur 1Ontwerp van single-guide RNA's (sgRNA's) gericht tegen de nodC locus in Mesorhizobium ciceri. (A) Schematische weergave van de M. ciceri nodC locus die de posities van de twee 20-bp sgRNA's laat zien die zijn ontworpen voor CRISPR-Cas9-gemedieerde targeting. De targetsites van de sgRNA's zijn in het blauw weergegeven. (B) Nucleotidesequenties van sgRNA1 en sgRNA2 gericht tegen de nodC locus. Het protospacer adjacent motif (PAM; 5′-NGG-3′) is in rood aangegeven, en de nodC het startcodon voor translatie (ATG) is geel gemarkeerd. Klik hier om een grotere versie van deze figuur te bekijken.
Twee doelsequenties van 20 bp werden geïdentificeerd direct stroomopwaarts van een 5′-NGG-3′ PAM-sequentie (Figuur 1B). In silico analyse van deze kandidaat-sgRNA's met behulp van het algoritme van Hsu et al.19 leverde specificiteitsscores van 100 op, wat wijst op een hoge voorspelde target-specificiteit waarbij geen significante off-target complementariteit werd gedetecteerd binnen het genoom van M. ciceri. Kleine verschillen werden waargenomen in de voorspelde on-target efficiëntiescores van de geselecteerde sgRNA's (Tabel 3), wat de selectie van de gidsen voor verdere experimentele evaluatie heeft bepaald.
| Doelpositie (bp) | Streng | sgRNA-sequentie (5'′ 3′) | PAM | Specificiteitsscore | Efficiëntiescore | |
| 77 | + | TGTTTACAGAGGCATGCAAG | CGG | 100 | 43.58 | |
| 139 | + | GCTTGTTCGGATCCGACCGT | TGG | 99.7 | 47.63 | |
Tabel 3: Kandidaat single-guide RNA's (sgRNA's) ontworpen voor CRISPR-Cas9-gemedieerde editing van het nodC-gen in Mesorhizobium ciceri. Kandidaat sgRNA's werden ontworpen met de Benchling CRISPR Guide Design Tool, waarbij Bradyrhizobium diazoefficiens USDA 110 als referentiegenoom diende. De guides werden gerangschikt op basis van de voorspelde specificiteit en on-target efficiëntiescores; gidsen die gericht waren op sequenties nabij het translationele startcodon van nodC en die het vereiste NGG protospacer adjacent motif (PAM) voor Streptococcus pyogenes Cas9 (SpCas9) bevatten, werden geselecteerd.
Om HDR en fluorescentie-gebaseerde screening van vermoedelijke mutanten te faciliteren, werd een HDR-cassette geassembleerd met behulp van de pUC18-kloonvector (Figuur 2). De gfp-reportercassette werd uit pRJPaph-bjGFP gesneden door restrictiedigestie met SacI en KpnI en geligeerd in de gelineariseerde pUC18-backbone (Figuur 2A). Na transformatie in E. coli werden vermoedelijke positieve klonen geïdentificeerd via blue-white screening. De integratie van het gfp-insert in de pUC18-backbone werd verder gevalideerd door PCR-amplificatie met gen-specifieke primers, wat in positieve klonen het verwachte amplicon van 500 bp opleverde (Figuur 2A).
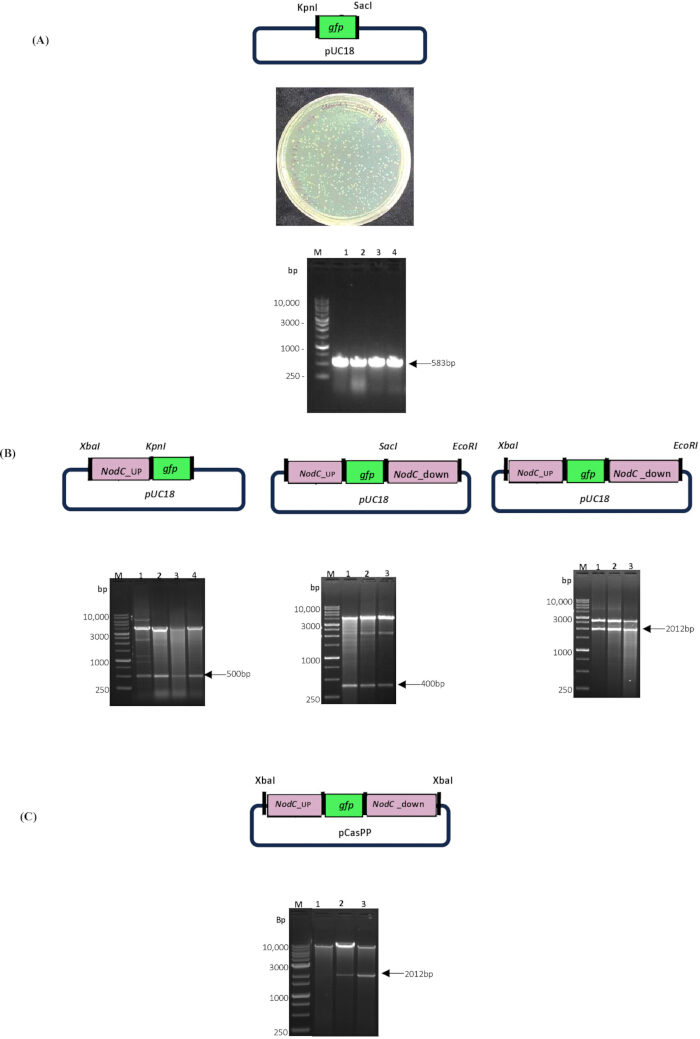
Figuur 2. Constructie van het CRISPR-Cas9 homology-directed repair (HDR)-systeem voor disruptie van nodC. (A) Constructie en validatie van het pUC18-gfp intermediair plasmide. Het bovenste paneel toont de plasmidekaart van pUC18-gfp, gegenereerd door insertie van de green fluorescent protein (gfp)-cassette in de pUC18 backbone. Het middelste paneel toont representatieve kolonies na blauw-wit screening. Het onderste paneel toont colony polymerase chain reaction (PCR) validatie met gebruik van het primerpaar BjGFP_BP_F1 en BjGFP_BP_R2. (B) Sequentiële assemblage van het HDR-template in de pUC18 backbone. Plasmidekaarten en restrictiedigestie-analyses bevestigen de insertie van de upstream homology arm (UHA), de downstream homology arm (DHA) en de volledige UHA-gfp-DHA HDR-cassette. (C) Klonering en validatie van de UHA-gfp-DHA HDR-cassette in de pCasPP CRISPR-Cas9 vector. Het bovenste paneel toont de uiteindelijke pCasPP-HDR plasmidekaart, en het onderste paneel toont de restrictiedigestie die de insertie van de HDR-cassette bevestigt. Klik hier om een grotere versie van deze figuur te bekijken.
Het HDR-construct werd vervolgens geassembleerd door nodC-homologiearmen rond de gfp-cassette te introduceren. Een 500 bp UHA en een 400 bp DHA, gepositioneerd naast de voorspelde Cas9-splitsingsplaats, werden sequentieel in het pUC18-gfp-construct gekloond via restrictiedigestie en ligatie (Figuur 2B). De assemblage van de UHA-gfp-DHA-cassette werd bevestigd door restrictiedigestie-analyse, wat het verwachte fragment van 2012 bp opleverde (Figuur 2B). De complete HDR-cassette werd vervolgens gesubkloneerd in de CRISPR-vector pCasPP met een breed gastheerbereik (Figuur 2C). Restrictiedigestie-analyse bevestigde de integriteit van het uiteindelijke construct en de succesvolle assemblage van de delivery-vector voor genoomredactie van M. ciceri (Figuur 2C).
Biparentale paring werd uitgevoerd tussen de donor E. coli S17-1λpir en de recipient M. ciceri stam om het pCasPP-gRNA-HDR construct in M. ciceri over te brengen (Figuur 3A). Figuur 3B illustreert de organisatie van het nod operon en de voorspelde vervanging van de nodC locus door de gfp cassette via homologe recombinatie met behulp van het HDR-sjabloon. Transconjugantkolonies werden aanvankelijk geïdentificeerd door GFP-fluorescentiescreening na de biparentale paring (Figuur 3B en 3C). Meer dan 80% van de teruggewonnen kolonies vertoonde GFP-fluorescentie met gRNA2, en meer dan 65% van de kolonies vertoonde fluorescentie na introductie van gRNA1 (Figuur 3C). Omdat fluorescentiescreening alleen geen onderscheid kan maken tussen GFP-expressie via het plasmide en succesvolle genomische integratie, werd naderhand moleculaire validatie uitgevoerd om de locus-specifieke insertie van de reportercassette te bevestigen.
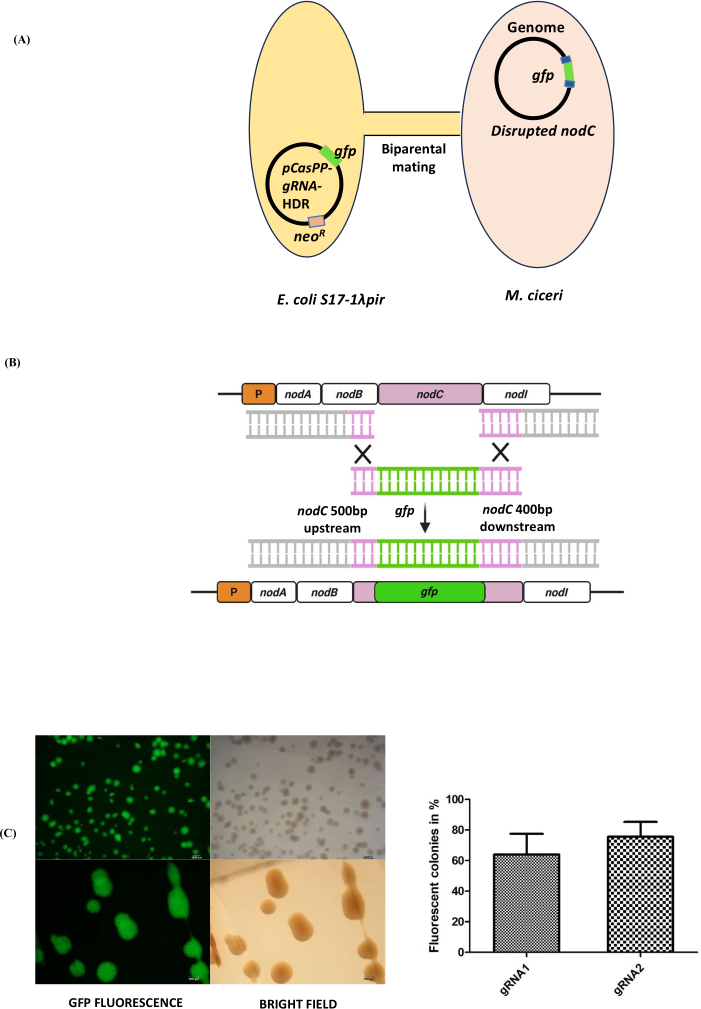
Figuur 3. CRISPR-Cas9-gemedieerde disruptie van de nodC-locus in Mesorhizobium ciceri. (A) Schematische weergave van de biparentale paring die werd gebruikt om het pCasPP-gRNA-HDR-construct over te dragen van Escherichia coli S17-1λpir donorcellen naar M. ciceri recipientcellen. (B) Diagram dat de homologie-gestuurde reparatie (HDR)-gemedieerde vervanging van de nodC-locus door de gfp-cassette illustreert na CRISPR-Cas9-splitsing. De HDR-template bevat homologiearmen van ongeveer 500 bp stroomopwaarts en 400 bp stroomafwaarts die de gfp-cassette flankeren. (C) Fluorescentiegebaseerde screening van transconjugante M. ciceri-kolonies. Representatieve fluorescentie- en bright-field stereomicroscopiebeelden van GFP-positieve kolonies worden getoond, samen met het percentage fluorescerende transconjuganten dat is teruggewonnen na biparentale paring met gebruik van constructen die sgRNA1 of sgRNA2 bevatten. Foutbalken stellen de standaarddeviatie voor. Klik hier om een grotere versie van deze figuur te bekijken.
Om de integratie van de gfp-cassette op de nodC-locus te valideren, werden representatieve GFP-positieve kolonies onderworpen aan PCR-analyse. Amplificatie van de genomische regio die nodB en nodC omvat, produceerde een fragment van 1511 bp in de bewerkte klonen, wat consistent is met de integratie van de reportercassette, terwijl de wildtype (WT)-stam een amplicon van 430 bp produceerde (Figuur 4A). PCR-amplificatie met gfp-specifieke en nodC-flankerende primers genereerde een duidelijk fragment van 997 bp in de bewerkte klonen, terwijl er geen amplificatie werd gedetecteerd in de WT-controle, wat de locus-specifieke insertie ondersteunt. De oriëntatie van de reportercassette werd bevestigd middels Sanger-sequencing. Daarnaast werd de GFP-expressie in de bewerkte stammen geëvalueerd met RT-qPCR, waaruit een verhoogde accumulatie van GFP-transcripten bleek ten opzichte van de WT-stam (Figuur 4B). Expressiewaarden werden berekend met de 2−ΔΔCt-methode en genormaliseerd ten opzichte van het referentiegen 16s, waarbij de WT-stam als controle diende. De gegevens representeren het gemiddelde ± SD van drie biologische replica's (n = 3). Statistische significantie werd bepaald via een eenweg-ANOVA, gevolgd door de toets van Dunnett ten opzichte van de WT-controle.
De huidige beperking van de studie is de afwezigheid van een controlevector, zoals een lege-gRNA pCasPP-HDR, om de basislijn van de recombinatiecoëfficiënt vast te stellen. Toekomstige studies zouden een dergelijke controle moeten bevatten.
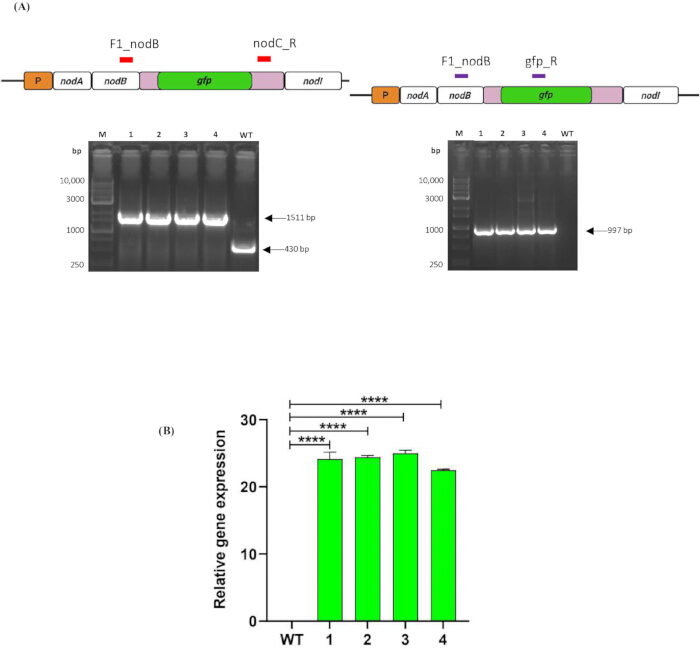
Figuur 4. Moleculaire validatie van ΔnodC Mesorhizobium ciceri mutanten. (A) PCR-bevestiging van de nodC disruptie. Het linkerpaneel toont amplificatie met het primerpaar F1_nodB en nodC_R. Baan M, DNA-ladder; banen 1–4, ΔnodC M. ciceri mutanten; baan WT, wild-type M. ciceri. Het rechterpaneel toont amplificatie met het primerpaar F1_nodB en gfp_R. Baan M, DNA-ladder; banen 1–4, ΔnodC M. ciceri mutanten; baan WT, wild-type M. ciceri. De verwachte amplicongroottes zijn aangegeven. (B) Relatieve expressie van het groene fluorescerende eiwit (GFP) in ΔnodC M. ciceri mutanten, bepaald via reverse transcription kwantitatieve polymerasekettingreactie (RT-qPCR). Gene-expressie werd genormaliseerd naar het M. ciceri 16S ribosomaal RNA (16S rRNA) referentiegen en uitgedrukt relatief aan de wild-type (WT) controle met de 2^−ΔΔCt methode. Foutenbalken vertegenwoordigen de standaarddeviatie. Statistische significantie werd bepaald ten opzichte van de WT controle. Klik hier om een grotere versie van deze figuur te bekijken.
De biologische impact van de disruptie van nodC werd geëvalueerd met behulp van infectie-assays met kikkererwten. Planten geïnoculeerd met WT M. ciceri vormden zichtbare wortelknolletjes, terwijl planten geïnoculeerd met ΔnodC M. ciceri een duidelijke vermindering of afwezigheid van knolvorming vertoonden (Figuur 5A). De niet-geïnoculeerde controleplanten bleven vrij van knolletjes, wat bevestigt dat de steriele experimentele condities zijn gehandhaafd (Figuur 5A). Kwantitatieve analyse van plantgroeiparameters toonde verdere verschillen aan tussen planten geïnoculeerd met WT en ΔnodC M. ciceri, waaronder wortellengte, vers wortelgewicht, droog wortelgewicht, scheutlengte, vers scheutgewicht, droog scheutgewicht en het aantal knolletjes (Figuur 5B). WT-geïnoculeerde planten vertoonden hogere aantallen knolletjes en verbeterde groeigerelateerde parameters in vergelijking met ΔnodC M. ciceri-geïnoculeerde en niet-geïnoculeerde controleplanten. Deze bevindingen zijn consistent met de disruptie van de nodC-geassocieerde knolvormingsfunctie en ondersteunen de toepasbaarheid van deze CRISPR-Cas9-gebaseerde workflow voor functionele genomica-studies in M. ciceri. Kwantitatieve gegevens over het plantfenotype werden geëvalueerd om verschillen tussen de behandelingsgroepen te vergelijken. In totaal werden 90 biologische replica's in de analyse opgenomen (n = 30 planten per behandelingsgroep). Gegevens worden weergegeven als gemiddelde ± SD. Statistische significantie werd beoordeeld met behulp van een één-weg variantieanalyse (ANOVA), gevolgd door de post-hoc meervoudige vergelijkingstest van Tukey. Verschillen werden als statistisch significant beschouwd bij P < 0,05.
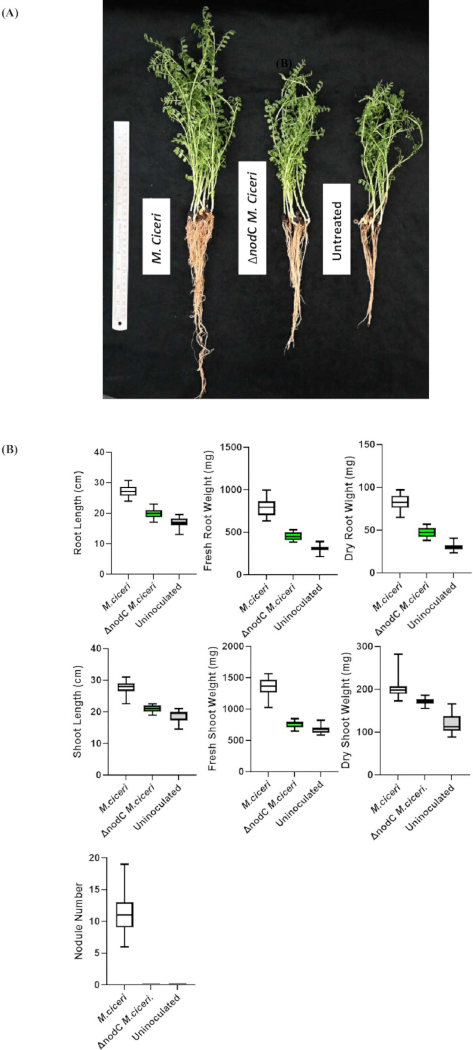
Figuur 5. Functionele validatie van ΔnodC Mesorhizobium ciceri-mutanten met behulp van een infectieassay bij kikkererwten. (A) Representatieve kikkererwtenplanten (Cicer arietinum) 20 dagen na inoculatie met wild-type M. ciceri, ΔnodC M. ciceri of niet-geïnoculeerde controles. (B) Kwantitatieve analyse van plantengroei- en nodulatieparameters, waaronder wortellengte, nat wortelgewicht, droog wortelgewicht, scheutlengte, nat scheutgewicht, droog scheutgewicht en aantal wortelknolletjes. De gegevens worden gepresenteerd voor planten geïnoculeerd met wild-type M. ciceri, ΔnodC M. ciceri of niet-geïnoculeerde controles. De foutbalken vertegenwoordigen de standaarddeviatie. Statistische significantie werd bepaald via eenrichtingsvariantieanalyse (ANOVA) gevolgd door de Tukey-toets voor meervoudige vergelijkingen. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullend bestand 1. Gedetailleerd protocol voor de preparatie en validatie van chemisch competente Escherichia coli cellen.Dit aanvullende bestand bevat de volledige procedure voor het prepareren en valideren van chemisch competente Escherichia coli DH5α en E. coli S17-1λpir cellen, inclusief de preparatie van bacteriële culturen, inductie van competentie, oogsten van cellen, wassen met CaCl₂–glycerolbuffer, aliquoteren, cryopreservatie en validatie via transformatie-efficiëntietests. Kritieke kwaliteitscontrolemaatregelen, bewaaradviezen en acceptatiecriteria voor competentie zijn evenneens opgenomen. Klik hier om dit bestand te downloaden.
Aanvullend bestand 2. Gedetailleerd protocol voor de constructie van homology-directed repair (HDR)-templates en de assemblage van CRISPR-Cas9 genoombewerkingsvectoren.Dit aanvullende bestand bevat gedetailleerde procedures voor de excisie van de green fluorescent protein (GFP)-cassette, de constructie van het pUC18-gfp tussenplasmid, de amplificatie en klonering van stroomopwaartse en stroomafwaartse homologiearmen, de assemblage van het volledige homology-directed repair (HDR)-template, de preparatie van pCasPP-guide RNA (gRNA)-vectoren, de insertie van HDR-templates in CRISPR-Cas9-plasmiden, fluorescentiegebaseerde kloonscreening en de validatie van recombinante plasmiden via restrictieanalyse en Sanger-sequenering. Klik hier om dit bestand te downloaden.
Aanvullend bestand 3. Gedetailleerd protocol voor biparentale paring en generatie van GFP-gelabelde Mesorhizobium ciceri-transconjuganten.Dit aanvullende bestand beschrijft de voorbereiding van donor- en recipientstammen, biparentale paring via membraanfiltratie, herstel en antibiotische selectie van transconjuganten, procedures voor plasmid-curing, fluorescentiegebaseerde screening van recombinante kolonies, moleculaire bevestiging van genoom-bewerkte stammen, en korte- en langetermijnbewaring van bevestigde GFP-positieve M. ciceri-transconjuganten. Gedetailleerde kweekcondities, paringparameters en selectieprocedures worden verstrekt. Klik hier om dit bestand te downloaden.
Discussie
De vestiging van een CRISPR-Cas9 genoombewerkingssysteem in M. ciceri pakt een belangrijke technische beperking aan bij de genetische manipulatie van deze landbouwkundig belangrijke stikstofbindende symbiont. Door het nodC-locus te verstoren met behulp van een gfp-reporter en HDR, biedt deze workflow een fluorescentie-ondersteund kader voor gerichte genomische modificatie in M. ciceri.
Traditionele benaderingen voor genetische manipulatie bij rhizobia waren primair gebaseerd op Tn5-gebaseerde willekeurige mutagenese of sacB-gemedieerde allelische uitwisseling19,26,27. Hoewel deze methoden waardevol blijven, zijn ze arbeidsintensief, vereisen ze vaak meerdere ronden van counter-selectie en kunnen ze antibioticaresistentiemarkers in het genoom achterlaten die daaropvolgende bewerkingsronden bemoeilijken. In tegenstelling hiermee biedt CRISPR-Cas9-gemedieerde genoommodificatie een gerichter en gestroomlijnder alternatief voor genomische engineering. Recente studies hebben CRISPR-gemedieerde base-editing en Cas12e-gebaseerde systemen in S. meliloti gerapporteerd om Cas9-geassocieerde toxiciteit te verminderen12,13, terwijl dCas9-gemedieerde transcriptionele repressie is onderzocht in R. etli11. Voor zover ons bekend vertegenwoordigt deze studie een van de eerste toepassingen van CRISPR-Cas9-gemedieerde chromosomale disruptie in M. ciceri. Het protocol omvat sgRNA-gestuurde targeting, biparentale plasmid-delivery en HDR-gemedieerde recombinatie voor locus-specifieke bewerking. Integratie van de gfp-reporter binnen de HDR-cassette vergemakkelijkt bovendien snelle fluorescentie-gebaseerde screening van vermoedelijk bewerkte kolonies, waardoor het aantal kolonies dat downstream moleculaire validatie vereist, wordt verminderd.
Verschillende factoren waren belangrijk voor de succesvolle implementatie van de workflow. De selectie van sgRNA's met een hoge voorspelde specificiteit minimaliseerde potentiële off-target effecten binnen het M. ciceri genoom, terwijl het behoud van de integriteit van de homologiearmen de HDR-gemedieerde recombinatie-efficiëntie ondersteunde. Daarnaast verbeterde het optimaliseren van de groeicondities voor donor en recipiënt tijdens de biparentale paring het herstel van transconjuganten. Screening op basis van fluorescentie maakte een snelle identificatie van vermeende mutanten mogelijk; moleculaire validatie middels PCR en Sanger-sequencing was echter nog steeds noodzakelijk om de locus-specifieke integratie van de reportercassette te bevestigen. Toekomstige studies zouden een lege-gRNA pCasPP-HDR vectorcontrole kunnen gebruiken om de basisrecombinatiecoëfficiënt te kwantificeren.
Naast methodologische vooruitgang kan dit platform toekomstige studies ondersteunen die symbiotische signalering en functionele genomica in rhizobia geassocieerd met kikkererwten onderzoeken28. De kikkererwt (Cicer arietinum L.) is een wereldwijd belangrijk peulvruchtengewas en een belangrijke bijdrage aan duurzame landbouwsystemen29,30. De in deze studie gegenereerde ΔnodC M. ciceri-stam biedt een potentieel nuttige genetische achtergrond voor het onderzoeken van gastheer-microbe-compatibiliteit en signaleringspaden geassocieerd met nodulatie. Eerdere studies hebben gesuggereerd dat sRNA's functioneren als regulatoire effectoren tijdens de vroege wortelknollesymbiose31. Bijgevolg kan de hier beschreven nodulatie-deficiënte ΔnodC M. ciceri-stam toekomstige studies faciliteren die gericht zijn op de moleculaire mechanismen die ten grondslag liggen aan rhizosfeercommunicatie en stikstoffixerende symbiose.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende financiële belangen of belangenverstrengelingen zijn.
Dankbetuigingen
Dit werk wordt ondersteund door de Department of Biotechnology (DBT)-MK Bhan Grant HRD-16016/15/2023-AFS-DBT voor dr. Nandita Pasari. Dit werk wordt daarnaast ondersteund door een Core Grant verstrekt aan dr. Senjuti Sinharoy door het National Institute of Plant Genome Research, New Delhi, India.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Agarose | Genetix | PG-40005 | Gelelektroforese |
| Aluminiumfolie | Rolia’s | GF83048115 | Algemeen laboratoriumgebruik |
| Bacteriologische agar | HiMedia | GRM026 | Mediumbereiding |
| Benchling CRISPR Guide Design Platform | Benchling | N/A | Guide RNA-ontwerp |
| Boorzuur | HiMedia | PCT0102 | Bereiding van McKnight’s oplossing |
| Conische kolf van borosilicaatglas | Sigma | CLS5100500 | Cultuurvoorbereiding |
| Buizen van borosilicaatglas | Sigma | DWK73500-1075 | Cultuurvoorbereiding |
| Calciumchloride-dihydraat | HiMedia | MB034 | Bereiding van competente cellen |
| Calciumsulfaat-dihydraat | HiMedia | GRM328 | Bereiding van McKnight’s oplossing |
| Carbenicilline-dinatrium | Duchefa Biochemie | DUC-C0109.005-18 | Gebruikt bij 100 µg/mL |
| cDNA-synthesekit | Thermo Fisher Scientific | AB1543A | cDNA-synthese |
| Vershoudfolie | OA | 10954049 | Algemeen laboratoriumgebruik |
| Kloneringskit/T4 DNA-ligase | Thermo Fisher Scientific | K1422 | Ligatiereacties |
| Congorood | HiMedia | 573-58-0 | Werk met microbiële culturen |
| Kopersulfaat-pentahydraat | HiMedia | PCT0104 | Bereiding van McKnight’s oplossing |
| Kweekbuis | Borosil | 9800U08 | Kweek van primaire bacteriële cultuur; 15 cm × 2,5 cm |
| Digitale pH-meter | Eutech Instruments | EC PH TUTOR DS | pH-aanpassing |
| Dikaliumfosfaat | HiMedia | TC596M | YMB-bereiding |
| DNA-ladder | BIO-HELIX | DM015-R500 | Gelelektroforese |
| DNase-verwijderingskit | Invitrogen | AM1907 | Verwijderen van DNA uit geïsoleerd RNA |
| dNTP-mix | Thermo Scientific | R0181 | PCR-amplificatie |
| Ethanol | Sigma-Aldrich | 1.00983.0511 | Gebruikt bij 75% |
| Ethidiumbromide | Sigma-Aldrich | E1510 | DNA-gelkleuring |
| FastAP thermosensitieve alkalische fosfatase | Thermo Fisher Scientific | EF0651 | Defosforylering van vector tijdens klonering |
| FastDigest-buffer | Thermo Fisher Scientific | B64 | Restrictiedigesties |
| Watervrij ijzer(III)chloride | HiMedia | TC583 | Bereiding van McKnight’s oplossing |
| Fluorescentie-stereomicroscoop | Nikon | SMZ25 | GFP-screening |
| Fungicide, Bavistin | Crystal Crop Protection | Bavistin Carbendazim 50% WP | Zaadbehandeling |
| Gel-extractiekit | QIAGEN | 28704 | DNA-zuivering |
| Glycerol | Thermo Fisher Scientific | Q24505 | Competente cellen/glycerolstocks |
| Groei-incubator met orbitale schudker | MRC | LOM-150 | Bacteriële cultuur |
| Handhandschoenen | Kimtech | 97612 | Persoonlijke beschermingsmiddelen |
| HEPES | HiMedia | MB016 | Annealing van oligonucleotiden |
| IPTG | G Biosciences | RC1113D | Blauw-wit screening |
| Lamineaire flowkast | Biolink | BL-H1300 | Steriele behandeling |
| LB-agar | HiMedia | M1151 | Bacteriële cultuurplaten |
| LB-bouillon | HiMedia | G1245 | Bacteriële cultuur |
| Magnesiumsulfaat | HiMedia | GRM1281-500G | YMB-bereiding |
| Magnesiumsulfaat-heptahydraat | HiMedia | PCT0008 | Bereiding van McKnight’s oplossing |
| Mangaan(II)sulfaat-tetrahydraat | Sigma-Aldrich | M3634 | Bereiding van McKnight’s oplossing |
| Mannitol | HiMedia | MB198 | YMB-bereiding |
| McKnight’s oplossing | In laboratorium bereid | N/A | Plantenvoedingsoplossing |
| Microtips, 0,2–10 µL | Tarsons | 521000 | Vloeistofbehandeling |
| Microtips, 2–200 µL | Tarsons | 521010 | Vloeistofbehandeling |
| Microtips, 200–1000 µL | Tarsons | 521020X | Vloeistofbehandeling |
| Microcentrifugebuis, 0,5 mL | Tarsons | 500000 | Monsterbehandeling |
| Microcentrifugebuis, 1,5 mL | Tarsons | 500010 | Monsterbehandeling |
| Microcentrifugebuis, 2,0 mL | Tarsons | 500020 | Monsterbehandeling |
| Molybdeenzuur | Sigma-Aldrich | 232084 | Bereiding van McKnight’s oplossing |
| NanoDrop-spectrofotometer | Thermo Fisher Scientific | 13-400-519 | DNA/RNA-kwantificering |
| Neomycine | Duchefa Biochemie | M0135 | Gebruikt bij 50 µg/mL |
| Nuclease-vrij water | HiMedia | ML064-100ML | Gebruik in moleculaire biologie |
| PCR-mastermix | Thermo Fisher Scientific | K0171 | 2× mastermix |
| PCR-buisstrips, 0,2 mL | Tarsons | 610040 | PCR-opstelling |
| Petrischalen, 90 mm | PSC | 2041 | Agarplaten |
| Pipet, 0,1–2,5 µL | Eppendorf | N10178M | Vloeistofbehandeling |
| Pipet, 0,5–10 µL | Eppendorf | H40069L | Vloeistofbehandeling |
| Pipet, 2–20 µL | Eppendorf | H30046M | Vloeistofbehandeling |
| Pipet, 10–100 µL | Eppendorf | I00395M | Vloeistofbehandeling |
| Pipet, 20–200 µL | Eppendorf | M38186M | Vloeistofbehandeling |
| Pipet, 100–1000 µL | Eppendorf | N20610M | Vloeistofbehandeling |
| Plasmid-DNA-extractiekit | QIAGEN | 12143 | Plasmidisolatie |
| Kaliumchloride | HiMedia | TC010 | Bereiding van McKnight’s oplossing |
| Watervrij kaliumdihydrogenfosfaat | HiMedia | TC011M | Bereiding van McKnight’s oplossing |
| PVDF-membraanfilter, 0,22 µm, 47 mm | MilliporeSigma | GVWP04700 | Biparentale paring |
| Kwantitatieve real-time PCR-apparaat | Bio-Rad | CFX96 | RT-qPCR |
| Gekoelde tafelcentrifuge | Eppendorf | 04-987-373 | Oogsten van cellen |
| Restrictie-enzym, BbsI | Thermo Fisher Scientific | ER1011 | gRNA-klonering |
| Restrictie-enzym, EcoRI | Thermo Fisher Scientific | FD0274 | Klonering |
| Restrictie-enzym, KpnI | Thermo Fisher Scientific | FD0524 | Klonering |
| Restrictie-enzym, SacI | Thermo Fisher Scientific | FD1133 | Klonering |
| Restrictie-enzym, XbaI | Thermo Fisher Scientific | FD0684 | Klonering |
| RNase-vrije DNase | QIAGEN | 79254 | RNA-reiniging |
| Zand | Ram Surat | Sand | Substraat voor plantengroei |
| Sequencer | Applied Biosystems | ABI3730xl DNA Analyzer | Sanger-sequencing |
| SOC-medium | In laboratorium bereid | N/A | Herstel na transformatie |
| Natriumchloride | HiMedia | TC046 | Mediumbereiding |
| Natriumhydroxide | HiMedia | PCT1325 | pH-aanpassing van HEPES |
| Steriel scalpelblad | Medicare Surgical | 16020 | Gel-excisie/weefselbehandeling |
| Steriele spuit | HMD Dispovan | 10ml syringe without needle | Steriele filtratie |
| Steriel spuitfilter, 0,22 µm | Merck Millex Durapore | 12766842 | Filtersterilisatie |
| SYBR Green mastermix | New England Biolabs | M3003E | RT-qPCR |
| Tetracycline | Duchefa Biochemie | T01050 | Gebruikt bij 5 µg/mL |
| Thermal cycler | Applied Biosystems | A24811 | PCR-amplificatie |
| Papierrol | Rolia’s | 07AAECR4885K1ZT | Algemeen laboratoriumgebruik |
| TRIzol-reagens | Invitrogen | 15596026 | RNA-isolatie |
| UV-transilluminator | Analytik Jena | TW-43 | Gelvisualisatie |
| UV-Vis spectrofotometer | Eppendorf | D30 | OD600-meting |
| Vis cuvetten | Eppendorf | 30079345 | OD600-meting |
| Vortex-menger | Neuation | iSWIX-VT | Monster menging |
| X-gal | G Biosciences | RC1233 | Blauw-wit screening |
| Gistextract | HiMedia | RM668-500G | Mediumbereiding |
| Zinksulfaat-heptahydraat | Sigma-Aldrich | Z0251 | Bereiding van McKnight’s oplossing |
Referenties
- Doudna JA, Charpentier E. The new frontier of genome engineering with CRISPR-Cas9. Science. 2014;346(6213):1258096.
- Jiang W, Bikard D, Cox D, Zhang F, Marraffini LA. RNA-guided editing of bacterial genomes using CRISPR-Cas systems. Nature biotechnology. 2013;31(3):233-9.
- Bertrand C, Thibessard A, Bruand C, Lecointe F, Leblond P. Bacterial NHEJ: a never ending story. Molecular microbiology. 2019;111(5):1139-51.
- Loureiro A, da Silva GJ. Crispr-cas: Converting a bacterial defence mechanism into a state-of-the-art genetic manipulation tool. Antibiotics. 2019;8(1):18.
- Altenbuchner J. Editing of the Bacillus subtilis genome by the CRISPR-Cas9 system. Applied and environmental microbiology. 2016;82(17):5421-7.
- Wang Y, et al. Bacterial genome editing with CRISPR-Cas9: deletion, integration, single nucleotide modification, and desirable “clean” mutant selection in Clostridium beijerinckii as an example. ACS synthetic biology. 2016;5(7):721-32.
- Oh J-H, van Pijkeren J-P. CRISPR–Cas9-assisted recombineering in Lactobacillus reuteri. Nucleic acids research. 2014;42(17):e131-e.
- Cobb RE, Wang Y, Zhao H. High-efficiency multiplex genome editing of Streptomyces species using an engineered CRISPR/Cas system. ACS synthetic biology. 2015;4(6):723-8.
- Wanjofu EI, et al. Nodulation and growth promotion of chickpea by Mesorhizobium isolates from diverse sources. Microorganisms. 2022;10(12):2467.
- Haskett T, et al. Complete genome sequence of Mesorhizobium ciceri strain CC1192, an efficient nitrogen-fixing microsymbiont of Cicer arietinum. Genome Announcements. 2016;4(3):10.1128/genomea. 00516-16.
- Bellahsen O, Díaz-Méndez R, Romero D. Genomic engineering in Rhizobium etli: implementation and evaluation of systems based on dCas9. Frontiers in Microbiology. 2025;16:1604430.
- Liu G, et al. An efficient CRISPR/Cas12e system for genome editing in Sinorhizobium meliloti. ACS Synthetic Biology. 2023;12(3):898-903.
- Wang L, Xiao Y, Wei X, Pan J, Duanmu D. Highly efficient CRISPR-mediated base editing in Sinorhizobium meliloti. Frontiers in Microbiology. 2021;12:686008.
- Schäfer A, et al. Small mobilizable multi-purpose cloning vectors derived from the Escherichia coli plasmids pK18 and pK19: selection of defined deletions in the chromosome of Corynebacterium glutamicum. Gene. 1994;145(1):69-73.
- Rütering M, et al. Tailor-made exopolysaccharides—CRISPR-Cas9 mediated genome editing in Paenibacillus polymyxa. Synthetic Biology. 2017;2(1):ysx007.
- Ledermann R, Bartsch I, Remus-Emsermann MN, Vorholt JA, Fischer H-M. Stable fluorescent and enzymatic tagging of Bradyrhizobium diazoefficiens to analyze host-plant infection and colonization. Molecular Plant-Microbe Interactions. 2015;28(9):959-67.
- Göttfert M. Regulation and function of rhizobial nodulation genes. FEMS microbiology reviews. 1993;10(1-2):39-63.
- Kant C, Pradhan S, Bhatia S. Dissecting the root nodule transcriptome of chickpea (Cicer arietinum L.). PLoS One. 2016;11(6):e0157908.
- Hsu PD, et al. DNA targeting specificity of RNA-guided Cas9 nucleases. Nature biotechnology. 2013;31(9):827-32.
- Doench JG, et al. Optimized sgRNA design to maximize activity and minimize off-target effects of CRISPR-Cas9. Nature biotechnology. 2016;34(2):184-91.
- Norrander J, Kempe T, Messing J. Construction of improved M13 vectors using oligodeoxynucleotide-directed mutagenesis. Gene. 1983;26(1):101-6.
- Simon R, Priefer U, Pühler A. A broad host range mobilization system for in vivo genetic engineering: transposon mutagenesis in gram negative bacteria. Bio/technology. 1983;1(9):784-91.
- Hanahan D, Jessee J, Bloom FR. [4] Plasmid transformation of Escherichia coli and other bacteria. Methods in enzymology. 1991;204:63-113.
- Alexandre A, et al. Natural populations of chickpea rhizobia evaluated by antibiotic resistance profiles and molecular methods. Microbial Ecology. 2006:128-36.
- Weerakkody LR, et al. A rapid, inexpensive and effective method for the efficient isolation of genomic DNA from Gram-negative bacteria. Molecular Genetics and Genomics. 2024;299(1):26.
- Selbitschka W, Niemann S, Pühler A. Construction of gene replacement vectors for Gram− bacteria using a genetically modified sacRB gene as a positve selection marker. Applied microbiology and biotechnology. 1993;38(5):615-8.
- Yadav A, Singh RP, Singh AL, Singh M. Identification of genes involved in phosphate solubilization and drought stress tolerance in chickpea symbiont Mesorhizobium ciceri Ca181. Archives of microbiology. 2021;203(3):1167-74.
- Dicenzo GC, et al. Multidisciplinary approaches for studying rhizobium–legume symbioses. Canadian Journal of Microbiology. 2019;65(1):1-33.
- Calia C, et al. A bibliometric analysis of chickpea agronomic practices in the world during 45 years of scientific research. Legume Science. 2024;6(1):e219.
- Sandhu J, Tripathi S, Chaturvedi S. Chickpea nutritional status and value chain for sustainable development. Sustainable food value chain development: Perspectives from developing and emerging economies: Springer; 2023. p. 175-83.
- Ren B, Wang X, Duan J, Ma J. Rhizobial tRNA-derived small RNAs are signal molecules regulating plant nodulation. Science. 2019;365(6456):919-22.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar