Dit artikel presenteert een geoptimaliseerd protocol voor reverse transfectie voor de efficiënte aflevering van nucleoside-gemodificeerd menselijk telomerase reverse transcriptase (hTERT) mRNA (hTERT mRNA) in senescente menselijke fibroblasten. Het vooraf coaten van kweekoppervlakken met hTERT mRNA-lipidcomplexen verbetert de opname, wat telomerase-activatie, telomeerverlenging en gedeeltelijke verjonging mogelijk maakt. Culturen keren uiteindelijk terug naar senescentie of crisis zonder immortalisatie.
Methodenartikel
Geoptimaliseerd protocol voor reverse transfectie voor de aflevering van telomerase-mRNA aan vroeg-senescente menselijke fibroblasten
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Cellulaire senescentie is geassocieerd met ingrijpende veranderingen in de cellulaire fysiologie, waaronder een verminderde membraanvloeibaarheid, een verstoord endosomaal transport, een verminderde endocytische capaciteit en een verhoogde extracellulaire RNase-activiteit, die gezamenlijk een efficiënte mRNA-aflevering belemmeren. Deze barrières hebben de toepassing van RNA-gebaseerde benaderingen in senescente cellen beperkt, in het bijzonder voor de aflevering van grote therapeutische transcripten. Dit protocol beschrijft een geoptimaliseerde reverse-transfectiemethode voor de efficiënte aflevering van gemodificeerd messenger-RNA (mRNA) in senescente menselijke fibroblasten. Hoewel menselijk telomerase reverse transcriptase (hTERT) mRNA als modeltranscript werd gebruikt, is de workflow breed toepasbaar op andere mRNA's. In tegenstelling tot conventionele transfectiemethoden, waarbij RNA-lipidencomplexen aan het cultuurmedium worden toegevoegd na aanhechting van de cellen, brengt reverse-transfectie de complexen aan op het cultivoppervlak vóór het uitzaaien van de cellen, waardoor directe interactie tussen hechtende cellen en transfectiecomplexen mogelijk wordt. Om de transfectie-efficiëntie te maximaliseren, bevat het protocol nucleoside-gemodificeerd mRNA met pseudouridine en 5-methylcytidine, verlengde poly(A)-staarten, een geoptimaliseerde timing voor complexvorming, RNase-inhibitie, een tijdelijke verhoging van de endosomale pH met chloroquine, een verhoogde celzaaidichtheid en verlengde incubatieperioden. Met deze benadering werden transfectie-efficiënties van ongeveer 50%–80% bereikt in senescente fibroblasten na aflevering van een 5 kb hTERT mRNA-transcript. De piek van de telomerase-activiteit werd gedetecteerd 24–48 h na transfectie. Eén enkele transfectiecyclus produceerde meetbare telomeerverlenging, terwijl drie opeenvolgende transfecties resulteerden in aanzienlijke maar eindige telomeerextensie. Gedeeltelijke omkeer van senescentie-geassocieerde fenotypen was detecteerbaar binnen 72–96 h, waaronder verminderde senescentie-geassocieerde β-galactosidase-activiteit, verlaagde p16- en p21-expressie, herstel van de celmorfologie en verlenging van de replicatieve levensduur. Het afgeleverde hTERT mRNA werd binnen 72–96 h afgebroken en er werd geen immortalisatie waargenomen. Dit protocol biedt een praktische benadering voor transiënte mRNA-aflevering in senescente cellen en kan aanpasbaar zijn voor een breed scala aan celtypen en soorten.
Inleiding
De methode van reverse transfectie vormt een cruciale methodologische aanpassing voor senescente cellen, waarmee de fundamentele barrières die deze cellen opwerpen voor standaard transfectiemethoden worden overwonnen. In tegenstelling tot forward transfectie, waarbij cellen vooraf worden geplaat door en zich hechten voordat de transfectiecomplexen worden toegevoegd, houdt reverse transfectie in dat cellen in suspensie direct op vooraf gevormde hTERT mRNA-lipidcomplexen worden geplaatst. Deze techniek verhoogt de transfectie-efficiëntie in senescente cellen aanzienlijk door de blootstelling aan transfectiecomplexen te maximaliseren tijdens de kritieke aanhechtingsfase, wanneer membraanremodellering het meest actief is.
De kern van de conceptuele verschuiving in dit protocol is om senescente cellen te behandelen als een specifiek afleveringsprobleem, en niet simpelweg als moeilijk te transfecteren versies van jonge cellen. Tijdens senescentie veranderen globale wijzigingen in de samenstelling van membraanlipiden, waaronder fosfolipiden, sfingolipiden en cholesterol, de membraanvloeibaarheid, kromming en proteïne-lipide-interacties, terwijl ze tegelijkertijd bijdragen aan het senescentie-geassocieerde secretorisch fenotype1,2,3. Senescente cellen vertonen daarnaast een verminderde clathrine- en caveolae-gemedieerde receptor-endocytose en een gewijzigde endocytaire route, mede gedreven door de downregulatie van amphiphysin-1 en compensatoire veranderingen in de expressie van caveoline, wat de receptor-gemedieerde opname en signalering remt4,5,6. Parallel daaraan raken de door Rab7 gereguleerde late endosoom-lysosoom-as en het bredere endosoom-autofagie-lysosoom (EAL) netwerk gedereguleerd, waarbij Rab7 fungeert als een hoofdregelaar van de endolysosomale rijping en de fusie van autofagosoom en lysosoom, processen die verstoord zijn bij veroudering en neurodegeneratie7.
Senescente cellen reguleren doorgaans meerdere componenten van het lysosomale verwerkings- en adaptatiesysteem (LYPAS) op, waaronder TFEB/TFE3-gestuurde lysosomale biogenese en chaperone-gemedieerde autofagie, waardoor de lysosomale massa toeneemt. Echter vertonen individuele lysosomen vaak een verhoogde luminale pH, membraanschade en een veranderde proteolytische capaciteit, wat bijdraagt aan lysosomale dysfunctie ondanks hun toegenomen overvloed8,9,10,11. Collectief kunnen deze veranderingen geïnternaliseerd materiaal efficiënter naar degradatieve endolysosomale compartimenten leiden, waardoor de kans toeneemt dat afgeleverd RNA of eiwit wordt afgebroken voordat er een productieve cytosolische release plaatsvindt9,10,11. Omgekeerde transfectie richt zich direct op het vroegste venster waarin membranen worden herstructureerd, tijdens de adhesie, wat een aanhoudend contact met een hoge aviditeit tussen cellen en mRNA-lipidcomplexen afdwingt en ten minste gedeeltelijk de verstoorde steady-state endocytose in volledig adherente senescente cellen omzeilt4,5,6,12.
Wat betreft het RNA-ontwerp gaat het protocol ervan uit dat in een context van veroudering een eenvoudige baseline van cap + staart onvoldoende is: volledige nucleoside-modificatie (bijvoorbeeld pseudouridine of N1‑methylpseudouridine plus 5‑methylcytidine) wordt beschouwd als ononderhandelbaar om translatie te ontkoppelen van endosomale Toll-like receptor-detectie en type I interferon-inductie. Fundamenteel werk heeft aangetoond dat de incorporatie van gemodificeerde nucleosiden in RNA de activering van TLR3, TLR7 en TLR8 onderdrukt en de cytokineproductie door dendritische cellen aanzienlijk vermindert, wat een mechanistische basis biedt voor de verminderde aangeboren immunogeniciteit van huidige nucleoside-gemodificeerde mRNA-platforms13. Recentere reviews over mRNA–LNP-vaccins en mRNA-geneesmiddelen benadrukken de gecoördineerde engineering van de 5′ cap, UTR's, coderende sequentie en poly(A)-staart om de stabiliteit en translatie in vivo te verhogen, terwijl de activering van het aangeboren immuunsysteem wordt geminimaliseerd14. In het bijzonder zijn de lengte en architectuur van de poly(A)-staart naar voren gekomen als sleutelfactoren voor de stabiliteit en translationele output van in vitro getranscribeerd mRNA, wat leidde tot verlengde of engineered poly(A)-ontwerpen in therapeutisch mRNA15.
Hierop voortbouwend bevat het protocol expliciet bescherming tegen extracellulaire en endosomale RNases tijdens de complexvorming en opname, samen met een gedefinieerd venster voor endosomale ontsnapping door gebruik van een transiënt lysosomotroop middel zoals chloroquine16,17. Chloroquine wordt al lang gebruikt als functionele probe voor endosomale barrières en kan de target-interactie en silencing door siRNA of antisense-oligonucleotiden aanzienlijk verhogen door disruptie van het endosomale membraan en ontsnapping van de nucleïnezuurvracht naar het cytosol te bevorderen18. Tegelijkertijd heeft live-cell- en superresolutie-imaging van via LNP afgeleverd mRNA aangetoond dat productieve aflevering sterk wordt beperkt door zeldzame ontsnappingsgebeurtenissen uit vroege/recyclende endosomen, in plaats van door de initiële opname op zich, wat het belang onderstreept van het doelbewust ontwerpen van een stap voor endosomale ontsnapping voor mRNA-therapeutica19.
Collectief creëren deze senescentie-geassocieerde veranderingen in membraandynamiek, endocytisch transport, lysosomale verwerking en activatie van de aangeboren immuniteit aanzienlijke barrières voor een efficiënte mRNA-afgifte. De hier beschreven reverse-transfectiestrategie is ontwikkeld om deze beperkingen aan te pakken door geoptimaliseerde mRNA-engineering, RNase-bescherming, verbeterde endosomale ontsnapping en directe blootstelling van hechtende cellen aan vooraf gevormde mRNA-lipidcomplexen te combineren. Hoewel hTERT mRNA als modelvracht wordt gebruikt, is de workflow breed toepasbaar voor de afgifte van andere grote therapeutische mRNA-transcripten in senescente en moeilijk te transfecteren celpopulaties20,21,22.
Protocol
1. In vitro transcriptie van hTERT mRNA
- In vitro transcriptie (IVT) met ARCA en ΨUTP
- Bereid een IVT-reactie van 20 µL voor volgens Tabel 1. Schaal de reactie lineair op indien een hogere opbrengst vereist is.
- Combineer alle reactiecomponenten, behalve T7 RNA-polymerase, in een RNase-vrije buis. Voeg als laatste T7 RNA-polymerase toe, meng voorzichtig en centrifugeer de buis kortstondig.
- Incubeer de reactie bij 37 °C gedurende 0,5–4 u.
OPMERKING: Pas de incubatietijd aan op basis van de lengte van het template. Incubeer reacties met kortere templates (ongeveer 500 bp) gedurende ongeveer 30 min en reacties met grotere templates (ongeveer 4 kb) gedurende 3–4 u.
- DNase-behandeling
- Voeg 1 µL RNase-vrij DNase I direct toe aan het IVT-reactiemengsel.
- Incubeer de reactie bij 37 °C gedurende 15 min.
OPMERKING: De DNase-behandeling moet direct in de IVT-reactie worden uitgevoerd zonder voorafgaande zuivering van het gesynthetiseerde mRNA.
- mRNA-zuivering
- Voeg 115 µL nuclease-vrij H₂O toe om het reactiemengsel te verdunnen.
- Zuiver het mRNA met een RNA-cleanupkit volgens de instructies van de fabrikant.
- Elueer het gezuiverde mRNA in 20–30 µL nuclease-vrij H₂O.
- Meet de mRNA-zuiverheid via spectrofotometrie en verifieer de RNA-integriteit via elektroforese op een denaturerende agarosegel van 1,0–1,5% of een polyacrylamidegel met een laag percentage.
- Poly(A)-tailing
- Bereid een poly(A)-tailingreactie van 50 µL voor volgens Tabel 2. Meng de reactiecomponenten voorzichtig en incubeer bij 37 °C gedurende 30–60 min.
OPMERKING: Pas de incubatietijd aan op basis van de hoeveelheid input RNA. - Beëindig de reactie door 2 µL 0,5 M EDTA (pH 8,0) toe te voegen.
- Bereid een poly(A)-tailingreactie van 50 µL voor volgens Tabel 2. Meng de reactiecomponenten voorzichtig en incubeer bij 37 °C gedurende 30–60 min.
- Finale zuivering en kwaliteitscontrole
- Zuiver het poly(A)-getailde mRNA met een RNA-cleanupkit volgens de instructies van de fabrikant.
- Elueer het gezuiverde mRNA in 20–30 µL nuclease-vrij H₂O.
- Beoordeel de mRNA-kwaliteit voordat u overgaat tot transfectie
- Meet de mRNA-concentratie bij 260 nm en bepaal de zuiverheid met behulp van de A260/A280- en A260/A230-ratio's. Gebruik mRNA-preparaten met A260/A280-waarden van ongeveer 2,0 en A260/A230-waarden groter dan 2,0.
- Evalueer de mRNA-integriteit met gel-elektroforese of een RNA-analysesysteem volgens de instructies van de fabrikant.
- Bevestig de lengte van de poly(A)-staart via RT-PCR of Bioanalyzer-analyse. Verifieer dat de lengte van de poly(A)-staart tussen de 120 en 200 nucleotiden ligt.
- Verdeel het gezuiverde mRNA in aliquots en bewaar deze bij −80 °C om vries-dooi-cycli te minimaliseren.
2. Reverse transfectie
- Dag −1: Voorbereiding op de transfectie
- Verificatie van het senescente fenotype
- Voer een senescence-associated β-galactosidase (SA-β-gal) kleuring uit op een representatief celmonster. Verifieer dat meer dan 70% van de cellen positief is.
- Bevestig de expressie van senescence-markers (p16 en p21) via qRT-PCR of immunofluorescentie.
- Bepaal de celviabiliteit en verifieer dat de viabiliteit 90% overschrijdt.
- Voorbereiding van reagentia
- Warm het complete kweekmedium voor tot 37 °C.
- Warm fosfaatgebufferde zoutoplossing (PBS) voor tot 37 °C.
- Bereid vers Opti-MEM I medium.
OPMERKING: Voeg geen RNase-remmer toe aan Opti-MEM I vóór gebruik.
- Verificatie van het senescente fenotype
- Dag 0: Transfectiedag
OPMERKING: Houd rekening met ongeveer 3 u tussen de bereiding van de reagentia en de incubatie van de getransfecteerde cellen.- Voorbereiding van hTERT mRNA
- Ontdooi hTERT mRNA op ijs. Meet de mRNA-concentratie en gebruik preparaten met concentraties tussen 0,5 en 1,0 µg/µL.
- Verdun de gewenste hoeveelheid hTERT mRNA in Opti-MEM I op basis van het gebruikte kweekformaat (Tabel 3). Voeg RNase-remmer toe tot een eindconcentratie van 0,5–1,0 U/µL en meng voorzichtig.
- Bewaar het verdunde mRNA op ijs tot aan de complexvorming.
OPMERKING: Voeg de RNase-remmer vlak voor gebruik toe. Bewaar mRNA niet met een RNase-remmer, aangezien de activiteit ervan afneemt na invriezing.
- Voorbereiding van het transfectiereagens
- Meng 6,0 µL transfectiereagens met 100 µL Opti-MEM I in een steriele, RNase-vrije buis. Meng voorzichtig door te pipetteren.
- Incubeer het mengsel 5 min bij kamertemperatuur.
OPMERKING: Voor grote hTERT mRNA-constructen (~5 kb) dient de reagens-mRNA-verhouding geoptimaliseerd te worden tussen 0,4 en 0,6 µL reagens per 100 ng mRNA.
- Vorming van mRNA-lipidcomplexen
- Voeg de verdunde hTERT mRNA-oplossing (100 µL) toe aan de verdunde transfectiereagensoplossing (106 µL). Meng voorzichtig door 5–6 keer te pipetteren.
- Incubeer het mengsel 15–20 min bij kamertemperatuur.
- Overschrijd de complexatietijd van 30 min niet.
- Verifieer de succesvolle complexvorming aan de hand van het verschijnen van een licht troebele oplossing.
OPMERKING: Voer de celvoorbereiding uit tijdens de complexatieperiode.
- Celvoorbereiding voor reverse transfectie
- Aspireer het kweekmedium uit de senescente celculturen.
- Was de cellen één keer met voorverwarmde PBS (2 mL per well van een 6-well plaat).
- Voeg 500 µL 0,05% trypsine-EDTA per well toe.
- Incubeer de cellen 3–5 min bij 37 °C.
- Neutraliseer de trypsine met 3 mL compleet medium dat serum bevat.
- Tritureer de cellen voorzichtig om een suspensie van enkelvoudige cellen te verkrijgen.
- Bepaal het celgetal met een hemocytometer of een automatische celteller.
- Bereid een suspensie voor met 2,0–2,5 × 10⁵ cellen per well in compleet medium.
OPMERKING: Vermijd langdurige trypsinisatie omdat senescente cellen zeer gevoelig zijn voor mechanische stress. Houd de cellen in suspensie; plaat ze niet vooraf vóór de reverse transfectie.
- Reverse transfectie
- Voorbereiding van de kweekplaat
- Voeg 500 µL 0,01% poly-L-lysine toe aan elke well van een 6-well plaat en incubeer dit 30 min bij kamertemperatuur.
- Aspireer de coating-oplossing vlak voor gebruik.
- Voeg 200 µL van het hTERT mRNA-lipidcomplex toe in het midden van elke well.
- Incubeer de plaat 30 min bij 37 °C en 5% CO₂.
OPMERKING: Voer de plating-coating parallel uit aan de complexvorming en de celvoorbereiding.
- Voorbereiding van de celsuspensie
- Suspendeer 2,0–2,5 × 10⁵ cellen in 1800 µL antibioticavrij compleet medium.
- Resuspendeer de cellen voorzichtig om een uniforme suspensie van enkelvoudige cellen te verkrijgen.
OPMERKING: Gebruik antibioticavrij medium tijdens de transfectie.
- Uitplaten van cellen op de complexen
- Voeg 1800 µL van de celsuspensie direct toe aan de vooraf gevormde hTERT mRNA-lipidcomplexen.
- Kantel de plaat voorzichtig 2–3 keer in elke richting om de cellen gelijkmatig te verdelen.
OPMERKING: Pipetteer de suspensie na toevoeging van de cellen niet, omdat dit de mRNA-lipidcomplexen kan verstoren.
- Celincubatie
- Incubeer de cellen 6–8 u bij 37 °C in een bevochtigde incubator met 5% CO₂.
- Controleer de celaanhechting met een lichtmicroscoop 2–3 u na transfectie.
- Verifieer dat de cellen gelijkmatig verdeeld zijn en beginnen aan te hechten aan het kweekoppervlak.
OPMERKING: Een overmatig aantal zwevende cellen of cellulair debris kan wijzen op transfectie-gerelateerde cytotoxiciteit.
- Voorbereiding van de kweekplaat
- Voorbereiding van hTERT mRNA
3. Mitigatie van cytotoxiciteit
- Verkort de blootstellingsperiode van de transfectie tot 48 h indien het celverlies meer dan 20% bedraagt.
- Supplementeer de culturen met 10 µM ROCK-remmer Y-27632 tijdens de transfectieperiode om de celoverleving te verbeteren.
- Aspirer na 6–8 h transfectie voorzichtig het transfectiemedium, waarbij verstoring van gedeeltelijk gehechte cellen tot een minimum wordt beperkt. Laat ongeveer 100 µL residu medium achter in elke well.
- Voeg 1 mL vers voorverwarmd compleet groeimedium gesupplementeerd met 15% FBS toe aan elke well.
- Voeg direct na vervanging van het medium chloroquine toe tot een eindconcentratie van 10–20 µM.
- Incubeer de culturen nog 2 h bij 37 °C in een bevochtigde incubator met 5% CO₂.
- Vervang het medium dat chloroquine bevat door vers compleet groeimedium.
- Plaats de culturen terug in de incubator voor verdere groei.
OPMERKING: Controleer de celmorfologie en viabiliteit gedurende de gehele herstelperiode. Overmatige celdetachement of debris kan wijzen op transfectie-geassocieerde cytotoxiciteit.
4. Analyse na transfectie
- Beoordeel de TERT-proteinexpressie 24–48 u na transfectie.
- Meet de TERT-proteineniveaus via western blotting of immunofluorescentiekleuring volgens standaard laboratoriumprocedures.
- Meet de telomerase-activiteit gedurende hetzelfde interval met behulp van een geschikte telomerase-activiteitsassay.
OPMERKING: Telomerase-activiteit neemt doorgaans na 48 u af vanwege degradatie van het transient geleverde hTERT mRNA. - Beoordeel de telomeerlengte 48–72 u na transfectie met monochrome multiplex kwantitatieve PCR (MMqPCR) of een equivalente methode voor telomeerlengteanalyse.
OPMERKING: Na succesvolle aflevering van hTERT mRNA kan detecteerbare telomeerverlenging worden waargenomen. - Evalueer senescentie-geassocieerde en rejuvenatie-geassocieerde fenotypes 7 dagen na transfectie
- Meet de senescentie-geassocieerde β-galactosidase (SA-β-gal) activiteit.
- Meet de expressieniveaus van p16 en p21.
- Beoordeel de Ki67-expressie.
- Onderzoek de cellulaire morfologie via lichtmicroscopie.
OPMERKING: Vergelijk behandelde culturen met onbehandelde of mock-getransfecteerde senescente controles om veranderingen in senescentie-geassocieerde fenotypes en proliferatieve kenmerken te beoordelen.
5. Protocol voor herhaalde dosering (Optioneel)
- Voer de initiële transfectie uit zoals beschreven in secties 2–4.
- Herhaal de transfecties volgens het volgende schema: Dag 0: eerste transfectie; Dag 5: tweede transfectie; Dag 10–12: derde transfectie.
- Houd de cellen aan als adherente culturen en trypsiniseer ze niet vóór de volgende transfecties.
- Bereid verse hTERT mRNA–lipidcomplexen zoals beschreven in secties 2.2.1–2.2.3.
- Aspireer het cultuurmedium uit elke put.
- Voeg 200 µL hTERT mRNA–lipidcomplexen direct toe aan elke put.
- Voeg onmiddellijk na toevoeging van de complexen 800 µL vers volledig F-10 medium toe.
- Incubeer de cellen gedurende 4–6 h bij 37 °C in een bevochtigde incubator met 5% CO₂.
- Vervang het transfectiemedium door vers volledig medium.
OPMERKING: Beperk de behandeling tot maximaal drie transfectiecycli om de cumulatieve transfectie-geassocieerde cytotoxiciteit te minimaliseren.
6. Protocol voor forward transfectie (2 µg/mL, 6-wells formaat)
- Dag −1: Uitplaten van cellen
- Detach senescente of vroeg-senescente fibroblasten met behulp van 0,05% trypsine-EDTA.
- Neutraliseer de trypsine met volledig kweekmedium.
- Bepaal het celgetal en de levensvatbaarheid.
- Plate de cellen uit in 6-wells platen met een dichtheid van 2,0–2,5 × 10⁵ cellen per well.
- Incubeer de cellen overnacht bij 37 °C in een bevochtigde incubator met 5% CO₂ totdat ze een confluentie van ongeveer 60–80% bereiken.
- Dag 0: Bereiding van hTERT mRNA–reagenscomplexen
- Ontdooi een aliquot nucleoside-gemodificeerd hTERT mRNA op ijs.
- Verdun het hTERT mRNA in Opti-MEM tot een eindconcentratie van 2 µg/mL in een steriele RNase-vrije buis (Buis A).
- Voeg RNase-remmer toe aan Buis A tot een eindconcentratie van 0,5–1,0 U/µL en meng voorzichtig.
- Verdun het transfectiereagens in Opti-MEM in een tweede RNase-vrije buis (Buis B) met gebruik van 0,4–0,6 µL reagens per 100 ng mRNA.
- Voeg de inhoud van Buis B druppelsgewijs toe aan Buis A onder voorzichtig mengen.
- Incubeer het mengsel gedurende 15–20 min bij kamertemperatuur.
- Dag 0: Forward transfectie
- Bevestig dat de cellen 60–80% confluent zijn en een gezonde morfologie vertonen.
- Aspireer het kweekmedium.
- Was de cellen één keer met 1–2 mL voorverwarmde PBS.
- Voeg 0,5 mL voorverwarmd volledig of serum-gereduceerd medium toe aan elke well.
- Voeg optioneel chlorochine toe tot een eindconcentratie van 10–20 µM.
- Voeg 0,5 mL van de hTERT mRNA–reagenscomplexen, bereid in stap 6.2.6, toe aan elke well.
- Schud de plaat voorzichtig om de complexen gelijkmatig te verdelen.
- Incubeer de cellen gedurende 4–6 h bij 37 °C in een bevochtigde incubator met 5% CO₂.
OPMERKING: Verleng de incubatieperiode indien nodig naar 6–8 h voor senescente cellen. - Aspireer het transfectiemedium.
- Voeg 2,0 mL vers volledig medium toe aan elke well.
- Voer de post-transfectieanalyses uit zoals beschreven in Sectie 4.
OPMERKING: Gebruik dezelfde batch hTERT mRNA, hetzelfde transfectiereagens en dezelfde nominale dosis bij het vergelijken van forward en reverse transfectiecondities.
Resultaten
Het d2EGFP-T2A-hTERT modRNA werd ontwikkeld als een hybride open leesraam waarin een gedestabiliseerde EGFP (d2EGFP) reporter via een zelfklievend T2A-peptide was gekoppeld aan menselijk TERT. De volledige nucleotide- en eiwitsequenties van alle constructen zijn opgenomen in Supplementary File 1. De coderende sequentie werd geflankeerd door een synthetische 5′-onvertaalde regio (UTR) en de 3′-UTR van menselijk β-globine om de translationele efficiëntie en mRNA-stabiliteit te verhogen (Figuur 1A). De expressiecassette bevatte daarnaast een synthetische enzymstabilisatorsequentie (Es) en een synthetische transcriptieversterkingssequentie (TEs), ontworpen om de processiviteit van T7-polymerase te verbeteren en voortijdige transcriptie-terminatie te verminderen. Na klonering stroomafwaarts van een T7-promotor werd in vitro transcriptie uitgevoerd met gebruik van een anti-reverse cap analoog (ARCA) en gemodificeerde nucleotiden (m5CTP en ΨUTP), gevolgd door enzymatische poly(A)-staartvorming (ongeveer 120–200 nt) om gecapt, gepolyadenyleerd d2EGFP-T2A-hTERT modRNA met een hoge integriteit te genereren (Figuur 1A).
Geautomatiseerde elektroforetische RNA-analyse bevestigde de efficiënte synthese van het transcript, waarbij een dominante RNA-soort van de verwachte grootte werd aangetoond met minimale degradatieproducten bij meerdere hoeveelheden input, wat consistent is met de succesvolle generatie van full-length modRNA (Figuur 1B). Na transfectie van vroeg-senescente LF1-fibroblasten met 2 µg/mL d2EGFP-T2A-hTERT modRNA werd hTERT-eiwit binnen 24 u detecteerbaar en bleef dit verhoogd gedurende 48–96 u, wat wijst op een aanhoudende translatie van het synthetische transcript (Figuur 1C). Analyse van de gekoppelde d2EGFP-reporter toonde een robuuste fluorescentie na reverse transfectie, terwijl een aanzienlijk lagere fluorescentie werd waargenomen na forward transfectie (Figuur 1D,E). Deze bevindingen wijzen op een verbeterde aflevering en expressie van hTERT modRNA door gebruik van de reverse-transfectiebenadering in vroeg-senescente LF1-fibroblasten.
Herhaalde forward transfectie (FT) van vroeg-senescente LF1-fibroblasten met d2EGFP-T2A-hTERT modRNA met intervallen van 5 dagen leidde tot een progressieve toename van de gemiddelde telomeerlengte (rT/S) ten opzichte van mock-getransfecteerde controles, gemeten via monochrome multiplex kwantitatieve PCR (MMqPCR) (Figuur 2A). De rT/S-ratio nam na elke FT-cyclus toe, waarbij de statistische significantie verbeterde van *P < 0,05 naar **P < 0,01.
Toepassing van hetzelfde doseringsschema met behulp van reverse transfectie (RT) resulteerde in een meer uitgesproken toename van de telomeerlengte. De rT/S-ratio nam na elke RT-cyclus toe en bereikte zeer significante verschillen ten opzichte van de mock-getransfecteerde controles (*P < 0,05 tot ****P < 0,001) (Figuur 2B). Een directe vergelijking van FT en RT na drie behandelcycli toonde aan dat beide benaderingen de rT/S-waarden significant verhoogden ten opzichte van de mock-getransfecteerde controles; RT zorgde echter voor een grotere toename dan FT onder identieke doserings- en tijdcondities (*P < 0,05, ***P < 0,01, ****P < 0,01) (Figuur 2C).
Analyse van de groei op lange termijn toonde verder aan dat herhaalde toediening van hTERT modRNA de replicatieve levensduur verlengde (Figuur 2D). Cellen die één, twee of drie behandelingscycli ontvingen, vertoonden progressief grotere cumulatieve popululiedoublingen dan de mock-getransfecteerde controles. Culturen die drie ronden hTERT modRNA-behandeling ontvingen, in het bijzonder via RT, vertoonden de grootste afwijking van de controlegroeicurves over een periode van ongeveer 250 dagen (tot ****P < 0,01). De berekeningen van de populatiedoublingen staan vermeld in Aanvullend Bestand 2.
Vroeg-senescente LF1-fibroblasten die waren getransfecteerd met d2EGFP-T2A-hTERT modRNA vertoonden een sterk TRAP-ladderpatroon 48 u na transfectie, terwijl mock- en eGFP-modRNA-behandelde cellen slechts een achtergrondsignaal vertoonden, wat aangeeft dat de telomeraseactiviteit voortkwam uit exogene hTERT-expressie (Figuur 3A). Warmtevoorbehandeling maakte het ladderpatroon teniet, wat de specificiteit van de assay bevestigt (Figuur 3B).
Tijdreeksanalyse toonde aan dat de telomerase-activiteit een piek bereikte tussen 24 en 48 u na transfectie en vervolgens afnam, waarbij deze tegen 72–96 u terugkeerde naar niveaus die dicht bij de basislijn lagen (Figuur 3C). Het verhogen van de hTERT modRNA-concentratie van 50 naar 3.0 ng/mL leidde tot een overeenkomstige toename in de TRAP-signaalintensiteit, wat wijst op een dosisafhankelijke telomerase-activatie (Figuur 3D).
Functionele analyse met wild-type, katalytisch inactieve (CI) en nucleaire lokalisatiesignaal-deficiënte (ΔNLS) hTERT-constructen toonde aan dat alleen wild-type hTERT een robuuste telomerase-activiteit genereerde. Beide CI- en ΔNLS-varianten slaagden er niet in om een vergelijkbare activiteit te induceren, ondanks vergelijkbare afleveringscondities (Figuur 3E). In overeenstemming met deze bevindingen onthulde MMqPCR-analyse een duidelijke toename van de gemiddelde telomeerlengte (rT/S ≈ 1,4) uitsluitend in cellen die wild-type hTERT modRNA ontvingen. Cellen die CI-hTERT, ΔNLS-hTERT of een mock-behandeling ontvingen, bleven nabij de basiswaarden (rT/S ≈ 0,3; ****P < 0,01) (Figuur 3F).
Drie opeenvolgende ronden van reverse transfectie met hTERT modRNA met intervallen van 5 dagen reduceerden de proportie senescentie-geassocieerde β-galactosidase-positieve cellen significant. Het percentage positieve cellen daalde van ongeveer 85% in mock-behandelde culturen naar ongeveer 40% in hTERT-behandelde culturen 15 dagen na de laatste transfectie (***P < 0.001) (Figuur 4A).
Confocale immuunkleuring onthulde een verhoogde Ki67-expressie in cellen die drie ronden hTERT-reverse transfectie ondergingen in vergelijking met mock-behandelde controles, wat duidt op een toegenomen proliferatieve activiteit (Figuur 4B). RT-qPCR-analyse toonde verder een verlaagde expressie aan van de senescentie-geassocieerde markers p16 en p21 na hTERT-behandeling. Vergeleken met mock-behandelde vroeg-senescente cellen nam de p16-expressie af van ongeveer 2,3-voudig naar 0,7-voudig, en de p21-expressie nam af van ongeveer 1-voudig naar 6-voudig (**P < 0,01; ****P < 0,001) (Figuur 4C,D). Aanvullende Figuur 1 laat verder zien dat behandeling met alleen chloroquine (CQ) of Y-27632 de expressie van p16 of p21 in mock-getransfecteerde cellen niet significant veranderde. Daarentegen zorgde de combinatie van CQ en Y-27632 tijdens drie ronden hTERT-reverse transfectie voor de grootste afname van zowel de p16- als de p21-expressie vergeleken met hTERT-reverse transfectie alleen of met beide middelen individueel, terwijl behandeling met een enkel middel intermediate effecten produceerde. Deze bevindingen geven aan dat het gecombineerde gebruik van CQ en Y-27632 de afname van de expressie van senescentie-geassocieerde markers na hTERT mRNA-reverse transfectie versterkte. Samen tonen deze resultaten aan dat herhaalde reverse transfectie van hTERT mRNA telomeerverlenging bevordert, senescentie-geassocieerde markers vermindert en proliferatieve kenmerken verbetert in vroeg-senescente LF1-fibroblasten.
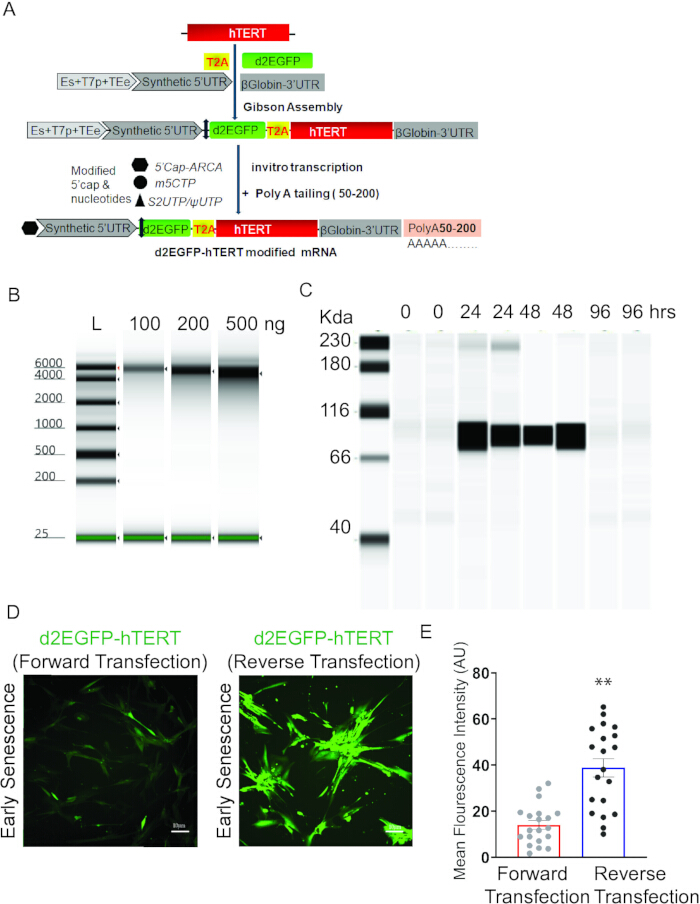
Figuur 1: Ontwerp, synthese en functionele validatie van d2EGFP‑T2A‑hTERT mRNA in vroeg-senescente LF1-fibroblasten. (A) Schematisch ontwerp van het hybride hTERT mRNA-construct dat de T2A-peptide-gekoppelde d2EGFP-cassette bevat voor gelijktijdige expressie van hTERT en gedestabiliseerd EGFP. Het d2EGFP-T2A-hTERT ORF wordt geflankeerd door de 3’-UTR van het menselijke β-globinegen (HBB) en de synthetische 5’-UTR. Het mRNA werd gesynthetiseerd met behulp van gemodificeerde nucleotiden, waarna tot slot een poly(A)-staart werd toegevoegd. (BEffectieve synthese van hoogwaardig d2EGFP-T2A-hTERT mRNA met behulp van in vitro transcriptie zoals geanalyseerd via geautomatiseerde elektroforetische RNA-analyse.CTijdsverloopanalyse van hTERT-proteïne-expressie met behulp van een geautomatiseerde capillaire immunoassay na transfectie van 2 µg/mL van d2EGFP-T2A-hTERT mRNA. (DDe effectiviteit en expressie van d2EGFP-T2A-hTERT mRNA-transfectie, beoordeeld op basis van EGFP-expressie tussen forward transfectie (FT) en reverse transfectie (RT), werden onderzocht in vroegtijdig senescente primaire diploïde fibroblasten (LF1). Schaalbalk = 10 µm. (E) Kwantificering van de gemiddelde fluorescentie-intensiteit (MFI) van het eGFP-signaal na forward- of reverse-transfectie. In totaal werden 20 individuele beelden geanalyseerd voor elke conditie, bestaande uit 4 verschillende gebieden van 5 biologische replica's. Gegevens representeren gemiddelden ± SD. **P < 0,01; beoordeeld met de ongepaarde t-toets met correctie van Welch. Klik hier om een grotere versie van deze figuur te bekijken.
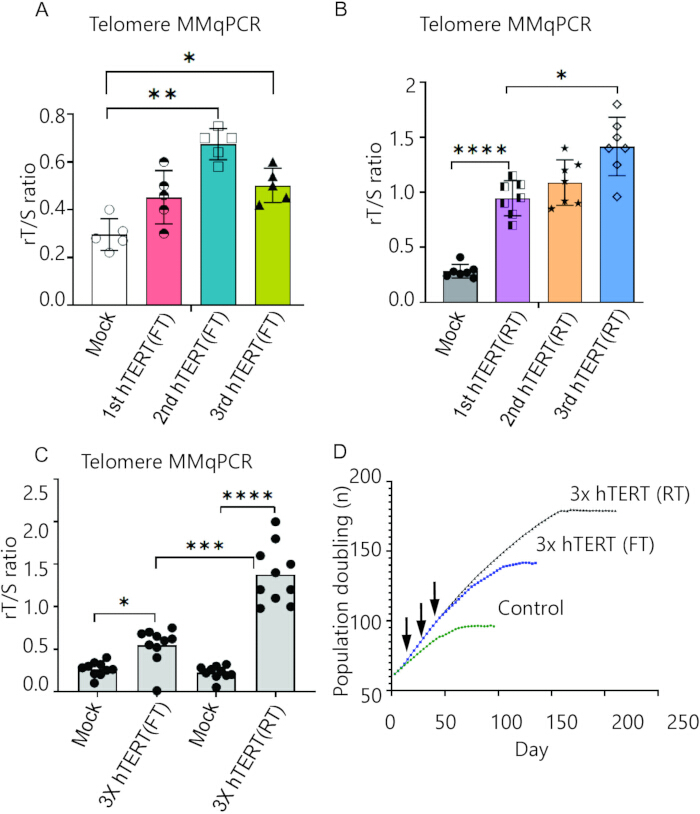
Figuur 2Telomeerlengtedynamiek en proliferatieve levensduur na herhaalde forward versus reverse hTERT mRNA-transfectie in vroeg-senescente LF1-fibroblasten. (ADe gemiddelde telomeerlengtes (rT/S) werden bepaald met behulp van Telomere MMqPCR. Vroeg senescente fibroblasten werden drie keer opeenvolgend met tussenpozen van 5 dagen forward getransfecteerd (FT) met d2EGFP-T2A-hTERT mRNA, beginnend bij populatieverdubbeling (PD) #76. De foutenbalk geeft de SEM aan; n = 5 biologische replica's; *P < 0.05, **P < 0,01 vergeleken met cellen die uitsluitend met een mock-behandeling waren behandeld. (B) Vergelijkbaar met (A), rT/S werden geëvalueerd wanneer vroege senescente cellen herhaaldelijk werden getransfecteerd (RT) met d2EGFP-T2A-hTERT mRNA, drie keer na elkaar met intervallen van 5 dagen, beginnend bij populatiedubbeling (PD) #76. De foutenbalk staat voor de SEM; n = 7 biologische replica's; *P < 0.05, ****P < 0,001 vergeleken met cellen die uitsluitend met een mock-behandeling waren behandeld. (C) Vergelijking van de gemiddelde telomeerlengte (rT/S) na 3 opeenvolgende forward- en reverse-transfecties met intervallen van 5 dagen, of enkel mock-transfectie. De foutbalk geeft de SEM weer; n = 10 biologische replica's; *P < 0.05, ***P < 0.001, ****P < 0.0001. (D) Groeicurves van LF1-fibroblasten getransfecteerd met 2 µg/ml d2EGFP-T2A-hTERT mRNA of enkel mock, één, twee of drie keer opeenvolgend met intervallen van 5 dagen, beginnend bij PD# 76. Zwarte pijlen geven de tijdstippen van behandeling aan. De groeicurves zijn driemaal gereproduceerd, waarbij elke populatie in triplikaat werd gekweekt. 3 technische replica's per biologisch monster, gegevens representeren gemiddelden ± SD. *P < 0.05, **P < 0.01; ****P < 0,001, beoordeeld met de Brown-Forsythe en Welch’s ANOVA-toets Klik hier om een grotere versie van deze figuur te bekijken.
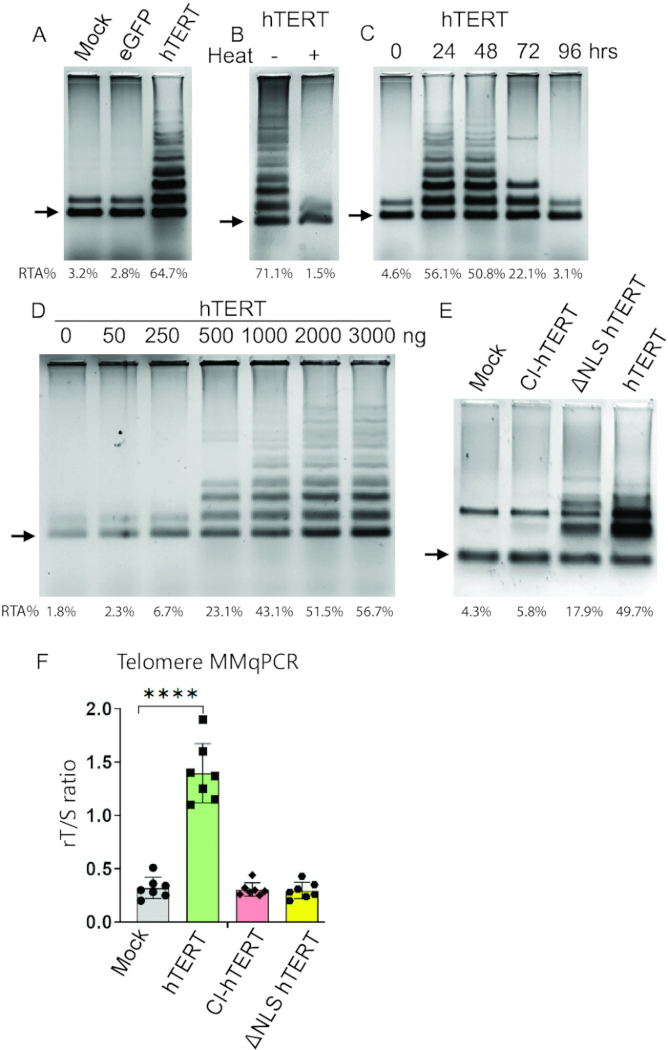
Figuur 3Katalytisch actief, in de nucleus gelokaliseerd hTERT-mRNA induceert een tijdelijke, dosisafhankelijke piek in telomeraseactiviteit die op zichzelf voldoende is om een meetbare telomeerverlenging te bevorderen in vroeg-senescente LF1-fibroblasten. (AVroeg-senescente cellen werden getransfecteerd met mock-, eGFP- of d2EGFP-T2A-hTERT mRNA. 48 uur na transfectie werd een cel-extract bereid van 20.0 cellen en onderworpen aan de TRAP-assay. De reactieproducten werden gescheiden via native PAGE en gekleurd met SYBR Green.B) Hitte-gemedieerde telomerase-inactivering, gemeten met behulp van de TRAP-assay. (CAnalyse van de telomeraseactiviteit in de loop van de tijd in vroeg-senescente LF1-cellen na hTERT mRNA-transfectie toonde aan dat de activiteit binnen 72 uur terugkeerde naar de basislijn, wat wijst op een transiënte enzymactivering.DVroege senescente LF1-cellen ontvingen variërende hoeveelheden d2EGFP-T2A-hTERT mRNA (0–3.00 ng/ml), waarbij een toename van de telomeraseactiviteit werd waargenomen die proportioneel was aan de dosis.E) Aflevering van 2 µg/ml TERT verhoogde de telomeraseactiviteit in vroegtijdig senescente LF1-cellen. ΔNLS versterkte de telomeraseactiviteit gedeeltelijk zonder telomeerverlenging te induceren, aangezien het in het cytoplasma functioneert maar niet naar de kern transloceert, terwijl CI TERT-mRNA dit effect niet teweegbracht, wat duidt op verschillende functionele resultaten.F) Effect van reverse transfectie met functioneel TERT, TERT met een defect nucleair lokalisatiesignaal (ΔNLS) en katalytisch inactief (CI) TERT op de gemiddelde telomeerlengtes (rT/S) van vroegtijdig senescente LF1-cellen, wat de belangrijkheid van katalytisch actief, in de kern gelokaliseerd TERT voor telomeerverlenging aantoont. De foutenbalk geeft de SD weer; n = 7 biologische replica's; ****P < 0,001 vergeleken met cellen die enkel met mocks waren behandeld, beoordeeld via een éénweg-ANOVA met Welch-correctie. RTA% - Relatieve telomerase-activiteit (% van controle) staat onderaan elke lane vermeld. De ratio van de intensiteitsniveaus van de TRAP-steunladders en de ITAS-band (interne controle - IC) werd voor elke lane berekend met de volgende formule: Activiteit genormaliseerd = Ladder-intensiteit/IC-intensiteit en elk monster werd genormaliseerd ten opzichte van de positieve controle als percentage (positieve controle; H129 2.50 cellen) met behulp van de volgende formule: Relatieve activiteit (%) = Activiteit genormaliseerd (sample)/Activiteit genormaliseerd (referentie). Achtergrondsubtractie werd in elke stap toegepast. Klik hier om een grotere versie van deze figuur te bekijken.
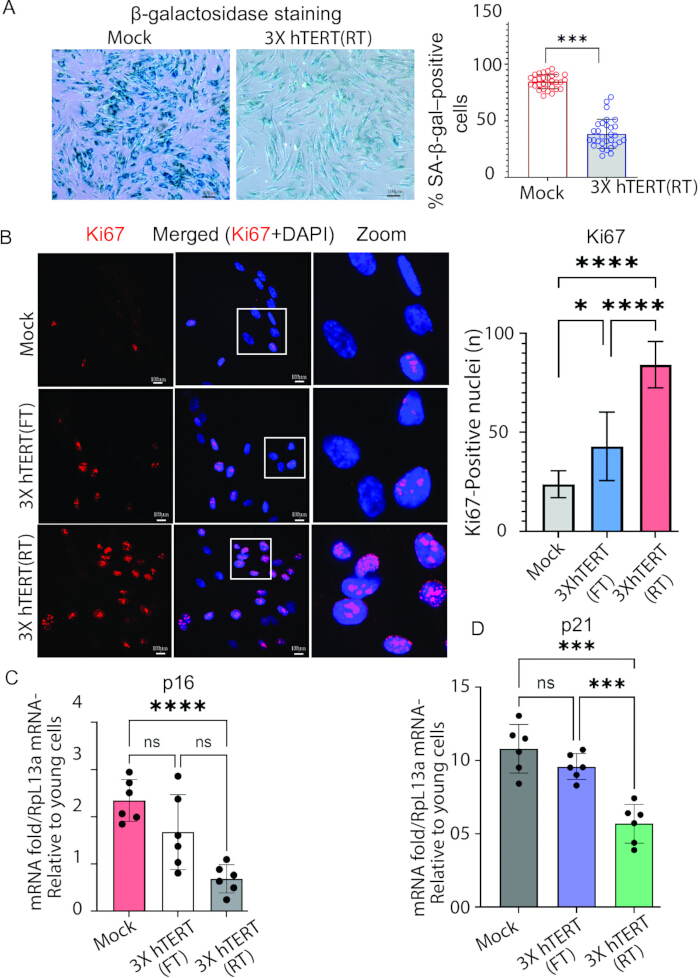
Figuur 4Geoptimaliseerde reverse transfectie van hTERT mRNA keert senescentie-geassocieerde fenotypes gedeeltelijk om en herstelt proliferatiemarkers in vroeg-senescente LF1-fibroblasten. (A) Representatieve afbeeldingen van β-gal-expresserende vroeg-senescente LF1-cellen na drie opeenvolgende transfecties met gemodificeerd hTERT-mRNA in intervallen van 5 dagen. Schaalbalk = 100 µmDe β-gal-expressie werd geanalyseerd 15 dagen na de laatste transfectie. Experimenten werden drie keer uitgevoerd met >10 cellen per monster handmatig gescoord. (B) Representatieve confocale beelden (20x vergroting) van vroeg-senescente LF1-cellen, gekleurd met de proliferatiemarker Ki67. Schaalbalk = 100 µmSignificante toename van de Ki-67-expressie na 3 rondes reverse transfectie met hTERT. Het percentage Ki67-positieve kernen neemt significant toe na 3× hTERT (RT). De grafiek representeert het gemiddelde ± SD van het aantal Ki67-positieve kernen, genormaliseerd naar de mock-getransfecteerde conditie. Voor elke conditie werden in totaal 18 beelden onderzocht, waarbij 6 verschillende velden werden geselecteerd uit elk van de biologische replica's, voor een totaal van n = 3 biologische replica's. ****P < 0.0001. (C) Expressie van senescentiemarkers na 3× hTERT-gemedieerde partiële rejuvenatie, beoordeeld via RT-qPCR (n = 6). Alle gegevens stellen gemiddelden ± SD voor. **P < 0.01; ****P < 0,001, beoordeeld met de ongepaarde t-toets met correctie van Welch. Klik hier om een grotere versie van deze figuur te bekijken.
| Component | Volume/Eindconcentratie |
| PCR-matrijs-DNA | 20 – 100 ng |
| 10× IVT-buffer | 2 μL |
| ATP (10 mM) | 2 μL (10 mM eindconcentratie) |
| GTP (10 mM) | 1.5 μL (7,5 mM eindconcentratie) |
| CTP (10 mM) | 2 μL (10 mM eindconcentratie) |
| m1Ψ-5′-TP (10 mM) | 2 μL (10 mM eindconcentratie) (U kunt de inbouw van pseudo-UTP verhogen door normale UTP in te bouwen in een ratio van 1:4-2:2 (m1Ψ-5′-TP:UTP).) |
| ARCA (10 mM) | 4 μL (2 mM eindconcentratie) |
| RNase-inhibitor (40 U/μL) | 0.5 μL (20 U) |
| T7 RNA-polymerase (50 U/μL) | 2 μL (10 E) |
| Nucleasevrij H₂O | 20 μL |
Tabel 1: Samenstelling van de in vitro transcriptie (IVT) reactie voor de synthese van nucleoside-gemodificeerd hTERT mRNA. De reactiecomponenten en de uiteindelijke hoeveelheden die zijn gebruikt voor de ARCA-gecapte IVT-synthese zijn vermeld.
| Component | Volume/Eindconcentratie |
| Gezuiverd mRNA tot 5 μg | ≤20 μL |
| 10× Poly(A) Tailing Buffer | 5 μL |
| ATP (10 mM) | 5 μL (1 mM eindconcentratie) (Hoewel dit al in de buffer aanwezig is, helpt de extra toevoeging bij de stabilisatie van poly A.) |
| Poly(A) Polymerase (5 U/μL) | 1 μL (5 U) |
| Nuclease-vrij H₂O | Tot een totaal van 50 μL |
Tabel 2: Samenstelling van de poly(A)-tailingreactie gebruikt voor post-transcriptionele modificatie van hTERT mRNA. Reagensvolumes en reactiecondities voor de generatie van een poly(A)-staart van 120–20 nucleotiden worden weergegeven.
| Parameter | 12-wells formaat | 6-wells formaat |
| Groei-oppervlak | ~3.8 cm² | ~9.5 cm² |
| Medium per well | 1.0 mL | 2.0 mL |
| Aantal gezaaide cellen | 5× 10⁴–6.5× 10⁴ Cells/ml | 2.0–2.5 × 10⁵ |
| Gemiddeld aantal cellen (bij 100% confluentie) | 5.7× 10⁴–7.2× 10⁴ Cells/ml | 2.9–3 × 10⁵ |
| Hoeveelheid mRNA-transfectie | 750 –10ng | 200–350 ng |
| mRNA-transfectiemiddel | 1.5 – 3.0 µL | 4.75 – 7 µL |
| Eindvolume van mRNA + transfectiemiddel in Opti-MEM | 50 µL | 20 µL |
Tabel 3: Aanbevolen transfectieparameters voor hTERT mRNA-aflevering in 6-well en 12-well kweekformaten. De gebruikte celzaad-dichtheden, mRNA-hoeveelheden, volumes transfectiereagentia en volumes voor complexvorming voor forward- en reverse-transfectie-experimenten zijn samengevat.
Aanvullende figuur 1: Effect van chlorochine en Y-27632 op de senescentie-geassocieerde p16- en p21-expressie na herhaalde hTERT mRNA reverse transfectie. (A) Kwantitatieve RT-PCR-analyse van p16 mRNA-expressie in mock-behandelde en 3× hTERT reverse-getransfecteerde (RT) LF1-fibroblasten na behandeling met chlorochine (CQ), Y-27632, of hun combinatie, zoals aangegeven. (B) Kwantitatieve RT-PCR-analyse van p21 mRNA-expressie onder dezelfde experimentele condities. Transcriptniveaus werden genormaliseerd naar RpL13a en uitgedrukt relatief aan jonge controlecellen (PD#12). Individuele datapunten vertegenwoordigen biologische replica's. Gegevens representeren gemiddelden ± SD van n = 2 biologische replica's, met 5 technische replica's per biologische replica. Statistische significantie is in de figuur aangegeven; ns, niet significant. *P < 0,05, **P < 0,01, ****P < 0,01, bepaald via Brown–Forsythe en Welch's ANOVA. Afkortingen: CQ, chlorochine; RT, reverse transfectie; Y-27632, Rho-geassocieerde proteïnekinase (ROCK)-remmer.Klik hier om dit bestand te downloaden.
Aanvullend bestand 1: DNA- en eiwitsequenties van hTERT-expressieconstructen.Klik hier om dit bestand te downloaden.
Aanvullend bestand 2: Berekening van de populatieverdubbeling (PD).Populatieverdubbelingen (PD) werden berekend met de formule PD = log₂ (Nf/N₀), waarbij N₀ het aantal gezaaide cellen is en Nf het aantal geoogste levensvatbare cellen. De cumulatieve PD werd bepaald door de PD-waarden over de passages heen op te tellen.Klik hier om dit bestand te downloaden.
Discussie
Deze studie herdefinieert cellulaire senescentie als een specifiek afleveringsprobleem in plaats van een geringe variatie van proliferatieve fysiologie, en ontwikkelt een telomerase mRNA-transfectiestrategie die is afgestemd op de biofysische en immunologische beperkingen van de senescente staat. Senescente cellen vertonen verstevigde, cholesterolrijke membranen en een verminderde endocytische activiteit, wat een aanzienlijke barrière vormt voor een efficiënte aflevering van nucleïnezuren. Door een reverse-transfectiebenadering te hanteren, maakt dit protocol gebruik van de tijdelijke adhesieperiode waarin senescente cellen membraanremodellering ondergaan en een verhoogde membraanplasticiteit vertonen, waardoor het contact tussen cel en complex wordt gesynchroniseerd met een periode van verhoogd opnamepotentieel3,4. Representatieve resultaten tonen aan dat deze strategie de aflevering en expressie van hTERT modRNA verbetert in vergelijking met conventionele forward-transfectie, wat leidt tot een grotere telomeerelongatie en meer uitgesproken fenotypen geassocieerd met verjonging.
Een centraal kenmerk van de methode is een meerlaagse mRNA-engineeringstrategie die is ontworpen om drie grote barrières in senescente cellen aan te pakken: verhoogde aangeborenen immuunsignalering, verhoogde RNA-degradatie en een aangetaste translationele capaciteit23,24,25. De incorporatie van pseudouridine en 5-methylcytidine vermindert de activering van TLR3-, TLR7/8- en RIG-I-signaalpaden, terwijl tegelijkertijd de transcriptstabiliteit en translationele efficiëntie worden verhoogd13,26. ARCA-capping en optimalisatie van de poly(A)-staart verbeteren de transcriptstabiliteit en de translationele opbrengst verder, wat een robuuste maar transiënte hTERT-expressie mogelijk maakt. In overeenstemming met eerdere studies ondersteunen deze modificaties een efficiënte telomerase-expressie, terwijl de activering van het aangeborene immuunsysteem die gepaard gaat met de afgifte van exogeen RNA wordt geminimaliseerd.
Het protocol houdt ook rekening met de RNase-rijke extracellulaire omgeving die kenmerkend is voor senescente culturen27. De RNA-bescherming wordt verbeterd door nucleoside-modificatie, de vorming van lipidcomplexen en de onmiddellijke toevoeging van een RNase-remmer vóór de transfectie. Daarnaast is de timing van de reverse transfectie aangepast aan de tragere adhesiekinetiek van senescente cellen, waardoor een langere interactie tussen de cellen en de mRNA-lipidcomplexen mogelijk is tijdens de celadhesie. Deze modificaties verhogen gezamenlijk de waarschijnlijkheid van een succesvolle opname van de cargo in een celpopulatie die anders moeilijk te transfecteren is.
Ontsnapping uit het endosoom vormt een tweede kritieke flessenhals voor de aflevering van mRNA in senescente cellen. Senescente cellen vertonen een toegenomen lysosomaal gehalte en een verhoogd transport van geendocyteerde vracht naar degradatieve compartimenten17,28. Kortstondige blootstelling aan chlorochine tijdens de vroege post-transfectieperiode verbetert de functionele aflevering door ontsnapping uit het endosoom te bevorderen en lysosomale degradatie van geïnternaliseerd mRNA te verminderen. Hoewel de optimale dosis en blootstellingsduur per celtype kunnen variëren, geven de hier gepresenteerde resultaten aan dat het verbeteren van de endosomale ontsnapping de afleveringsefficiëntie in senescente fibroblasten aanzienlijk verhoogt.
Op functioneel niveau leidde herhaalde toediening van hTERT modRNA tot cumulatieve toenames in de relatieve telomeerlengte, een verlenging van de replicatieve levensduur en een vermindering van meerdere senescentie-geassocieerde fenotypes. Cellen die herhaaldelijk werden behandeld met hTERT vertoonden een verminderde SA-β-gal activiteit, een afgenomen expressie van p16 en p21, een verhoogde expressie van Ki67 en een verbeterd proliferatievermogen in vergelijking met mock-getransfecteerde controles. Belangrijk is dat de telomerase-activiteit tijdelijk bleef en binnen enkele dagen na transfectie terugkeerde naar waarden nabij de baseline. Dit tijdelijke expressieprofiel voorkomt permanente genetische modificatie, terwijl er toch voldoende telomerase-activiteit wordt geleverd om meetbare biologische effecten te bevorderen. Er moet echter worden opgemerkt dat meters van de relatieve telomeerlengte verkregen via MMqPCR de absolute telomeer verlenging niet direct kwantificeren. Toekomstige studies waarin terminal restriction fragment analyse, kwantitatieve fluorescentie in situ hybridisatie, Flow-FISH of TeSLA-methodologieën worden opgenomen, zullen een nauwkeurigere beoordeling geven van de dynamiek van de telomeerlengte na toediening van hTERT mRNA.
Verschillende beperkingen verdienen aandacht. Senescente celpopulaties zijn inherent heterogeen en hun respons op mRNA-afgifte kan variëren afhankelijk van de methode van senescentie-inductie, de donorbron en de kweekgeschiedenis. Bijgevolg kunnen de transfectie-efficiëntie en de resultaten van de verjonging verschillen tussen experimentele systemen. Bovendien richt telomerase-reactivatie zich primair op telomeer-afhankelijke aspecten van cellulaire veroudering en corrigeert het niet direct alle kenmerken van senescentie. Aan veroudering gerelateerde veranderingen, zoals epigenetische drift, mitochondriale dysfunctie, veranderde proteostase en chronische inflammatoire signalering, kunnen aanhouden ondanks succesvolle telomeerverlenging29,30. Daarom moet dit protocol worden beschouwd als een gerichte tool voor het bestuderen en gedeeltelijk omkeren van telomeer-gedreven senescentie, en niet als een allesomvattende verjongingsstrategie.
De in dit protocol beschreven parameters zijn bedoeld als praktische richtlijnen voor senescente menselijke cellen en zijn ontwikkeld via iteratieve optimalisatie op basis van gepubliceerde studies en experimentele ervaring. Factoren zoals celdichtheid, de ratio tussen transfectiereagens en mRNA, de complexatietijd en de omstandigheden voor endosomale ontsnapping kunnen aanpassingen vereisen voor specifieke celtypen en experimentele settings. Onderzoekers dienen de gerapporteerde condities daarom te beschouwen als een uitgangspunt voor optimalisatie in plaats van als universeel toepasbare eindpunten.
Samenvattend biedt dit protocol een reproduceerbaar kader voor het afleveren van gemodificeerd hTERT mRNA in senescente menselijke cellen middels een reverse-transfectiestrategie die is geoptimaliseerd voor de fysiologische kenmerken van senescentie. Deze aanpak maakt tijdelijke reactivatie van telomerase, meetbare telomeerverlenging, verlenging van de replicatieve levensduur en gedeeltelijke omkeering van senescentie-geassocieerde fenotypes mogelijk. Toekomstige studies dienen de toepasbaarheid van deze strategie op aanvullende typen senescente cellen te evalueren, combinatiebenaderingen met complementaire verjongingsinterventies te onderzoeken en de vertaling naar in vivo afleveringsplatformen te verkennen. Bijgevolg vormt deze methode een waardevol instrument voor het onderzoek naar telomeerbiologie, cellulaire verjonging en mechanismen van senescentie binnen het verouderingsonderzoek.
Openbaarmakingen
J.M.S. is medeoprichter en voorzitter van de SAB van Transposon Therapeutics.
Dankbetuigingen
Dit werk werd ondersteund door National Institutes of Health (NIH) subsidies P01 AG051449, R01 AG016694 en R01 AG078925 toegekend aan JS.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Ham's F-10 Nutrient Mix | Thermo Fisher | 11550043 | Celkweekmedium. |
| 3´-O-Me-m7G(5')ppp(5')G RNA Cap Structure Analog | New England Biolab | S1411L | Voor de meeste RNA's verhoogt de cap-structuur de stabiliteit, vermindert de vatbaarheid voor exonuclease-degradatie en bevordert de vorming van mRNA-initiatiecomplexen. |
| 5-Methyl-Cytidine-5´-Triphosphate (5-Methyl-CTP) | New England Biolab | N0432S | Gemodificeerde NTP's worden veelvuldig gebruikt om de immunogeniciteit van in vitro getranscribeerd RNA te verminderen. |
| 6-well plaat | Corning | 351146 | Voor het kweken en behandelen van middelgrote tot grote volumes adherente cellen of suspensiecellen onder onafhankelijke experimentele condities. |
| Anti-Ki67 antilichaam (SP6) | abcam | ab16667 | Ki67 komt hoofdzakelijk tot expressie in prolifererende cellen. |
| Cellular Senescence Assay Kit (SA-beta-gal kleuring) | cellbiolabs | CBA-230 | Identificatie van senescente cellen met de SA-β-gal kleuringsassay |
| DNA LoBind 0,5 ml buisjes | Eppendorf | 022431005 | Voor het efficiënt terugwinnen van DNA en RNA zonder verlies |
| DNA LoBind 1,5 ml buisjes | Eppendorf | 22431021 | Voor het efficiënt terugwinnen van DNA en RNA zonder verlies |
| DNase I, RNase-vrij (1 U/μL) | Thermo Fisher | EN0521 | DNase I, RNase-vrij is een endonuclease die enkel- en dubbelstrengs DNA afbreekt. |
| E. coli Poly(A) Polymerase | New England Biolab | M0276S | In Escherichia coli fungeert Poly(A) Polymerase I (PAP I) primair als katalysator voor de template-onafhankelijke additie van adenosinemonofosfaat (AMP)-residuen aan het 3'-uiteinde van RNA-moleculen. |
| Fetaal runderserum | Thermo Fisher | A5256701 | Serumsupplement voor celkweek |
| HiScribe T7 ARCA mRNA Kit | New England Biolab | E2065S | De HiScribe T7 ARCA mRNA Kit (met tailing) is ontworpen voor de snelle in vitro productie van ARCA-gecapte en poly(A)-getailed mRNA. Gecapte mRNA's worden gesynthetiseerd door co-transcriptionele incorporatie van Anti-Reverse Cap Analog (ARCA) met behulp van T7 RNA-polymerase. |
| HiScribe T7 mRNA Kit met CleanCap Reagent AG | New England Biolab | E2080S | De HiScribe T7 mRNA Kits met CleanCap Reagent AG maken de snelle en gestroomlijnde productie van één of meerdere transcripten mogelijk, met typische opbrengsten van ≥90 μg per reactie, |
| LongAmp Hot Start Taq DNA Polymerase | New England Biolab | M0534S | LongAmp Hot Start Taq DNA Polymerase biedt uitzonderlijke prestaties bij lange amplicons. |
| M-MuLV Reverse Transcriptase | New England Biolab | M0253L | M-MuLV Reverse Transcriptase synthetiseert een complementaire DNA-streng beginnend vanaf een primer, gebruikmakend van RNA (cDNA-synthese) of enkelstrengs DNA als template. |
| Monarch Spin RNA Cleanup Kit (50 μg) | New England Biolab | T2040L | De hoofdfunctie van de Monarch® Spin RNA Cleanup Kit (50 μg) is het zuiveren en concentreren van maximaal 50 μg hoogwaardig RNA uit enzymatische reacties of extractiemengsels. |
| NEBuilder HiFi DNA Assembly Master Mix | New England Biolab | E2621L | NEBuilder HiFi DNA Assembly Master Mix maakt naadloze assemblage van meerdere DNA-fragmenten mogelijk, ongeacht de fragmentlengte of compatibiliteit van de uiteinden. Het is nuttig voor de synthetische biologiegemeenschap, evenals voor één-stap klonering van meerdere fragmenten vanwege het gebruiksgemak, de flexibiliteit en het eenvoudige master-mix formaat. |
| Opti-MEM - Serum-arm medium | Thermo Fisher | 31985070 | Om de transfectie-efficiëntie van cellen te maximaliseren tijdens de vorming van lipide-payload complexen. Het dient als een geoptimaliseerde, chemisch gedefinieerde omgeving die zoogdiercellen zeer levensvatbaar houdt, terwijl de behoefte aan standaard serumsupplementen wordt verminderd |
| PBS, pH 7,4 | Thermo Fisher | 10010023 | Het primaire functionele gebruik van fosfaatgebufferde zoutoplossing (PBS) bij pH 7,4 is het handhaven van een stabiele pH en osmotische balans voor zoogdiercellen en biologische moleculen. |
| PCR-strips | Thermo Fisher | AB0776 | Het primaire functionele gebruik van PCR-stripbuisjes (meestal in een 8-strip of 12-strip formaat) is het bevatten van kleine volumes vloeistofreacties tijdens high-throughput thermische cycli. |
| Poly-L-Lysine Hydrobromide | Millipore Sigma | P4707-50ML | Het primaire functionele gebruik van Poly-L-Lysine (PLL) Hydrobromide voor celhechting is het coaten van negatief geladen vaste oppervlakken (zoals glas of plastic) om een sterk adhesief, positief geladen substraat te creëren. |
| Pseudouridine-5´-Triphosphate (Pseudo-UTP- ΨUTP) | New England Biolab | N0433S | Pseudouridine-5´-Triphosphate (Pseudo-UTP) wordt veelvuldig gebruikt om de immunogeniciteit van in vitro getranscribeerd RNA te verminderen. |
| Ribonucleotide Solution Set | New England Biolab | N0450L | Vier afzonderlijke oplossingen van ATP, GTP, CTP en UTP |
| ROCK-remmer Y-27632 (Dihydrochloride) | Stem cell technologies | 72302 | Y-27632 is een celpermeabele, zeer potente en selectieve remmer van Rho-geassocieerde, coiled-coil bevattende proteïnekinase (ROCK). Y-27632 remt zowel ROCK1 (Ki = 220 nM) als ROCK2 (Ki = 300 nM) door te concurreren met ATP voor binding aan de katalytische site |
| RT-PCR Grade Water | Thermo Fisher | AM9935 | Het primaire functionele gebruik van RT-PCR Grade Water (vaak aangeduid als nuclease-vrij water) is om te dienen als ultra-puur oplosmiddel voor gevoelige enzymatische assays waarbij elke contaminatie het monster zou degraderen of de amplificatie zou remmen. |
| SUPERase·In RNase-remmer | Thermo Fisher | AM2694 | SUPERase In RNase-remmer is een eiwitgebaseerde remmer van niet-humane oorsprong die niet-covalent bindt aan en de meest voorkomende en problematische RNases remt, waaronder RNase A, B, C, 1 en T1. |
| SYBR Green I Nucleic Acid Gel Stain | Thermo Fisher | S7563 | Het primaire functionele gebruik van SYBR™ Green I Nucleic Acid Gel Stain is het visualiseren en kwantificeren van dubbelstrengs DNA (dsDNA) in agarose- of polyacrylamidegels. |
| TransIT-mRNA Transfectie Kit | Mirusbio/ Millipore Sigma | MIR 2250 | Een hoog-efficiënte transfectiereagens met lage toxiciteit voor groot RNA |
| TRAPeze Telomerase Detection Kit | Millipore Sigma | S7700 | De TRAP (Telomeric Repeat Amplification Protocol) assay is een veelgebruikte en gevoelige PCR-gebaseerde methode voor het detecteren en meten van telomerase-activiteit in zoogdiercellen en weefselmonsters. Deze omvat drie hoofdstappen: extensie van telomere repeats door telomerase, amplificatie van deze producten met behulp van PCR en daaropvolgende detectie. |
| Trypsine-EDTA (0,05%), fenolrood | Thermo Fisher | 25300054 | Om adherente zoogdiercellen los te maken van kweekvaten tijdens routineuze celpassaging (subcultivatie) en oogsten. |
Referenties
- Millner A, Atilla-Gokcumen GE. Lipid players of cellular senescence. Metabolites. 2020;10(9):339.
- Hamsanathan S, Gurkar AU. Lipids as regulators of cellular senescence. Front Physiol. 2022;13:796850.
- Das UN. Cell membrane theory of senescence and the role of bioactive lipids in aging and aging-associated diseases and their therapeutic implications. Biomolecules. 2021;11(2):241.
- Shin EY, Soung NK, Schwartz MA, Kim EG. Altered endocytosis in cellular senescence. Ageing Res Rev. 2021;68:101332.
- Park JS, et al. Down-regulation of amphiphysin-1 is responsible for reduced receptor-mediated endocytosis in senescent cells. FASEB J. 2001;15(9):1625-1627.
- Park SC. Functional recovery of senescent cells through restoration of receptor-mediated endocytosis. Mech Ageing Dev. 2002;123(8):917-926.
- Stroupe C. This is the end: regulation of Rab7 nucleotide binding in endolysosomal trafficking and autophagy. Front Cell Dev Biol. 2018;6:129.
- Curnock R, et al. TFEB-dependent lysosome biogenesis is required for senescence. EMBO J. 2023;42(9):e111241.
- Guerrero-Navarro L, Jansen-Durr P, Cavinato M. Age-related lysosomal dysfunctions. Cells. 2022;11(12):1977.
- Tan JX, Finkel T. Lysosomes in senescence and aging. EMBO Rep. 2023;24(11):e57265.
- Rovira M, et al. The lysosomal proteome of senescent cells contributes to the senescence secretome. Aging Cell. 2022;21(10):e13707.
- Kilroy G, Burk DH, Floyd ZE. High-efficiency lipid-based siRNA transfection of adipocytes in suspension. PLoS One. 2009;4(9):e6940.
- Kariko K, Buckstein M, Ni H, Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA. Immunity. 2005;23(2):165-175.
- Freund I, Eigenbrod T, Helm M, Dalpke AH. RNA modifications modulate activation of innate Toll-like receptors. Genes (Basel). 2019;10(2):92.
- Chen H, et al. Branched chemically modified poly(A) tails enhance the translation capacity of mRNA. Nat Biotechnol. 2025;43(2):194-203.
- Alshehri A, Grabowska A, Stolnik S. Pathways of cellular internalisation of liposome-delivered siRNA and effects on siRNA engagement with target mRNA and silencing in cancer cells. Sci Rep. 2018;8(1):3748.
- Paramasivam P, et al. Endosomal escape of delivered mRNA from endosomal recycling tubules visualized at the nanoscale. J Cell Biol. 2022;221(2):e202110137.
- Pandey E, Harris EN. Chloroquine and cytosolic galectins affect endosomal escape of antisense oligonucleotides after Stabilin-mediated endocytosis. Mol Ther Nucleic Acids. 2023;33:430-443.
- Bettinger T, et al. Peptide-mediated RNA delivery: a novel approach for enhanced transfection of primary and post-mitotic cells. Nucleic Acids Res. 2001;29(18):3882-3891.
- Granados-Riveron JT, Aquino-Jarquin G. Engineering of the current nucleoside-modified mRNA-LNP vaccines against SARS-CoV-2. Biomed Pharmacother. 2021;142:111953.
- Hou X, Shi J, Xiao Y. mRNA medicine: recent progresses in chemical modification, design, and engineering. Nano Res. 2024;17(10):9015-9030.
- Ramunas J, et al. Transient delivery of modified mRNA encoding TERT rapidly extends telomeres in human cells. FASEB J. 2015;29(5):1930-1939.
- Majewska J, Krizhanovsky V. Immune surveillance of senescent cells in aging and disease. Nat Aging. 2025;5(8):1415-1424.
- Ajoolabady A, et al. Hallmarks and mechanisms of cellular senescence in aging and disease. Cell Death Discov. 2025;11(1):364.
- Lin J, et al. RNA and protein degradation in the aging process. Cell Signal. 2025;136:112166.
- Anderson BR, et al. Incorporation of pseudouridine into mRNA enhances translation by diminishing PKR activation. Nucleic Acids Res. 2010;38(17):5884-5892.
- Sugawara S, et al. RNaseH2A downregulation drives inflammatory gene expression via genomic DNA fragmentation in senescent and cancer cells. Commun Biol. 2022;5(1):1420.
- Chatterjee S, Kon E, Sharma P, Peer D. Endosomal escape: a bottleneck for LNP-mediated therapeutics. Proc Natl Acad Sci U S A. 2024;121(11):e2307800120.
- Li YY, Tay FR. The epigenetic rejuvenation promise: partial reprogramming as a therapeutic strategy for aging and disease. Ageing Res Rev. 2026;115:103009.
- Zhang W, Qu J, Liu GH, Belmonte JCI. The ageing epigenome and its rejuvenation. Nat Rev Mol Cell Biol. 2020;21(3):137-150.