Dit protocol heeft als doel de ontwikkeling van melanoom in zebravisxenografts te evalueren met behulp van in vivo elektronparamagnetische resonantie (spectroscopie om melanineradicalen te detecteren en te analyseren), en biedt een nieuwe benadering voor preklinisch melanoomonderzoek en therapeutische beoordeling.
Methodenartikel
X-band elektronparamagnetische resonantie voor monitoring van melanine-geassocieerde radicale veranderingen in de zebravismelanoom in vivo
In dit artikel
Samenvatting
Samenvatting
Dit protocol presenteert een nieuwe in vivo toepassing van X-band (9,5 GHz) elektronparamagnetische resonantiespectroscopie voor het monitoren van melanine-geassocieerde radicale dynamiek in zebravis-(Danio rerio) melanoom-xenograftmodellen. Het doel van deze methode is het mogelijk maken van directe, labelvrije en kwantitatieve beoordeling van melanine-geassocieerde redoxveranderingen tijdens embryonale ontwikkeling, en tumor-gastheerinteracties in een fysiologisch relevant gewerveldsmodel.
Door gebruik te maken van de intrinsieke paramagnetische eigenschappen van melanine, levert deze aanpak complementaire biochemische informatie die niet alleen met conventionele fluorescentie-gebaseerde beeldvorming kan worden verkregen. Belangrijk is dat het gedetecteerde elektronparamagnetische resonantiesignaal de redoxactieve fractie van het melaninepolymeer weerspiegelt en daarom dient als een redoxgevoelige uitlezing in plaats van als directe maat voor de totale pigmentabundantie.
De methodeprestaties werden gevalideerd door selectieve detectie van melanine-geassocieerde radicalen in gepigmenteerde wildtype-embryo's, afwezigheid van signaal bij albino-controles, statistisch significante ontwikkelingsveranderingen in genormaliseerd elektronparamagnetisch resonantiesignaal over onafhankelijke biologische replicaten, en vergelijkbare resultaten verkregen met alternatieve monsterhouders en ingevroren monsters.
Door X-band elektronenparamagnetische resonantiespectroscopie te combineren met zebravis-xenograftmodellen, biedt dit protocol een schaalbaar, ethisch gunstig en overdraagbaar platform voor preklinisch melanoomonderzoek, redoxbiologiestudies en evaluatie van melanogenesemodulerende interventies.
Inleiding
Het algemene doel van deze studie is het ontwikkelen en valideren van een betrouwbare in vivo methode voor de detectie en kwantificering van melanineradicalen in zebravissen (Danio rerio) embryo's van een xenograftmodel gecombineerd met X-band (9,5 GHz) elektronenparamagnetische resonantiespectroscopie. Deze aanpak is bedoeld om directe, kwantitatieve beoordeling mogelijk te maken van melanine-gerelateerde redoxprocessen tijdens de ontwikkeling van melanoom en als reactie op farmacologische interventies.
Melanine is een heterogene groep biopolymeren die verantwoordelijk is voor pigmentatie in huid, haar en ogen bij een breed scala aan organismen. Onder zijn vormen spelen eumelanine en feomalanine verschillende rollen in de biologie. Eumelanine vertoont antioxidante en fotobeschermende eigenschappen, terwijl feomelanine de vorming van reactieve zuurstofsoorten (ROS) kan bevorderen, vooral onder UV-blootstelling 1,2,3. Zowel antioxidanten als prooxiderende werking zijn gerelateerd aan de vorming van melanineradicalen. Op moleculair niveau is melanine een heterogeen redox-actief polymeer dat bestaat uit indolische en kinonhoudende subeenheden die in meerdere fysisch-chemische toestanden kunnen bestaan, waaronder volledig geoxideerde chinon, gedeeltelijk gereduceerde semiquinon en volledig gereduceerde hydrochinonvormen 4,5,6. De relatieve hoeveelheid semiquinonradicaalsoorten is dynamisch en hangt af van lokale fysisch-chemische omstandigheden, waaronder zuurstofbeschikbaarheid, reactieve zuurstofsoorten (ROS), metaalioninteracties, pH, mate van polymerisatie en melanosoomrijping 7,8,9.
Daarom zijn methoden nodig die deze radicale concentraties kwantitatieve kunnen beoordelen voor een beter begrip van veranderingen in de redoxtoestand van melanine. Bij melanoom draagt de ontregeling van melanogenese in melanocysten bij aan het initieren en de progressie van melanoom. Deze ontregeling hangt vaak samen met veranderingen in de redoxtoestand, afhankelijk van lokale micro-omgevingsomstandigheden. Dit maakt melanine-redoxactiviteit een belangrijke factor in tumorbiologie10. Daarom zijn methoden die directe beoordeling van melanineradicalen mogelijk maken essentieel om de pathogenese en therapeutische respons van melanoom te begrijpen.
Zebravisembryo's vormen een krachtig in vivo model voor het bestuderen van pigmentatie en melanoom. Tot 5 dagen na bevruchting (120 uur na bevruchting, HPF) worden ze niet geclassificeerd als beschermde dieren onder Richtlijn 2010/63/EU, waardoor hoog-doorvoer-experimenten zonder formele ethische goedkeuring zijn toegestaan. Snelle ontwikkeling, optische transparantie en gevestigde protocollen maken zebravissen zeer geschikt voor toxicologische en farmacologische studies11,12. Belangrijk is dat deze vis aanzienlijke genetische en fysiologische overeenkomsten met mensen deelt, en dat belangrijke routes die betrokken zijn bij melanogenese behouden zijn13. Hoewel wildtype-zebravissen voornamelijk eumelanine produceren en dienen als model voor fysiologische pigmentatie, maken xenograftmodellen—gebaseerd op de implantatie van melanoomcellijnen die eumelanine en feomeline produceren—het mogelijk om de progressie van zoogdiertumoren en medicijnresponsen in een fysiologisch relevante micro-omgeving te onderzoeken14,15.
Momenteel is fluorescentie-gebaseerde beeldvorming de standaardmethode die wordt gebruikt bij onderzoek naar zebravismelanoom met xenograft. Deze aanpak maakt realtime visualisatie van tumorgroei, migratie en behandelingsrespons mogelijk via fluorescerende kleurstoffen, bijvoorbeeld dichloordihydrofluoresceïne diacetaat (DCFDA) of transgene lijnen (Grx1-roGFP2, HyPer)16,17. Fluorescentietechnieken leveren echter voornamelijk morfologische en ruimtelijke informatie en zijn beperkt in hun vermogen om biochemische en redoxgerelateerde processen vast te leggen. Daarnaast kunnen hun uitlezingen worden beïnvloed door fotobleek, kleurstoflekkage, interferentie door fluorescerende geneesmiddelverbindingen en mogelijke veranderingen in de celfysiologie veroorzaakt door labeling. Cruciaal is dat fluorescentiegebaseerde methoden geen directe informatie geven over melanineradicalen of hun dynamische redoxgedrag.
Elektronparamagnetische resonantiespectroscopie biedt een unieke en krachtige analytische benadering, omdat het directe detectie en kwantificering van paramagnetische soorten mogelijk maakt, inclusief stabiele melanine-geassocieerde radicalen. Zowel eumelanine als feomelanine bevatten semiquinongroepen die karakteristieke elektronparamagnetische resonantiesignalen genereren, en de relatieve bijdrage van deze signalen is onderzocht als biomarker van pigmentatiestatus en melanoomprogressie18,19. Belangrijk is dat, omdat alleen de redox-actieve semiquinonfractie direct bijdraagt aan het gedetecteerde signaal, elektronenparamagnetische resonantiespectroscopie aanvullende informatie biedt aan conventionele melanogenese-gerelateerde assays, zoals kwantificering van melanine-inhoud, tyrosinase-activiteit of pigmentatieanalyse. Daarom moet de intensiteit van het elektronparamagnetische resonantiesignaal worden geïnterpreteerd als een redoxgevoelige meting van de functionele melaninetoestand, beïnvloed door lokale fysisch-chemische omstandigheden, in plaats van als een directe maat voor de totale pigmentabundantie.
Hoewel de meeste in vivo elektronparamagnetische resonantiestudies zijn uitgevoerd met L-band systemen (een vorm van elektronenparamagnetische resonantiespectroscopie waarbij laagfrequente microgolven (ongeveer 1–2 GHz) worden gebruikt om paramagnetische soorten te bestuderen, vooral in grotere monsters waar diepere signaalpenetratie nodig is), biedt X-band elektronparamagnetische resonantie een hogere spectrale resolutie en gevoeligheid voor monsters met kleine volumes, waardoor het bijzonder geschikt is voor zebravisembryo's. Bovendien verbeteren recente technische ontwikkelingen, waaronder multiharmonische detectiesystemen, de signaalkwaliteit aanzienlijk en maken betrouwbare metingen mogelijk in uitdagende (kleine en meer gehydrateerde) biologische monsters21,22. De grootte van de X-band resonator is de juiste grootte voor enkele zebravisembryo's, wat, gecombineerd met een hogere resolutie dan bij het L-bandsysteem, het verminderen van het aantal gebruikte dieren mogelijk maakt. Dit is vooral belangrijk bij het werken met xenograftmodellen.
Ondanks deze voordelen blijft de toepassing van X-band elektronparamagnetische resonantie op levende zebravisembryo's en melanoom-xenografts in dit model grotendeels ononderzocht. In vitro-studies met melanoomcellijnen, zoals B16F10, hebben waardevolle inzichten opgeleverd in de eigenschappen van melanineradicaalen; ze missen echter de complexe fysiologische context van een levend organisme23,24. In het bijzonder introduceert de micro-omgeving van zebravissen kritieke factoren—zoals zuurstofgradiënten, cel-cel interacties en dynamische metabole activiteit—die het gedrag van melanine-radicalen aanzienlijk kunnen beïnvloeden25,26. Daarom is er een duidelijke noodzaak om een in vivo methodologie te ontwikkelen en te valideren die directe meting van melanineradicalen onder fysiologisch relevante omstandigheden mogelijk maakt.
In deze studie presenteren we een gedetailleerd protocol voor het toepassen van X-band elektronenparamagnetische resonantiespectroscopie op zebravisembryo's, inclusief xenograftmodellen met B16F10- en B16F1-melanoomcellijnen. Deze methode biedt een complementaire benadering van fluorescentie-gebaseerde beeldvorming door kwantitatieve beoordeling van het melanineradicaalgehalte mogelijk te maken, waardoor inzicht wordt in de dynamiek van de redox. Door structurele en ruimtelijke informatie uit fluorescentietechnieken te integreren met biochemische inzichten uit elektronparamagnetische resonantie, vergroot deze gecombineerde strategie de analytische kracht van zebravismodellen voor preklinisch melanoomonderzoek. Belangrijk is dat het elektronenparamagnetische resonantiesignaal dat in dit protocol wordt gedetecteerd, de redoxactieve fractie van het melaninepolymeer weerspiegelt. Daarom moet signaalintensiteit worden geïnterpreteerd als een redoxgevoelige meting in plaats van een directe maat voor het totale melaninegehalte, en in combinatie met het totale pigmentgehalte worden beschouwd als een indicatie van melanine-geassocieerde redoxverschuivingen. Door de metingsmethode voor het hele organisme en het beperkte aantal geïnjecteerde melanoomcellen, vertegenwoordigt het gedetecteerde signaal voornamelijk globale melanine-geassocieerde radicale veranderingen op het niveau van het gehele zebravisembryo/larve, in plaats van een melanoom-specifiek signaal dat uitsluitend afkomstig is van de xenograft. Dit onderscheid is vooral relevant in dynamische biologische systemen, waar verschuivingen in melanineoxidatietoestand onafhankelijk kunnen plaatsvinden van veranderingen in de totale pigmenthoeveelheid.
Protocol
Zebravisembryo's (Danio rerio) werden in deze studie gebruikt tot 5 dagen na bevruchting (120 hpf). In deze ontwikkelingsfase worden embryo's niet als beschermde dieren beschouwd onder Richtlijn 2010/63/EU en vereisen experimenten daarom geen formele goedkeuring door een ethische commissie. Desondanks werd al het werk uitgevoerd volgens goede laboratoriumpraktijken en institutionele richtlijnen voor de verzorging en het gebruik van zebravissen.
1. Bereiding van reagentia en onderhoud van B16F1 en B16F10 muismelanoomcellijnen
- Bereiding van het volledige medium
- Voeg 50 ml fotaal rundereserum (FBS) en 5,5 ml penicilline-streptomycineoplossing toe aan 500 ml Dulbecco's Modified Eagle Medium (DMEM).
- Verwarm het volledige medium tot 37 °C voor gebruik.
OPMERKING: Gebruik voorverwarmde oplossingen om thermische stress tijdens celhantering te minimaliseren.
- Ontdooien en het starten van kweek uit bevroren cellen
- Ontdooi het bevroren flesje snel met cellen in een waterbad van 37 °C (~1–2 min).
- Desinfecteer de buitenkant van het flesje met 70% ethanol. Voer alle volgende stappen uit onder aseptische omstandigheden.
- Breng de celsuspensie over naar een 15 mL conische buis met 9 mL voorverwarmd volledig medium. Houd een klein aliquot van de oorspronkelijke suspensie voor mycoplasma-testen.
- Centrifugecellen in de centrifugebuis op 200 × g gedurende 5 minuten bij kamertemperatuur.
- Aspiraat het supernatant om restdimethylsulfoxide (DMSO; uit het vriesmedium) te verwijderen.
- Suspendeer de celpellet opnieuw in 10 mL vers en voorverwarmd volledig medium.
- Cellen overbrengen naar een petrischaal van ⌀9 cm en zachtjes draaien in een achtvormige beweging om de cellen gelijkmatig te verdelen.
- Incubeer cellen bij 37°C, 5% CO₂ en ≥95% luchtvochtigheid gedurende de nacht.
- Vervang het kweekmedium na 16–24 uur door verse, vooropgewarmde complete medium.
- Blijf incuberen totdat de cellen >80% confluentie bereiken. Ga verder met subcultivatie (zie stap 1.3).
OPMERKING: Alternatief voor Petrischalen kunnen steriele kweekvaten (bijv. T-flessen) worden gebruikt. Als kleinere schalen of flessen de voorkeur hebben, splits je de cellen evenredig om hetzelfde relatieve kweekoppervlak te behouden.
- Subculturatie van cellen
- Verwijder het kweekmedium uit de celmonolaag. Behoud een kleine aliquot voor mycoplasma-testen.
- Voeg 10 ml fosfaatgeborrelde zoutoplossing (PBS) toe aan de kweekschaal.
- Laat de PBS 3–5 minuten op kamertemperatuur op de cellen blijven staan om de serumeiwitten volledig te verwijderen.
- Aspireer voorzichtig de PBS, waarbij je voorzichtig bent dat de cellen niet loskomen.
- Voeg 1 ml celdissociatiereagens toe en incubeer bij 37°C totdat de cellen zich afronden en loskoppelen (niet langer dan 5 minuten incubatietijd).
- Voeg 1 ml voorverwarmd volledig medium toe om enzymatische dissociatie te stoppen.
- Pipetteer de celsuspensie voorzichtig meerdere keren op en neer om een single-cell suspension te verkrijgen.
- Breng de cellen over in een nieuwe petrischaal of T-fles met een voorverwarmd volledig medium in een splitsingsverhouding van 1:4 tot 1:10. Draai zachtjes in een achtvormige beweging om de cellen gelijkmatig te verdelen.
- Incubeer cellen bij 37 °C, 5% CO₂ en ≥95% luchtvochtigheid.
OPMERKING: Gebruik voorverwarmde oplossingen (37 °C) en voer alle procedures uit onder aseptische omstandigheden in een biologische veiligheidskast van klasse II, terwijl je passende persoonlijke beschermingsmiddelen draagt. Subcultuur cellen elke 2–3 dagen of bij 80–90% confluentie. Gebruik cellen met lage doorgang (
- Cryopreservatie (banking) van cellen
- Gebruik gezonde, exponentieel groeiende cellen (~70%–80% confluent).
- Oogst de cellen zoals beschreven in stappen 1.3.1–1.3.7 en breng de celsuspensie over in een 15 mL conische buis.
- Centrifugeer de cellen op 300 × g gedurende 2 minuten.
- Verwijder het supernatant en suspendeer de cellen opnieuw in cryopreservatiemedium bij 1–5 × 10⁶ cellen/mL.
- Aliquot celsuspensie in gelabelde cryovialen (cellijn, doorgangsnummer, datum).
- Vries flesjes 's nachts in bij -80°C met een vriescontainer met gecontroleerde snelheid.
- Als alternatief kun je een geneste isolatiemethode gebruiken: plaats de flesjes in een klein piepschuim rek voor 1,5/2,0 mL buizen, dat vervolgens in een grotere polystyreen doos wordt geplaatst.
OPMERKING: Deze dubbellaagconfiguratie is ontworpen om de thermische buffering te bieden die nodig is om een geleidelijke koelsnelheid te bereiken, wat cruciaal is voor succesvolle cryopreservatie.
OPMERKING: Cryogene materialen moeten worden behandeld met geïsoleerde handschoenen en gezichtsbescherming. Volg de institutionele richtlijnen voor vloeibare stikstof en de behandeling van gevaarlijk afval.
- Als alternatief kun je een geneste isolatiemethode gebruiken: plaats de flesjes in een klein piepschuim rek voor 1,5/2,0 mL buizen, dat vervolgens in een grotere polystyreen doos wordt geplaatst.
- Na een nachtelijke incubatie bij -80 °C worden de flesjes overgebracht naar vloeibare stikstof voor langdurige opslag. Cryovialen kunnen worden opgeslagen bij -80 °C voor kortdurende opslag.
- Mycoplasma-testen
- Verzamel een kleine aliquot van kweekmedium of celsuspensie tijdens ontdooien, subculturatie of cryopreservatie.
- Beoordeel de mycoplasma-besmetting met behulp van een gevalideerde PCR-gebaseerde of enzymatische mycoplasma-detectiekit volgens de instructies van de fabrikant.
- Gebruik mycoplasma-negatieve culturen voor experimenten of cellijnbanking.
- Registreer de resultaten en gooi of isoleer besmette culturen totdat ze zijn vrijgegeven.
OPMERKING: Test regelmatig op mycoplasma-besmetting.
2. Kankerceltransplantatie in zebravislarven
- Bereid kankercellen voor op transplantatie
- Groei cellen tot ~80% confluentie.
- Oogst de cellen zoals beschreven in stappen 1.3.1–1.3.7.
- Breng de celsuspensie over naar een 2 mL microcentrifugebuis.
- Centrifugeer de cellen op 300 × g gedurende 2 minuten bij kamertemperatuur.
- Verwijder het supernatant en was de celpellet met 1 ml steriele PBS.
- Herhaal stap 2.1.4–2.1.5 en suspendeer de cellen opnieuw in de overgebleven PBS. Meer dichte suspensie zorgt voor minder sedimentatie.
- Pipetteer de suspensie voorzichtig op en neer totdat een homogene single-cell suspension is verkregen.
OPMERKING: Gebruik van een 200 μL pipettip die vooraf is bevochtigd (geprimed) met een 45% polyvinylpyrrolidon (PVP) oplossing omdat dit helpt celsedimentatie binnen de injectiemicronaald te voorkomen. - Houd de celsuspensatie op ijs tot injectie.
OPMERKING: Als celklontering optreedt, laat de celsuspensie dan door een 35–40 μm celfilter gaan en/of behandel de cellen met 0,01–0,05 mg/mL DNase I.
- Zebraviseierproductie
- Plaats de volwassen zebravissen de avond vóór de verwachte eierverzameling in broedbakken met systeemwater (klaargemaakt voor paaien).
- Houd de tanks 's nachts in totale duisternis; Dit zorgt ervoor dat spawning de volgende ochtend wordt geactiveerd, wanneer de lichten worden aangezet.
- De vissen zullen na het aangaan van het licht de volgende dag paaien. Verzamel de eieren door het water uit het aquarium te gieten met een theezeef.
- Spoel de eieren grondig af met E3 medium (5 mM NaCl, 0,17 mM KCl, 0,33 mM CaCl2, 0,33 mM MgSO4).
- Bevruchte eieren worden overgebracht naar 9 cm petrischaaltjes met 20–25 mL E3-medium. Plaats niet meer dan 50 embryo's in elk schaaltje.
- Breng de embryo's uit bij 28 °C tot verder gebruik.
OPMERKING: Zorg ervoor dat de eieren altijd vochtig blijven.
- Zebravisembryo-voorbereiding
- Verwijder de chorionen handmatig uit embryo's bij ongeveer 36 HPF.
- Gebruik twee paar ultrafijne Jewelry No. 5 tangen. Knell met één paar stevig maar voorzichtig in de chorion om het ei te stabiliseren. Gebruik het tweede paar tangen om de chorion bij het eerste paar vast te pakken.
- Trek voorzichtig aan de tang in tegengestelde richtingen om een kleine scheur te maken. Maak de opening voorzichtig wijder totdat het embryo eruit schuivt.
- Verdoof gedechorioneerde larven met vers bereide tricaïne-oplossing volgens de vastgestelde zebravisprotocollen27.
OPMERKING: Embryo's zonder chorionen zijn fragiel, plakkerig en moeten worden voorkomen dat ze aan lucht worden blootgesteld. Gebruik glazen pipetten en met agarosen bedekte petrischalen bij het werken met zebravissen <3 dpf.
- Verwijder de chorionen handmatig uit embryo's bij ongeveer 36 HPF.
- Maak microinjectienaalden klaar
- Trek filamentvrije glaskapillen met een trekker met parameters die volgens de richtlijnen van de fabrikant zijn ingesteld.
- Met fijne pincetten breek je de naaldpunt in twee stappen: maak eerst een kleine breuk bij de fijne punt. Voer vervolgens een tweede pauze uit precies waar de cellen vastzitten. Dit creëert een optimale opening die net groot genoeg is voor de cellen om doorheen te gaan, terwijl het zo klein mogelijk blijft.
- Vul de naald terug met de celsuspensie met een lange microlader - een tip voor het vullen van glas-microcapillairen. Vermijd het introduceren van luchtbellen.
- Gebruik de hoogst mogelijke celdichtheid (maximale concentratie) voor de suspensie; De specifieke celdosis wordt geregeld via de instellingen van de injector.
- Laad de naald regelmatig met kleine aliquots, waarbij de ophangkolom binnen de naald maximaal 2 mm wordt beperkt. Dit minimaliseert celsedimentatie binnen de naald, wat zorgt voor een homogenere verdeling en consistente afgifte tijdens injecties.
- Bevestig de geladen naald op een houder van het micro-injectieapparaat.
- Pas de injectiedruk en pulsduur aan om het gewenste aantal cellen per injectie af te leveren (het totale volume van de geïnjecteerde celsuspensie mag niet groter zijn dan het oog van het zebravisembryo op het moment van injectie).
OPMERKING: Gedetailleerde voorbeelden van zebrafish xenograft microinjectiemethodologie zijn eerder beschreven door andere auteurs28.
- Micro-injectieprocedure
- Injecteer de celsuspensie in de dooierzak of de circulatie volgens het experimentele ontwerp.
- Lever meer dan 1000 cellen per embryo af onder gekalibreerde injectieomstandigheden.
OPMERKING: Neem fosfaatgeborrelde zoutoplossing (PBS) geïnjecteerde embryo's op als negatieve controlegroepen.
- Behandeling na injectie
- Houd het geïnjecteerde embryo/larven op 28-32 °C
- Monitor dagelijks de overleving en ontwikkelingsprogressie van de larven onder een dissectiescope.
- Beoordeel de proliferatie en migratie van tumorcellen op de geselecteerde experimentele tijdstippen.
- Ga door met elektronen-paramagnetische resonanse (EPR)-meting zoals beschreven in sectie 3.1 of bewaar monster zoals beschreven in sectie 2.7
OPMERKING: Verwijder larven met injectietrauma of onjuiste injectie. Volg alle richtlijnen voor bioveiligheid en dierenzorg van instellingen. Behandel tricaïne en biologisch afval volgens veiligheidsprotocollen. Voer gevaarlijke stoffen af volgens de regelgeving.
- Monsterverzameling voor invriezing
- Euthanaseer de larven door ze minstens 3 minuten in een gekoelde tricaïneoplossing te dompelen.
- Groepen van 10 larven worden overgebracht naar 1,5 mL microcentrifugebuizen. Verwijder het overtollige medium uit elke tube.
- Bewaar monsters bij -20 °C tot elektronparamagnetische resonantie-analyse.
3. Melanineradicaaldetectie door elektronenparamagnetische resonantiespectroscopie
- Melanineradicaal detectie in vivo bij zebravislarven
- Zet de X-band elektronenparamagnetische resonantiespectrometer aan en laat het systeem stabiliseren volgens de instructies van de fabrikant.
- Breng 20–30 zebravislarven (3–5 dagen na bevruchting, dpf) over in een microcentrifugebuis van 1,5 mL.
- Vul de platte capillaire laag van zebravislarven met 100 μL E3-medium.
- Sluit één uiteinde van de capillair af met een plastic kap en zorg ervoor dat de vloeistofkolom beperkt blijft tot de vlakke kamer.
- Breng meerdere larven samen met een klein volume E3-medium over in een 100 μL hematocriet capillair.
- Zet voorzichtig larven van hematocriet capillairen aan de bovenkant van het platte deel af.
OPMERKING: Zorg ervoor dat de continuïteit van de oplossing wordt bewaakt. Er mogen geen luchtbellen aanwezig zijn in het vlakke deel of bij de bovenkant van het platte deel. - Verwijder overtollig vocht uit het buitenste buisvormige gedeelte van de capillaire structuur terwijl het contact met de vloeistof in de platte kamer wordt gehandhaafd.
- Herhaal stappen 3.1.5–3.1.7 totdat 20–30 larven in de vlakke capillaire zijn geladen.
- Verwijder restvloeistof uit de buisvormige delen van de capillair.
- Plaats de capillaire in de elektronenparamagnetische resonantiespectrometer en plaats het monster in het midden van de resonator.
- Stel de acquisitieparameters in de spectrometersoftware als volgt in: middenveld = 335 mT; sweepbreedte = 10 mT; modulatieamplitude = 500 μT; microgolfvermogen = 1,6 mW; aantal scans = 32; Veegtijd = 11 s; tijdconstante = 0.
- Verkrijg het elektronenparamagnetische resonantiespectrum.
- Verwijder de capillair uit de resonator en laat de larven in een vers E3-medium in een petrischaaltje gaan.
OPMERKING: Vermijd het introduceren van luchtbellen tijdens het laden van het monster, omdat discontinuïteiten in de vloeistofkolom de reproduceerbaarheid van het signaal kunnen verminderen. Als multiharmonische detectie niet beschikbaar is, verlaag dan de modulatieamplitude en optimaliseer de acquisitieparameters om de signaalintensiteit te maximaliseren zonder spectrale vervorming.
- Melanineradicaal detectie bij bevroren zebravislarven
- Ontdooi een bevroren monster met 10 geëuthanaseerde zebravislarven op kamertemperatuur gedurende 5–10 minuten.
- Voeg 100 μL E3-medium toe aan het ontdooide monster.
- Breng de larven samen met het medium over in een 100 μL hematocriet capillair.
- Verwijder overtollige vloeistof uit de capillaire totdat het monster alleen het actieve resonatorvolume (ongeveer 1 cm lang) inneemt.
- Sluit de capillaire af met een afdichtmiddel.
- Plaats de capillaire in de elektronenparamagnetische resonantiespectrometer en plaats het monster in het midden van de resonator.
- Stel de acquisitieparameters in de spectrometersoftware als volgt in: middenveld = 335 mT; sweepbreedte = 10 mT; modulatieamplitude = 500 μT; microgolfvermogen = 1,6 mW; aantal scans = 32; Veegtijd = 11 s; tijdconstante = 0.
- Verkrijg en bewaar het elektronenparamagnetische resonantiespectrum.
OPMERKING: Zorg ervoor dat de bovenrand van het sample onder de bovenrand van de resonator blijft om signaalvervorming te voorkomen. Als multiharmonische detectie niet beschikbaar is, verlaag dan de modulatieamplitude en optimaliseer het microgolfvermogen om de signaalintensiteit te maximaliseren zonder spectrale vervorming.
- Extraheren van elektronenparamagnetische resonantiegegevens uit multiharmonische analyzersoftware en nabewerking van spectra
- Open het opgenomen elektronenparamagnetische resonantiespectrum in de multiharmonische analysesoftware.
- Schakel dual-channel signaalverwerking in door te kiezen op Gebruik twee kanalen.
- Stel het aantal verwerkte harmonischen in op 30.
- Pas de microgolffase/gradatieparameter aan totdat symmetrische absorptie- en dispersiecomponenten zijn verkregen.
- Pas de modulatie-fase/gradatieparameter aan totdat kanaal 1 een zuiver absorptiesignaal toont en kanaal 2 een zuiver dispersiesignaal.
- Pas de modulatieamplitude/G-parameter aan totdat de smalste onvervormde spectraallijn is verkregen.
- Stel de Low Pass/Hz-parameter in om hoogfrequente ruis te verminderen terwijl de vorm van de spectrale lijn behouden blijft.
- Selecteer het tabblad Ruisonderdrukking en klik op Ruisonderdrukking inschakelen. Pas de vervlaktingsfactor en de verfijningsparameters van smalle lijnen aan totdat de signaal-ruisverhouding is verbeterd zonder zichtbare vervorming van de spectrale lijn.
- Selecteer het tabblad Artifacten en schakel Outlier-correctie en Bandbreedtecorrectie in.
- Sla spectra op in een formaat dat door de data-analysesoftware wordt gebruikt voor verdere analyse.
- Bereken de dubbelgeïntegreerde signaalintensiteit met numerieke integratie in geschikte data-analysesoftware.
OPMERKING: Bij het werken met resonatoren met hoge Q verbetert bandbreedtecorrectie de reconstructie van hogere harmonische componenten. Multiharmonische reconstructie maakt het mogelijk om onvervormde spectra uit overgemoduleerde ruwe data te herstellen en verbetert de signaal-ruisverhouding in laag-intensiteit biologische monsters.
Resultaten
Een schematisch overzicht van de experimentele workflow wordt weergegeven in Figuur 1. Zebravisembryo's werden verzameld, getransplanteerd met B16F10-melanoomcellen, onder gecontroleerde omstandigheden geïncubeerd en gemonitord met bright-field- of fluorescentiemicroscopie voorafgaand aan X-band elektronenparamagnetische resonantieanalyse. Levende embryo's werden vervolgens in een platte capillair/monsterhouder geladen voor metingen van de paramagnetische resonantie van het hele organisme, waardoor niet-invasieve detectie van melanine-geassocieerde radicale signalen mogelijk werd. Na de verwerving van elektronparamagnetische resonantie werden embryo's vrijgegeven in een nieuw E3-medium, waardoor longitudinale metingen in dezelfde biologische monsters mogelijk waren.
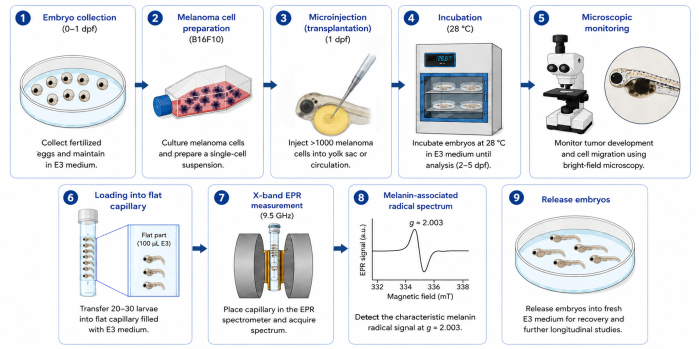
Figuur 1: Grafisch overzicht van de experimentele workflow voor in vivo monitoring van melanine-geassocieerde radicalen in zebravismelanoom-xenografts met behulp van X-band elektronenparamagnetische resonantie (EPR) spectroscopie. Zebravisembryo's worden verzameld, getransplanteerd met melanoomcellen, geïncubeerd en microscopisch gemonitord voordat ze worden geladen in een op maat gemaakte platte capillaire voor EPR-metingen van het hele organisme. Na detectie van het karakteristieke melanine-geassocieerde radicaalsignaal (g ≈ 2.003) worden larven vrijgegeven voor longitudinale vervolgmetingen. Klik hier om een grotere versie van deze figuur te bekijken.
Om de specificiteit van de methode te valideren, werden metingen uitgevoerd op wildtype (WT) en albino zebravisembryo's. WT-embryo's beginnen zichtbare pigmentatie te ontwikkelen bij ongeveer 27 HPF. Overeenkomstig vertonen elektronenparamagnetische resonantiespectra verkregen van WT-embryo's een karakteristiek enkellijnsignaal gecentreerd op g ≈ 2,003, wat consistent is met eumelanine-afgeleide semiquinonradicalen (bijv. DHI/DHICA). Daarentegen tonen albino-embryo's, die geen functionele melaninesynthese hebben, geen detecteerbaar elektronenparamagnetisch resonantiesignaal in hetzelfde spectrale gebied, zelfs niet 5 dagen na bevruchting (dpf). Dit bevestigt dat het waargenomen signaal specifiek afkomstig is van melanineradicalen en vertegenwoordigt een selectiviteit van de negatieve controlevalidatiemethode (Figuur 2).
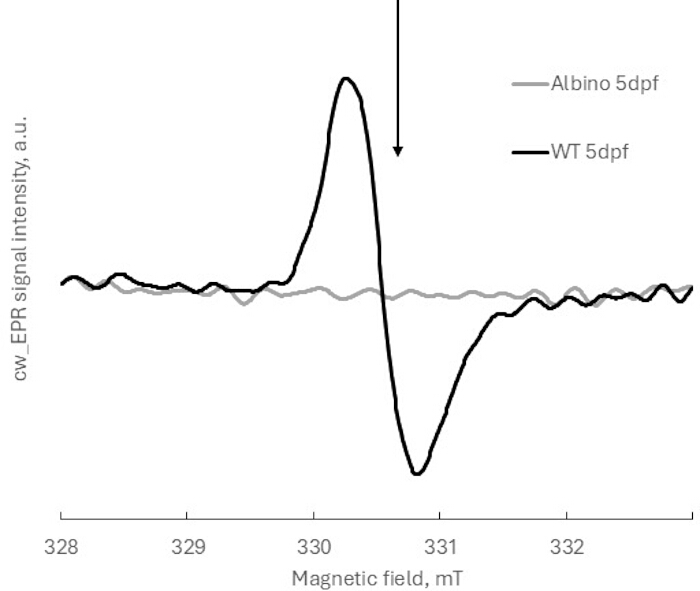
Figuur 2: Representatieve X-band elektron paramagnetische resonantiespectra van wildtype (WT) en albino zebravisembryo's bij 5dpf. De pijl geeft de resonantiepositie (g ≈ 2,003) aan van het melanine-geassocieerde radicaalsignaal van 5dpf WT zebravisembryo's. Klik hier om een grotere versie van deze figuur te bekijken.
De methode maakt kwantitatieve monitoring van de vorming van melanineradicaal tijdens de ontwikkeling mogelijk. Naarmate de pigmentatie vordert, wordt een duidelijke toename van de intensiteit van het elektronparamagnetische resonantiesignaal waargenomen. De vergelijking van WT-embryo's van 2 dpf naar 5 dpf toont een aanzienlijke toename in het dubbel-geïntegreerde elektronparamagnetische resonantiesignaal dat per embryo is genormaliseerd. De normalisatie werd uitgevoerd door de ruwe elektronenparamagnetische resonantiesignaalintensiteiten te delen door het aantal embryo's in het monster voordat de dubbele integraal werd berekend (Figuur 3A).
Statistische analyse werd uitgevoerd met behulp van de Kruskal–Wallis-test, gevolgd door Dunns meervoudige vergelijkingstest. Analyse van zes onafhankelijke biologische replicaten (elk bestaande uit 7–10 embryo's) toonde statistisch significante verschillen aan in het genormaliseerde elektronparamagnetische resonantiesignaal tussen ontwikkelingsstadia (p < 0,05), waarmee de gevoeligheid van de methode werd bevestigd.
De dubbele integraal van de elektronparamagnetische resonantiespectra is evenredig aan het aantal ongepaarde elektronspins. De toename ervan duidt dus op een toename van de populatie van melanine-geassocieerde radicalen tijdens de ontwikkeling. Belangrijk is dat deze toename waarschijnlijk veranderingen in het evenwicht van melanine-redox weerspiegelt die geassocieerd worden met progressieve melanogenese, en niet alleen pigmentophoping.
De reproduceerbaarheid van het protocol werd verder geëvalueerd door het vergelijken van representatieve elektronparamagnetische resonantiespectra verkregen uit monsters met verschillende aantallen embryo's (7 versus 10) in dezelfde ontwikkelingsfase (5 dpf). Zoals verwacht toonden ruwe spectra verschillen in signaalamplitude evenredig aan de steekproefgrootte (Figuur 3B). Na normalisatie van elk spectrum op het aantal embryo's per monster, overlappen de spectra bijna volledig (Figuur 3C), en bleef de variabiliteit tussen de batches onder de 10%. Deze resultaten benadrukken het belang van normalisatie per embryo en bevestigen de robuustheid van de methode voor vergelijkende studies.
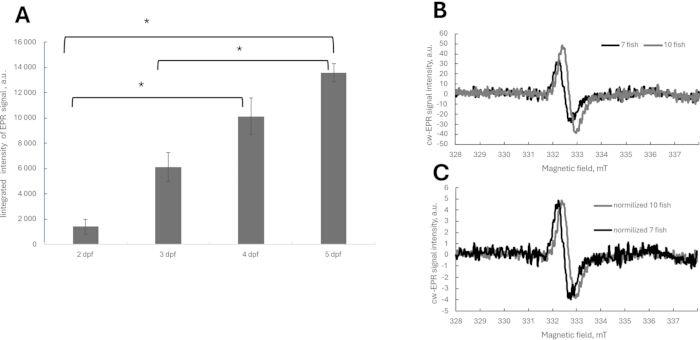
Figuur 3: Kwantitatieve monitoring van ontwikkelings-melanine-geassocieerde radicale dynamiek en normalisatie van elektronparamagnetische resonantiespectra. (A) Dubbel-geïntegreerd X-band elektron paramagnetisch resonantiesignaal verkregen van wildtype (WT) zebravisembryo's 2, 3, 4 en 5 dagen na bevruchting (dpf). De signaalintensiteit werd genormaliseerd naar het aantal embryo's per monster. De gegevens vertegenwoordigen het gemiddelde ± SD van zes onafhankelijke biologische replicaten, elk bestaande uit 7–10 embryo's. Statistisch significante verschillen - *p < 0,05. (B) Representatieve ruwe elektronenparamagnetische resonantiespectra verkregen van 5 dpf WT-embryo's met monsters die 7 en 10 embryo's bevatten. De signaalamplitude neemt evenredig toe met het aantal embryo's in het monster. (C) Dezelfde elektronparamagnetische resonantiespectra die in paneel B na normalisatie worden getoond, d.w.z. de ruwe spectrale intensiteiten worden gedeeld door het aantal embryo's in de capillaire. Klik hier om een grotere versie van deze figuur te bekijken.
Om te beoordelen of het protocol afhankelijk is van de aangepaste vlakke capillaire die wordt gebruikt voor in vivo zebravismetingen, werd melanine-geassocieerde radicale detectie uitgevoerd met zowel de aangepaste vlakke capillaire als een standaard commercieel verkrijgbare capillaire voor ex vivo analyse. Representatieve elektronparamagnetische resonantiespectra verkregen met beide monsterhouders toonden zeer vergelijkbare lijnvorm en resonantiepositie (Figuur 4A), wat aangeeft dat betrouwbare detectie van melanine-geassocieerde radicalen niet beperkt is tot het aangepaste capillaire ontwerp. Signalen van de vlakke haarvaten, na normalisatie per embryo, waren twee keer lager dan die van de standaardcapillair.
Om de flexibiliteit van het monsterbeheer verder te beoordelen, werden zebravisembryo's direct na het verzamelen en na het invriezen gemeten, gevolgd door ex vivo analyse met standaard capillairen. Er werden geen statistisch significante verschillen waargenomen tussen verse en ingevroren monsters over zes onafhankelijke biologische replicaten (Figuur 4B). Deze resultaten tonen aan dat het protocol kan worden aangepast aan algemeen beschikbare houders van elektronparamagnetische resonantiemonsters en vertraagde ex vivo analyse ondersteunt, wat de toegankelijkheid, flexibiliteit en reproduceerbaarheid van de methode aanzienlijk verhoogt in laboratoria met verschillende elektronparamagnetische resonantiespectrometers.
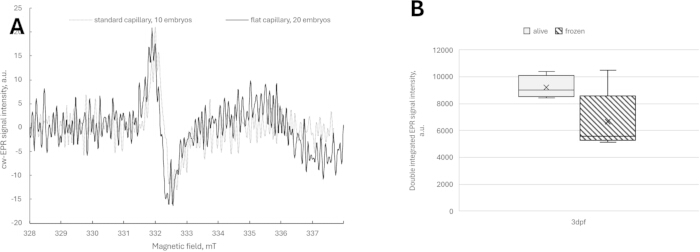
Figuur 4: Compatibiliteit van het protocol. (A) Ruwe elektronparamagnetische resonantiespectra gemeten in standaard en vlakke haarvaten van 2dpf WT zebravissen. (B) Vergelijking van dezelfde biologische replicaten (3 dpf WT zebravis) gemeten levend en bevroren in standaard haarvaten. Klik hier om een grotere versie van deze figuur te bekijken.
Om te bepalen of het gedetecteerde elektronparamagnetische resonantiesignaal direct kon worden toegeschreven aan melanoom-afgeleide melanineradicalen, werden albino zebravisembryo's gebruikt als melaninevrije achtergrond en geïnjecteerd met B16F10-melanoomcellen. Elektronenparamagnetische resonantiemetingen werden uitgevoerd 4 dagen na bevruchting (dpf) onder dezelfde acquisitieomstandigheden als voor wildtype-embryo's. Zoals verwacht vertoonden niet-geïnjecteerde albino-embryo's geen detecteerbaar elektronenparamagnetisch resonantiesignaal in het melanine-specifieke spectrale gebied. Belangrijk is dat er geen detecteerbaar melanine-geassocieerd elektronenparamagnetisch resonantiesignaal werd waargenomen in albino-embryo's met geïnjecteerde B16F10-cellen (Figuur 5A), ondanks succesvolle cel-engraftement bevestigd door heldere microscopie (Figuur 5B).
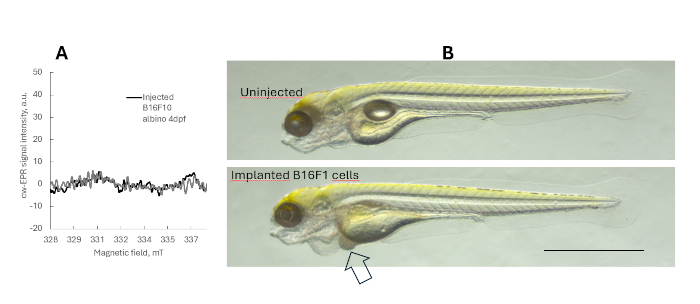
Figuur 5: Evaluatie van directe melanoom-afgeleide melanine-geassocieerde radicale detectie in albino zebravissen B16F10 xenografts. (A) Melanine-geassocieerd elektron paramagnetisch resonantiesignaal in 4df albino en albino B16F10 xenograftmetingen, gemeten met een X-band elektron paramagnetische resonantiespectrometer. Drie biologische replicaten van elk 10 embryo's werden gebruikt. (B) Brightfield-beeld van 4 dpf albino en albino xenograft met B16F10 drie dagen na de implantatie van kankercellen. Klik hier om een grotere versie van deze figuur te bekijken.
Deze resultaten geven aan dat onder de huidige experimentele omstandigheden het aantal geïnjecteerde melanoomcellen onder de directe detectiedrempel van X-band elektronenparamagnetische resonantie ligt. Daarom weerspiegelt het melanine-geassocieerde signaal dat in metingen van het hele organisme wordt gedetecteerd voornamelijk globale veranderingen in de melanine-redoxstatus van het zebravisembryo/larve, in plaats van een melanoomspecifiek signaal dat uitsluitend afkomstig is van de xenograft.
In xenograft-experimenten was de efficiëntie van melanoomcel-engraftement en groei sterk afhankelijk van de injectieplaats. Injectie in de circulatie (bloedbaan) resulteerde in een consistentere tumorontwikkeling en maakte betrouwbare detectie van elektronparamagnetische resonantiesignalen mogelijk die geassocieerd is met melanoomcellen. Daarentegen leidde injectie in de dooierzak tot een belemmerde embryoontwikkeling en slechte tumorgroei, wat resulteerde in zwakke of inconsistente signalen. Daarom wordt injectie in de bloedbaan aanbevolen om robuuste en interpreteerbare resultaten te verkrijgen (Figuur 6).
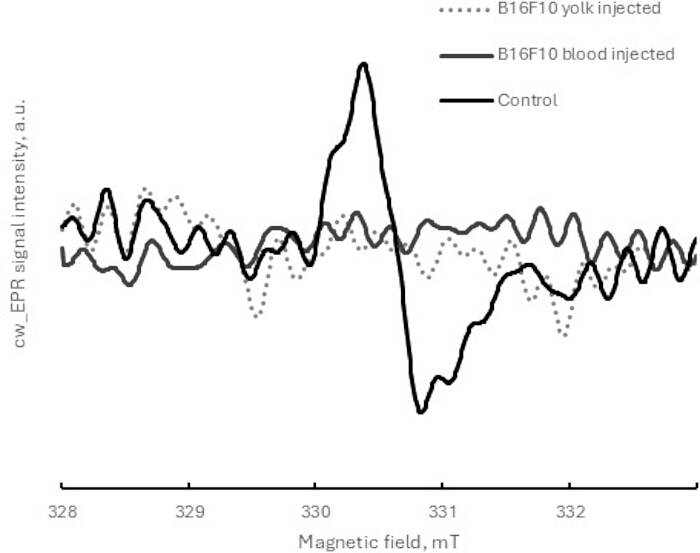
Figuur 6: Effect van melanoomcelinjectieplaats op de ontwikkeling van 2 dpf zebravisembryo's en xenograft, gemeten met X-band elektronparamagnetische resonantie. Representatieve elektronenparamagnetische resonantiespectra van zebravisembryo's geïnjecteerd met B16F10-melanoomcellen in de dooierzak of circulatie. Klik hier om een grotere versie van deze figuur te bekijken.
Om de toepasbaarheid van de methode in melanoommodellen verder aan te tonen, vergeleken we het elektronparamagnetische resonantiesignaal verkregen van wildtype (WT) zebravisembryo's en WT-embryo's die met B16F10-melanoomcellen werden geïnjecteerd over verschillende ontwikkelingstijden.
In WT-embryo's nam het elektronenparamagnetische resonantiesignaal geleidelijk toe, wat de natuurlijke ophoping van eumelanine tijdens de ontwikkeling weerspiegelt. Daarentegen vertoonden embryo's met B16F10 xenografts veranderde signaaldynamiek, met een gemodificeerd elektronenparamagnetisch resonantiesignaal vergeleken met WT op overeenkomstige tijdstippen (Figuur 7). Deze verschillen zijn waarschijnlijk te wijten aan tumor-geïnduceerde modulatie van de gastheer melanogenese en systemische redoxcondities, in plaats van directe detectie van melanoom-afgeleide melanineradicalen alleen. Omdat B16F10-cellen voornamelijk eumelanine produceren, werd er geen fenomelaninesignaal gedetecteerd.
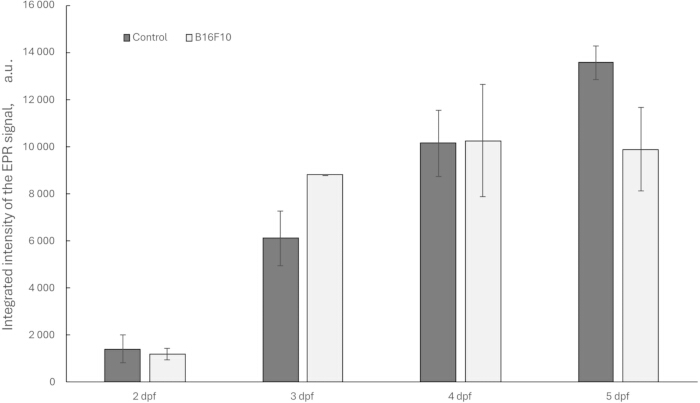
Figuur 7: Representatieve vergelijking van EPR-signaaldynamiek van het hele organisme in controle-WT en WT B16F10-dragende zebravisembryo's. Dubbel-geïntegreerd X-band elektron paramagnetisch resonantiesignaal verkregen van controle-wildtype (WT) zebravissen en WT B16F10 xenografts embryo's 2, 3, 4 en 5 dagen na bevruchting (dpf). De signaalintensiteit werd genormaliseerd naar het aantal embryo's per monster. De gegevens vertegenwoordigen gemiddelde ± SD van zes onafhankelijke biologische replicaten (voor controle) en drie voor B16F10 xenografts, elk bestaande uit 7–10 embryo's. Klik hier om een grotere versie van deze figuur te bekijken.
Over het algemeen wordt de succesvolle implementatie van dit protocol aangeduid door: (i) detectie van een duidelijk enkellijns elektronparamagnetisch resonantiesignaal bij g ≈ 2 in gepigmenteerde embryo's, (ii) afwezigheid van signaal bij albino-controles, (iii) toename van signaalintensiteit in ontwikkelingsfase, en (iv) reproduceerbaarheid over biologische replicaten na normalisatie.
Discussie
Deze studie presenteert een robuust en gevoelig protocol voor in vivo detectie van melanine-geassocieerde radicalen in zebravisembryo's met behulp van X-band elektronenparamagnetische resonantiespectroscopie. De methode maakt niet-invasieve monitoring zonder label mogelijk van melanine-geassocieerde redoxveranderingen tijdens fysiologische melanogenese, de ontwikkeling van melanoom-xenograft en farmacologische interventie. Door de hoge gevoeligheid van X-band elektronenparamagnetische resonantiespectroscopie te combineren met het zebravis-xenograftplatform, strekt deze aanpak de analytische mogelijkheden van huidige zebravismelanoommodellen uit voorbij conventionele morfologische beeldvorming naar directe biochemische karakterisering van redoxactieve melaninesoorten. In tegenstelling tot fluorescentie-gebaseerde beeldvorming, die voornamelijk structurele en ruimtelijke informatie levert, detecteert elektronenparamagnetische resonantiespectroscopie direct stabiele paramagnetische semichinonradicalen, wat complementaire functionele inzichten biedt in de melanine-redoxbiologie.
De gepresenteerde workflow is breed toepasbaar in onderzoek naar pigmentatie en melanoom. Potentiële toepassingen omvatten evaluatie van anti-melanoomtherapieën, onderzoek naar door medicijnen veroorzaakte veranderingen in de redoxbalans, beoordeling van melanogenesemodulerende verbindingen zoals depigmenterende of UV-responsmiddelen, en analyse van tumor-gastheerinteracties in vivo. Bovendien kan integratie met fluorescentiebeeldvorming en andere fenotypische assays een multimodaal platform bieden dat ruimtelijke, morfologische en biochemische informatie combineert, waardoor de voorspellende waarde van zebravismodellen in preklinisch onderzoek en therapeutische ontwikkeling wordt versterkt.
Verschillende experimentele parameters zijn cruciaal voor het verkrijgen van betrouwbare resultaten. In xenograft-experimenten leverde injectie in de circulatie consistentere engraftment- en reproduceerbare elektronparamagnetische resonantiemetingen op dan injectie in de dooierzak, wat overeenkomt met eerdere studies29,30. De keuze van de incubatietemperatuur speelt een belangrijke rol. Hoewel zebravis-xenografts doorgaans op 32 °C worden gehouden om de kinetiek van zoogdiercellente bevorderen 31, lijken de muisachtige B16F10-melanoomlijnen die in deze studie zijn gebruikt voldoende agressief om robuuste proliferatieve en migratiecapaciteiten bij 28 °C aan te tonen. Omdat een omgeving van 32 °C de ontwikkeling van zebravissen aanzienlijk kan versnellen—wat mogelijk leidt tot onafhankelijk voedergedrag vóór de vijfde dag na bevruchting—zou het houden van de larven op 28 °C ervoor zorgen dat de organismen binnen niet-beschermde ontwikkelingsstadia32 blijven. Daardoor kan deze temperatuurkeuze het mogelijk maken om tumorprogressie en metastasen succesvol te observeren, terwijl men voldoet aan dierenwelzijnsvoorschriften die larven beschermen zodra ze de onafhankelijke voedingsfase bereiken. Een ander cruciaal punt is dat nauwkeurige normalisatie van het aantal embryo's en consistente ontwikkelingsstadiering essentieel zijn om biologische variabiliteit te minimaliseren. Zwakke of inconsistente signalen kunnen het gevolg zijn van onvoldoende pigmentatie, een lage tumorbelasting, suboptimale plaatsing van het monster binnen de resonator of onvolledige capillaire vulling. In dergelijke gevallen kan het verhogen van het aantal embryo's per monster, het optimaliseren van de transplantatie-efficiëntie en het verifiëren van de plaatsing van het monster binnen het volume van de actieve resonator de signaaldetectie verbeteren. Voor in vivo metingen in vivo in een vlakke capillaire is een hoger aantal embryo's nodig vanwege diëlektrische verliezen en een verminderde vulfactor die samenhangt met metingen van het hele organisme in waterige biologische monsters. Toch kon deze methode worden toegepast met standaard haarvaten ex vivo. Deze bevindingen tonen aan dat het protocol compatibel is met algemeen beschikbare X-band elektronenparamagnetische resonantiespectroscopieconfiguraties en vertraagde ex vivo analyse ondersteunt, wat de toegankelijkheid en reproduceerbaarheid tussen laboratoria met verschillende instrumentatie vergroot.
Ondanks de voordelen kent de methode verschillende beperkingen. Een belangrijke biologische overweging is dat het gedetecteerde elektronparamagnetische resonantiesignaal de redox-actieve fractie van het melaninepolymeer weerspiegelt in plaats van alleen het totale pigmentgehalte 15,21,33. Dus moeten veranderingen in de intensiteit van het elektronparamagnetische resonantiesignaal worden geïnterpreteerd als veranderingen in het melanine-geassocieerde redoxevenwicht, en niet als een directe vervanging van melanine-abundantie. De albino-xenograft-experimenten toonden verder aan dat onder de huidige experimentele omstandigheden het aantal geïnjecteerde melanoomcellen onder de directe detectiedrempel van X-band elektronenparamagnetische resonantiespectroscopie bleef. Daarom weerspiegelt het signaal voor het hele organisme dat in xenograft-dragende larven wordt gedetecteerd voornamelijk globale veranderingen in de gastheer-melanine-geassocieerde redoxstatus, veroorzaakt door tumor-host interacties, in plaats van melanoom-specifiek signaal dat uitsluitend afkomstig is van de xenograft. Belangrijk is dat de zebravismicro-omgeving dynamische zuurstofgradiënten, metabole interacties en oxidatieve stresscondities introduceert die ook melanineradicaalpopulaties in vivo kunnen moduleren 19,20. In xenografttoepassingen is de methode momenteel beperkt tot hooggepigmenteerde melanoommodellen, omdat voldoende melanineconcentratie vereist is voor betrouwbare signaaldetectie. Amelanotische of zwak gepigmenteerde tumoren produceren mogelijk geen detecteerbare signalen27. Daarnaast produceren de melanoomcellijnen die in deze studie werden gebruikt (B16F10) voornamelijk eumelanine, wat resulteert in een enkele elektronparamagnetische resonantielijn. In modellen met significante foomelaninebijdrage kan spectrale overlap optreden13. In zulke gevallen zou geavanceerde spectrale simulatie en deconvolutie nodig zijn om het verschil te maken tussen eumelanine- en feomalaninesignalen.
Desalniettemin biedt de gepresenteerde workflow brede mogelijkheden voor het bestuderen van melanoombiologie, door medicijnen geïnduceerde modulatie van melanogenese, oxidatieve stress en tumor-gastheerinteracties in vivo. De integratie van elektronenparamagnetische resonantiespectroscopie met fluorescentiebeeldvorming, genetische reporters en andere fenotypische assays kan de voorspellende waarde van zebravismodellen in preklinisch melanoomonderzoek en therapeutische ontwikkeling verder vergroten.
Openbaarmakingen
Auteur Mikołaj Baranowski werkt bij Novilet, dat componenten produceert van de spectrometer die in deze studie wordt gebruikt (multiharmonische analyzer). De overige auteurs verklaren geen concurrerende belangen.
Dankbetuigingen
Het "Een nieuwe capillaire en een methode voor het bepalen van het melanineradicaal voor gebruik in preklinische studies van potentiële geneesmiddelen voor melanoom in het Danio rerio embryomodel" FENG.02.07-IP.05-0059/23 project werd uitgevoerd binnen het FENG POC-programma van de Foundation for Polish Science, mede gefinancierd door de Europese Unie onder de European Funds for Smart Economy 2021–2027 (FENG). Dit onderzoek werd ondersteund door de Europese Unie onder het Smart Growth Operation Program (projectnummer POIR.01.02.00-00-0077/18).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1.5 mL of 0.5 mL eppendorf buisjes | Eppendorf | 0030120086, 0030121023 | Voor het overbrengen van zebravis larven naar capillair |
| 3 mL wegwerp Pasteur pipetten | Medlab Products | 76-1303-2 | Voor het sorteren en overbrengen van embryo's en larven |
| Benchtop X-band EPR spectrometer MiniScope MS200 | Magnettech | Bruker.com | EPR spectra registratie |
| Calcium chloride, dihydraat | Chempur | 363-118748706 | Om E3 medium te bereiden |
| Celtelling slides (bijv. EVE of EVE PLUS) | Nanoentek Inc | NC2200445 | Voor celteller |
| CellTracker Green | Thermo Fisher | C2925 | Fluorescente celtracker kleurstof, voor cellabeling |
| CM-DiI | Thermo Fisher | C7000 | Fluorescente celtracker kleurstof, voor cellabeling |
| CO2 incubator ICO240med | Memmert | N/A | Voor celonderhoud, ingesteld op 37°C, 5% CO2, ≥95% vochtigheid |
| Countess II Geautomatiseerde Celteller | Invitrogen | AMQAX1000 | Om cellen en celdichtheid te tellen |
| Cryogene opslagboxen CryoKING | Biologix | BGX-ID81 | Voor opslag van zebravissen met xenografts |
| Cryopreserveringsmedium CM-1 | Cytion | #800150 | Om kankercellen te bevriezen |
| Dulbecco's Modified Eagle Medium (DMEM), hoge glucose, glutamine, zonder natriumpyrovaat | Gibco | #11965-092 | Voor celcultuur onderhoud |
| E3 medium | In house | N/A | Voor het houden van zebravis embryo's/larven, bereid volgens Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| Eieren incubator | Incubato | 10130024 | Voor het incuberen van zebravis embryo/larven, ingesteld op 28–32°C |
| eSpect+ software | Novilet | https://novilet.eu/products/espect/ | Voor multiharmonische analyzator |
| Fetaal Rundserum (FBS) | Gibco | A5256701 | Supplement voor DMEM |
| Fijne pincetten, keramisch gecoat, Dumont #5, 11 cm | Dumont SA | 11252-50 | Voor dechorionation van zebravis embryo's |
| Vlakke glazen capillairen ontworpen voor zebravissen (Toepassing nr.: 21 736) | N/A | N/A | Voor EPR metingen van zebravis embryo's |
| Glazen capillaire naalden | Harvard Apparatus | GB100-10 | Zonder filament, voor microinjecties |
| Hematocriet capillairen (BRAND wegwerp BLAUBRAND micropipetten), volume 50 en 100 μL | BRAND | 41121500 | Voor EPR metingen of voor het overbrengen van zebravis larven in vlakke capillair |
| Magnesium chloride, hexahydraat | Chempur | 363-116120500 | Om E3 medium te bereiden |
| Microinjectiesysteem met micromanipulator FemtoJet | Eppendorf | EPE5252000021 | Om cellen in micronaalden te laden |
| Microloader tips voor naaldbelasting | Eppendorf | #5242956003 | Voor microinjectiesysteem |
| Muis melanoomcel lijn B16-F1 | Cytion | CLS-400122 | Voor xenografts |
| Muis melanoomcel lijn B16-F10 | Cytion | 305157 | Voor xenografts |
| Multiharmonische analyzator eSpect+ | Novilet | https://novilet.eu/products/espect/ | Voor EPR spectrometer, om gevoeligheid te verhogen |
| Penicilline-Streptomycine oplossing | Sigma | P0781-50ml | Optioneel, supplement voor DMEM voor celcultuur |
| Petrischaal, 55 mm | Medlab Products | 51-0056-0A-NX | Voor incubatie van zebravis eieren, embryo's en larven |
| Fosfaat Buffered Saline (PBS), calcium en magnesium vrij | Sigma | D8537-500ml | Voor het spoelen van cellen |
| Kaliumchloride | Chempur | 363-117397402 | Om E3 medium te bereiden |
| Afdichtingskit voor hematocriet capillairen - Critoseal | Noxygen | NOX-A.3-VPC | Voor EPR metingen van zebravis embryo's |
| Natriumchloride | Chempur | 363-117941206 | Om E3 medium te bereiden |
| Statische Opslag Vloeibare Stikstof Container | Biobase | YDS-47-127-FS | Voor het bankieren van celculturen |
| Stereomicroscoop | Optatech | SK Series | Voor beoordeling van de ontwikkeling van zebravis embryo's |
| Steriele 15 mL Falcon tubes | SPL Life Sciences | S50015 | Voor celoogst (centrifugeren) |
| Steriele 90 nm Petri schotels | Googlab Scientific | GP508 | Voor celculturen |
| Steriele cryovialen: CryoPure Tube 1.0 mL | Sarstedt | 72.377 | Om cellen te bevriezen |
| Weefselcultuur steriele Pasteur pipetten (Corning Falcon Serologische Pipetten), volume 5, 10, 25 mL | Corning | 357543, 356551, 356535 | Voor celculturen |
| Tricaine (MS-222) | Sigma | 886-86-2 | Verse bereide 4 g/L oplossing, voor zebravis anesthesie en euthanasie |
| TrypLE Express (1×) of Trypsin-EDTA (0.05%) | Gibco | #12605-010 | Voor celdetachering tijdens passageren |
| Waterbad Precision GP 05 | Thermo Scientific | N/A | Ingesteld op |
Referenties
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Herprints en machtigingen
Meer artikelen verkennen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar