Dit protocol beschrijft de laboratoriumvoorbereiding van Ni-NTA lipide monolaag affiniteitsroosters voor cryogene elektronenmicroscopie (cryo-EM). Deze transmissie-elektronenmicroscopie (TEM) roosteroppervlaktemodificatie vangt selectief oplosbare, polyhistidine-gelabelde eiwitcomplexen op, waardoor de structurele bepaling wordt verbeterd door verdunde monsters te concentreren en deeltjes weg te binden van de lucht-watergrens.
Methodenartikel
Gedetailleerde voorbereiding van Ni-NTA lipide monolaag affiniteitsroosters voor cryo-EM structurele analyse van oplosbare polyhistidine-gelabelde eiwitcomplexen
In dit artikel
Samenvatting
Samenvatting
Cryo-monsterpreparaat blijft een grote technische uitdaging voor de hoogresolutie structurele bepaling van eiwitcomplexen. Interacties op het lucht-water-grensvlak kunnen eiwitdenaturatie of voorkeursoriëntatie induceren, waardoor de haalbare resolutie wordt beperkt. Daarnaast vertonen verdunde monsters of doelen met lage abundantie vaak een onvoldoende deeltjesdichtheid, wat de efficiënte gegevensverzameling belemmert. Lipide-gebaseerde affiniteitsroosters bieden een effectieve strategie om deze beperkingen aan te pakken. Dit artikel presenteert een stapsgewijs protocol voor het voorbereiden van Ni-NTA lipide monolaag affiniteitsroosters voor de structurele analyse van oplosbare polyhistidine-getagde eiwitcomplexen. De belangrijkste fasen van het protocol omvatten het bereiden van een lipidemengsel, het gieten van het lipidmengsel op het oppervlak van een reservoirbuffer, het overbrengen van de resulterende lipidemonolaag op TEM-roosters, optioneel het drogen en opslaan van de lipidenroosters tot 1 week, en het cryo-dompelen van de lipidenroosters met het monster. Succesvolle implementatie van dit protocol levert cryo-roosters op met een enkele laag goed verspreide deeltjes met een verbeterde deeltjesdichtheid ten opzichte van roosters die zonder lipidenmonolaag zijn voorbereid. De procedure kan binnen enkele uren worden uitgevoerd in een laboratorium dat is uitgerust met een cryo-zuiger, een chemische dampkap en standaardgereedschappen die vaak worden gebruikt voor cryo-monstervoorbereiding. Door gedetailleerde schriftelijke instructies te combineren met videodemonstraties, is dit werk bedoeld om de toegankelijkheid, reproduceerbaarheid en bredere adoptie van Ni-NTA lipide monolaag affiniteitsroosters binnen de cryo-EM-gemeenschap te verbeteren.
Inleiding
Experimentele technieken voor het bepalen van eiwitstructuur, waaronder röntgenkristallografie, kernmagnetische resonantie (NMR) en cryogene elektronenmicroscopie (cryo-EM), zijn allemaal afhankelijk van zorgvuldige monstervoorbereiding. Bij single-particle analysis (SPA) cryo-EM is de kwaliteit van het monster vaak de belangrijkste factor die de resolutie van de uiteindelijke reconstructie beperkt. Naarmate technologische vooruitgang in cryotransmissie-elektronenmicroscopen (cryo-TEM's) en directe elektronendetectoren de efficiëntie en bereikbare resolutie van gegevens blijven verbeteren, verschuift de belangrijkste uitdaging in high-resolution cryo-EM steeds meer van beeldverwerving naar monstervoorbereiding en kwaliteit 1,2,3,4,5,6,7.
Traditionele cryo-grid voorbereiding houdt doorgaans in dat enkele microliters monster worden aangebracht op het oppervlak van een transmissie-elektronenmicroscopie (TEM) rooster, het rooster met filterpapier deppen en het snel in een cryogeen wordt gedompeld, meestal vloeibaar ethaan of een propaan-ethaan mengsel. Idealiter bevat het resulterende cryo-rooster dun glasvochtig ijs met monodispergeerde deeltjes. In de praktijk is het bereiken van dit resultaat vaak moeilijk en kan het meerdere optimalisatierondes vereisen om roosters te genereren die geschikt zijn voor structurele bepaling met hoge resolutie. Veelvoorkomende problemen zijn eiwitdenaturatie bij de lucht-watergrens (AWI)8,9, voorkeursoriëntatie10 en lage deeltjesdichtheid binnen de ijslaag 11,12. De laatste uitdaging is vooral belangrijk voor eiwitcomplexen die zeer dynamisch, kortlevend of moeilijk te isoleren zijn bij micromolaire concentraties. Er zijn verschillende strategieën ontwikkeld om deze beperkingen aan te pakken, waaronder grafeenoxide13 continue ultradunne koolstof14 en met streptavidine gecoate nanokorrels voor het vangen van biotinyleerde doelen15.
Een alternatieve aanpak is het modificeren van TEM-roosters met affiniteitsoppervlakken die zijn ontworpen om doelmoleculen selectief te binden. Deze affiniteitsroosters kunnen deeltjes concentreren op het roosteroppervlak terwijl ze de blootstelling aan de AWI verminderen, waardoor de deeltjesverdeling verbetert en de structurele integriteit behouden blijft. Daarnaast kan het concentratie-effect macromoleculaire complexen met lage abundantie verrijken uit verdunde of heterogene monsters.
In het afgelopen decennium zijn verschillende affiniteitsgridstrategieën ontwikkeld voor SPA cryo-EM. Deze benaderingen kunnen worden gecategoriseerd door TEM-grid-surface modificatie en de bijbehorende functionalisatiestrategie. Veelgebruikte oppervlakken zijn onder andere ultradunne amorfe koolstof14 grafeen of grafeenoxide 13,16 lipide monolagen of lipide nanobuisjes 17,18 en tweedimensionale streptavidinekristallen gegroeid op lipide monolagen 19,20. Onder deze benaderingen zijn tweedimensionale streptavidine-affiniteitsroosters bijzonder succesvol gebleken in het mogelijk maken van hoogresolutie eiwitstructuurbepaling 21,22,23,24,25,26,27,28,29 . Gerelateerde methodologieën omvatten het gebruik van monodispergeerde enkeldeeltjesstreptavidine gebonden aan lipidenmonolagen, die recentelijk is toegepast om de structuur van het mini-chromosoomonderhoudscomplex gebonden aan dubbelstrengs DNA (dsDNA)30 te bepalen.
Ondanks deze vooruitgang blijven toegankelijke en reproduceerbare methoden voor affiniteitsroostervoorbereiding beperkt. Elke techniek heeft unieke monstervereisten voor selectieve doelbinding, en geen enkele is commercieel verkrijgbaar, wat gespecialiseerde fabricageprotocollen en chemische modificaties vereist. Deze extra stappen kunnen de technische complexiteit van SPA cryo-EM-workflows aanzienlijk vergroten. Daarom presenteert dit artikel een gedetailleerd, stapsgewijs protocol dat bedoeld is om de voorbereiding van de hier beschreven affiniteitsgridtechnologie te vergemakkelijken. Het Ni-NTA lipide monolaag affiniteitsroosterprotocol is routinematig geïmplementeerd vóór17 en kan gemakkelijk worden toegepast voor cryo-EM structurele studies van oplosbare, polyhistidine-gelabelde eiwitcomplexen met een breed molecuulgewicht bereik (97–470 kDa) (Figuur 1). De methode is compatibel met eiwitconcentraties variërend van 0,05 tot 0,2 mg/mL in detergentvrije buffers.
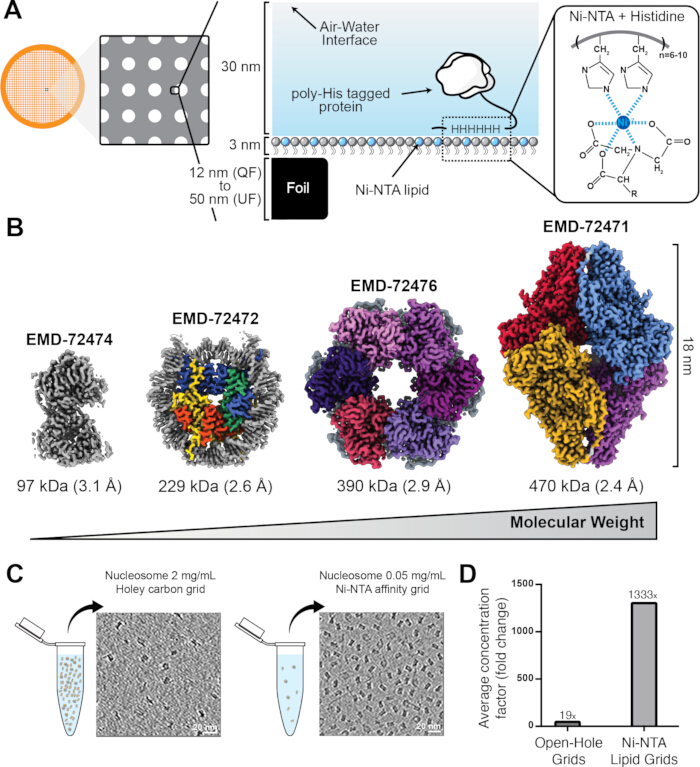
Figuur 1: Overzicht van het ontwerp van het Ni-NTA lipidenaffiniteitsrooster. (A) Schema van een 20% Ni-NTA lipide cryo-rooster. Het cryo-rooster wordt links getoond, met een dwarsdoorsnede van de lipidenmonolaag die de afmetingen van de koolstoffilm, lipidenmonolaag, glasvochtijs en aanhechtende deeltjes (midden) illustreert. De interactie tussen histidinezijketens en Ni-NTA-lipide wordt rechts weergegeven. (B) Voorbeelden van polyhistidine-gelabelde eiwitten opgelost met behulp van lipidenaffiniteitsroosters. Kaarten worden op schaal getekend ten opzichte van elkaar, met molecuulgewicht, grootte, resolutie en EMDB-toegangsnummer aangegeven. (C) Representatieve tomografische plakjes van polyhistidine-getagde nucleosomen, bereid met niet-lipide cryo-roosters bij 2 mg/mL (rechts) en Ni-NTA lipide affiniteits-cryo-roosters bij 0,05 mg/mL (links). (D) Gemiddelde concentratiefactor van niet-lipide cryo-roosters vergeleken met Ni-NTA lipide affiniteit cryo-roosters, waarmee het vermogen van de lipidefilm aantoont om polyhistidine-gelabelde eiwitten weg van de lucht-watergrens (AWI) te concentreren. Delen van deze figuur zijn aangepast uit de Figuren 1A, B en 2A, B in Skrajna et al.17 met toestemming van Elsevier. Klik hier om een grotere versie van deze figuur te bekijken.
Protocol
Deze studie betrof geen menselijke deelnemers, klinische gegevens of levende dieren. De reagentia en de gebruikte apparatuur worden vermeld in de Materiaaltabel.
OPMERKING: DOPC verwijst naar 18:1 (Δ9-cis) PC. Ni-NTA-lipide verwijst naar 18:1 DGS-NTA(Ni). Laag-zoutbuffer verwijst naar 10 mM HEPES (pH 7,4) met 50 mM NaCl. Verdunningsbuffer verwijst naar 20 mM HEPES (pH 7,4) met 150 mM NaCl.
1. Herbruikbaar glaswerk wassen (~30 min)
- Verzamel twee kleine petrischaaltjes, twee kleine petrischaaldeksels, één 25 ml volumetrische fles met een stop en één 1 ml volumetrische fles met een stop. Leg de spullen bij de gootsteen.
- Los een anionisch tensidpoeder op in warm kraanwater in een plastic bak van 11,4 liter.
- Dompel het glaswerk voorzichtig onder in de oppervlakteactieve oplossing.
- Schrob alle toegankelijke glasplaten met een labborstel terwijl je nitrilhandschoenen draagt. Spoel grondig af met ultrazuiver water.
- Verwijder het resterende water door voorzichtig op het glas op keukenpapier te tikken.
- Droog het glaswerk met een föhn totdat er geen zichtbaar vocht meer over is.
OPMERKING: Bewaar gewassen glaswerk in een schone, stofvrije omgeving.
2. Lipiden in evenwicht brengen tot kamertemperatuur (1–4 uur)
OPMERKING: Als lipidenvoorraden eerder zijn voorbereid, sla dan dit gedeelte over.
- Plaats één afgesloten ampul van 25 mg DOPC-poeder en één afgesloten ampul van 1 mg Ni-NTA lipidepoeder in een chemische dampkap.
- Breng de lipiden minstens 1 uur in evenwicht tot kamertemperatuur.
3. Het opzetten van het oplosmiddelreinigingsstation (~10 min)
VOORZICHTIG: Chloroform is een gevaarlijke en vluchtige vloeistof die werkt als een depressant middel voor het centrale zenuwstelsel en als irritant voor huid, ogen en ademhalings. Voer alle stappen uit waarbij meer dan 100 μL chloroform in een chemische dampkap wordt gebruikt, terwijl je passende persoonlijke beschermingsmiddelen (PBM) draagt, waaronder handschoenen, een labjas en oogbescherming. Verwijder en gooi besmette nitrilhandschoenen binnen 1 minuut na blootstelling weg, omdat chloroform snel nitril binnendringt. Combineer geen chloroformafval met andere chemische afvalstromen.
- Verzamel 99,8% chloroform, één chloroformfles met deksel, 99,5% ethanol, één ethanolafvalfles met deksel, één pot voor scherpe stoffen, twee kleine petrischaaltjes, twee kleine petrischaaldeksels, één grote petrischaal met grade 1 filterpapier, drie of meer zelfsluitende folie van 1–2 cmen papieren handdoeken. Rangschik alle materialen in de chemische dampkap (Figuur 2).
- Spoel de petrischaaltjes af met 20–30 ml chloroform. Gooi de spoeling in de juiste afvalfles. Herhaal met ethanol. Laat de borden aan de lucht drogen.
- Vul één klein petrischaaltje met chloroform en het andere met ethanol. Dek beide schalen af om verdamping te minimaliseren.
- Vul de petrischaaltjes tijdens het experiment bij, vooral wanneer de chloroform zichtbaar troebel wordt door verontreinigingen.
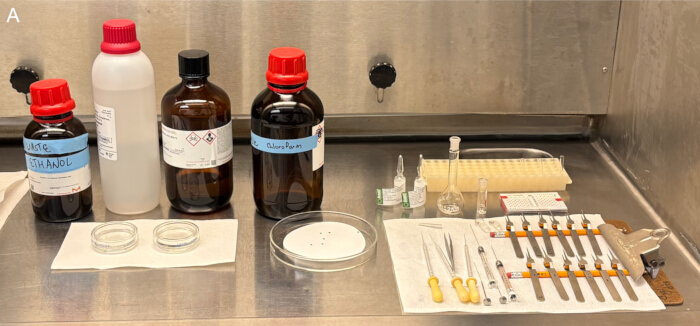
Figuur 2: Chemische dampkap met gereedschap en reagentia voor de bereiding van lipidenmengsels. Afbeelding van het oplosmiddelreinigingsstation en gereinigd gereedschap, glaswerk en TEM-roosters. Flessen van links naar rechts: ethanolafval, ethanol, chloroform en chloroformafval. Petrischalen van links naar rechts: ethanol-, chloroform- en TEM-roosters op filterpapier. Extra items van links naar rechts en van boven naar beneden zijn kweekbuizen in een buisrek, lipide-ampullen, volumetrische flessen met stoppers, opgeslagen TEM-roosters, glazen pipets met bollen, fijnpuntige pincetten, glazen spuiten en anticapillaire pincetten met tussenafstandhouders (potloodstompjes) ingebracht. Klik hier om een grotere versie van deze figuur te bekijken.
4. Reinigingsgereedschap, glaswerk en TEM-roosters met oplosmiddelen (~20 min)
- Verzamel één paar fijnpuntige pincetten, twaalf paar zelfsluitende anticapillairpincetten, drie glazen pipetten, één 25 μL glazen spuit, één 2,5 μL glazen spuit, drie glazen cultuurbuizen in een buisrek, één 25 mL volumetrische fles met stop, één 1 mL volumetrische fles met stop, twintig tot vijfentwintig glazen buisjes met 3,7 mL schroefdraad en fenoldoppen, en twaalf TEM-roosters met een goudgaas, gatvol koolstof. Plaats de materialen bij het oplosmiddelreinigingsstation in de chemische dampafzuigkap.
OPMERKING: Houd een afstandhouder, zoals een potloodstompje, in elk paar anticapillaire pincetten wanneer deze niet in gebruik is, om misvorming en verkeerde uitlijning van de tip te voorkomen. Gooi gebogen pincet weg. - Maak de pincet schoon door de punten meerdere keren in chloroform te dompelen. Herhaal met ethanol. Aan de lucht drogen.
- Maak de glazen pipetten schoon door chloroform meerdere keren te aspireren en te doseren. Herhaal met ethanol. Aan de lucht drogen.
- Maak de spuiten schoon door chloroform te aspireren en te doseren totdat de zuiger soepel beweegt. Herhaal met ethanol. Haal de zuiger uit de spuitloop en laat hem aan de lucht drogen.
- Maak de kweekbuizen schoon door chloroform meerdere keren toe te voegen en te verwijderen met een glazen pipet. Herhaal met ethanol. Verwijder restvloeistof door de buisjes om te draaien en ze zachtjes op keukenpapier te tikken. Aan de lucht drogen.
- Maak de volumetrische kolven schoon door chloroform toe te voegen met een glazen pipet, de fles te stoppen en voorzichtig te bewegen om de binnenkant te spoelen. Gooi het oplosmiddel in de afvalfles. Herhaal met ethanol. Laat de flessen zonder stop en laat ze aan de lucht drogen.
- Maak de flesjes schoon door chloroform toe te voegen met een glazen pipet, het flesje af te sluiten en voorzichtig te roeren om de binnenkant te spoelen. Gooi het oplosmiddel weg. Herhaal met ethanol. Laat de flesjes open en laat ze aan de lucht drogen.
- Maak de TEM-roosters schoon door de versterkte buitenrand vast te grijpen met fijne pincetten, terwijl beschadiging van de koolstoffolie wordt voorkomen. Dompel de roosters drie keer verticaal onder in chloroform, daarna drie keer in ethanol.
- Leg de TEM-roosters met de koolstofzijde naar boven op het filterpapier en laat ze aan de lucht drogen.
5. Het afkoelen van de casting buffer (>20 min)
- Plaats minstens 50 ml laag-zout buffer op ijs.
- Laat de buffer minstens 20 minuten koelen.
6. Bereiden van afzonderlijke 1 mg/mL chloroform-oplossingen van DOPC en Ni-NTA-lipide (~20 min)
OPMERKING: Als lipidenvoorraden eerder zijn voorbereid, sla dan over naar sectie 8, "Bereiding van het 80% DOPC/20% Ni-NTA lipidenmengsel."
- Zorg ervoor dat de DOPC- en Ni-NTA-lipidepoeders in evenwicht zijn gekomen tot kamertemperatuur.
VOORZICHTIG: Scheermessen en gebroken glas zijn scherpe gevaren. Wees voorzichtig bij het gebruik van een scheermes en het breken van glazen ampullen. - Om de zichtbaarheid van het DOPC-poeder te verbeteren, verwijder je het ampullabel door het met een scheermes te snijden en eraf te pellen. Herhaal voor de Ni-NTA lipidenampul.
- Met beide handen en met het werken over de pot met scherpe voorwerpen breek je voorzichtig de ampul met 25 mg DOPC open. Gooi de ampulhals weg in de sharps-container. Plaats het ampullichaam bij de chloroformschaal. Herhaal dit voor de 1 mg Ni-NTA lipidenampul.
- Borstel voorzichtig glasfragmenten van handschoenen en werkoppervlakken in de pot voor scherpe voorwerpen. Vervang de beschadigde handschoenen onmiddellijk.
- Label één glazen pipet voor chloroform, één voor DOPC en één voor Ni-NTA lipide.
- Vul een klein, met oplosmiddel gereinigd petrolschaaltje met chloroform.
- Gebruik de DOPC-pipet om 2–5 mL chloroform in de DOPC-ampul te brengen. Aspireer en doseer de oplossing totdat het lipide aan de onderkant en zijkanten volledig is opgelost.
- Breng de DOPC-oplossing over in de 25 mL volumetrische kolf met behulp van de DOPC-pipet. Breng de kolf tot een eindvolume van 25 mL met chloroform met behulp van de chloroformpipet.
- Gooi de DOPC-ampul weg in de container voor scherpe voorwerpen.
- Breng minder dan 1 ml chloroform over in de 1 mL volumetrische kolf met behulp van de chloroformpipet.
- Gebruik de Ni-NTA lipidepipet om de chloroform van de 1 mL volumetrische kolf over te brengen naar de Ni-NTA lipideampul. Aspireer en doseer de oplossing totdat het lipide aan de onderkant en zijkanten volledig is opgelost.
- Breng de Ni-NTA lipideoplossing over in de 1 mL volumetrische kolf met behulp van de Ni-NTA lipidepipet. Breng de kolf tot een eindvolume van 1 ml met chloroform met behulp van de chloroformpipet.
- Gooi de Ni-NTA lipide-ampul weg in de sharps-container.
7. Bereiden van kleine aliquoten lipide voor langdurige opslag (~15 min)
- Gebruik de DOPC-pipet om 1–2 mL DOPC-materiaal in meerdere glazen flesjes te aliquoteren. Zet een dop en label de flesjes.
- Gebruik de Ni-NTA lipidepipet om 0,2–0,5 ml Ni-NTA lipidevoorraad in meerdere glazen flesjes te aliquoteren. Zet een dop en label de flesjes.
VOORZICHTIG: Vloeibare stikstof (LN2) is een cryogeen dat aanvankelijk een kort Leidenfrost-effect kan veroorzaken voordat het intense pijn, gevoelloosheid, blaren en bevriezing veroorzaakt. De ernst van het letsel neemt toe met de blootstelling en kan zich binnen 1 minuut ontwikkelen van brandwonden van de eerste tot de vierde graad. Objecten die door LN2 worden gekoeld kunnen vergelijkbare verwondingen veroorzaken. Let op thermische geleiding door cryo-monstergereedschap bij het hanteren ervan in LN2. Draag een gezichtsscherm om spetters te voorkomen. Dompel je handen niet onder in LN2, zelfs niet met cryobeschermende handschoenen, omdat gevangen LN2 mogelijk contact met de huid kan blijven. Verwar gecondenseerde atmosferische waterdamp niet met LN2-damp. LN2 zet ongeveer 700× uit in volume wanneer het wordt overgegaan in een onzichtbare, geurloze gasvormige verstikkingsmiddel. Zorg ervoor dat alle LN2-tanks en dewars goed zijn geventileerd om drukopbouw te voorkomen. Gebruik LN2 alleen in goed geventileerde ruimtes en verdamp ongebruikte LN2 in een chemische afzuigkap. - Vul een kleine cryogen-dewar met LN2.
- Verwijder de dop van een aliquot-flesje, giet de stikstofdamp erin, sluit het flesje weer en sluit het af met een zelfdichtende folie. Herhaal dit voor alle aliquot flesjes.
OPMERKING: Bewaar lipid aliquot-aandelen tot 3 maanden op −20 °C.
8. Het bereiden van het 80% DOPC/20% Ni-NTA lipidemengsel (~15 min)
- Zorg ervoor dat de aliquots van de DOPC en Ni-NTA lipidenvoorraad in evenwicht zijn gekomen tot kamertemperatuur.
- Label één glazen kweekbuis voor DOPC, één voor Ni-NTA lipide en één voor het lipidenmengsel.
- Gebruik de DOPC-pipet om 50–100 μL (2–3 druppels) DOPC-materiaal over te brengen in de DOPC-kweekbuis. Sluit de buis af met zelfafsluitende folie.
- Gebruik de Ni-NTA lipidepipet om 20–50 μL (1–2 druppels) Ni-NTA lipidevoorraad over te brengen in de Ni-NTA lipidekweekbuis. Sluit de buis af met zelfafsluitende folie.
- Gebruik de 25 μL spuit om 20 μL DOPC aliquot in de spuitloop te zuigen. Controleer of de ton geen bellen bevat en neem het monster indien nodig opnieuw af. Doeer de aliquot in de lipidemengbuis. Herhaal één keer voor een totaal volume van 40 μL.
- Maak de spuit schoon met chloroform en daarna met ethanol.
- Gebruik de spuit om 10 μL Ni-NTA lipide aliquot te nemen. Controleer of de ton geen bellen bevat en neem het monster indien nodig opnieuw af. Dozeer de aliquot in de lipidenmengbuis, waardoor het uiteindelijke totale volume 50 μL bedraagt.
- Meng de lipiden door de oplossing meerdere keren te aspireren en te doseren. Sluit de buis af met zelfafsluitende folie.
- Maak de spuit schoon met chloroform en daarna met ethanol. Aan de lucht drogen.
9. Het gieten van een lipidenmonolaag en het overbrengen op de TEM-roosters (~10 min)
- Zorg ervoor dat de zoutarme buffer gekoeld is.
- Verzamel één klein LED-lampje, de gekoelde zoutarme buffer, één capsule met een deksel gevuld afval, reagensethanol, één ethanolafvalfles, één fles ricinusolie met een druppelaar, het lipidenmengsel, een klein petrischaaltje, één 2,5 μL spuit, twaalf paar anticapillaire pincetten, twaalf TEM-roosters en laag-pluisige weefsels. Leg de materialen op een goed verlicht zwart werkblad (Figuur 3).
- Oriënteer de platte arm van elk paar anticapillaire pincetten op de koolstofzijde van een TEM-rooster. Klem het rooster langs de versterkte buitenrand. Herhaal voor alle rasters.
- Vul het kleine petrischaaltje tot de rand met een gekoelde, zoutarme buffer (Figuur 4A). Plaats één druppel ricinusolie in het midden van het bufferoppervlak (Figuur 4B, 4C).
OPMERKING: Ga snel door met de volgende stappen omdat de lipidenmonolaag geleidelijk van het midden van de ricinusolie wegbeweegt, waardoor de overdrachtsefficiëntie afneemt. Temperatuurschommelingen en trillingen versnellen dit proces. - Gebruik de 2,5 μL spuit om 1 μL lipidenmengsel te ontnemen. Laat de naaldpunt van de spuit zakken naar het midden van de ricinusolie. Doseer het lipidenmengsel als een druppel die aan de naaldafschuining net boven het oppervlak hangt, en raak de druppel vervolgens voorzichtig aan met de ricinusolie (Figuur 4D).
- Gebruik de LED-lamp om de vorming te bevestigen van een vlakke lipidecirkel van 2–3 cm doorsnee, omgeven door een ring van ricinusolie (Figuur 4E). Als deze morfologie niet wordt nageleefd, reset dan de gietschaal door de buffer weg te gooien, de schaal af te spoelen met reagens ethanol, te drogen met laag-pluisweefsels en opnieuw zoutarme buffer-, ricinus- en lipidenmengsel aan te brengen.
OPMERKING: Overtollige ricinusolie belemmert de vorming van de lipidenmonolaag, terwijl onvoldoende ricinusolie de monolaag niet kan vasthouden. De vloeibaarheid van lipiden is temperatuurafhankelijk. Als de buffer te koud is, verspreidt het lipide zich niet tot een monolaag. Als de buffer te warm is, migreren de lipide en ricinusolie naar de rand van de schaal en storten in. Giet gekoelde buffer in een petrischaal op kamertemperatuur om optimale lipidenverspreiding te bereiken. Reset de casting dish indien nodig na elke grid-overdracht. Zorg ervoor dat de gietschaal volledig vrij is van olie voordat je verse buffer toevoegt. - Breng de lipidenmonolaag over op een TEM-rooster door het geklemde TEM-rooster naar het midden van de lipide-giet te laten zakken met de koolstofzijde naar beneden gericht. Raak voorzichtig het hele koolstofoppervlak aan de lipidenmonolaag zonder het rooster onder te dompelen of los te laten (Figuur 4F).
- Controleer het lipidenrooster om volledige vloeistofdekking en afwezigheid van ricinusolie te bevestigen (Figuur 5). Gooi olieachtige roosters weg.
- Herhaal de overdrachtsprocedure voor alle TEM-roosters.
OPMERKING: Geklemde lipidenroosters kunnen binnen 5–10 minuten opdrogen. Lipidenroosters kunnen 's nachts op het werkblad blijven zitten voordat ze worden gerehydrateerd. Alternatief kunnen gedroogde lipideroosters in een roosterdoos worden geplaatst en tot 1 week in een desiccator op kamertemperatuur worden bewaard, voordat ze opnieuw worden vastgeklemd en gehydrateerd.
KRITISCH: Ga alleen door als het invallen van bevriezing binnen 2 uur plaatsvindt. Anders kun je de resterende stappen uitstellen.
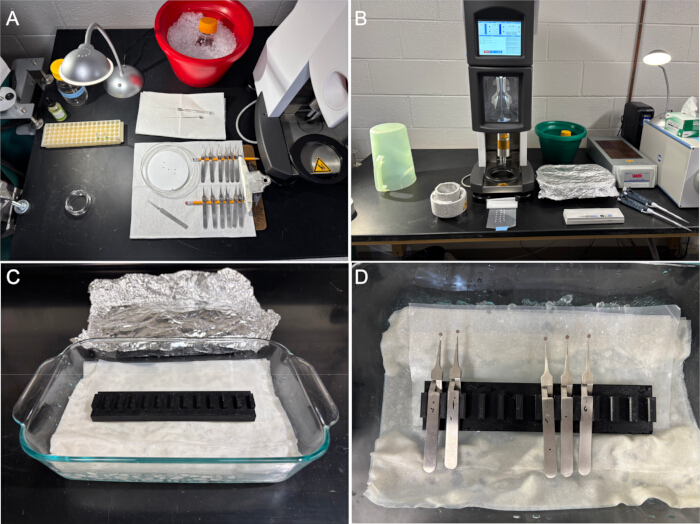
Figuur 3: Werkbankopstelling voor het gieten van lipide monolagen en plunge-freezing. (A) Items die van links naar rechts en van boven naar beneden worden getoond, zijn onder andere een castoroliedruppelfles, bufferafvalfles, LED-lamp, gekoelde zoutarme buffer op ijs, buisrek met lipidenaliquoten en lipidemengsel, 2,5 μL glazen spuit, lege petrischaal, petrischaal met TEM-roosters op filterpapier, fijnpuntige pincet en anticapillaire pincet met ingebouwde afstandhouders. (B) Getoonde items zijn onder andere een gekoelde, bevochtigde cryo-zuiger, een samengestelde cryo-zuigerpot, een ijsemmer met verdunningsbuffer en monster, een met folie beklede bench-luchtigheidskamer, een afgesloten, zelfdichtende film met lijnen verdunningsbufferdruppels, cryo-zuigerpincet en micropipetten. (C) Luchtvochtige kamer op het werkblad met ijs, natte papieren handdoeken, zelfsluitende folie en een pincethouder voor de werkbankversie. (D) Lipidenroosters die worden vastgeklemd met anticapillaire pincet in de luchtvochtige kamer op het werk. Klik hier om een grotere versie van deze figuur te bekijken.
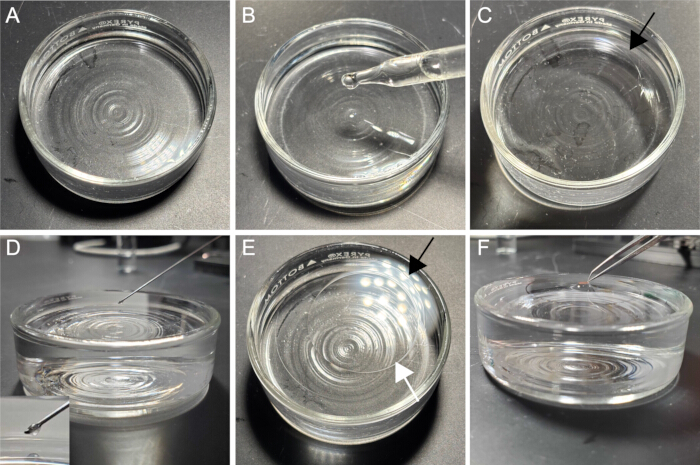
Figuur 4: Een lipidenmonolaag gieten en deze overbrengen op TEM-roosters. (A) Gietschaal gevuld met een laag-zout buffer. (B) Toediening van 1 druppel wonderolie aan de gietschaal. (C) Cirkel van wonderolie die op het bufferoppervlak drijft; Zwarte pijl geeft de grens van ricinusolie aan. (D) Spuitnaald gecentreerd boven de ricinusolie met de afschuining naar beneden; 1 μL druppel lipidenmengsel zweefde aan de naaldpunt. (E) Lipidenmengsel verspreid binnen een ring van ricinusolie; De zwarte pijl geeft de grens van ricinusolie aan, en de witte pijl geeft de grens van de lipidenmonolaag aan. (F) Overdracht van de lipidenmonolaag naar de koolstofzijde van een TEM-rooster. Klik hier om een grotere versie van deze figuur te bekijken.
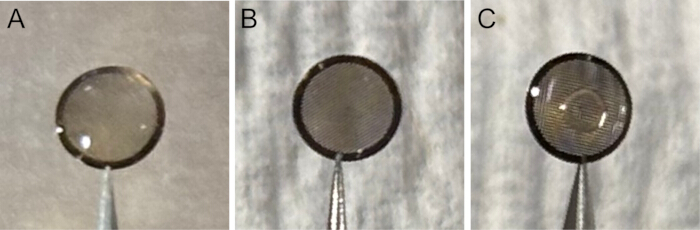
Figuur 5: Voorbeelden van TEM-roosters na lipidenmonolaagoverdracht. (A) Succesvolle lipideoverdracht met buffer verspreid over het gehele roosteroppervlak. (B) Succesvolle lipideoverdracht na luchtdrogen gedurende 1 uur. (C) Lipideoverdracht besmet met ricinusolie, zichtbaar in het midden van het rooster. Klik hier om een grotere versie van deze figuur te bekijken.
10. Incubatie van debatpapier in een cryo-ontstopper bij 4 °C en 100% luchtvochtigheid (>1 uur)
- Stel de cryo-plunger vochtigheidskamer in op 4 °C en 100% luchtvochtigheid.
- Plaats deutpapier op de deutpads. Incubeer het vlekpapier minstens 1 uur bij hoge luchtvochtigheid.
11. Het afkoelen van de verdunningsbuffer (~20 min)
- Plaats minstens 20 ml verdunningsbuffer op ijs.
- Laat de buffer minstens 20 minuten koelen.
12. Incubatieverdunningsbuffer op de lipidenroosters (>15 min)
- Verzamel één bakvorm, één versie van een 3D-geprinte pincethouder (Supplemental Files 1–3), één strook van 25–35 cm zelfsluitende film van 10 cm breed, één strook aluminiumfolie van 35–45 cm breed, ijs en keukenpapier. Plaats de materialen bij de cryo-zuiger (Figuur 3).
- Plaats de ovenschaal in de lengte naast de cryo-ontstopper. Vul het schaaltje half met ijs en dek het dan af met keukenpapier. Maak de papieren handdoeken licht nat met kraanwater.
- Plaats de strook zelfsluitende folie in de lengte op de verste helft van de ovenschaal, direct boven de natte papieren handdoeken.
- Plaats de 3D-geprinte pincethouder in de lengte in het midden van de ovenschaal, direct op de natte papieren handdoeken en zelfsluitende folie.
- Bedek de ovenschaal met aluminiumfolie (Figuur 3).
- Vervang gesmolten ijs gedurende het experiment.
- Plaats de geklemde lipideroosters in de luchtvochtige kamer op de benchtop boven de zelfafsluitende film met de lipidezijde naar boven gericht (Figuur 3).
OPMERKING: Vermijd het verplaatsen van de luchtvochtige kamer op de werkbank of het aanraken van de lipideroosters met een pipettip, omdat deze acties de roosters kunnen losmaken. Haal alle roosters die op de zelfdichtende folie vallen als de roosters onbeschadigd blijven. - Breng 2 μL verdunningsbuffer aan op elk lipideoppervlak. Bedek de kamer met folie om verdamping te minimaliseren.
- Houd de hydratatie van elk lipidenrooster door een extra 2 μL verdunningsbuffer toe te passen wanneer er minder dan 1 μL vloeistof op het rooster overblijft.
- Houd de gehydrateerde lipidenroosters in de gekoelde benchtop vochtigheidskamer minstens 15 minuten in evenwicht.
13. Het incuberen van het monster op de lipidenroosters (>15 min)
- Zorg ervoor dat de lipidenroosters minimaal 15 minuten continu met verdunningsbuffer zijn gehydrateerd.
- Zorg ervoor dat de voorraadverdunningsbuffer volledig gekoeld is.
- Breng 3 μL polyhistidine-gemarkeerd monster toe op elk gehydrateerd lipidenrooster. Bedek de kamer met folie om verdamping te minimaliseren.
- Behoud de hydratatie van elk lipidenrooster door een extra 2 μL verdunningsbuffer toe te passen wanneer er minder dan 2 μL vloeistof op het rooster overblijft.
- Incubeer de roosters minstens 15 minuten.
14. Bereiden van de cryo-zuiger pot (>15 min)
- Assembleer de cryo-zuigpot, inclusief de spil die wordt gebruikt voor indirecte koeling van de koperen beker.
- Label de cryo-grid dozen en plaats ze in de cryo-zuigerpot.
- Vul de cryo-zuiger pot met LN2. Dek de pan af om ijsbesmetting te minimaliseren.
- Houd het LN2-niveau boven de cryo-grid boxen door periodiek extra LN2 toe te voegen.
- Koel de metalen onderdelen en cryo-grid boxen minstens 10 minuten tot LN2-temperatuur.
VOORZICHTIG: Vloeibare propaan en ethaan zijn zeer brandbare cryogenen die verwondingen veroorzaken vergelijkbaar met LN2, maar geen merkbaar Leidenfrost-effect hebben. Als gevolg hiervan kan contact direct en aanhoudend letsel veroorzaken. Vermijd spetteren tijdens het hanteren. Als propaan-ethaan LN2 besmet, behandel dan het besmette LN2 met dezelfde verhoogde voorzorgsmaatregelen als vloeibare propaan en ethaan. Na gebruik plaats je de cryo-zuigpot in een chemische afzuigkap zodat de cryogenen veilig kunnen verdampen. - Vul de messing beker met een mengsel van 60:40 vloeibare propaan-ethaan.
- Breng het propaan-ethaanmengsel minstens 5 minuten in evenwicht tot LN2-temperatuur.
15. Plunge-freezing van de lipidenroosters (~1 uur)
- Zorg ervoor dat het deutpapier minstens 1 uur in balans is gekomen bij 4 °C en 100% luchtvochtigheid.
- Zorg ervoor dat de lipidenroosters minimaal 15 minuten hebben geïncubeerd met polyhistidine-gemarkeerd monster.
- Controleer of de propaan-ethaantemperatuur onder −190 °C ligt, en verwijder vervolgens de spil.
- Dodeer drie druppels verdunningsbuffer van 50 μL in een lijn op een vastgezet stuk zelfdichtende film van 10 cm2 (Figuur 3).
- Was één geklemd lipidenrooster door het lipideoppervlak sequentieel aan elke verdunningsbufferdruppel te raken en het rooster op de laatste druppel los te laten.
- Gebruik de cryo-zuiger pincet om het zwevende lipidenrooster op te pikken. Monteer het rooster in de cryo-plunger.
- Absorbeer de gebruikte bufferdruppels met een pluisvrij tissue en gooi weg.
- Pas de volgende cryo-plungerinstellingen toe op het lipidenrooster voordat je het in het propaan-ethaanmengsel dompelt: wachttijd, 0 s; totale slok, 1; blotkracht, −10; blottijd, 4 s; en de drain-tijd, 0 s.
- Breng het cryo-rooster van de propaan-ethaanbeker over naar een beschikbare plek in een cryo-roosterdoos.
- Herhaal de duikbevriezingsprocedure voor alle lipidenroosters.
Resultaten
Om de verwachte resultaten van dit protocol te illustreren, werd een reeks experimenten uitgevoerd. Holey-koolstof R1.2/1.3 TEM-roosters met en zonder 20% Ni-NTA lipidemonolagen werden met monster ingevroren en gefotografeerd met een 200 keV cryo-TEM. Voor elke voorwaarde werden 3–9 rastervakjes afgebeeld. De ijstdikte varieerde over individuele roosters en rastervierkanten, met optimale gebieden die dun glasachtig ijs en goed ingebedde deeltjes bevatten, zoals bevestigd door karakteristieke Thon-ringen in de snelle Fouriertransformatie (FFT)31.
In het eerste experiment werd gezuiverde polyhistidine-getagde Staphylococcus aureus glutamaat syntatase (saGS) gebruikt om de optimale voorbereiding en verwachte prestaties van 20% Ni-NTA lipide monolaag affiniteitsroosters aan te tonen (Figuur 6). Lipidenmonolagen werden overgebracht op goud-mesh TEM-roosters. De lipidenroosters werden gedroogd en 1 week in een desiccator bewaard voordat ze werden gerehydrateerd. Na volledige rehydratatie werd saGS bij 0,1 mg/mL 15–30 minuten op de roosters geïncubeerd om deeltjesbinding mogelijk te maken. De saGS-deeltjes, met een gemiddelde deeltjesaantal van 274 per micrograaf (N = 7), leken gelijkmatig verdeeld over de lipidenmonolaag met minimale of geen overlap.
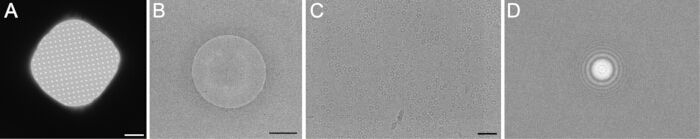
Figuur 6: Representatieve cryo-TEM beelden van een 20% Ni-NTA lipide affiniteitsrooster. De lipidenmonolaag werd 1 week gedroogd en opnieuw gehydrateerd met een zoutarme buffer zoals beschreven in het protocol. Representatieve beelden werden verzameld bij lage (A), intermediair (B) en hoge (C) vergroting, met overeenkomstige FFT weergegeven in (D). Deeltjes, met gemiddeld 274 deeltjes per micrografie (N = 7), zijn gelijkmatig verspreid over het roosteroppervlak binnen een laag dun glasachtig ijs. Schaalbalken: 10 μm, 500 nm en 50 nm. Klik hier om een grotere versie van deze figuur te bekijken.
In het tweede experiment werden saGS-monsters met deeltjesstapeling gebruikt om de effecten van lipidenroosters op eiwitaggregatie aan te tonen (Figuur 7). Vier cryo-grid condities werden onderzocht: saGS bij 1,0 mg/mL op koper-mesh roosters zonder lipide, saGS bij 0,1 mg/mL op koper-mesh roosters zonder lipide, saGS bij 0,1 mg/mL op gold-mesh roosters met nooit gedroogde lipiden, en saGS bij 0,1 mg/mL op gold-mesh roosters met gedroogd lipide gedurende 1 week voordat rehydratatie. Lipidenroosters vertoonden een hogere deeltjesdichtheid, met gemiddelden van 40 of 46 deeltjes per micrografie (N = 12), vergeleken met niet-lipidenroosters die bij dezelfde eiwitconcentratie werden bereid, die gemiddeld 2 deeltjes per micrografie bevatten (N = 12). Deze bevindingen toonden een duidelijk concentratieeffect ten opzichte van ongemodificeerde TEM-roosters, waarmee werd bevestigd dat de 20% Ni-NTA lipidenmonolaag intact bleef. Hoewel deeltjesstapeling nog steeds werd waargenomen, vertoonden deeltjes op lipidenroosters minimale overlapping en bleven ze binnen een vergelijkbaar brandpuntsvlak. Daarentegen verschenen deeltjes op niet-lipidenroosters op aanzienlijk verschillende brandpuntsdieptes, waarbij geaggregeerde deeltjes werden waargenomen bij een hogere concentratie van 1 mg/mL.
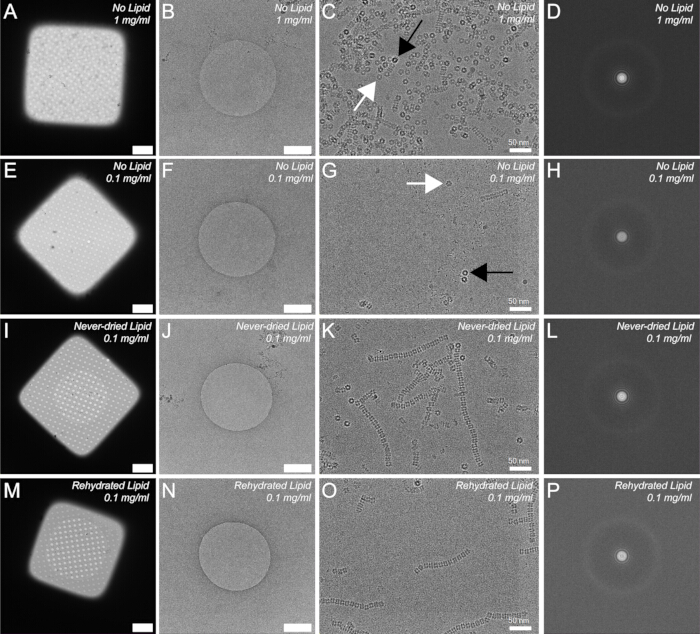
Figuur 7: Cryo-TEM beelden van gestapelde polyhistidine-getagde saGS op 20% Ni-NTA lipiden- en niet-lipide roosters. (A–D) Niet-lipidenrooster bereid met saGS bij 1,0 mg/mL, weergegeven bij lage (A), intermediair (B) en hoge (C) vergroting, met bijbehorende FFT (D). (E–H) Niet-lipide rooster bereid met saGS bij 0,1 mg/mL. (I–L) Nooit gedroogde lipidenrooster bereid met saGS bij 0,1 mg/mL.
(M–P) Gehydrateerd lipidenrooster bereid met saGS bij 0,1 mg/mL. De deeltjesdichtheid op niet-lipidenroosters was lager dan die waargenomen op overeenkomstige lipidenaffiniteitsroosters, gemiddeld 2 deeltjes per micrografie tegenover respectievelijk 46 en 47 deeltjes per micrografie (N = 12). Zwarte pijlen geven sterk gedefocuste deeltjes aan. Witte pijlen geven deeltjes aan die dicht bij scherp zijn. Schaalbalken: 10 μm, 500 nm en 50 nm. Klik hier om een grotere versie van deze figuur te bekijken.
In het derde experiment werden lipidenroosters blootgesteld aan N-dodecyl-β-D-maltoside (DDM). Gezuiverde saGS met 0,1 mg/mL werd als monster gebruikt. Het detergent verstoorde de lipidenmonolaag. Lipide cryo-roosters met 0,05% DDM in de buffer (Figuur 8) vertoonden gaten in de lipidenmonolaag, lipidemicellen op het roosteroppervlak en verminderde deeltjesdichtheid ten opzichte van de controleconditie.
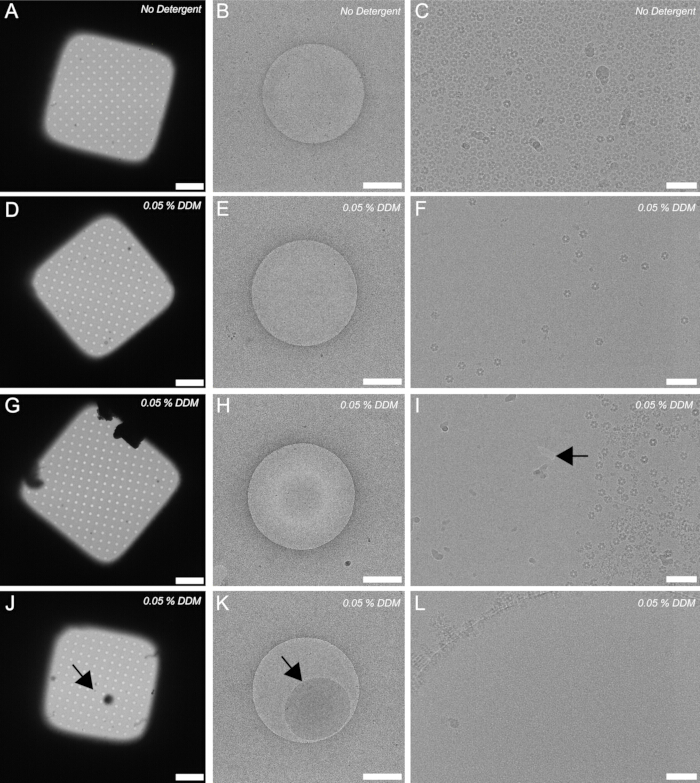
Figuur 8: Representatieve beelden van 20% Ni-NTA lipidenroosters blootgesteld aan 0,05% N-dodecyl-β-D-maltoside (DDM). Cryo-roosters werden afgebeeld met lage, middelhoge en hoge vergroting. (A–C) Beelden van een 20% Ni-NTA lipidenaffiniteitsrooster, gerehydrateerd met een monsterverdunningsbuffer. (D–L) Beelden van een 20% Ni-NTA lipidenaffiniteitsrooster gerehydrateerd met een monsterverdunningsbuffer met 0,05% DDM. de deeltjesdichtheid van saGS was lager op detergent-behandelde TEM-roosters. De pijl in paneel I geeft een gat in de lipidenmonolaag aan. Pijlen in panelen J en K geven dezelfde lipidemicel aan. Schaalbalken: 10 μm, 500 nm en 50 nm. Klik hier om een grotere versie van deze figuur te bekijken.
De ijstdikte varieerde zowel tussen roosters als binnen individuele rastervakjes. In sommige gevallen was het ijs te dun of ontbrak het in delen van het rastervierkant (Figuur 9A), ongelijk verdeeld (Figuur 9B), of te dik voor beeldvorming (Figuur 9C). In sommige regio's was de ijsdikte kleiner dan de diameter van het eiwitcomplex. Droge gebieden of gebieden met zeer dun ijs, gedefinieerd als dunner dan de deeltjesdiameter, moeten worden vermeden tijdens gegevensverzameling omdat eiwitten in deze gebieden waarschijnlijk gedenatureerd zijn. Op basis van ervaring met dit protocol wordt verwacht dat ongeveer 25%–50% van de cryo-grids voldoende dun ijs bevat dat geschikt is voor SPA-gegevensverzameling over meerdere grid-squares. De ijsdikte kan worden geoptimaliseerd door de dopteringstijd aan te passen of het uiteindelijke buffervolume op het rooster aan te passen vóór het dompelvriezen.
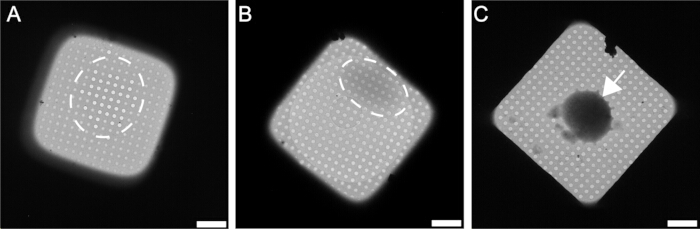
Figuur 9: Voorbeelden van suboptimale Ni-NTA affiniteitsroosters. Representatieve cryo-TEM micrografieën van suboptimale cryo-roosters met 20% Ni-NTA-affiniteit. (A) Lipidefilm afwezig in het midden van het rastervierkant, aangegeven door de wit gestippelde cirkel rondom lege gaten. (B) Rastervierkant met ongelijk ijs, met dikker ijs nabij het gebied dat wordt aangegeven door de wit gestippelde cirkel. (C) Rastervierkant met ijs dat te dik is om te beelden, aangegeven door de pijl. Schaalbalken: 10 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Wanneer correct voorbereid, bevatten affiniteitsroosters een lipidenmonolaag met voornamelijk één laag deeltjes die op de film zijn geadsorbeerd. De deeltjesdichtheid zal naar verwachting hoger zijn dan die waargenomen op niet-lipidenroosters die met vergelijkbare monsterconcentraties zijn gemaakt. Het niet overbrengen van de lipidemonolaag op een TEM-rooster levert cryo-roosters op die lege gaten bevatten (Figuur 10A) of gaten met glasvochtijs zonder lipidefilm en weinig of geen deeltjes vertonen (Figuur 10B, C).
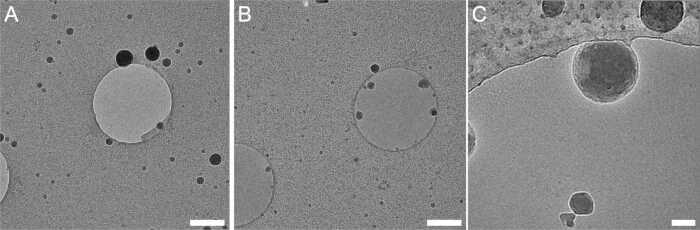
Figuur 10: Voorbeeld van een TEM-rooster zonder lipidenmonolaag. Cryo-TEM-beelden tonen mislukte overdracht van de lipidenmonolaag op het TEM-roosteroppervlak. Polyhistidine-gelabelde menselijke nucleosomen worden op de koolstoffilm geadsorbeerd. (A) Gebied van het raster vierkant met lege gaten. (B) Verschillende gebieden van hetzelfde rooster met gaten gevuld met glasvochtijs maar zonder zichtbare deeltjes of lipidenfilm. (C) Afbeelding met hoge vergroting van een gat zonder lipidenfilm maar met glasvochtijs; deeltjes zijn zichtbaar op de dikke koolstofsteunlaag. Schaalbalken: 1 μm en 50 nm. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullend bestand 1: Instructies voor het 3D-printen van de pincethouder. Dit aanvullende bestand bevat gedetailleerde instructies voor het 3D-printen van aangepaste pincethouders die worden gebruikt tijdens hydratatie van het lipidenrooster en het incuberen van monsters. Klik hier om dit bestand te downloaden.
Aanvullend dossier 2: STL-bestand voor 3D-printen pincethouder. Dit aanvullende bestand bevat het stereolithografie (STL) bestand dat nodig is voor 3D-printen, de pincethouderversie die wordt gebruikt voor het incuberen van gehydrateerde lipideroosters in een benchtop vochtigheidskamer (Figuur 3C, 3D). Klik hier om dit bestand te downloaden.
Aanvullende Map 3: STL-bestand voor 3D-printen cryo-plunger pincethouder. Dit aanvullende bestand bevat het stereolithografie (STL) bestand dat nodig is voor 3D-printen, de pincethouderversie die wordt gebruikt voor het incuberen van gehydrateerde lipideroosters in een cryo-plunjer vochtigheidskamer. Klik hier om dit bestand te downloaden.
Discussie
Deze studie presenteert een gedetailleerd stapsgewijs protocol voor het voorbereiden van Ni-NTA lipide monolaag affiniteitsroosters en benadrukt belangrijke praktische overwegingen en voordelen van deze aanpak voor routinematige cryo-EM structurele bepaling van oplosbare polyhistidine-getagde eiwitcomplexen. Verschillende stappen in het protocol zijn technisch uitdagend en gevoelig voor gebruikersfouten, vooral voor beginners.
Lipidenmonolaagmodificatie kan binnen ongeveer 2 uur worden voltooid, en de resulterende lipidenroosters kunnen worden gedroogd en opgeslagen voor later gebruik. Met nog eens 2 uur en toegang tot een cryo-plunjer kunnen cryo-roosters vervolgens worden voorbereid. Daarom is deze methode zeer geschikt voor multi-user faciliteiten en cryo-EM laboratoria. Met deze benadering zijn structuren van oplosbare eiwitcomplexen variërend van 97 tot 470 kDa bepaald bij sub-3 Å resolutie17. Efficiënte binding aan de Ni-NTA lipidenmonolaag vereist een polyhistidine-gelabelde component met een flexibele linker. Hoewel er voor bepaalde monsters, waaronder nucleosomen en glutamaatsyntase, een zekere mate van voorkeursoriëntatie ten opzichte van de monolaag is waargenomen, hebben deze oriëntaties de resolutie niet beperkt of rekartefacten in de uiteindelijke reconstructies geïntroduceerd. Interactie tussen de Ni-NTA lipidemonolaag en polyhistidine-gelabelde eiwitten bevordert een efficiënte deeltjesvangst op het oppervlak van het TEM-rooster. Bijgevolg kan structurele analyse worden uitgevoerd met relatief verdunde monsters en standaard cryo-EM verwerkingspijplijnen, zoals RELION en cryoSPARC, zonder extra monstervoorbereidingsstappen.
Zorgvuldige behandeling van TEM-roosters en voorbereiding van lipidmengsels zijn essentieel voor reproduceerbare resultaten. Lipidenmonolagen zijn zeer gevoelig voor verontreinigingen, waaronder restdetergenten, oliën en stof. Grondige reiniging van al het glaswerk is daarom cruciaal. Wassen met een anionisch surfactieve stof, gevolgd door uitgebreide spoeling met ultrazuiver water en grondig aan de lucht drogen, wordt sterk aanbevolen voordat je direct voor gebruik opnieuw spoelt met chloroform en ethanol.
Het protocol gebruikt gold-mesh TEM-roosters omdat deze niet-reactief zijn over een breed scala aan monster- en buffercondities. Om verschillende monsters te kunnen plaatsen, kunnen de buffers die worden gebruikt tijdens het gieten van lipiden, het hydrateren van het lipidenrooster, het incuberen van het monster en het wassen vóór het invriezen indien nodig worden aangepast. Monsterbuffers met glycerol of andere additieven kunnen tijdens de wasfase vóór de vitrificatie worden verwijderd. Buffers met dithiothreitol (DTT) moeten worden vermeden omdat DTT nikkel32 vermindert en de binding tussen polyhistidine-gelabelde eiwitten en de Ni-NTA lipidemonolaag verstoort. Detergenten worden ook niet aanbevolen omdat 0,05% N-dodecyl-β-D-maltoside (DDM) de lipidenmonolaag heeft verstoord, en andere detergenten die vaak worden gebruikt voor membraan-eiwit structurele studies zullen naar verwachting vergelijkbare effecten hebben (Figuur 8D–L). Of lagere detergentconcentraties of detergenten met lage kritieke micelleconcentraties op vergelijkbare wijze de integriteit van de monolaag verstoren, moet nog worden bepaald.
Het technisch meest veeleisende onderdeel van het protocol is het casten en overdragen van de lipidenmonolaag op het TEM-rooster. Deze stap is zeer gevoelig voor temperatuur, trillingen en hanteertechniek. Optimale resultaten werden verkregen door lipidefilms te gieten bij kamertemperatuur (~22 °C) met voorgekoelde buffer. Mechanische verstoringen moeten worden geminimaliseerd omdat trillingen de monolaag kunnen destabiliseren. Daarom moet de petrischaal na het gieten van de lipiden stilstaan. Tijdens de overdracht kunnen de castorolie en lipidemonolaag geleidelijk over het bufferoppervlak migreren, waardoor de kans groter wordt dat ricinusolie wordt overgedragen in plaats van de lipidenmonolaag (Figuur 5C). Een juiste vulling van de petrischaal en zorgvuldige controle van de roosteroriëntatie zijn noodzakelijk om een volledige en uniforme monolaagoverdracht te garanderen. Het niet overdragen van de lipidefilm op het TEM-roosteroppervlak veroorzaakt een hydrofobe roosteroppervlak, waardoor de buffer parelt op het koolstofoppervlak.
In deze studie werd alleen een cryo-plunjer met tweezijdige blotting geëvalueerd. Andere dopteringsmethoden, waaronder handmatige of eenzijdige dopping, zullen echter vergelijkbare resultaten opleveren, mits de lipidenfilm onbeschadigd blijft. Bij het aanpassen van dit protocol moeten lipidenroosters op vergelijkbare wijze worden behandeld als standaard TEM-roosters, met enkele belangrijke overwegingen. Plasmareiniging moet worden vermeden en de lipidenroosters moeten minimaal 15 minuten continu gehydrateerd blijven voordat het monster wordt aangebracht. Monsters moeten minimaal 15 minuten op het lipidenrooster worden geïncubeerd om oppervlakteadsorptie mogelijk te maken, en het rooster moet met ten minste één druppel verdunningsbuffer worden gecontacteerd voordat het wordt gedeponeerd om het uiteindelijke buffervolume op het roosteroppervlak te normaliseren. Het behouden van hydratatie van de Ni-NTA lipidenmonolaag tijdens de incubatie van het monster is cruciaal, omdat verdamping de lokale zoutconcentraties kan verhogen en mogelijk de eiwitstructuur of complexe assemblage kan veranderen. Langere incubatietijden (>30 min) kunnen de deeltjesdichtheid op het rooster verhogen, hoewel langdurige incubatie moet worden afgewogen tegen mogelijke monsterdegradatie. Het 60:40 vloeibare propaan-ethaan mengsel zoals beschreven in dit protocol wordt aanbevolen maar niet strikt vereist. Alternatieve propaan-ethaanverhoudingen of pure ethaan kunnen ook worden gebruikt in combinatie met een cryo-plunjer uitgerust met een ethaanbekerverwarmingssysteem om het cryogeen gedurende het hele experiment in vloeibare toestand te houden. Ten slotte wordt de deeltjesverdeling beïnvloed door de ijsdikte. In sommige gevallen kunnen deeltjes worden uitgesloten uit gebieden met bijzonder dun ijs, met name nabij het centrum van rastervakken. De blottingcondities moeten daarom mogelijk worden geoptimaliseerd voor elk vitrificatieapparaat. Over het algemeen bieden Ni-NTA lipide monolaag affiniteitsroosters een robuuste en toegankelijke strategie voor structurele bepaling van oplosbare polyhistidine-gelabelde eiwitcomplexen. Met zorgvuldige implementatie van de hier beschreven stapsgewijze procedure kan deze methode gemakkelijk worden geïntegreerd in standaard cryo-EM-workflows.
Dankbetuigingen
De auteurs bedanken Caleb Fisher, Rob McGinty, Nicholas Wright, Blake Fordyce en Bryan Roth van de University of North Carolina at Chapel Hill voor het leveren van buffers die in deze experimenten werden gebruikt. De UNC-Chapel Hill CryoEM Core Facility en het UNC Core Facility Advocacy Committee worden erkend voor technische en financiële ondersteuning. De Biomoleculaire Cryo-Elektronenmicroscopiefaciliteit van de afdeling Chemie en Biochemie van de University of California, Santa Cruz (RRID: SCR_021755), wordt erkend voor technische ondersteuning. Dit werk werd ondersteund door het National Cancer Institute van de National Institutes of Health onder toekenning nummer P30CA016086 en door een subsidie van de National Institutes of Health R35GM150960 toegekend aan Richard W. Baker.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1 mL volumetric flask with stopper | Avantor | 10124-382 | VWR Volumetrische kolf, helder glas, klasse A, geserialiseerd, met penningkop glazen stop, 1 mL |
| 2.5 µL glass syringe | Hamilton | 7632-01 | 2.5 Microliter-sering, verwijderbare naald (RN), geen naald inbegrepen |
| 3.7 mL threaded glass vial with phenolic cap | Fisher Scientific | 03338A | Fisherbrand klasse B helder glazen schroefdraad flesje met bijgevoegde sluiting, 3.7 mL |
| 4-slot cryo-grid box | MiTeGen | 71166-10 | Cryo Grid Box rond met deksel |
| 11.4 L plastic tub | Sterilite 12 qt vaatwasbak, multifunctionele plastic wasbak | ||
| 25 µL glass syringe | Hamilton | 80430 | 25 Microliter-sering, verwijderbare naald (RN), inclusief 22s gauge, 52 mm gebogen afgeschuinde naald |
| 25 mL volumetric flask with stopper | Avantor | 10123-994 | VWR Volumetrische kolf, helder glas, klasse A, geserialiseerd, met penningkop glazen stop, 25 mL |
| 99.5% pure ethanol | Thermo Fisher Scientific | 615090040 | Ethanol, 99.5%, ACS reagens, absoluut, 200 proof |
| 99.8% pure chloroform | Fisher Scientific | AA32614K2 | Chloroform, ACS, 99.8+% |
| Aluminum foil | Walmart | Aluminiumfolie, 30,4 cm breed | |
| Anionic surfactant powder | Fisher Scientific | 50-997-492 | Electron Microscopy Sciences Alconox anionisch poederdetergent, 4 lb |
| Baking dish | Walmart | Pyrex 232-D 3-quart diepe glazen bakvorm | |
| Blot paper | Ted Pella | 47000-100 | Standaard Vitrobot filterpapier, Ø55/20 mm, Grade 595 |
| Bottle of castor oil with dropper | Walmart | Biologisch ricinusolie met druppelbuisje, 1 fl oz | |
| Cryo-plunger | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | 18:1 (Δ9-Cis) PC (DOPC), 1,2-dioleoyl-sn-glycero-3-fosfocholine poeder, 25 mg |
| Fine-tip tweezers | Ted Pella | 505 | DUMONT Biology Grade pincetten, stijl 5, gepolijst roestvrij staal |
| Glass culture tube | Fisher Scientific | 14958A | Fisherbrand wegwerp flintglasbuis met platte punt, 1 mL |
| Glass pipet | Fisher Scientific | 13-678-20A | Fisherbrand wegwerp borosilicaatglas Pasteur-pipet, 14,6 cm |
| Gold-mesh holey-carbon TEM grid | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 mesh |
| Grade 1 filter paper | Sigma-Aldrich | WHA1001150 | Whatman kwalitatief filterpapier, Grade 1, 150 mm diameter |
| Large petri dish with cover | Fisher Scientific | 08747E | Corning PYREX herbruikbare petrischaal met deksel, 150 mm diameter, 15 mm hoogte |
| Low-lint tissues | Fisher Scientific | 06-666 | Kimtech Science Kimwipes delicate taakvegers, 1-laags |
| Ni-NTA lipid | Avanti Polar Lipids | 790404P-5mg | 18:1 DGS-NTA(Ni), 1,2-dioleoyl-sn-glycero-3-[(N-(5-amino-1-carboxypentyl)iminodiacetic acid)succinyl] (nikkelzout) |
| Pipet bulb | Fisher Scientific | S32325 | Fisherbrand rubberen bulb, natuurlijk, 2 mL |
| Reagent ethanol | Sigma-Aldrich | 362808-1L | Reagens alcohol ≥89% (GC), bevat 5% isopropylalcohol en 5% methylalcohol |
| Self-closing anti-capillary tweezers | Ted Pella | 510-5 | DUMONT anti-capillair omgekeerde pincetten, Biology Grade, stijl 5ACN, roestvrij staal |
| Self-sealing film | Fisher Scientific | S47529 | Parafilm M omslagfolie, 10 cm |
| Small petri dish with cover | Fisher Scientific | 08747A | Corning PYREX herbruikbare petrischaal met deksel, 60 mm diameter, 15 mm hoogte |
| Syringe needle | Hamilton | 7803-01 | 27 gauge klein-hub verwijderbare naald (RN), afgeschuind, 75 mm lengte, 45° hoek |
Referenties
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar