LC3-immunoblotting is een veelgebruikte methode voor het monitoren van autofagie, maar vereist zorgvuldige optimalisatie. Dit protocol beschrijft een robuuste aanpak voor de detectie en kwantificering van LC3-II in pancreascellen van KPC-afgeleide kankercellen, inclusief belangrijke technische overwegingen en een gestandaardiseerde workflow voor densitometrische analyse met Fiji.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Western blot-analyse van microtubuli-geassocieerd proteïne light chain 3 om autofagosomale dynamiek te monitoren in pancreaskankercellen afgeleid van muizen
In dit artikel
Samenvatting
Samenvatting
Autofagie speelt een complexe rol bij pancreasductaal adenocarcinoom (PDAC) en draagt bij aan tumorprogressie, stressadaptatie en therapieresistentie. Een nauwkeurige beoordeling van de autofagosomale dynamiek is daarom essentieel voor studies naar kankerbiologie. Onder de beschikbare methoden wordt immunoblotting van het microtubuli-geassocieerde eiwit light chain 3 (LC3) veelvuldig gebruikt om de autofagosomale dynamiek te monitoren door onderscheid te maken tussen de cytosolische (LC3-I) en de gelipideerde, aan autofagosomen geassocieerde (LC3-II) vormen. Echter, het lage molecuulgewicht van LC3 en het minimale verschil in elektroforetische mobiliteit tussen deze isovormen zorgen voor technische uitdagingen die zorgvuldige optimalisatie vereisen. Hier wordt een reproduceerbaar protocol gepresenteerd voor de semi-kwantitatieve analyse van LC3-II-niveaus via Western blot in KPC-afgeleide murine pancreaskankercellen. De methode bevat geoptimaliseerde condities voor cellysis, elektroforese, eiwitoverdracht en antilichaamgebaseerde detectie om een betrouwbare scheiding en detectie van LC3-isovormen te garanderen. Daarnaast wordt een gestandaardiseerde workflow voor densitometrische analyse van LC3-II-banden met behulp van Fiji (ImageJ) geboden. De gevoeligheid van de methode wordt aangetoond door de detectie van verhoogde LC3-II-niveaus onder condities van autofagie-inductie (gemcitabine-behandeling) en een verminderde autofagische flux (VMP1-knockdown). Kritieke technische parameters die de interpretatie van gegevens beïnvloeden, waaronder de samenstelling van de lysisbuffer en de specificiteit van het antilichaam, worden eveneens onderzocht, samen met veelvoorkomende experimentele valkuilen. Hoewel LC3-immunoblotting alleen onvoldoende is om de autofagische flux volledig te definiëren, biedt het in combinatie met aanvullende assays een robuuste en toegankelijke benadering voor het monitoren van autofagische activiteit. Het protocol kan worden aangepast aan andere experimentele contexten, wat mechanistische studies naar autofagie in kankermodellen faciliteert.
Inleiding
Macroautofagie (hierna aangeduid als autofagie) is een gereguleerde afbraakroute waarmee cellen cytoplasmatisch materiaal afbreken, waaronder eiwitten en disfunctionele organellen. Een kenmerk van autofagie is de vorming van een dubbelmembraanstructuur, bekend als het autofagosoom, dat cellulaire vracht isoleert en vervolgens naar lysosomen transporteert voor afbraak1,2,3. In normale cellen draagt autofagie bij aan de gecontroleerde omzetting van eiwitten en organellen, waardoor oxidatieve stress wordt beperkt en het risico op tumorontwikkeling wordt verminderd. In kankercellen kan dit proces echter worden ingezet om overleving te ondersteunen onder omstandigheden van een hoge metabole vraag, nutriëntentekort en hypoxie. Door adaptatie aan een vijandige micro-omgeving te faciliteren, draagt autofagie ook bij aan chemotherapie-resistentie, mede door behandelingsgeïnduceerde cellulaire schade te verzachten4,5.
Alvleesklierkanker is de op één na op één na belangrijkste doodsoorzaak door kanker in de Verenigde Staten. Ongeveer 90% van de alvleesklierkankers wordt geclassificeerd als pancreasa ductaal adenocarcinoom (PDAC). In tegenstelling tot verschillende andere maligniteiten, waarbij vroege detectie en therapeutische vooruitgang de overleving van patiënten hebben verbeterd, wordt PDAC in meer dan 80% van de gevallen in een gevorderd stadium gediagnosticeerd. Deze presentatie in een laat stadium, in combinatie met een agressieve tumorbiologie en een sterke resistentie tegen therapie, resulteert in een 5-jaars totale overlevingskans van ongeveer 11%6.
Het KPC-muismodel, gebaseerd op pancreas-specifieke activatie van oncogen Kras en conditionele deletie van Trp53 gestuurd door Cre-recombinase, is een van de meest gebruikte genetisch gemodificeerde modellen voor pancreasductaal adenocarcinoom. Deze muizen ontwikkelen spontaan tumoren die sterk lijken op de menselijke ziekte, waarbij ze progresseren van pancreatische intraepitheliale neoplasie (PanIN) naar invasief carcinoom. Belangrijk is dat dit model kernkenmerken van pancreascarcinoom reproduceert, waaronder een dicht desmoplastisch stroma en een immunosuppressieve tumormicro-omgeving. Tumorcellen geïsoleerd uit KPC-muizen (KPC-afgeleide cellen) bieden een complementair in vitro systeem dat veel van de genetische en fenotypische kenmerken van de oorspronkelijke tumoren behoudt, wat mechanistische studies en een gecontroleerde evaluatie van therapeutische responsen mogelijk maakt7,8.
VMP1 is een essentieel autofagie-gerelateerd eiwit dat autofagie initieert via interactie met Beclin-1 en rekrutering van het PI3KC3-complex9,10. Naast de initiatie participeert VMP1 in meerdere stadia van autofagie, waaronder de vorming van autofagosomen10, sluiting11 en selectieve processen zoals mitofagie12 en zymofagie13. VMP1 blijft betrokken gedurende de gehele autofagische flux en kan aanvullende functies uitoefenen als een fosfolipide-scramblase14. In de pancreas is de expressie van VMP1 doorgaans laag, maar wordt deze sterk geïnduceerd onder stressomstandigheden, waaronder pancreatitis en oncogene transformatie, waarbij het autofagie bevordert stroomafwaarts van gemuteerde KRAS-signalering15,16. VMP1 is overgeëxpresseerd in pancreaskanker17, en experimentele muismodellen hebben aangetoond dat VMP1-afhankelijke autofagie samenwerkt met KRAS om tumorinitiatie en PanIN-vorming te bevorderen18. Bovendien draagt VMP1 bij aan chemotherapie-resistentie, aangezien de upregulatie door middelen zoals gemcitabine19 autofagie stimuleert19 en de overleving van tumorcellen ondersteunt17, wat de pro-tumorigene rol ervan benadrukt15.
Autofagosomen worden gekenmerkt door de aanwezigheid van het autofagie-gerelateerde eiwit microtubule-associated protein light chain 3 (LC3)20. Onder basale omstandigheden is LC3 hoofdzakelijk aanwezig in een oplosbare vorm (LC3-I), die verspreid is over het cytoplasma en de kern. Bij activatie van autofagie ondergaat LC3 lipidatie door conjugatie aan fosfatidylethanolamine, waarbij de membraangebonden vorm LC3-II wordt gevormd1,21. Hoewel LC3-II door deze modificatie een hoger moleculair gewicht heeft dan LC3-I, migreert het sneller tijdens SDS-PAGE, waarschijnlijk vanwege de verhoogde hydrofobiciteit. Bijgevolg weerspiegelt de omzetting van LC3-I naar LC3-II lipidatie in plaats van proteolytische processing, waarbij LC3-I doorgaans wordt gedetecteerd bij ongeveer 16 kDa en LC3-II bij ongeveer 14 kDa. Omdat de LC3-II-niveaus correleren met de abundantie van autofagosomen, wordt LC3-immunoblotting op grote schaal gebruikt om de autofagische activiteit te monitoren22. Een nauwkeurige beoordeling van de LC3-dynamiek is daarom essentieel voor de interpretatie van experimentele resultaten met betrekking tot autofagie.
Deze studie beschrijft de standaardisatie en technische optimalisatie van een klassiek LC3-immunoblotprotocol in een KPC-afgeleide pancreaskankercellijn. Optimalisatie is bijzonder belangrijk omdat LC3 een eiwit met een laag molecuulgewicht is, de LC3-I- en LC3-II-vormen slechts ~2 kDa verschillen in elektroforetische mobiliteit, en LC3-II een gelipideerde soort is21,22. Bijgevolg kunnen kleine procedurele variaties de detectie van LC3 compromitteren en leiden tot suboptimale resultaten. Daarnaast is de soortoorsprong van de monsters een belangrijke overweging voor het bereiken van een optimale immunoreactiviteit. Het geoptimaliseerde protocol is gevoelig genoeg om verhoogde LC3-II-niveaus te detecteren na behandeling met het chemotherapeutische middel gemcitabine en na VMP1-knockdown, condities die respectievelijk bekend staan om het stimuleren van autofagie en het belemmeren van de autofagische flux. Tot slot worden twee potentiële technische valkuilen belicht om hun impact op de datakwaliteit en de interpretatie van de resultaten aan te tonen. Een overzicht van deze experimentele workflow is geïllustreerd in Figuur 1.
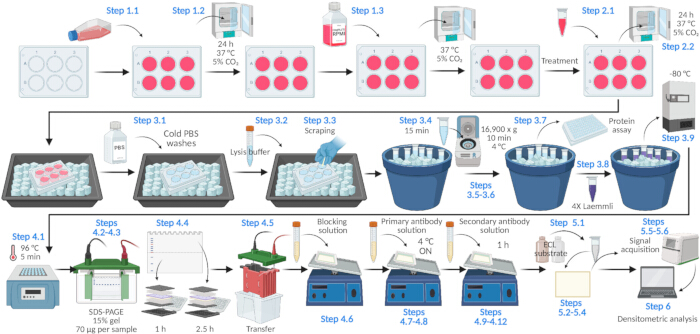
Figuur 1: Schematische weergave van het LC3-immunoblot-protocol in KPC-afgeleide cellen.Schematisch overzicht van het protocol dat is gebruikt om LC3-II-niveaus te detecteren en te kwantificeren via immunoblotting. KPC-afgeleide pancreaskankercellen worden gekweekt en onderworpen aan experimentele behandelingen, gevolgd door cellyse, eiwitkwantificering, SDS–PAGE, membraantransfer, antilichaamgebaseerde detectie van LC3, acquisitie van het chemiluminescentiesignaal en densitometrische analyse van LC3-II-banden genormaliseerd naar een loading control. De workflow markeert de belangrijkste procedurele stappen en kritieke fasen die nodig zijn voor een betrouwbare beoordeling van de LC3-dynamiek. Gemaakt met BioRender.com. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle procedures met dieren werden uitgevoerd in overeenstemming met de institutionele richtlijnen en goedgekeurd door de Institutional Animal Care and Use Committee (IACUC) van het Massachusetts General Hospital onder protocol #2019N000111. De KPC-afgeleide pancreaskanker-cellijn die in deze studie is gebruikt, was eerder ontwikkeld in het Mostoslavsky-laboratorium onder dit goedgekeurde protocol. De lijst met reagentia, chemicaliën en apparatuurinformatie wordt gegeven in de Tabel met Materialen.
1. Celpreparatie
- Zaai pancreasstollingscellen afgeleid van low-passage KrasG12D; Trp53f/+; p48-Cre (hierna aangeduid als KPC) in een 6-wells plaat in Roswell Park Memorial Institute medium (RPMI 1640) met 10% foetaal runderserum, 100 U/mL penicilline en 100 µg/mL streptomycine. Pas de zaaidichtheid aan om op de dag van lysis een confluentie van 70%–90% te verkrijgen.
OPMERKING: Een zaaidichtheid van 3,5 × 10⁵ cellen per well resulteerde in ~80% confluentie na 72 u. Omdat de groei kan variëren tussen laboratoria en KPC-modellen, dient de optimale zaaidichtheid empirisch te worden bepaald voordat het experiment wordt uitgevoerd.
OPMERKING: Om stabiele VMP1-knockdown cellijnen te genereren, worden lentivirale particles geproduceerd door HEK293T-cellen te co-transfecteren met packaging-plasmiden en de respectievelijke lentivirale vector met behulp van polyethyleenimine (PEI). Oogst de lentivirale supernatten 72 u na transfectie, centrifugeer deze bij 300 × g gedurende 10 min bij 4 °C om cellulair debris te verwijderen en filter deze door een 0,45 µm spuitfilter. Onderwerp de KPC-cellen aan één ronde van transductie met de geoogste virale supernatten. Selecteer stabiel getransduceerde cellen door behandeling met 2,5 µg/mL puromycine (1:4.000 verdunning van een 10 mg/mL stockoplossing) gedurende 72 u. - Kweek de cellen bij 37 °C in een bevochtigde incubator met 5% koolstofdioxide (CO₂).
- Vervang het medium door vers medium en zet de incubatie voort onder dezelfde omstandigheden.
2. Behandeling met 20 µM gemcitabine
- Bereid één dag voor de lysis een 10 mM gemcitabine-oplossing in RPMI-medium toe. Behandel elke put met 4 µL van de 10 mM oplossing om een eindconcentratie van 20 µM te bereiken.
- Incubeer de cellen gedurende 24 h bij 37 °C in een bevochtigde incubator met 5% koolstofdioxide (CO₂).
3. Cellysaten
- Plaats de plaat op ijs en was deze drie keer met koude fosfaatgebufferde zoutoplossing (PBS; 137 mM NaCl, 2,7 mM KCl, 8 mM Na₂HPO₄ en 2 mM KH₂PO₄).
- Voeg 80 µL lysebuffer (50 mM Tris-HCl, pH 8,0, 150 mM NaCl, 1% Triton X-100 en 0,1% SDS) toe, aangevuld met protease-remmers.
OPMERKING: Indien er verschillende confluentieniveaus tussen de wells worden waargenomen, pas dan het volume van de lysebuffer aan om vergelijkbare proteïneconcentraties te verkrijgen. Gebruik als richtlijn ~10 µL lysebuffer per 10% confluentie (bijv. 70 µL voor 70% confluentie en 90 µL voor 90% confluentie). - Schraap met het brede (proximale) uiteinde van een P200 pipetpunt grondig het gehele oppervlak van elke well om de cellen los te maken en te verzamelen in de lysebuffer.
- Verzamel het lysaat in een microcentrifugebuisje en houd dit 15 min op ijs.
- Centrifugeer de monsters bij 16.900 × g bij 4 °C gedurende 10 min.
- Overbreng het supernatant naar een schoon microcentrifugebuisje.
- Neem een aliquot af voor proteïnekwantificatie en houd deze op ijs tot aan de analyse.
OPMERKING: Verdun voor proteïnekwantificatie 2,5 µL lysaat in 7,5 µL lysebuffer en meng dit met 200 µL bicinchoninezuurreagens. Alternatieve methoden voor proteïnekwantificatie kunnen ook worden gebruikt. - Voeg 4× Laemmli-monsterbuffer (250 mM Tris-HCl, pH 6,8, 8% SDS, 40% glycerol, 0,04% bromofenolblauw en 20% β-mercaptoethanol) toe aan de lysaten en meng grondig. Voeg aan 77,5 µL lysaat 25,8 µL Laemmli-monsterbuffer toe.
- Bewaar de monsters bij −80 °C.
OPMERKING: Het protocol kan bij deze stap worden onderbroken. Monsters kunnen tot twee weken bij −80 °C worden bewaard vóór SDS–PAGE.
4. SDS–PAGE en Western blot
- Verwarm de monsters gedurende 5 min bij 96 °C.
- Laad 70 µg van elk monster op een 15% SDS-PAGE gel (1,5 mm dikte) en voer elektroforese uit bij 90 V totdat het kleurfront de scheidingsgel binnentreedt. Gebruik een zelfgegoten 15% polyacrylamide scheidingsgel met 15% acrylamide/bis-acrylamide, 375 mM Tris-HCl (pH 8,8) en 0,1% SDS.
- Verhoog het voltage naar 120 V en zet de elektroforese voort totdat het kleurfront de onderkant van de gel bereikt of passeert. Stop de run voordat de 10 kDa marker van de moleculaire gewichtsmarker de gel verlaat.
- Snijd de gel op ongeveer 25 kDa om het bovenste en onderste gedeelte te scheiden.
- Transfer de eiwitten naar een 0,2 µm PVDF-membraan, vooraf geactiveerd met methanol in transferbuffer (25 mM Tris-base, 192 mM glycine en 20% [v/v] methanol) bij 200 mA gedurende 1 u voor het onderste gelgedeelte (<25 kDa) en 2,5 u voor het bovenste gelgedeelte (>25 kDa).
- Blokkeer het membraan gedurende 1 u in blokkeringsbuffer onder zachte agitatie.
- Bereid een 1:1.000 oplossing van primair anti-LC3 antilichaam voor in blokkeringsbuffer met 0,1% Tween-20.
OPMERKING: Het primaire anti-LC3 antilichaam werd gebruikt in een verdunning van 1:1.000, en het anti-actine loading control antilichaam werd gebruikt in een verdunning van 1:4.000. - Incubeer het membraan overnacht bij 4 °C met het primaire anti-LC3 antilichaam onder zachte agitatie.
- Was het membraan vier keer gedurende 5 min met TBS-T (0,1% Tween-20 in TBS; 20 mM Tris-HCl, pH 7,6 en 150 mM NaCl).
- Bereid een 1:2.000 oplossing van horseradish peroxidase-geconjugeerd anti-rabbit secundair antilichaam voor in blokkeringsbuffer.
- Incubeer het membraan gedurende 1 u bij kamertemperatuur met het secundaire antilichaam onder zachte agitatie.
- Was het membraan vier keer gedurende 5 min met TBS-T.
- Was het membraan tweemaal met TBS.
5. Chemiluminescente detectie
- Bereid het twee-componenten verbeterde chemiluminescentiesubstraat voor door gelijke volumes Reagens A (luminol/enhancer-oplossing) en Reagens B (peroxide-oplossing) vlak voor gebruik te mengen.
- Dep voorzichtig overtollige vloeistof van het membraan met een laboratoriumdoekje.
- Plaats het membraan in een ondoorzichtige box.
- Voeg de verbeterde chemiluminescentie-oplossing toe aan het membraan, sluit de box en incubeer gedurende 5 min.
- Laat overtollige oplossing van het membraan aflopen en plaats het membraan in het imaging-systeem voor signaaldetectie.
- Neem beelden op volgens de instructies van de fabrikant voor het imaging-systeem.
6. Densitometrische analyse met Fiji
- Sleep en laat het afbeeldingsbestand in het Fiji-venster vallen om het te openen.
- Zet de afbeelding om naar 8-bit grijstinten (Image → Type → 8-bit).
- Roteer indien nodig de afbeelding om de banden horizontaal uit te lijnen (Image → Transform → Rotate).
- Schakel Preview in en stel het raster in op een passend aantal lijnen (bijv. 20).
- Pas de rotatiehoek aan totdat de banden correct zijn uitgelijnd.
- Gebruik de rechthoekige selectietool om een region of interest (ROI) te definiëren rond de eerste baan, waarbij alleen de band die overeenkomt met LC3-II wordt meegenomen.
OPMERKING: De selectie mag niet meer dan twee keer zo breed zijn als hij hoog is. Gebruik voor alle banden die in de analyse worden opgenomen dezelfde ROI-afmetingen. - Selecteer Analyze → Gels → Select First Lane.
- Verplaats dezelfde ROI naar de volgende baan en positioneer deze rond de overeenkomstige band.
- Selecteer Analyze → Gels → Select Next Lane.
- Herhaal stappen 6.6 en 6.7 totdat de laatste baan is geselecteerd.
- Genereer intensiteitsprofielen (Analyze → Gels → Plot Lanes).
- Gebruik de tool voor rechte lijnen om de basislijn van elke piek te definiëren en kwantificeer de bandintensiteit met de wand-tool.
- Normaliseer de waarden ten opzichte van een loading control.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Dit protocol beschrijft Western blotting om de LC3-dynamiek in een KPC-afgeleide pancreaskanker-cellijn onder verschillende experimentele omstandigheden te monitoren. Het protocol genereert chemiluminescente beelden van LC3 en een controle voor de belading. In deze studie werd actine gebruikt als controle voor de belading.
Twee representatieve toepassingen van het protocol worden getoond. Ten eerste werden controle-KPC-cellen vergeleken met met gemcitabine behandelde KPC-cellen. Gemcitabine is...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Dit artikel beschrijft de technische optimalisatie en standaardisatie van een klassiek LC3-immunoblottingprotocol in pancreaskankercellen afgeleid van KPC. Gezien de steeds meer erkende rol van autofagie en autofagie-gerelateerde eiwitten bij de ontwikkeling en progressie van pancreaskanker23, biedt deze gestandaardiseerde workflow een betrouwbare aanpak voor het monitoren van LC3-dynamiek. Het protocol kan worden toegepast om de autofagosomale pool te evalueren onder diverse experimentele conditi...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren dat er geen belangenverstrengelingen zijn.
Dankbetuigingen
This work was supported by grants from the Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) [PIP 2021–2023 GI-11220200101549CO], the Agencia Nacional de Promoción de la Investigación, el Desarrollo Tecnológico y la Innovación (Agencia I+D+i) [PICT-2021-I-A-00328], the Universidad de Buenos Aires [UBACyT 2023–2025, 20020220300232BA], and the Fundación Norberto Quirno, Ciudad de Buenos Aires.
The authors gratefully acknowledge The Company of Biologists for financial support through a Traveling Fellowship awarded by Disease Models & Mechanisms. This support contributed to the work arising from the funded visit. Further information about the charity is available at https://www.biologists.com/.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| C-DiGit Blot Scanner | LI-COR BioScience | 3600 | Gebruikt voor chemiluminescente detectie in stap 5.6 |
| 10x fosfaatgebufferde zoutoplossing (PBS) | Corning | 46-013-CM | Gebruikt voor het bereiden van steriele 1x PBS voor het wassen van cellen vóór het passeren in stap 1.1. |
| 2-Mercaptoethanol (β-mercaptoethanol) | Sigma-Aldrich (Merck) | M3148 | Gebruikt voor het bereiden van 4× Laemmli-monsterbuffer voor SDS-PAGE-monsterbereiding in stap 3.8. |
| 3D-shaker | DLAB | SK-D1807-E | Gebruikt voor het incuberen van membranen in blokkerings-, primaire en secundaire antilichoomlossingen, evenals tijdens wasstappen (stappen 4.6, 4.8, 4.9, 4.11, 4.12 en 4.13). |
| Celkweekplaat met 6 putjes | SORFA | SCP-11-006 | Gebruikt voor het uitzaaien van cellen in stap 1.1. |
| Acrylamide | Sigma-Aldrich (Merck) | A8887 | Gebruikt voor het bereiden van de 15% SDS-PAGE-gel die nodig is voor stappen 4.2–4.5. |
| Anti-Glyceraldehyde-3-fosfaatdehydrogenase, muis monoklonaal, kloon 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 Reactiviteit: mens, kat, varken, muis, konijn, vis, hond, rat. Gebruikt als ladingscontrole om de knockdown-efficiëntie te evalueren (figuren 2C en 2D). |
| Anti-muis IgG, HRP-gekoppeld antilichaam | Cell Signaling Technology | 7076 | RRID: AB_330924. Gebruikt voor het bereiden van de secundaire antilichoomlossing in stap 4.10. |
| Anti-konijn IgG, HRP-gekoppeld antilichaam | Cell Signaling Technology | 7074 | RRID: AB_2099233. Gebruikt voor het bereiden van de secundaire antilichoomlossing in stap 4.10. |
| Anti-β-actine (ACTB) antilichaam, muis monoklonaal, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 Reactiviteit: schaap, karper, kat, kip, rat, muis, Hirudo medicinalis, konijn, hond, varken, mens, rund, cavia. Gebruikt als ladingscontrole in figuren 2A, 2B, 2E, 2F, 2G en 2H. |
| Bromofenolblauw | Sigma-Aldrich (Merck) | B0126 | Gebruikt voor het bereiden van 4× Laemmli-monsterbuffer voor SDS-PAGE-monsterbereiding in stap 3.8. |
| Ethylendiaminetetraazijnzuur (EDTA) | Sigma-Aldrich (Merck) | E9884 | Gebruikt voor het bereiden van de lysisbuffer met laag detergentgehalte (figuren 2G en 2H). |
| Foetaal runderserum | NATOCOR | Lintc-634 | Gebruikt voor het bereiden van compleet medium voor het kweken van cellen (stappen 1 en 2). |
| Fiji | Open-source software | N/A | Software voor beeldanalyse |
| Glycerol | Sigma-Aldrich (Merck) | G5516 | Gebruikt voor het bereiden van 4× Laemmli-monsterbuffer voor SDS-PAGE-monsterbereiding in stap 3.8. |
| Glycine | Sigma-Aldrich (Merck) | G7126 | Gebruikt voor het bereiden van transferbuffer voor stap 4.5. |
| Immun-Blot PVDF-membraan, rol, 0,2 µm, 26 cm x 3,3 m | Bio-Rad | 1620177 | Gebruikt voor transfer in stap 4.5. |
| Intercept (TBS) blokkeringsbuffer | LI-COR BioScience | 927-60001 | Gebruikt voor blokkering in stap 4.6, en voor het bereiden van primaire en secundaire antilichoomlossingen in stappen 4.7 en 4.10. |
| LC3 A/B (D3U4C) konijn monoklonaal antilichaam | Cell Signaling Technology | 12741 | RRID: AB_2617131 Reactiviteit: mens, muis, konijn. Gebruikt voor het bereiden van de primaire antilichoomlossing in stap 4.7. |
| LC3B (D11) konijn monoklonaal antilichaam | Cell Signaling Technology | 3868S | RRID: AB_2137707 Reactiviteit: mens. Gebruikt als primair LC3-antilichaam in figuur 2H. |
| Methanol | Anedra | 6197 | Gebruikt om het PVDF-membraan te activeren en transferbuffer te bereiden in stap 4.5. |
| Millex-HV spuitfiltereenheid, 0,45 μm PVDF | Merck Millipore | SLHV033RS | Gebruikt voor het filteren van medium dat lentivirus bevat (stap 1.1). |
| Mini digitaal droogbad | Labnet International, Inc. | D 5060075 | Gebruikt voor het verhitten van monsters in stap 4.1. |
| Mini-PROTEAN Tetra elektroforesesysteem | Bio-Rad | 1658025FC | Gebruikt voor SDS-PAGE en transfer in stappen 4.2, 4.3 en 4.5. |
| MISSION shRNA gericht tegen muis Vmp1 (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | Gebruikt voor het genereren van stabiele VMP1-knockdown cellijnen (stap 1.1). |
| N,N'-methyleenbisacrylamide (bis-acrylamide) | Sigma-Aldrich (Merck) | M7279 | Gebruikt voor het bereiden van de 15% SDS-PAGE-gel die nodig is voor stappen 4.2–4.5. |
| Nabigem 1g gemcitabine | Microsules Argentina | M3060584-3 | Gebruikt voor gemcitabinebehandeling in stap 2. |
| Pen-Strep-oplossing | Sartorius | 03-031-1B | Gebruikt voor het bereiden van compleet medium voor het kweken van cellen (stappen 1 en 2). |
| Pierce BCA-proteïne assay kit | Thermo Fisher Scientific | 23227 | Gebruikt voor eiwitkwantificering (stap 3.7). |
| Pierce protease-remmer tabletten | Thermo Fisher Scientific | A32953 | Gebruikt voor het bereiden van lysisbuffer in stap 3.2. |
| Polyethylenimine HCl MAX, lineair (PEI MAX), MW 40.000 | Polysciences | 24765-1 | Gebruikt voor transfectie met lentivirale plasmiden (stap 1.1). |
| Kaliumchloride (KCl) | Sigma-Aldrich (Merck) | P9333 | Gebruikt voor het bereiden van PBS in stap 3.1. |
| Kaliumfosfaat monobasisch (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | Gebruikt voor het bereiden van PBS in stap 3.1. |
| PowerPac Basic stroomvoorziening | Bio-Rad | 1645050 | Gebruikt voor SDS-PAGE en transfer in stappen 4.2, 4.3 en 4.5. |
| Prestained ProteinLadder | Genbiotech | PM201 | Gebruikt voor SDS-PAGE in stappen 4.2 - 4.4. |
| Puromycine (10 mg/mL oplossing) | InvivoGen | ant-pr-1 | Gebruikt voor selectie van stabiel getransduceerde cellen (stap 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | Gebruikt voor het bereiden van compleet medium voor het kweken van cellen (stappen 1 en 2). |
| Natriumchloride (NaCl) | Sigma-Aldrich (Merck) | S9888 | Gebruikt voor het bereiden van PBS in stap 3.1, lysisbuffers in stap 3.2 en TBS in stap 4.9. |
| Natriumdodecylsulfaat (SDS) | Sigma-Aldrich (Merck) | L3771 | Gebruikt voor het bereiden van lysisbuffer in stap 3.2 en de 15% SDS-PAGE-gel die nodig is voor stappen 4.2–4.5. |
| Natriumfluoride (NaF) | Sigma-Aldrich (Merck) | S7920 | Gebruikt voor het bereiden van de lysisbuffer met laag detergentgehalte (figuren 2G en 2H). |
| Natriumfosfaat dibasisch (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | Gebruikt voor het bereiden van PBS in stap 3.1. |
| Sorval ST 16R centrifuges | Thermo Fisher Scientific | 75004380 | Gebruikt voor het centrifugeren van cellen in stap 1.1 en lysaten in stap 3.5. |
| SuperSignal West Pico PLUS chemiluminescent substraat | Thermo Fisher Scientific | 34577 | Gebruikt voor chemiluminescente detectie in stap 5.1. |
| Thermo Scientific 1300 Series A2 Class II, Type A2 biologische veiligheidskabinet | Thermo Fisher Scientific | 1386 | Gebruikt voor steriele handling van celkweken in stappen 1.1, 1.3 en 2.1. |
| Thermo Scientific BB 150 CO2 incubator | Thermo Fisher Scientific | BB150-2TCS-L | Gebruikt voor het kweken van cellen in stappen 1.2 en 2.2. |
| TMEM49/VMP1 (D1Y3E) konijn monoklonaal antilichaam | Cell Signaling Technology | 12929 | RRID: AB_2714018 Reactiviteit: mens, muis, rat. Gebruikt als primair antilichaam om de VMP1-knockdown-efficiëntie te verifiëren in figuren 2C en 2D. |
| Tris-base | Sigma-Aldrich (Merck) | T1503 | Gebruikt voor het bereiden van transferbuffer voor stap 4.5. |
| Trishydrochloride (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | Gebruikt voor het bereiden van lysisbuffers in stap 3.2, 4× Laemmli-monsterbuffer in stap 3.8, de 15% SDS-PAGE-gel die nodig is voor stappen 4.2–4.5, en TBS in stap 4.9. |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | Gebruikt voor het bereiden van lysisbuffers in stap 3.2. |
| Trypsine EDTA | Gibco | 11570626 | Gebruikt voor het passeren van cellen in stap 1.1. |
Referenties
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar