Met een ex vivo explant-model worden kleine stukjes van het rostrale deel van visceraal wit vetweefsel van magere muizen 7–10 dagen gekweekt, waardoor ontsteking in vetweefsel tijdens vetrijke voeding kan worden geïnduceerd en bestudeerd.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Een ex vivo muismodel voor vetrijke vetachtige vetweefselontsteking
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Dit protocol beschrijft een ex vivo muismodel dat geselecteerde cellulaire en inflammatoire kenmerken recapituleert die zijn waargenomen in visceraal vetweefsel (VAT) na voeding met een hoog vetdieet (HFD), zonder dieetinterventie in vivo. Kleine VAT-explanten van magere muizen worden 7–10 dagen gekweekt, waarin ze spontaan een inflammatoire fenotype ontwikkelen dat sterk lijkt op dat van VAT bij HFD-gevoede dieren. Belangrijk is dat het model de vetweefsel (AT)-architectuur behoudt, waardoor ontstekingsprocessen in een fysiologisch relevante context onderzocht kunnen worden. Tijdens de kweek komen belangrijke kenmerken van obesitas-gerelateerde ontstekingen naar voren, waaronder de vorming van kroonachtige structuren (CLS), de ophoping van metabolisch geactiveerde macrofagen (MMes) en verhoogde productie van inflammatoire cytokinen. Ondanks adipocytdood kunnen andere oorzaken van obesitasgerelateerde ontstekingen, waaronder metabole stressfactoren zoals verzadigde vetzuren, veranderde lipidenbeheersing, glucoseoverschot, oxidatieve stress, hypoxie, adipokine-onevenwicht en paracriene adipocyt–immuuncelsignalering, gedeeltelijk in het model worden weergegeven. Het systeem ondersteunt een breed scala aan downstream toepassingen, waaronder live imaging, flowcytometrie, kwantitatieve PCR, ELISA, immunokleuring en bulk- of single-cell RNA-sequencing. Daarnaast kunnen farmacologische en cytokine-gebaseerde behandelingen worden toegepast om signaalroutes en celtype-specifieke responsen te onderzoeken. Dit gemakkelijk aanpasbare model sluit aan bij de 3R-principes door het gebruik van dieren voor in vivo voedingsstudies te verminderen. Het model is reproduceerbaar, kosteneffectief en eenvoudig te implementeren, en biedt een veelzijdig platform voor het bestuderen van adipocytendood, de dynamiek van immuuncellen en therapeutische strategieën bij AT-ontsteking.
Inleiding
Adiposweefsel (AT) is een metabolisch actief orgaan dat bestaat uit ongeveer 20% adipocyten en een heterogene mix van immuuncellen, fibroblasten, voorlopercellen en vaatcellen bij mensen1. AT wordt ingedeeld in uniloculair wit vetweefsel (WAT), multiloculair bruin vetweefsel (BAT) en intermediair beige vetweefsel, wat een weerspiegeling is van heterogeniteit in samenstelling, functie en anatomische locatie. WAT is verdeeld over subcutane (SCAT), viscerale (VAT), perivasculaire en mergvet vetdepots, die verschillen in ontwikkelingsoorsprong, genexpressieprofielen en metabole functie. Naast zijn rol in lipidenopslag functioneert AT als een endocrien orgaan door cytokines, hormonen en adipokinesaf te scheiden. In vergelijking met SCAT is VAT metabolisch actiever en rijker in ontstekingscellen, waardoor het bijzonder relevant is voor studies naar AT-ontstekingen en stofwisselingsziekten zoals type 2 diabetes 3,4,5.
AT is een belangrijke regulator van de metabole gezondheid en speelt een centrale rol bij obesitas, die geassocieerd wordt met tal van comorbiditeiten. Obesitas bevordert adipocytenhypertrofie, hyperplasie en proliferatie6, terwijl AT-uitbreiding en ontsteking sterk correleren met hyperglykemie, hyperinsulinemie, hypertriglyceridiemie en verminderde glucosetolerantie3. De AT-uitbreiding wordt vermoedelijk gepaard gegaan met een verhoogde adipocytsterfte, met ongeveer 10% celomzet per jaar.7, wat macrofagenwerving activeert die essentieel is voor weefselverwijdering en remodellering8. Omdat adipocyten aanzienlijk groter zijn (100–200 μm) dan macrofagen, is efficiënte fagocytose door deze ongeveer vijf keer kleinere cellen een uitdaging, waardoor de weefselhomeostase wordt verstoord en chronische AT-ontsteking9 wordt bevorderd. Vetweefselmacrofagen (ATM's) bemiddelen de verwijdering van overgrote stervende adipocyten, hetzij door te fuseren tot multinucleaire reuzencellen (MGC's) of door kroonachtige structuren (CLS) rond dode adipocyten te vormen en deze af te breken via lysosomale exocytose 10,11,12. De overvloed van CLS correleert met obesitas-geassocieerde ontsteking11,13.
Bij gezonde AT zijn geldautomaten voornamelijk ontstekingsremmende M2-achtige macrofagen, terwijl obesitas een verschuiving naar een pro-inflammatoire M1-achtige fenotype 14,15 bevordert. Er ontstaan aanvullende mechanistisch onderscheidende macrofagensubsets, waaronder metabolisch geactiveerde macrofagen (MMes) en lipid-geassocieerde macrofagen (LAM's), die een belangrijke rol spelen bij het verwijderen van dode adipocyten via lysosomale exocytose 16,17,18.
Om AT-ontsteking te onderzoeken in een fysiologisch relevante meercellige omgeving, stelde het protocol een ex vivo muismodel op gebaseerd op organotypische explantatieculturen van VAT, afkomstig van magere muizen. VAT-explanten die 7–10 dagen zijn gekweekt, ontwikkelen een ontstekingsfenotype vergelijkbaar met dat waargenomen na minstens 12 weken vetrijk dieet (HFD) voeding met betrekking tot CLS-vorming, macrofaagfenotype en inflammatoire cytokineproductie 9,19. Belangrijk is dat deze aanpak het gebruik van dieren vermindert, de noodzaak van goedkeuringen voor dieetinterventies elimineert en bijdraagt aan de 3R-principes door de afhankelijkheid van langetermijnstudies over dieetinterventies te verminderen. In vergelijking met conventionele tweedimensionale (2D) celkweeksystemen, zoals enkelcelkweekmodellen (bijv. 3T3-L1-cellen of primaire adipocytenculturen), behoudt deze methode weefselcomplexiteit en cellulaire diversiteit, waardoor het onderzoek mogelijk is naar fysiologische cel-celinteracties, inclusief die tussen immuuncellen en adipocyten.
Gekweekte AT-explants zijn compatibel met een breed scala aan analytische benaderingen. Live confocale beeldvorming maakt monitoring mogelijk van ATM-accumulatie, CLS-vorming en MGC-vorming 9,19. Collagenase-digestie maakt isolatie van de stromale vasculaire fractie (SVF) mogelijk voor flowcytometrische analyses, waaronder proliferatie-assays en de bepaling van M1-achtige, M2-achtige of MMe-fenotypes12. Genexpressie-analyses, waaronder kwantitatieve PCR (qPCR) en RNA-sequencing, kunnen worden uitgevoerd op hele explants, SVF-cellen of gesorteerde macrofagen9. Eiwitexpressie en enzymatische activiteit kunnen worden beoordeeld met Western blotting of ELISA12,20,21, terwijl weefselarchitectuur en markerexpressie kunnen worden weergegeven door whole-mount kleuring en immunofluorescentie 9,22. Daarnaast zijn farmacologische en genetische interventies, waaronder ATM-uitputting en cytokinebehandeling, gemakkelijk haalbaar 21,23,24.
Samenvattend maakt dit ex vivo muismodel van HFD-achtige AT-ontsteking onderzoek naar adipocytsterfte, directe in situ observatie van cellulair gedrag en farmacologische of genetische manipulaties relevant voor AT-immunologie mogelijk (Figuur 1).
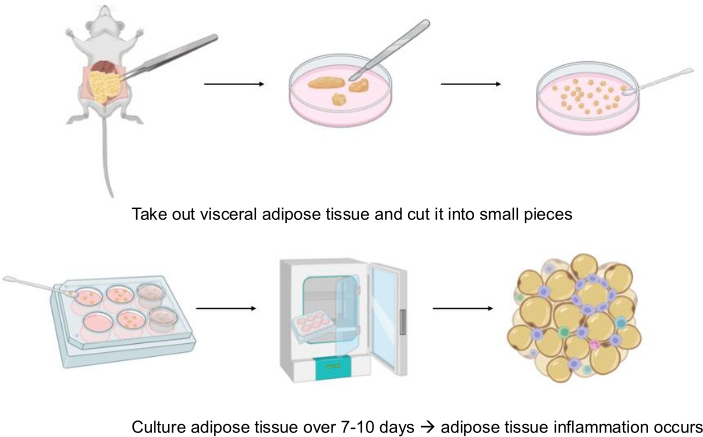
Figuur 1: Grafisch overzicht van de workflow. Visceraal vetweefsel (AT) wordt geïsoleerd uit muizen, in kleine explants gesneden en 7–10 dagen gekweekt. Tijdens de kweekperiode ontwikkelen explants een inflammatoire fenotype, waardoor vetweefselontsteking onder gecontroleerde ex vivo omstandigheden bestudeerd kan worden. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Dierproeven werden uitgevoerd volgens institutionele en nationale richtlijnen en goedgekeurd door de bevoegde regelgevende instanties. Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdTomatenmuizen ("MacFat", RRID: Csf1r-eGFP: RRID:IMSR_JAX:018549, Adipoq-iCreERT2: RRID:IMSR_JAX:025124, CAG-tdTomaten: RRID:IMSR_JAX:007914)27,28 werden gebruikt voor representatieve microscopie-experimenten. Deze reporterlijn maakt visualisatie mogelijk van macrofagen door GFP-expressie en adipocyten met tdTomato-expressie. Omdat tdTomato-expressie verloren gaat na adipocytsterfte, kan de levensvatbaarheid van adipocyten tijdens de kweek worden gemonitord. Csf1r-eGFP reportermuizen ("MacGreen", RRID:IMSR_JAX:018549)28 werden gebruikt voor macrofagenvisualisatie en flowcytometrie-analyses. C57BL/6J-muizen (RRID:IMSR_JAX:000664) werden gebruikt voor niet-beeldvormende experimenten, waaronder scRNA-seq en qPCR-analyses. Alle transgene lijnen werden onderhouden als heterozygote muizen op een C57BL/6J-achtergrond.
Dierproeven volgden de 'Principes van de laboratoriumverzorging' (NIH-publicatie nr. 85e23, herzien 1985) en specifieke nationale wetten en werden goedgekeurd door de lokale autoriteiten van de deelstaat Saksen: Landesdirektion in Leipzig, Duitsland (dierproeven: TV11-21-MEZ). Volgens lokale autoriteiten vormen de beschreven experimenten geen dierproeven, aangezien er staat: "als een gewerveld dier uitsluitend wordt gedood met het doel zijn organen of weefsels wetenschappelijk te gebruiken, wordt dit niet beschouwd als dierproeven onder § 7(2) van de Animal Welfare Act (TierSchG), maar eerder als doding onder § 4(3) van de Animal Welfare Act (TierSchG)." Het doden van de dieren moet worden gerapporteerd in een 'dierenrapport'. Dit rapport is opgenomen in de aanvraag voor dierproeven. De ethische commissie van de Faculteit Geneeskunde van de Universiteit van Leipzig heeft de onderzoeksprojecten eveneens goedgekeurd. Volgens de richtlijnen van de dierproevende toepassing TV11-21-MEZ worden de muizen geëuthanaseerd door een overdosis inhalatieanestheticum isofluran. Een effectieve gasconcentratie (5% in O₂-dragergas) wordt geleverd via een isofluranverdamper. De euthanasieprocedure is voltooid wanneer definitieve bloedstilstand (afwezigheid van ademhaling [veertest] en hartslag [palpatie]) is bevestigd.
Muizen werden gehuisvest in een temperatuurgecontroleerde (22 ± 2 °C), specifiek pathogegeervrije faciliteit aan de Universiteit van Leipzig, in broergroepen van 3–5 dieren onder een licht/donkercyclus van 12 uur. Dieren hadden ad libitum toegang tot water en een standaard chow-dieet (9% kcal vet; Sniff GmbH, Duitsland). Representatieve experimenten werden uitgevoerd met mannelijke en vrouwelijke muizen. De reagentia, chemicaliën en kits die in het protocol worden gebruikt, staan vermeld in de Materiaaltabel.
1. Voorbereidingen
- Bereid reagentia en apparatuur voor
- Bereid het kweekmedium voor onder steriele omstandigheden door RPMI-1640 aan te vullen met 10% foetaal rundserum (FBS) en 1% antibioticaoplossing.
- Verwarm het kweekmedium en steriel PBS tot 37 °C.
- Maak alle apparatuur en het werkgebied binnen de tissue culture hood schoon met 70% ethanol.
- Bereid dieren voor
- Offer muizen volgens de richtlijnen van de instelling. Weeg optioneel de dieren.
- Plaats de dieren in een glazen beker met 70% ethanol.
- Veeg de buitenkant van de glazen beker af met ethanol en breng het over in de tissue culture hood.
2. Isolatie van vetweefsel (Figuur 2)
- Maak de muis klaar
- Plaats de muis in rugligging in een glazen schaal met een stompe pincett, of pin hem op een dissectiebord.
- Voeg een dun laagje voorverwarmde PBS toe aan een petrischaal.
- Verander naar een nieuw paar handschoenen.
- Til de onderbuikhuid op met een tang en maak een kleine horizontale incisie met een schaar om de buikholte te openen.
- Maak een verticale incisie (~2 cm van staart tot rostral) die vanaf de eerste snede loopt om de inwendige organen bloot te leggen.
- Isoleer het vetkussen
- Met kleine scherpe schaaren en puntige pincetten lokaliseert en verwijdert u het witte vetweefsel. Gebruik een aparte set instrumenten om besmetting te voorkomen.
- Mannelijke muizen: Gonadalvet zit alleen vast aan de epididymis en testis. Tilt voorzichtig het vetkussen op en snijd boven de bijbel, of verwijder de bijbal en de testis samen met het gonadale vet, en verwijder ze daarna.
- Vrouwelijke muizen: Gonadaalvet zit vast aan de baarmoederhoorn en eierstokken en is prominenter dan bij mannetjes. Til voorzichtig het vetkussen op en verwijder langs de baarmoederhoorn en de eierstokken.
- Plaats de geïsoleerde vetpads in de met PBS gevulde petrischaal.
- Verwijder restepididymis, testikelbaard, eierstokken of bloedvaten met een scheermesje.
- Doe het schoongemaakte vetkussen in een tweede petrischaal met voorverwarmde PBS. Weeg eventueel de vetpads.
OPMERKING: Het wegen van de vetpads vóór kweek maakt het normaliseren van de weefselmassa tussen experimentele omstandigheden mogelijk.
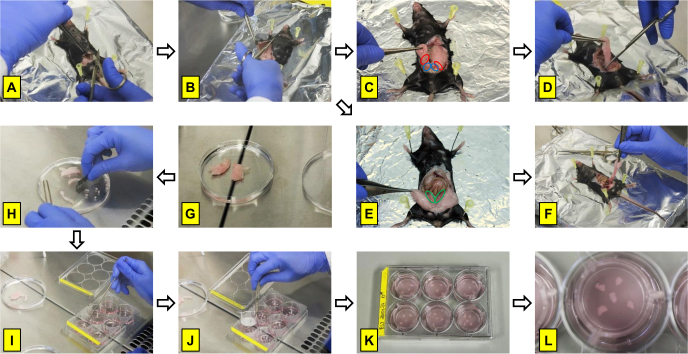
Figuur 2: Isolatie en kweek van viscerale vetweefselexplantaties. (A,B) Het openen van de buikholte en het blootleggen van visceraal vetweefsel. (C, D) Isolatie van epididymale vetweefsel van mannelijke muizen, vet wordt gehecht aan de epididymis (rode cirkels) en de testis (blauwe cirkels). (E, F) Isolatie van gonadale vetweefsel van vrouwelijke muizen, vet wordt gehecht aan de baarmoederhoorn (groene cirkels) en eierstokken. (G, H) Voorbereiding en trimmen van vetweefselexplantas. (I, J) Overbrengen van explants in kweekputten en plaatsing van celkweekinserts. (K, L) Representatieve beelden van explants tijdens kweek in platen met 6 putjes. Klik hier om een grotere versie van deze figuur te bekijken.
3. Bereiding en teelt van de explant
- Bereid excuses voor
VOORZICHTIG: Scheermesjes zijn scherp en kunnen letsel veroorzaken. Behandel de messen zorgvuldig en verwijder ze volgens de veiligheidsprocedures van de instelling.- Snijd het vetkussen in stroken en vervolgens in blokjes van ongeveer 10 mm3 (~10 mg per explant) met een scheermesje.
- Vestig explantculturen
- Voeg 1–1,5 mL kweekmedium toe aan elke put van een 6-wells plaat.
OPMERKING: Voor normalisatie gebruik je ongeveer 50 mg vetweefsel per 1 mL kweekmedium. - Breng vijf explants in elke put met een steriele lepel of spatel.
- Leg de explants gelijkmatig in een cirkelvormig patroon.
- Bedek de explants met een celkweekinzet met een steriele pincet.
OPMERKING: Vermijd het introduceren van luchtbellen bij het plaatsen van de inserts en zorg ervoor dat de explants in het midden erin zitten. - Incubeer de explants op 37 °C, 5% CO₂ en 21% O₂ gedurende 7–10 dagen.
OPMERKING: Gebruik voorverwarmde PBS en kweekmedium om de levensvatbaarheid van het weefsel te verbeteren. Werk snel om de tijd dat vetkussens buiten de broedmachine blijven liggen te minimaliseren. Voorkom besmetting met muizenvacht. Als haar aan het weefsel blijft plakken, verwijder het dan en spoel het weefsel uit met warme PBS.
- Voeg 1–1,5 mL kweekmedium toe aan elke put van een 6-wells plaat.
4. Downstream-analyses
- Na de kweekperiode van 7–10 dagen verzamelt u explants, stromale vaatfractiecellen of kweeksupernatanten voor downstream analyses, waaronder microscopie, flowcytometrie, qPCR, ELISA of RNA-sequencing, afhankelijk van het experimentele eindpunt.
5. Statistische analyse
- Voer statistische analyses uit met GraphPad Prism 10.2. Screendatasets voor uitschieters met de OUT-test (Q = 1%) en beoordeel de normaliteit met de Shapiro–Wilk-test (α = 0,05).
- Vergelijk twee groepen met behulp van gepaarde Student's t-tests of Wilcoxon matched-pairs, afhankelijk van de toepassing. Vergelijk meerdere groepen met eenrichtings-ANOVA gevolgd door Dunnetts post hoc-test. Beschouw statistisch significante verschillen bij p < 0,05.
- Presenteer gegevens als gemiddelde ± SEM. Tenzij anders aangegeven, definieer n als het aantal biologische replicaten (individuele muizen).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De algemene levensvatbaarheid van het weefsel bleef gedurende de hele kweekperiode gehandhaafd en werd gemonitord met verschillende complementaire benaderingen. De levensvatbaarheid van het weefsel kan worden beoordeeld met confocale microscopie met gebruik van levensvatbaarheidskleurstoffen zoals Calcein25, antilichaamkleuring tegen Perilipin om de integriteit van het adipocytmembraan 17,26 te evalueren, ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Gezien de toenemende wereldwijde prevalentie van metabole ziekten en diabetes, blijft het begrijpen van de mechanismen achter ontsteking van vetweefsel (AT) een belangrijk onderzoeksdoel. Om aan deze behoefte te voldoen, werd een ex vivo explantkweeksysteem ontwikkeld dat de inductie en analyse van AT-ontsteking onder gecontroleerde experimentele omstandigheden mogelijk maakt.
Een cruciale vereiste van deze methode is het behoud van de levensvatbaarhe...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren geen concurrerende belangen.
Dankbetuigingen
De auteurs bedanken Constance Hobusch en Florian Kirmse voor uitstekende technische ondersteuning. Flowcytometrie-analyses werden uitgevoerd bij de Core Unit Fluorescence Technologies van de Universiteit van Leipzig, met technische ondersteuning van Kathrin Jäger en Pia Glöckner. Dit werk werd ondersteund door de Deutsche Forschungsgemeinschaft (DFG, Duitse Onderzoeksstichting), Projectnummer 209933838 – SFB 1052 (Project B09).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| BD OptEIA Mouse TNF ELISA Kit | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | Flow cytometry: 1:10000; Staining: 1:2000 | Invitrogen | D3835 |
| Bovine Serum Albumin | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | Staining: 1:100; Flow cytometry: 1:200 | BioLegend | 121610 |
| CD11c – BV605 | Flow cytometry: 1:100 | BioLegend | 117334 |
| CD16/32 | Flow cytometry: 1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | Flow cytometry: 1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | Flow cytometry: 1:400 | BioLegend | 102606 |
| CD45 – PE | Flow cytometry: 1:100 | BD Pharmingen | 555483 |
| Click-iT Plus EdU Alexa Fluor 350 Flow Cytometry Assay Kit | EdU: 5 µM | Invitrogen | C10632 |
| Clodronate Liposomes | 500 µg/ml clodronate | Liposoma | |
| Collagenase Type 2 | 1 mg/ml, 315 U/mg | Worthington | LS004176 |
| CyQUANT LDH Cytotoxicity Assay Kit | Invitrogen | C20301 | |
| DAPI | Flow cytometry: 0.2 µg/ml | Thermo Fisher | 62248 |
| Ethanol | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | Flow cytometry: 1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | Flow cytometry: 1:200 | Invitrogen | 25-4801-82 |
| Fetal Calf Serum | 1.10 | Gibco | 10270106 |
| Fetal Calf Serum | 1.20 | Gibco | 10270106 |
| HBSS (-Mg, -Ca) | Gibco | 14170138 | |
| HEPES | 13 mM | Roth | HN77.2 |
| Hoechst 33342 | 1:10,000 | Life Technologies | H3570 |
| LysoTracker – AF647 | Flow cytometry: 1:20000; Staining: 1:10000 | Invitrogen | H34477 |
| MAC-2 | Staining: 1:1000 | Cedarlane | CL8942AP |
| Millicell Cell Culture Insert, 30 mm, hydrophilic PTFE, 0.4 µm | Merck Millipore | PICM0RG50 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Perilipin | 2 µg/ml | Abcam | ab3526 |
| Plexxicon 5622 | 40 µM | Plexxicon Inc. | HY-114153 |
| RPMI-Media 1640 | with 11 mM glucose | Sigma Aldrich | R8758 |
| RPMI-Media 1640 | Sigma | R8758 | |
| TC-Insert for 6-well plates | Sarstedt | 83.3930.040 | |
| TPP tissue culture test plate 6 | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| Zinc chloride | 0.8 mM | Sigma | Z0152 |
| Zinc formaline | Polyscience | 21516-3.75 |
Referenties
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
