Dit protocol beschrijft de isolatie, zuivering en kweek van zeer zuivere menselijke myeloïde cellen/microglia uit postmortem hersenweefsel verkregen via snelle autopsie van personen met en zonder het menselijk immunedeficiëntie virus-1 (HIV-1). Het biedt een robuust ex vivo platform voor het onderzoeken van de biologie van myeloïde cellen/microglia, HIV-reservoirs in de hersenen, neuro-inflammatie en strategieën voor de genezing van HIV.
Methodenartikel
Isolatie van hersenmicroglia om de persistentie van het humane immunodeficiëntievirus-1 te bestuderen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Wij hebben een robuust protocol opgezet en geoptimaliseerd om primaire humane myeloïde hersencellen (BrMCs) te isoleren, te kweken en te bestuderen uit postmortale hersenweefsels verkregen via snelle autopsie van personen met of zonder HIV-1 (HIV), waarbij >97,3% van de BrMCs hersenmicroglia (MG) zijn. Daarom verwijzen we naar deze geïsoleerde BrMCs als MG of BrMCs/MG om de celpopulaties beter te representeren. Deze methode maakt uitgebreid ex vivo onderzoek naar de microgliabiologie mogelijk, inclusief hun rol bij het in stand houden van HIV-reservoirs in de hersenen, het mediëren van neuroinflammatie en het bijdragen aan neuronale beschadiging, evenals de evaluatie van HIV-genezingsstrategieën.
Om de cellulaire levensvatbaarheid en de integriteit van RNA/eiwitten te behouden, werden hersenweefsels verzameld binnen 6 h na het overlijden, na een snelle onderzoeksautopsie. Meerdere regio's, waaronder de frontale, pariëtale en occipitale cortices, de hippocampus en de basale ganglia, werden verwerkt met behulp van enzymatische digestie en gecontroleerde mechanische dissociatie, gevolgd door dichtheids gradiëntcentrifugatie om levensvatbare enkelcel-suspensies te genereren met een efficiënte verwijdering van myelinerestanten en erytrocytenlyse. BrMCs/MG werden vervolgens gezuiverd via een isolatiebenadering in twee stappen, bestaande uit CD3⁺ T-celdepletie gevolgd door CD1b⁺ magnetische bead-verrijking om zuiverheid en specificiteit te waarborgen.
Gezuiverde myeloïde cellen werden gekweekt onder gedefinieerde condities, aangevuld met M-CSF om de levensvatbaarheid en functionele integriteit tijdens langdurige ex vivo kweek te behouden. Dit geoptimaliseerde platform biedt een betrouwbare, schaalbare basis voor downstream moleculaire, immunologische en virologische analyses van HIV-reservoirs in de hersenen en aanverwante mechanismen in BrMCs/MG.
Inleiding
Myeloïde hersencellen (BrMCs)/microglia zijn de belangrijkste aangeboren immuuncellen in het centraal zenuwstelsel (CZS)1,2,3. Onder gezonde omstandigheden monitoren ze constant de hersenen en helpen ze bij taken zoals synaptische snoei, het opruimen van debris en het ondersteunen van neuronen4,5,6. Bij ziekte worden microglia immunologisch geactiveerd, wat leidt tot neuroinflammatie, wat een essentiële rol speelt bij neurodegeneratie bij diverse CZS-stoornissen7,8,9. Tijdens een HIV-1 (HIV)-infectie vormen BrMCs/microglia, samen met T-cellen in het CZS en mogelijk astrocyten, het belangrijkste HIV-reservoir in de hersenen; dat laatste speelt waarschijnlijk een ondergeschikte rol in HIV-reservoirs in het CZS. Microglia bevatten latent geïnfecteerd, geïntegreerd proviraal HIV-DNA, maar behouden een lage HIV-RNA-expressie, ondanks effectieve antiretrovirale therapie (ART)10,1,12. Persistente HIV-infectie in BrMCs/microglia leidt tot chronische inflammatie en is geassocieerd met HIV-geassocieerde neurocognitieve stoornis (HAND), zelfs onder moderne ART, wat blijkt uit cognitieve, gedragsmatige en motorische symptomen bij tot 50% van de mensen met HIV (PWH)13,14,15,16. Daarom is het begrijpen van de functie van persistent HIV-geïnfecteerde microglia een van de sleutels tot het ontrafelen van het moleculaire mechanisme van HIV-infectie en latentie, de interactie van microglia met astrocyten en andere CZS-cellen, neuronale beschadiging en het ziekteproces van HAND, wat cruciaal is voor het vinden van behandeldoelen tegen neuroHIV1,12,17.
Er zijn echter technische uitdagingen bij het bestuderen van microglia met behulp van postmortem menselijk hersenweefsel. Een hoog myelinegehalte, vooral in de witte stof, kan cellen vangen en filters blokkeren, wat het celherstel verlaagt tenzij de myeline wordt verwijderd vóór de immunomagnetische selectie18,19. Na het overlijden van PWH kunnen celoppervlaktemarkers, zoals TMEM19 en P2RY12, worden afgebroken, waardoor het moeilijker wordt om microglia nauwkeurig te identificeren20,21. Daarnaast bevatten myeloïde cellen in HIV-geïnfecteerde hersenen perifere monocyten en weefselresidente macrofagen die enkele gemeenschappelijke markers met microglia delen; daarom zijn extra stappen nodig om de zuivere populatie BrMC's, in het bijzonder microglia, te verrijken2,23.
Huidige benaderingen voor het isoleren van menselijke microglia werken niet goed voor HIV-geïnfecteerde post-mortem weefsels. Fluorescence-activated cell sorting geeft uitgebreide resultaten, maar vereist dure apparatuur, neemt meer tijd in beslag en levert een lage celopbrengst op uit kleine hoeveelheden kostbaar menselijk hersenweefsel24,25. Immunopanning is specifiek, maar kan geen monsters van veel hersenregio's tegelijk verwerken en vereist een lange incubatietijd, wat niet geschikt is voor post-mortem weefsel dat een snelle weefselverwerking vereist na transport gedurende één nacht26,27. Bovendien staat geen van deze methoden het herstel van zowel T-lymfocyten als myeloïde cellen uit hetzelfde monster toe, wat nodig is voor een volledige immuunprofilering van HIV-geïnfecteerde cellen in het CZS17,28.
Dit protocol biedt een reproduceerbare, betrouwbare en efficiënte aanpak voor de isolatie en verrijking van microglia en andere immuuncellen van het centrale zenuwstelsel (CZS) uit postmortale menselijke hersenweefsels geïnfecteerd met hiv. Gecontroleerde mechanische dissociatie gecombineerd met milde enzymatische digestie (bijv. TrypLE Express en DNase I) kan oppervlakteantigenen grotendeels behouden en celaggregatie minimaliseren29,30. Myeline wordt verwijderd via Percoll dichtheidsgradiëntcentrifugatie, gevolgd door immunomagnetische scheiding van CD3⁺ T-cellen en CD1b⁺ myeloïde cellen31,32. Belangrijk is dat het gebruik van milde enzymatische condities de belangrijkste myeloïde markers behoudt, waaronder CD11b en CD68, evenals microglia-specifieke biomarkers zoals TMEM19 en P2RY12, waardoor we CZS-cellen nauwkeurig kunnen karakteriseren en analyses van downstream signaleringspaden kunnen uitvoeren3. De selectieaanpak in twee stappen genereert bovendien een zeer zuivere CD3⁺ T-cel fractie die geschikt is voor virologische en immunologische studies; dit is bijzonder relevant voor NeuroHIV, gezien de rol van T-cellen in het virale CZS-reservoir en hiv-gerelateerde neurologische schade na infiltratie van T-cellen in de hersenen34,35.
Over het algemeen verbetert deze sequentiële tweestapsbenadering—initiële depletie van CD3⁺ T-cellen gevolgd door verrijking van CD1b⁺ myeloïde cellen uit de CD3-negatieve fractie—zowel de celzuiverheid als de opbrengst aan CNS-cellen, terwijl het gebruik van deze kostbare, beperkte en waardevolle weefselmonsters wordt gemaximaliseerd. De geïsoleerde cellen zijn geschikt voor een breed scala aan downstream-toepassingen, waaronder bulk- en single-cell RNA-sequencing, flowcytometrie, functionele assays en virologische analyses, inclusief HIV DNA/RNA-kwantificering en viral outgrowth assays om de replicatie-competente virale reservoirs binnen CNS-residente immuuncellen te bepalen17,36,37.
Dit protocol is compatibel met laboratoria die zijn uitgerust voor de verwerking van postmortaal hersenweefsel onder BSL-2+ condities, aangezien veel PWH onder ART-suppressie staan of slechts een kortstondige ART-onderbreking hadden aan het einde van hun leven. Bovendien zijn slechts standaard platforms voor immunomagnetische scheiding en flowcytometrie vereist om de specificiteit van BrMCs/microglia na isolatie te valideren. Met kleine aanpassingen kan het protocol ook worden aangepast voor het bestuderen van CZS-ziekten zoals de ziekte van Alzheimer, multiple sclerose, long COVID19 en traumatisch hersenletsel38,39,40. Dit protocol is daarnaast geoptimaliseerd voor het isoleren van hersencellen uit SIVmac251- of SIVmac239-geïnfecteerde niet-menselijke primaten (NHPs)12,41, alsook uit gehumaniseerde muismodellen voor HIV-infectie of latentie, wat een fysiologisch relevant model biedt van HIV-infectie in de hersenen. In tegenstelling tot menselijke hersenen zijn deze diermodellen gemakkelijker toegankelijk en vormen ze een waardevolle aanvullende bron voor mechanistische en translationele studies naar HIV-infectie, HIV-latentie en de daarmee samenhangende neuroHIV.
Protocol
OPMERKING: Behandel alle menselijke/NHP-weefsels onder BSL-2-omstandigheden. Gebruik geschikte persoonlijke beschermingsmiddelen, waaronder een jas, handschoenen, een masker en een gelaatsscherm, voor de behandeling met Percoll, ACK-buffer en DMSO. Voer chemisch en biologisch afval af volgens de institutionele richtlijnen. Spoel alle wegwerpmaterialen die tijdens de weefseldissociatie zijn gebruikt, zoals scalpels, pipetten en petrischalen, af met 10% bleekmiddel voordat ze in biohazard-zakken worden weggegooid. Spoel herbruikbare instrumenten, zoals pincetten en scharen, af met 10% SDS voordat ze worden gewassen en geautoclaveerd.
1. Verzameling van hersenweefsel
- Menselijke monsters
OPMERKING: Menselijke weefsels die in deze studie zijn gebruikt, werden verkregen volgens protocollen die zijn goedgekeurd door de Institutional Review Board (IRB) van de University of California, San Diego (UCSD; IRB No. 160563)12. De menselijke donoren waren personen die leefden met HIV en antiretrovirale therapie (ART) ontvingen. Belangrijke donorkenmerken, waaronder leeftijd, geslacht, postmortaal interval (PMI) en ART-status, worden hier kort samengevat; deze donorkenmerken zijn zorgvuldig beschreven in de eerdere publicatie12.- Verzamel weefsels binnen ≤6 h na het overlijden om de celviabiliteit en RNA-integriteit te behouden en stuur deze binnen 24 h naar het verwerkingslaboratorium.
- NHP-monsters
OPMERKING: Rhesusmakaken (Macaca mulatta) werden gehuisvest in het Emory National Primate Research Center (ENPRC, PROTO20170286) of het California National Primate Research Center (CNPRC, UCD IACUC #2832). De dierverzorging en experimentele procedures werden uitgevoerd in overeenstemming met de regels van de respectievelijke Institutional Animal Care and Use Committees (IACUCs) en voldeden aan de institutionele en federale richtlijnen. Alle dierverzorgingsfaciliteiten zijn geaccrediteerd door het U.S. Department of Agriculture en de Association for Assessment and Accreditation of Laboratory Animal Care International (AAALAC).- Verzamel weefsels direct na necropsie12.
- Weefselverzameling
OPMERKING: Voer alle handelingen uit in vooraf gekoelde weegbakjes op ijs.- Verzamel 2–20 g per hersenregio (bijv. frontale, pariëtale, occipitale cortex, hippocampus, basale ganglia), afhankelijk van de beschikbaarheid van het weefsel.
- Plaats weefsels in ijskoud DMEM/F12 aangevuld met ART: 10 nM Nevirapine, 20 nM Raltegravir, 25 nM Darunavir. Houd de weefsels op 4 °C.
- Transportvoorwaarden
- Bewaar monsters in afgesloten buisjes op 4 °C op ijs.
- Laat de buisjes door gecertificeerd personeel transporteren volgens de UN373 Categorie B-regelgeving12. Verscheep deze overnight op ijs naar het verwerkingslaboratorium.
2. Weefselpreparatie
- Breng het weefsel over naar 50 mL buizen. Was het weefsel 10–15x door de buizen voorzichtig om te keren met 20–40 mL koud HBSS met DNase(10 U/mL) totdat het supernatant helder is.
OPMERKING: Dit verwijdert bloed, debris en contaminanten; zorg er daarom voor dat het volume voldoende is zodat de weefselstukjes vrij kunnen bewegen tijdens het wassen. - Verwijder de hersenvliezen en grote vaten met steriele pincetten en gooi deze weg.
- Breng het weefsel over naar een nieuwe Petrischaal en noteer het weefselgewicht (exclusief houder) per hersengebied.
- Scheur het weefsel met een steriel pincet in fragmenten van ~1–2 mm in ~10 mL HBSS + DNase I (10 U/mL).
OPMERKING: Het fijnmaken kan in de Petrischaal gebeuren met behulp van een scalpel.
3. Enzymatische digestie
- Bereid het digestiemengsel voor door 10 mL van een 1x recombinant cel-dissociatie-enzym en DNase I (eindconcentratie 10 U/mL) te mengen.
- Voorwarm de rotatieschudder tot 37 °C en het recombinant cel-dissociatie-enzym met DNase I (eindconcentratie 10U/mL) in een incubator bij 37 °C.
- Breng het weefsel in het digestiemengsel uit stap 3.1 over naar kolven (T150 voor volumes > 50 mL; kleinere kolven indien <50 mL) en incubeer in rotatieschudders bij: 37 °C, 150 rpm, 30 min.
- Tritureer voorzichtig door met 10 mL en vervolgens met 5 mL pipetten op en neer te pipetteren.
OPMERKING: Vermijd krachtig pipetteren. - Incubeer 5 min bij kamertemperatuur om het weefsel te laten bezinken.
- Celverzameling
- Verzamel het supernatant in een 50 mL buis; dit is Verzameling #1. Voeg 10% FBS toe aan het verzamelde supernatant om de enzymactiviteit te stoppen.
- Resuspendeer het resterende weefsel in HBSS + DNase I (10U/mL) + 10% FBS (10 mL/g weefsel). Tritureer voorzichtig en filter door 70–10 µm zeven.
OPMERKING: Als de enzymatische digestie adequaat is, zal al het weefsel door het zeef passeren. - Centrifugeer bij 50 × g, kamertemperatuur, 10 min; dit is Verzameling #2.
OPMERKING: Om het herstel te maximaliseren, laat de suspensie bezinken en breng alleen het supernatant over naar een nieuwe buis.
- Finale verwerking
- Centrifugeer de verzamelingen (C1 en C2) bij 50 × g gedurende 10 min.
- Verwijder de supernatanten. Voeg de celpellets van C1 en C2 samen in één enkele buis.
4. Verwijdering van myelineresten (Percoll-gradiënt)
- Bereid isotoon Percoll (SIP) voor door 9 delen Percoll te mengen met 1 deel 10x HBSS. Bereid voldoende volume om ~2,5 mL/g weefsel te hebben.
- Bereid een 35% Percoll-werkoplossing voor door 3,5 mL SIP te mengen met 5,5 mL 1x HBSS. Bereid voldoende volume om ~4,5 mL/g weefsel te hebben.
- Dichtheidsscheiding
- Resuspendeer de celpellet verkregen uit stap 3.7.2 in 35% Percoll. Gebruik ongeveer 4,5 mL 35% Percoll per gram van het oorspronkelijke weefselgewicht (d.w.z. het weefselgewicht gemeten vóór dissociatie).
- OPMERKING: Resuspendeer de cellen met 35% Percoll in een 50 mL buis (maximaal 30 mL per buis). Verdeel de cellen over meerdere 50 mL buizen als de weefsels groot zijn.
- Breng voorzichtig 10 mL 1x HBSS aan als bovenlaag in elke buis. Incubeer gedurende 5 min op ijs of bij 4 °C.
- Centrifugeer bij 800 × g, 45 min, 4 °C (zonder rem tijdens de vertraging).
- Herstel van de laag
- Verwijder voorzichtig het supernatant en de myeline-laag zonder de onderste interfase te verstoren.
- Verzamel de pellet en de interfase (onder de myeline-laag, bestaande uit gemengde hersencellen en de Percoll-fractie) in een nieuwe 50 mL conische buis om overdracht van debris te voorkomen.
- Verdunnen en wassen
- Voeg HBSS toe in een verhouding van 3:1 (bijv. 30 mL HBSS per 10 mL verzamelde suspensie) om Percoll te verdunnen (~3x verdunning).
- Centrifugeer bij 1.0 × g, 10 min bij 4 °C (gebruik volledige rem en versnelling).
- Verwijder het supernatant volledig.
- RBC-lyse en celtelling
- Behandel de celplaat uit stap 4.5.3 met ACK-buffer (5 mL, 10 min, 37 °C).
- Tel de levensvatbare cellen met behulp van Trypaanblauw.
- OPMERKING: Verwachte opbrengst: ~0,1–1 × 10⁶ CNS-cellen/g weefsel, afhankelijk van de conditie van de weefsels.
- Voeg 10 mL PBS toe om de ACK-lysebuffer te inactiveren. Centrifugeer bij 500 × g gedurende 5 min.
OPMERKING: Optionele stop: Cellen kunnen overnacht worden gekweekt vóór sortering bij een dichtheid van 0,5–1 × 10⁶ cellen/mL medium (DMEM/F-12, glutamine-supplement met natriumpyruvaat (50 mL), 10% hitte-geïnactiveerd FBS, 1x HEPES-bufferoplossing, 1x antibioticum-antimycoticum (5,5 mL van 10x stock), 10 ng/mL MCSF (1.0x stock).
Na voltooiing van de weefseldissociatie, RBC-lyse, celtelling en de optionele stappen voor overnacht kweek zoals hierboven beschreven, werden CD3+ en CD1b+ celpopulaties geïsoleerd met commercieel verkrijgbare celisolatiekits volgens de instructies van de fabrikant. Gedetailleerde informatie over de kits, reagentia en de volledige isolatieprocedure staat in de Tabel met materialen, met een beknopt overzicht van de isolatieworkflow hieronder.
5. Isolatie van CD3⁺ T-cellen (positieve selectie)
OPMERKING: Isoleer eerst CD3+ uit de bereide enkelcel-suspensie met behulp van een immunomagnetische positieve selectiekit voor CD3 in release-formaat (zie de Tabel met Materialen). Bewaar zowel de CD3+ als de CD3- fracties die in deze sectie zijn verkregen. De CD3- fractie is vereist voor Stap 6.
- Bereid de releasebuffer voor.
- Bereid de 1x releasebuffer voor door het 40x releasebufferconcentraat op de dag van gebruik te verdunnen in celseparatiebuffer en bewaar deze bij 4–6 °C of op ijs.
OPMERKING: Bereid 2,5 mL 1x releasebuffer voor per te verwerken monster.
- Bereid de 1x releasebuffer voor door het 40x releasebufferconcentraat op de dag van gebruik te verdunnen in celseparatiebuffer en bewaar deze bij 4–6 °C of op ijs.
- Bereid het celmonster voor en label dit met de selectiecocktail.
- Resuspendeer de celpellet uit stap 4.6.3 op 1 × 10⁸ cellen/mL in celseparatiebuffer in een polystyreen buis met ronde bodem van 5 mL.
- Voeg de CD3-selectiecocktail toe aan het monster in een hoeveelheid van 10 µL per mL monster. Meng het monster voorzichtig en incubeer 3 min bij kamertemperatuur.
- Label het monster met magnetische deeltjes.
- Vortex de magnetische deeltjes 30 s onmiddellijk voor gebruik. Voeg de magnetische deeltjes toe aan het monster in een hoeveelheid van 10 µL per mL per monster. Meng het monster voorzichtig en incubeer 3 min bij kamertemperatuur.
- Breng het monster met celseparatiebuffer aan tot een totaalvolume van 2 mL en meng door de suspensie twee of drie keer voorzichtig op en neer te pipetteren.
- Isoleer de CD3+ fractie door magnetische separatie.
- Plaats de open monsterbuis in de magnetische celseparator en incubeer 5 min bij kamertemperatuur.
- OPMERKING: Cellen die gebonden zijn aan de magnetische deeltjes vormen de CD3+ fractie en blijven aan de wand van de buis gehecht binnen het magnetisch veld; het ongebonden supernatant vormt de CD3- fractie.
- Pipetteer het supernatant, zonder de buis uit de magnetische separator te halen, in een schone, gelabelde conische buis van 15 mL bestemd voor de CD3- fractie.
- Haal de buis uit de magnetische separator en resuspendeer de achtergebleven cellen voorzichtig in 2 mL celseparatiebuffer.
- Herhaal stappen 5.4.1 tot en met 5.4.3 voor een totaal van drie magnetische separaties van 5 min, waarbij alle supernatanten worden samengevoegd in dezelfde CD3- fractiebuis.
- Maak de CD3+ fractie los van de magnetische deeltjes.
- Voeg 2,5 mL 1x releasebuffer (bereid in stap 5.1.2) toe aan de achtergebleven cellen en meng door de suspensie twee tot drie keer voorzichtig op en neer te pipetteren. Incubeer de suspensie 3 min bij kamertemperatuur.
- Plaats de open buis in de magnetische celseparator en incubeer 5 min bij kamertemperatuur.
- Pipetteer het supernatant, zonder de buis uit de magnetische separator te halen, in een schone, gelabelde conische buis van 15 mL bestemd voor de CD3+ fractie.
OPMERKING: De releasebuffer koppelt de magnetische deeltjes los van de gelabelde cellen: het resulterende supernatant is de gezuiverde CD3+ fractie, terwijl de resterende magnetische deeltjes gebonden blijven aan de wand van de buis in het magnetisch veld en worden weggegooid.
- Cel telling en cryopreservatie
- Tel de cellen en bewaar de CD3+ aliquot door aliquoten snap-te vriezen bij -80 °C nadat de overige cellen 24 u in een cryomengsel (90% FBS + 10% DMSO) in een isopropanol-gebaseerd vriesmedium zijn cryopreserveerd, en breng het monster vervolgens over naar vloeibare stikstof.
6. Isolatie van CD1b⁺ myeloïde cellen (uit de CD3⁻ fractie)
OPMERKING: De CD3- fractie die uit stap 5.4.4 was behouden, werd onderworpen aan een tweede immunomagnetische positieve selectiestap om CD1b+ myeloïde cellen te isoleren met behulp van anti-CD1b magnetische microbeads en een magnetische separator in kolomformaat (zie de Tabel met materialen).
- Bereid de scheidingsbuffer voor en bepaal het celgetal.
- Bereid de 1x BSA-gebaseerde scheidingsbuffer door de 20x concentraat te verdunnen in isotone spoeloplossing en houd de bereide buffer koud (4–8 °C) tot gebruik.
- Bepaal het totaal aantal cellen in de CD3-fractie met behulp van een hemocytometer of een automatische celteller.
- Label de cellen met anti-CD1b magnetische microbeads.
- Centrifugeer de celsuspensie bij 300 × g gedurende 10 min en aspireer het supernatant volledig.
- Resuspendeer de celpellet in 80 µL 1x BSA-gebaseerde scheidingsbuffer per 1 × 10⁷ totale cellen.
- Voeg 20 µL anti-CD1b magnetische microbeads toe per 1 × 10⁷ totale cellen, meng goed en incubeer gedurende 15 min bij 4–8 °C.
- OPMERKING: Incubatie op nat ijs in plaats van in een koelkast kan een langere incubatietijd vereisen. Incubatie bij hogere temperaturen of langer dan de aanbevolen tijd kan het risico op aspecifieke cellabeling vergroten.
- Was de gelabelde cellen door 1 mL 1x scheidingsbuffer per 1 × 10⁷ cellen toe te voegen, centrifugeer bij 30 × g gedurende 10 min en aspireer het supernatant volledig.
- Resuspendeer maximaal 1 × 10⁸ totale cellen in 50 µL scheidingsbuffer.
- Voer de kolomgebaseerde magnetische scheiding uit.
- Plaats een magnetische scheidingskolom in de magnetische separator en equilibreer deze door te spoelen met 50 µL 1x scheidingsbuffer voor een kolom met klein volume of 1 mL 1x scheidingsbuffer voor een kolom met groot volume; gooi het spoelmedium weg.
OPMERKING: Gebruik een kolom met klein volume wanneer het monster weinig totale cellen bevat. Gebruik een kolom met groot volume voor monsters met grote totale celgetallen, zoals milt-afgeleide of gecombineerde immuunpreparaten. - Plaats een schone, rondbodemige polystyreenbuis van 5 mL onder de geëquilibreerde kolom en breng de 50 µL (kolom met klein volume) of 1 mL (kolom met groot volume) gelabelde celsuspensie aan op de bovenkant van de kolom.
- Nadat het monster volledig in de kolom is gegaan, was de kolom drie keer door 50 µL 1x scheidingsbuffer per wasbeurt toe te voegen voor de kleine kolom of 1 mL per wasbeurt voor een grote kolom. Voeg elke volgende wasbeurt pas toe zodra het kolomreservoir leeg is.
OPMERKING: Het gecombineerde effluent dat is verzameld in stappen 6.3.2 en 6.3.3 vormt de niet-gelabelde, CD1b- fractie. - Verwijder de kolom uit de magnetische separator en plaats deze op een schone, gelabelde polystyreenbuis van 5 mL bestemd voor de CD1b+ fractie.
- Pipetteer 1 mL (kolom met klein volume) of 2 mL (kolom met groot volume) 1x scheidingsbuffer op de bovenkant van de kolom en spoel de gelabelde cellen onmiddellijk in de opvangbuis door de meegeleverde zuiger van de kolom stevig in te drukken.
- Plaats een magnetische scheidingskolom in de magnetische separator en equilibreer deze door te spoelen met 50 µL 1x scheidingsbuffer voor een kolom met klein volume of 1 mL 1x scheidingsbuffer voor een kolom met groot volume; gooi het spoelmedium weg.
- Kwantificering en verdere verwerking van de CD11b+ fracties
- Tel de cellen uit beide fracties (CD1b+ en CD11b-) en bewaar het CD1b- aliquot door deze snel te bevriezen bij -80 °C, nadat de overige cellen 24 uur lang in een cryomengsel (90% FBS + 10% DMSO) in een isopropanol-gebaseerd vriesmedium zijn cryopreserveerd, en breng het monster vervolgens over naar vloeibare stikstof.
- Gebruik de CD1b+ cellen voor verdere experimenten.
Resultaten
De geoptimaliseerde workflow die in dit protocol wordt beschreven, maakt de reproduceerbare isolatie van levensvatbare, sterk verrijkte T-cellen en BrMC's/microglia uit post-mortem HIV-geïnfecteerd menselijk hersenweefsel mogelijk. De succesvolle uitvoering van het protocol wordt bevestigd via een reeks kwaliteitscontroles, waaronder de beoordeling van de cellevensvatbaarheid, kwantificering van de opbrengst en immunofenotypische karakterisering in cruciale fasen. Representatieve resultaten van een succesvol experiment worden hieronder beschreven.
Weefseldissociatie en celterugwinning
Zoals uiteengezet in Figuur 1A, moet een goed verwerkt monster na mechanische dissociatie en dichtheidsgradiëntcentrifugatie een visueel heldere pellet opleveren met minimale residuele myelineresten na Percoll-centrifugatie. In representatieve experimenten met snel geautopsieerd hersenweefsel van PWH variëren de totale celopbrengsten vóór immunomagnetische selectie doorgaans van 8,0 × 10⁴ tot 1,0 × 10⁶ cellen per gram hersenweefsel, wat aanzienlijk lager is dan de opbrengsten uit miltweefsel (~5 × 10⁷ cellen/g) (Tabel 1), wat de inherente biologische verschillen tussen deze weefsels weerspiegelt.
Lagere opbrengsten of een verminderde levensvatbaarheid zijn vaak geassocieerd met verlengde postmortale intervallen (>24 h), suboptimale bewaarcondities van het weefsel of overmatige mechanische kracht tijdens de homogenisatie. In dergelijke gevallen lijkt de myeline-laag na Percoll-centrifugatie dikker en diffuser, en is de interfase die de CZS-cellen bevat minder duidelijk gedefinieerd. Onvolledige verwijdering van de myeline-laag (protocolstap 4.4) kan leiden tot contaminatie met myeline-debris, wat tijdens het tellen via trypaanblauw-uitsluiting onterecht als dode cellen kan worden geïdentificeerd. Deze contaminatie kan ook de daaropvolgende antilichaamlabeling belemmeren, waardoor de efficiëntie van de magnetische scheiding in het gedrang komt. Indien er een vermoeden is van myeline-overdracht, wordt een extra Percoll-gradiëntcentrifugatiestap aanbevolen vóór de immunomagnetische selectie.
CD3+ T-cel fractie
De stap voor positieve selectie van CD3⁺ T-cellen dient een dubbel doel: het verrijken van de T-cel fractie voor parallelle CNS-celanalyses en het verwijderen van infiltrerende T-lymfocyten uit de myeloïde-verrijkte fractie om potentiële T-celcontaminatie in de geïsoleerde myeloïde cellen uit te sluiten. In representatieve experimenten vormde de CD3⁺ fractie ongeveer 2–8% van de totale geïsoleerde cellen (ongeveer 1 × 10⁴ cellen/g weefsel) (Tabel 1), wat consistent is met eerdere rapporten die wijzen op beperkte en lage niveaus van T-celinfiltratie in HIV-geïnfecteerde CNS-weefsels.
Verrijking, karakterisering en ex vivo kweek van CD11b⁺ BrMC's
Na de CD3⁺-depletie werd de CD3⁻-fractie onderworpen aan CD1b⁺-selectie met behulp van magnetische microbeads. Zoals eerder gerapporteerd(12), stelde deze procedure ons in staat om CD1b⁺ BrMCs te verrijken tot 95,2%, vergeleken met 28,4% in de fractie vóór selectie. Zeer gevoelige RT-qPCR voor de T-celmarker CD3E (in staat om één T-cel in één miljoen BrMCs te detecteren) toonde geen detecteerbare T-cellen aan in de geïsoleerde BrMCs/microglia(12), wat de hoge zuiverheid bevestigde en elke contaminatie door T-cellen uitsloot.
Gezuiverde CD1b⁺ BrMC's werden vervolgens tot 2 weken gekweekt in microgliacellmedium om celherstel en aanhechting mogelijk te maken om zo de celgroei te initiëren. Zoals te zien is in Figuur 1B, vormden geïsoleerde menselijke BrMC's al op dag 5 na isolatie een monolaag en vertoonden zij een bipolaire morfologie. Deze cellen zijn nu gereed voor ex vivo metingen, karakterisering en daaropvolgende functionele assays. Een representatieve zuiverheidsanalyse op basis van flowcytometrie van de CD1b⁺-fractie geïsoleerd uit NHP-hersenen wordt getoond in Figuur 2A, waaruit blijkt dat 97,3% van de cellen CD1b en TMEM119 co-expressieerden. De zuiverheid van zowel menselijke als andere NHP BrMC-preparaten is eerder beschreven12. In die analyses werd de CD11b⁺-fractie verrijkt van 28,4% naar 95,5%, waarbij TMEM19⁺-cellen tot 95,9% van de geïsoleerde populatie uit menselijke monsters uitmaakten. Wij noemen deze cellen microglia, hoewel een klein deel andere hersenresidente myeloïde celpopulaties kan vertegenwoordigen.
Een soortgelijke procedure kan ook worden toegepast om CD3⁺ T-cellen en CD1b⁺ myeloïde cellen (SMC's) uit de milt te isoleren (Tabel 1). De zuiverheidsbeoordeling toonde ~98,9% CD3+ cellen en 99,3% CD1b+ cellen aan (Figuur 2B,C). Deze levensvatbare celpopulaties (Figuur 2E,F) konden in cultuur worden gehouden, wat gepaarde vergelijkende analyses met geïsoleerde CNS-cellen mogelijk maakte (Figuur 2D).
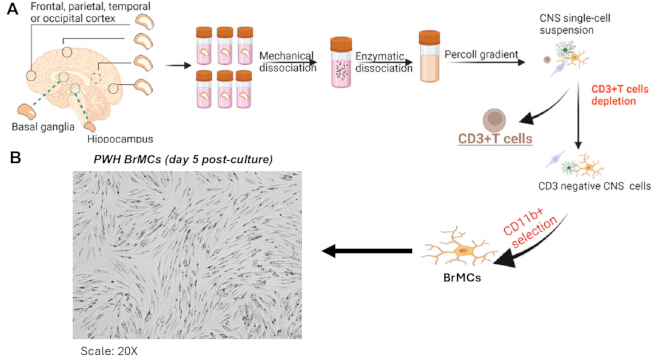
Figuur 1. Een sequentiële isolatieprocedure in twee stappen om BrMCs te zuiveren. (A) Schema van de isolatieprocedure voor CNS-cellen in twee stappen om CD1b⁺ BrMCs te zuiveren. (B) De morfologie van BrMCs (10x vergroting) na 5 dagen in kweek toont de succesvolle aanhechting van MG aan de kweekschaal. Afkortingen: BrMCs = brain myeloid cells; CNS = centraal zenuwstelsel; MG = microglia. Klik hier om een grotere versie van deze figuur te bekijken.
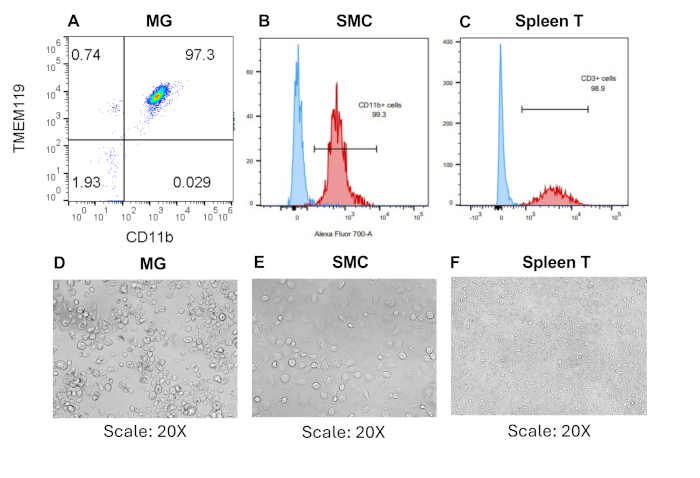
Figuur 2. Succesvolle isolatie van T-cellen en myeloïde cellen uit de milt. (A-C) Flowcytometrie-analyse van CD3⁺ en CD1b⁺ fracties met gebruik van de aangegeven antilichamen. (D-F) Representatieve afbeeldingen (onder) tonen microglia, CD3⁺ T-cellen en myeloïde miltcellen 7 dagen na kweek volgende isolatie uit de hersenen en de milt (Schaal: 20x). Afkortingen: SMCs = spleen myeloid cells; MG = microglia. Klik hier om een grotere versie van deze figuur te bekijken.
| Regio | Gewicht weefsel (g) | Vóór isolatie | CD3+ T-cellen | CD11b+ BrMCs/SMC | |||
| PWH | levende cellen | cellen/g weefsel | levende cellen | cellen/g weefsel | levende cellen | cellen/g weefsel | |
| FCP | 18.25 | 8.82E+06 | 4.83E+05 | 7.30E+05 | 1.3E+04 | 2.82E+06 | 1.5E+05 |
| PCT | 4.1 | 3.53E+05 | 8.61E+04 | 1.20E+05 | 2.93E+04 | ||
| TCX | 16 | 4.15E+06 | 2.59E+05 | 2.79E+06 | 1.74E+05 | ||
| OCC | 4.24 | 1.75E+06 | 4.13E+05 | 4.50E+05 | 1.06E+05 | ||
| CRB | 1.4 | 4.15E+06 | 3.64E+05 | 2.64E+06 | 2.32E+05 | ||
| H | 1 | 1.23E+06 | 1.23E+06 | 6.0E+04 | 6.0E+04 | ||
| SPL | 5.25 | 2.82E+08 | 5.37E+07 | 2.98E+07 | 5.68E+06 | 9.60E+06 | 1.83E+06 |
Tabel 1: De opbrengst van elk celtype na de tweestapsisolatie van CZS-cellen.
Discussie
Om reproduceerbare gegevens met dit protocol te verzamelen, is het belangrijk om elke stap zorgvuldig te volgen. Het overslaan of overhaasten van enig onderdeel kan de celopbrengst, levensvatbaarheid en zuiverheid verlagen. De meest kritische factor vóór de analyse is hoe snel weefsels na het overlijden worden verwerkt42. Menselijk hersenweefsel moet zo snel mogelijk worden behandeld, idealiter binnen 6–12 h. Langer wachten veroorzaakt de afbraak van microglia-oppervlakteantigenen zoals TMEM19 en P2RY12 en vermindert de cellevensvatbaarheid20. Om dit te voorkomen, is het essentieel om ervoor te zorgen dat weefsels prompt worden overgebracht en onmiddellijk bij 4 °C worden bewaard in HBSS met DNase I.
Mechanische dissociatie moet zorgvuldig worden afgesteld43. Te intensief homogeniseren breekt cellen af en laat DNA vrij, wat klontering veroorzaakt en zowel het rendement als de kolom-efficiëntie verlaagt4. Als weefsels onvoldoende worden gehomogeniseerd, blijven levende cellen gevangen in weefselfragmenten. Het toevoegen van DNase I aan het dissociatiemedium helpt klontering te voorkomen45. Meestal werkt het goed om drie tot vier maal te malen met tussentijdse spoelingen. Voor de Percoll-dichtheidsgradiëntcentrifugatie is het belangrijk om de centrifuge-instellingen exact te volgen en de rem niet te gebruiken, omdat dit de lagen mengt en de scheiding van de cellen verpest45. Bij het toevoegen van HBSS aan de Percoll-suspensie moet het HBSS langzaam langs de wand van de buis worden gegoten om de lagen gescheiden te houden. Als onderzoekers hier niet bekend mee zijn, is het raadzaam om eerst te oefenen met gekleurde oplossingen voordat waardevol weefsel wordt gebruikt. Tijdens de CD11b+ magnetische kolomscheiding moeten de cellen en alle buffers op 4–8 °C worden gehouden. Als de temperatuur tijdens de incubatie met microbeads boven dit niveau stijgt, kan dit leiden tot aspecifieke labeling, antibody capping en opname van beads, wat allemaal de zuiverheid en selectie-efficiëntie aanzienlijk zal verminderen3.
Dit protocol kan worden aangepast aan verschillende weefseltypen of laboratoriumopstellingen. Als het weefsel veel rode bloedcellen bevat, bijvoorbeeld wanneer de cardiale perfusie onvolledig is, kan een ACK-lysestap worden toegevoegd vóór de Percoll-gradiëntcentrifugatie om deze te verwijderen en de scheiding te verbeteren46. ACK-incubatie mag niet gedurende lange perioden worden uitgevoerd, omdat dit de levensvatbaarheid van leukocyten in gevaar kan brengen47. Als de opbrengsten laag blijven, moet het residu op het zeefje worden gecontroleerd onder een dissectiemicroscoop. Als er veel levensvatbaar weefsel aanwezig is, kan het aantal maalcycli worden verhoogd, of kunnen weefselstukjes kleiner dan 0,5 g per zeefje worden gesneden. Bij het herstellen uit de Percoll-gradiënt is het ideaal om een kleine hoeveelheid Percoll boven de pellet te laten in plaats van het risico te lopen de interfase te verliezen. Als de kolom verstopt raakt tijdens de MACS-scheiding, duidt dit meestal erop dat er te veel cellen zijn geladen of dat er residu in de suspensie aanwezig is.
Hoewel dit protocol is ontworpen voor HIV-geïnfecteerd menselijk hersenweefsel, zijn er enkele belangrijke beperkingen waar rekening mee gehouden moet worden bij het interpreteren van de resultaten. Mechanische dissociatie induceert altijd cellulaire stress, wat de genexpressie van microglia tijdelijk kan veranderen en inflammatoire pathways kan activeren3,48. Een andere beperking is het gebruik van CD1b als primaire selectiemarker. CD1b komt voor op veel myeloïde cellen van het CZS, niet alleen op microglia, en is ook aanwezig op infiltrerende monocyten en macrofagen, die vaker voorkomen in HIV-geïnfecteerd weefsel vanwege neuroinflammatie49. Om residente microglia te onderscheiden van infiltrerende cellen is verdere analyse nodig met microglia-specifieke markers zoals TMEM19, P2RY12 en SALL120,50. Een derde beperking betreft de beschikbaarheid van weefsel en verschillen tussen donoren. Postmortale menselijke hersenmonsters kunnen niet worden vervangen, wat het uiterst uitdagend maakt om het protocol te optimaliseren met technische replica's van dezelfde donor. Er zijn ook variaties tussen weefsels in opbrengst, levensvatbaarheid en microglia-activatie, vooral bij PWH, waarbij de neurocognitieve status, ART-geschiedenis en andere gezondheidsproblemen sterk variëren. Deze verschillen moeten zorgvuldig worden geregistreerd en gecontroleerd in experimenten.
Vergeleken met andere methoden bereikt FACS-gebaseerde isolatie met behulp van antilichamen tegen CD1b, CD45, TMEM19 of P2RY12 een hoge zuiverheid, maar vereist het dure apparatuur, is tijdrovend en verhoogt het de cellulaire stress3,51. Het resulteert bovendien in een lager celherstel dan methoden op basis van magnetische beads52. Immunopanning is zeer specifiek, maar ook tijdrovend, vereist een gespecialiseerde substraatpreparatie en is minder schaalbaar voor het verwerken van weefsel uit meerdere regio's53. Commerciële enzymatische dissociatiekits kunnen de opbrengst aan enkelvoudige cellen verbeteren en mechanische stress verminderen, maar ze zijn duurder en kunnen celoppervlaktemarkers wijzigen via proteaseactiviteit, waardoor de labelingsefficiëntie voor daaropvolgende immunomagnetische stappen of flowcytometrie afneemt54,5. Daarom bevat dit protocol een milde enzymatische digestie tijdens de belangrijkste dissociatiestap om oppervlakteantigenen te behouden, wat vooral belangrijk is voor gevoelige markers zoals CD1b, CD68 en TMEM119. De hier gebruikte stapsgewijze immunomagnetische depletie-verrijkingsbenadering, met CD3+ T-celdepletie gevolgd door CD1b+ positieve selectie, biedt een wezenlijk workflow-voordeel ten opzichte van éénstaps-protocollen. Het maakt T-celherstel mogelijk voor parallelle immunologische studies, terwijl de zuiverheid van de myeloïde fractie wordt gemaximaliseerd. Dit dubbele herstel is bijzonder nuttig in HIV-reservoironderzoek, waarbij zowel T-cellen als myeloïde cellen in het CZS belangrijk zijn om te bestuderen.
De geïsoleerde CD1b+ cellen kunnen worden gebruikt voor diverse onderzoeksapplicaties. Voor het bestuderen van virale reservoirs is deze fractie geschikt voor het meten van het HIV p24-antigeen, het HIV DNA/RNA-kopiegetal via droplet digital PCR en ex vivo virale uitgroeianalyses56,57. Al deze methoden vereisen levensvatbare, verrijkte myeloïde cellen en zijn essentieel voor het begrijpen van het CNS-reservoir dat persisteert ondanks ART58. Voor transcriptomische studies zijn cellen die met dit protocol zijn geprepareerd geschikt voor zowel bulk- als single-cell RNA-sequencing59,60. Dit stelt onderzoekers in staat om microglia-activatie, ziekte-gerelateerde microglia-signaturen en microglia-responsen op HIV-infectie op single-cell niveau te bestuderen61. Met kleine aanpassingen, zoals het gebruik van andere selectiekits en het aanpassen van gradiëntvolumes, kan deze workflow worden toegepast op andere neurologische aandoeningen, waaronder Alzheimer, multiple sclerose, long COVID19 en traumatisch hersenletsel, waarvoor microglia-analyse van post-mortem weefsel eveneens noodzakelijk is49,62.
Samenvattend biedt dit protocol een betrouwbare, schaalbare, flexibele en reproduceerbare methode voor het isoleren van myeloïde cellen/microglia uit menselijke en dierlijke hersenweefsels. Omdat het compatibel is met veel downstream-platforms en het mogelijk maakt om meerdere typen immuuncellen uit één enkel weefselmonster terug te winnen, is het een waardevol instrument voor onderzoekers in de neuro-immunologie, virologie en neuropathologie.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te verklaren.
Dankbetuigingen
Wij danken Dr. Sara Gianella van het "Last Gift"-cohort aan de UC San Diego voor het verzamelen van menselijke weefsels. Wij danken tevens Dr. Ann Chahroudi van het Emory National Primate Research Center, Dr. Afam Okoye van de Oregon Health & Science University en Dr. Satya Dandekar van de University of California, Davis, voor het leveren van weefsels van rhesusapen. Dit werk werd ondersteund door R21MH128034, R01MH136852, R21AI16709, R01MH13946 en R01AI18609. De financiers hadden geen enkele rol in het ontwerp van de studie, de gegevensverzameling en -analyse, de beslissing om te publiceren of de voorbereiding van het manuscript.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| spuiten van 10 mL | VWR | Cat# 76837-040 | |
| 25 mL serologische pipetten | VWR | Cat# 76201-710 | |
| ACK lysisbuffer | Thermo Fisher Scientific | Cat# A1049201 | |
| Antibioticum-antimycoticum (10x) | Thermo Fisher Scientific | Cat# 1524012 | |
| autoMACS spoelmiddel | Miltenyi Biotec | Cat# 130-091-2 | |
| Biosafety cabinet (BSL-2) | |||
| CD1b MicroBeads, mens en muis – gevriesdroogd | Miltenyi Biotec | Cat# 130-097-142 | |
| CD1b MicroBeads, niet-mensaap | Miltenyi Biotec | Cat# 130-091-10 | |
| CD3 MicroBead Kit, niet-mensachtige primaten | Miltenyi Biotec | Cat# 130-092-012 | |
| Cel telplaten | Thermo Fisher Countess | Cat# C10312 | Alternatief VWR, Cat# 1028-050 |
| Clorox kiemdodend bleekmiddel | Essendant | Cat# 5037150 | |
| Onbehandelde kweekschalen van Corning | Thermo Fisher Scientific | Cat# 08-72-32 | |
| M-CSF van de Cynomolgusapnoon | Kingfisher Biotech | Cat# RP1612Y-10 | |
| Wegwerpspuiten met Luer-Lok-aansluitingen | BD | Cat# 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | Cat# 1320082 | |
| DNase I, recombinant, RNase-vrij | Roche | Cat# 471672801 | |
| EasySep-buffer | STEMCELL Technologies | Cat# 2014 | |
| EasySep FITC Positive Selection Kit II | STEMCELL Technologies | Cat# 17682 | |
| EasySep Release Human CD3 Positive Selection Kit | STEMCELL Technologies | Cat# 1751 | |
| Falcon celzeven, 70 µm en 100 µm | Corning | Cat# 2108-950 | |
| Foetaal runderserum (FBS) | VWR | Cat#97068-091 | |
| Fijn gebogen pincet | VWR | Cat# 82027-410 | |
| Gentamicine | Thermo Fisher Scientific | Cat# 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | Cat# 1875-19 | |
| HBSS, 1x zonder calcium, magnesium en fenolrood | Thermo Fisher Scientific | Cat# 14175103 | |
| HBSS, 10x met calcium, magnesium, fenolrood | Thermo Fisher Scientific | Cat# 14060040 | |
| Hemocytometer of automatische celteller | |||
| Humaan M-CSF | PeproTech | Cat# 30-25 | alternatief Cat# 78057 |
| Isotoon spoel-/verdunningsmedium voor magnetische separatie | Miltenyi Biotec | 130-091-222 | |
| L-glutamine (20 mM) | Thermo Fisher Scientific | Cat# 25030-061 | |
| MACS BSA-stamloplossing (20x) | Miltenyi Biotec | Cat# 130-091-376 | |
| Magnetisch scheidingssysteem | EasySep of MACS | ||
| MS-kolommen | Miltenyi Biotec | Cat# 130-042-201 | |
| Penicilline-streptomycine | Thermo Fisher Scientific | Cat# 1514012 | |
| Percoll | Cytiva/GE Healthcare, | Cat# GE17-0891-01 | |
| Beschermende jassen | Kappler ProVent | Cat# 17-988-497B | |
| Gekoelde centrifuge | |||
| Natriumpyruvaat (10 mM) | Thermo Fisher Scientific | Cat# 1136070 | |
| Monsterpincet | VWR | Cat# 82027-40 | Alternatief cat.nr. 82027-438 |
| Steriele wegwerpscalpels | Cardinal Health | Cat# 11213-237 | VWR-alternatief Cat# 89140-80 |
| TrypLE Express-enzym (1x), fenolrood | ThermoFisher | Cat# 1250510 |
Referenties
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.